Ксенографтные модели — производные от клеточных линий (CDX), производные от пациента (PDX), гуманизированные и аутологичные — остаются основной платформой in vivo для разработки противоопухолевых препаратов; стандартизированная отчетность, рациональный выбор платформы и трансляция на основе ИИ определяют современную передовую практику.
Обзорная статья
Стандартизированные модели ксенотрансплантатов для доклинических исследований рака
В этой статье
Краткое содержание
Аннотация
Ксенографтные модели являются основной платформой in vivo в доклинической онкологии и наиболее признанной экспериментальной связью между культурой клеток и клиническими исследованиями. От моделей кроликов, подвергшихся воздействию канцерогенов в начале двадцатого века, до современного поколения гуманизированных систем ксенографтов, полученных от пациентов (PDX), эти платформы эволюционировали в соответствии с требованиями трансляционных исследований рака. В данном обзоре критически рассматриваются биологические принципы, методологические стандарты и трансляционные применения основных используемых в настоящее время платформ ксенографтов. Модели ксенографтов, полученных из клеточных линий (CDX), остаются наиболее широко используемым и экономически эффективным методом доклинического тестирования эффективности, обеспечивая воспроизводимость, масштабируемость и доступность, которые десятилетиями поддерживали их роль в процессах разработки онкологических препаратов. Модели PDX стали предпочтительной платформой для дизайна ко-клинических испытаний, поиска прогностических биомаркеров и применения в персонализированной онкологии, поскольку они сохраняют геномный ландшафт, внутриопухолевую гетерогенность и гистологическую архитектуру опухоли донора в ходе серийных пассажей. Рассматривается биология приживления систем PDX, включая выбор иммунодефицитных линий реципиентов, место имплантации, источник опухоли и биологию пассажей, а также гуманизированные и аутологичные гуманизированные конфигурации, которые расширяют возможности платформы для оценки ингибиторов контрольных точек иммунитета, биспецифических активаторов T-клеток и терапии химерными антигенными рецепторами T-клеток (CAR-T). В обзоре рассматривается трансляция из доклинической в клиническую фазу в зависимости от иммунологической дивергенции, неполного воспроизведения микроокружения опухоли и стандартизации. Формальные структуры, включая стандарт минимальной информации о моделях PDX (PDX-MI) и минимальную информацию для стандартизации гуманизированных мышей (MISHUM), рассматриваются наряду с глобальной инфраструктурой биобанков и новыми подходами к трансляционному моделированию на основе ИИ.
Введение
Рак остается одной из главных причин смертности во всем мире; по прогнозам, к 2040 году ежегодно будет регистрироваться около 28,4 млн новых случаев заболевания1. Несмотря на значительные успехи в терапии, включая применение молекулярно-таргетных препаратов, ингибиторов контрольных точек иммунного ответа, терапии химерными антигенными рецепторами Т-клеток (CAR-T) и конъюгатов антитело-лекарственное средство, у большинства пациентов с распространенными злокачественными новообразованиями развивается лекарственная устойчивость или отсутствует ответ на начальное лечение, а общие показатели пятилетней выживаемости для многих солидных опухолей остаются неудовлетворительными2. Разработка противоопухолевых препаратов по-прежнему сдерживается проблемой сложного трансляционного барьера. Значительная часть онкологических препаратов с многообещающей доклинической активностью оказывается неэффективной в ходе клинических испытаний, что указывает на то, что многие экспериментальные системы до сих пор не отражают биологические детерминанты ответа пациента3,4. Очевидна необходимость в доклинических системах in vivo, которые достоверно воспроизводят геномные, гистопатологические и фармакологические свойства рака человека. Ксенографтные модели остаются центральным звеном в решении этой проблемы, поскольку они представляют собой наиболее отработанный мост in vivo между клеточными культурами и клинической практикой. Ксенографтные модели создаются путем имплантации опухолевого материала человека иммунологически восприимчивому реципиенту, чаще всего иммунодефицитной мыши5. В данной области преобладают две основные формы: ксенографты, производные от клеточных линий (CDX), которые создаются на основе установленных линий раковых клеток, и ксенографты, производные от пациента (PDX), которые создаются путем прямого трансплантата свежего хирургического или биопсийного материала без промежуточного этапа длительного культивирования6,7. Ортотопические, диссеминированные, субкапсулярные (почечные), производные от органоидов и гуманизированные варианты дополнительно расширяют эти возможности за счет изменения места имплантации, исходного материала или иммунного статуса реципиента8,9,10.
Злокачественные новообразования человека представляют собой динамические системы, формирующиеся под влиянием соматических мутаций, эпигенетического репрограммирования, внутриопухолевой гетерогенности и непрерывных коэволюционных взаимодействий между популяциями неопластических клеток и стромальных клеток6,11. Хотя исторически клеточные линии рака считались менее эффективными предикторами клинического ответа3,4, с тех пор этот взгляд был пересмотрен10,12,13. Несмотря на то что клеточные линии подвержены геномному дрейфу, потере стромальных и иммунных компонентов, а также отклонению от гетерогенности родительской опухоли, значительная часть их кажущейся непредсказуемости отражает особенности дизайна исследований (малые панели, несоответствие гистологических типов и отсутствие молекулярной стратификации), а не внутренние недостатки модели14. Модели PDX частично решают основные проблемы моделей клеточных линий (геномный дрейф, потеря гетерогенности и отсутствие стромы) путем трансплантации свежих фрагментов опухоли пациента непосредственно иммунодефицитным мышам, что позволяет сохранить гистологию донора, геномную архитектуру и аспекты организации стромы на протяжении ранних пассажей; при этом ортотопические, диссеминированные, субкапсулярные почечные, производные от органоидов и гуманизированные варианты расширяют возможности данной платформы в зависимости от места имплантации, исходного материала и иммунного статуса реципиента10. Масштабные популяционные испытания PDX воспроизводят клинические ответы на уровне показаний12, а согласованные пары «пациент–PDX» демонстрируют ~87% конкордантности с исходами отдельных пациентов, хотя специфичность в данном анализе составила 70%13.
Спектр ксенографтов расширяется и включает гуманизированные платформы, в которых PDX-опухоли выращиваются в организмах хозяев, реконструированных компонентами иммунной системы человека9, а также ортотопические модели в анатомически соответствующих первичных очагах и метастатические варианты14. В то же время данный обзор сосредоточен на мышиных моделях ксенографтов; дополнительные системы, такие как анализы на хориоаллантоической мембране (CAM) цыплят15, ксенографты на эмбрионах zebrafish16 и органоиды, полученные от пациентов17, могут предложить ортогональные преимущества в скорости, пропускной способности и масштабируемости, что позволяет интегрировать их в многоплатформенные доклинические рабочие процессы. Инфраструктура международного биобанкинга PDX существенно расширилась за последнее десятилетие18, и были установлены формальные стандарты — стандарт минимальной информации о PDX-моделях (PDX-MI)19 и минимальная информация для стандартизации гуманизированных мышей (MISHUM)20; однако неполное внедрение этих стандартов в опубликованной литературе остается структурным барьером для трансляции в клинику. Формальные системы стандартизации были созданы для гармонизации отчетности по клиническим аннотациям, методологии приживления, истории пассажей, контролю качества и параметрам иммунной реконструиции. Несмотря на эти достижения, ни одна отдельная платформа ксенографтов не является достаточной для решения любого трансляционного вопроса. Модели PDX по своей природе медленны, ресурсозатратны и характеризуются вариабельной частотой приживления, в то время как системы гуманизированных ксенографтов, хотя и частично устраняют иммунодефицит обычных хозяев для PDX, вносят дополнительную вариабельность из-за неполной иммунной реконструиции9, гетерогенности доноров21 и ограничений, связанных с реакцией «трансплантат против хозяина»22. Более того, стандартизация остается неравномерной: протоколы создания моделей, соглашения о нумерации пассажей, методы аутентификации, количественная оценка роста опухоли, иммунный мониторинг, определения конечных точек и общее качество отчетности существенно различаются между учреждениями и публикациями23. В данном обзоре рассматриваются модели ксенографтов через призму стандартизации и практического выбора моделей. Рассматривая CDX как основной инструмент для ранних исследований in vivo, а PDX — как более высокоточную, но более ресурсозатратную платформу, мы синтезируем современные данные по таксономии моделей, биологии линий хозяев, детерминантам приживления, биобанкингу, геномной стабильности, дизайну количественных исследований и структурам отчетности, а также сопоставляем системы ксенографтов с сингенными моделями, органоидами, генетически модифицированными мышиными моделями (GEMM) и экспресс-анализами. Основной тезис заключается в том, что стандартизацию следует понимать не как попытку свести все исследования к одному классу моделей, а как структуру, определяющую, как каждая платформа создается, валидируется, описывается и рационально позиционируется в рамках интегрированного доклинического процесса (Рисунок 1).
Обзор и перспектива
История развития и таксономия
Демонстрация рака кожи у кроликов, вызванного канцерогенами, проведенная Ямагивой и Итикавой в 1915 году, заложила концепцию экспериментальных моделей опухолей24. В середине двадцатого века появились сингенные модели с фундаментальными линиями, такими как карцинома легкого Lewis, карцинома молочной железы 4T1, колоректальная карцинома CT26 и меланома B16, которые сохраняют свою полезность и в современную эпоху иммуноонкологии25. Открытие Флэнаганом в 1966 году атимических «голых» мышей предоставило первого иммунокомпрометированного реципиента, способного переносить ксеногенные ткани26, что позволило Ригаарду и Повлсену в 1969 году впервые успешно осуществить трансплантацию колоректальной опухоли человека27. Последующая разработка линий на базе SCID, NOD/SCID и дефицитных по общей гамма-цепи рецептора IL-2 (Il2rg) постепенно устранила барьеры в виде Т-клеток, В-клеток и NK-клеток28, что привело к формированию современной таксономии: CDX, PDX, ортотопических и диссеминированных вариантов, ксенографтов на основе органоидов и гуманизированных ксенографтов6.
Панель NCI-60, созданная в конце 1980-х годов для скрининга in vitro 60 линий раковых клеток человека из девяти типов тканей, институционализировала систематическую оценку лекарственных средств и на несколько десятилетий заложила основу доклинической фармакологии на базе клеточных линий; при этом перспективные соединения переходили к исследованиям подкожных CDX-моделей на атимических голых мышах с использованием стандартизированных конечных точек, таких как %T/C (процентное отношение объема опухоли в опытной группе к контрольной), задержка роста опухоли и летальность, вызванная действием препарата, что позволяло проводить сравнение между исследованиями29. CDX-модели остаются наиболее широко используемой и экономически эффективной платформой для доклинического тестирования эффективности; результаты исследований подкожных CDX-моделей получаются в течение 5–7 недель (Рисунок 1), и они играют центральную роль в рабочем процессе разработки лекарств для оптимизации дозы, характеристики фармакокинетики/фармакодинамики (PK/PD), количественной оценки ингибирования роста опухоли (TGI) и оценки показателей выживаемости (Рисунок 2).
С практической точки зрения таксономия моделей ксенографтов определяется тремя переменными: источником опухоли, местом имплантации и генетическим фоном реципиента. Модели CDX основываются на установленных клеточных линиях рака со стабильными поставками и обширной молекулярной и фармакологической аннотацией в таких ресурсах, как Cancer Cell Line Encyclopedia30. В моделях PDX используются свежепересаженные фрагменты опухолей пациентов для сохранения гистологии донора, геномной архитектуры и внутриопухолевой гетерогенности, хотя при серийном пассировании человеческая строма постепенно замещается мышиной стромой10. Место имплантации определяет биологический контекст: подкожная трансплантация обеспечивает техническую простоту, воспроизводимость и возможность серийного измерения штангенциркулем; ортотопическая имплантация восстанавливает органоспецифическое микроокружение и поддерживает клинически значимые паттерны спонтанного метастазирования; внутрисосудистое введение (в хвостовую вену, внутрисердечное, внутриселезеночное) позволяет создавать экспериментальные модели метастазирования для изучения более поздних этапов метастатического каскада, таких как экстравазация и колонизация14; а имплантация под капсулу почки использует высоко васкуляризированный участок, что значительно повышает приживаемость опухолей, трудно поддающихся трансплантации31.
CDX и PDX: взаимодополняющие роли в доклинической онкологии
Накапливающиеся данные свидетельствуют о том, что модели CDX обладают ограниченной способностью предсказывать клинический ответ на препараты, что послужило стимулом для пересмотра методологии доклинической онкологии. Установленные линии раковых клеток, содержащиеся неопределенно долго в искусственной культуре, подвергаются прогрессивному клональному отбору, транскрипционной дивергенции и потере стромального и иммунного контекста по сравнению с первичными опухолями, из которых они были получены. Модели PDX сохраняют гистологию донора, геномную архитектуру и внутриопухолевую гетерогенность в течение последовательных пассажей10. В 2006 году платформа PDX для рака поджелудочной железы впервые продемонстрировала возможность прогнозирования ответа на препарат на основе биомаркеров32. В 2011 году платформа «xenopatient» объединила 85 молекулярно аннотированных моделей PDX колоректального рака, воспроизвела паттерны клинического ответа на цетуксимаб и идентифицировала амплификацию HER2 как таргетный механизм резистентности, что было впоследствии подтверждено в исследованиях HERACLES33,34. В знаковом исследовании 2015 года был применен дизайн клинического испытания PDX (PCT) по схеме 1 × 1 × 1 на ~1 000 моделях и 62 режимах лечения, что позволило воспроизвести ассоциации между генотипом и ответом, а также выявить новые механизмы резистентности, утвердив фармакологию в масштабе PDX как надежный связующий этап для разработки дизайна клинических исследований12.
Несмотря на эти достижения, модели CDX остаются «золотым стандартом» для ранней доклинической оценки потенциальных терапевтических препаратов in vivo, поскольку они позволяют быстро, в контролируемых условиях и с минимальными затратами получать результаты: аутентифицированные клеточные линии могут быть подвергнуты генетическим манипуляциям, масштабированы и имплантированы в большие согласованные когорты с сравнительно низким уровнем биологического шума. Это обеспечивает интерпретируемые показатели эффективности, фармакодинамики и переносимости в сроки, которые непрактичны для PDX или гуманизированных систем. Канонические линии, такие как HCT116, A549 и U8735, опираются на многолетнюю литературу по механизмам действия и общедоступные омиксные ресурсы, а ортотопические или диссеминированные варианты CDX расширяют их применение для изучения тканевого тропизма, метастатической колонизации и сайт-специфической терапии без потери операционных преимуществ10. Для проверки гипотез, касающихся зависимости от мишени, оптимизации режима дозирования, сравнительной эффективности или подтверждения механизма действия, CDX остается подходящей первичной платформой in vivo. Признанные ограничения данной модели, включая клональный дрейф, отсутствие стромы и иммунных компонентов человека, а также ограниченную прогностическую ценность на популяционном уровне, определяют ее правильное использование в качестве платформы для быстрого скрининга и изучения механизмов, а не как суррогата клинического исхода.
Создание модели PDX: источники опухолей, имплантация и биология приживления
Жизнеспособный опухолевый материал чаще всего получают при хирургической резекции, а также при трепан-биопсии, заборе злокачественных выпотов или аспирации костного мозга при гематологических новообразованиях31. Радикальная резекция позволяет получить большие объемы жизнеспособной ткани с сохраненной архитектурой; тем не менее, биопсия дает достаточное количество материала, если она направлена на метастатические или нерезектабельные очаги заболевания31,36. Ткань необходимо транспортировать в холодном буферном растворе и обработать в течение ~24 h; теплая ишемия более 2 h и интервалы ex vivo более 8–10 h прогрессивно снижают эффективность приживления. Одобрение институционального наблюдательного совета и письменное информированное согласие являются обязательными.
Опухолевый материал измельчают до фрагментов размером 1–3 мм3, чтобы сохранить архитектуру внеклеточного матрикса и пространственную гетерогенность, либо диссоциируют в суспензии одиночных клеток для последующей сортировки и инокуляции с нормализацией дозы. Для поддержки ранней васкуляризации часто используют совместную имплантацию с Matrigel; его эффект вариабелен и должен быть указан в отчете, так как он изменяет контекст микроокружения31. Гормональная поддержка — пеллеты эстрадиола для ER-положительных опухолей молочной железы и дигидротестостерон для опухолей простаты — улучшает приживаемость гормонозависимых злокачественных новообразований. Подкожная имплантация в область спинного фланка позволяет проводить мониторинг с помощью штангенциркуля и отличается операционной простотой; ортотопическая имплантация восстанавливает органоспецифическое микроокружение; а имплантация под почечную капсулу максимизирует показатели приживаемости для труднотрансплантируемых типов опухолей, включая немелкоклеточный рак легкого (NSCLC) и рак простаты31.
Приживление опухолевых клеток сильно зависит от типа опухоли. Агрессивные, низкодифференцированные, резистентные к терапии или метастатические опухоли приживаются легче, чем индолентные или высокодифференцированные; трижды негативный рак молочной железы, протоковая аденокарцинома поджелудочной железы, серозный рак яичников высокой степени злокачественности и острые лейкозы демонстрируют более стабильное приживление по сравнению с люминальным раком молочной железы типа A и другими сущностями с низким процентом приживления, при этом сам факт успешного приживления предсказывает неблагоприятный прогноз для пациентов с трижды негативным раком молочной железы и панкреатобилиарными злокачественными новообразованиями10. Вторым важным определяющим фактором является линия хозяина: высокоиммунодефицитные линии, такие как NSG и NOG, вытеснили мышей nude и SCID при работе со сложными или гематологическими случаями благодаря их более широкой восприимчивости9.
По общепринятому соглашению, первичная имплантация пациенту обозначается как F0 (или P0), а последующие серийные пассажи — как F1, F2 и так далее. Кинетика роста обычно стабилизируется после первых пассажей, и в большинстве программ для проведения формальных фармакологических исследований используют материал F2 или F3, чтобы снизить межиндивидуальную вариабельность между мышами, хотя универсального порога не существует; большинство программ определяют ранний пассаж как F2–F4, при этом материал после F5 несет в себе возрастающий риск субклонального разрастания и транскрипционного дрифта со скоростью, зависящей от типа опухоли. Поскольку номер пассажа влияет как на воспроизводимость, так и на биологический дрифт, история пассажей, линия хозяина, место имплантации и происхождение должны фиксироваться для каждого исследования в соответствии со стандартом отчетности PDX-MI19.
Иммунодефицитные линии хозяев
Атимические голые (Foxn1nu) мыши лишены зрелых T-клеток, но сохраняют B-клетки, NK-клетки и врожденный иммунитет. Мыши CB-17 scid, имеющие мутацию с потерей функции в гене Prkdc, лишены T- и B-клеток из-за дефекта V(D)J-рекомбинации, но сохраняют NK-клетки и с возрастом развивают "leaky" лимфоциты9. Мутация scid на генетическом фоне NOD/ShiLtJ (NOD/SCID) добавила дефекты врожденного иммунитета, включая дефицит комплемента, нарушение функций макрофагов и дендритных клеток, а также снижение активности NK-клеток. Добавление нуль-мутации в общей гамма-цепи рецептора IL-2 (Il2rg), необходимой для передачи сигналов IL-2, IL-4, IL-7, IL-9, IL-15 и IL-21, устраняет функциональные NK-клетки и подавляет остаточный врожденный иммунитет, что приводит к созданию линий NSG (NOD.Cg-Prkdcscid Il2rgtm1wjI/SzJ) и NOG (NODShi.Cg-Prkdcscid Il2rgtm1sug); NSG несет полный нокаут Il2rg, тогда как NOG экспрессирует усеченный рецептор, который связывает лиганды, но не может передавать сигнал. NSG и NOG поддерживают приживление солидных и гематологических злокачественных новообразований и являются стандартными реципиентами для работы с PDX-моделями. В линии NRG (NOD.Cg-Rag1tm1Mom Il2rgtm1wjI) Prkdc заменен нокаутом Rag1, что сохраняет способность к репарации ДНК. Линия BRG (BALB/c-Rag2null Il2rgnull) представляет собой радиационно-толерантную альтернативу на фоне BALB/c, позволяющую избежать специфического для NOD аллеля Sirpa. Крысы SRG (двойной нокаут Rag2/Il2rg линии Sprague-Dawley) поддерживают клеточные линии и PDX-модели, которые плохо растут у NSG, включая рак простаты VCaP с приживаемостью >90%, и позволяют проводить серийный забор крови и тканей, ортотопические операции и изучение физиологически значимой фармакокинетики37.
Системы гуманизированных ксенографтов позволяют восстанавливать иммунные компоненты человека у тяжело иммунодефицитных мышей до или одновременно с трансплантацией опухоли38. Существует три основных формата: hu-PBMC (инъекция мононуклеарных клеток периферической крови взрослого человека), hu-CD34 (внутривенное введение человеческих гемопоэтических стволовых клеток (HSCs) CD34⁺ после сублетального облучения или кондиционирования бусульфаном) и BLT (совместная имплантация плодовой печени и тимуса с клетками CD34⁺, что обеспечивает наиболее полное развитие лимфоидной системы). Эти модели позволяют оценивать ингибиторы иммунных контрольных точек, биспецифические антитела, методы клеточной терапии и механизмы иммуноопосредованной резистентности38. Аутологичные или HLA-совместимые схемы предполагают использование опухолевого и иммунного компонентов от одного и того же донора. Эффективность восстановления зависит от источника донорского материала, линии реципиента, режима кондиционирования и продолжительности исследования; миелоидный, стромальный и лимфоидный отделы обычно представлены не полностью или несбалансированно: моделям hu-PBMC не хватает NK-клеток, B-клеток и миелоидных линий, несмотря на активное приживление T-клеток; модели hu-CD34 поддерживают многолинейный выход клеток, но в них недостаточно представлены обычные дендритные клетки и тканевые макрофаги; модели BLT обеспечивают более качественное тимусное обучение T-клеток, но остаются субоптимальными для восстановления миелоидного звена. У мышей hu-PBMC наблюдается быстрое восстановление T-клеток, однако в течение 3–6 недель развивается ксеногенная реакция «трансплантат против хозяина» (GvHD) из-за распознавания человеческими T-клетками мышиного MHC; варианты NSG-MHC-I/II-null частично нивелируют этот эффект22. Мыши hu-CD34 позволяют проводить более длительные исследования, но требуют более продолжительного периода восстановления и не полностью воспроизводят биологию миелоидных клеток, NK-клеток или стромы человека.
Ортотопические и метастатические модели
Подкожные ксенографты, несмотря на то что они являются стандартной платформой первого выбора для доклинических исследований, помещают ткань опухоли человека в биологический контекст, который отличается от микроокружения нативного органа. Состав внеклеточного матрикса, архитектура сосудов, парциальное давление кислорода, популяции стромальных клеток и паракринная сигнализация в подкожном пространстве спины отличаются от таковых в молочной железе, поджелудочной железе, брюшине, толстой кишке или легких10. Ортотопическая имплантация восстанавливает органоспецифическое микроокружение и обычно способствует усиленной васкуляризации и спонтанному метастазированию, что более точно воспроизводит естественное прогрессирование рака, однако это сопряжено с большей сложностью хирургического вмешательства и необходимостью мониторинга с помощью методов визуализации39.
Методы ортотопического PDX были расширены и применены для различных типов опухолей. PDX рака молочной железы создается в жировой клетчатке молочной железы, что способствует спонтанному метастазированию в легкие и лимфатические узлы40. PDX колоректального рака, имплантированный в стенку слепой или ободочной кишки, воспроизводит локальную инвазию и метастазирование в печень39. PDX рака яичников, введенный внутрибрюшинно, воспроизводит перитонеальное распространение, характерное для серозных карцином высокой степени злокачественности41. PDX протоковой аденокарциномы поджелудочной железы, имплантированный в поджелудочную железу, воспроизводит десмопластическую стромальную реакцию и раннюю локальную инвазию32. Используются две основные стратегии моделирования метастазирования: модели экспериментального метастазирования, при которых опухолевые клетки вводятся внутрисосудисто для оценки более поздних этапов метастатического каскада, таких как экстравазация и колонизация; и модели спонтанного метастазирования, при которых ортотопические первичные опухоли распространяются через полный каскад14.
Стандартизация, аутентификация и дизайн исследования
Эксперименты с ксенотрансплантатами определяются четырьмя руководствами по отчетности и дизайну исследований. PDX-MI устанавливает минимальный набор метаданных для моделей, полученных от пациентов, включая информацию о доноре, источник опухоли, линию хозяина, место имплантации, номер пассажа, приживаемость, а также гистологическую и молекулярную характеристику; аутентификация с помощью коротких тандемных повторов (STR) включена в контроль качества модели для подтверждения происхождения и обнаружения перекрестного загрязнения19. MISHUM распространяет аналогичные требования на гуманизированные системы, охватывая источник человеческих гемопоэтических стволовых клеток или PBMC, режим кондиционирования, линию хозяина, эффективность восстановления, подтвержденную методом проточной цитометрии, и мониторинг РТПХ20. OBSERVE (Oncology Best-practices: Signs, Endpoints and Refinements for In Vivo Experiments), консенсус EurOPDX/INFRAFRONTIER 2024 года, предоставляет рекомендации по совершенствованию методов и обеспечению благополучия животных специально для моделей рака у грызунов, дополняя более широкие руководства PREPARE и ARRIVE 2.023,42. Рекомендации консенсуса NCI PDXNet 2024 года касаются дизайна исследования, анализа роста опухоли и категоризации ответа для фармакологических экспериментов с PDX, а также предоставляют общедоступный набор аналитических инструментов43.
Данные концепции не полностью гармонизированы, и современное исследование ксенографтов может потребовать одновременного соблюдения рекомендаций PDX-MI, MISHUM, OBSERVE и PDXNet. На практике такие параметры, как номер пассажа, формула измерения опухоли, источник реципиента, метод аутентификации и заранее определенная аналитическая стратегия, часто опускаются43. Единая схема отчетности, охватывающая CDX, PDX и гуманизированные системы, по-прежнему остается актуальной потребностью. Общедоступные репозитории PDX включают Репозиторий моделей, производных от пациентов NCI (PDMR), портал данных EurOPDX и PDX Finder, которые в совокупности каталогизируют несколько тысяч моделей с соответствующими геномными, гистологическими и фармакологическими данными для облегчения идентификации и получения моделей18. Исследования CDX требуют рутинного STR-профилирования и контроля контаминации, тогда как исследования PDX требуют связи с случаем донора, молекулярного подтверждения драйверных признаков (где это возможно) и документирования содержания человеческих и мышиных клеток в разных пассажах19. Оценка объема опухоли остается противоречивой в разных исследованиях: применение различных формул без явного указания искажает оценки эффекта лечения и затрудняет сравнение результатов разных исследований; поэтому стандартизация метрик роста, порогов ответа, правил цензурирования и форматов визуализации столь же важна, как и стандартизация методов приживления43.
Геномная точность, клональная эволюция и трансляционная интерпретация
Модели PDX сохраняют драйверные мутации и ландшафты вариации числа копий на ранних пассажах более точно, чем CDX, что подтверждает целесообразность их использования для разработки биомаркеров, изучения резистентности и коклинического моделирования44. Однако в процессе пассирования происходят специфическая для мыши эволюция опухоли, замещение стромы и эпигенетическое перепрограммирование, а некоторые явные расхождения отражают субклональную выборку из пространственно гетерогенных опухолей, а не дрейф, вызванный моделью45. Ранние пассажи обеспечивают более сильное биологическое соответствие, чем материал после многократного пассирования, хотя на оба этих состояния влияют селективное давление места имплантации, иммунитет хозяина и предшествующее лечение45. Из этого следуют два практических принципа: модели PDX следует характеризовать лонгитюдно, а не считать статичными, а при выборе модели, имеющем серьезные последующие последствия, рекомендуется интегрировать данные секвенирования, гистопатологии, транскрипционного профилирования и ответа на лечение44.
Гуманизированные мышиные модели и их применение в иммуноонкологии
Гуманизированные системы, реконструированные с помощью человеческих PBMC, CD34⁺ HSC или ткани BLT, позволяют решить проблему невозможности моделирования полноценного иммунного микроокружения человека в обычных PDX-хозяевах. Модели hu-PBMC обеспечивают быструю реконституцию T-клеток, однако ограничены развитием ксеногенной РТХР в течение трех-шести недель; моделям hu-CD34 требуется 8–16 недель для мультилинейной реконституции, но они позволяют проводить более длительные исследования9. Внедрение трансгенов человеческих цитокинов дополнительно улучшило реконституцию специфических иммунных линий. Мыши NSG-SGM3 (трансгенные по человеческим IL-3, GM-CSF и SCF) поддерживают развитие миелоидных клеток и тучных клеток46. Мыши MISTRG (гуманизированные по M-CSF, IL-3, GM-CSF, SIRPα и тромбопоэтину) и мыши MISTRG6 (дополнительно гуманизированные по IL-6) на фоне Rag2⁻/⁻ Il2rg⁻/⁻ обеспечивают наиболее полную из доступных на данный момент реконституцию человеческих миелоидных клеток, NK-клеток и тканевых макрофагов, а также поддерживают приживление гемопоэтических стволовых клеток и клеток-предшественников костного мозга взрослых, которые не приживаются у других линий47. Мыши NOG-EXL (трансгенные по человеческим IL-3 и GM-CSF на фоне NOG) поддерживают реконституцию миелоидных и тучных клеток при более низких уровнях цитокинов, чем NSG-SGM3, что приводит к повышению долгосрочной выживаемости и менее выраженному синдрому активации макрофагов, делая их более подходящими для длительных исследований гуманизации и опухолей. Гуманизированные мыши, имплантированные человеческими T-клетками, позволяют моделировать синдром выброса цитокинов (CRS), что дает возможность проводить доклиническую характеристику профиля безопасности биспецифических активаторов T-клеток, антител, таргетирующих CD3, и родственных биологических препаратов, активирующих T-клетки. Ни одна линия не является универсально превосходящей; выбор зависит от интересующей иммунной линии и продолжительности исследования.
Конфигурацией с наивысшей степенью достоверности является аутологичная гуманизированная PDX-модель, в которой совместно приживляются гемопоэтические клетки и опухолевая ткань одного и того же пациента, что исключает несоответствие MHC между иммунным и опухолевым компартментами47. В 2023 году Chiorazzi и коллеги продемонстрировали, что аутологичные MISTRG6 PDX-модели формируют популяции врожденного и адаптивного иммунитета человека, которые инфильтрируют микроокружение опухоли, воспроизводят программы активации и истощения в CD8⁺ T-клетках и создают стимулируемый VEGF-A проопухолевый миелоидный профиль, ингибирование которого прекращает усиленный рост опухоли, что подтверждает пригодность данной конфигурации в качестве платформы для оценки иммунотерапии47. Phoon и коллеги применили этот подход к меланоме, показав, что аутологичные PBMC-гуманизированные PDX-модели отражают межпациентную вариабельность ответа на блокаду контрольных точек и модифицированные цитокины IL-248,49. Параллельный аутологичный подход, основанный на адоптивном переносе экспандированных ex vivo опухоль-инфильтрирующих лимфоцитов (TIL), полученных от пациента, мышам с соответствующими PDX-опухолями, использовался для моделирования эффективности TIL-терапии при меланоме и других солидных опухолях50. Тем не менее, интерпретация результатов исследований иммунотерапии в гуманизированных системах требует осторожности: некоторые антитела к иммунным контрольным точкам (например, анти-CTLA4, анти-PD1) обладают видоспецифичной перекрестной реактивностью, функция дендритных клеток и презентация антигена остаются неполными в большинстве гуманизированных линий, а такие структуры, как третичные лимфоидные органы и полностью функциональные герминативные центры, восстанавливаются редко51.
CAR-T клеточная терапия и ксенотрансплантационные модели
Терапия CAR-T клетками получила множество регуляторных одобрений для лечения гематологических злокачественных новообразований, и оценка на ксенотрансплантатах у иммунодефицитных мышей, несущих CDX- или PDX-опухоли, является стандартной доклинической платформой для человеческих препаратов CAR-T перед их клиническим внедрением52. Иммунологический дефицит хозяев класса NSG исключает из экспериментальной системы активацию макрофагов, кросс-презентацию дендритных клеток и супрессию, опосредованную регуляторными T-клетками, а мышиные ксенотрансплантаты не позволили предсказать системную токсичность, вызванную цитокинами, которая в дальнейшем наблюдалась у пациентов52. Систематический обзор и метаанализ 422 клинических исследований и 3157 доклинических работ, опубликованные в 2025 году, показали, что сигналы доклинической эффективности в ксенотрансплантационных моделях CAR-T в значительной степени гомогенны, не зависят от антигена и не позволяют разграничить конструкции CAR, которые впоследствии оказываются успешными или неудачными в клинических испытаниях53. Fløe и коллеги в 2025 году документально подтвердили, что межвидовые различия в цитокиновой сигнализации, плотности антигена, репертуаре T-клеточных рецепторов и взаимодействии опухоли с иммунной системой ограничивают трансляционный потенциал данных, полученных на ксенотрансплантатах CAR-T, и что сингенные модели используются примерно в 4% опубликованных доклинических исследований CAR-T52,53. Синдром выброса цитокинов (CRS) и синдром нейротоксичности, связанный с иммунными эффекторными клетками (ICANS), не воспроизводятся на стандартных ксенотрансплантатах NSG. Механистические исследования на хозяевах NSG-SGM3 показали, что CRS обусловлен преимущественно IL-1 и IL-6, вырабатываемыми моноцитами, при этом IL-1 и IL-6 в разной степени необходимы для развития CRS и нейротоксичности. Кроме того, нейтрализация GM-CSF снижает выраженность CRS и нейровоспаления, сохраняя при этом противоопухолевую активность CAR-T. Эти пути отражаются в цитокин-трансгенных и аутологичных гуманизированных конфигурациях, а не в обычных ксенотрансплантатах на базе NSG. Сингенные мышиные модели CAR-T предоставляют дополнительную платформу, позволяющую оценить взаимодействие CAR-T с полноценной иммунной системой хозяина, ценой зависимости от биологии мышиных, а не человеческих мишеней. Оценка на основе ксенотрансплантатов поддержала клиническое внедрение терапии CAR-T, направленной против CD19, где активность против моделей B-ALL и B-NHL у хозяев NSG соответствовала стойким клиническим ответам54.
Разработка лекарственных препаратов, поиск биомаркеров и трансляция на основе ИИ
Модели PDX направлены на предсказание клинического ответа на лекарственные препараты с большей точностью, чем модели CDX или GEMM. В клиническом исследовании PDX (PCT) компании Novartis 2015 года, проведенном Гао и коллегами, был применен дизайн 1 × 1 × 1 на ~1 000 моделях PDX, 62 режимах лечения и шести показаниях, что позволило выявить ассоциации между генотипом и ответом, а также установить известные и новые механизмы резистентности12. Применение концепции 1 × 1 × 1 на уровне отдельного пациента ограничено сроками создания модели (3–6 месяцев), из-за чего решения на основе PDX обычно принимаются при назначении терапии второй или третьей линии10. Исследования PDX способствовали валидации клинических биомаркеров, включая мутацию KRAS как предиктор резистентности к анти-EGFR терапии при колоректальном раке, активирующие мутации EGFR и мутации T790M для выбора ингибиторов тирозинкиназы при НМРЛ, амплификацию HER2 при раке молочной железы и желудка, а также платинорезистентность при раке яичников10.
Объемные наборы данных о ответе PDX-моделей на лекарственные препараты позволили применять методы машинного обучения для прогнозирования терапевтического ответа. В 2025 году Yang и коллеги описали TRANSPIRE-DRP — платформу глубокого обучения, использующую ненаправленную адаптацию домена для преобразования транскриптомных данных PDX в прогнозы ответа на уровне пациента; оценка проводилась для цетуксимаба, паклитаксела и гемцитабина55. В 2024 году Tosca и коллеги опубликовали систему трансляционного моделирования, в которой скорость роста опухолей PDX масштабировалась аллометрически для прогнозирования времени удвоения объема опухоли и выживаемости без прогрессирования в популяциях нелеченных пациентов с одиннадцатью типами солидных раков, при этом 91% прогнозируемых медиан времени удвоения объема опухоли находились в пределах 1,5-кратного отклонения от клинических наблюдений56. Остаются нерешенные проблемы: систематическая ошибка при отборе образцов в биобанки в пользу опухолей, склонных к приживлению, ограниченная проспективная клиническая валидация и отсутствие определенного нормативного пути для доклинических доказательств, полученных с помощью ИИ33,55.
Платформы ксенографтов не конкурируют за одну и ту же роль, а отвечают на разные трансляционные вопросы на различных стадиях разработки. Модели CDX остаются ключевыми для ранних механистических исследований и высокопроизводительного скрининга; модели PDX обеспечивают геномную точность и межпациентную гетерогенность, необходимые для валидации биомаркеров и моделирования клинического ответа; гуманизированные и аутологичные гуманизированные конфигурации позволяют решать специфические вопросы иммунотерапии, которые недоступны для обычных ксенографтов; а платформы на основе органоидов расширяют возможности высокопроизводительного анализа ex vivo в условиях ограниченного количества ткани; в совокупности эти платформы обеспечивают доклиническую оценку новых, установленных и альтернативных методов терапии рака57,58,59. Системы искусственного интеллекта и машинного обучения, такие как TRANSPIRE-DRP, а также трансляционные PK/PD модели теперь позволяют связать данные об ответе PDX на препарат с прогнозами ответа на уровне пациента, однако их клиническая полезность зависит от качества и стандартизации аннотации лежащих в их основе моделей. Основными нерешенными проблемами остаются прогностическая значимость, воспроизводимость отчетности, репрезентативность биобанков и регуляторный статус доклинических доказательств, полученных с помощью ИИ. Прогресс будет зависеть не столько от внедрения новых категорий моделей, сколько от дисциплинированного использования существующих, подкрепленного гармонизированными метаданными, продольной оценкой точности и прозрачной интеграцией данных между различными платформами.
Выводы
Модели ксенотрансплантатов эволюционировали от простых подкожных имплантатов установленных клеточных линий до многогранной экспериментальной структуры, охватывающей модели CDX и PDX, ортотопические и метастатические варианты, а также гуманизированные системы с восстановленным иммунитетом, включая аутологичные конфигурации. Эта эволюция была обусловлена постепенным признанием того, что соответствие биологии рака человека с точки зрения геномного ландшафта, внутриопухолевой гетерогенности и микроокружения опухоли является основным определяющим фактором прогностической ценности на доклиническом этапе.
Модели CDX остаются центральными в доклинической онкологии как наиболее широко используемая и экономически эффективная платформа in vivo для оценки препаратов на ранних фазах, предоставляя воспроизводимые и масштабируемые данные для оптимизации дозировки, характеристики PK/PD, оценки ингибирования роста опухоли и анализа показателей выживаемости. Модели PDX обеспечивают точность, необходимую для поиска биомаркеров, планирования ко-клинических исследований и фармакологических приложений, которые зависят от сохранения геномных и гистологических характеристик донора. Иерархия иммунодефицита — от nude и SCID до NSG, NOG, NRG и BRG, включая появляющихся в практике крыс SRG — отражает прогрессирующее совершенствование условий для приживления трансплантатов. Гуманизированные и аутологичные конфигурации расширяют возможности этих платформ для оценки ингибиторов иммунных контрольных точек, биспецифических антител и CAR-T клеточной терапии, хотя иммунологические ограничения на видовом уровне сохраняются.
Улучшение доклинической трансляции требует строгого планирования исследований и стандартизированной отчетности. Консенсусные рекомендации PDX-MI, MISHUM, OBSERVE и NCI PDXNet обеспечивают необходимые структуры отчетности; при этом решающим фактором влияния остается последовательное внедрение этих стандартов исследователями, журналами и финансирующими организациями. Траектория развития науки о ксенографтах сходится к четырем приоритетам: стандартизация отчетности на всех платформах, рациональный выбор платформы в соответствии с трансляционным вопросом, дальнейшее совершенствование методов создания гуманизированных моделей и механизмы трансляции на основе ИИ, которые преобразуют крупномасштабные наборы данных PDX в клинически значимые прогнозы ответа.
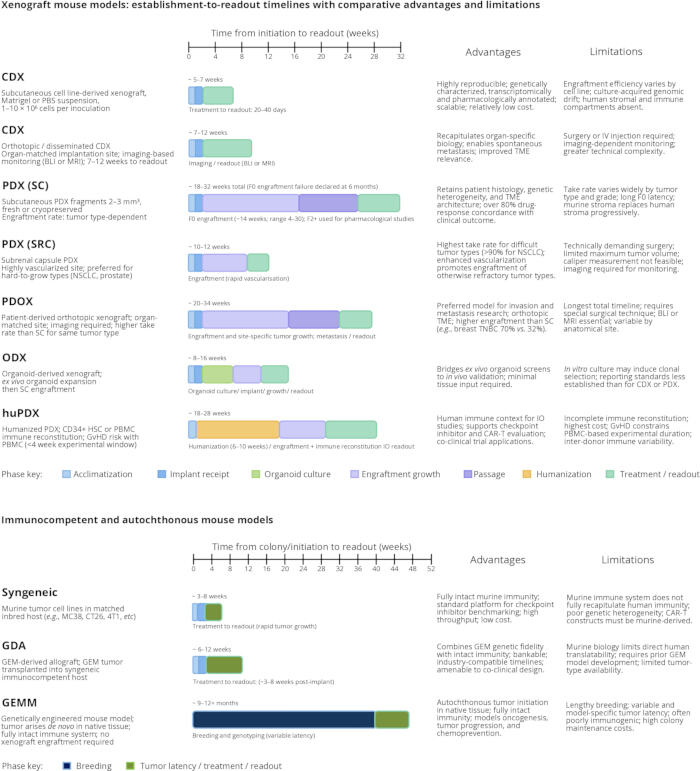
Рисунок 1: Мышиные модели ксенографтов: временные шкалы от создания до получения результатов с comparative преимуществами и ограничениями. Временные шкалы от начала до получения экспериментальных данных показаны для основных доклинических платформ, используемых при разработке онкологических препаратов, сгруппированных по иммунному статусу реципиента. Верхняя панель охватывает модели ксенографтов у иммунодефицитных реципиентов: подкожные и ортотопические или диссеминированные ксенографты, производные от клеточных линий (CDX), подкожные ксенографты, производные от пациента (PDX), PDX под капсулой почки (PDX-SRC), ортотопические ксенографты, производные от пациента (PDOX), ксенографты, производные от органоидов (ODX), и гуманизированные PDX (huPDX). Нижняя панель охватывает иммунокомпетентные и аутохтонные платформы: сингенные модели, аллографты, производные от генетически модифицированных мышиных моделей (GDA), и генетически модифицированные мышиные модели (GEMM). Для каждой платформы экспериментальные фазы отмечены цветовым кодом (акклиматизация, получение имплантата, культура органоидов, приживление и рост, пассаж, гуманизация и лечение/анализ; или разведение и латентный период опухоли/лечение/анализ для аутохтонных моделей), с указанием примерной общей продолжительности в неделях. Преимущества и ограничения конкретных платформ обобщены в правой панели. Временные шкалы представляют собой стандартные операционные процедуры, внедренные в Altogen Labs, и соответствуют опубликованным в данной области диапазонам (https://altogenlabs.com/xenograft-models); фактическая продолжительность варьируется в зависимости от типа опухоли, линии реципиента, дизайна исследования и кинетики приживления. BLI — биолюминесцентная визуализация; GvHD — болезнь «трансплантат против хозяина»; HSC — гемопоэтическая стволовая клетка; IO — иммуноонкология; MRI — магнитно-резонансная томография; NSCLC — немелкоклеточный рак легкого; PBMC — мононуклеарные клетки периферической крови; SC — подкожно; TME — микроокружение опухоли; TNBC — трижды негативный рак молочной железы. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
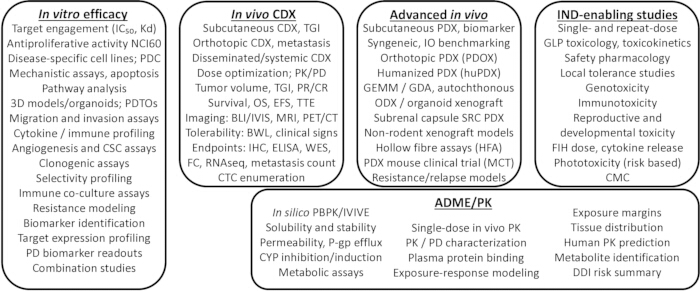
Рисунок 2: Интегрированный рабочий процесс доклинических исследований в онкологии: от эффективности in vitro до исследований, необходимых для подачи заявки на исследование нового лекарственного препарата (IND). Схема многоуровневого конвейера доклинической разработки лекарств, организованного в четыре последовательные стадии. Эффективность in vitro включает связывание с мишенью (IC50, KD), антипролиферативную активность на панелях клеточных линий, включая NCI-60 и специфические для заболевания линии, клетках, полученных от пациентов (PDC), механистические анализы и анализы сигнальных путей, трехмерные модели и органоиды опухолей, полученные от пациентов (PDTO), анализы миграции и инвазии, профилирование цитокинов и иммунного статуса, анализы ангиогенеза и раковых стволовых клеток, клоногенные анализы, профилирование селективности, анализы иммунных кокультур, моделирование резистентности, идентификацию биомаркеров, профилирование экспрессии мишеней, определение фармакодинамических биомаркеров и исследования комбинаций. In vivo CDX охватывает подкожные, ортотопические и диссеминированные или системные CDX для оптимизации дозы, характеристики PK/PD, оценки объема опухоли и индекса торможения роста опухоли (TGI), классификации частичного и полного ответа (PR/CR), конечных точек выживаемости (OS, EFS, TTE), мультимодальной визуализации (BLI/IVIS, MRI, PET/CT), показателей переносимости, включая потерю массы тела (BWL) и клинические признаки, молекулярных конечных точек (IHC, ELISA, WES, проточная цитометрия, RNA-seq, подсчет метастазов) и подсчет циркулирующих опухолевых клеток (CTC). Усовершенствованные платформы in vivo включают подкожные и ортотопические PDX, PDX под капсулой почки (SRC), гуманизированные PDX, сингенные модели для бенчмаркинга в иммуноонкологии, GEMM и GDA, ODX, ксенографтные модели на негрызунах, анализы на полых волокнах (HFA), клинические испытания на мышах с PDX (MCT), а также модели резистентности/рецидива. Исследования, необходимые для подачи заявки IND, включают токсикологию GLP при однократном и многократном введении, токсикокинетику, фармакологию безопасности, местную переносимость, генотоксичность, иммунотоксичность, репродуктивную и развивающую токсичность, прогнозирование дозы для первого применения у человека (FIH), оценку высвобождения цитокинов и оценку фототоксичности на основе анализа рисков. Параллельный химический контроль, производство и контроль (CMC), а также характеристика всасывания, распределения, метаболизма, выведения и фармакокинетики (ADME/PK) включают in silico моделирование PBPK и IVIVE, растворимость и стабильность, проницаемость и эффлюкс P-гликопротеина (P-gp), ингибирование и индукцию цитохрома P450 (CYP), метаболические анализы, PK in vivo, связывание с белками плазмы, моделирование зависимости «экспозиция-ответ», распределение в тканях, прогнозирование PK у человека, идентификацию метаболитов и оценку риска межлекарственных взаимодействий (DDI). Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
Раскрытие информации
Автор является сотрудником Altogen Labs (Остин, Техас, США), контрактной исследовательской организации, предоставляющей услуги в области доклинических исследований в онкологии. Рисунок 1 и Рисунок 2 представляют собой оригинальные схемы, созданные автором. На рисунках представлены временные шкалы и рабочие процессы, основанные на стандартных операционных процедурах Altogen Labs. Конфликт интересов не заявлен.
Ссылки
- Sung H, Ferlay J, Siegel RL, et al. Global cancer statistics 2020: GLOBOCAN estimates of incidence and mortality worldwide for 36 cancers in 185 countries. CA Cancer J Clin. 2021;71(3):209-249.
- Islami F, Wiese D, Schafer EJ, Sung H, Jemal A. Stage-specific cancer survival in Black and White persons by urbanicity of county of residence, United States, 2015-2021. Cancer. 2025:e70073.
- Johnson JI, Decker S, Zaharevitz D, et al. Relationships between drug activity in NCI preclinical in vitro and in vivo models and early clinical trials. Br J Cancer. 2001;84(10):1424-1431.
- Voskoglou-Nomikos T, Pater JL, Seymour L. Clinical predictive value of the in vitro cell line, human xenograft, and mouse allograft preclinical cancer models. Clin Cancer Res. 2003;9(11):4227-4239.
- Jung J. Human tumor xenograft models for preclinical assessment of anticancer drug development. Toxicol Res. 2014;30(1):1-5.
- Liu Y, Wu W, Cai C, et al. Patient-derived xenograft models in cancer therapy: technologies and applications. Signal Transduct Target Ther. 2023;8:160.
- Okada S, Vaeteewoottacharn K, Kariya R. Application of highly immunocompromised mice for the establishment of patient-derived xenograft (PDX) models. Cells. 2019;8(8):889.
- Blanchard Z, Brown EA, Ghazaryan A, et al. PDX models for functional precision oncology and discovery science. Nat Rev Cancer. 2025;25(3):153-166.
- Shultz LD, Brehm MA, Garcia-Martinez JV, et al. Humanized mice for immune system investigation: progress, promise and challenges. Nat Rev Immunol. 2012;12(11):786-798.
- Hidalgo M, Amant F, Biankin AV, et al. Patient-derived xenograft models: an emerging platform for translational cancer research. Cancer Discov. 2014;4(9):998-1013.
- Dobrolecki LE, Airhart SD, Alferez DG, et al. Patient-derived xenograft (PDX) models in basic and translational breast cancer research. Cancer Metastasis Rev. 2016;35(4):547-573.
- Gao H, Korn JM, Ferretti S, et al. High-throughput screening using patient-derived tumor xenografts to predict clinical trial drug response. Nat Med. 2015;21(11):1318-1325.
- Izumchenko E, Paz K, Ciznadija D, Sloma I, Katz A, Vasquez-Dunddel D, et al. Patient-derived xenografts effectively capture responses to oncology therapy in a heterogeneous cohort of patients with solid tumors. Ann Oncol. 2017;28(10):2595-2605.
- Khanna C, Hunter K. Modeling metastasis in vivo. Carcinogenesis. 2005;26(3):513-523.
- Ribatti D. The chick embryo chorioallantoic membrane (CAM) assay. Reprod Toxicol. 2017;70:97-101.
- Fazio M, Ablain J, Chuan Y, et al. Zebrafish patient avatars in cancer biology and precision cancer therapy. Nat Rev Cancer. 2020;20(5):263-273.
- Drost J, Clevers H. Organoids in cancer research. Nat Rev Cancer. 2018;18(7):407-418.
- Conte N, Mason JC, Halmagyi C, et al. PDX Finder: a portal for patient-derived tumor xenograft model discovery. Nucleic Acids Res. 2019;47(D1):D1073-D1079.
- Meehan TF, Conte N, Goldstein T, et al. PDX-MI: minimal information for patient-derived tumor xenograft models. Cancer Res. 2017;77(21):e62-e66.
- Stripecke R, Münz C, Schuringa JJ, et al. Innovations, challenges, and minimal information for standardization of humanized mice. EMBO Mol Med. 2020;12(7):e8662.
- Brehm MA, Wiles MV, Greiner DL, et al. Generation of improved humanized mouse models for human infectious diseases. J Immunol Methods. 2014;410:3-17.
- King MA, Covassin L, Brehm MA, et al. Human peripheral blood leucocyte non-obese diabetic-severe combined immunodeficiency interleukin-2 receptor gamma chain gene mouse model of xenogeneic graft-versus-host-like disease and the role of host major histocompatibility complex. Clin Exp Immunol. 2009;157(1):104-118.
- Percie du Sert N, Hurst V, Ahluwalia A, et al. The ARRIVE guidelines 2.0: updated guidelines for reporting animal research. Br J Pharmacol. 2020;177(16):3617-3624.
- Sajjad H, Imtiaz S, Noor T, et al. Cancer models in preclinical research: a chronicle review of advancement in effective cancer research. Anim Models Exp Med. 2021;4(2):87-103.
- Mosely SI, Prime JE, Sainson RC, et al. Rational selection of syngeneic preclinical tumor models for immunotherapeutic drug discovery. Cancer Immunol Res. 2017;5(1):29-41.
- Flanagan SP. "Nude", a new hairless gene with pleiotropic effects in the mouse. Genet Res. 1966;8(3):295-309.
- Rygaard J, Povlsen CO. Heterotransplantation of a human malignant tumour to "Nude" mice. Acta Pathol Microbiol Scand. 1969;77(4):758-760.
- Chen J, Liao S, Xiao Z, et al. The development and improvement of immunodeficient mice and humanized immune system mouse models. Front Immunol. 2022;13:1007579.
- Shoemaker RH. The NCI60 human tumour cell line anticancer drug screen. Nat Rev Cancer. 2006;6(10):813-823.
- Barretina J, Caponigro G, Stransky N, et al. The Cancer Cell Line Encyclopedia enables predictive modelling of anticancer drug sensitivity. Nature. 2012;483(7391):603-607.
- Liu M, Yang X. Patient-derived xenograft models: current status, challenges, and innovations in cancer research. Genes Dis. 2025;12(5):101520.
- Rubio-Viqueira B, Jimeno A, Cusatis G, et al. An in vivo platform for translational drug development in pancreatic cancer. Clin Cancer Res. 2006;12(15):4652-61.
- Bertotti A, Migliardi G, Galimi F, et al. A molecularly annotated platform of patient-derived xenografts ("xenopatients") identifies HER2 as an effective therapeutic target in cetuximab-resistant colorectal cancer. Cancer Discov. 2011;1(6):508-23.
- Sartore-Bianchi A, Lonardi S, Martino C, et al. Pertuzumab and trastuzumab emtansine in patients with HER2-amplified metastatic colorectal cancer: the phase II HERACLES-B trial. ESMO Open. 2020;5(5):e000911.
- Ovcharenko D, Chitjian C, Kashkin A, et al. Two dichloric compounds inhibit in vivo U87 xenograft tumor growth. Cancer Biol Ther. 2019;20(9):1281-1289.
- Hernandez MC, Bergquist JR, Leiting JL, et al. Patient-derived xenografts can be reliably generated from patient clinical biopsy specimens. J Gastrointest Surg. 2019;23(4):818-824.
- Noto FK, Sangodkar J, Adedeji BT, et al. The SRG rat, a Sprague-Dawley Rag2/Il2rg double-knockout validated for human tumor oncology studies. PLoS One. 2020;15(10):e0240169.
- De La Rochere P, Guil-Luna S, Decaudin D, et al. Humanized mice for the study of immuno-oncology. Trends Immunol. 2018;39(9):748-763.
- Hoffman RM. Patient-derived orthotopic xenografts: better mimic of metastasis than subcutaneous xenografts. Nat Rev Cancer. 2015;15(8):451-2.
- Okano M, Oshi M, Butash A, et al. Orthotopic implantation achieves better engraftment and faster growth than subcutaneous implantation in breast cancer patient-derived xenografts. J Mammary Gland Biol Neoplasia. 2020;25(1):27-36.
- Scott CL, Becker MA, Haluska P, et al. Patient-derived xenograft models to improve targeted therapy in epithelial ovarian cancer treatment. Front Oncol. 2013;3:295.
- De Vleeschauwer SI, van de Ven M, Oudin A, et al. OBSERVE: guidelines for the refinement of rodent cancer models. Nat Protoc. 2024;19(9):2571-2596.
- Meric-Bernstam F, Lloyd MW, Koc S, et al. Assessment of patient-derived xenograft growth and antitumor activity: the NCI PDXNet consensus recommendations. Mol Cancer Ther. 2024;23(7):924-938.
- Woo XY, Giordano J, Srivastava A, et al.; PDXNET Consortium; EurOPDX Consortium. Conservation of copy number profiles during engraftment and passaging of patient-derived cancer xenografts. Nat Genet. 2021;53(1):86-99.
- Hynds RE, Huebner A, Pearce DR, et al. Representation of genomic intratumor heterogeneity in multi-region non-small cell lung cancer patient-derived xenograft models. Nat Commun. 2024;15(1):4653.
- Wunderlich M, Chou FS, Sexton C, et al. Improved multilineage human hematopoietic reconstitution and function in NSGS mice. PLoS One. 2018;13(12):e0209034.
- Chiorazzi M, Martinek J, Krasnick B, et al. Autologous humanized PDX modeling for immuno-oncology recapitulates features of the human tumor microenvironment. J Immunother Cancer. 2023;11(7):e006921.
- Phoon YP, Lopes JE, Pfannenstiel LW, et al. Autologous human preclinical modeling of melanoma interpatient clinical responses to immunotherapeutics. J Immunother Cancer. 2024;12(4):e008066.
- Tsimafeyeu I, Makhov P, Ovcharenko D, et al. A novel anti-FGFR1 monoclonal antibody OM-RCA-01 exhibits potent antitumor activity and enhances the efficacy of immune checkpoint inhibitors in lung cancer models. Immunooncol Technol. 2024;23:100725.
- Jespersen H, Lindberg MF, Donia M, et al. Clinical responses to adoptive T-cell transfer can be modeled in an autologous immune-humanized mouse model. Nat Commun. 2017;8(1):707.
- Morton JJ, Bird G, Refaeli Y, et al. Humanized mouse xenograft models: narrowing the tumor-microenvironment gap. Cancer Res. 2016;76(21):6153-6158.
- Fløe LVB, Pedersen MG, Møller BK. Animal models in preclinical evaluation of CAR-T cell therapy: advantages and limitations. Biochim Biophys Acta Rev Cancer. 2025;1880(6):189455.
- Andreu-Sanz D, Gregor L, Carlini E, et al. Predictive value of preclinical models for CAR-T cell therapy clinical trials: a systematic review and meta-analysis. J Immunother Cancer. 2025;13(6):e011698.
- Duncan BB, Dunbar CE, Ishii K. Applying a clinical lens to animal models of CAR-T cell therapies. Mol Ther Methods Clin Dev. 2022;27:17-31.
- Yang J, Wu T, Xue F, et al. TRANSPIRE-DRP: a deep learning framework for translating patient-derived xenograft drug response to clinical patients via domain adaptation. J Transl Med. 2025;23(1):1340.
- Tosca EM, Ronchi D, Rocchetti M, et al. Predicting tumor volume doubling time and progression-free survival in untreated patients from patient-derived-xenograft (PDX) models: a translational model-based approach. AAPS J. 2024;26(5):92.
- Ovcharenko D, Mukhin D, Ovcharenko G. Alternative cancer therapeutics: unpatentable compounds and their potential in oncology. Pharmaceutics. 2024;16(9):1237.
- Altogen Labs. Xenograft models in oncology: CDX, PDX, organoids, and humanized immuno-oncology platforms. Austin (TX): Altogen Labs; https://altogenlabs.com/xenograft-models/
- Sirotkin AV, Ovcharenko D, Mlyncek M. Identification of protein kinases that control ovarian hormone release by selective siRNAs. J Mol Endocrinol. 2010;44(1):45-53.