В данной работе мы представляем протокол диссекции, позволяющий сохранить эпифиз (шишковидную железу), который часто теряется при извлечении мозга из черепной коробки. Данный протокол обеспечивает сохранение эпифиза в препаратах мозга эмбриональных мышей и мышей раннего постнатального периода для последующего применения, включая иммуногистохимию, гибридизацию in situ и пространственную транскриптомику.
Методическая статья
Сохранение эпифиза в препаратах головного мозга мышей перинатального периода
183 просмотров
⸱
11 сентября 2026 г.
В этой статье
Краткое содержание
Аннотация
Эпифиз, нейроэндокринная структура, секретирующая мелатонин, формируется из зачатка в дорсальной срединной линии эмбрионального переднего мозга. На 14,5 эмбриональный день (E14.5) у мыши наблюдается эпифизарный дивертикул, выпячивающийся из крыши промежуточного мозга между парными пузырями конечного мозга. Этот дивертикул тесно контактирует с вышележащей хрящевой, мозговой и сосудистой тканями. Его легко повредить при вскрытии черепного свода для извлечения мозга на поздних эмбриональных или ранних постнатальных стадиях. Несмотря на важную нейроэндокринную роль, раннее развитие эпифиза и сигнальные механизмы, регулирующие этот процесс, остаются недостаточно изученными, что частично обусловлено сложностью сохранения данной структуры в целостности на эмбриональных стадиях развития мозга мыши.
В данной статье представлена инновационная процедура диссекции, которая позволяет сохранить эпифиз, поддерживая его структурную целостность и связь с крышей диэнцефалона при изоляции мозга на стадиях от эмбрионального развития до 7-го послеродового дня (P7). Процедура продемонстрирована на мозге мыши E18.5 и, следовательно, подходит для последующих приложений, требующих сохранения архитектуры ткани, включая гибридизацию in situ, иммуногистохимию и пространственную транскриптомику. Данный протокол также может быть использован для изоляции развивающегося эпифиза, что позволяет улучшить специфичность репрезентации эпифиза в транскриптомном и протеомном анализах, что в противном случае затруднено из-за малого размера органа.
Введение
Эпифиз представляет собой небольшую нейроэндокринную структуру, расположенную по дорсальной срединной линии головного мозга позвоночных; он играет центральную роль в регуляции циркадной физиологии посредством ритмической секреции мелатонина1,2. В ходе эмбриогенеза млекопитающих эпифиз развивается из дорсальной срединной линии развивающегося переднего мозга. У мышей развитие эпифиза начинается, когда специализированная область дорсального нейроэпителия диэнцефалона формирует зачаток эпифиза (pineal anlage)/эпифизарное углубление, которое впоследствии выпячивается, образуя эпифизарный дивертикул на 14,5 эмбриональный день (E)3,4,5. Этот дивертикул прикреплен к крыше диэнцефалона и виден между парными пузырями телэнцефалона. По мере развития этот дивертикул тесно связывается с перекрывающими его структурами по дорсальной срединной линии мозга, в частности с верхним сагиттальным синусом (SSS) и поперечным синусом (TS) — венозными каналами, проходящими вдоль дорсальной поверхности переднего мозга6. Развивающийся эпифиз расположен непосредственно под пересечением SSS и TS, и его хрупкое прикрепление к дорсальному диэнцефалону особенно уязвимо при удалении перекрывающих сосудисто-мозговых оболочек для извлечения мозга из черепной коробки7. Это делает эпифиз особенно подверженным повреждениям, так как он может быть оторван при открытии черепной коробки для извлечения мозга. В результате эпифиз часто теряется во время рутинного препарирования, что ограничивает анализ его структуры и молекулярного состава в интактных препаратах.
В данном материале представлен пошаговый протокол выделения мозга мыши с сохранением эпифиза и его прикрепления к крыше диэнцефалона. Метод применим для эмбриональных стадий от E16.5 до ранних постнатальных стадий (P7) и подходит для изучения развития эпифиза с помощью гибридизации in situ, иммуногистохимии и пространственной транскриптомики. В качестве демонстрации последующих приложений представлены гибридизация in situ и иммуногистохимия на маркер CRX, обогащенный в эпифизе.
Ключевым нововведением в данном методе является минимизация нагрузки на срединные структуры за счет тщательного удаления физических связей, которые в противном случае привели бы к отрыву эпифиза при извлечении мозга из черепной коробки. Это является усовершенствованием стандартной процедуры.
Данный метод диссекции ограничен стадиями до P7, поскольку прогрессирующая оссификация свода черепа в ранний постнатальный период увеличивает ригидность черепа и усиливает его связь с менингеальными и сосудистыми структурами. Хотя в ряде исследований описаны процедуры диссекции эпифиза у взрослых грызунов8, очень немногие из них были сосредоточены на сохранении эпифиза на эмбриональных и ранних постнатальных стадиях, когда железа особенно хрупка и подвержена повреждениям при выделении головного мозга.
Протокол
Все процедуры одобрены и проведены в соответствии с требованиями Институционального комитета по этике работы с животными Института фундаментальных исследований Тата.
1. Подготовка материалов
- Перед началом процедуры убедитесь, что все необходимые инструменты для микродиссекции (см. таблицу материалов) подготовлены. Стерилизуйте все инструменты 70% этанолом. При сборе образцов для последующего применения, такого как пространственная транскриптомика или гибридизация in situ, протрите инструменты раствором для деконтаминации РНказ.
- Очистите предметный столик диссекционного микроскопа раствором для деконтаминации РНказ и держите флакон ледяного 1× PBS под рукой рядом с рабочим местом для диссекции.
- Перед данной процедурой подготовьте следующие инструменты и пластиковую посуду:
- Для подготовки животного: 2 пары тупых пинцетов, 1 пару хирургических ножниц, 2 чашки Петри (10 см), несколько чашек Петри (6 см; по мере необходимости, по одной на каждую голову).
- Для выделения мозга: 1 пару пинцетов №5, 1 пару пинцетов №55, 1 пару ножниц для микродиссекции, а также пробирки или чашки для сбора образцов, подходящие для последующего применения.
- ПРИМЕЧАНИЕ: Если последующее применение включает гибридизацию in situ или пространственную транскриптомику, перед использованием очистите инструменты для диссекции раствором для деконтаминации РНказ.
2. Подготовка животных
- Следуйте этапам (2.1.1– 2.1.6) для животных стадий E14.5–P0
- Проведите эвтаназию беременной самки в соответствии с рекомендациями Институционального комитета по этике работы с животными. В представленном примере эвтаназия самки была осуществлена путем перелома шейных позвонков.
- Сделайте разрез по срединной линии брюшной полости беременной самки, чтобы обнажить матку. С помощью тупых пинцетов аккуратно извлеките рога матки и поместите их в стерильную чашку диаметром 10 см, содержащую ледяной 1× PBS.
- Осторожно изолируйте отдельных плодов, отделив их от окружающей амниотической полости и плаценты.
- Перенесите плоды в новую чашку Петри диаметром 10 см, содержащую ледяной 1× PBS, и держите на льду до тех пор, пока каждый из них не будет взят для изоляции мозга. Перенесите одного плода в чашку Петри диаметром 6 см с ледяным PBS.
- Для постнатальных стадий до P7 проведите эвтаназию детеныша в соответствии с рекомендациями Институционального комитета по этике работы с животными. Затем переходите к выполнению, начиная с этапа 2.1.6.
- С помощью хирургических ножниц отделите голову от туловища так, чтобы ромбоцефалон (задний мозг) остался в области головы для защиты переднего мозга от случайного повреждения.
- Промойте голову холодным PBS для удаления крови. Перенесите её в новую чашку Петри диаметром 6 см, содержащую ледяной 1× PBS. Держите голову погруженной в PBS, чтобы кровь и остатки тканей вымывались в ходе последующих этапов диссекции.
3. Процедура диссекции для выделения мозга с сохранной эпифизом
ПРИМЕЧАНИЕ: Все последующие шаги следует выполнять с использованием диссекционного микроскопа. Настройте увеличение минимум до 2× (или по мере необходимости), чтобы четко видеть мозг и окружающие его структуры на протяжении всей диссекции. Весь процесс диссекции должен проводиться в ледяном PBS для минимизации деградации РНК и белков. На этапах 3.1–3.10 используйте недоминирующую руку для того, чтобы крепко удерживать и стабилизировать голову на протяжении всей процедуры согласно инструкциям в шаге 3.1. Шаги 3.2–3.9 выполняются при стабилизации головы недоминирующей рукой; для действий, требующих тонкой моторики, используйте доминирующую руку, начиная с пинцета №5, затем переходя на пинцет №55 или ножницы для микродиссекции, как указано для каждого этапа.
- Используйте пинцет №5 в недоминирующей руке. Вставьте оба зубца в глазницы решительным движением вниз. Поддерживайте давление вниз, чтобы прижать мозг к дну чашки Петри, пока не будет завершен шаг 3.9.
ПРИМЕЧАНИЕ: Мозг расположен над глазницами, поэтому введение пинцета в глазницы на него не влияет. Постоянное давление вниз стабилизирует мозг на протяжении всего процесса диссекции. - Доминирующей рукой захватите и удалите кожу, покрывающую голову, с помощью пинцета №5.
ПРИМЕЧАНИЕ: На этом этапе виден гладкий хрящевой череп, покрывающий мозг. - Удалите часть хрящевого черепа, расположенную над средним и задним мозгом, следующим образом:
- С помощью пинцета №5 сделайте два проникающих разреза в хрящевом черепе по обе стороны от среднего мозга, непосредственно в месте его соединения с конечным мозгом.
- Проведите один зубец пинцета №5 тангенциально под хрящевым черепом вдоль воображаемой тангенциальной линии, отделяющей конечный мозг от среднего мозга. Плотно захватите и разорвите хрящевой череп.
- Продолжайте удалять хрящевой череп до тех пор, пока средний и задний мозг не будут полностью обнажены.
- Перейдите на пинцет №55. Вставьте один зубец непосредственно под край каудального края хрящевого черепа, перекрывающего конечный мозг. Осторожно отделите хрящевой череп, разрывая любые связи с сосудистыми и мозговыми оболочками.
- С помощью ножниц для микродиссекции сделайте разрез вдоль дорсальной срединной линии конечного мозга в направлении к обонятельной луковице. С помощью закрытого пинцета №5 осторожно удалите любые места прикрепления хрящевого черепа к мозгу. С помощью пинцета №5 разделите две половины хрящевого черепа, покрывающие полушария конечного мозга.
ПРИМЕЧАНИЕ: На этом этапе SSS виден как темно-красная вена вдоль верхнего края хрящевого черепа в мозге, а TS виден перпендикулярно SSS. - Эпифиз находится непосредственно под SSS. Сделайте разрез на ростральном конце SSS с помощью ножниц для микродиссекции.
- С помощью пинцета №55 полностью удалите дорсальную часть хрящевого черепа с каждой стороны, чтобы лучше обнажить эпифиз, SSS и TS.
- С помощью ножниц для микродиссекции сделайте два разреза в TS по обе стороны от эпифиза. С помощью пинцета №55 отделите латеральные прикрепления TS.
- С помощью закрытого пинцета №5 осторожно отделите ростральную часть мозга от вентрального свода черепа. Просуньте закрытый пинцет под вентральную сторону мозга, полностью высвободив его.
- Сохраните мозг с неповрежденным эпифизом соответствующим образом для дальнейшего использования в анализах.
4. Критические этапы протокола
ПРИМЕЧАНИЕ: Успех данного протокола диссекции зависит от осторожного обращения с сосудистыми прикреплениями, окружающими шишковидную железу. Следующие моменты имеют решающее значение для сохранения целостности шишковидной железы на протяжении всей процедуры диссекции:
- Стабилизируйте голову, вставив зубцы пинцета №5 в обе глазницы; на протяжении этапов 3.1–3.9 поддерживайте устойчивое давление вниз. Это обеспечит стабильную опору, позволяя избежать прямого давления на мозг.
- При удалении хондрокраниума (этап 3.3) избегайте чрезмерного натяжения или отслоения, так как это может привести к отрыву эпифиза от дорсальной части диэнцефалона.
- При удалении мозговых оболочек и сосудистых прикреплений (этап 3.4), а также при вскрытии дорсальной части хондрокраниума телоэнцефалона (этап 3.5) используйте только кончики пинцета №55. Глубокое проникновение пинцета может повредить эпифиз, который расположен непосредственно под каудальной крышей телоэнцефалона.
- Завершите пересечение верхнего сагиттального синуса (этап 3.6) и двустороннее пересечение поперечного синуса (этап 3.8) перед извлечением мозга. Эти разрезы снимают напряжение в дорсальной венозной сети и предотвращают сдвиг эпифиза при извлечении мозга.
- На этапе 3.9 осторожно извлеките мозг с помощью закрытого пинцета, стараясь не задеть дорсальную срединную линию. Мозг должен свободно отделиться от черепного свода после того, как все прикрепления мозговых оболочек и сосудов будут освобождены.
Результаты
Данный протокол диссекции позволяет стабильно изолировать головной мозг эмбриональных и ранних постнатальных мышей от E16.5–P7 с сохранением эпифиза в его естественном анатомическом положении (Рисунок 1).
Поэтапное удаление хондрокраниума в сочетании с тщательным отделением мозговых и сосудистых прикреплений предотвращает непреднамеренное воздействие сдвигающей нагрузки на эпифиз. Кроме того, контролируемое перерезание верхнего сагиттального синуса (SSS) на его ростральном конце, а также двусторонние разрезы поперечного синуса (TS) эффективно снимают натяжение в дорсальной сосудистой сети. Это защищает эпифиз от отрыва при последующем извлечении мозга. В результате эпифиз остается неповрежденным и прикрепленным к срединной линии диэнцефалона после отделения мозга от черепной коробки (Рисунок 2A).
Для проверки целостности сохраненной эпифиза и ее пригодности для последующего применения были проведены гибридизация in situ на маркер эпифиза Crx и иммуногистохимический анализ на белок CRX9,10(Рисунок 2B–D). Это подтвердило идентичность и структурную целостность эпифиза.
Протокол диссекции был валидирован для нескольких стадий развития, и в подавляющем большинстве случаев эпифиз сохранялся в целостности: E16.5 (N = 10), E18.5 (N = 15), P0 (N = 10) и P7 (N = 6). Это демонстрирует, что данный метод является надежным и высоковоспроизводимым для сохранения эпифиза при выделении мозга на эмбриональном и раннем постнатальном этапах (Рисунок 2E).
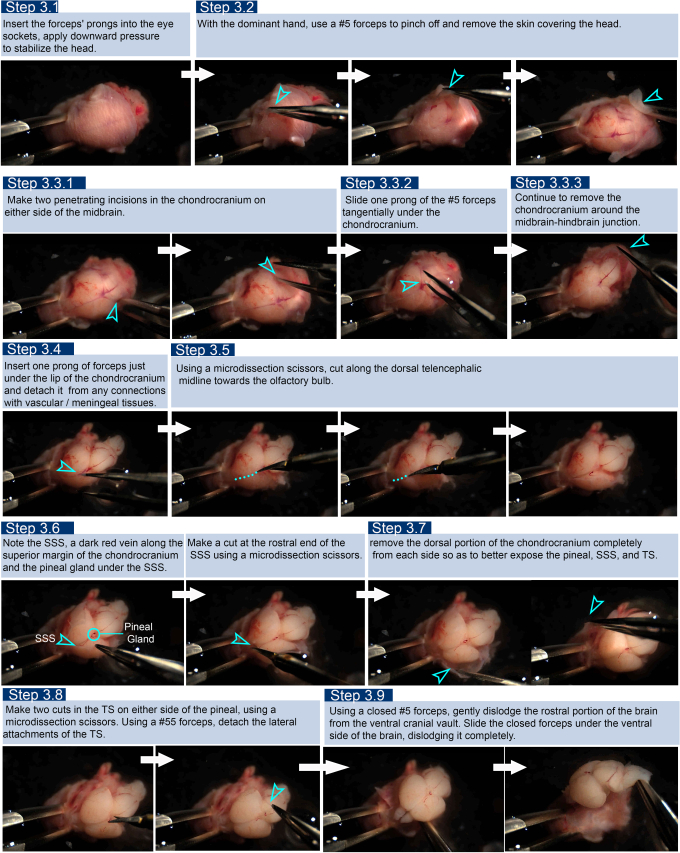
Рисунок 1: Кадры из видео, демонстрирующие пошаговую процедуру выделения мозга мыши на стадии E18.5 с сохранением эпифиза в целостности. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
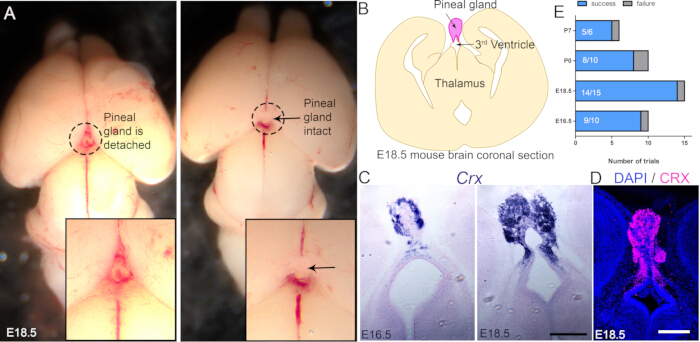
Рисунок 2: Репрезентативные результаты. (A) Репрезентативные примеры двух мозгов мышей E18.5, в которых эпифиз был отделен в ходе стандартной процедуры препарирования (слева), в сравнении с мозгом, в котором эпифиз остался неповрежденным при использовании описанного метода (справа). (B) Схематическое изображение коронального среза мозга E18.5, где эпифиз выделен розовым цветом. (C) Гибридизация in situ для Crx на стадиях E16.5 и E18.5, демонстрирующая специфическую экспрессию в эпифизе. (D) Иммуноокрашивание на CRX на стадии E18.5. (E) Столбчатая диаграмма, показывающая показатели успеха (мозг изолирован с неповрежденным эпифизом) и неудач (эпифиз поврежден или утрачен) протокола на эмбриональных (E16.5 и E18.5) и постнатальных (P0 и P7) стадиях развития. Масштабные отрезки: 100 µm. N = 6 биологических повторностей для A, C и D. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
Обсуждение
Стандартизированные методы диссекции шишковидной железы были разработаны для плодowego/младенческого мозга человека, что помогает патологоанатомам в установлении причин синдрома внезапной детской смерти11. Предыдущие протоколы демонстрировали удаление шишковидной железы вместе с поверхностными сосудами, мозговыми оболочками и сосудистым сплетением12; однако методы надежного сохранения целостной шишковидной железы, прикрепленной к крыше промежуточного мозга на стадиях ее раннего развития у мышей или других грызунов, не были описаны.
Большая часть классической анатомической и методологической литературы, описывающей пинеалэктомию и последующий анализ, была разработана с использованием моделей крыс13, у которых эта железа крупнее и ее легче идентифицировать. Напротив, эпифиз мыши значительно меньше и более хрупок, что делает его особенно подверженным потере или повреждению во время стандартных процедур извлечения мозга. В некоторых исследованиях пытались решить эту проблему, фиксируя мозг вместе со всей головой. Однако это создает дополнительные технические ограничения при подготовке ткани к срезанию. Например, при криопротекции в 30% сахарозе после фиксации в 4% параформальдегиде свод черепа может оказывать давление на нижележащую ткань мозга, что приводит к компрессии или деформации структур дорсальной части переднего мозга. Такие артефакты могут нарушить морфологию мозга и осложнить анализы, основанные на точной анатомической организации. Кроме того, фиксация ткани может подходить не для всех целей. Таким образом, для облегчения исследований развития и молекулярного анализа эпифиза у мыши необходимы методы, которые позволяют сохранить шишковидную железу и ее прикрепление к крыше диэнцефалона, не нарушая при этом общую целостность мозга.
Надежное сохранение эпифиза в целостных препаратах головного мозга имеет важное значение для ряда экспериментальных приложений. Гистологические и молекулярные подходы, такие как иммуногистохимия и гибридизация in situ, требуют сохранения архитектуры ткани для изучения экспрессии генов и клеточной организации внутри железы. В последнее время развивающиеся технологии, такие как пространственная транскриптомика и другие методы пространственно-разрешенного молекулярного профилирования, также опираются на сохранную морфологию ткани для картирования экспрессии генов в конкретных анатомических контекстах. На сегодняшний день карты пространственной транскриптомики эпифиза эмбриона мыши не представлено. Это может быть частично обусловлено технической сложностью сохранения целостности эпифиза при традиционном препарировании мозга. Следовательно, методы, обеспечивающие надежное сохранение целостности эпифиза, вероятно, облегчат применение новых подходов пространственной транскриптомики в биологии эпифиза. Кроме того, поскольку эпифиз составляет очень малую часть от общего объема ткани мозга, выделение мозга с сохранным эпифизом позволяет на последующем этапе специально извлечь саму железу; объединение таких образцов существенно повысит обогащение специфической репрезентации эпифиза при объемном анализе в транскриптомных и протеомных исследованиях.
Необходимо надежно зафиксировать голову, используя пинцет №5 в недоминирующей руке. Фиксацию следует поддерживать на протяжении всего процесса диссекции; следовательно, смена инструментов по мере необходимости должна осуществляться доминирующей рукой. Отрегулируйте освещение, чтобы лучше видеть места прикрепления эпифиза к вышележащей сосудисто-мозговой ткани, которую необходимо удалить.
Раскрытие информации
Все авторы заявляют об отсутствии конфликта интересов.
Благодарности
Мы благодарим д-ра Шитал Сурьяванши и сотрудников вивария Института фундаментальных исследований Тата за их неоценимую поддержку. Мы благодарим д-ра Сундара Наганатана за то, что он великодушно разрешил использовать стереомакрозум-микроскоп Olympus MVX10 в его лаборатории для записи видео процесса. Данная работа была профинансирована за счет гранта Министерства атомной энергии (DAE) Правительства Индии, идентификационные номера проектов RTI4003 и RTI4015 (ST); гранта ICMR-DHR SUG GAP00303, гранта ANRF PMECRG GAP00313 (AP).
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| Светлопольный микроскоп | Olympus | IX73 | Подойдет любой светлопольный микроскоп, оснащенный цветной камерой. |
| Конфокальный микроскоп | Olympus | FV3000 | В зависимости от требуемого разрешения может быть использован любой конфокальный или эпифлуоресцентный микроскоп |
| антитело к CRX | Invitrogen | PA5-32182 | Протокол иммуноокрашивания, описанный в работе Parichha et al.9. |
| зонд CRX | Изготовленный на заказ | Изготовленный на заказ | Протокол гибридизации in situ Паричха и др.10. |
| Прецизионный пинцет # 5 | Ф.С.Т. | 11251-23 | Может быть заменено аналогичными инструментами любого производителя. |
| Прецизионный пинцет # 55 | Ф. С. Т. | 11255-20 | Может быть заменено аналогичными инструментами любого производителя. |
| ФСБ, pH 7,4 | Gibco | 10010023 | Может быть заменено аналогичными товарами любой компании. |
| Чашка Петри | Corning | CLS351029 | Может быть заменено аналогичными товарами любого производителя. |
| RNaseZap | Invitrogen | AM9782 | Раствор для деконтаминации РНказ RNaseZap — это средство для деконтаминации поверхностей, которое разрушает РНказы при контакте. |
| Пружинные ножницы (ножницы для микродиссекции) | F.S.T | 15020-15 | Может быть заменено аналогичными инструментами любого производителя. |
| Стереозум-микроскоп | Nikon | SMZ745 | Подходит любой диссекционный микроскоп |
Ссылки
- Nakahara D, Nakamura M, Iigo M, Okamura H. Bimodal circadian secretion of melatonin from the pineal gland in a living CBA mouse. Proc Natl Acad Sci U S A. 2003;100(16):9584-9.
- Christ E, Pfeffer M, Korf HW, von Gall C. Pineal melatonin synthesis is altered in Period1-deficient mice. Neuroscience. 2010;171(2):398-406.
- Rath MF. Homeobox gene-encoded transcription factors in development and mature circadian function of the rodent pineal gland. J Pineal Res. 2024;76(3):e12950.
- Rath MF, Rohde K, Klein DC, Møller M. Homeobox genes in the rodent pineal gland: roles in development and phenotype maintenance. Neurochem Res. 2013;38(6):1100-12.
- Estivill-Torrús G, Vitalis T, Fernández-Llebrez P, Price DJ. The transcription factor Pax6 is required for development of the diencephalic dorsal midline secretory radial glia that form the subcommissural organ. Eur J Neurosci. 2001;14(6):1011-22.
- Dias M, et al. Transection of the superior sagittal sinus enables bilateral access to the rodent midline brain structures. eNeuro. 2021;8(4):ENEURO.0146-21.2021.
- Matsunaga MM, et al. Morphologic analysis of mice's pineal gland. J Morphol Sci. 2011;28(3):157-60.
- Boeckmann D. Morphological investigation of the deep pineal of the rat. Cell Tissue Res. 1980;210(2):283-94.
- Parichha A, et al. Constitutive activation of canonical Wnt signaling disrupts choroid plexus epithelial fate. Nat Commun. 2022;13:633.
- Parichha A, et al. Dentate gyrus morphogenesis is regulated by β-catenin function in hem-derived fimbrial glia. Development. 2022;149(21):dev200953.
- Sparks DL, Coyne CM, Sparks LM, Hunsaker JC 3rd. Recommended technique for brain removal to retain anatomic integrity of the pineal gland in order to determine its size in sudden infant death syndrome. J Forensic Sci. 1997;42(1):100-2.
- Bowyer JF, et al. A visual description of the dissection of the cerebral surface vasculature and associated meninges and the choroid plexus from rat brain. J Vis Exp. 2012;69:e4285.
- Calvo J, Boya J. Embryonic development of the rat pineal gland. Anat Rec. 1981;200(4):491-500.
Перепечатки и разрешения
