В данном обзоре обобщены данные о контроле качества митохондрий (биогенезе, динамике и митофагии) на различных стадиях сперматогенеза; устанавливается связь между метаболическими сдвигами, структурным ремоделированием и мужским бесплодием, а также выявляются методологические пробелы для определения направлений будущих исследований.
Обзорная статья
Контроль качества митохондрий: регулятор сперматогенеза
В этой статье
Краткое содержание
Аннотация
Мужское бесплодие растет во всем мире. Сперматогенез требует больших энергетических затрат и тесно связан с контролем качества митохондрий (MQC), включая биогенез, динамику слияния-деления и митофагию. В данной работе мы обобщаем имеющиеся данные по различным стадиям развития половых клеток, выделяя стадиеспецифические переходы от производства ATP на основе гликолиза к метаболизму с преобладанием окислительного фосфорилирования (OXPHOS) и ремоделирование архитектуры митохондрий в оболочку средней части сперматозоида. Мы резюмируем генетические и функциональные данные, указывающие на роль OPA1/MFN1-2 в слиянии внутренних/внешних мембран, DRP1/FIS1/MFF в делении и организации оболочки, а также роль PINK1–Parkin-зависимой и независимой митофагии в контроле качества митохондрий, при этом признавая, что удаление цитоплазмы и поддержание акросомы во время спермиогенеза могут быть связаны с общей аутофагией, а не конкретно с митофагией. Митохондриальная дисфункция — избыток активных форм кислорода (ROS), коллапс митохондриального мембранного потенциала (MMP), нарушение динамики или дефектная митофагия — нарушает сперматогенез и функцию сперматозоидов. Мы также выявляем методологические пробелы, которые ограничивают трансляцию результатов, в частности, отсутствие стандартизированного фенотипирования и генетических доказательств у людей. Уточнение причинно-следственных связей MQC и возможностей фармакологического воздействия может способствовать будущим диагностическим или терапевтическим исследованиям в области мужского бесплодия.
Введение
Качество спермы снижается во всем мире, и частота случаев мужского бесплодия, вызванного аномальным качеством сперматозоидов, растет1. Один из недавних метаанализов показал, что в период с 1973 по 2011 год концентрация сперматозоидов у мужчин из Северной Америки, Европы, Австралии и Новой Зеландии снизилась на 50–60%2, и с 2000 года это снижение ускорилось3. Об ускорении снижения качества спермы сообщалось по всему миру2,3,4,5,6. Причины этого спада требуют дальнейшего изучения и принятия адресных мер для защиты мужской фертильности.
Сперматогенез происходит в семенных канальцах яичек. Это волнообразный процесс, включающий специфические комбинации сперматогенных клеток вдоль продольной оси семенных канальцев, что в конечном итоге приводит к пролиферации сперматогониальных стволовых клеток (ССК) и их дифференцировке в сперматозоиды7. Сперматогенез у млекопитающих является одним из самых сложных и длительных процессов дифференцировки в биологии. У человека полный сперматогенный цикл длится 64–74 дня, при этом каждый цикл эпителия семенных канальцев занимает 16 дней. Этот сложный процесс сопровождается значительными изменениями формы, количества и распределения митохондрий8.
Контроль качества митохондрий (MQC) — скоординированные процессы биогенеза, слияния, деления и селективной митофагии митохондрий — поддерживает целостность органелл при различных биоэнергетических потребностях8,9. В семенниках MQC носит стадиеспецифический характер и поддерживает переход от пролиферирующих сперматогоний к мейозу и спермиогенезу, что в конечном итоге приводит к формированию плотного митохондриального обмоточного слоя в средней части хвоста сперматозоида9. На рисунке 1 представлена схема механизмов MQC в ходе сперматогенеза. Нарушение компонентов MQC может привести к дефектному сперматогенезу и снижению фертильности у модельных организмов и людей. В данном обзоре обобщены современные представления о механизмах этих процессов и описаны возможности их трансляционного применения.
Обзор и перспектива
Сперматогенез и митохондриальный энергетический метаболизм
Сперматогенез состоит из трех последовательных стадий: митотической пролиферации, мейоза и спермиогенеза, которые включают пролиферацию сперматогоний, их дифференцировку в сперматоциты, мейотическое деление, созревание сперматид и спермиацию в просвет семенных канальцев. Сперматогонии подразделяются на резервный и обновляющийся типы. Некоторые сперматогонии сохраняются в качестве стволовых клеток, в то время как другие участвуют в сперматогенезе путем дифференцировки. Кроме того, некоторые из них подвергаются программируемой клеточной гибели, например, апоптозу. Диплоидные первичные сперматоциты проходят два раунда мейотического деления, дифференцируясь в гаплоидные сперматиды. В ходе спермиогенеза округлые сперматиды перестают делиться и превращаются в сильно вытянутые сперматиды, которые в конечном итоге развиваются в зрелые сперматозоиды.
Сперматогенез требует скоординированного взаимодействия между герминативными клетками (включая сперматогонии, сперматоциты, сперматиды и сперматозоиды) и поддерживающими клетками Сертоли, а также сохранения целостности гематотестикулярного барьера10,11. Гематотестикулярный барьер, образованный плотными контактами между соседними клетками Сертоли, разделяет семенной эпителий на базальный и адлюминальный отделы, создавая и поддерживая специализированную микросреду, необходимую для развития герминативных клеток11,12. Следовательно, сперматогенез — от сперматогониальных стволовых клеток до зрелых сперматозоидов — протекает в этой уникальной микросреде яичек. Процесс продукции спермы в значительной степени зависит от функции митохондрий13. Будучи центром энергетического метаболизма в эукариотических клетках, митохондрии считаются незаменимыми для продукции спермы. Образование сперматозоидов сильно зависит от энергообеспечения и сигнальных функций митохондрий. В развивающихся герминативных клетках митохондрии не только обеспечивают сперматогенез необходимым ATP, но и влияют на этот процесс, участвуя в внутриклеточной передаче сигналов, регуляции клеточного цикла и программируемой клеточной смерти13. В клетках Лейдига митохондрии играют решающую роль в выработке стероидных гормонов, и синтез ATP в митохондриях необходим для продукции тестостерона в этих интерстициальных клетках яичек14. Кроме того, поскольку митохондрии являются единственными органеллами с собственной DNA, митохондриальная DNA тесно связана с качеством спермы. Таким образом, понимание состояния митохондрий и механизмов их регуляции важно для раскрытия процесса сперматогенеза и сохранения мужской фертильности.
Энергетический обмен имеет решающее значение для сперматогенеза, который требует значительного количества ATP. Двумя основными путями выработки ATP являются митохондриальное окислительное фосфорилирование (OXPHOS) и гликолиз. Потребность в ATP зависит от стадии развития: в то время как OXPHOS становится все более важным в ходе мейоза и формирования среднего отдела головки, гликолиз вносит существенный вклад в выработку ATP, особенно в зрелых сперматозоидах. Гликолиз также поддерживает созревание, подвижность сперматозоидов и их прохождение через женские репродуктивные пути, обеспечивая гибкий и быстрый приток энергии.
Однако в сперматогониях и ранних сперматоцитах митохондрии относительно малы и проявляют ограниченную активность OXPHOS. По мере продвижения сперматогенеза к более поздним стадиям, таким как сперматоциты, сперматиды и сперматозоиты, митохондрии подвергаются ремоделированию, а их активность OXPHOS становится более пространственно сконцентрированной и эффективной. Кроме того, из-за наличия гематотестикулярного барьера доступные субстраты различаются в зависимости от стадии. Сперматогонии, расположенные в базальном отделе семенного эпителия, имеют доступ к циркулирующей глюкозе и вырабатывают энергию посредством гликолиза. Напротив, сперматоциты и сперматиды в адлюминальном отделе отделены от крови и интерстиция гематотестикулярным барьером и зависят от клеток Сертоли, которые поглощают глюкозу с помощью транспортеров глюкозы (GLUT), превращая ее в пируват посредством гликолиза. Затем пируват превращается в лактат с помощью лактатдегидрогеназы (LDH). Лактат транспортируется в сперматоциты через транспортеры монокарбоксилатов (MCT), где он снова превращается в пируват под действием LDH, который затем может быть преобразован в ацетил-CoA пируватдегидрогеназой (PDH) для вступления в цикл трикарбоновых кислот (TCA). Наконец, пируват транспортируется в митохондрии через митохондриальный переносчик пирувата для стимуляции OXPHOS.
Нарушение сперматогенеза вследствие митохондриальной дисфункции
В процессе спермиации зрелые сперматозоиды высвобождаются из клеток Сертоли в просвет семенных канальцев с последующим транспортом в придаток семенника. Этот процесс требует значительных энергозатрат, обеспечиваемых митохондриями. При нарушении функции митохондрий сперматогенез затрудняется. К основным признакам митохондриальной дисфункции относятся избыточная продукция активных форм кислорода (АФК), изменения потенциала митохондриальной мембраны (MMP), дисбаланс динамики деления и слияния митохондрий, нарушение биогенеза митохондрий, дефектная митофагия и нарушение гомеостаза ионов кальция.
Процесс выработки АТФ митохондриями посредством OXPHOS также сопровождается образованием АФК. Митохондрии являются основным источником АФК, которые в основном генерируются в дыхательных комплексах I и III митохондриальной электрон-транспортной цепи (ЭТЦ)15. В нормальных физиологических условиях соответствующие уровни АФК участвуют в сигнальных путях, регулирующих сперматогенез. Однако избыток АФК может привести к окислительно-восстановительному дисбалансу, вызывая окислительный стресс и нарушая сперматогенез. Таким образом, баланс между энергетическим обменом митохондрий и выработкой АФК является ключевым фактором обеспечения сперматогенеза.
Эффективное митохондриальное окислительное фосфорилирование (OXPHOS) требует поступления респираторных углеродных субстратов (например, пирувата, жирных кислот) через внешнюю мембрану митохондрий в межмембранное пространство. Затем эти субстраты транспортируются в матрикс с помощью переносчиков, расположенных во внутренней мембране митохондрий, где они участвуют в цикле трикарбоновых кислот (ЦТК). В цикле ЦТК эти углеродные субстраты подвергаются окислительному расщеплению с образованием никотинамидадениндинуклеотида (NADH) и флавинадениндинуклеотида (FADH2). Эти продукты отдают электроны в электронтранспортную цепь (ЭТЦ) и обеспечивают OXPHOS для синтеза ATP из ADP и неорганического фосфата (Pi). Нарушения в путях ЦТК или ЭТЦ могут привести к ухудшению сперматогенеза16. Было показано, что мембранный потенциал митохондрий (MMP), являющийся индикатором энергетического статуса клетки и функции митохондрий, связан с подвижностью сперматозоидов17 и общей оплодотворяющей способностью18.
При митохондриальном стрессе деление может отделять поврежденные сегменты митохондрий, в то время как слияние способствует перемешиванию содержимого и функциональной комплементации. Поврежденные или избыточные митохондрии затем могут быть деградированы и переработаны посредством митофагии. Совокупно биогенез, деление, слияние и митофагия митохондрий составляют систему контроля качества митохондрий (MQC), которая поддерживает функцию и ремоделирование митохондрий19.
Сперматогенез включает дифференцировку сперматогоний в сперматозоиды, что приводит не только к значительным изменениям морфологии клеток, но и требует поддержки и регуляции энергетического обмена. Будучи энергетическими станциями клеток, митохондрии играют решающую роль в ключевых аспектах сперматогенеза, включая энергоснабжение, передачу сигналов и программируемую клеточную смерть. В ходе сперматогенеза метаболические потребности герминативных клеток меняются на разных стадиях развития. Количество и морфология митохондрий претерпевают значительные изменения в процессе сперматогенеза. Во время формирования сперматозоидов многие митохондрии отбрасываются, в то время как сохранившиеся митохондрии организуются в промежуточной части сперматозоида, образуя митохондриальный чехол вокруг аксонемы и связанных с ней флагеллярных структур. Следовательно, в ходе сперматогенеза митохондрии в различных клетках семенников постоянно подвергаются слиянию и делению, что требует эффективного и точного механизма MQC для обеспечения их нормального функционирования и поддержки высоких энергетических затрат сперматогенеза. По мере выработки спермы морфология и число митохондрий претерпевают значительные изменения, и MQC играет критическую роль в этом процессе. Основные целевые белки, участвующие в MQC, перечислены в Таблице 1.
Спермиогенез и динамика митохондрий
Митохондрии представляют собой высокодинамичные органеллы, морфология, размер и субклеточное распределение которых постоянно перестраиваются посредством скоординированного слияния и деления — процессов, которые в совокупности называют митохондриальной динамикой. В нормальных физиологических условиях слияние и деление находятся в динамическом равновесии, которое поддерживает митохондриальный гомеостаз, способствует функциональной комплементации и обеспечивает правильное наследование митохондрий при делении клеток. Нарушение этого баланса — будь то вследствие генетической абляции, дефектов посттрансляционной модификации или патологического стресса — ухудшает функцию митохондрий, нарушает выработку энергии и, в конечном итоге, препятствует сперматогенезу. Точная регуляция митохондриальной динамики особенно критична в половых клетках, поскольку сперматогенез сопровождается резкими метаболическими сдвигами и масштабной морфологической перестройкой, требующими стадия-специфичной адаптации архитектуры и активности митохондрий.
Слияние митохондрий осуществляется белками MFN1 и MFN2 на внешней митохондриальной мембране и OPA1 на внутренней мембране, что способствует перемешиванию содержимого, функциональной комплементации и поддержанию целостности митохондриальной ДНК. Слияние является не просто защитной реакцией, а контекст-зависимым механизмом, который поддерживает наследование митохондрий и метаболическую адаптацию в процессе дифференцировки половых клеток. Во время дифференцировки сперматогоний экспрессия MFN увеличивается, а утрата MFN1 или MFN2 приводит к окислению ДНК и апоптозу в сперматогониях и сперматоцитах, что вызывает мужское бесплодие20,21. Мутации MFN1 вызывают атрофию семенников у мышей с выраженным сокращением числа сперматоцитов и прекращением выработки сперматозоидов, в то время как недифференцированные сперматогонии остаются незатронутыми, что свидетельствует о необходимости MFN1 для прохождения мейоза20. MFN2, напротив, регулирует функции как митохондрий, так и эндоплазматического ретикулума, играя особую роль в сперматогенезе21.
Деление митохондрий координируется белком DRP1, который привлекается к внешней мембране митохондрий с помощью адапторных белков, включая FIS1, MFF, MID49 и MID51. После привлечения DRP1 собирается в кольцеобразные олигомеры, которые сжимают и разделяют митохондрии GTP-зависимым образом. Этот процесс включает три основных этапа: активацию DRP1 посредством фосфорилирования, привлечение к внешней мембране за счет взаимодействия с FIS1, MFF, MID49 и MID51, а также сборку в кольцевую структуру, которая охватывает и сжимает митохондрию, потребляя GTP и образуя две отдельные органеллы. Деление является не просто механизмом удаления деполяризованных митохондрий или обеспечения повышенных энергетических потребностей; скорее, это скоординированный процесс, который регулирует распределение митохондрий, сегрегацию поврежденных компонентов, наследование при делении клеток и перестройку архитектуры митохондрий. Мыши с дефицитом DRP1 погибают на эмбриональной стадии22,23; у мышей с дефицитом MFF наблюдается снижение фертильности и количества сперматозоидов, что представляет собой ценную модель для изучения деления митохондрий при развитии мужских половых клеток24. Деление митохондрий необходимо для правильного формирования митохондриального чехла в процессе спермиогенеза.
Сперматогенез является энергетически затратным процессом, опирающимся преимущественно на гликолиз в сперматогониях и OXPHOS в сперматоцитах и сперматидах. OXPHOS особенно критичен во время мейоза, и его эффективность зависит от целостности митохондриальной динамики25,26. После мейоза MFF и другие белки деления регулируют деление митохондрий и участвуют в формировании митохондриального обмотка сперматозоида24. В ходе спермиогенеза некоторые митохондрии избирательно сохраняются и перестраиваются в обмотку, в то время как избыточные митохондрии и цитоплазматические компоненты удаляются посредством аутофагии27. Такие белки, как OPA1, DRP1 и MFF, могут быть потенциальными мишенями для исследований по улучшению функций сперматозоидов, однако их терапевтическая значимость требует дальнейшего подтверждения. Дальнейшее изучение MQC в сперматогенезе человека может способствовать будущим диагностическим или терапевтическим исследованиям мужского бесплодия.
Сперматогенез и митохондриальная аутофагия
Митофагия играет критическую роль в сперматогенезе28. Митофагия в первую очередь заключается в поглощении поврежденных митохондрий автофагосомами. Затем автофагосомы, содержащие поврежденные митохондрии, сливаются с лизосомами, и митохондрии подвергаются деградации под действием лизосомальных ферментов, что обеспечивает удаление поврежденных митохондрий и контроль качества. Классическим путем митохондриальной автофагии является путь PINK1/Parkin, однако также описаны PINK1/Parkin-независимые пути29.
Аутофагия способствует поддержанию целостности акросомы, поляризации сперматид и деградации цитоплазматических компонентов в ходе сперматогенеза, хотя эти процессы отражают общую аутофагию, а не селективную митофагию, если только не будет специально продемонстрировано удаление митохондрий. Исследования показали, что митофагия тесно связана с динамикой митохондрий, и деление митохондрий может способствовать митофагии для удаления избыточных или поврежденных митохондрий30. FIS1, несмотря на то что является белком деления митохондрий, также участвует в митофагии во время сперматогенеза31. RAB7A участвует в формировании митофагосом и созревании аутофагосом32. FIS1 взаимодействует с митохондриальным ГТФаз-активирующим белком TBC1D1533,34. TBC1D15 регулирует активность RAB7A, который участвует в слиянии везикул с лизосомами и созревании аутофагосом34,35. При инактивации FIS1 белок RAB7A может оставаться активным на поверхности митохондрий, что приводит к нарушению роста мембраны аутофагосом и их тубуляции; при этом с помощью оптической микроскопии можно наблюдать агрегацию LC335. Митофагия также может происходить независимо от DRP1-опосредованного деления митохондрий, поэтому деление не следует рассматривать как обязательное условие для клиренса митохондрий35.
В процессе спермиогенеза сперматиды избавляются от избыточных клеточных компонентов, и исследования показали, что автофагосомы наиболее многочисленны именно в сперматидах36. Основной ген аутофагии Atg7 был связан с поляризацией сперматид и удалением цитоплазмы в ходе сперматогенеза; однако ранние типы половых клеток, по-видимому, подвержены этому влиянию в меньшей степени27,36. Кроме того, митофагия усиливается в моделях повреждения яичек, включая клетки Лейдига29, сперматогониальные стволовые клетки/прогениторы37,38, клетки Сертоли39, а также в незрелых яичках крыс при воздействии токсикантов40. При сперматогенезе аутофагия митохондрий связана с апоптозом и другими видами программируемой клеточной гибели, что влияет на продукцию сперматозоидов в яичках41,42.
Библиометрический контекст
Был проведен целенаправленный библиометрический анализ основного ядра Web of Science (Core Collection) за период с 1970 по 2023 год с использованием поисковых запросов «spermatogenesis» и «MQC»; исследования на немлекопитающих и нерелевантные записи были исключены, а для визуализации использовалось ПО VOSviewer 1.6.2043. После скрининга было отобрано 1019 статей из 1217 учреждений в 66 странах, написанных 5705 авторами. Количество публикаций неуклонно росло (Рисунок 2A). Наибольшее количество статей предоставили США и Китай (212 и 196 соответственно), а США имели самый высокий показатель цитируемости (12 295; Рисунок 2B). Сети учреждений и авторов обобщены на Рисунке 2C,D.
Анализ совместного появления ключевых слов (частота > 7) выявил акцент на подвижности сперматозоидов, окислительном стрессе, апоптозе/программируемой гибели клеток, повреждении ДНК, перекисном окислении липидов и качестве спермы (Рисунок 3). Эти библиометрические закономерности дополняют, но не заменяют механистический обзор: область исследований сосредоточена вокруг окислительного повреждения и показателей подвижности, в то время как прямых доказательств на людях, связывающих стадийные пути MQC с бесплодием, остается недостаточно.
Выводы
С развитием биотехнологий исследования мужской фертильности сместились от описания морфологии и подвижности сперматозоидов в сторону изучения молекулярных и клеточных механизмов сперматогенеза. Митохондрии играют центральную роль в этом процессе: они вырабатывают ATP, обеспечивают перестройку структур во время мейоза и спермиогенеза, а также обладают высокой чувствительностью к окислительному стрессу и воздействию факторов окружающей среды44. Для сохранения функциональности в условиях такого стресса митохондрии полагаются на MQC (контроль качества митохондрий), который объединяет биогенез, динамику слияния-деления и митофагию. Нарушение этих путей приводит к сбоям в развитии половых клеток, нарушению архитектуры средней части сперматозоида и, в конечном итоге, к бесплодию. Таким образом, имеющиеся данные подтверждают существование стадиеспецифической модели, в которой динамика митохондрий и митофагия помогают координировать выработку энергии, перестройку органелл и удаление поврежденных компонентов в ходе сперматогенеза. Тем не менее, прямые доказательства на людях и стандартизированное фенотипирование остаются ограниченными, поэтому белки, связанные с MQC, следует рассматривать как потенциальные мишени для исследований, требующие дальнейшего подтверждения, а не как установленные терапевтические мишени.
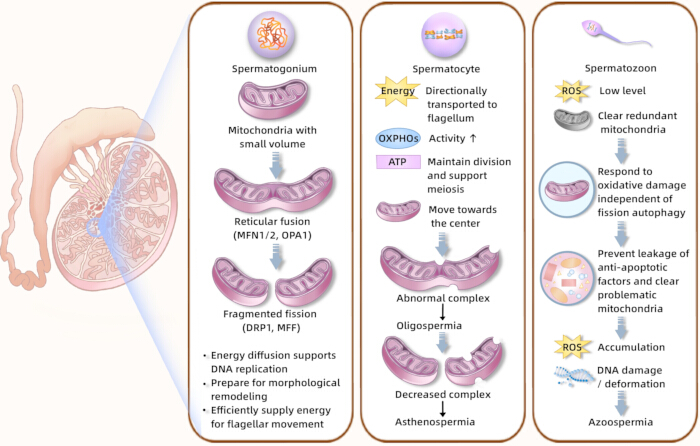
Рисунок 1. Механизм контроля качества митохондрий в процессе сперматогенеза. Энергетический метаболизм и ремоделирование митохондрий в зависимости от стадии сперматогенеза. На схеме показаны метаболическая связь между клетками Сертоли и герминативными клетками, транспортеры глюкозы, транспортеры монокарбоксилатов, синтез ATP, переход от гликолитического метаболизма к окислительному фосфорилированию в ходе мейоза и спермиогенеза, а также повреждение митохондрий, вызванное активными формами кислорода. Сокращения: ATP = аденозинтрифосфат; OXPHOS = окислительное фосфорилирование; ROS = активные формы кислорода. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
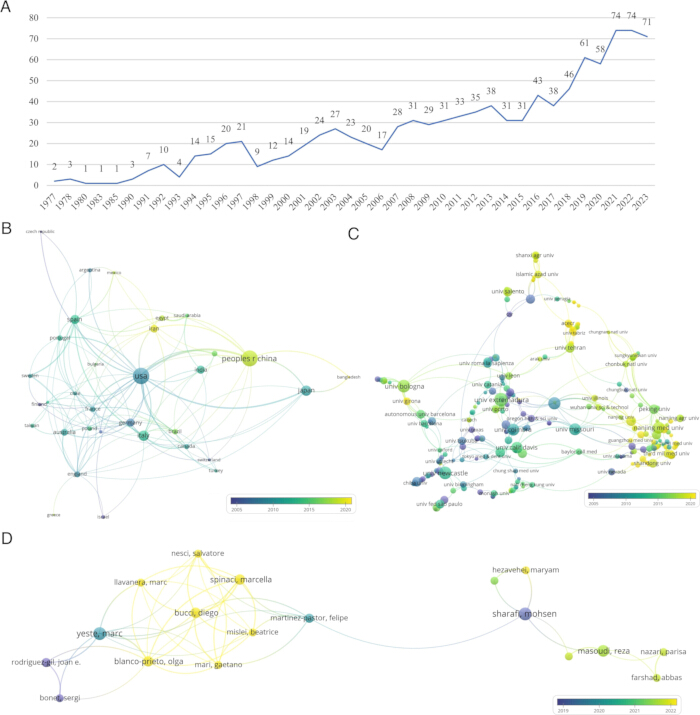
Рисунок 2. Анализ публикаций на национальном, институциональном и авторском уровнях, а также анализ сотрудничества. (A) Ежегодное количество публикаций в области сперматогенеза и MQC. (B) Карта временного распределения международных совместных публикаций в области сперматогенеза и MQC. (C) Карта временного распределения институционального сотрудничества в области сперматогенеза и MQC. (D) Карта временного распределения авторских публикаций в области сперматогенеза и MQC. Узлы обозначают количество публикаций; цвет узла указывает на время публикации от более ранних к более поздним; линии представляют отношения сотрудничества, при этом более толстые линии указывают на более тесное сотрудничество. Аббревиатура: MQC = контроль качества митохондрий. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
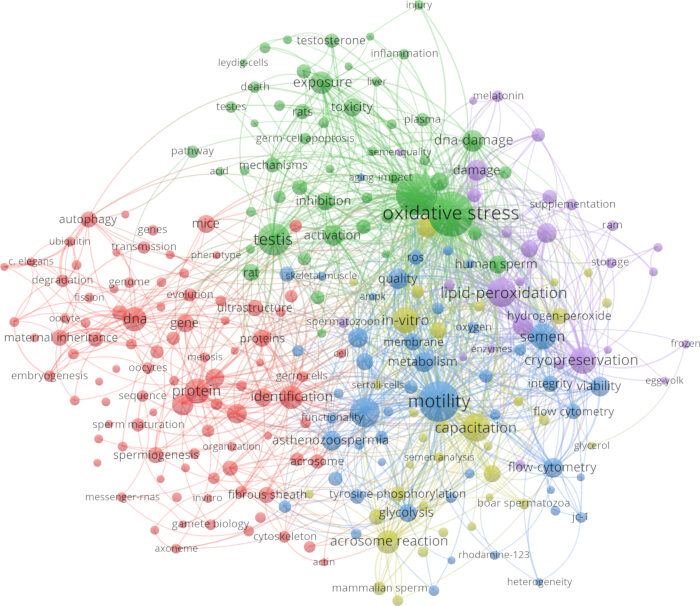
Рисунок 3. Диаграмма совместного появления высокочастотных ключевых слов. Узлы представляют высокочастотные ключевые слова; размер узла соответствует частоте; цвет узла указывает на кластеризацию, при этом один и тот же цвет обозначает более тесно связанные темы; линии представляют связи между ключевыми словами, где более толстые линии указывают на более тесную связь. Пожалуйста, нажмите здесь, чтобы просмотреть этот рисунок в большем размере.
| процесс MQC | Целевой белок |
| Слияние митохондрий | Оптическая атрофия 1 (OPA1) |
| Митофузин 1 (MFN1) | |
| Митофузин 2 (MFN2) | |
| Деление митохондрий | Белок 1, родственный динамину (DRP1) |
| Белок митохондриального деления 1 (FIS1) | |
| Фактор митохондриального деления (MFF) | |
| Митофагия | Предполагаемая киназа 1, индуцируемая PTEN (PINK1) |
| Убиквитин-белковая лигаза Parkin (E3-убиквитин-белковая лигаза Parkin) |
Таблица 1: Основные целевые белки в контроле качества митохондрий. В таблице перечислены репрезентативные белки, участвующие в слиянии митохондрий, делении митохондрий и митофагии в процессе сперматогенеза.
Раскрытие информации
Авторы заявляют об отсутствии конфликта интересов.
Благодарности
Данная работа была поддержана проектом Фонда естественных наук Нинся (2025AAC030481, 2024AAC03715), Национальным фондом естественных наук Китая (82560939, 82505601), Программой ключевых исследований и разработок Нинся (2025FRG05005, 2025BEG2008), Фондом естественных наук Пекина (7254520), Постдокторским научным фондом Китая (2025T181076), Программой поддержки молодых элитных ученых Ассоциации науки и технологий Китая (YESS20240193), Программой поддержки молодых талантов Китайской ассоциации китайской медицины (CACM-2024-QNRC2-B17), а также Проектом по созданию высокоуровневых ключевых дисциплин традиционной китайской медицины Национального управления традиционной китайской медицины (zyyzdxk-2023238).
Ссылки
- Esteves SC. Evolution of the World Health Organization semen analysis manual: where are we? Nat Rev Urol. 2022;19(7):439-46.
- Levine H, et al. Temporal trends in sperm count: a systematic review and meta-regression analysis of samples collected globally in the 20th and 21st centuries. Hum Reprod Update. 2023;29(2):157-76.
- Cipriani S, et al. Trend of change of sperm count and concentration over the last two decades: a systematic review and meta-regression analysis. Andrology. 2023;11(6):997-1008.
- Lv MQ, et al. Temporal trends in semen concentration and count among 327 373 Chinese healthy men from 1981 to 2019: a systematic review. Hum Reprod. 2021;36(7):1751-75.
- Li Y, et al. Trends in sperm quality by computer-assisted sperm analysis of 49 189 men during 2015-2021 in a fertility center from China. Front Endocrinol (Lausanne). 2023;14:1194455.
- Bonde JP, te Velde ER. Male factor infertility: declining sperm counts: the never-ending story. Nat Rev Urol. 2017;14(11):645-6.
- Hermo L, Pelletier RM, Cyr DG, Smith CE. Surfing the wave, cycle, life history, and genes/proteins expressed by testicular germ cells. Part 1: background to spermatogenesis, spermatogonia, and spermatocytes. Microsc Res Tech. 2010;73(4):241-78.
- Costa J, et al. Mitochondria quality control and male fertility. Biology (Basel). 2023;12(6):827.
- Varuzhanyan G, Chan DC. Mitochondrial dynamics during spermatogenesis. J Cell Sci. 2020;133(14):jcs235937.
- Wu S, Yan M, Ge R, Cheng CY. Crosstalk between Sertoli and germ cells in male fertility. Trends Mol Med. 2020;26(2):215-31.
- Mruk DD, Cheng CY. The mammalian blood-testis barrier: its biology and regulation. Endocr Rev. 2015;36(5):564-91.
- Ma Y, Ma QW, Sun Y, Chen XF. The emerging role of extracellular vesicles in the testis. Hum Reprod. 2023;38(3):334-51.
- Vertika S, Singh KK, Rajender S. Mitochondria, spermatogenesis, and male infertility: an update. Mitochondrion. 2020;54:26-40.
- Midzak A, et al. Mitochondrial protein import and the genesis of steroidogenic mitochondria. Mol Cell Endocrinol. 2011;336(1-2):70-9.
- Brand MD. Mitochondrial generation of superoxide and hydrogen peroxide as the source of mitochondrial redox signaling. Free Radic Biol Med. 2016;100:14-31.
- Boguenet M, et al. Mitochondria: their role in spermatozoa and in male infertility. Hum Reprod Update. 2021;27(4):697-719.
- Barbagallo F, et al. Evaluation of sperm mitochondrial function: a key organelle for sperm motility. J Clin Med. 2020;9(2):363.
- Gallon F, Marchetti C, Jouy N, Marchetti P. The functionality of mitochondria differentiates human spermatozoa with high and low fertilizing capability. Fertil Steril. 2006;86(5):1526-30.
- Gan Z, Fu T, Kelly DP, Vega RB. Skeletal muscle mitochondrial remodeling in exercise and diseases. Cell Res. 2018;28(10):969-80.
- Zhang J, et al. GASZ and mitofusin-mediated mitochondrial functions are crucial for spermatogenesis. EMBO Rep. 2016;17(2):220-34.
- Chen W, et al. MFN2 plays a distinct role from MFN1 in regulating spermatogonial differentiation. Stem Cell Reports. 2020;14(5):803-17.
- Ishihara N, et al. Mitochondrial fission factor Drp1 is essential for embryonic development and synapse formation in mice. Nat Cell Biol. 2009;11(8):958-66.
- Wakabayashi J, et al. The dynamin-related GTPase Drp1 is required for embryonic and brain development in mice. J Cell Biol. 2009;186(6):805-16.
- Varuzhanyan G, et al. Mitochondrial fission factor (Mff) is required for organization of the mitochondrial sheath in spermatids. Biochim Biophys Acta Gen Subj. 2021;1865(5):129845.
- Miao J, et al. MFN1 and MFN2 are dispensable for sperm development and functions in mice. Int J Mol Sci. 2021;22(24):13507.
- Arslan NP, Keles ON, Gonul-Baltaci N. Effect of titanium dioxide and silver nanoparticles on mitochondrial dynamics in mouse testis tissue. Biol Trace Elem Res. 2022;200(4):1650-8.
- Shang Y, et al. Autophagy regulates spermatid differentiation via degradation of PDLIM1. Autophagy. 2016;12(9):1575-92.
- Vargas JNS, et al. The mechanisms and roles of selective autophagy in mammals. Nat Rev Mol Cell Biol. 2023;24(3):167-85.
- Yi L, et al. Cadmium-induced apoptosis of Leydig cells is mediated by excessive mitochondrial fission and inhibition of mitophagy. Cell Death Dis. 2022;13(11):928.
- Losón OC, Song Z, Chen H, Chan DC. Fis1, Mff, MiD49, and MiD51 mediate Drp1 recruitment in mitochondrial fission. Mol Biol Cell. 2013;24(5):659-67.
- Varuzhanyan G, et al. Fis1 ablation in the male germline disrupts mitochondrial morphology and mitophagy, and arrests spermatid maturation. Development. 2021;148(16):dev199686.
- Tan EHN, Tang BL. Rab7a and mitophagosome formation. Cells. 2019;8(3):224.
- Onoue K, et al. Fis1 acts as a mitochondrial recruitment factor for TBC1D15 that is involved in regulation of mitochondrial morphology. J Cell Sci. 2013;126(1):176-85.
- Yamano K, et al. Mitochondrial Rab GAPs govern autophagosome biogenesis during mitophagy. Elife. 2014;3:e01612.
- Yamashita SI, et al. Mitochondrial division occurs concurrently with autophagosome formation but independently of Drp1 during mitophagy. J Cell Biol. 2016;215(5):649-65.
- Yang P, et al. In vivo autophagy and biogenesis of autophagosomes within male haploid cells during spermiogenesis. Oncotarget. 2017;8(34):56791-801.
- Li T, et al. YTHDF2 controls hexavalent chromium-induced mitophagy through modulating Hif1α and Bnip3 decay via the m6A/mRNA pathway in spermatogonial stem cells/progenitors. Toxicol Lett. 2023;377:38-50.
- Lv Y, et al. Melatonin attenuates chromium (VI)-induced spermatogonial stem cell/progenitor mitophagy by restoration of METTL3-mediated RNA N6-methyladenosine modification. Front Cell Dev Biol. 2021;9:684398.
- Eid N, Ito Y, Otsuki Y. Enhanced mitophagy in Sertoli cells of ethanol-treated rats: morphological evidence and clinical relevance. J Mol Histol. 2012;43(1):71-80.
- Hong Y, et al. X-box binding protein 1 caused an imbalance in pyroptosis and mitophagy in immature rats with di-(2-ethylhexyl) phthalate-induced testis toxicity. Genes Dis. 2024;11(2):935-51.
- Su Y, et al. Mutual promotion of apoptosis and autophagy in prepubertal rat testes induced by joint exposure of bisphenol A and nonylphenol. Environ Pollut. 2018;243:693-702.
- Quan C, et al. Prenatal bisphenol A exposure leads to reproductive hazards on male offspring via the Akt/mTOR and mitochondrial apoptosis pathways. Environ Toxicol. 2017;32(3):1007-23.
- Chen C, Song M. Visualizing a field of research: a methodology of systematic scientometric reviews. PLoS One. 2019;14(10):e0223994.
- Yang M, et al. Melatonin promotes male reproductive performance and increases testosterone synthesis in mammalian Leydig cells. Biol Reprod. 2021;104(6):1322-36.