В данном обзоре обобщены сведения о роли метилирования ДНК в иммунной регуляции и отторжении трансплантата. Метилирование ДНК регулирует развитие и дифференцировку иммунных клеток, модулирует их функции и может служить биомаркером и терапевтической мишенью для повышения выживаемости трансплантата.
Обзорная статья
Иммунологическая регуляция метилирования ДНК и ее роль в отторжении аллотрансплантата
34 просмотров
⸱
11 сентября 2026 г.
В этой статье
Краткое содержание
Аннотация
Отторжение трансплантата остается основным препятствием для долгосрочного выживания графта и обусловлено сложными взаимодействиями между иммунными ответами и молекулярными регуляторными механизмами. Метилирование ДНК, являясь ключевой эпигенетической модификацией, играет важную роль в регуляции развития, дифференцировки, созревания и функции иммунных клеток. Аберрантное метилирование ДНК может изменять экспрессию иммуносвязанных генов и влиять на характер и интенсивность иммунного ответа. При трансплантации эти изменения могут затрагивать T-клетки, B-клетки и клетки врожденного иммунитета, участвующие в отторжении графта. Метилирование ДНК также способствует регуляции сигнальных путей, связанных с иммунной активацией, толерантностью и воспалительными реакциями. Таким образом, изменения в паттернах метилирования могут влиять как на прогрессирование отторжения, так и на сохранение функции трансплантата. В данном обзоре обобщаются современные знания о метилировании ДНК в иммунной регуляции и рассматривается его значение для отторжения трансплантатов с особым акцентом на развитие тимуса, хелперные и цитотоксические T-клетки, регуляторные T-клетки, B-клетки, клетки врожденного иммунитета и сигнальные пути. Также рассматривается потенциальная значимость метилирования ДНК в качестве биомаркера и терапевтической мишени при трансплантации. Понимание этих эпигенетических механизмов может способствовать разработке более точных подходов к оценке риска отторжения, модуляции иммунного ответа и улучшению долгосрочных результатов после трансплантации солидных органов.
Введение
Иммунология — это научная дисциплина, изучающая структуру и функции иммунной системы, включая механизмы, лежащие в основе иммунных ответов и поддержания гомеостаза после распознавания собственных и чужеродных компонентов. Эта область также охватывает патологические процессы, возникающие вследствие нарушения регуляции иммунной функции. Иммунная система выполняет три основные функции: защиту, надзор и поддержание гомеостаза. Совместно эти функции предотвращают проникновение внешних патогенов и вредных веществ, устраняют чужеродные компоненты внутри организма и поддерживают стабильную внутреннюю иммунную среду. В зависимости от характеристик иммунного ответа иммунитет классифицируют как врожденный или адаптивный. Врожденный иммунитет обеспечивает быстрый неспецифический ответ на чужеродные патогены, в то время как адаптивный иммунитет обеспечивает высокоспецифический ответ, направленный против конкретных антигенов1,2. В ходе иммунного ответа внешние и внутренние факторы регулируют экспрессию генов, связанных с иммунной функцией. Такая регуляция включает как классические генетические механизмы, так и эпигенетические модификации, формируя сложную и динамичную регуляторную сеть транскрипции3.
Традиционная генетика фокусируется на изменениях функций генов, вызванных изменениями в последовательностях ДНК, в то время как эпигенетика изучает обратимые и наследуемые изменения экспрессии генов, которые происходят без модификации лежащей в основе последовательности ДНК. Стимулы окружающей среды, включая инфекции, воздействие химических веществ и фармацевтических препаратов, а также внутренние факторы, такие как цитокины и гормоны, могут изменять эпигенетический ландшафт генов. Эти изменения регулируют экспрессию генов и в конечном итоге формируют клеточные фенотипы и биологические функции. Основными эпигенетическими механизмами, контролирующими экспрессию генов, являются метилирование ДНК, модификация гистонов, ремоделирование хроматина и регуляция, опосредованная некодирующими РНК. В ходе раннего эмбрионального развития метки метилирования ДНК почти полностью стираются и впоследствии восстанавливаются в процессе дифференцировки4,5. Точное удаление и восстановление этих эпигенетических модификаций необходимы для нормального развития, дифференцировки и созревания клеток. Напротив, аберрантные эпигенетические изменения могут нарушить функцию генов и способствовать возникновению и прогрессированию заболеваний6. Паттерны метилирования ДНК также динамически меняются в процессе развития и дифференцировки T-клеток и B-клеток7,8. Эти данные подчеркивают критическую роль эпигенетической регуляции в управлении дифференцировкой гемопоэтических стволовых клеток костного мозга в различные линии иммунных клеток. Модификации гистонов регулируют дифференцировку и функциональную пластичность моноцитов/макрофагов и T-хелперов9,10,11,12,13,14 и влияют на ключевые сигнальные пути, включая пути Toll-подобных рецепторов15,16. Ремоделировщик хроматина Mi-2beta экспрессируется на высоком уровне в тимоцитах и напрямую регулирует экспрессию гена CD4 и развитие T-клеток17. Некодирующие РНК также функционируют как важные регуляторы иммунного ответа. Например, интерферон-γ (IFN-γ) играет центральную роль в защите организма от внутриклеточных бактериальных инфекций, в то время как miR-21 может подавлять продукцию IFN-γ, напрямую воздействуя на мРНК IFN-γ18. В совокупности эти результаты подчеркивают центральную роль эпигенетических механизмов в регуляции иммунного ответа.
Иммунные клетки играют центральную роль в функционировании иммунной системы и являются ключевыми факторами отторжения трансплантата, что в значительной степени определяет выживаемость трансплантата19,20,21. Несмотря на обширные иммунологические исследования механизмов, лежащих в основе отторжения трансплантата, многие аспекты остаются недостаточно изученными22. Растущий объем данных также свидетельствует о критической роли эпигенетических механизмов в развитии, дифференцировке и созревании иммунных клеток23,24. Таким образом, изучение молекулярных основ отторжения трансплантата с точки зрения эпигенетики может способствовать более раннему вмешательству и предотвращению отторжения трансплантата и хронической аллотрансплантатной нефропатии после трансплантации органов, что потенциально увеличит долгосрочную выживаемость трансплантата. Среди различных эпигенетических модификаций метилирование ДНК представляет собой наиболее стабильный механизм регуляции транскрипции в геноме млекопитающих25. Соответственно, в данном обзоре рассматривается роль метилирования ДНК в развитии, дифференцировке и функционировании иммунных клеток, а также его участие в остром отторжении после трансплантации органов.
Обзор и перспектива
1. Метилирование ДНК и технологии секвенирования
При метилировании ДНК в качестве донора метильных групп используется S-аденозилметионин; ДНК-метилтрансферазы катализируют ковалентное присоединение метильной группы к пятому атому углерода цитозина в составе CpG-динуклеотидов (цитозин–фосфат–гуанин), превращая таким образом цитозин в 5-метилцитозин (5mC). Эта модификация создает дополнительный регуляторный уровень экспрессии генов, дополняющий саму последовательность ДНК. В целом, области с низким уровнем метилирования допускают связывание белков и поддерживают структуру хроматина, которая способствует активной транскрипции генов26. Напротив, метилированные участки ДНК могут подавлять транскрипцию и экспрессию генов путем привлечения белков с метил-CpG-связывающим доменом (MBD), стимуляции модификаций гистонов и комплексов ремоделирования хроматина или путем прямого блокирования связывания факторов транскрипции и других ДНК-связывающих белков27,28,29. Однако метилирование ДНК может быть связано и с активацией генов, особенно в пределах тела гена, где оно положительно коррелирует с экспрессией генов. Хотя такая взаимосвязь встречается реже, метилирование тела гена характерно для повсеместно экспрессируемых генов30,31.
Биологическая функция метилирования ДНК должна интерпретироваться в ее геномном контексте. CpG-динуклеотиды часто группируются в областях, называемых CpG-островками, которые определяются как сегменты ДНК длиной более 200 пар оснований (bp), с содержанием G+C не менее 50% и соотношением наблюдаемого к ожидаемому количеству (Obs/Exp) не менее 0,632. В геноме млекопитающих CpG-динуклеотиды встречаются относительно редко и составляют лишь около 1% генома. Примерно 60% промоторов человеческих генов связаны с CpG-островками, и эти области обычно неметилированы в нормальных клетках. Лишь небольшая часть (~6%) метилируется в ходе раннего развития или дифференцировки тканей33,34. CpG-берега (shores) представляют собой области в пределах 2 000 bp выше и ниже по течению от CpG-островков, и статус их метилирования тесно коррелирует с транскрипционным сайленсингом. Примерно 70% дифференциально метилированных регионов возникают в CpG-берегах во время перепрограммирования метилирования23,35. Кроме того, большая часть тканеспецифичного метилирования происходит в берегах, а не в CpG-островках34,35. CpG-полки (shelves) расположены в пределах 2 000 bp выше и ниже по течению от CpG-берегов, тогда как термин «открытое море» (open sea) относится ко всем остальным геномным областям вне CpG-островков, берегов и полок.
Метилирование ДНК происходит посредством двух основных процессов: поддерживающего метилирования и метилирования de novo. Поддерживающее метилирование происходит преимущественно во время полуконсервативной репликации ДНК, когда поддерживающие метилтрансферазы копируют существующие паттерны метилирования на дочернюю цепь. DNMT1 служит основной поддерживающей метилтрансферазой; она преимущественно воздействует на гемиметилированную ДНК, является самой распространенной метилтрансферазой в клетках и активно транскрибируется в S-фазе клеточного цикла36. Напротив, метилирование de novo создает новые паттерны метилирования независимо от репликации ДНК, воздействуя на ранее неметилированные участки. DNMT3A и DNMT3B функционируют как основные метилтрансферазы de novo. Они высоко экспрессируются в эмбриональных стволовых клетках и играют важную роль в установлении паттернов метилирования в ходе эмбрионального развития, однако их экспрессия снижается по мере дифференцировки клеток27. Семейство DNMT3 также включает DNMT3L, которая лишена каталитической активности, но имеет решающее значение для установления материнского геномного импринтинга37. DNMT3L повышает активность DNMT3A и DNMT3B, тем самым увеличивая эффективность метилирования ДНК38. В масштабе всего генома многие метилированные цитозины подвергаются деметилированию ДНК, особенно в областях тела гена. Деметилирование происходит через активные и пассивные механизмы. Активное деметилирование включает окисление 5mC до его окисленных производных ферментами TET39. В отличие от этого, пассивное деметилирование является результатом постепенного разбавления метилированных цитозинов в процессе репликации ДНК при отсутствии активности поддерживающей метилтрансферазы40.
Поскольку метилирование ДНК играет центральную роль в регуляции транскрипции и экспрессии генов, оно стало основным объектом исследований за последнее десятилетие, что частично было обусловлено достижениями в технологиях детектирования метилирования. В зависимости от особенностей предварительной подготовки образцов, подходы к детектированию метилирования ДНК можно разделить на три основные категории41. Первый подход основан на использовании метил-чувствительных рестрикционных эндонуклеаз, которые селективно не расщепляют метилированные участки ДНК и, таким образом, создают фрагменты разного размера в зависимости от статуса метилирования. Второй подход заключается в обогащении фрагментов метилированной ДНК с помощью метил-связывающих белков или антител, которые специфически распознают 5-метилцитозин. Третий подход использует обработку бисульфитом для преобразования неметилированных цитозинов в урацилы, при этом метилированные цитозины остаются неизменными, что позволяет точно дифференцировать метилированные и неметилированные сайты. В настоящее время бисульфитная конверсия в сочетании с секвенированием следующего поколения представляет собой наиболее широко используемую стратегию анализа метилирования ДНК. В Таблице 1 обобщены основные подходы к детектированию метилирования, включая их принципы, преимущества, ограничения и потенциальное применение в исследованиях трансплантации. Дальнейшее совершенствование технологий детектирования метилирования ДНК расширяет инструментарий для эпигенетических исследований и способствует разработке новых стратегий эпигенетической терапии41,42,43,44,45.
2. Характеристики метилирования при раннем развитии и дифференцировке клеток тимуса
Отторжение трансплантата включает сложные механизмы, охватывающие как клеточный, так и антитело-опосредованный иммунный ответ. Современные данные в иммунологии трансплантации указывают на то, что центральную роль в отторжении трансплантата играет Т-клеточный иммунитет46,47. Тимус функционирует как основной орган развития, дифференцировки и созревания Т-клеток48. В процессе развития тимоцитов (предшественников Т-клеток) паттерны метилирования ДНК подвергаются непрерывному и динамичному ремоделированию. Эти изменения включают как деметилирование, так и метилирование в геномных областях, регулирующих транскрипцию Т-клеток, хотя данные процессы протекают не полностью сбалансированно. На ранних этапах развития гены, кодирующие ключевые компоненты Т-клеточного рецептора (TCR) и основные регуляторные факторы, включая CD3, RUNX3, RORC, RAG1 и LCK, преимущественно подвергаются деметилированию7. В целом, при дифференцировке иммунных клеток деметилирование ДНК происходит чаще, чем метилирование49,50. Напротив, метилирование de novo относительно ограничено и происходит главным образом на ранней стадии коммитирования при развитии тимоцитов7. Метилирование de novo также имеет решающее значение для сайленсинга генов, связанных с плюрипотентным потенциалом стволовых клеток, что делает возможным коммитирование и дифференцировку клеточных линий7,51. Другой важной особенностью метилирования ДНК тимоцитов является то, что большинство изменений метилирования остаются стабильными и в значительной степени необратимыми после их установления в ходе дифференцировки. Однако некоторые гены, такие как гены RAG, демонстрируют динамическую регуляцию: они подвергаются деметилированию на ранних этапах развития иммунных клеток и впоследствии повторно метилируются на более поздних стадиях7.
3. Метилирование ДНК при дифференцировке и функционировании иммунных клеток
Метилирование ДНК играет важнейшую роль в регуляции дифференцировки, функции и пластичности различных популяций иммунных клеток, влияя тем самым на исход иммунного ответа при трансплантации.
- Клетки адаптивного иммунитета
- Т-хелперные клетки (CD4+ Т-клетки)
CD4+ Т-клетки выступают в качестве основных эффекторных клеток при остром отторжении трансплантата органов52,53Наивные Т-клетки (Tn) дифференцируются в несколько типов CD4+ Т-хелперов.+ подмножества Т-клеток формируются посредством скоординированных генетических, эпигенетических и дополнительных регуляторных механизмов. При стимуляции специфическими сигналами эпигенетический ландшафт наивных Т-клеток может изменяться, что приводит к изменению транскрипции и экспрессии генов. Эти изменения могут в конечном итоге влиять как на тип, так и на интенсивность иммунного отторжения после трансплантации. После активации Т-клеток... ИЛ-2 ген подвергается быстрой деметиляции и остается в неметилированном состоянии. Это эпигенетическое изменение необходимо для усиления транскрипции и экспрессии генов, поддерживающих функцию Т-клеток54.
Метилирование ДНК также играет критическую роль в направлении дифференцировки наивных Т-клеток в подмножества Th1 и Th255,56У наивных CD4++ Т-клетки, IFNG ген сильно метилирован; он подвергается деметилированию специфически в процессе дифференцировки Th1-клеток, оставаясь при этом сильно метилированным в Th2-клетках57Напротив, ИЛ-4 ген сильно метилирован в наивных Т-клетках и клетках Th1, но подвергается частичному деметилированию в клетках Th258Внешние факторы могут дополнительно регулировать эти паттерны метилирования, модулируя активность ДНК-метилтрансфераз (DNMT). Например, дефицит витамина D повышает активность DNMT и способствует гиперметилированию IFNG ген, в то время как прием витамина D может обратить эти изменения59Биологическое старение также влияет на паттерны метилирования ДНК. Исследования, в том числе проведенные Ю, показывают, что экспрессия мРНК DNMT3a и метилирование ИЛ-4 активность промотора гена увеличивается с возрастом, в то время как метилирование IFNG снижение активности промотора гена60Эти результаты позволяют предположить, что возрастные изменения метилирования ДНК могут смещать баланс между ответами Th1- и Th2-клеток.
Дифференцировка наивных T-клеток также включает в себя еще два важных типа CD4++ Субпопуляции Т-клеток: Th17 и регуляторные Т-клетки (Treg)61,62Метилирование ДНК тесно регулирует этот процесс. Экспрессия специфического для Th17 транскрипционного фактора RORγи цитокин IL-17 зависят от статуса метилирования соответствующих промоторных областей их генов63,64,65Клетки Th17 в тканях трансплантата могут усугублять отторжение трансплантата и способствовать повреждению сосудов.66Метилирование ДНК также влияет на функциональную пластичность клеток Th17. В условиях хронического воспаления IFNG ген в клетках Th17 остается деметилированным, что позволяет этим клеткам вырабатывать IFN-γВ результате клетки Th17 могут приобретать признаки как фенотипа Th1, так и фенотипа Th17.67Более того, in vitro Исследования показывают, что определенные условия стимуляции могут индуцировать дифференцировку Th17-клеток в функциональные Treg-клетки с выраженной иммуносупрессивной активностью.68.
Напротив, Treg-клетки играют критическую роль в поддержании иммунной толерантности и сохранении гомеостаза в трансплантатах69Эти клетки могут происходить из тимуса или дифференцироваться в периферии под воздействием TGF-βвне зависимости от их происхождения, регуляторные Т-клетки (Treg) неизменно экспрессируют транскрипционный фактор Foxp370Эпигенетическая регуляция, в частности метилирование ДНК, играет ключевую роль в контроле экспрессии генов, связанных с функцией Treg, включая Foxp3 и Ctla4тем самым оказывая прямое влияние на их транскрипционную активность71,72,73,74В процессе развития тимусных Treg-клеток... Foxp3 ген подвергается прогрессивному деметилированию. Это деметилированное состояние сохраняется после миграции клеток в периферические ткани и требует устойчивой сигнализации TCR соответствующей силы62,75,76,77В отсутствие DNMT1 стимуляция TCR может эффективно индуцировать экспрессию Foxp3 в Foxp3-отрицательных T-клетках как в тимусе, так и в периферических тканях. Однако если стимуляция TCR не приводит к достаточному эпигенетическому ремоделированию, клетки не могут поддерживать стабильную экспрессию Foxp3, что необходимо для сохранения фенотипа Treg.62,75,78Стабильная экспрессия Foxp3 в значительной степени контролируется эпигенетическими модификациями цис-регуляторных элементов, в частности консервативных некодирующих последовательностей (CNS).71,79,80Среди них статус метилирования специфического деметилированного участка Treg-клеток (TSDR) служит надежным маркером для дифференциации стабильных и нестабильных популяций Treg-клеток.71,81,82,83,84,85,86В естественно возникающих наивных Т-регуляторных клетках (nTregs) область TSDR остается неметилированной, что позволяет привлекать такие факторы транскрипции, как Stat5, NFAT, Runx1 и CREB, которые поддерживают стабильную экспрессию Foxp3. Напротив, в индуцированных Т-регуляторных клетках (iTregs) область TSDR обычно метилирована, что приводит к менее стабильной экспрессии Foxp3.72,74,87,88,89Кроме того, потеря деметилирующих ферментов, таких как TET1 или TET2, приводит к гиперметилированию локуса Foxp3, что нарушает функцию Treg-клеток и способствует развитию аутоиммунных заболеваний.90Клинические исследования дополнительно демонстрируют, что более высокие уровни деметилирования Foxp3 в образцах биопсии аллотрансплантатов почки при субклиническом отторжении ассоциированы с улучшением исходов функционирования трансплантата.82,84.
Клетки Treg все чаще исследуются в качестве средства предотвращения отторжения аллотрансплантата и стимуляции иммунной толерантности.91Для эффективного подавления эффекторных Т-клеток, вызывающих отторжение трансплантата, и поддержания иммунной толерантности в трансплантате должно сохраняться достаточное количество регуляторных Т-клеток (Treg).92Однако Т-регуляторные (Treg) клетки обладают определенной степенью фенотипической нестабильности. При определенных условиях они могут подвергаться эпигенетическим изменениям, включая деметилирование RORC ген, экспрессия которого приводит к выработке провоспалительного цитокина IL-1793,94Этот сдвиг подчеркивает пластичность Treg-клеток и создает определенные трудности для их терапевтического использования. Результаты экспериментальных исследований дополнительно указывают на то, что эпигенетическая модуляция может усиливать функцию Treg-клеток. Например, Guo и др. показали на моделях животных, что сочетание ингибиторов метилирования ДНК с IL-35 повышает экспрессию Foxp3, способствует дифференцировке Treg-клеток и улучшает выживаемость трансплантата95Несмотря на эти достижения, понимание механизмов, связанных с Treg-клетками, остается неполным. Будущие исследования должны быть направлены на определение условий, способствующих дифференцировке Treg-клеток и стабилизации их фенотипа, с целью применения этих данных при лечении иммуноопосредованных заболеваний. - Цитотоксические Т-клетки (CD8++ Т-клетки)
После активации наивные CD8+ Т-клетки дифференцируются в цитотоксические эффекторные клетки, известные как цитотоксические Т-лимфоциты (ЦТЛ). Эти клетки обычно классифицируют на две подгруппы: клетки Tc1, которые вырабатывают IFN-γ, и Тс2-клетки, продуцирующие ИЛ-4 и ИЛ-596Клинические исследования показывают, что доля CD69+/CD8+ Уровень T-клеток в периферической крови пациентов после трансплантации сердца коррелирует с тяжелым отторжением. Кроме того, CD8+ Т-клетки в тканях миокарда экспрессируют CD69+ активированный фенотип и проявляют перфорин-опосредованную цитотоксическую активность97,98Экспериментальные данные дополнительно подтверждают роль CD8+ Т-клетки при отторжении трансплантата. Джоунс и др. было продемонстрировано, что у мышей с дефицитом Т-клеток, полученных путем тимектомии и введения антител к CD4/CD8, перенос TCR-антигенспецифичных CD8+ Одной лишь популяции Т-клеток достаточно для индукции отторжения полностью несовместимых аллогенных трансплантатов сердца99Эти результаты подчеркивают важнейший вклад CD8+ Т-клетки при иммуноопосредованном отторжении трансплантата. Метилирование ДНК также регулирует CD8+ Развитие и функция Т-клеток. При отсутствии DNMT1 нарушается выживаемость тимоцитов100Кроме того, делеция DNMT3a в зрелых CD8+ Т-клетки способствуют дифференцировке клеток памяти, одновременно снижая терминальную дифференцировку эффекторных клеток. Этот эффект частично опосредован повышенной экспрессией фактора Т-клеток 1 (Tcf1), поскольку DNMT3a воздействует на промоторную область гена Tcf7 и индуцирует метилирование de novo в ранних эффекторных CD8-клетках.+ Т-клетки101Кроме того, на мышиной модели острой вирусной инфекции условный нокаут TET2 в T-клетках способствует усиленному формированию памяти CD8+ T-клеток.+ Т-клетки102В совокупности эти данные демонстрируют, что метилирование ДНК играет критическую роль в регуляции развития, дифференцировки и функциональных ответов CD8+ Т-клеток.+ Т-клетки. - B-клетки
Т-клетки играют центральную роль в отторжении трансплантата, однако В-клетки также вносят вклад как в клеточный, так и в гуморальный ответ при отторжении.103,104Гуморальное отторжение опосредовано преимущественно B-лимфоцитами. После активации B-клетки дифференцируются в плазматические клетки, которые вырабатывают и секретируют большое количество специфических антител, способных вызвать воспалительное повреждение трансплантата.105Метилирование ДНК дополнительно регулирует иммунный ответ B-клеток. Lee и др. было показано, что в ходе раннего развития B-клеток происходит обширное деметилирование ДНК, особенно в областях тел генов и регионах, не содержащих CpG-островков. Напротив, регуляторное влияние метилирования ДНК становится менее выраженным на более поздних стадиях созревания B-клеток106Кроме того, Шакнович и др. выявили значительные различия в профилях метилирования ДНК между B-клетками герминативного центра и наивными B-клетками107B-клетки герминативного центра подвергаются деметилированию, которое изменяет экспрессию функциональных генов и влияет на ключевые сигнальные пути, включая NF-κПути B и MAPK107,108Функциональные исследования дополнительно демонстрируют, что метилирование ДНК ограничивает активность B-клеток. Делеция метилтрансфераз de novo Dnmt3a и Dnmt3b (дефицит Dnmt3) способствует развитию и созреванию B-клеток. Одновременно с этим она усиливает активацию B-клеток и поддерживает экспансию B-клеток герминативного центра и плазматических клеток. Эти результаты указывают на то, что метилирование ДНК de novo в норме ограничивает активацию B-клеток и сдерживает дифференцировку плазматических клеток.109.
- Т-хелперные клетки (CD4+ Т-клетки)
- Клетки врожденного иммунитета
Иммунный ответ после трансплантации солидных органов включает скоординированные взаимодействия между врожденным и адаптивным иммунитетом. Врожденная иммунная система включает гемопоэтические и негемопоэтические клетки, такие как дендритные клетки, макрофаги, естественные киллеры и нейтрофилы, каждая из которых может способствовать иммунному отторжению после трансплантации.110.
Дендритные клетки выступают в роли ключевых регуляторов, связывающих врожденный и адаптивный иммунитет, и обладают способностью стимулировать либо иммунную активацию, либо толерантность.111,112В процессе дифференцировки из моноцитов дендритные клетки подвергаются масштабным изменениям метилирования ДНК, которые характеризуются заметным снижением уровней метилирования во многих областях генома. Эти изменения происходят преимущественно в областях энхансеров и сайтах связывания транскрипционных факторов, которые необходимы для спецификации клеточной линии и иммунной активации.113,114,115Отличительной чертой этого процесса дифференцировки является снижение экспрессии CD14 и повышение экспрессии CD209 на поверхности клеток. Этот сдвиг коррелирует с деметилированием CpG-сайтов в области промотора CD209 ген116Кроме того, обработка ингибиторами метилирования ДНК значительно повышает экспрессию костимулирующих молекул, таких как CD40 и CD86, тем самым усиливая презентацию антигена и способствуя функциональному созреванию дендритных клеток. Эти результаты указывают на то, что метилирование ДНК напрямую регулирует функцию дендритных клеток и иммунную активность.117.
Моноциты и макрофаги являются важнейшими компонентами иммунной системы, поскольку они опосредуют фагоцитоз и элиминацию аномальных клеток и инородных патогенов. Обширные данные свидетельствуют о том, что макрофаги способствуют не только воспалительному повреждению, наблюдаемому при раннем остром отторжении трансплантата, но и прогрессированию фиброза при позднем хроническом отторжении.118,119Баланс между макрофагами M1 (классически активированными) и макрофагами M2 (альтернативно активированными) играет критическую роль в регуляции иммунных ответов. Смещение в сторону доминирования макрофагов M1 способствует развитию воспаления и повреждению тканей. Напротив, снижение экспрессии DNMT1 — либо с помощью ингибиторов метилирования ДНК, либо путем нокаута гена — снижает уровень метилирования рецептора, активируемого пролифератором пероксисом, γ1 (PPARγ1) промотор. Это изменение способствует активации макрофагов типа M2 и помогает ограничить иммуноопосредованное повреждение120Различия в паттернах метилирования ДНК дополнительно подчеркивают роль эпигенетической регуляции в функционировании макрофагов. В ходе исследований были выявлены значительные вариации метилирования промоторов специфических генов в моноцитах/макрофагах периферической крови у лиц с ирригационным поражением коронарных артерий и без данного заболевания.121Кроме того, дифференцировка моноцитов в макрофаги сопровождается существенными изменениями метилирования в сайтах связывания факторов транскрипции, что указывает на то, что метилирование ДНК в ключевых регуляторных областях играет точную и критическую роль в дифференцировке макрофагов.122.
Натуральные киллеры (NK-клетки) выполняют как эффекторные, так и регуляторные функции при отторжении трансплантата. Они могут стимулировать отторжение трансплантата, одновременно способствуя развитию иммунологической толерантности. В процессе дифференцировки гемопоэтических стволовых клеток костного мозга в NK-клетки происходит снижение метилирования KIR ген приводит к повышению экспрессии KIR, которая играет важную роль в иммунной регуляции. Кроме того, лечение ингибиторами метилирования ДНК вызывает деметилирование KIR ген и способствует его экспрессии в NK-клетках123,124Эти результаты указывают на то, что метилирование ДНК является ключевым регулятором функции NK-клеток.
Нейтрофилы также активно участвуют в отторжении трансплантата. Активированные нейтрофилы высвобождают ряд медиаторов, которые привлекают и активируют антигенпрезентирующие клетки, инициируя тем самым антигенспецифический Т-клеточный ответ и усиливая иммунное отторжение.125,126,127PRV-1, анкерный белок, экспрессируемый на нейтрофилах, регулируется метилированием ДНК в области своего промотора как в физиологических, так и в патологических условиях.128.
4. Метилирование ДНК в ключевых сигнальных путях
Метилирование ДНК не только напрямую регулирует транскрипцию функциональных генов, но и влияет на поведение клеток, модулируя ключевые сигнальные пути. Например, гиперметилирование промоторной области гена секретируемого белка, родственного рецептору frizzled (SFRP), приводит к сайленсингу гена. Этот сайленсинг нарушает нормальную регуляцию сигнального пути Wnt/β-catenin, что приводит к его аберрантной активации и способствует развитию колоректального рака129. Аналогично, гиперметилирование вышележащих негативных регуляторов сигнального пути mTOR в иммунных клетках снижает их экспрессию, что ведет к избыточной активации mTOR и способствует воспалительному повреждению почек при сахарном диабете. Такие вмешательства, как применение децитабина или РНК-интерференция, могут снизить метилирование этих регуляторных генов путем ингибирования DNMT1, тем самым замедляя прогрессирование диабетической нефропатии130. Кроме того, ингибиторы ДНК-метилтрансферазы могут подавлять пролиферацию клеток, регулируя такие сигнальные пути, как NF-κB и JAK/STAT, тем самым влияя на возникновение и развитие заболевания131,132 (Рисунок 1).
5. Клиническое значение: взаимодействие иммуносупрессивных препаратов и метилирования ДНК
Было показано, что стандартные иммуносупрессивные препараты влияют на паттерны метилирования ДНК в иммунных клетках, хотя эти эффекты варьируют в зависимости от конкретного препарата и геномного контекста. Исследования метилирования промотора IFNγ в T-клетках продемонстрировали, что микофеноловая кислота противодействует деметилированию, индуцируемому активацией T-клеток, в то время как такролимус не оказывает аналогичного эффекта в данном конкретном локусе133. Напротив, было показано, что сиролимус модулирует общие профили метилирования за счет своего воздействия на сигнальные пути mTOR134, а само метилирование ДНК, как было продемонстрировано, регулирует путь mTOR, влияя тем самым на выживаемость аллотрансплантата и острое отторжение после трансплантации почки135. Кроме того, глюкокортикоиды, такие как дексаметазон, индуцируют широкомасштабное ремоделирование метилирования ДНК в периферическом иммунном компартменте. Индекс метилирования нейтрофилов при воздействии дексаметазона служит чувствительным фармакодинамическим маркером воздействия глюкокортикоидов и ассоциирован с иммуносупрессивными иммунными профилями136. Также сообщалось, что индукционная терапия ATG изменяет метилом ДНК реципиентов почечных трансплантатов, и было показано, что модели на основе метилирования более эффективно предсказывают риск инфекции, чем транскриптомные профили137. Индивидуальная эпигенетическая вариабельность может влиять на ответ пациентов на эту терапию, что позволяет предположить, что биомаркеры метилирования потенциально могли бы служить руководством при подборе персонализированных режимов иммуносупрессии136,137. Эти взаимодействия между препаратами и эпигеномом заслуживают дальнейшего изучения, поскольку они могут иметь значительные последствия для оптимизации долгосрочных результатов трансплантации.
6. Проблемы и перспективы: Баланс между эпигенетической модуляцией и иммунной безопасностью
Несмотря на их перспективность в трансплантологии, ингибиторы DNMT (DNMTis), такие как азацитидин и децитабин, создают инфекционные и онкогенные риски. Применение этих препаратов было связано с тяжелыми септическими осложнениями138,139, а системное воздействие гипометилирующих агентов также ассоциировалось с повышенным риском трансформации во вторичный острый миелоидный лейкоз, при этом медиана общей выживаемости у пораженных пациентов составила менее 5 месяцев140. Помимо токсичности препаратов, серьезной проблемой является отсутствие клеточной специфичности. Системное деметилирование может дестабилизировать пул Treg, одновременно активируя эффекторные Т-клетки, что потенциально усугубляет отторжение141, и может нарушить защиту CD8+ Т-клеток памяти против оппортунистических патогенов, таких как CMV101,102.
Чтобы преодолеть эти ограничения, разрабатываются новые стратегии, направленные на достижение модуляции, специфичной для конкретного типа клеток и локуса. Наночастицы могут обеспечивать преимущественную доставку DNMT в клетки, инфильтрирующие трансплантат142,143. Редактирование эпигенома с помощью CRISPR/dCas9 позволяет осуществлять направленное деметилирование Foxp3-TSDR для стабилизации Treg-клеток без системных эффектов144,145. Мониторинг на основе биомаркеров также может способствовать более безопасному внедрению в клиническую практику146.
Выводы
Повышение выживаемости трансплантата остается основной целью исследований в области трансплантации органов. Отторжение трансплантата представляет собой сложный иммунологический процесс, в котором эпигенетические модификации как донорского органа, так и реципиента динамически взаимодействуют, формируя общий эпигенетический ландшафт. Иммунная система реципиента является основным фактором отторжения трансплантата. Эпигенетические механизмы критически регулируют развитие, дифференцировку и функцию иммунных клеток, влияя тем самым на реакции отторжения и выживаемость трансплантата после пересадки. Кроме того, такие факторы, как иммуносупрессивные препараты, инфекции и послетрансплантационная среда, дополнительно усложняют взаимосвязь между эпигенетической регуляцией и иммунными ответами. Эти факторы могут изменять эпигенетические паттерны и модифицировать поведение иммунных клеток, что привносит дополнительный уровень сложности в результаты трансплантации. Таким образом, необходимы дальнейшие исследования взаимосвязи между эпигенетическими механизмами и отторжением трансплантата для выявления новых биомаркеров и терапевтических мишеней, а также для совершенствования диагностических подходов и стратегий лечения при трансплантации органов.
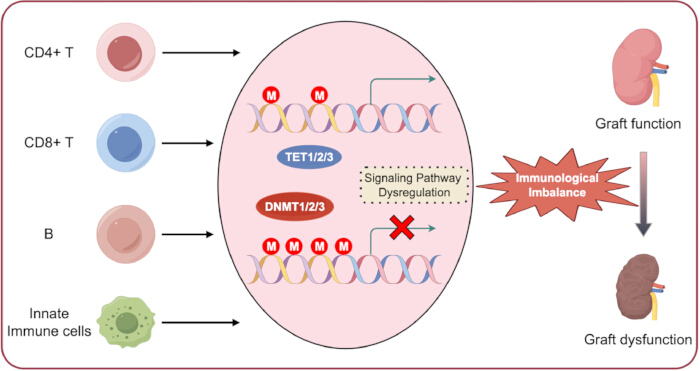
Рисунок 1Метилирование ДНК в иммунитете при трансплантации. Иммунные клетки сохраняют определенные внутренние паттерны метилирования ДНК на протяжении всего своего жизненного цикла. Нарушение этого физиологического процесса может привести к аберрантному метилированию ДНК и дисрегуляции нижестоящих сигнальных путей, что в конечном итоге вызывает нарушение иммунного гомеостаза и дисфункцию аллографта.Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
| Метод | Принцип | Преимущества | Ограничения | Применение в трансплантологии |
| MeDIP-seq⁴¹ | Обогащение с помощью антител к 5mC + NGS | Экономически эффективно для полногеномного анализа; подходит для больших когорт образцов | Низкое разрешение (~10–30 п.н.); невозможно отличить 5mC от 5hmC | Скрининг глобальных изменений метилирования в ПБКМ реципиентов трансплантатов |
| WGBS⁴² | Бисульфитная конверсия + NGS | Однонуклеотидное разрешение; общегеномный охват | Высокая стоимость; требуется большой объем данных | Комплексное картирование метилома биоптатов трансплантата; идентификация новых DMR, связанных с отторжением |
| RRBS⁴³ | Обогащение с помощью рестриктаз + бисульфитная конверсия + NGS | Экономическая эффективность; широкий охват CpG-богатых регионов | Ограниченный охват регионов с низким содержанием CpG и не-CpG-регионов | Таргетный анализ метилома в тканях трансплантата со снижением затрат на секвенирование |
| Метилспецифическая ПЦР⁴ | Бисульфитная конверсия + ПЦР с использованием метилирование-специфических праймеров | Высокая чувствительность; простота, быстрота и низкая стоимость | Нацеленность только на определенные локусы; качественный или ограниченный количественный анализ | Валидация потенциальных DMR в когортах открытия; разработка клинических биомаркеров |
| Пиросеквенирование⁴⁵ | Бисульфитная конверсия + секвенирование путем синтеза | Количественный анализ; разрешение до одного основания в целевых локусах | Средняя пропускная способность; требуется предварительная идентификация мишени | Точное количественное определение уровней метилирования в специфических CpG-сайтах, таких как TSDR гена FOXP3 в Treg-клетках |
Таблица 1: Обзор основных подходов к определению метилирования ДНК. В таблице обобщены общепринятые методы определения метилирования ДНК, их принципы, преимущества, ограничения и потенциальные области применения в исследованиях в области трансплантации.
Раскрытие информации
Авторы заявляют об отсутствии конкурирующих интересов или потенциальных конфликтов интересов.
Благодарности
Авторы благодарят Figdraw за помощь в подготовке рисунков.
Ссылки
- Güell-Alonso R, Cabrera-Pérez R, Vives J. Immunocompatibility in transplantation: adapting to a changing therapeutic landscape. Front Immunol. 2025;16:1648534.
- Li XQ, Ding RD, Cai JZ. Organ transplantation: current status, challenges, and future prospects. MedComm. 2026;7(1):e70567.
- Medzhitov R, Horng T. Transcriptional control of the inflammatory response. Nat Rev Immunol. 2009;9:692–703.
- Bagci H, Fisher AG. DNA demethylation in pluripotency and reprogramming: the role of tet proteins and cell division. Cell Stem Cell. 2013;13:265–269.
- Gu TP, et al. The role of Tet3 DNA dioxygenase in epigenetic reprogramming by oocytes. Nature. 2011;477:606–610.
- Cedar H, Bergman Y. Programming of DNA methylation patterns. Annu Rev Biochem. 2012;81:97–117.
- Rodriguez RM, et al. Regulation of the transcriptional program by DNA methylation during human αβ T-cell development. Nucleic Acids Res. 2015;43:760–774.
- Rauch TA, et al. A human B cell methylome at 100-base pair resolution. Proc Natl Acad Sci U S A. 2009;106:671–678.
- Hardbower DM, et al. Ornithine decarboxylase regulates M1 macrophage activation and mucosal inflammation via histone modifications. Proc Natl Acad Sci U S A. 2017;114:E751–E760.
- De Santa F, et al. The histone H3 lysine-27 demethylase Jmjd3 links inflammation to inhibition of polycomb-mediated gene silencing. Cell. 2007;130:1083–1094.
- Antignano F, Zaph C. Regulation of CD4 T-cell differentiation and inflammation by repressive histone methylation. Immunol Cell Biol. 2015;93:245–252.
- Wei G, et al. Global mapping of H3K4me3 and H3K27me3 reveals specificity and plasticity in lineage fate determination of differentiating CD4+ T cells. Immunity. 2009;30:155–167.
- Liu Z, et al. The histone H3 lysine-27 demethylase Jmjd3 plays a critical role in specific regulation of Th17 cell differentiation. J Mol Cell Biol. 2015;7:505–516.
- He H, et al. Histone methylation mediates plasticity of human FOXP3(+) regulatory T cells by modulating signature gene expressions. Immunology. 2014;141:362–376.
- Menden H, et al. Histone deacetylase 6 regulates endothelial MyD88-dependent canonical TLR signaling, lung inflammation, and alveolar remodeling in the developing lung. Am J Physiol Lung Cell Mol Physiol. 2019;317:L332–L346.
- Irizarry-Caro RA, et al. TLR signaling adapter BCAP regulates inflammatory to reparatory macrophage transition by promoting histone lactylation. Proc Natl Acad Sci U S A. 2020;117:30628–30638.
- Williams CJ, et al. The chromatin remodeler Mi-2beta is required for CD4 expression and T cell development. Immunity. 2004;20:719–733.
- Yang F, et al. MiR-21 is remotely governed by the commensal bacteria and impairs anti-TB immunity by down-regulating IFN-γ. Front Microbiol. 2020;11:512581.
- Nankivell BJ, Kuypers DR. Diagnosis and prevention of chronic kidney allograft loss. Lancet. 2011;378:1428–1437.
- Zununi Vahed S, et al. Genetics and epigenetics of chronic allograft dysfunction in kidney transplants. Iran J Kidney Dis. 2016;10:1–9.
- Goldberg RJ, Weng FL, Kandula P. Acute and chronic allograft dysfunction in kidney transplant recipients. Med Clin North Am. 2016;100:487–503.
- Wood KJ, Bushell A, Hester J. Regulatory immune cells in transplantation. Nat Rev Immunol. 2012;12:417–430.
- Ji H, et al. Comprehensive methylome map of lineage commitment from haematopoietic progenitors. Nature. 2010;467:338–342.
- Suarez-Alvarez B, Rodriguez RM, Fraga MF, Lopez-Larrea C. DNA methylation: a promising landscape for immune system-related diseases. Trends Genet. 2012;28:506–514.
- Eckhardt F, et al. DNA methylation profiling of human chromosomes 6, 20 and 22. Nat Genet. 2006;38:1378–1385.
- Thomson JP, et al. CpG islands influence chromatin structure via the CpG-binding protein Cfp1. Nature. 2010;464:1082–1086.
- Esteller M. Epigenetic gene silencing in cancer: the DNA hypermethylome. Hum Mol Genet. 2007;16(Spec No 1):R50–R59.
- Lopez-Serra L, Esteller M. Proteins that bind methylated DNA and human cancer: reading the wrong words. Br J Cancer. 2008;98:1881–1885.
- Kuroda A, et al. Insulin gene expression is regulated by DNA methylation. PLoS One. 2009;4:e6953.
- Hellman A, Chess A. Gene body-specific methylation on the active X chromosome. Science. 2007;315:1141–1143.
- Jones PA. Functions of DNA methylation: islands, start sites, gene bodies and beyond. Nat Rev Genet. 2012;13:484–492.
- Esteller M. Epigenetics in evolution and disease. Lancet. 2008;372:S90–S96.
- Straussman R, et al. Developmental programming of CpG island methylation profiles in the human genome. Nat Struct Mol Biol. 2009;16:564–571.
- Irizarry RA, et al. The human colon cancer methylome shows similar hypo- and hypermethylation at conserved tissue-specific CpG island shores. Nat Genet. 2009;41:178–186.
- Doi A, et al. Differential methylation of tissue- and cancer-specific CpG island shores distinguishes human induced pluripotent stem cells, embryonic stem cells and fibroblasts. Nat Genet. 2009;41:1350–1353.
- Portela A, Esteller M. Epigenetic modifications and human disease. Nat Biotechnol. 2010;28:1057–1068.
- Bourc'his D, et al. Dnmt3L and the establishment of maternal genomic imprints. Science. 2001;294:2536–2539.
- Gowher H, et al. Mechanism of stimulation of catalytic activity of Dnmt3A and Dnmt3B DNA-(cytosine-C5)-methyltransferases by Dnmt3L. J Biol Chem. 2005;280:13341–13348.
- Wu X, Zhang Y. TET-mediated active DNA demethylation: mechanism, function and beyond. Nat Rev Genet. 2017;18:517–534.
- Bochtler M, Kolano A, Xu GL. DNA demethylation pathways: additional players and regulators. Bioessays. 2017;39:1–13.
- Laird PW. Principles and challenges of genomewide DNA methylation analysis. Nat Rev Genet. 2010;11:191–203.
- Lister R, et al. Human DNA methylomes at base resolution show widespread epigenomic differences. Nature. 2009;462:315–322.
- Meissner A, et al. Reduced representation bisulfite sequencing for comparative high-resolution DNA methylation analysis. Nucleic Acids Res. 2005;33:5868–5877.
- Herman JG, et al. Methylation-specific PCR: a novel PCR assay for methylation status of CpG islands. Proc Natl Acad Sci U S A. 1996;93:9821–9826.
- Colella S, et al. Sensitive and quantitative universal pyrosequencing methylation analysis of CpG sites. Biotechniques. 2003;35:114–120.
- Nankivell BJ, Alexander SI. Rejection of the kidney allograft. N Engl J Med. 2010;363:1451–1462.
- Gelman AE, et al. CD4+ T lymphocytes are not necessary for the acute rejection of vascularized mouse lung transplants. J Immunol. 2008;180:4754–4762.
- Seo W, Taniuchi I. Transcriptional regulation of early T-cell development in the thymus. Eur J Immunol. 2016;46:531–538.
- Calvanese V, et al. A promoter DNA demethylation landscape of human hematopoietic differentiation. Nucleic Acids Res. 2012;40:116–131.
- Lee ST, et al. A global DNA methylation and gene expression analysis of early human B-cell development reveals a demethylation signature and transcription factor network. Nucleic Acids Res. 2012;40:11339–11351.
- Challen GA, et al. Dnmt3a is essential for hematopoietic stem cell differentiation. Nat Genet. 2011;44:23–31.
- Chitilian HV, et al. The strength of cell-mediated xenograft rejection in the mouse is due to the CD4+ indirect response. Xenotransplantation. 1998;5:93–98.
- Pierson RN, et al. Xenogeneic skin graft rejection is especially dependent on CD4+ T cells. J Exp Med. 1989;170:991–996.
- Bruniquel D, Schwartz RH. Selective, stable demethylation of the interleukin-2 gene enhances transcription by an active process. Nat Immunol. 2003;4:235–240.
- Sanders VM. Epigenetic regulation of Th1 and Th2 cell development. Brain Behav Immun. 2006;20:317–324.
- Wilson CB, Rowell E, Sekimata M. Epigenetic control of T-helper-cell differentiation. Nat Rev Immunol. 2009;9:91–105.
- Schoenborn JR, et al. Comprehensive epigenetic profiling identifies multiple distal regulatory elements directing transcription of the gene encoding interferon-gamma. Nat Immunol. 2007;8:732–742.
- Santangelo S, et al. Chromatin structure and DNA methylation of the IL-4 gene in human T(H)2 cells. Chromosome Res. 2009;17:485–496.
- Jiao X, et al. Vitamin D deficiency during pregnancy affects the function of Th1/Th2 cells and methylation of IFN-γ gene in offspring rats. Immunol Lett. 2019;212:98–105.
- Xia Y, et al. Age-related changes in DNA methylation associated with shifting Th1/Th2 balance. Inflammation. 2016;39:1892–1903.
- Muranski P, Restifo NP. Essentials of Th17 cell commitment and plasticity. Blood. 2013;121:2402–2414.
- Ohkura N, et al. T cell receptor stimulation-induced epigenetic changes and Foxp3 expression are independent and complementary events required for Treg cell development. Immunity. 2012;37:785–799.
- Janson PCJ, et al. Profiling of CD4+ T cells with epigenetic immune lineage analysis. J Immunol. 2011;186:92–102.
- Thomas RM, Sai H, Wells AD. Conserved intergenic elements and DNA methylation cooperate to regulate transcription at the il17 locus. J Biol Chem. 2012;287:25049–25059.
- Huang Y, et al. Decipherer manifestations and Treg/Th17 imbalance in multi-staging rheumatoid arthritis and correlation with TSDR/RORC methylation. Mol Immunol. 2020;127:1–11.
- Yuan X, et al. A novel role of CD4 Th17 cells in mediating cardiac allograft rejection and vasculopathy. J Exp Med. 2008;205:3133–3144.
- Cohen CJ, et al. Human Th1 and Th17 cells exhibit epigenetic stability at signature cytokine and transcription factor loci. J Immunol. 2011;187:5615–5626.
- Ye J, et al. Human tumor-infiltrating Th17 cells have the capacity to differentiate into IFN-γ+ and FOXP3+ T cells with potent suppressive function. Eur J Immunol. 2011;41:936–951.
- Issa F, Chandrasekharan D, Wood KJ. Regulatory T cells as modulators of chronic allograft dysfunction. Curr Opin Immunol. 2011;23:648–654.
- Josefowicz SZ, Rudensky A. Control of regulatory T cell lineage commitment and maintenance. Immunity. 2009;30:616–625.
- Baron U, et al. DNA demethylation in the human FOXP3 locus discriminates regulatory T cells from activated FOXP3(+) conventional T cells. Eur J Immunol. 2007;37:2378–2389.
- Kim HP, Leonard WJ. CREB/ATF-dependent T cell receptor-induced FoxP3 gene expression: a role for DNA methylation. J Exp Med. 2007;204:1543–1551.
- Morikawa H, et al. Differential roles of epigenetic changes and Foxp3 expression in regulatory T cell-specific transcriptional regulation. Proc Natl Acad Sci U S A. 2014;111:5289–5294.
- Polansky JK, et al. Methylation matters: binding of Ets-1 to the demethylated Foxp3 gene contributes to the stabilizationization of Foxp3 expression in regulatory T cells. J Mol Med (Berl). 2010;88:1029–1040.
- Toker A, et al. Active demethylation of the Foxp3 locus leads to the generation of stable regulatory T cells within the thymus. J Immunol. 2013;190:3180–3188.
- Jordan MS, et al. Thymic selection of CD4+CD25+ regulatory T cells induced by an agonist self-peptide. Nat Immunol. 2001;2:301–306.
- Kawahata K, et al. Generation of CD4(+)CD25(+) regulatory T cells from autoreactive T cells simultaneously with their negative selection in the thymus and from nonautoreactive T cells by endogenous TCR expression. J Immunol. 2002;168:4399–4405.
- Josefowicz SZ, Wilson CB, Rudensky AY. Cutting edge: TCR stimulation is sufficient for induction of Foxp3 expression in the absence of DNA methyltransferase 1. J Immunol. 2009;182:6648–6652.
- Floess S, et al. Epigenetic control of the foxp3 locus in regulatory T cells. PLoS Biol. 2007;5:e38.
- Polansky JK, et al. DNA methylation controls Foxp3 gene expression. Eur J Immunol. 2008;38:1654–1663.
- Barzaghi F, et al. Demethylation analysis of the FOXP3 locus shows quantitative defects of regulatory T cells in IPEX-like syndrome. J Autoimmun. 2012;38:49–58.
- Bestard O, et al. Intragraft regulatory T cells in protocol biopsies retain foxp3 demethylation and are protective biomarkers for kidney graft outcome. Am J Transplant. 2011;11:2162–2172.
- Liu J, et al. T regulatory cells in cord blood—FOXP3 demethylation as reliable quantitative marker. PLoS One. 2010;5:e13267.
- Wieczorek G, et al. Quantitative DNA methylation analysis of FOXP3 as a new method for counting regulatory T cells in peripheral blood and solid tissue. Cancer Res. 2009;69:599–608.
- Zhuo C, et al. Higher FOXP3-TSDR demethylation rates in adjacent normal tissues in patients with colon cancer were associated with worse survival. Mol Cancer. 2014;13:153.
- Lal G, et al. Epigenetic regulation of Foxp3 expression in regulatory T cells by DNA methylation. J Immunol. 2009;182:259–273.
- Zhou L, Chong MM, Littman DR. Plasticity of CD4+ T cell lineage differentiation. Immunity. 2009;30:646–655.
- Burchill MA, et al. IL-2 receptor beta-dependent STAT5 activation is required for the development of Foxp3+ regulatory T cells. J Immunol. 2007;178:280–290.
- Kanamori M, et al. Induced regulatory T cells: their development, stability, and applications. Trends Immunol. 2016;37:803–811.
- Yang R, et al. Hydrogen sulfide promotes Tet1- and Tet2-mediated Foxp3 demethylation to drive regulatory T cell differentiation and maintain immune homeostasis. Immunity. 2015;43:251–263.
- Issa F, Robb RJ, Wood KJ. The where and when of T cell regulation in transplantation. Trends Immunol. 2013;34:107–113.
- Issa F, Wood KJ. CD4+ regulatory T cells in solid organ transplantation. Curr Opin Organ Transplant. 2010;15:757–764.
- Suarez-Alvarez B, Baragano Raneros A, Ortega F, Lopez-Larrea C. Epigenetic modulation of the immune function: a potential target for tolerance. Epigenetics. 2013;8:694–702.
- Schmidl C, et al. Epigenetic reprogramming of the RORC locus during in vitro expansion is a distinctive feature of human memory but not naive Treg. Eur J Immunol. 2011;41:1491–1498.
- Guo H, et al. Inhibiting cardiac allograft rejection with interleukin-35 therapy combined with decitabine treatment in mice. Transpl Immunol. 2013;29:99–104.
- Betts RJ, Kemeny DM. CD8+ T cells in asthma: friend or foe? Pharmacol Ther. 2009;121:123–131.
- Schwengerdt KO, Fricker FJ, Bahjat KS, Kuntz ST. Increased expression of the lymphocyte early activation marker CD69 in peripheral blood correlates with histologic evidence of cardiac allograft rejection. Transplantation. 2000;69:2102–2107.
- Rutella S, et al. Induction of CD69 antigen on normal CD4+ and CD8+ lymphocyte subsets and its relationship with the phenotype of responding T-cells. Cytometry. 1999;38:95–101.
- Jones ND, et al. T-cell activation, proliferation, and memory after cardiac transplantation in vivo. Ann Surg. 1999;229:570–578.
- Lee PP, et al. A critical role for Dnmt1 and DNA methylation in T cell development, function, and survival. Immunity. 2001;15:763–774.
- Ladle BH, et al. De novo DNA methylation by DNA methyltransferase 3a controls early effector CD8+ T-cell fate decisions following activation. Proc Natl Acad Sci U S A. 2016;113:10631–10636.
- Carty SA, et al. The loss of TET2 promotes CD8(+) T cell memory differentiation. J Immunol. 2018;200:82–91.
- Schiffer L, et al. Chemokine CXCL13 as a new systemic biomarker for B-cell involvement in acute T cell-mediated kidney allograft rejection. Int J Mol Sci. 2019;20(10):2552. doi:10.3390/ijms20102552.
- Xu H, He X, Xu R. B cell activating factor, renal allograft antibody-mediated rejection, and long-term outcome. J Immunol Res. 2018;2018:5251801.
- Schmitz R, et al. B cells in transplant tolerance and rejection: friends or foes? Transpl Int. 2020;33:30–40.
- Lee ST, et al. A global DNA methylation and gene expression analysis of early human B-cell development reveals a demethylation signature and transcription factor network. Nucleic Acids Res. 2012;40:11339–11351.
- Shaknovich R, et al. DNA methyltransferase 1 and DNA methylation patterning contribute to germinal center B-cell differentiation. Blood. 2011;118:3559–3569.
- Caron G, et al. Cell-cycle-dependent reconfiguration of the DNA methylome during terminal differentiation of human B cells into plasma cells. Cell Rep. 2015;13:1059–1071.
- Barwick BG, et al. B cell activation and plasma cell differentiation are inhibited by de novo DNA methylation. Nat Commun. 2018;9:1900.
- Kaur BP, Secord E. Innate immunity. Pediatr Clin North Am. 2019;66:905–911.
- Steinman RM, Banchereau J. Taking dendritic cells into medicine. Nature. 2007;449:419–426.
- Merad M, Collin M, Bromberg J. Dendritic cell homeostasis and trafficking in transplantation. Trends Immunol. 2007;28:353–359.
- Zhang X, et al. DNA methylation dynamics during ex vivo differentiation and maturation of human dendritic cells. Epigenetics Chromatin. 2014;7:21.
- Pacis A, et al. Bacterial infection remodels the DNA methylation landscape of human dendritic cells. Genome Res. 2015;25:1801–1811.
- Klug M, et al. Active DNA demethylation in human postmitotic cells correlates with activating histone modifications, but not transcription levels. Genome Biol. 2010;11:R63.
- Bullwinkel J, Lüdemann A, Deberry J, Singh PB. Epigenotype switching at the CD14 and CD209 genes during differentiation of human monocytes to dendritic cells. Epigenetics. 2011;6:45–51.
- Frikeche J, et al. Impact of the hypomethylating agent 5-azacytidine on dendritic cells function. Exp Hematol. 2011;39:1056–1063.
- van den Bosch TP, et al. CD16+ monocytes and skewed macrophage polarization toward M2 type hallmark heart transplant acute cellular rejection. Front Immunol. 2017;8:346.
- Wang YY, et al. Macrophage-to-myofibroblast transition contributes to interstitial fibrosis in chronic renal allograft injury. J Am Soc Nephrol. 2017;28:2053–2067.
- Wang X, et al. Epigenetic regulation of macrophage polarization and inflammation by DNA methylation in obesity. JCI Insight. 2016;1:e87748.
- Bakshi C, Vijayvergiya R, Dhawan V. Aberrant DNA methylation of M1-macrophage genes in coronary artery disease. Sci Rep. 2019;9:1429.
- Dekkers KF, et al. Human monocyte-to-macrophage differentiation involves highly localized gain and loss of DNA methylation at transcription factor binding sites. Epigenetics Chromatin. 2019;12:34.
- Li G, Yu M, Weyand CM, Goronzy JJ. Epigenetic regulation of killer immunoglobulin-like receptor expression in T cells. Blood. 2009;114:3422–3430.
- Schenk A, Bloch W, Zimmer P. Natural killer cells—an epigenetic perspective of development and regulation. Int J Mol Sci. 2016;17:326.
- Scapini P, et al. The neutrophil as a cellular source of chemokines. Immunol Rev. 2000;177:195–203.
- Chertov O, Yang D, Howard OM, Oppenheim JJ. Leukocyte granule proteins mobilize innate host defenses and adaptive immune responses. Immunol Rev. 2000;177:68–78.
- Hirayama S, et al. Prevention of neutrophil migration ameliorates rat lung allograft rejection. Mol Med. 2006;12:208–213.
- Jelinek J, et al. Epigenetic control of PRV-1 expression on neutrophils. Exp Hematol. 2007;35:1677–1683.
- Suzuki H, et al. Epigenetic inactivation of SFRP genes allows constitutive WNT signaling in colorectal cancer. Nat Genet. 2004;36:417–422.
- Chen G, et al. Aberrant DNA methylation of mTOR pathway genes promotes inflammatory activation of immune cells in diabetic kidney disease. Kidney Int. 2019;96:409–420.
- Shang D, Han T, Xu X, Liu Y. Decitabine induces G2/M cell cycle arrest by suppressing p38/NF-κB signaling in human renal clear cell carcinoma. Int J Clin Exp Pathol. 2015;8:11140–11148.
- Zhu Z, et al. STAT3 signaling pathway is involved in decitabine induced biological phenotype regulation of acute myeloid leukemia cells. Am J Transl Res. 2015;7:1896–1907.
- Peters F, et al. Interferon-gamma DNA methylation is affected by mycophenolic acid but not by tacrolimus after T-cell activation. Front Immunol. 2017;8:822.
- Kraig E, et al. A randomized control trial to establish the feasibility and safety of rapamycin treatment in an older human cohort: immunological, physical performance, and cognitive effects. Exp Gerontol. 2018;105:53–69.
- Zhu C, et al. DNA methylation modulates allograft survival and acute rejection after renal transplantation by regulating the mTOR pathway. Am J Transplant. 2021;21(2):567–581.
- Wiencke JK, et al. DNA methylation as a pharmacodynamic marker of glucocorticoid response and glioma survival. Nat Commun. 2022;13(1):5537.
- Hsu FM, et al. DNA methylation predicts infection risk in kidney transplant recipients. Life Sci Alliance. 2025;8(7):e202403124. doi:10.26508/lsa.202403124.
- Bai JF, et al. Efficacy and safety of venetoclax and azacitidine for acute myeloid leukemia in China: a real-world single-center study. BMC Cancer. 2025;25(1):990.
- Arora S, et al. Tumor lysis syndrome and infectious complications during treatment with venetoclax combined with azacitidine or decitabine in patients with acute myeloid leukemia. Leuk Res. 2022;117:106844.
- Batra A, et al. Characteristics and survival of secondary acute myeloid leukemia from myelodysplastic syndromes in older adults: a population analysis. Clin Lymphoma Myeloma Leuk. 2025;25(6):e417–e423.
- Bai L, Hao X, Keith J, Feng Y. DNA methylation in regulatory T cell differentiation and function: challenges and opportunities. Biomolecules. 2022;12(9):1282.
- Trinh A, Huang Y, Shao H, et al. Targeting the ADPKD methylome using nanoparticle-mediated combination therapy. APL Bioeng. 2023;7(2):026111.
- Yuan N, Ma Z, Xue Z, et al. DNMT1-targeted macrophages delivering drug-loaded nanoparticles attenuate heart allograft fibrosis via PTPRD-STAT3/6 axis. Cell Death Discov. 2026. doi:10.1038/s41420-026-03295-5.
- Cameron J, Martino P, Nguyen L, Li X. Cutting edge: CRISPR-based transcriptional regulators reveal transcription-dependent establishment of epigenetic memory of Foxp3 in regulatory T cells. J Immunol. 2020;205(11):2953–2958.
- Liu XS, et al. Rescue of fragile X syndrome neurons by DNA methylation editing of the FMR1 gene. Cell. 2018;172:979–992.e6.
- Velut Y, Poulet G, Bersez T, et al. Epigenetic signatures on plasma cell-free DNA to detect kidney allograft rejection in a non-invasive way: development of a 10-plex digital PCR assay. Biomark Res. 2025;13:118.