В данном протоколе представлен практический и воспроизводимый рабочий процесс для синхронизации культивируемых клеток, проведения последовательного отбора проб в разные моменты времени в течение 24–72 ч без необходимости сбора образцов в ночное время, а также анализа экспрессии генов циркадных часов.
Для просмотра этого контента требуется подписка на JoVE. Войдите или начните свой бесплатный пробный период.
Методическая статья
Циркадные ритмы в чашке Петри: синхронизация клеток гипоталамуса мыши линии mHypoE-42 для анализа экспрессии генов циркадных часов
В этой статье
Краткое содержание
Аннотация
Циркадные ритмы представляют собой эндогенные осцилляции с периодом примерно 24 h, которые регулируют широкий спектр клеточных и физиологических процессов, включая экспрессию генов, метаболизм и поведение. Эти ритмы возникают в результате взаимосвязанных транскрипционно-трансляционных петель обратной связи, которые реагируют на временные и средовые сигналы. Поскольку циркадная регуляция крайне динамична, даже незначительные экспериментальные вариации могут повлиять на фазу, амплитуду и ритмичность, что делает стандартизированные экспериментальные рабочие процессы необходимыми для получения надежных и воспроизводимых результатов. Целью настоящего протокола является предоставление практического и воспроизводимого алгоритма синхронизации культивируемых клеток, проведения отбора проб по временным точкам и анализа экспрессии генов циркадных часов в стандартных лабораторных условиях. В протоколе описаны синхронизация методом се ചെയ്യрум-шока, шахматный сбор образцов в течение 24–72 h для исключения необходимости ночного дежурства, экстракция рибонуклеиновой кислоты, синтез комплементарной дезоксирибонуклеиновой кислоты, количественная полимеразная цепная реакция в реальном времени и анализ циркадного ритма с использованием соответствующих статистических подходов. В рабочем процессе также освещаются критические экспериментальные аспекты, включая условия синхронизации, оценку качества образцов, выбор референсного гена и анализ данных для повышения воспроизводимости между экспериментами. Данный метод предоставляет доступный подход к исследованию молекулярных циркадных механизмов и оценке ритмической экспрессии генов в культивируемых клетках, что облегчает изучение циркадной регуляции в физиологических и патологических экспериментальных моделях.
Введение
Циркадные ритмы представляют собой эндогенные циклы с периодом примерно 24 ч, которые регулируют широкий спектр физиологических, метаболических и клеточных процессов1. В системах млекопитающих эти ритмы координируются центральными часами, расположенными в супрахиазматическом ядре (СХЯ) гипоталамуса, а также автономными молекулярными часами на клеточном уровне. Эти часы состоят из взаимосвязанных транскрипционно-трансляционных петель обратной связи с участием основных генов циркадных ритмов, включая белок циклов циркадной локомоторной активности kaput (Clock), базовый белок с спиралью-петлей-спиралью, подобный ядерному транслокатору рецептора ароматических углеводородов 1 (Bmal1), period (Per) и криптохром (Cry)2. Учитывая центральную роль циркадных часов в различных биологических процессах, клеточные модели in vitro стали важными инструментами для изучения молекулярных механизмов временной регуляции в контролируемых экспериментальных условиях.
Целью данного протокола является предоставление надежного, практичного и воспроизводимого рабочего процесса для синхронизации культивируемых клеток с использованием метода сывороточного шока, проведения ступенчатого отбора проб во времени и анализа экспрессии генов циркадных часов, позволяющего избежать круглосуточного сбора образцов. Повышая доступность циркадного пробоотбора без ущерба для качества данных, данный рабочий процесс призван облегчить изучение ритмических биологических процессов с использованием стандартных лабораторных методов.
Исследования циркадных ритмов проводились на широком спектре моделей in vitro, включая линии раковых клеток человека3, фибробласты Rat-14, эксплантаты SCN 5 и органоиды6. Хотя большинство клеток млекопитающих обладают функциональными циркадными часами, отсутствие синхронизирующих сигналов, таких как свет, быстро приводит к десинхронизации в культуре, что ограничивает изучение циркадных ритмов in vitro7. Следовательно, методы синхронизации необходимы для исследования механизмов молекулярных часов и их влияния на здоровье и развитие заболеваний.
Для культур клеток млекопитающих было разработано несколько стратегий синхронизации. Синхронизация на основе глюкокортикоидов с использованием дексаметазона является одним из наиболее широко применяемых подходов, поскольку она эффективно сбрасывает циркадные ритмы во многих типах клеток, одновременно снижая вариабельность, связанную с стимуляцией сывороткой8. Аналогичным образом, активация сигналинга циклического аденозинмонофосфата с помощью форсколина успешно использовалась для синхронизации периферических часов в отдельных клеточных моделях9. Другие подходы включают воздействие сигналами, переносимыми кровью4, различными химическими соединениями8,10, замену среды3, температурный шок11, циклы подачи кислорода12 и механическую стимуляцию13. В совокупности эти методы значительно продвинули исследования циркадных ритмов; однако они могут требовать специального оборудования, специфических экспериментальных условий или дополнительной оптимизации, что делает важным подтверждение эффективности выбранной стратегии синхронизации для каждой биологической модели и конкретной экспериментальной задачи14.
Сывороточный шок является одним из наиболее общепринятых методов синхронизации и заключается в воздействии на культивируемые клетки кратковременным стимулом с высокой концентрацией сыворотки4. Поскольку стимул является переходным, длительное нарушение путей клеточной сигнализации сводится к минимуму4, что снижает вероятность влияния побочных факторов на последующий анализ. Следовательно, сывороточный шок особенно подходит для изучения экспрессии циркадных генов и функций молекулярных часов. Кроме того, данная процедура проста в реализации и не требует специализированного оборудования, что делает ее доступной и легко воспроизводимой в различных лабораториях. Однако практическим ограничением экспериментов с сывороточным шоком является интенсивный график отбора проб, необходимый для точной характеристики циркадной ритмичности. Для надежного анализа ритмов обычно требуется сбор образцов через регулярные интервалы, как правило, каждые 2–6 h в течение одного или нескольких циркадных циклов (24–72 h)14, что часто требует сбора проб в ночное время.
Описанный здесь рабочий процесс решает эту логистическую проблему путем поэтапного начала синхронизации в нескольких культуральных планшетах, что позволяет проводить полный циркадный отбор проб в стандартные рабочие часы, избегая необходимости сбора образцов в ночное время. Вместо внедрения новой стратегии синхронизации, данный протокол представляет собой детальную и воспроизводимую реализацию установленного метода сывороточного шока в сочетании с практическим графиком отбора проб и последующим анализом экспрессии генов. Этот рабочий процесс особенно подходит для изучения циркадной экспрессии генов в культивируемых клетках с использованием общедоступных лабораторных методов. При адаптации протокола к другим клеточным моделям экспериментальные параметры, включая плотность клеток, условия синхронизации, интервалы отбора проб и выбор референсных генов, должны быть оптимизированы и валидированы для конкретного типа клеток перед внедрением.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Протокол
В следующем протоколе описан валидированный метод синхронизации для эмбриональной линии клеток гипоталамуса мыши mHypoE-42. Перед применением данного протокола к другим типам культивируемых клеток необходимо провести независимую валидацию и оптимизацию метода синхронизации. Обзор рабочего процесса представлен на рисунке 1, а график еженедельного отбора проб — на дополнительном рисунке 1. Список всех реагентов, оборудования и приборов, используемых в данном протоколе, приведен в таблице материалов. Все процедуры по культивированию клеток следует проводить в сертифицированном шкафу биологической безопасности, используя стерильные реагенты и оборудование.
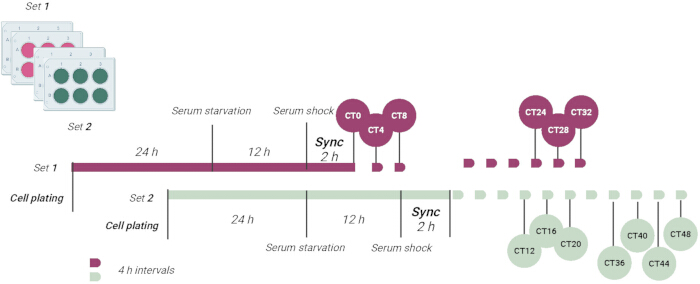
Рисунок 1. Схематический обзор протокола ступенчатой синхронизации методом сывороточного шока. Схема, иллюстрирующая рабочий процесс синхронизации клеток mHypoE-42 с помощью сывороточного шока в двух ступенчатых экспериментальных группах. Ступенчатый дизайн позволяет осуществлять сбор циркадных образцов в стандартные рабочие часы, избегая ночного отбора проб. Впоследствии образцы подвергаются экстракции РНК, количественной ПЦР в реальном времени (qRT-PCR) и анализу циркадных ритмов. Создано с помощью Biorender.com. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
1. Культивирование клеток
- Культивируйте адгезивные клетки mHypoE-42 в модифицированной Дульбекко среде Игла (DMEM) с высоким содержанием глюкозы (4500 mg/L), дополненной 10% (v/v) термоинактивированной фетальной бычьей сывороткой (FBS), 3.7 g/L бикарбоната натрия и 1% раствором антибиотиков.
- Содержите клетки при 37°C в увлажненном инкубаторе с атмосферой 95% воздуха и 5% диоксида углерода (CO2) в культуральных флаконах T75 с конечным объемом среды 10 mL.
ПРИМЕЧАНИЕ: Тестируйте каждую новую партию FBS перед началом экспериментов, так как свойства сыворотки могут варьироваться от партии к партии. - Проводите субкультивирование клеток при достижении ими примерно 80%–90% конфлюэнтности. Промойте клетки стерильным 1× фосфатно-солевым буфером (PBS; pH 7.4), добавьте 3 mL 0.5% раствора трипсина и инкубируйте в течение 3–5 min для отсоединения клеток.
- Для нейтрализации трипсина добавьте полную питательную среду, содержащую 10% (v/v) FBS, в объеме, как минимум в два раза превышающем объем добавленного трипсина.
- Разведите клетки свежей ростовой средой в соотношении до 1:2.
ПРИМЕЧАНИЕ: Избегайте использования клеток с избыточным числом пассажей (например, более 40 пассажей для клеток mHypoE-42). Предварительно нагревайте все растворы перед использованием. Регулярно проверяйте культуры на наличие контаминации микоплазмой. - Приступайте к анализам по синхронизации через 24 h после посева клеток в плотности 2.0 × 10⁵ клеток на лунку, как описано в Шаге 2. Поддерживайте рутинные клеточные культуры при примерно 80%–90% конфлюэнтности перед пассированием.
2. Синхронизация клеточной линии mHypoE-42
- Подготовка клеток
- После трипсинизации центрифугируйте клетки при 700 × g в течение 5 мин.
- Удалите супернатант и ресуспендируйте осадок клеток в 10 mL свежей культуральной среды.
- Смешайте клеточную суспензию с красителем трипановым синим в соотношении 1:1 (общий объем 20 μL) и определите концентрацию клеток с помощью гемоцитометра.
ПРИМЕЧАНИЕ: Утилизируйте растворы, содержащие трипановый синий, в соответствии с правилами учреждения по утилизации химических отходов. Не сливайте неиспользованный краситель в раковину.
- Посев клеток и ступенчатый дизайн эксперимента
- Высейте 2,0 × 10⁵ клеток на лунку в 6-луночные планшеты или чашки для культивирования диаметром 35 мм. Инкубируйте культуры при 37°C в течение 24 ч.
ПРИМЕЧАНИЕ: Начните синхронизацию сывороткой через 24 ч после посева клеток. Таким образом, перед синхронизацией не требуется достижение определенной конфлюэнтности клеток. Вместо этого исследуйте культуры под микроскопом, чтобы подтвердить, что клетки полностью прикрепились и имеют соответствующую морфологию перед началом процедуры синхронизации. - Случайным образом разделите культуральные планшеты на два экспериментальных набора. Используйте первый набор для получения точек циркадного времени (CT) CT0, CT4, CT8, CT24, CT28 и CT32. Используйте второй набор для получения CT12, CT16, CT20, CT36, CT40, CT44 и CT48 (Рисунок 1; Дополнительный рисунок 1).
- При необходимости увеличьте количество лунок или планшетов для включения технических повторностей.
ПРИМЕЧАНИЕ: Минимизируйте вариабельность, подготавливая все планшеты из одной и той же клеточной суспензии, поддерживая идентичную плотность посева и условия культивирования, а также проводя синхронизацию с использованием одних и тех же реагентов и экспериментальных настроек. При необходимости скорректируйте формат сосудов для культивирования и плотность посева для других типов клеток. При использовании 6-луночных планшетов объединяйте CT, собираемые одновременно, чтобы оптимизировать использование планшета.
- Высейте 2,0 × 10⁵ клеток на лунку в 6-луночные планшеты или чашки для культивирования диаметром 35 мм. Инкубируйте культуры при 37°C в течение 24 ч.
- Синхронизация
- Через 24 ч аспирируйте среду из первого набора планшетов и добавьте 1 mL безсывороточного DMEM. Инкубируйте в течение 12 ч для индукции сывороточного голодания.
- Непосредственно перед использованием приготовьте 50% (v/v) раствор сыворотки лошади в DMEM с высоким содержанием глюкозы.
- Аспирируйте среду для голодания из первого набора и подвергните клетки воздействию 1 mL свежеприготовленного 50% раствора сыворотки лошади в течение 2 ч.
- Одновременно с этим аспирируйте среду из второго набора планшетов и замените ее 1 mL безсывороточного DMEM. Инкубируйте в течение 12 ч.
- После 2-часового сывороточного шока аспирируйте среду и добавьте 1 mL DMEM с высоким содержанием глюкозы, дополненного 10% (v/v) термоинактивированной FBS. Обозначьте эту временную точку как CT0.
- Сбор образцов
- Поместите культуральные планшеты на лед. Аспирируйте среду, дважды промойте клетки 1 mL холодного стерильного 1× PBS, удалите промывочный раствор и лизируйте клетки механически, используя до 1 mL реагента для лизиса.
ПРЕДОСТЕРЕЖЕНИЕ: Реагент для лизиса содержит опасные химические вещества. Выполняйте все этапы работы в сертифицированном вытяжном шкафу, используя соответствующие средства индивидуальной защиты. Утилизируйте отходы в соответствии с правилами химической безопасности учреждения. - Перенесите каждый лизат в стерильную пробирку и храните образцы при −80°C до экстракции РНК.
- Повторите этапы 2.4.1 и 2.4.2 для сбора образцов в точках CT4 и CT8.
- В точке CT8 повторите этап 2.3.2 для второго экспериментального набора, чтобы синхронизировать остальные клетки.
- После 2 ч сывороточного шока завершите синхронизацию второго экспериментального набора, заменив среду на 1 mL DMEM с высоким содержанием глюкозы, дополненного 10% (v/v) термоинактивированной FBS.
- Сбирайте образцы поочередно из двух экспериментальных наборов для получения CT12, CT24, CT16, CT28, CT20 и CT32. На следующий день повторите процедуру сбора для получения CT36, CT40, CT44 и CT48.
ПРИМЕЧАНИЕ: Сывороточное голодание и синхронизация начинались в соответствии с временным графиком эксперимента после посева клеток, а не при достижении определенной конфлюэнтности. Перед началом синхронизации убедитесь, что клетки полностью прикрепились и имеют соответствующую морфологию. Хотя последовательные CT различаются на 4 ч, сбор образцов производится не с 4-часовым интервалом. Полный еженедельный график сбора образцов приведен на Дополнительном рисунке 1.
- Поместите культуральные планшеты на лед. Аспирируйте среду, дважды промойте клетки 1 mL холодного стерильного 1× PBS, удалите промывочный раствор и лизируйте клетки механически, используя до 1 mL реагента для лизиса.
3. Обработка образцов: экстракция РНК
ПРИМЕЧАНИЕ: Протоколы могут варьироваться в зависимости от контекста эксперимента и области применения. Следующий рабочий процесс описывает пример эффективной процедуры экстракции РНК, синтеза комплементарной ДНК (кДНК) и количественной полимеразной цепной реакции в реальном времени (кПЦР). Экстракцию тотальной РНК следует проводить с использованием комбинированного метода лизиса на основе фенола и разделения фаз с последующей очисткой с помощью силикатных спин-колонок.
- Подготовка образцов и разделение фаз
- Разморозьте образцы, повторно гомогенизируйте лизаты и инкубируйте их при комнатной температуре в течение 5 min.
- Добавьте 200 μL хлороформа на каждый 1 mL лизирующего реагента.
ПРЕДОСТЕРЕЖЕНИЕ: Хлороформ летуч и токсичен. Все процедуры с использованием хлороформа следует проводить в сертифицированном химическом вытяжном шкафу с использованием соответствующих средств индивидуальной защиты. - Интенсивно встряхивайте пробирки в течение 15 s и инкубируйте их при комнатной температуре в течение 3 min.
- Центрифугируйте образцы при 12,000 × g в течение 15 min при 4°C. Дождитесь разделения образцов на три фазы: нижнюю фенол-хлороформную фазу, содержащую белки, белую интерфазу, содержащую ДНК, и верхнюю водную фазу, обогащенную РНК.
- Осторожно перенесите водную фазу в новую стерильную пробирку, не затрагивая интерфазу. Храните органическую фазу при 4°C, если планируется последующее выделение белков или ДНК.
ПРИМЕЧАНИЕ: Если данные биомолекулы будут выделяться из органической фазы, выполняйте выделение белков или ДНК в соответствии с соответствующим протоколом.
- Очистка РНК
- Добавьте к водной фазе равный объем 70% этанола (приготовленного на воде, свободной от РНказ) и дважды перемешайте на вортексе в течение 15 s для улучшения связывания РНК.
- Нанесите образец на силикажную спин-колонку и очистите РНК в соответствии с алгоритмом очистки на колонке.
- Проведите расщепление contaminating genomic DNA с помощью ДНКазы в течение 15 min при комнатной температуре.
- Промойте колонку, используя прилагаемые промывочные буферы.
- Выполните дополнительную промывку 100 μL промывочного буфера и центрифугируйте при 11,000 × g в течение 2 min для высушивания силикатной мембраны.
- Перенесите спин-колонку в чистую микроцентрифужную пробирку. Элюируйте РНК 40–60 μL воды, свободной от РНказ, нанося воду непосредственно в центр силикатной мембраны и центрифугируя при 11,000 × g в течение 1 min.
ПРИМЕЧАНИЕ: Выберите объем элюции в зависимости от желаемого выхода и концентрации РНК. Объем элюции 60 μL обычно обеспечивает более полное извлечение РНК из силикатной мембраны, но приводит к получению более разбавленного раствора РНК. Напротив, объем элюции 40 μL позволяет получить более концентрированный препарат РНК, но может снизить общий выход РНК. Оптимизируйте объем элюции в соответствии с рекомендациями производителя и требованиями последующего анализа.
- Оценка качества РНК
- Поместите образцы РНК на лед и перенесите по 5 μL каждого образца в новую стерильную микроцентрифужную пробирку для оценки качества.
- Оцените целостность РНК с помощью электрофореза в 1.5% агарозном геле или капиллярного электрофореза. Подтвердите наличие четких полос 28S и 18S рибосомной РНК.
- Определите концентрацию и чистоту РНК путем измерения оптической плотности на спектрофотометре.
ПРИМЕЧАНИЕ: Утилизируйте отходы, содержащие фенол, в соответствии с внутренними правилами учреждения по утилизации химических отходов. Не сливайте опасные химические отходы в раковину. Для образцов культивируемых клеток концентрация РНК обычно составляет от 200 до 1000 ng/μL, что подходит для синтеза кДНК и qRT-PCR. Принимайте образцы РНК с соотношением A260/230 от 2.0 до 2.2 и соотношением A260/280 примерно 2.0 (см. Дополнительную таблицу 1).
- Хранение РНК
- Храните очищенные образцы РНК при −80°C до момента синтеза кДНК.
4. Обработка образцов: синтез кДНК
ПРИМЕЧАНИЕ: Синтезируйте кДНК из 1 μg общей РНК, используя набор для синтеза первой цепи кДНК. Отрегулируйте объемы реакций и условия инкубации в соответствии с инструкциями производителя.
- Обратная транскрипция
- Разморозьте образцы РНК на льду. Приготовьте реакционную смесь для обратной транскрипции объемом 20 μL, содержащую 1 μg суммарной РНК, 10 μL 2× Master Mix (содержащего ингибитор рибонуклеазы, случайные гексамеры, олиго(дезокситимидиновые) праймеры, ионы магния [Mg2+] и дезоксинуклеотидтрифосфаты), 2 μL смеси ферментов (содержащей обратную транскриптазу) и воду, обработанную диэтилпирокарбонатом, до конечного объема 20 μL.
- Инкубируйте реакционную смесь в амплификаторе в течение 10 мин при 25°C для отжига праймеров, затем в течение 30 мин при 50°C для синтеза кДНК. Инактивируйте обратную транскриптазу, инкубируя смесь при 85°C в течение 5 мин.
- Добавьте 1 μL РНказы H и инкубируйте смесь в течение 20 мин при 37°C для деградации цепи РНК в гибриде РНК–ДНК.
- Разведите полученную кДНК стерильной водой в соотношении до 1:20 в соответствии с требованиями по оптимизации анализа и храните разведенную кДНК при −20°C до проведения количественной полимеразной цепной реакции в реальном времени (кПЦР).
5. Обработка образцов: количественная полимеразная цепная реакция в реальном времени (qRT-PCR)
ПРИМЕЧАНИЕ: Измерьте экспрессию генов циркадных часов с помощью количественной ОТ-ПЦР. Обратитесь к Дополнительная таблица 2 для проверенных последовательностей праймеров, температур отжига и концентраций праймеров.
- Оптимизация анализа
- Перед анализом экспериментальных образцов проведите валидацию и оптимизацию концентрации праймеров, температуры отжига и количества вводимой кДНК, используя объединенные образцы кДНК и стандартную кривую. Оптимизацию и валидацию анализа проводите согласно ранее описанному методу15,16.
- Постановка реакции
- Подготовьте каждую реакцию qRT-PCR объемом 10 μL, смешав в 96-луночном ПЦР-планшете 5 μL 2× мастер-микса, по 0,4 μL прямого и обратного праймеров, 0,2 μL воды, обработанной диэтилпирокарбонатом, и 4 μL матрицы кДНК.
- Герметизируйте планшет оптически прозрачной пленкой или ковриком. Центрифугируйте планшет при 700 × g в течение 5 мин при 4°C для удаления пузырьков и сбора реакционной смеси на дне каждой лунки.
- Проанализируйте все образцы кДНК для определения экспрессии целевых генов Bmal1 и Per2.
- Проанализируйте выбранный референсный ген (B2m), используя то же разведение кДНК, для нормализации экспрессии генов в образцах.
- Термоциклирование
- Проведите qRT-PCR, используя следующие условия циклирования: начальная денатурация и активация ДНК-полимеразы с «горячим стартом» при 95°C в течение 2 мин, затем 39 циклов: 95°C в течение 5 s и 60°C в течение 30 s.
- Проведите анализ кривых плавления, нагревая реакционные смеси до 95°C в течение 5 s, с последующим ступенчатым повышением температуры на 0,5°C до 95°C с выдержкой в течение 5 s на каждом шаге.
ПРИМЕЧАНИЕ: При необходимости отрегулируйте время выдержки и настройки кривой плавления в соответствии с рекомендациями к мастер-миксу.
- Валидация референсного гена
ПРИМЕЧАНИЕ: В экспериментах по синхронизации сывороткой оценивайте потенциальные референсные гены, так как обработка сывороткой может изменить экспрессию генов «домохозяйств»17. Оценивайте стабильность экспрессии с помощью таких методов, как BestKeeper18, geNorm19, NormFinder20 или сравнительного метода ΔCt21. Выберите наиболее стабильный ген (гены) для нормализации. В данном исследовании гены β-actin (Actb) и β-2-microglobulin (B2m) оценивались с помощью программного обеспечения RefFinder22, которое объединяет несколько алгоритмов валидации референсных генов. B2m продемонстрировал наибольшую стабильность экспрессии на протяжении циркадного временного интервала и поэтому был выбран для нормализации. - Верификация продукта
- Подтвердите специфичность амплификации, проанализировав ПЦР-продукты с помощью электрофореза в 2% агарозном геле.
ПРИМЕЧАНИЕ: Определите оптимальную температуру отжига, протестировав несколько значений (например, 58 °C, 60°C и 62°C). Выберите температуру, при которой достигается минимальное значение цикла квантификации (Cq) при сохранении одного пика на кривой плавления и отсутствии признаков образования димеров праймеров.
ПРИМЕЧАНИЕ: Принимайте результаты анализов с эффективностью амплификации от 90% до 110% и коэффициентом детерминации (R2) 0,99 или выше. Подтвердите, что температуры плавления технических реплик различаются не более чем на 0,5°C. Для анализа используйте только технические реплики с разницей Cq ≤0,5; эти значения используйте для расчета средних уровней экспрессии. Проводите все реакции в технических репликах (например, в трехкратной повторности), включая контроль без матрицы и контроль без обратной транскрипции.
- Подтвердите специфичность амплификации, проанализировав ПЦР-продукты с помощью электрофореза в 2% агарозном геле.
6. Анализ данных
- Анализ экспрессии генов
- Вычислите среднее значение технических повторностей для каждого образца перед проведением последующего анализа.
- Рассчитайте значение ΔCq для каждого образца и временной точки, используя следующее уравнение:
ΔCq = Cqцелевого гена - Cqгена домашнего хозяйства - Рассчитайте значение ΔΔCq для каждого образца и временной точки, используя следующее уравнение:
ΔΔCq = ΔCqобразца - ΔCqконтроля
ПРИМЕЧАНИЕ: Для расчета ΔΔCq значение ΔCqконтроля определяли как среднее значение ΔCq, полученное путем усреднения всех контрольных образцов по всем CT. - Оцените циркадные параметры, включая среднесуточный уровень (MESOR), амплитуду, пик и фазу, с помощью CircaCompare23. Выполните анализ с использованием онлайн-приложения или пакета для R.
- Онлайн-анализ с помощью CircaCompare
ПРИМЕЧАНИЕ: Онлайн-версия предоставляет полные оценки циркадных параметров только в том случае, если набор данных удовлетворяет статистическим критериям ритмичности. Если ритмичность слабая или статистически незначимая, используйте версию для R, чтобы получить оценки параметров для всех наборов данных.- Подготовьте файл со значениями, разделенными запятыми (.csv).
- Введите переменную времени (числовая; часы) в Столбец 1.
- Введите переменную группировки (только две экспериментальные группы) в Столбец 2.
- Введите переменную результата (числовая; ΔΔCq) в Столбец 3.
- Загрузите .csv файл в онлайн-приложение CircaCompare.
- Назначьте переменные времени, группы и результата соответствующим столбцам.
- Нажмите Run (Запуск) для выполнения анализа.
- Подготовьте файл со значениями, разделенными запятыми (.csv).
- Анализ CircaCompare в R
- Выполните анализ, используя R версии 4.5.1 и пакет CircaCompare версии 0.2.024.
- Установите необходимые пакеты R.
- Установите пакет devtools (версия 2.5.2).
- Установите пакет circacompare (версия 0.2.0).
- Установите пакет ggplot2 (версия 4.0.3).
- Установите пакет svglite (версия 2.2.2).
- Загрузите входной .csv файл.
- Запустите анализ CircaCompare, установив alpha_threshold = 1.
ПРИМЕЧАНИЕ: Установка alpha_threshold = 1 позволяет получить оценки циркадных параметров для всех подогнанных осцилляций независимо от их статистической значимости. Однако ритмичными и статистически значимыми следует считать только те осцилляции, для которых p-value < 0.05. - Отредактируйте Дополнительный файл 1 перед запуском скрипта.
- Замените «XXX.csv» именем входного файла данных.
- Замените «YYY.csv» желаемым именем файла с результатами.
- Замените «ZZZ.svg» желаемым именем файла графика.
- Отрегулируйте пределы оси Y (ylim) и любые дополнительные параметры построения графика в соответствии с набором данных.
- Пример входного файла приведен в Дополнительной таблице 3.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Результаты
Об успешной синхронизации свидетельствует статистически значимая циркадная ритмичность анализируемых часовных генов в контрольном условии (p < 0.05). В данном исследовании было проведено три независимых биологических эксперимента, в которых в качестве отрицательного контроля использовали 0.1% диметилсульфоксида. В качестве репрезентативных циркадных маркеров были выбраны Bmal1 и Per2, поскольку они являются основными компонентами молекулярных циркадных часов и демонстрируют хорошо изученный ...
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Обсуждение
Циркадные ритмы представляют собой эндогенные циклы продолжительностью примерно 24 h, которые регулируют широкий спектр физиологических, метаболических и клеточных процессов посредством консервативных механизмов молекулярных часов1,2. Модели синхронизации in vitro обеспечивают контролируемую экспериментальную среду для исследования этих механизмов и стали ценными инструментами для изучения циркадной регуляции в нормальных и патологических условиях, включ...
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Раскрытие информации
Авторы заявляют об отсутствии конфликта интересов.
Благодарности
Данная работа была совместно профинансирована Европейским союзом (ЕС) в рамках Механизма восстановления и устойчивости и национальными фондами Португалии через FCT – Fundação para a Ciência e a Tecnologia по проектам LA/P/0058/2020 (DOI: 10.54499/LA/P/0058/2020), UID/04539/2025, UID/PRR/04539/2025 (DOI: 10.54499/UID/PRR/04539/2025) и UID/PRR2/04539/2025 (DOI: 10.54499/UID/PRR2/04539/2025); Европейским региональным фондом развития (ERDF) через Региональную оперативную программу Centro 2030 по проекту CENTRO2030-FEDER-02360200; а также национальными фондами Португалии через FCT по грантам 2023.17896.ICDT (DOI: 10.54499/2023.17896.ICDT), 2023.12355.PEX (DOI: 10.54499/2023.12355.PEX), 2021.02220.CEECIND/CP1656/CT0008 (DOI: 10.54499/2021.02220.CEECIND/CP1656/CT0008), 2020.04850.BD (DOI: 10.54499/2020.04850.BD) и 2021.05334.BD (DOI: 10.54499/2021.05334.BD).
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| планшет для культивирования клеток на 6 лунок | Nest Biotechnology | 15140122 | Планшет для культивирования клеток |
| Агароза | NZYtech | MB02702 | Оценка качества РНК |
| Смесь антибиотиков (пенициллин/стрептомицин) | Gibco, Thermo Fisher Scientific | D5648 | Добавка для культур клеток |
| набор для синтеза кднк (первой цепи) | NZYtech | MB12502 | Обратная транскрипция |
| Хлороформ | Sigma-Aldrich | A5256701 | Реагент для разделения фаз |
| DMEM, с высоким содержанием глюкозы (4500 мг/л глюкозы, L-глутамин) | Sigma-Aldrich | 26050088 | Среда для культивирования клеток |
| Микроцентрифужные пробирки Eppendorf | Eppendorf | 30120086 | Хранение образцов |
| Этанол (96%) | Fisher Bioreagents | 15552393 | Очистка РНК |
| Фетальная бычья сыворотка, термоинактивированная | Gibco, Thermo Fisher Scientific | J62692.K7 | Добавка для культуральных сред |
| Жесткая 96-луночная ПЦР-пластина | Bio-Rad Laboratories | HSP9601 | планшет для qRT-PCR |
| Сыворотка лошадиная, инактивированная нагреванием | Gibco, Thermo Fisher Scientific | 15400054 | Сывороточный шок-синхронизация |
| линия клеток mHypoE-42 (CVCL_D443) | CELLutions Biosystems Inc. | MB13402 | Линия клеток гипоталамуса эмбриональной мыши |
| Олигонуклеотидные праймеры | NZYtech | MB12501 | праймеры для ОТ-ПЦР в реальном времени |
| Фосфатно-солевой буферный раствор (PBS) | Thermo Fisher Scientific | MB18502 | Промывка клеток |
| Мастер-микс qPCR Green (2×) | NZYtech | MB22403 | реагент для ОТ-ПЦР в реальном времени |
| Система детекции методом ПЦР в реальном времени | Bio-Rad Laboratories | EP0030108116 | прибор для ОТ-ПЦР в реальном времени |
| Набор для выделения РНК | NZYtech | 288306 | Очистка с использованием спиновых колонок с силикагелем |
| Реагент для лизиса РНК | NZYtech | MB18502 | Реагент для экстракции РНК на основе фенола |
| Бикарбонат натрия | Sigma-Aldrich | MB22401 | Добавка к питательной среде для культур клеток |
| Стерильная культуральная чашка диаметром 35 мм | Thermo Fisher Scientific | 121В | Чашка для культивирования клеток |
| термоциклер T100 | Bio-Rad Laboratories | 1861096 | Синтез кДНК |
| флакон для культивирования тканей T75 | Corning | 430641U | Сосуд для культивирования клеток |
| Раствор трипанового синего (0,4%) | Gibco, Thermo Fisher Scientific | 15250061 | Подсчет клеток |
| Трипсин-ЭДТА (0,5%) | Gibco, Thermo Fisher Scientific | 15400054 | Диссоциация клеток |
Ссылки
- Fuhr L, Abreu M, Pett P, Relógio A. Circadian systems biology: When time matters. Comput Struct Biotechnol J. 2015;13:417-426.
- Albrecht U. Timing to perfection: The biology of central and peripheral circadian clocks. Neuron. 2012;74(2):246-260.
- Relógio A, et al. Ras-mediated deregulation of the circadian clock in cancer. PLoS Genet. 2014;10(5):e1004338.
- Balsalobre A, Damiola F, Schibler U. A serum shock induces circadian gene expression in mammalian tissue culture cells. Cell. 1998;93(6):929-937.
- Hughes ATL, et al. Constant light enhances synchrony among circadian clock cells and promotes behavioral rhythms in VPAC2-signaling deficient mice. Sci Rep. 2015;5:12092.
- Fuhr L, et al. The circadian clock regulates metabolic phenotype rewiring via HKDC1 and modulates tumor progression and drug response in colorectal cancer. EBioMedicine. 2018;33:105-121.
- Nagoshi E, et al. Circadian gene expression in individual fibroblasts: Cell-autonomous and self-sustained oscillators pass time to daughter cells. Cell. 2004;119(5):693-705.
- Balsalobre A, et al. Resetting of circadian time in peripheral tissues by glucocorticoid signaling. Science. 2000;289(5488):2344-2347.
- Kaneko H, Kaitsuka T, Tomizawa K. Response to stimulations inducing circadian rhythm in human induced pluripotent stem cells. Cells. 2020;9(3):732.
- Chalmers JA, et al. Vascular circadian rhythms in a mouse vascular smooth muscle cell line (Movas-1). Am J Physiol Regul Integr Comp Physiol. 2008;295:R1529-R1538.
- Brown SA, et al. Rhythms of mammalian body temperature can sustain peripheral circadian clocks. Curr Biol. 2002;12(18):1574-1583.
- Adamovich Y, et al. Rhythmic oxygen levels reset circadian clocks through HIF1α. Cell Metab. 2017;25(1):93-101.
- Rogers EH, et al. Comparing circadian dynamics in primary derived stem cells from different sources of human adult tissue. Stem Cells Int. 2017;2017:2057168.
- Gaspar LS, et al. The importance of determining circadian parameters in pharmacological studies. Br J Pharmacol. 2019;176(16):2827-2847.
- Nolan T, Hands RE, Bustin SA. Quantification of mRNA using real-time RT-PCR. Nat Protoc. 2006;1(3):1559-1582.
- Derveaux S, Vandesompele J, Hellemans J. How to do successful gene expression analysis using real-time PCR. Methods. 2010;50(4):227-230.
- Livak KJ, Schmittgen TD. Analysis of relative gene expression data using real-time quantitative PCR and the 2−ΔΔCT method. Methods. 2001;25(4):402-408.
- Pfaffl MW, Tichopad A, Prgomet C, Neuvians TP. Determination of stable housekeeping genes, differentially regulated target genes and sample integrity: BestKeeper—Excel-based tool using pair-wise correlations. Biotechnol Lett. 2004;26(6):509-515.
- Vandesompele J, et al. Accurate normalization of real-time quantitative RT-PCR data by geometric averaging of multiple internal control genes. Genome Biol. 2002;3(7):research0034.1-research0034.11.
- Andersen CL, Jensen JL, Ørntoft TF. Normalization of real-time quantitative reverse transcription-PCR data: a model-based variance estimation approach to identify genes suited for normalization. Cancer Res. 2004;64(15):5245–5250.
- Silver N, Best S, Jiang J, Thein SL. Selection of housekeeping genes for gene expression studies in human reticulocytes using real-time PCR. BMC Mol Biol. 2006;7:33.
- Xie F, Wang J, Zhang B. RefFinder: a web-based tool for comprehensively analyzing and identifying reference genes. Funct Integr Genomics. 2023;23:125.
- Parsons R, Garner N, Oster H, Rawashdeh O. CircaCompare: A method to estimate and statistically support differences in mesor, amplitude and phase between circadian rhythms. Bioinformatics. 2020;36(4):1208-1212.
- Parsons R. circacompare: Analyses of circadian data. R package version 0.2.0. 2021. Available at: https://CRAN.R-project.org/package=circacompare
- Di Nisio A, et al. Impairment of human dopaminergic neurons at different developmental stages by perfluoro-octanoic acid (PFOA) and differential human brain areas accumulation of perfluoroalkyl chemicals. Environ Int. 2022;158:106982.
- Xiang S, et al. Oscillation of clock and clock-controlled genes induced by serum shock in human breast epithelial and breast cancer cells: Regulation by melatonin. Breast Cancer (Auckl). 2012;6:155-168.
- Chang HC, Guarente L. SIRT1 mediates central circadian control in the SCN by a mechanism that decays with aging. Cell. 2013;153(7):1448-1460.
- Yoo SH, et al. PERIOD2::LUCIFERASE real-time reporting of circadian dynamics reveals persistent circadian oscillations in mouse peripheral tissues. Proc Natl Acad Sci U S A. 2004;101(15):5339-5346.
- Ueda HR, et al. System-level identification of transcriptional circuits underlying mammalian circadian clocks. Nat Genet. 2005;37(2):187-192.
- Beaulé C, Granados-Fuentes D, Marpegan L, Herzog ED. In vitro circadian rhythms: Imaging and electrophysiology. Essays Biochem. 2011;49(1):103-117.
- Ribeiro RFN, et al. Circadian rhythms are disrupted in patients and preclinical models of Machado-Joseph disease. Brain. 2025;148(11):4127-4142.
- Masri S, Sassone-Corsi P. The emerging link between cancer, metabolism, and circadian rhythms. Nat Med. 2018;24(12):1795-1803.
- Ribeiro RFN, Cavadas C, Silva MMC. Small-molecule modulators of the circadian clock: Pharmacological potentials in circadian-related diseases. Drug Discov Today. 2021;26(7):1620-1641.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Перепечатки и разрешения
Эта статья была опубликована
Видео скоро будет доступно