Мы описываем конфокальную визуализацию и конвейеры отслеживания, применяемые к двум репортерским стратегиям: мозаичным органоидам для определения поведения отдельных клеток и органоидам судьбы для мониторинга переходов клеточных типов в органоидах кишечника человека и мышиного кишечника.
Методическая статья
Живоклеточная визуализация и отслеживание отдельных клеток для мониторинга клональной динамики и переходов судьбы в органоидах кишечника человека и мыши
* These authors contributed equally
В этой статье
Краткое содержание
Аннотация
Кишечный эпителий быстро самообновляется за счет деления стволовых клеток, дифференцировки клеток и миграции. Понимание того, как отдельные клетки принимают определённые судьбы и как формируется клональная динамика внутри этой ткани, требует методов, фиксирующих клеточное поведение в реальном времени и с разрешением одной клетки. Кишечные органоиды отражают ключевые особенности эпителиальной самоорганизации и разнообразия типов клеток, делая их мощной системой для изучения этих процессов в контролируемых условиях. Здесь мы представляем протокол долгосрочной конфокальной визуализации живых клеток (до 72 час) и отслеживания отдельных клеток у органоидов кишечника человека и мышей, построенный вокруг двух комплементарных репортерских стратегий. Во-первых, мы описываем формирование мозаичных органоидов путём объединения дифференциально маркированных клеточных популяций, что позволяет разрешить мембранно-локализованные и цитоскелетные репортеры, которые иначе нельзя отнести к отдельным клеткам в плотном эпителии. Во-вторых, мы используем репортеры судьбы, специфичные для типа клеток (MUC2 для клеток кубка и DEFA5 для клеток Панета) для мониторинга переходов между секреторными типами клеток в реальном времени. Протокол охватывает культуру органоидов, формирование мозаичных органоидов, подготовку образцов с методами минимизации фототоксичности, получение изображений в течение нескольких дней и полуавтоматическое отслеживание отдельных клеток с помощью OrganoidTracker, который восстанавливает траектории и линии клеток со временем. Хотя это демонстрируется в кишечных органоидах, эта структура легко адаптируется к другим эпителиальным органоидным системам, включая желудочную, поджелудочную и колонистую модели, расширяя её применение для изучения эпителиальной биологии, гомеостаза и заболеваний.
Введение
Кишечный эпителий — одна из самых быстро обновляющихся тканей организма, большинство клеток восстанавливаются в течение трёх-пяти дней. Этот непрерывный обмен поддерживается благодаря лейцин-обогатённым повторным рецепторам с G-белком-рецептором 5 (Lgr5), расположенным у основания кишечных крипт, которые дают начало транзит-амплифицирующим предшественникам, дифференцирующихся в специализированные типы клеток слизистой кишечника при миграции ккончику ворсинок 1. Основные дифференцированные линии включают абсорбцирующие энтероциты, клетки-кубки, выделяющие слизь, энтероэндокринные клетки, производящие гормоны, и антимикробные клеткиПанета 2. То, как отдельные клетки принимают определённые судьбы, как коллективное поведение клеток возникает из динамики отдельных клеток и как достигается координация на уровне тканей — остаются фундаментальными вопросами в кишечной биологии. Для ответа на эти вопросы необходимы экспериментальные подходы, которые фиксируют клеточное поведение с разрешением одной клетки, в реальном времени и на временных масштабах, важных для дифференцировки имиграции 3.
Кишечные органоиды — трёхмерные (3D) самоорганизующиеся структуры, выращенные из отдельных стволовых клеток или фрагментов ткани, обобщают ключевые аспекты архитектуры эпителия, самоорганизации и разнообразия типов клеток 4,5,6. С момента появления органоиды стали незаменимым инструментом для изучения кишечной биологии, моделирования заболеваний и реакций на лекарства. Как мышиные, так и человеческие кишечные органоиды можно поддерживать в культуре длительное время, генетически модифицировать с помощью методов кластерных регулярно промежуточных коротких палиндромных повторов (CRISPR) и объединять в мозаичные структуры путём смешивания диссоциированных отдельных клеток разных генотипов или репортерных фонов перед повторным вложением в экстракт базальной мембраны 7,8,9. Мозаичные органоиды объединяют клетки с разным генетическим или флуоресцентным фоном в одной структуре, так что популяции воспринимают идентичные нишевые сигналы и механический контекст, и их можно сравнивать с встроенными внутренними контролями. Эта генетическая управляемость делает их особенно подходящими для живых изображений, требующих точной маркировки определённых клеточныхпопуляций 6,10,11,12. Репортеры, которые спорадически маркируют клетки, такие как маркеры судьбы, специфические к типу клеток, производят изолированные флуоресцентные клетки, которые можно отслеживать и анализировать индивидуально с помощью методов отслеживания отдельных клеток. Однако постоянная проблема возникает, когда мембранно-локализованные и цитоскелетные белки, такие как клеточные соединения или кортикальный миозин-II, равномерно мечется по всему эпителию. Их сигналы не могут быть назначены отдельным клеткам, поскольку соседние клетки имеют общие границы при разрешении конфокальной микроскопии. Мозаичные органоиды преодолевают это ограничение: когда клетка, экспрессирующая флуоресцентного репортёра, окружена немаркированными соседями, её мембрана и цитоскелетные сигналы можно однозначно отнести к одной клетке, что показывает, как она ремоделирует свой цитоскелет во время миграции, деления илиэкструзии 9,13. Корректировка коэффициента маркировки инвертирует этот вид, позволяя запечатлеть ответ окрестности вокруг немаркированной ячейки. Гистоновые H2B-ядерные репортеры, такие как H2B-mCherry или H2B-iRFP, служат инструментами для идентификации мозаичного узора и поиска информативных созвездий клеток для анализа. Помимо разрешения отдельных клеток, мозаичные органоиды также позволяют проводить прямое сравнение приспособленности между генотипами: поскольку обе популяции имеют одну и ту же нишу, различия в жизни клетки или скорости экструзии обеспечивают внутренне контролируемый показатель конкурентнойприспособленности 9,14,15.
Однако визуализация органоидов живыми клетками представляет собой специфические технические сложности. Их трёхмерная геометрия требует конфокальной или светлолистовой микроскопии для оптическогосечения 16,17,18,19. Фиксация медленных процессов, таких как дифференцировка и миграция, требует длительности изображения в 24 часа и более, с тщательной оптимизацией мощности лазера, времени экспозиции и интервалов визуализации для ограниченияфототоксичности 16,18. Матрица встраивания и среда должны поддерживать здоровье органоидов, оставаясь при этом совместимыми с оптикой микроскопа. Кроме того, для извлечения количественной одноячейковой информации из плотных наборов 3D-таймлапс требуется специализированные вычислительные инструменты для обнаружения и связки ячеек в сотнях временных точек. Помимо конфокальной микроскопии и микроскопии на световых листов, мультифотонная микроскопия и флуоресцентная пожизненная визуализация (FLIM) предлагают дополнительные возможности, такие как снижение фототоксичности и метаболические показатели без меток20,21, хотя конфокальная микроскопия остаётся самой доступной и универсальной платформой для многоцветной живой визуализации флуоресцентно маркированных органоидов.
Разработано несколько подходов для отслеживания клеток в органоидах — от ручного аннотирования до полуавтоматизированных и полностью автоматизированных конвейеров на основе глубокогообучения 22. OrganoidTracker — это полуавтоматизированный программный инструмент, использующий нейронные сети для обнаружения ядер в 3D-конфокальных стеках и связывающий обнаружения между временными точками для восстановления траекторий клеток иродословных деревьев 3,23. Он был проверен для отслеживания сотен клеток в течение нескольких дней в кишечных органоидах и предоставляет гибкую основу для количественного определения деления клеток, миграции, дифференцировки и экструзии. Поддержка многоканальной визуализации делает его напрямую совместимым как с мозаичными органоидами, несущими спектрально отличающиеся ядерными репортерами, так и с органоидами, экспрессирующими маркеры судьбы, специфические к типу клеток.
В этом протоколе мы описываем модульный рабочий процесс, который интегрирует конфокальную живую визуализацию и отслеживание отдельных клеток с двумя дополняющими репортерными стратегиями в кишечных органоидах человека и мыши. Первая стратегия использует мозаичные мышиные органоиды, образованные путём смешивания двух популяций клеток с разными ядерными репортерами H2B (H2B-mCherry и H2B-iRFP) при определённых соотношениях (см. рисунок 1A). Одна популяция дополнительно несёт совместно выраженного интересующего репортёра, такого как Myosin-II-mNeonGreen, чей мембранно-локализованный сигнал однозначно относится к отдельным клеткам, когда они окружены соседями, несущими только вторую ядерную метку. Это позволяет непосредственно наблюдать, как одна клетка ремоделирует свой цитоскелет во время миграции, деления или экструзии внутри целой ткани. Вторая стратегия использует специфические к типу клеточных репортеров судьбы в органоидах кишечника человека: Mucin 2 (MUC2) для маркировки кубочных клеток и Defensin Alpha 5 (DEFA5) для маркировки клеток Paneth, что позволяет осуществлять мониторинг переходов секреторных клеток в реальном времени (рисунок 1B). Вместе эти две системы иллюструют, как общий конвейер визуализации и отслеживания может быть адаптирован к различным биологическим вопросам, просто заменив стратегию репортёра (рисунок 1C,D). Следующие разделы содержат все этапы, необходимые для реализации этого рабочего процесса: от культуры органоидов до создания мозаик, получения изображений и количественного анализа отдельных клеток.
Протокол
Все эксперименты с участием животных проводились в соответствии с институциональными рекомендациями, утверждёнными Центральным комитетом по экспериментам на животных (CCD) правительства Нидерландов и Органом по защите животных KNAW/Hubrecht Institute (IvD). Органоиды кишечника были получены из тканей пациента, полученных в Медицинском университете Утрехта (UMCU) с информированного согласия пациента. Исследование было одобрено этическим комитетом UMCU (Утрехт, Нидерланды) и проведено в соответствии с Хельсинкской декларацией и голландским законодательством.
1. Органоидная культура и поддержание
- Подготовьте эпидермальный фактор роста, Ноггин и R-спондин (ENR) для органоидов мышиного кишечника (Таблица 1).
- Подготовьте среду для расширения (таблица 2), среду для формирования (таблица 3) и среду для созревания (таблица 4) для органоидов кишечника человека.
- Перед использованием разморозите флакон с экстрактом базальной мембраны, редукциированной фактором роста (BME), на льду на ночь.
- Всегда держите BME на льду, чтобы предотвратить преждевременное желирование.
- Культивировать мышиные кишечные органоиды в среде ENR, встроенные в BME, проходящие каждые 7 дней при соотношении 1:4 к 1:8 с помощью механическойдиссоциации 4.
- Культивировать органоиды кишечника человека в расширенной среде, встроенной в BME, проходя каждые 7–10дней 5.
ПРИМЕЧАНИЕ: Для расширения или восстановления мышиных органоидов после одноклеточной диссоциации в среде ENR в течение первых 2–3 дней с дополнением среды, кондиционируемой Wnt (с добавлением 10 мМ никотинамида и 10 мкм Y-27632 дигидрохлорида) для стимулирования роста органоидов и жизнеспособности. - Для индуцирования дифференциации органоидов кишечника последовательно культивируют органоиды в среде с узором в течение 14 дней, затем в среде созревания 7–10дней 6.
ПРИМЕЧАНИЕ: Для подробных протоколов установления и культивирования органоидов см. Сато и др.4 для мышиных кишечных органоидов, Сато и др.5 иХэ и др. 6 для органоидов кишечника человека.
2. Генерация трансгенных кишечных органоидов
- Проходят органоиды для обеспечения активного размножения культур во время электропорации: за три дня до электропорации для мышиных органоидов и пять-семь дней для человеческих органоидов. Для каждой электропорационной реакции используйте органоиды из 4–8 лунок 24-яменой пластины (примерно 200–400 мкл БМЭ с органоидами, что даёт примерно 500–1 000 органоидов). Диссоциировать органоиды в отдельные клетки с помощью рекомбинантного трипсиноподобного диссоциационного реагента в течение 5–10 минут при 37 °C.
- Генерировать ядерные репортерные органоидные линии путём коэлектропорирования транспозонной экспрессионной конструкции (p2T-H2B-mCherry-IRES-BlastR или p2T-H2B-iRFP-IRES-PuroR; по 5 мкг каждая) вместе с транспозазным вектором (p2T-CAG-mT2TP; 5 мкг) в диссоциированные клетки с помощью электропорационной системы согласно установленнымпротоколам 24.
ПРИМЕЧАНИЕ: Количество плазмидной ДНК, указанное на шаге 2.2 (5 мкг на конструкцию), оптимизировано примерно для 500–1 000 органоидов на электропорационную реакцию. Во время электропорации убедитесь, что сопротивление, измеряемое электропорадором, находится в пределах 25–55 Ω. Импеданс ниже 25 Ω указывает на чрезмерную плотность клеток или проблемы с буферной проводимостью; Импеданс выше 55 Ω указывает на недостаточное количество клеток или низкую жизнеспособность клетки. Отрегулируйте концентрацию ячейки или замените буфер электропорации, если импеданс выходит за пределы этого диапазона. - После электропорации культурные клетки в среде, кондиционируемой Wnt, дополнялись 10 мкм Y-27632 дигидрохлоридом в течение 3 дней для поддержки восстановления клеток и органоидной реформировании.
- Начать отбор антибиотиков для конструктов с гиперэкспрессией (пуромицин (2 мкг/мл) для линий H2B-iRFP или бластицидин (10 мкг/мл) для линий H2B-mCherry) через неделю после электропорации, чтобы обеспечить достаточное восстановление до давления отбора.
- Проводите непрерывный отбор в течение двух недель.
- Выбирайте флуоресцентные органоидные клоны под стереомикроскопом с эпифлуоресценцией, используя соответствующие фильтры.
- Диссоциировать выбранные клоны в отдельные клетки с помощью рекомбинантного трипсиноподобного диссоциационного реагента и расширяться в среде, кондиционируемой Wnt, в течение двух недель перед переходом в среду ENR.
- Валидировать репортерные линии, подтверждая однородную ядерную локализацию флуоресцентного сигнала и стабильное выражение через проходы.
- Проверьте, не изменяет ли репортёрное введение скорость роста, морфологию или способность к дифференциации при сравнении с немаркированными родительскими линиями.
- Для обеспечения считывания мембранно-локализованных или цитоскелетных белков совместно экспрессируйте интересующий флуоресцентный репортер (например, миозин-II, помеченный mNeonGreen) в той же органоидной линии, что и H2B-ядерный репортер.
ПРИМЕЧАНИЕ: Установленные органоидные линии репортеров H2B могут быть расширены и криосохранены. Эти линии служат универсальной базой для дальнейших мозаичных экспериментов: дополнительные репортёры или генетические мутации могут быть введены в тот же фон с меткой H2B, создавая библиотеку линий, совместимых с мозаичным рабочим процессом, описанным в разделе 4.
3. Генерация эндогенных репортёров судьбы человеческих кишечных органоидов
- Генерировать MUC2-флуоресцентный репортер с knock-in в органоидах кишечника человека с помощью CRISPR-опосредованной гомологи-независимой таргетной интеграции (CRISPR-HOT), как описано в Artegiani и др.7
- Генерировать флуоресцентный репортёр DEFA5 knock-in в органоидах кишечника человека с помощью гомологично-ориентированного ремонта (HDR), как описано в He et al.6
ПРИМЕЧАНИЕ: CRISPR-HOT (шаг 3.1) и HDR (шаг 3.2) создают эндогенные репортеры knock-in. - Валидировать экспрессию обоих репортеров, подтверждая совместную локализацию флуоресцентного сигнала с окрашиванием антител на MUC2 и DEFA5 соответственно.
- Убедитесь, что введение репортера не влияет на рост, морфологию или способность к дифференцировке органоидов.
ПРИМЕЧАНИЕ: Подход CRISPR-HOT широко применим не только для маркеров судьбы, и может использоваться для создания эндогенных флуоресцентных репортеров для мембранно-локализованных и цитоскелетных белков, таких как миозин-II, E-кадгерин или ZO-1, как у человека, так и у мышиных органоидов.
4. Генерация мозаичных органоидов
- За три дня до генерации мозаичных органоидов пропустите обе органоидные линии в Wnt-кондиционированную среду, чтобы стимулировать расширение стволовых клеток и максимизировать жизнеспособность клеток во время диссоциации.
- В день генерации мозаики покройте каждую скважину пластины с 48 лунками 20 мкл 5% БМЭ в ДМЭМ, чтобы создать тонкий клеевой слой для крепления ячеек. Инкубировать при 37 °C в течение 1 часа.
- Растворите BME, добавив ледяную основную среду, и собирайте органоиды из каждой линии отдельно центрифугированием при 300 × г в течение 5 минут при 4 °C. Расщеплять органоиды в отдельные клетки, инкубируя в растворе ферментативного отслоения клеток в течение 5–7 минут в водяной бане при 37 °C. Многократно пипетируйте подвеску с помощью пипетки P1000 для облегчения механической диссоциации. Контролируйте диссоциацию под ярким микроскопом и останавливают реакцию, добавляя избыток ледяной основной среды, когда видны преимущественно отдельные клетки или небольшие органоидные фрагменты из 2–10 клеток.
- Пеллетные клетки центрифугированием при 300 × г в течение 5 минут при 4 °C. НЕОБЯЗАТЕЛЬНО: Фильтруйте каждую суспензию клетки через сито 40 мкм, чтобы удалить остаточные комки, клеточные остатки и фрагменты геля BME.
ПРИМЕЧАНИЕ: Это обеспечивает чистую суспензию клеток, улучшает мозаичную однородность и снижает риск появления крупных клональных пятен из-за заранее сформированных клеточных кластеров. Для создания больших границ между популяциями клеток фильтрация не рекомендуется. - Оценивайте жизнеспособность клеток и подсчитывайте жизнеспособные клетки с помощью исключения трипанового синего. Объедините две популяции клеток в желаемом соотношении (например, 1:1, 1:3 или 1:9) в общей сложности 300 000 клеток в 500 мкл среды, кондиционируемой Wnt, дополненных 10 мкм дигидрохлоридом Y-27632. Тщательно перемешайте с помощью аккуратного пипетирования.
ПРИМЕЧАНИЕ: Коэффициент смешивания определяет тип анализа: низкое соотношение репортеров к немаркированным (например, 1:9) изолирует отдельные маркированные клетки среди немаркированных соседей, что позволяет однозначно приписывать мембранные и цитоскелетные сигналы отдельным клеткам. Большая доля репортерных ячеек (например, 9:1) инвертирует этот вид, позволяя зафиксировать ответ окрестности вокруг немаркированной ячейки. - Засеять клеточную суспензию в покрытую пластину с 48 лунками. Центрифугуйте пластину при 200 × г в течение 5 минут при комнатной температуре и инкубуйте при 37 °C.
- Через 24 часа механически отдельте слой клетки, соскребая наконечником пипетки P200 и тщательно промывая ледяной основной средой или используя скребок для ячейки. Отслоенные заполнители собирают центрифугой при 300 × г в течение 3 минут при 4 °C без дополнительного механического сдвига. Ресуспензировать агрегаты в BME и пластинировать в совместимые с изображением носители образцов. Культура в среде ENR.
ПРИМЕЧАНИЕ: Шаг 2D-агрегации без BME критически важен для создания хорошо смешанных мозаичных органоидов с распределением по принципу «соль и перец» между двумя популяциями клеток. - Для органоидов человеческой мозаики замените Wnt-кондиционированную среду и ENR на человеческую среду расширения (Таблица 2); все остальные этапы остаются без изменений.
5. Подготовка образца для конфокальной живой клеточной визуализации
- Используйте камеры с стеклянным дном (например, 24-ядровую пластину с высокопроизводительным покрытием #1.5 боросиликатного покрытия) для обеспечения оптической совместимости с конфокальными объективами с высокой числовой апертурой (NA).
- Органоидно-БМЭ подвеска покрывается тонким куполом (≤30 мкл на одну скважину) возле центра стеклянного дна. Перед перемещением до 37 °C инкубировать пластину при 4 °C в течение 5–10 минут, чтобы органоиды могли опуститься к стеклянному дну под действием тяжести до начала гельирования BME.
ПРИМЕЧАНИЕ: Это сокращает рабочее расстояние между органоидом и покрытием, максимизируя качество изображения с помощью инвертированных микроскопов. - Переведите температуру до 37 °C и дайте BME затвердеть на 20–30 минут. Затем добавьте 500 мкл предварительно подогретой почвы для роста на каждую 24-колодцу. Дайте органоидам восстановиться и установить свою морфологию не менее 24 часов после нанесения пластин, прежде чем начать живую визуализацию.
- Чтобы минимизировать испарение во время длительной визуализации, используйте увлажнённую инкубационную камеру на верхней стадии. Поместите образец на стадию микроскопа за 1–2 часа до съёмки, чтобы обеспечить термическое уравновесение и минимизировать Z-дрейф во время снятия.
- Убедитесь, что инкубатор на верхней стадии поддерживает 37 °C и 5% CO₂ во время съёмок.
- Выбирайте органоиды, расположенные близко к стеклянному дну (≤50 мкм от покрыва) с здоровой морфологией: чёткая архитектура криптового почка для мышиных органоидов или кистозная/почечная структура для человеческих органоидов. Избегайте органоидов, расположенных глубоко в BME, так как качество сигнала и точность отслеживания значительно ухудшаются с глубиной изображения.
ПРИМЕЧАНИЕ: Наличие фенол-красного как в BME, так и в культурной среде не вызывает значительных аутофлуоресцентных или визуализационных артефактов, поскольку флуоресцентные репортёры, используемые в этом протоколе (H2B-mCherry, H2B-iRFP, MUC2-mNeonGreen и DEFA5-dsRed), обеспечивают достаточное отношение сигнал/шум для надёжного обнаружения ядерного ядра и отслеживания отдельных клеток. Однако для экспериментов с использованием более слабых репортеров или дополнительных флуоресцентных каналов может быть полезно перейти на БМЕ и культурную среду без фенолов.
6. Получение конфокальных изображений
- Используйте лазерно-сканирующий конфокальный микроскоп, оснащённый инкубатором на верхней ступени (37 °C, 5% CO₂), моторизованным Z-приводом и лазерными линиями, подходящими для используемых флуорофоров.
- Выберите цель, исходя из экспериментальных требований. Используйте водяной иммерсионный объектив 40×/1.10 NA с рабочим расстоянием 0.62 мм, чтобы сфотографировать глубже в BME. Используйте воздушный объектив 20×/0,75 NA с рабочим расстоянием 0,62 мм для мультиорганоидного или широкого поля зрения.
ПРИМЕЧАНИЕ: Более высокий NA улучшает сбор света, разрешение и оптическое сечение, поэтому водяной иммерсионный объектив 40×/1.10 позволяет детализировать мелкие детали глубже внутри BME, а его большее увеличение ограничивает поле одним или несколькими органоидами. Воздушный объектив 20×/0,75 улавливает меньше света и менее плотно обработывает секции, но его более широкое поле захватывает множество органоидов за одно приобретение, что делает его лучшим выбором для масштабирования популяции или многопозиционной съёмки. - Дайте образцу и среде термического равновесия на стадии микроскопа не менее 1–2 часа перед началом сбора (шаг 5.8).
- Проверяйте фокус во всех позициях в первые несколько временных точек и вручную корректируйте любые позиции, показывающие дрейф, до его накопления.
ПРИМЕЧАНИЕ: Потеря фокуса и дрейф изображения — распространённые проблемы при долгосрочных приобретениях конфокалов и должны активно управляться. Для объектов погружения в воду используйте погружённое масло с показателем преломления, совпадающим с водой (n = 1,333), вместо самой воды, что устраняет испарение и сохраняет оптические свойства водного погружения. - Настройте настройки возбуждения и излучения для каждого фторофора. Чтобы минимизировать перекрёстное кровотечение, получайте флуоресцентные каналы последовательно, а не одновременно, обеспечивая активную только одну лазерную линию одновременно. Используйте двунаправленное последовательное сканирование для сокращения общего времени на каждую точку времени при сохранении разделения каналов.
ПРИМЕЧАНИЕ: Включите одноцветные контрольные органоиды, экспрессирующие только один репортер, чтобы количественно оценить остаточное перекрёстное перекрёстывание и, при необходимости, применить спектральные коррекции размешивания. - Для двухцветных органоидов мышиной мозаики используйте возбуждение 561 нм для H2B-mCherry и 638 нм для H2B-iRFP670 с соответствующими эмиссионными фильтрами для минимизации спектрального протока. Для органоидов кишечника человека используйте возбуждение 488 нм для MUC2-mNeonGreen и 561 нм для DEFA5-dsRed.
ПРИМЕЧАНИЕ: Живые ядерные красители, такие как Hoechst 33342 или красный флуоресцентный краситель ДНК, могут заменить генетический ядерный маркер, поскольку конвейер обнаружения работает на ядерном сигнале, а не на специфическом фторофоне. Обратите внимание, что ДНК-связывающие красители могут становиться фототоксичными и антипролиферативными при многократном освещении, особенно Hoechst, который обладает возбуждением ~400 нм, поэтому сохраняйте низкие концентрации и отдавайте предпочтение малофототоксичным дально-красным красителям для длительной живой визуализации. - Установите Z-стек как 25–35 оптических сечений с интервалом в 2 мкм. Установите интервал времени в 5–10 минут для органоидов мышиного кишечника и 15–30 минут для человеческих органоидов.
ПРИМЕЧАНИЕ: Для надёжного обнаружения ядерного ядра с помощью OrganoidTracker мы рекомендуем следующие настройки в качестве отправной точки: объектив воды 40x, скорость сканирования 600 Гц, коэффициент увеличения 0,75×, что даёт размер пикселя 0,38 мкм в XY. Эти параметры обеспечивают достаточную пространственную выборку для разделения отдельных ядер, при этом сохраняя время набора на z-стек в допустимых пределах для многопозиционной долгосрочной визуализации. - Держите мощность лазера как можно ниже, но увеличивайте до тех пор, пока ядра не будут чётко разрешёны. Начните многопозиционное таймлапс-получение. Убедитесь, что общее время захвата за одну точку времени во всех позициях не превышает 90% от установленного интервала, чтобы учесть перемещения сцены и настройки автофокуса. Изображение на 12–72 часа, в зависимости от биологических вопросов.
ПРИМЕЧАНИЕ: Перед началом длительного прохождения OrganoidTracker приобретите один z-стек и проверьте идентификацию. Надёжная идентификация с минимальным количеством пропущенных или ложных обнаружений подтверждает, что настройки адекватны. В противном случае регулируйте мощность лазера, усиление детектора или z-step перед продолжением. Захват дифференциационных событий, таких как появление MUC2-положительных клеток кубка или DEFA5-положительных клеток Панета, обычно занимает 48–72 часа. Краткосрочные динамики, такие как экструзия клеток, могут быть зафиксированы в течение 12–24 часа. Фототоксичность является основным ограничивающим фактором долгосрочной визуализации. Признаки включают замедленное деление клеток, апоптоз, конденсация ядра и коллапс органоидов (рисунок 2). Рекомендуется включать неизображенные контрольные органоиды в качестве внутреннего справочника. Если наблюдается, уменьшайте мощность лазера или увеличивайте интервал времени.
7. Отслеживание и реконструкция родословной с помощью полуавтоматического программного инструмента для отслеживания органоидных клеток, такого как OrganoidTracker
- Установите OrganoidTracker, следуя инструкциям на https://github.com/jvzonlab/OrganoidTracker.
ПРИМЕЧАНИЕ: Программное обеспечение требует Python 3.8 или выше с numpy, scipy, matplotlib и tensorflow. - Загрузите набор данных с таймлапсом в OrganoidTracker. Принятые форматы файлов включают стеки TIFF, ND2 и LIF. Запустите обнаружение ядер на основе нейронных сетей на ядерном канале (H2B-mCherry или H2B-iRFP для мышиных органоидов).
ПРИМЕЧАНИЕ: Предварительно обученная модель, предоставляемая в программном обеспечении, оптимизирована для ядер кишечника, маркированных H2B, и не может быть напрямую применена для автоматической идентификации MUC2-mNeonGreen или DEFA5-dsКрасноположительных клеток. - Проверяйте и ручно корректируйте автоматические обнаружения, сосредотачиваясь на ложноположительных результатах (обнаружения обломков, аутофлуоресцентных материалов или двойного подсчёта митозных данных), ложноотрицательных результатах (пропущенные ядра в плотных областях или на периферии органоидов) и переключателях идентичности (неправильные присвоения идентичности клеток при прохождении двух клеток вблизи).
- Запустите алгоритм связывания, чтобы соединить обнаружения между временными точками и восстановить траектории ячеек. Проверяйте ссылки вручную, уделяя особое внимание событиям деления клеток (одна дорожка разделяется на две дочерние дорожки) и событиям экструзии клеток (завершение следа при выходе клетки из эпителия).
ПРИМЕЧАНИЕ: Для мозаичных органоидов проведите обнаружение и отслеживание на первичном ядерном канале, затем классифицируйте каждую отслеживаемую клетку как принадлежащую к популяции A или B на основе отношения флуоресцентной интенсивности между двумя ядерными каналами. - Используйте опцию «Ручное отслеживание» в программном обеспечении для отслеживания органоидов судьбы человека. Количественно измерить репортерную флуоресценцию, измеряя среднюю интенсивность сигнала в пределах определённой ROI вокруг центра клетки, вставленной во время ручного отслеживания. Момент, когда интенсивность репортёра преодолевает определённый порог, отмечает приверженность судьбе. Начало сигнала MUC2-mNeonGreen определяет связь ячейки кубка, тогда как начало сигнала DEFA5-dsRed определяет приверженность ячеек Панета.
- Регулярно сохраняйте проект отслеживания с помощью функции инкрементального сохранения, которая позволяет приостановить и возобновить процесс исправления. Экспортировать данные отслеживания (включая позиции ячеек, родословные деревья и классификации ячеек) для дальнейшего анализа в Python или R.
8. Количественная оценка переходов судьбы клеток и поведения отдельных клеток
- Для количественной оценки переходов между типами клеток определите временную точку, в которой каждая DEFA5-dsRed отрицательная клетка впервые становится DEFA5-dsRed положительной (обязательство Панета) на основе интенсивности репортерного канала в отслеживании. Для каждой отслеживаемой клетки извлекайте флуоресцентную интенсивность как каналов MUC2-mNeonGreen, так и DEFA5-dsRed с течением времени, чтобы отслеживать временную связь между двумя репортерами. Постройте двухканальные трассы интенсивности для отдельных клеток, чтобы определить коррелированную динамику репортеров.
ПРИМЕЧАНИЕ: Одновременный мониторинг обоих каналов в отдельных отслеживаемых клетках крайне важен для различения связывания кубковых клеток (устойчивая активация MUC2-mNeonGreen) от приверженности клеток Панета (временная активация MUC2-mNeonGreen с последующим наступлением DEFA5-dsRed). Одноканальный анализ недостаточен для фиксации этой динамики и может привести к неправильной классификации ранних предшественников клеток Панета как кубковых клеток. - В мозаичных органоидах извлекайте поведенческие метрики каждой клетки для каждой отслеживаемой клетки, включая время жизни клетки (время от последнего деления до экструзии или окончания визуализации), скорость деления и скорость миграции. Если присутствует совместно выраженный интересующий репортер, количественно оцените его интенсивность флуоресценции со временем, чтобы зафиксировать динамические изменения во время конкретных событий, таких как деление, миграция или экструзия. Сопоставьте эти измерения с контекстом локальной окрестности ячейки, сравнивая поведение помеченной ячейки с её непосредственными немаркированными соседями.
ПРИМЕЧАНИЕ: Когда два генотипа смешиваются в одном органоиде, систематические различия в любом из этих показателей между двумя популяциями могут указывать на конкурентное преимущество одного генотипа над другим. - Проводите статистический анализ с использованием соответствующих тестов. Для сравнения времени приверженности судьбы или метрик на клетку, таких как продолжительность жизни, скорость миграции и скорость деления между двумя группами, используйте тест Mann-Whitney U. Для сравнения динамики интенсивности репортеров во времени используйте линейную модель смешанных эффектов для учёта повторных измерений внутри одной клетки.
ПРИМЕЧАНИЕ: Все количественные оценки должны проводиться на основе ручной коррекции данных отслеживания. Некорректированные или частично скорректированные наборы данных вводят систематические ошибки в определении времени судьбы, пространственных присваиваний и расчетах поведенческих метрик. Запланируйте достаточно времени на ручную коррекцию перед переходом к количественной оценке (см. раздел 7).
Результаты
Следуя протоколу, описанному в разделе 4, мозаичные органоиды, содержащие популяции клеток H2B-mCherry- и H2B-iRFP, формируются в течение 48 часов после посева. Успешное формирование мозаики характеризуется либо распределением «соль и перцем», либо чёткими границами между двумя популяциями, в зависимости от степени используемой диссоциации. Распределение «соль и перец» означает случайное одноклеточное смешивание двух популяций, при котором клетки каждой популяции распределяются на уровне одной клетки, без крупных клональных доменов. Определённые границы, напротив, приводят к формированию когерентных участков каждой популяции клеток внутри одного органоида. Степень расселения клеток определяется продолжительностью этапа диссоциации и интенсивностью пипетирования: тщательная одноклеточная диссоциация приводит к мозаике из соляной и перца, а мягкая фрагментация сохраняет мелкие клональные кластеры (рисунок 3A).
Мозаичная маркировка позволяет проводить одноклеточный анализ процессов, которые нельзя разрешить в равномерно маркированных тканях. Когда отдельная клетка, соэкспрессирующая интересующий репортёр (например, флуоресцентный репортер миозина-II), окружена немаркированными соседями, её цитоскелетная динамика во время миграции, деления или экструзии однозначно относится к этой клетке (рисунок 3B). Ядерные репортёры H2B облегчают идентификацию информативных созвездий клеток внутри мозаики, а измерения по ячейке, такие как продолжительность жизни, скорость деления и динамика интенсивности репортеров, можно извлечь из данных отслеживания (см. рисунок 3C). При смешивании двух генотипов эти показатели на клетку можно сравнивать между популяциями для оценки конкурентных различий в приспособленности.
У человеческих кишечных органоидов, несущих MUC2-mNeonGreen и DEFA5-dsRed репортеров судьбы, фиксация судьбы секреторных клеток проявляется как постепенное увеличение флуоресценции репортеров в течение нескольких дней. Органоиды, культивируемые в среде для созревания, были перенесены на пластины с стеклянным дном на седьмой день и получены с помощью конфокальной живой клеточной микроскопии (рисунок 4A). Таймлапс-визуализация выявляет две разные репортерные динамики: кубочные клетки активируют и поддерживают высокую экспрессию MUC2-mNeonGreen на протяжении всего периода визуализации, тогда как клетки Paneth демонстрируют начальную активацию MUC2-mNeonGreen, за которой следует постепенное снижение сигнала и последующей активацией DEFA5-dsRed6 (рисунок 4A). Одноклеточная количественная оценка подтверждает этот последовательный переход на уровне отдельных клеток (рисунок 4B), предполагая, что связь клеток Панета происходит через временное промежуточное состояние, экспрессирующее MUC2, а не напрямую от немаркированного предшественника. Усредненные кривые интенсивности на нескольких отслеживаемых клетках подтверждают, что этот паттерн последователен на уровне популяции, при этом предшественники клеток Панета демонстрируют характерную обратную связь между сигналами MUC2-mNeonGreen и DEFA5-dsRed (рисунок 4C). Вместе эти данные демонстрируют, что система двойного репортёра разрешает различные траектории секреторной судьбы с разрешением одной ячейки.
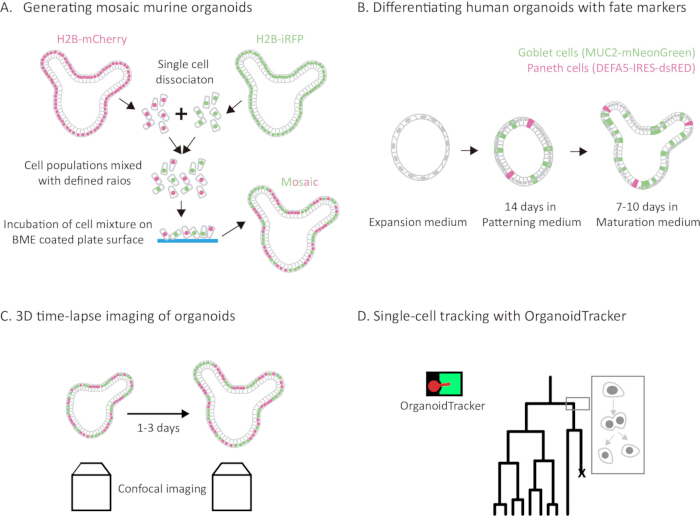
Рисунок 1: Рабочий процесс, интегрирующий конфокальное изображение живых клеток и отслеживание отдельных клеток с двумя дополняющими репортерными стратегиями у органоидов кишечника человека и мыши. (A) Схематический обзор процесса генерации мозаичных органоидов. Мышиные кишечные органоиды, экспрессирующие H2B-mCherry (маджента) или H2B-iRFP (зелёный), диссоциируются в отдельные клетки, смешиваются в определённых пропорциях и посеиваются на пластине, покрытой BME, для 24-часового образования агрегата, после чего повторно встраиваются в BME. (B) Схематический обзор дифференцировки кишечных органоидов человека. Человеческие органоиды, экспрессирующие MUC2-mNeonGreen (кубочные клетки, зелёный) и DEFA5-dsRed (клетки Панета, пурпурные) эндогенные репортеры knock-in, дифференцируются с помощью двухступенчатого протокола. Органоиды сначала культивируются в среде с узором в течение 14 дней, затем в среде созревания в течение 7–10 дней. Во время дифференцировки органоиды переходят от кистозной, сферической морфологии к сильно запороченной структуре, содержащей основные типы кишечных клеток, включая MUC2-mNeon-положительные кубковые клетки и DEFA5-dsКрасноположительные панетовские клетки. (C) 3D-таймлапс-конфокальная визуализация мышиного мозаичного кишечного органоида, экспрессирующего ядерные репортёры. (D) Отслеживание отдельных клеток и реконструкция родословной с помощью полуавтоматического программного инструмента для отслеживания органоидных клеток. Обнаруженные ядра связаны между временными точками для реконструкции траекторий клеток и родословных деревьев, что позволяет количественно оценивать события деления клеток, миграции и экструзии. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
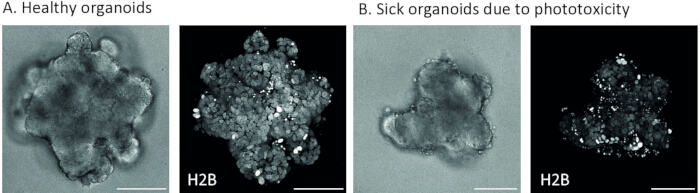
Рисунок 2: Сравнение здоровых и фототоксичных кишечных органоидов человека во время живой конфокальной визуализации. (A) Репрезентативные яркие и флуоресцентные изображения здорового кишечного органоида человека. Здоровые органоиды демонстрируют чёткую кистозную или почечную морфологию без клеточных остатков в окружающей среде. (B) Репрезентативные яркие и флуоресцентные изображения органоида кишечника человека, показывающие фототоксичные повреждения. Признаки фототоксичности включают накопление клеточных остатков в окружающей среде, ядерную конденсацию и остановку деления клеток. Флуоресцентные изображения H2B-mCherry представлены как проекции максимальной интенсивности. Масштабные полосы, 100 мкм. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
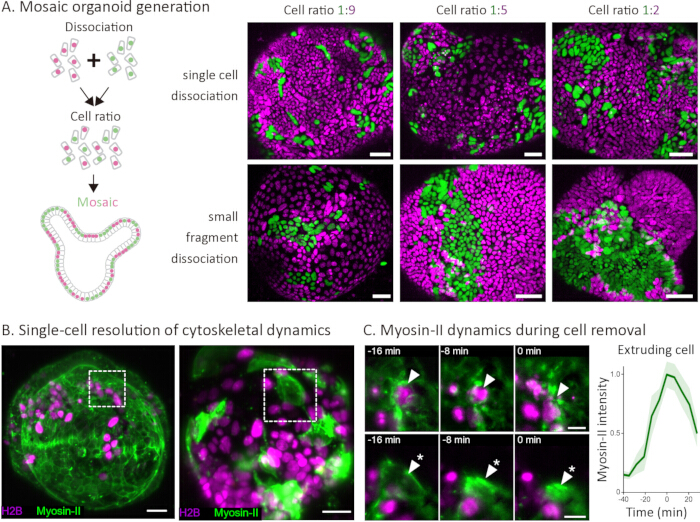
Рисунок 3: Генерация мозаичных органоидов и одноклеточное разрешение динамики цитоскелета в органоидах кишечника мышей. (A) Схема образования мозаичных органоидов посредством диссоциации, смешивания в определённых пропорциях и повторной агрегации. Репрезентативные конфокальные изображения мозаичных органоидов, полученных при соотношении клеток 1:9, 1:5 и 1:2 (H2B-mCherry, зелёный; H2B-iRFP, маджента) с использованием диссоциации одной клетки (верхний ряд) или диссоциации мелких фрагментов (нижний ряд). Диссоциация одной клетки приводит к образу смешивания соли и перца, тогда как диссоциация мелких фрагментов приводит к образованию более крупных клональных пятен. Масштабные полосы, 50 мкм. (B) Конфокальные изображения мозаичных органоидов, в которых плотная (левая) или редкая (справа) популяция экспрессирует Myosin-II-mNeonGreen (зелёный), тогда как другая популяция экспрессирует только H2B-iRFP (маджента). Пунктирные поля обозначают области, увеличенные в (C). Полосы масштаба, 20 мкм. (C) Таймлапс-серия, показывающая экструзию клеток с интервалом в 8 минут, выровненную с моментом удаления клеток (t = 0 мин). Верхний ряд (наконечники стрелок): экструзия немаркированной ячейки, окружённой соседями, экспрессирующими миозин II-mNeonGreen, раскрывающая реакцию соседства. Нижний ряд (звёздочки): экструзия отдельной клетки, экспрессирующей миозин-II-mNeonGreen, окружённой немаркированными соседями, что позволяет однозначно приписать динамику коркового миозина экструзирующейся клетке. Бары масштаба, 10 мкм. Справа: нормализованная интенсивность флуоресценции миозин-II-mNeon со временем для экструдирующих клеток, выровненная с моментом удаления клеток (t = 0 мин). Миозин-II накапливается постепенно в минуты перед экструзией, достигая пика в момент удаления. Затеняемая область указывает на стандартное отклонение. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
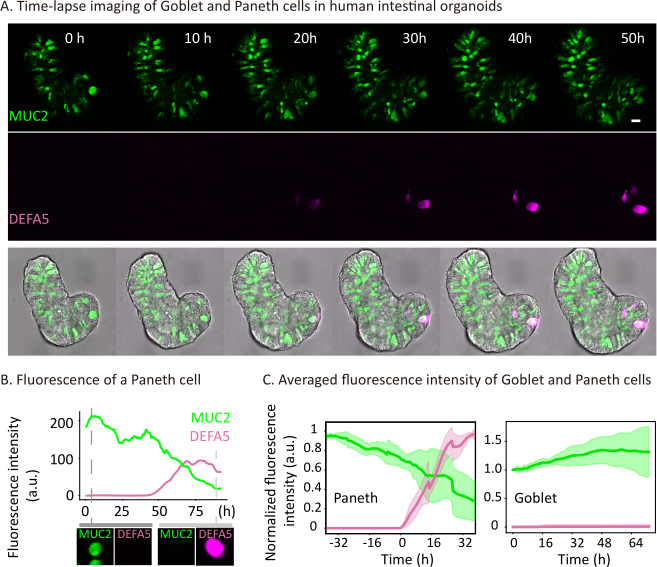
Рисунок 4: Мониторинг переходов судьбы секреторных клеток в органоидах кишечника человека с использованием MUC2-mNeonGreen и DEFA5-dsRed. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
(A) Репрезентативные конфокальные изображения человеческого кишечного органоида, культивируемого в среде созревания и снятых с 7-го дня созревания. MUC2-mNeonNeonGreen (зелёный) отмечает кубковые клетки, а DEFA5-dsRed (пурпурный) — клетки Paneth. Шкала, 20 мкм. (B) Одноклеточная квантификация интенсивности флуоресценции MUC2-mNeonNeonGreen (зелёный) и DEFA5-dsRed (магента) флуоресценции со временем для представительной клетки Панета, с первоначальной активацией MUC2-mNeonGreen, последующей постепенной снижением сигнала и последующим появлением DEFA5-dsRed. Интенсивность флуоресценции показана в произвольных единицах (a.u.). (C) Усреднённые кривые интенсивности флуоресценции для клеток кубка (n = 7 клеток) и прекурсоров клеток Панета (n = 8 клеток), показывающие динамику сигналов MUC2-mNeonGreen (зелёный) и DEFA5-dsRed (пурпурный) сигнал стечением времени 6. Для прекурсоров ячеек Панета время выравнивается до первого появления сигнала DEFA5-dsRed (t = 0 h). Клетки Goblet сохраняют стабильно высокую интенсивность MUC2-mNeonGreen со временем, тогда как предшественники клеток Paneth демонстрируют характерную обратную связь между сигналами MUC2-mNeonGreen и DEFA5-dsRed. Затененные области указывают на стандартное отклонение.
| Компонент | Концентрация запасов | Итоговая концентрация |
| Модифицированный Eagle Medium/F12 от Advanced Dulbecco (Advanced DMEM/F12) | Базовая среда | |
| HEPES | 1M | 10 мМ |
| Глутамакс | 200 мМ | 2mM |
| Дополнение N2 | 100x | 1 раз |
| Дополнение B27 | 50x | 1 раз |
| N-ацетилцистеин | 500 мМ | 1 мМ |
| Пенициллин/стрептомицин | 10000U/мл, 10000 мкг/мл | 100U/мл, 100 мкг/мл |
| EGF рекомбинантных мышей | 50 нг/мл | |
| Рекомбинантная мышица Ноггин | 100 нг/мл | |
| Рекомбинантный человеческий R-спондин 1 | 500 нг/мл |
Таблица 1: Среда роста для органоидов мышиного кишечника.
| Компонент | Концентрация запасов | Итоговая концентрация |
| Модифицированный Eagle Medium/F12 от Advanced Dulbecco (Advanced DMEM/F12) | Базовая среда | |
| HEPES | 1M | 10 мМ |
| Глутамакс | 200 мМ | 2mM |
| Дополнение B27 | 50x | 1 раз |
| Пенициллин/стрептомицин | 10000U/мл, 10000 мкг/мл | 100U/мл, 100 мкг/мл |
| Примоцин | 50 мг/мл | 100 мкг/мл |
| Среда, кондиционируемая R-сподином (U-Protein Express) | 2% | |
| Среда, кондиционируемая ноггином (U-Protein Express) | 2% | |
| N-ацетилцистеин | 500 мМ | 1 мМ |
| Никотинамид | 1M | 10 мМ |
| Человеческий рекомбинантный EGF | 500 мкг/мл | 50 нг/мл |
| A83-01 | 5 мМ | 500 нМ |
| SB202190 (ингибитор p38) | 30 мМ | 3uM |
| Простагландин E2 | 10 мМ | 1мкМ |
| Wnt суррогат | 1000x |
Таблица 2: Среда расширения для органоидов кишечника человека.
| Компонент | Концентрация запасов | Итоговая концентрация |
| Модифицированный Eagle Medium/F12 от Advanced Dulbecco (Advanced DMEM/F12) | Базовая среда | |
| HEPES | 1M | 10 мМ |
| Глутамакс | 200 мМ | 2mM |
| Дополнение B27 | 50x | 1 раз |
| Пенициллин/стрептомицин | 10000U/мл, 10000 мкг/мл | 100U/мл, 100 мкг/мл |
| Примоцин | 50 мг/мл | 100 мкг/мл |
| Среда, кондиционируемая R-сподином (U-Protein Express) | 2% | |
| Среда, кондиционируемая ноггином (U-Protein Express) | 2% | |
| N-ацетилцистеин | 500 мМ | 1 мМ |
| Человеческий рекомбинантный EGF | 500 мкг/мл | 50 нг/мл |
| A83-01 | 5 мМ | 500 нМ |
| Wnt суррогат | 1000x | |
| CHIR99021 | 3mM | 3uM |
| Рекомбинантный человек IL-22 | 10 мкг/мл | 2 нг/мл |
Таблица 3: Среда формирования кишечного органоида человека.
| Компонент | Концентрация запасов | Итоговая концентрация |
| Модифицированный Eagle Medium/F12 от Advanced Dulbecco (Advanced DMEM/F12) | Базовая среда | |
| HEPES | 1M | 10 мМ |
| Глутамакс | 200 мМ | 2mM |
| Дополнение B27 | 50x | 1 раз |
| Пенициллин/стрептомицин | 10000U/мл, 10000U/мл | 100U/мл, 100U/мл |
| Примоцин | 50 мг/мл | 100 мкг/мл |
| Среда, кондиционируемая R-сподином (U-Protein Express) | 2% | |
| Среда, кондиционируемая ноггином (U-Protein Express) | 2% | |
| N-ацетилцистеин | 500 мМ | 1 мМ |
| Человеческий рекомбинантный EGF | 500 мкг/мл | 50 нг/мл |
| A83-01 | 5 мМ | 500 нМ |
| Wnt суррогат | 30000x | |
| Рекомбинантный человек IL-22 | 10 мкг/мл | 2 нг/мл |
Таблица 4: Среда созревания для органоидов кишечника человека.
Обсуждение
Этот протокол обеспечивает пошаговый рабочий процесс для конфокальной визуализации живых клеток и отслеживания отдельных клеток в органоидах кишечника человека и мыши, построенный вокруг двух комплементарных экспериментальных систем: мозаичных органоидов, которые разрешают поведение отдельных клеток в плотном эпителии, и репортёрных органоидов судьбы, экспрессирующих MUC2-mNeonGreen и DEFA5-dsRed для мониторинга переходов секреторных клеток в реальном времени.
По сравнению с методами с фиксированной временной точкой, такими как иммунофлуоресценция или секвенирование одноклеточной РНК, живое изображение фиксирует динамику переходов, а не снимки. По сравнению с отслеживанием родословной на основе Cre, оно обеспечивает временное разрешение для определения индивидуальных решений судьбы. Мозаичный подход добавляет внутренне контролируемые сравнения в одном и том же тканевом контексте, избегая смешивания вариативности между органоидами.
Несколько этапов протокола критически важны для успеха. Для мозаики с распределением «соль и перц» диссоциация органоидов на отдельные клетки должна быть тщательной, но мягкой: неполная диссоциация приводит к образованию крупных клональных участков, а чрезмерная диссоциация снижает жизнеспособность (раздел 4.3). 24-часовой шаг агрегации на плоской поверхности перед повторным встраиванием в BME необходим для правильного смешивания двух популяций; его исключение приводит к плохо интегрированым мозаикам (разделы 4.6–4.8). Управление фототоксичностью во время съёмки требует тщательной калибровки, начиная с консервативных настроек лазера и увеличивая её только при чрезмерном ложноотрицательном результате (раздел 6.8).
Основные ограничения связаны с внутренними ограничениями органоидных систем и живой визуализации. Органоиды лишены стромальных, сосудистых и иммунных компонентов, которые могут влиять на поведение клеток in vivo. Для конфокальной микроскопии глубина изображения ограничена примерно 100 мкм от отклонения, после чего рассеяние света ухудшает качество сигнала и точность отслеживания. Мультифотонная и световая микроскопия может значительно расширить этот диапазон глубины за счёт дополнительной адаптации приборов и протоколов. Полуавтоматический подход к отслеживанию, хотя и значительно эффективнее ручной аннотаций, всё же требует значительного времени коррекции, особенно в плотных тканях (раздел 7.4).
Обе стратегии легко расширяются. Изменяя репортер, коэкспрессируемый с ядерным маркером, можно исследовать различные аспекты поведения отдельных клеток: от кортикального миозина-II для механической динамики до соединённого E-кадгерина для ремоделирования адгезии, кальциевых биосенсоров, таких как tq-Ca-FLITS и ColBD-Twitch, или метаболических биосенсоров, таких как SoNar, для клеточного редокс-состояния NAD+/NADH, позволяющих одновременно считывать идентичность клетки, родословную и физиологическое состояние внутри одногоорганоида 9, 25, 26, 27. Корректировка коэффициента смешивания настраивает анализ: разреженные маркированные клетки позволяют атрибуционировать мембранные сигналы по одной клетке, тогда как редкие немаркированные клетки выявляют ответы по соседству. Стратегия репортёра судьбы распространяется на любые эндогенные локусы, подходящие для CRISPR-HOT или HDR-ориентированного метирования. Объединение обоих подходов в одном органоиде позволило бы одновременно отслеживать связь родословной и одноклеточную динамику.
В более широком смысле, конвейер визуализации и анализа применим к органоидам, полученным из других эпителиальных тканей, включая желудочные, толстой, печеночные и поджелудочной железы. Органоиды, полученные из индуцированных плюрипотентных стволовых клеток (iPSC), являются перспективным расширением, поскольку ядренная маркировка на основе H2B и мозаическая генерация путём смешивания клеток напрямую переносимы, а конвейер может позволить проводить индивидуальные исследования судьбы клеток и конкурентной динамики для каждого пациента. Синтетические эмбриональные модели, такие как гаструлоиды и эмбрииды, полученные из стволовых клеток, также подходят для отслеживания по одной клетке, хотя их более сложная геометрия и более высокая плотность ядра могут потребовать переобучения полуавтоматического программного обеспечения для отслеживания органоидных клеток — модели нейронных сетей и адаптации параметров визуализации. Органоиды мозга представляют дополнительные трудности из-за их больших размеров и оптической плотности, которые ограничивают глубину конфокальной визуализации. Кроме того, органоиды мозга требуют недель или месяцев дифференцировки для проведения значимых экспериментов с визуализацией, что значительно увеличивает сроки экспериментов по сравнению с кишечными органоидами. Некоторые протоколы мозговых органоидов также используют культуру суспензии, а не встраивание BME, что несовместимо с описанным здесь подходом к подготовке образцов и требует адаптации к форматам с матричным или поверхностным прикреплением перед визуализацией. Микроскопия на световых листах, которая обеспечивает меньшую фототоксичность и большую глубину изображения, может быть более подходящей для этихсистем 13. Вместе эти расширения подчёркивают широкий потенциал конвейера в различных 3D-моделевых системах, выходящих за рамки описанных здесь эпителиальных органоидов.
Раскрытие информации
Х.К. является изобретателем патентов, связанных с органоидной технологией. Все остальные авторы не заявляют о конкурирующих интересах.
Благодарности
Это исследование финансируется Министерством образования, культуры и науки правительства Нидерландов через проект NWO Gravitation Material Driven Regeneration (024.003.013 ZWK MDR) и Европейским исследовательским советом через грант ERC Advanced GutHormones (No 101020405)
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| A83-01 | Tocris | 2939 | |
| Accutase Cell Detachment Solution | Innovative Cell Technologies | AT104-500 | |
| Advanced Dulbecco's Modified Eagle Medium/F12 (Advanced DMEM/F12) | Invitrogen | 12634-010 | |
| B27 supplement | Thermo Fisher | 17504044 | |
| Blasticidin | InvivoGen | ant-bl-05 | |
| Cell strainer (40um) | Greiner Bio-one | 542140 | |
| CHIR99021 | Stemgent | 04-0004-base | |
| Confocal microscope | Leica | SP8 | with climate control for temperature and CO2 |
| Cultrex Basement Membrane Extract (BME) | R&D Systems, Bio-Techne | 3533-001-02 | |
| Fiji | open source | open source https://imagej.net/software/fiji/ | |
| Glass bottom plates | CellVis | P24-1.5H-N | |
| Glutamax | Gibco | 35050-061 | |
| HEPES | Gibco | 15630-080 | |
| N2 supplement | Thermo Fisher | 17502048 | |
| N-acetylcysteine | Sigma-Aldrich | A9165 | |
| NEPA electroporation system | NEPAGENE | NEPA21 | |
| Nicotinamide | Sigma-Aldrich | N0636 | |
| NucSpot Live | far-red live-cell nuclear dye | ||
| Noggin conditioned medium (U-Protein Express) | IPA Therapeutics | N002 | |
| OrganoidTracker | open source | open source https://organoidtracker.org/ | |
| p2T-CAG-mT2TP | homemade | protocol to generate the plasmid DOI: 10.1126/science.adr8753 | |
| p2T-H2B-iRFP-IRES-PuroR | homemade | protocol to generate the plasmid DOI: 10.1126/science.adr8753 | |
| p2T-H2B-mCherry-IRES-BlastR | homemade | protocol to generate the plasmid DOI: 10.1126/science.adr8753 | |
| Penicillin/Streptomycin | Gibco | 11548876 | |
| Primocin | InvivoGen | ant-pm-05 | |
| Prostaglandin E2 | Tocris | 2296 | |
| puromycin | InvivoGen | ant-pr | |
| Recombinant human EGF | Peprotech | AF-100-15 | |
| Recombinant Human IL-22 | Peprotech | 200-22 | |
| Recombinant human R-spondin 1 | Thermo Fisher | 120-38-5UG | |
| Recombinant murine EGF | Thermo Fisher | 315-09-500UG | |
| Recombinant murine Noggin | Thermo Fisher | 250-38-100UG | |
| R-spondin conditioned medium (U-Protein Express) | IPA Therapeutics | R001 | |
| SiR-DNA | far-red live-cell DNA dye | ||
| SB202190 (p38 inhibitor) | Sigma-Aldrich | S7076 | |
| Suspension plate for organoid culture | Greiner | 665102 | |
| Trypan blue | Gibco | 15250061 | |
| TrypLE | Gibco | 12605-010 | |
| Wnt surrogate | U-Protein Express | custom order | |
| Wnt3A conditioned medium | homemade | The production of Wnt3A conditioned medium can be found here: https://doi.org/10.1002/cpim.106 | |
| Y-27632 dihydrochloride | Abmole Bioscience | M1817 |
Перепечатки и разрешения
Эта статья была опубликована
Видео скоро будет доступно