В данном исследовании изучается повреждение слизистой оболочки желудка, связанное с применением клопидогрела у крыс и в клетках эпителия желудка, с акцентом на его связь с молекулярными изменениями, вызванными стрессом эндоплазматического ретикулума, апоптозом и системным воспалением.
Исследовательская статья
Повреждение слизистой оболочки желудка, вызванное клопидогрелом и связанное со стрессом эндоплазматического ретикулума у крыс
* These authors contributed equally
В этой статье
Краткое содержание
Аннотация
Клопидогрел широко используется в качестве антиагрегантного средства для профилактики и лечения артериальных тромбозов, однако его клиническое применение может быть ограничено побочными эффектами со стороны желудочно-кишечного тракта, включая повреждение слизистой оболочки желудка. Поскольку выживаемость эпителиальных клеток имеет решающее значение для поддержания целостности слизистой оболочки желудка, мы выдвинули гипотезу, что вызванное клопидогрелом повреждение эпителия желудка будет сопровождаться изменениями маркеров стресса ЭР и апоптоза. Для проверки этой гипотезы клетки эпителия желудка человека линии GES-1 обрабатывали различными концентрациями клопидогрела, а жизнеспособность клеток, апоптоз, распределение по фазам клеточного цикла и молекулярные изменения оценивали с помощью теста Cell Counting Kit-8 (CCK-8), проточной цитометрии, количественной полимеразной цепной реакции в реальном времени (qRT-PCR) и вестерн-блоттинга. Параллельно крысам линии Sprague-Dawley вводили клопидогрел зондом для создания модели повреждения слизистой оболочки желудка in vivo. Патологические изменения слизистой оболочки желудка оценивали путем окрашивания гематоксилином и эозином, а уровни воспалительных цитокинов в сыворотке крови измеряли с помощью иммуноферментного анализа (ELISA). Клопидогрел снижал жизнеспособность клеток GES-1, стимулировал апоптоз и изменял прогрессию клеточного цикла. У крыс клопидогрел вызывал эрозию слизистой оболочки желудка, отек и инфильтрацию воспалительными клетками, что сопровождалось повышением уровней интерлейкина (IL)-1β, IL-6 и фактора некроза опухоли-α (TNF-α) в сыворотке крови. Клопидогрел также повышал экспрессию маркеров стресса ЭР — гомологичного белка C/EBP (CHOP) и активирующего фактора транскрипции 5 (ATF5), увеличивал экспрессию белка Bax (Bcl-2-associated X protein), снижал экспрессию Bcl-2 (B-cell lymphoma 2) и повышал соотношение Bax/Bcl-2 как в тканях желудка, так и в клетках GES-1. Эти результаты позволяют предположить, что вызванное клопидогрелом повреждение слизистой оболочки желудка связано с повышенной экспрессией маркеров стресса ЭР и нарушением баланса Bax/Bcl-2, хотя прямая причинно-следственная связь между стрессом ЭР и митохондриальным путем апоптоза в данном исследовании установлена не была.
Введение
Врожденная и адаптивная иммунные системы слизистой оболочки желудка, состоящие из эпителиальных клеток, иммунных клеток и сигнальных молекул, взаимодействуют для поддержания целостности слизистой и служат критическим физиологическим барьером против вредных факторов1,2. Эта защитная функция имеет решающее значение для гомеостаза желудочно-кишечного тракта, и ее нарушение может способствовать развитию заболеваний желудка, включая гастрит3. В клинической практике лекарственно-индуцированное повреждение слизистой оболочки желудка является частым осложнением, при этом нестероидные противовоспалительные препараты и антиагреганты относятся к числу наиболее частых причин4. Целостность слизистой оболочки желудка зависит от динамического баланса между пролиферацией и апоптозом клеток5. Хроническое воздействие факторов окружающей среды, включая лекарственные средства, может нарушить этот баланс, стимулировать апоптоз и привести к повреждению слизистой оболочки6,7. Эндоплазматический ретикулум играет центральную роль в поддержании внутриклеточного гомеостаза. В условиях клеточного стресса накопление неправильно свернутых или несвернутых белков активирует ответ на несвернутые белки, включая сигнальный путь PERK/eIF2α/ATF4/CHOP, который может стимулировать апоптоз и изменять экспрессию белков семейства B-cell lymphoma 2 (Bcl-2)8. ATF5 также участвует в реакциях на митохондриальный стресс и в перекрестном взаимодействии между митохондриальной дисфункцией и стрессом эндоплазматического ретикулума9. Современные клинические данные свидетельствуют о том, что продолжающаяся антиагрегантная терапия, включая клопидогрел, связана с прогрессирующим повреждением слизистой оболочки желудка и тонкого кишечника10.
Клопидогрел представляет собой широко назначаемый антиагрегантный препарат, который требует метаболической активации перед необратимым связыванием с P2Y12-рецепторами тромбоцитов, тем самым ингибируя опосредованную аденозиндифосфатом агрегацию тромбоцитов и оказывая антитромботический эффект11. Эта биоактивация происходит преимущественно с помощью печеночных ферментов цитохрома P450. Следовательно, прямое воздействие исходного соединения клопидогрела на культивируемые эпителиальные клетки желудка не воспроизводит полный метаболический и фармакокинетический контекст терапии клопидогрелом in vivo. Однако имеющиеся данные свидетельствуют о том, что лечение клопидогрелом может быть связано с рецидивирующими язвами желудка и желудочно-кишечными кровотечениями, что подчеркивает важность баланса между антитромботической эффективностью и безопасностью для желудочно-кишечного тракта12,13,14. Несмотря на сообщения об этих нежелательных эффектах, механизмы, лежащие в основе вызванного клопидогрелом повреждения слизистой оболочки желудка, остаются изученными не полностью, что ограничивает разработку целевых профилактических и терапевтических стратегий. В настоящем исследовании мы изучили воздействие клопидогрела на слизистую оболочку желудка с использованием крыс линии Sprague–Dawley и клеток GES-1. Крысы получали клопидогрел путем зондирования, а дополнительные эксперименты in vitro проводились с использованием клеток GES-1. Для выяснения того, связано ли вызванное клопидогрелом повреждение слизистой оболочки желудка со стрессом эндоплазматического ретикулума и апоптозом, были проведены гистопатологический, молекулярный и клеточный анализы. Соответственно, настоящее исследование было сосредоточено на характеристике молекулярных изменений, связанных с поражением желудка при воздействии клопидогрела, а не на установлении причинно-следственного сигнального пути. Наши результаты дают дополнительные сведения о молекулярных изменениях, связанных с повреждением слизистой оболочки желудка, вызванным клопидогрелом, и могут способствовать будущим исследованиям, направленным на предотвращение и купирование этих нежелательных эффектов.
Протокол
Все экспериментальные процедуры с животными были рассмотрены и одобрены Лабораторией этического контроля за экспериментами на животных компании Dr. Can Biotechnology (Zhejiang) Co., Ltd. Исследование проводилось в соответствии с институциональными рекомендациями по уходу и использованию лабораторных животных. Номер одобрения комитета по этике работы с животными — DRK-20251015210.
Животные и клеточные линии
Этическое одобрение охватывало использование 20 крыс линии Sprague–Dawley класса SPF. В настоящее исследование было включено в общей сложности 12 самцов крыс линии Sprague–Dawley класса SPF в возрасте 6–8 недель и весом 280–300 g на начало эксперимента. Крысы были приобретены в Hangzhou Ziyuan Laboratory Animal Technology Co., Ltd. (Ханчжоу, Китай; лицензия на производство № SCXK [Zhejiang] 2024-0004) и рандомизированы в контрольную группу и группу, получавшую клопидогрел, по шесть крыс в каждой группе. Животных содержали в контролируемой среде при температуре около 22°C с 12-часовым циклом свет/темнота и свободным доступом к стандартному корму и стерильной питьевой воде. Всем крысам была предоставлена одна неделя для акклиматизации перед началом эксперимента. Гидросульфат клопидогрела суспендировали в 0,5% карбоксиметилцеллюлозе натрия (CMC-Na) в концентрации 0,781 mg/mL. Крысы в группе клопидогрела получали гидросульфат клопидогрела путем перорального зондирования в объеме 10 mL/kg массы тела (что эквивалентно 1 mL/100 g массы тела и дозе 7,81 mg/kg) один раз в сутки в течение 3 последовательных дней. Крысы в контрольной группе получали равный объем 0,5% CMC-Na. Доза и 3-дневная продолжительность лечения были выбраны на основании ранее описанной краткосрочной модели перорального введения клопидогрела крысам. После последнего зондирования на 3-й день корм withholding был прекращен на 12 h, в то время как вода предоставлялась ad libitum. Крыс анестезировали в индукционной камере 3% изофлураном в кислороде; анестезию поддерживали 1,5%–2,0% изофлураном через носовую маску. Достаточная глубина анестезии подтверждалась отсутствием роговичного и подошвенного рефлексов. Кровь собирали методом терминальной пункции сердца при глубокой анестезии. При сохранении глубокой анестезии крыс подвергали эвтаназии путем обескровливания с последующей билатеральной торакотомией. Смерть подтверждали отсутствием спонтанного дыхания и сердечной деятельности в течение не менее 5 min, а также отсутствием роговичного и подошвенного рефлексов. Затем желудок быстро извлекали, вскрывали по большой кривизне и осторожно промывали ледяным физиологическим раствором.
Линия эпителиальных клеток слизистой оболочки желудка человека GES-1 была получена от iCell Bioscience Inc. (Шанхай, Китай; Cat. No. iCell-h062) и прошла аутентификацию методом анализа коротких тандемных повторов (STR), проведенную поставщиком. Клетки культивировали в среде RPMI-1640 с добавлением 10% фетальной бычьей сыворотки (FBS) и 1% пенициллина-стрептомицина в увлажненном инкубаторе при 37°C и 5% CO₂. В экспериментах использовали клетки ранних пассажей (от 3 до 10). При достижении конфлюэнтности примерно 80%–90% клетки пересевали в соотношении 1:3. Для последующих экспериментов использовали клетки в логарифмической фазе роста. Для анализа CCK-8 клетки высевали в 96-луночные планшеты с плотностью 6 × 10³ клеток/лунку. Для анализа апоптоза и клеточного цикла клетки высевали в 6-луночные планшеты с плотностью примерно 5 × 10⁵ клеток/лунку и оставляли для адгезии перед воздействием клопидогрела.
Реактивы и растворы
Для экспериментов на животных и клетках использовали гидросульфат клопидогрела (Cat. No. C874834; чистота ≥ 99%). Стоковый раствор клопидогрела готовили путем растворения 100 mg порошка клопидогрела в диметилсульфоксиде (DMSO) для получения стокового раствора с концентрацией 1 M. Перед использованием стоковый раствор дополнительно разбавляли до необходимых рабочих концентраций. Стоковый раствор 1 M подвергали серийному разведению в DMSO для приготовления 1000× рабочих растворов с концентрациями 10, 100, 200, 400, 600, 800 и 1000 mM. Непосредственно перед обработкой каждый 1000× рабочий раствор добавляли в полную культуральную среду в соотношении 1:1000 (v/v) для получения конечных концентраций клопидогрела 0,01, 0,1, 0,2, 0,4, 0,6, 0,8 и 1,0 mM соответственно. Группа контроля (плацебо) получала равный объем DMSO без клопидогрела. Таким образом, конечная концентрация DMSO во всех группах поддерживалась на уровне 0,1% (v/v). Культивируемые клетки GES-1 не воспроизводят биоактивацию клопидогрела, опосредованную печеночным цитохромом P450. Поэтому прямое воздействие клопидогрела использовали в качестве исследовательской модели воздействия исходного соединения. Диапазон концентраций был выбран для характеристики концентрационно-зависимых клеточных ответов в данных экспериментальных условиях и не должен интерпретироваться как эквивалентный клинически достижимым концентрациям в плазме или тканях желудка.
Субкультивирование клеток
Полную среду готовили путем добавления в базовую культуральную среду FBS и пенициллина-стрептомицина. При достижении клетками конфлюэнтности примерно 80% культуральную среду удаляли, а клетки трижды промывали стерильным фосфатно-солевым буфером (PBS). Затем клетки обрабатывали раствором трипсина и этилендиаминтетрауксусной кислоты (EDTA) в течение примерно 1–2 min. После частичного открепления клеток добавляли полную среду для остановки процесса дигестии. Суспензию клеток центрифугировали при 1,200 × g в течение 3 min. После удаления супернатанта осадок клеток ресуспендировали в 1–2 mL полной среды и высевали в новые культуральные чашки в соответствии с требованиями эксперимента.
Анализ жизнеспособности клеток с помощью CCK-8
Клетки GES-1 в логарифмической фазе роста высевали в 96-луночные планшеты в концентрации 6 × 10³ клеток/лунку и культивировали в течение ночи для обеспечения адгезии клеток. После прикрепления клетки обрабатывали клопидогрелом в различных концентрациях (0, 0,01, 0,1, 0,2, 0,4, 0,6, 0,8 и 1,0 mM) в течение 24 ч. Контрольная группа получала ту же конечную концентрацию растворителя. После обработки в каждую лунку добавляли раствор CCK-8 и инкубировали при 37°C согласно инструкции к набору. Оптическую плотность при 450 nm измеряли с помощью микропланшетного ридера. Жизнеспособность клеток рассчитывали как процент от контрольной группы. На основании результатов зависимости «концентрация — ответ» для последующего анализа апоптоза, клеточного цикла, qPCR и вестерн-блоттинга была выбрана обработка клопидогрелом в концентрации 0,1 mM в течение 24 ч.
Проточная цитометрия
Клетки GES-1 высевали в 6-луночные планшеты и обрабатывали 0.1 mM клопидогрелом в течение 24 ч после прикрепления клеток. После обработки собирали как плавающие, так и адгезивные клетки. Адгезивные клетки обрабатывали трипсином без EDTA, дважды промывали холодным PBS и ресуспендировали в связывающем буфере. Клетки окрашивали с использованием набора для определения апоптоза Annexin V-FITC/PI Apoptosis Kit согласно инструкциям производителя. После инкубации при комнатной температуре в темноте апоптотические клетки детектировали с помощью проточного цитометра RaiseCyte 2L6C. Сбор данных осуществляли с помощью программного обеспечения RaiseFlower, анализ проводили в программе FlowJo (версия 10.8.1). Популяции клеток на стадиях раннего апоптоза, позднего апоптоза и общее количество апоптотических клеток количественно определяли с помощью программного обеспечения FlowJo.
Проточная цитометрический анализ распределения фаз клеточного цикла
Клетки GES-1 высевали в 6-луночные планшеты и обрабатывали клопидогрелом в концентрации 0.1 mM в течение 24 h. После обработки клетки собирали, промывали PBS и фиксировали в предварительно охлажденном 70% этаноле при 4°C. Затем фиксированные клетки промывали для удаления остаточного этанола и инкубировали с раствором для окрашивания РНказой А и пропидиййодидом в темноте согласно инструкциям производителя. Распределение фаз клеточного цикла анализировали с помощью проточного цитометра. Сбор данных осуществляли с использованием специализированного программного обеспечения для сбора данных, а анализ проводили в программе FlowJo. Распределения фаз клеточного цикла аппроксимировали по модели Уотсона, после чего рассчитывали процент клеток в фазах G0/G1, S и G2/M.
Количественная полимеразная цепная реакция в реальном времени (кПЦР)
Общую РНК экстрагировали из клеток GES-1 и образцов тканей желудка крысы с помощью набора для экстракции РНК согласно инструкции к набору. Для образцов тканей ткани слизистой оболочки желудка быстро собирали, гомогенизировали в условиях низких температур и подвергали экстракции РНК. Концентрацию и чистоту РНК определяли по значению абсорбции при 260 и 280 nm. Равные количества РНК подвергали обратной транскрипции в комплементарную ДНК (кДНК) с использованием набора для обратной транскрипции с удалением геномной ДНК. Количественную ПЦР в реальном времени проводили с использованием мастер-микса для ПЦР на основе SYBR Green. Каждую реакцию проводили в общем объеме 20 µL, содержащем 10 µL 2× мастер-микса, 1 µL кДНК, 0,4 µL прямого праймера, 0,4 µL обратного праймера и 8,2 µL безнуклеазной ddH₂O. Режим термоциклирования был следующим: начальная денатурация при 95°C в течение 10 min, затем 40 циклов денатурации при 95°C в течение 10 s, отжига при 60°C в течение 30 s и элонгации при 72°C в течение 30 s. Определяли уровни экспрессии CHOP, ATF5, Bcl-2 и Bax. В качестве внутреннего референсного гена использовали GAPDH. Относительную экспрессию генов рассчитывали методом 2−ΔΔCt. Последовательности праймеров приведены в Дополнительной таблице 1.
Вестерн-блоттинг
Общий белок экстрагировали из клеток GES-1 и образцов тканей желудка крысы. Для клеточных образцов обработанные клетки GES-1 промывали холодным PBS и лизировали с использованием буфера для радиоиммунопреципитационного анализа (RIPA), содержащего ингибитор протеаз. Для образцов тканей ткани слизистой оболочки желудка гомогенизировали в буфере RIPA в условиях низких температур, затем центрифугировали для сбора супернатанта. Концентрации белка определяли с помощью BCA-анализа белка. Всего 20 µg белка на дорожку разделяли методом электрофореза в полиакриламидном геле с додецилсульфатом натрия (SDS-PAGE) и переносили на мембраны из поливинилиденфторида (PVDF). После блокировки бычьим сывороточным альбумином (BSA) мембраны инкубировали в течение ночи при 4°C с первичными антителами к CHOP (1:1000), ATF5 (1:1000), Bcl-2 (1:1000), Bax (1:1000) и β-actin (1:5000). После промывки мембраны инкубировали с соответствующими вторичными антителами, конъюгированными с пероксидазой хрена (1:10000). Полосы белков визуализировали с помощью реагента для усиленной хемилюминесценции и фиксировали с помощью системы хемилюминесцентной визуализации. Интенсивность полос количественно оценивали с помощью программного обеспечения для анализа изображений и нормализовали по β-actin.
Гистопатологическая оценка
Образцы тканей желудка крыс линии Sprague–Dawley были собраны после введения клопидогрела и зафиксированы в 10% нейтральном буферизованном формалине. Образцы подвергли дегидратации, просветлению, заливке в парафин и нарезали на срезы толщиной 4 µm. Парафиновые срезы окрашивали гематоксилином и эозином. Гистопатологические изменения оценивали качественно с помощью светового микроскопа, основываясь на морфологии слизистой оболочки, целостности эпителия, наличии отека и инфильтрации воспалительными клетками. Были получены репрезентативные изображения. Система гистологического скоринга не применялась.
Иммуногистохимический анализ
Срезы тканей желудка, залитых парафином, депарафинизировали в ксилоле и регидратировали через серию спиртов decreasing concentration. Термическую демаскировку антигенов проводили в цитратном буфере. Эндогенную пероксидазную активность блокировали 3% раствором перекиси водорода в течение 10 мин, а неспецифическое связывание блокировали нормальной сывороткой козы в течение 30 мин при комнатной температуре. Затем срезы инкубировали в течение ночи при 4°C с первичными антителами к CHOP, ATF5, Bcl-2 и Bax. После промывки PBS срезы инкубировали с соответствующими вторичными антителами, конъюгированными с пероксидазой хрена. Иммунореактивные сигналы визуализировали с помощью хромогенного раствора DAB с последующим докрашиванием гематоксилином. Срезы дегидратировали, просветляли, заключали вmounting medium и исследовали под световым микроскопом. Выполняли захват репрезентативных изображений, а площадь положительного окрашивания количественно оценивали с помощью программного обеспечения для анализа изображений.
Иммунофлуоресцентное окрашивание
Срезы тканей желудка, залитых парафином, подвергли депарафинизации, регидратации и термически индуцированному восстановлению антигенов в цитратном буфере. После блокировки нормальной сывороткой козы в течение 30 мин срезы инкубировали в течение ночи при 4°C с первичными антителами к CHOP (1:50), ATF5 (1:100), Bcl-2 (1:50) и Bax (1:200). После промывки PBS срезы инкубировали с соответствующими флуоресцентными вторичными антителами (1:500) в течение 1 ч при комнатной температуре в темноте, а затем окрашивали DAPI для контрастирования ядер. Изображения были получены с помощью флуоресцентного микроскопа при увеличении ×200. Три случайно выбранных неперекрывающихся поля от каждого животного анализировали с помощью Image-Pro Plus 6.0, а интенсивность флуоресценции выражали как IOD/Area. В анализ были включены три животных из каждой группы.
Иммуноферментный анализ (ИФА)
Образцы крови собирали у крыс линии Sprague–Dawley после проведения терапии и оставляли для свертывания при комнатной температуре. Сыворотку отделяли путем центрифугирования и хранили при −80°C до проведения анализа. Уровни IL-1β, IL-6 и TNF-α в сыворотке определяли с помощью наборов для ИФА в соответствии с инструкциями к наборам. Оптическую плотность измеряли на микропланшетном ридере, а концентрации цитокинов рассчитывали по стандартным кривым.
Статистический анализ
Статистический анализ проводили с использованием программного обеспечения для статистического анализа. Данные представлены в виде среднего значения ± SD. Нормальность распределения и однородность дисперсии оценивали с помощью теста Шапиро–Уилка и критерия Левеней соответственно. Сравнение двух групп проводили с использованием t-критерия Стьюдента t-тест. Сравнение нескольких групп проводили с помощью однофакторного дисперсионного анализа с последующим апостериорным тестом Даннетта. Значение P < Значение 0,05 считалось статистически значимым. Все эксперименты с клетками проводились с использованием как минимум трех независимых биологических повторов.
Результаты
Клопидогрел снижает жизнеспособность клеток GES-1 и увеличивает апоптоз in vitro
Сначала мы исследовали, влияет ли клопидогрел на жизнеспособность и апоптоз клеток GES-1. Анализ с помощью CCK-8 показал, что воздействие клопидогрела значительно снижало жизнеспособность клеток GES-1 (Рисунок 1A,B), что свидетельствует о снижении жизнеспособности клеток. Исходя из общего снижения жизнеспособности клеток во всем протестированном диапазоне концентраций, для всех последующих экспериментов с клетками была выбрана концентрация клопидогрела 0,1 mM в течение 24 ч. Впоследствии была проведена проточная цитометрия для анализа апоптоза и распределения клеток по фазам клеточного цикла (Рисунок 1C–F). Проточный цитометрический анализ показал увеличение доли клеток в S-фазе, сопровождавшееся сокращением популяции в G0/G1-фазе и отсутствием явного увеличения популяции в G2/M-фазе, что указывает на накопление клеток в S-фазе, а не на остановку в G2/M-фазе. Результаты продемонстрировали, что клопидогрел значительно усиливал апоптоз и изменял распределение клеток по фазам клеточного цикла в клетках GES-1 по сравнению с контрольной группой. В совокупности эти данные указывают на то, что клопидогрел снижает жизнеспособность клеток GES-1 и связан с усилением апоптоза и изменениями в прогрессии клеточного цикла. Эти результаты демонстрируют цитотоксические реакции после прямого воздействия исходного соединения клопидогрела при выбранных экспериментальных условиях. Они не устанавливают, возникают ли подобные эффекты при клинически значимых уровнях воздействия или опосрелованы ли наблюдаемые реакции активным метаболитом клопидогрела.
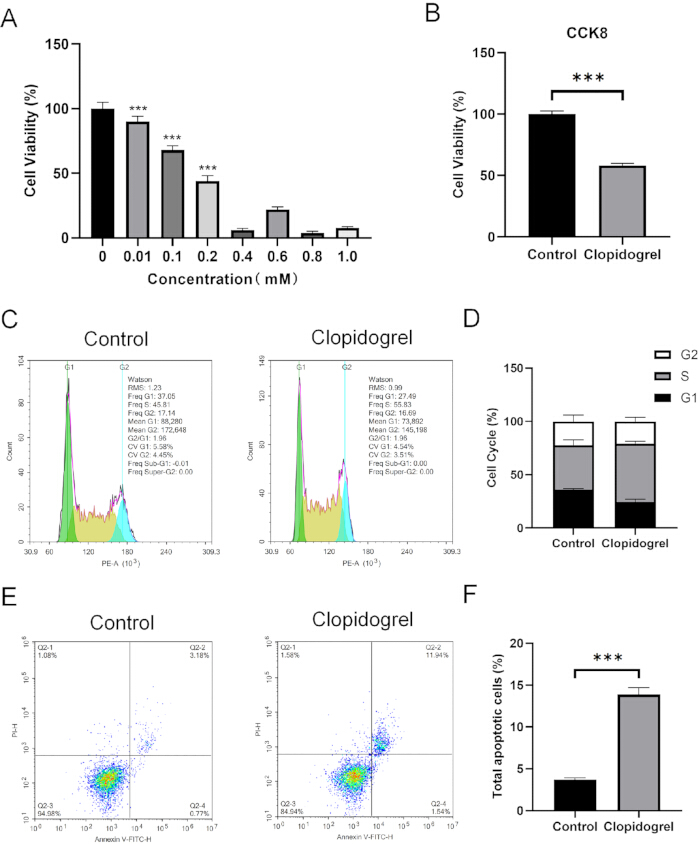
Рисунок 1Клопидогрел снижает жизнеспособность клеток GES-1 и усиливает апоптоз. (AЖизнеспособность клеток линии эпителия желудка человека GES-1 оценивали с помощью анализа CCK-8 после воздействия возрастающих концентраций клопидогрела (0–1,0 мМ) в течение 24 ч.B) Количественное сравнение жизнеспособности клеток в контрольной группе и в группе, подвергнутой воздействию клопидогрела в концентрации 0,1 мМ в течение 24 ч. (С) Репрезентативные профили клеточного цикла, полученные методом проточной цитометрии и проанализированные с использованием модели Уотсона. (D) Количественное определение процента клеток в фазах G0/G1, S и G2/M. Обработка клопидогрелом привела к увеличению популяции клеток в S-фазе без явного увеличения популяции в фазе G2/M. (Е) Репрезентативные диаграммы рассеяния (dot plots) проточной цитофлуориметрии, отображающие апоптоз после окрашивания аннексином V, конъюгированным с флуоресцеинизотиоцианатом (FITC), и пропидийиодидом (PI). (F) Количественное определение общей популяции апоптотических клеток. Все эксперименты с клетками проводились с использованием трех независимых биологических повторностей (n = 3). Данные представлены как среднее значение ± стандартное отклонение (SD). Статистическая значимость определялась путем сравнения с контрольной группой. ***P < 0.001. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
Повреждение слизистой оболочки желудка, индуцированное клопидогрелом, связано с системным воспалением
Крыс линии Sprague–Dawley случайным образом разделили на две группы (n = 6 в каждой группе): контрольную группу и группу, получавшую клопидогрель путем ежедневного зондового введения. Доза клопидогреля и 3-дневный режим лечения были выбраны на основе ранее описанной модели повреждения слизистой оболочки желудка у крыс, индуцированного клопидогрелем16. Через 3 дня ткани желудка были собраны для окрашивания гематоксилином и эозином (H&E). Гистопатологическое исследование выявило эрозии слизистой оболочки желудка, отек и инфильтрацию воспалительными клетками в группе, получавшей клопидогрель, по сравнению с контрольной группой (Рисунок 2A). Уровни провоспалительных цитокинов в сыворотке крови измеряли методом ELISA. В группе, получавшей клопидогрель, наблюдались значительно более высокие уровни интерлейкина (IL)-1β, IL-6 и фактора некроза опухоли-α (TNF-α) в сыворотке крови, чем в контрольной группе (Рисунок 2B–D). Эти результаты указывают на то, что лечение клопидогрелем связано с повреждением слизистой оболочки желудка и усилением системных воспалительных реакций15,16.
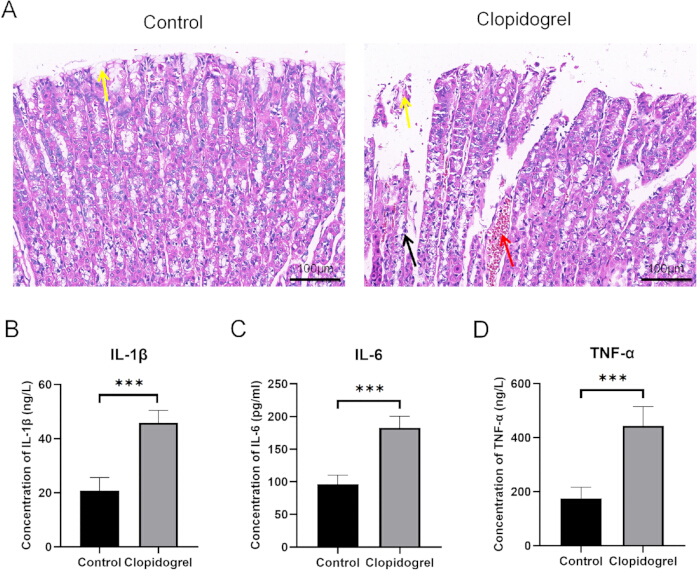
Рисунок 2. Клопидогрель вызывает повреждение слизистой оболочки желудка и повышает уровень циркулирующих воспалительных цитокинов у крыс. (A) Репрезентативные срезы слизистой оболочки желудка крыс линии Sprague–Dawley контрольной группы и группы, получавшей клопидогрель, окрашенные гематоксилином и эозином (H&E). Гистологическое исследование демонстрирует сохранную архитектуру слизистой оболочки желудка в контрольной группе и морфологические изменения в группе, получавшей клопидогрель. Желтые стрелки указывают на эпителиальные клетки слизистой оболочки желудка, красные стрелки — на очаговое полнокровие в слизистом слое, а черные стрелки — на умеренную инфильтрацию воспалительными клетками. Исходное увеличение ×200; масштабный отрезок = 100 µm. n = 6 животных в группе. (B–D) Концентрации интерлейкина (IL)-1β, IL-6 и фактора некроза опухоли-α (TNF-α) в сыворотке крови измеряли с помощью иммуноферментного анализа (ELISA). Данные представлены как среднее ± SD; n = 6 животных в группе. ***P < 0.001 по сравнению с контрольной группой. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
Клопидогрел изменяет маркеры стресса ЭР и апоптоза в слизистой оболочке желудка крыс
Для изучения молекулярных изменений, связанных с повреждением слизистой оболочки желудка, вызванным клопидогрелом, было проведено иммуногистохимическое окрашивание срезов тканей желудка. Репрезентативные изображения показали более интенсивное окрашивание на CHOP, ATF5 и Bax в группе, получавшей клопидогрел, по сравнению с контрольной группой, в то время как окрашивание на Bcl-2 было более слабым (Рисунок 3A). Количественный анализ отношения IOD к площади продемонстрировал значительное увеличение интенсивности окрашивания CHOP, ATF5 и Bax после введения клопидогрела (Рисунок 3B, C, E). Окрашивание на Bcl-2 имело тенденцию к снижению, хотя эта разница не достигла статистической значимости (Рисунок 3D). Данные результаты указывают на то, что лечение клопидогрелом связано с изменением экспрессии белков, связанных со стрессом и апоптозом, в слизистой оболочке желудка крыс. Иммунофлуоресцентный анализ выявил более сильные сигналы CHOP и ATF5 в тканях слизистой оболочки желудка группы, получавшей клопидогрел. Количественный анализ подтвердил значительное увеличение уровней CHOP (Рисунки 4A и 5A) и ATF5 (Рисунки 4B и 5B), в то время как для Bcl-2 (Рисунки 4C и 5C) и Bax (Рисунки 4D и 5D) наблюдались тенденции к снижению и повышению соответственно, не достигшие статистической значимости. В совокупности эти данные свидетельствуют о том, что применение клопидогрела сопровождается изменением экспрессии маркеров стресса эндоплазматического ретикулума и апоптоза в слизистой оболочке желудка крыс.
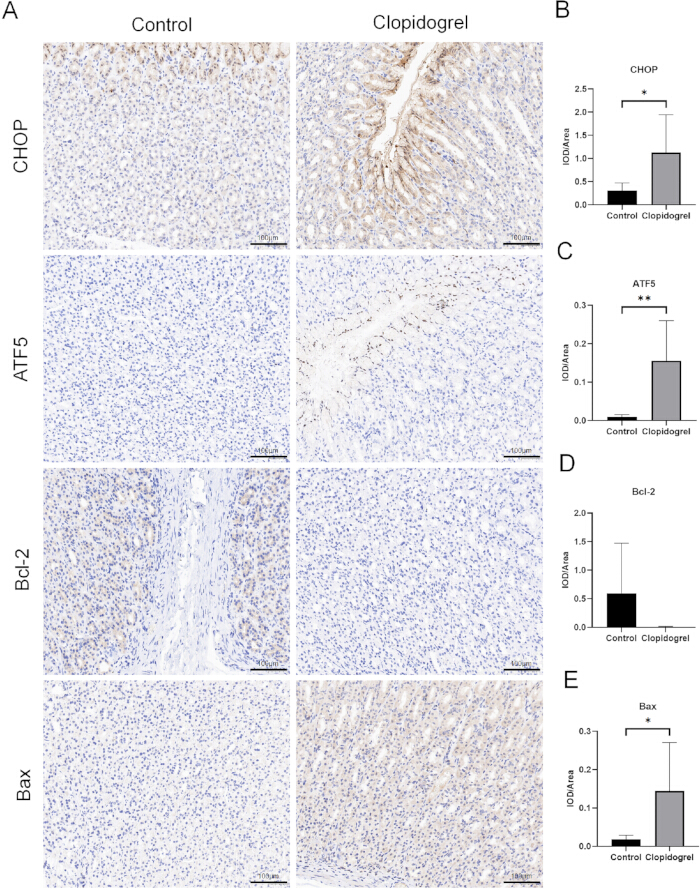
Рисунок 3. Иммуногистохимическое определение белков, связанных со стрессом эндоплазматического ретикулума и апоптозом, в тканях желудка. (A) Репрезентативные изображения иммуногистохимического окрашивания белков CHOP (C/EBP homologous protein), ATF5 (activating transcription factor 5), Bcl-2 (B-cell lymphoma 2) и Bax (Bcl-2-associated X protein) в тканях слизистой оболочки желудка крыс линии Sprague–Dawley из контрольной группы и группы, получавшей клопидогрел. Коричневое окрашивание указывает на положительную иммунореактивность, ядра докрашены гематоксилином. Представленные изображения являются типичными для всех проанализированных образцов; в каждую группу включено по три животных. Оригинальное увеличение, ×200; масштабный отрезок = 100 µm. (B–E) Количественный анализ интегральной оптической плотности на единицу площади (IOD/Area) для CHOP, ATF5, Bcl-2 и Bax соответственно. Данные представлены как среднее значение ± SD. *P < 0.05 и **P < 0.01 по сравнению с контрольной группой. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
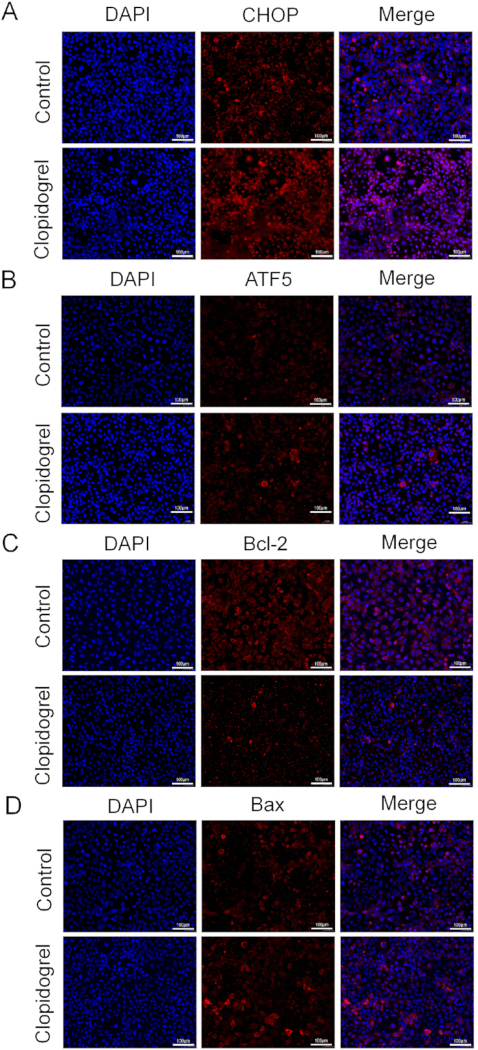
Рисунок 4Иммунофлуоресцентное определение белков, связанных со стрессом эндоплазматического ретикулума и апоптозом, в тканях желудка. Репрезентативные изображения иммунофлуоресценции, демонстрирующие локализацию C/EBP-гомологичного белка (CHOP), активирующего фактора транскрипции 5 (ATF5), белка B-cell lymphoma 2 (Bcl-2) и Bcl-2-ассоциированного X-белка (Bax) в тканях слизистой оболочки желудка крыс линии Sprague–Dawley из контрольной группы и группы, получавшей клопидогрел. Ядра были контрастированы 4′,6-диамидино-2-фенилиндолом (DAPI) (синий цвет), положительное иммунофлуоресцентное окрашивание показано красным цветом. Комбинированные изображения представлены в правом столбце.A) CHOP. (B) ATF5. (СBcl-2.D) Bax. Исходное увеличение, ×200; масштабный отрезок = 100 µmПредставленные изображения являются репрезентативными для всех проанализированных образцов (n = 3 животных в группе). Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
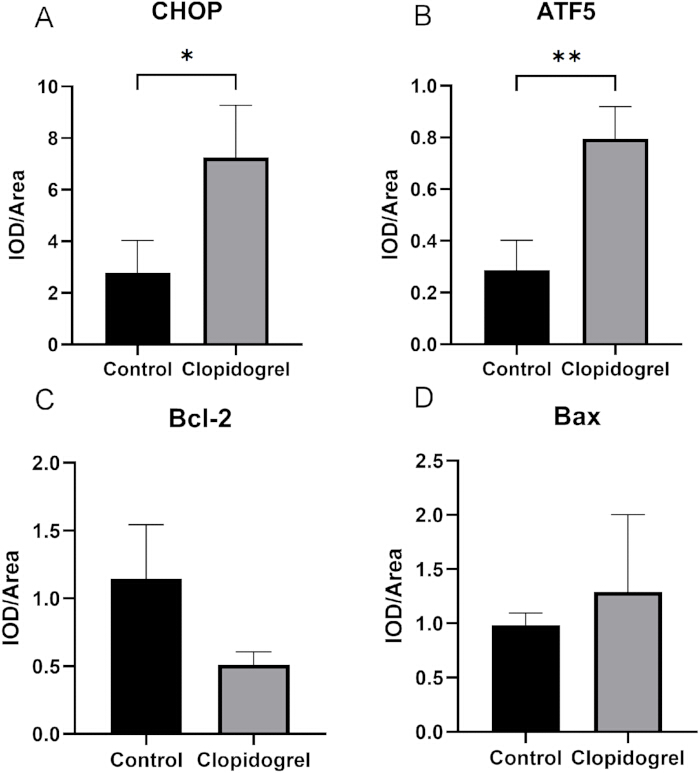
Рисунок 5. Количественный анализ иммунофлуоресценции белков, связанных со стрессом эндоплазматического ретикулума и апоптозом, в тканях желудка. (A–D) Количественная оценка интегральной оптической плотности на единицу площади (IOD/Area) для гомолога белка C/EBP (CHOP), активирующего фактора транскрипции 5 (ATF5), белка B-клеточной лимфомы 2 (Bcl-2) и Bax-белка, ассоциированного с Bcl-2, в тканях слизистой оболочки желудка крыс Sprague–Dawley контрольной группы и группы, получавшей клопидогрел. Для каждого животного с помощью программного обеспечения для анализа изображений были проанализированы три случайно выбранных неперекрывающихся микроскопических поля на один срез ткани, и для статистического анализа использовалось среднее значение. Данные представлены как среднее ± SD; n = 3 животных в группе. *P < 0.05 и **P < 0.01 по сравнению с контрольной группой. Нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
Клопидогрел изменяет экспрессию генов и белков, связанных с ЭР-стрессом и апоптозом, в клетках GES-1 и тканях желудка крысы
Предыдущие исследования показали, что стресс ЭР играет ключевую роль в клеточных стрессовых реакциях и апоптозе17,18. Для оценки изменений маркеров, связанных со стрессом ЭР, после применения клопидогрела была изучена экспрессия CHOP и ATF5 в клетках GES-1. Метод qRT-PCR продемонстрировал повышение экспрессии мРНК CHOP и ATF5 после воздействия клопидогрела. Вестерн-блот анализ дополнительно подтвердил повышение экспрессии белков CHOP и ATF5 (Рисунок 6A–E). Впоследствии в клетках GES-1 и тканях желудка крысы была проведена оценка экспрессии белков, связанных с апоптозом. По сравнению с контрольной группой, применение клопидогрела привело к увеличению экспрессии Bax и снижению экспрессии Bcl-2, что resulted в увеличении соотношения Bax/Bcl-2 (Рисунок 6A–J). Данные паттерны экспрессии последовательно наблюдались как на уровне мРНК, так и на уровне белка в клетках GES-1 и тканях желудка крысы. В совокупности эти результаты показывают, что применение клопидогрела связано с изменением экспрессии маркеров стресса ЭР и апоптоза в обеих экспериментальных моделях.
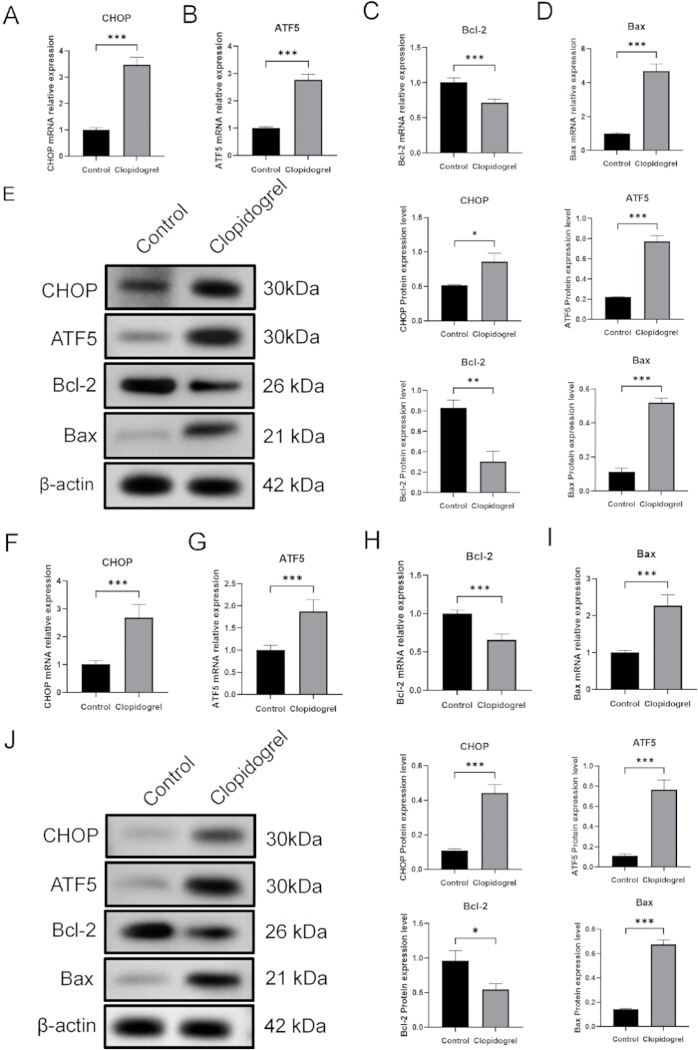
Рисунок 6. Экспрессия маркеров стресса эндоплазматического ретикулума и апоптоза в клетках GES-1 и тканях желудка крысы после обработки клопидогрелем. (A–D) Относительная экспрессия матричной РНК (мРНК) гомологичного белка C/EBP (CHOP), активирующего фактора транскрипции 5 (ATF5), B-клеточного лимфома 2 (Bcl-2) и Bax-белка, ассоциированного с Bcl-2 (Bax) в линии эпителиальных клеток желудка человека GES-1, определенная методом количественной ПЦР в реальном времени (qRT-PCR). (E) Репрезентативные изображения вестерн-блоттинга с соответствующим денситометрическим количественным определением экспрессии белков CHOP, ATF5, Bcl-2 и Bax в клетках GES-1. Уровни экспрессии белков были нормированы по β-actin. Эксперименты на клетках проводились с использованием трех независимых биологических повторов (n = 3). (F–I) Относительная экспрессия мРНК CHOP, ATF5, Bcl-2 и Bax в тканях желудка крысы, определенная методом qRT-PCR. (J) Репрезентативные изображения вестерн-блоттинга с соответствующим денситометрическим количественным определением экспрессии белков CHOP, ATF5, Bcl-2 и Bax в тканях желудка крысы. Уровни экспрессии белков были нормированы по β-actin. Эксперименты на тканях включали n = 3 животных в группе. Данные представлены как среднее значение ± SD. Статистическая значимость определялась путем сравнения с контрольной группой. *P < 0.05, **P < 0.01 и ***P < 0.001. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
В совокупности результаты показывают, что терапия клопидогрелом снижала жизнеспособность клеток GES-1, усиливала апоптоз, изменяла экспрессию маркеров стресса ЭР и маркеров, связанных с апоптозом, а также была связана с повреждением слизистой оболочки желудка, сопровождавшимся повышением уровней циркулирующих воспалительных цитокинов у крыс. Эти данные подтверждают гипотезу исследования о том, что прием клопидогрела связан с повреждением слизистой оболочки желудка и сопутствующими изменениями маркеров стресса ЭР и маркеров, связанных с апоптозом.
Доступность данных:
Все данные, полученные или проанализированные в ходе данного исследования, включены в настоящую опубликованную статью и дополнительные материалы к ней. Последовательности праймеров, использованные для RT-PCR, приведены в Дополнительной таблице 1. Исходные данные, на которых основаны все рисунки и отдельные панели рисунков, включая оригинальные экспериментальные наборы данных и исходные файлы, представлены в прилагаемом дополнительном архиве Raw Data (zip-файл).
Дополнительная таблица 1. Последовательности праймеров, использованных для анализа методом ОТ-ПЦР. Последовательности прямых (F) и обратных (R) праймеров, использованных в данном исследовании для ОТ-ПЦР анализа GAPDH, CHOP, ATF5, Bcl-2 и Bax, представлены в ориентации 5′–3′.Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Обсуждение
Клопидогрел широко применяется для профилактики и лечения сердечно-сосудистых заболеваний; однако его клиническое использование связано с риском кровотечений и желудочно-кишечными осложнениями, включая пептические язвы, кровотечения и перфорацию19. Таким образом, понимание молекулярных изменений, связанных с повреждением слизистой оболочки желудка, индуцированным клопидогрелом, имеет важное значение для улучшения профилактики и коррекции этих побочных эффектов. В настоящем исследовании мы изучили воздействие клопидогрела на эпителиальные клетки желудка и ткани желудка крыс, а также проанализировали изменения жизнеспособности клеток, апоптоза, воспалительные реакции и экспрессию маркеров стресса ЭПР и маркеров, связанных с апоптозом. Эти результаты позволяют предположить, что повреждение слизистой оболочки желудка, вызванное клопидогрелом, связано с изменением экспрессии маркеров стресса ЭПР и апоптоза. Однако, поскольку эксперименты по фармакологическому спасению или генетическому выключению функций не проводились, данные результаты не устанавливают причинно-следственной связи между стрессом ЭПР и апоптозом.
Предыдущие исследования показали, что клопидогрел может нарушать восстановление слизистой оболочки желудка и замедлять заживление язв желудка20. В настоящем исследовании анализ CCK-8 показал, что клопидогрел снижает жизнеспособность клеток GES-1, а проточная цитометрия продемонстрировала усиление апоптоза и изменение прогрессии клеточного цикла (Рисунок 1). Эти результаты согласуются с предыдущими сообщениями об индуцированном клопидогрелом апоптозе эпителиальных клеток желудка21. Данные наблюдения позволяют предположить, что лечение клопидогрелом связано с нарушением жизнеспособности эпителиальных клеток желудка и усилением апоптоза, что может способствовать повреждению слизистой оболочки желудка11. На модели крыс окрашивание гематоксилином и эозином (H&E) выявило повреждение слизистой оболочки желудка после применения клопидогрела (Рисунок 2A). Уровни IL-1β, IL-6 и TNF-α в сыворотке крови также были значительно повышены (Рисунок 2B–D), что указывает на воспалительную реакцию, связанную с повреждением слизистой оболочки желудка22. Кроме того, иммуногистохимический и иммунофлуоресцентный анализы продемонстрировали изменение экспрессии маркеров стресса ЭПР и апоптоза в тканях желудка крыс, получавших клопидогрел, по сравнению с контрольной группой (Рисунок 3, Рисунок 4, Рисунок 5).
CHOP, ATF5, Bcl-2 и Bax являются важными регуляторами клеточного ответа на стресс и апоптоза23,24,25,26. В данном исследовании применение клопидогрела было связано с повышением экспрессии CHOP и ATF5, а также с изменением экспрессии Bax и Bcl-2 как в клетках GES-1, так и в тканях желудка крыс (Рисунок 6). Эти результаты указывают на одновременные изменения маркеров, связанных со стрессом и апоптозом. Однако в настоящем исследовании оценивались только изменения экспрессии, и не было определено, опосредуют ли эти молекулы непосредственно повреждение слизистой оболочки желудка, вызванное клопидогрелом. Аналогично, несмотря на наблюдаемое увеличение соотношения Bax/Bcl-2, в исследовании не было напрямую продемонстрировано активация митохондриального пути апоптоза. Следовательно, данные результаты следует интерпретировать как ассоциации, а не как доказательство причинно-следственного сигнального механизма.
Данное исследование сочетает в себе модель in vivo на крысах с эксплораторными экспериментами по прямому воздействию на клетки GES-1 для оценки морфологических и молекулярных изменений, связанных с применением клопидогрела. Модель in vivo предоставляет основные доказательства повреждения слизистой оболочки желудка, в то время как эксперименты на GES-1 дают вспомогательные данные о клеточных реакциях после прямого воздействия исходного соединения. Сочетание гистопатологического анализа, измерения уровней воспалительных цитокинов, иммуногистохимии, иммунофлуоресценции, qRT-PCR и вестерн-блоттинга позволяет провести комплексную оценку морфологических и молекулярных изменений, сопровождающих повреждение желудка. Данный экспериментальный подход может быть полезен для изучения воздействия антиагрегантов на желудочно-кишечный тракт и для оценки потенциальных защитных мер в будущих исследованиях.
Следует признать ряд ограничений. Клопидогрел является пролекарством, требующим активации путем печеночного метаболизма, в то время как прямое воздействие исходного соединения на клетки GES-1 не воспроизводит этот процесс и не полностью отражает клиническую фармакокинетику. Кроме того, относительно высокие концентрации, использованные in vitro, могли вызвать неспецифическую цитотоксичность. Таким образом, эксперименты с GES-1 следует рассматривать как предварительные данные о клеточных реакциях в условиях прямого воздействия. Анализ CCK-8 не включал положительного контроля снижения жизнеспособности клеток, что ограничивает возможность независимой проверки эффективности анализа. Не были исследованы вышележащие механизмы, ответственные за наблюдаемые изменения, связанные с ER-стрессом; также не проводились эксперименты по фармакологическому ингибированию, нокдауну или нокауту генов, чтобы определить, регулирует ли ER-стресс напрямую баланс Bax/Bcl-2 и апоптоз. В будущих исследованиях следует сравнить исходное соединение с его активным метаболитом, внедрить соответствующую систему метаболической активации и провести эксперименты с функциональным вмешательством для выяснения этих взаимосвязей. Кроме того, в анализе Annexin V-FITC/PI не был использован общепринятый положительный контроль, индуцирующий апоптоз. Поэтому, хотя воздействие клопидогрела было связано с увеличением популяции Annexin V-положительных клеток по сравнению с контролем препарата-носителя, техническая эффективность анализа апоптоза не была независимо подтверждена с использованием условий положительного контроля. В будущих исследованиях в ту же экспериментальную серию следует включить индуктор апоптоза, такой как стауроспорин.
В заключение, пероральное введение клопидогрела вызывало повреждение слизистой оболочки желудка у крыс и сопровождалось изменениями маркеров, связанных с ER-стрессом и апоптозом. Прямое воздействие основного соединения клопидогрела на клетки GES-1 также снижало жизнеспособность клеток и изменяло соответствующие молекулярные маркеры в экспериментальных условиях. Однако, поскольку клеточная модель не воспроизводит печеночную биоактивацию и использовались относительно высокие концентрации, результаты in vitro нельзя напрямую экстраполировать на клиническое воздействие, и нельзя исключить неспецифическую цитотоксичность. В целом, полученные данные указывают на то, что индуцированное клопидогрелом повреждение слизистой оболочки желудка связано с изменениями экспрессии маркеров ER-стресса и апоптоза, хотя для установления причинно-следственных связей требуются дальнейшие исследования механизмов.
Раскрытие информации
Конфликт интересов:
Авторы заявляют, что им не известно о наличии каких-либо конфликтов финансовых интересов или личных отношений, которые могли бы повлиять на результаты исследования, представленного в данной работе.
Благодарности
Данная работа была поддержана проектом «Фундаментальные исследования сигнального пути CHOP/ATF5/Bcl-2 при апоптозе эпителиальных клеток слизистой оболочки желудка, индуцированном клопидогрелом» (проект № 2023BWKY009).
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| Набор для определения апоптоза Annexin V-FITC/PI | Elabscience | E-CK-A211 | Набор для детектирования апоптоза |
| Антитело к ATF5 | Proteintech | 67066-1-AP | Первичные антитела |
| Набор для определения концентрации белка методом БКА | Solarbio | PC0020 | Метод определения концентрации белка |
| Антитело к Bax | Proteintech | 50599-1-AP | Первичные антитела |
| Антитела к Bcl-2 | Proteintech | 26593-1-AP | Первичные антитела |
| βантитело к $\beta$-актину | Proteintech | 66009-1-Ig | Первичные антитела |
| Блокирующий буфер | Beyotime | P0252 | Блокирующий раствор для вестерн-блоттинга |
| Набор для подсчета клеток CCK-8 | KeyGen Biotech | KGA317 | Анализ жизнеспособности клеток |
| Набор для синтеза кДНК | TransGen Biotech | AU341 | Набор для синтеза первой цепи кДНК с удалением геномной ДНК |
| Набор для определения фаз клеточного цикла | Lianke Biotechnology | CCS012 | Набор для анализа клеточного цикла |
| Антитело к CHOP | Proteintech | 15204-1-AP | Первичные антитела |
| Гидросульфат клопидогрела (чистота ≥99%) | Макклин | C874834 | Экспериментальный препарат |
| Набор хромогена DAB | Beyotime | P0201M | Субстрат для иммуногистохимического анализа |
| Диметилсульфоксид (ДМСО) | MedChemExpress | HY-Y0320C | Растворитель |
| Реагент для усиленной хемилюминесценции (ECL) | Meilunbio | MA0186 | Хемилюминесцентный субстрат |
| Фетальная бычья сыворотка (ФБС) | Gibco | 10099-141 | Добавка для культуральных сред |
| Линия клеток эпителия желудка человека GES-1 | iCell Bioscience | iCell-h062 | Линия клеток эпителия желудка человека |
| Гематоксилин и эозин (Г&E) Набор для окрашивания | Beyotime | C0105S | Гистологическое окрашивание |
| Вторичные антитела, конъюгированные с пероксидазой хрена (HRP) | Proteintech | RGAM001/RGAR001 | Вторичное антитело |
| Раствор перекиси водорода | Абсинтум | ABS9333-100 мл | Реагент для блокировки эндогенной пероксидазы |
| ИЛ-1β Набор для ИФА | МЭЙМЯН | MM-0047R2 | Анализ содержания цитокинов в сыворотке крови |
| Набор для ИФА на ИЛ-6 | МЭЙМЯН | MM-0190R2 | Анализ содержания цитокинов в сыворотке крови |
| Считыватель микропланшетов | Beijing Liuyi Biotechnology | WD-2102B | Измерение абсорбции |
| Раствор пенициллина и стрептомицина | Solarbio | P1400 | Раствор антибиотика |
| Фосфатно-солевой буферный раствор (PBS) | Servicebio | G4202-500ML | 1× ФОСБ (фосфатно-солевой буфер) |
| Мембрана из поливинилиденфторида (ПВДФ) | Millipore | IPVH00010 | Мембрана для вестерн-блоттинга |
| Растворитель для первичных антител | Beyotime | P0023A | Разбавитель для антител |
| Маркер молекулярной массы белков | Yeasen | WJ103 | Преокрашенный маркер молекулярных масс белков |
| Мастер-микс для количественной ПЦР в реальном времени (SYBR Green) | CWBio | CW3008 | реагент для кПЦР |
| Буфер для лизиса RIPA (радиоиммунопреципитационный анализ) | Solarbio | R0010 | Буфер для экстракции белков |
| РНКаза А | Lianke Biotechnology | CCS012 | Реагент для анализа клеточного цикла |
| Среда RPMI-1640 | Servicebio | G4535-500ML | Базальная среда для культивирования клеток |
| Крысы линии Sprague-Dawley | Hangzhou Ziyuan Laboratory Animal Technology Co., Ltd. | Поскольку исходный текст не был предоставлен, я не могу выполнить перевод. Пожалуйста, введите текст, который необходимо перевести на русский язык. | стерильный класс SPF (без специфических патогенов) |
| ФНО-α Набор для ИФА | МЭЙМЯН | MM-0180R2 | Анализ содержания цитокинов в сыворотке крови |
| Набор для экстракции тотальной РНК | TransGen Biotech | ER501-01 | Набор для экстракции РНК |
| Раствор трипсин-ЭДТА | Solarbio | T1300 | Реагент для диссоциации клеток |
Ссылки
- Mills JC, Shivdasani RA. Gastric epithelial stem cells. Gastroenterology. 2011;140(2):412-424.
- Zhou CB, et al. The role of pyroptosis in gastrointestinal cancer and immune responses to intestinal microbial infection. Biochim Biophys Acta Rev Cancer. 2019;1872(1):1-10.
- Boltin D, Niv Y. Pharmacological and alimentary alteration of the gastric barrier. Best Pract Res Clin Gastroenterol. 2014;28(6):981-994.
- Kwon DA, et al. Protective effects of a standardized extract (HemoHIM) using indomethacin- and ethanol/HCl-induced gastric mucosal injury models. Pharm Biol. 2019;57(1):543-549.
- Guo XZ, et al. Effect of Bax, Bcl-2 and Bcl-xL on regulating apoptosis in tissues of normal liver and hepatocellular carcinoma. World J Gastroenterol. 2002;8(6):1059-1062.
- Gomi A, et al. Effect of Bifidobacterium bifidum BF-1 on gastric protection and mucin production in an acute gastric injury rat model. J Dairy Sci. 2013;96(2):832-837.
- Chiou SK, et al. Suppression of growth arrest and DNA damage-inducible 45alpha expression confers resistance to sulindac- and indomethacin-induced gastric mucosal injury. J Pharmacol Exp Ther. 2010;334(3):693-702.
- Chen X, et al. Endoplasmic reticulum stress: molecular mechanism and therapeutic targets. Signal Transduct Target Ther. 2023;8(1):352.
- Lian X, et al. ATF5-regulated mitochondrial unfolded protein response attenuates neuronal damage in epileptic rats by reducing endoplasmic reticulum stress through mitochondrial ROS. Neurochem Res. 2024;49(2):388-401.
- He C, et al. Progression of gastrointestinal injury during antiplatelet therapy after percutaneous coronary intervention: a secondary analysis of the OPT-PEACE randomized clinical trial. JAMA Netw Open. 2023;6(11):e2343219.
- Zongdan J, et al. The mechanism of miR-363-3p/DUSP10 signaling pathway involved in the gastric mucosal injury induced by clopidogrel. Toxicol Mech Methods. 2021;31(2):150-158.
- Chan FK, et al. Clopidogrel versus aspirin and esomeprazole to prevent recurrent ulcer bleeding. N Engl J Med. 2005;352(3):238-244.
- Taha AS, et al. Upper gastrointestinal mucosal abnormalities and blood loss complicating low-dose aspirin and antithrombotic therapy. Aliment Pharmacol Ther. 2006;23(4):489-495.
- Wu HL, et al. Increased endoplasmic reticulum stress response is involved in clopidogrel-induced apoptosis of gastric epithelial cells. PLoS One. 2013;8(9):e74381.
- Forsgard RA, et al. Intestinal permeability to iohexol as an in vivo marker of chemotherapy-induced gastrointestinal toxicity in Sprague-Dawley rats. Cancer Chemother Pharmacol. 2016;78(4):863-874.
- Wu H, et al. Clopidogrel-induced gastric injury in rats is attenuated by stable gastric pentadecapeptide BPC 157. Drug Des Devel Ther. 2020;14:5599-5610.
- Zhu XM, et al. The involvement of endoplasmic reticulum stress response in immune dysfunction of dendritic cells after severe thermal injury in mice. Oncotarget. 2017;8(6):9035-9052.
- Oakes SA, Papa FR. The role of endoplasmic reticulum stress in human pathology. Annu Rev Pathol. 2015;10:173-194.
- Abrignani MG, et al. Gastroprotection in patients on antiplatelet and/or anticoagulant therapy: a position paper of the National Association of Hospital Cardiologists (ANMCO) and the Italian Association of Hospital Gastroenterologists and Endoscopists (AIGO). Eur J Intern Med. 2021;85:1-13.
- Takahashi K, et al. Influence of antiplatelet drugs on gastric ulcer healing after endoscopic submucosal dissection in patients with early gastric cancer. DEN Open. 2025;5(1).
- Wu H, et al. Role of MKP-5-p38/MAPK pathway in clopidogrel-induced gastric mucosal epithelial cells apoptosis and tight junction dysfunction. Am J Transl Res. 2020;12(5):1741-1753.
- Fu X, et al. Protective effect of teprenone on gastric mucosal injury induced by dual antiplatelet therapy in rats. Am J Transl Res. 2021;13(4):2702-2709.
- Oyadomari S, Mori M. Roles of CHOP/GADD153 in endoplasmic reticulum stress. Cell Death Differ. 2004;11(4):381-389.
- Sears TK, Angelastro JM. The transcription factor ATF5: role in cellular differentiation, stress responses, and cancer. Oncotarget. 2017;8(48):84595-84609.
- Zhang Y, et al. Puerarin attenuates neurological deficits via Bcl-2/Bax/cleaved caspase-3 and Sirt3/SOD2 apoptotic pathways in subarachnoid hemorrhage mice. Biomed Pharmacother. 2019;109:726-733.
- Manas A, et al. Immunohistochemical detection of the pro-apoptotic BaxΔ2 protein in human tissues. Histochem Cell Biol. 2020;154(1):41-53.
Перепечатки и разрешения
Эта статья была опубликована
Видео скоро будет доступно