В данном исследовании оценивается эффективность терапии препаратом Ци-фу-инь (QFY) на мышах линии 5xFAD. Результаты показывают, что введение QFY связано с улучшением показателей обучения и памяти, снижением отложения Aβ в головном мозге и клеточного старения, а также с ослаблением структурных повреждений синапсов в коре головного мозга.
Исследовательская статья
Влияние препарата Ци-фу-инь на улучшение когнитивных нарушений и снижение клеточного старения в головном мозге мышей линии 5xFAD
* These authors contributed equally
В этой статье
Краткое содержание
Аннотация
Хотя механизм действия рецепта традиционной китайской медицины Ци-фу-инь (QFY) до конца не изучен, он продемонстрировал терапевтический потенциал при болезни Альцгеймера (БА). Целью данной работы было исследование взаимосвязи между лечением QFY и когнитивными нарушениями у мышей линии 5xFAD. Мы использовали тест силы хвата, анализ походки, гнездование в колонии, тест в челночной клетке, тест в водном лабиринте Морриса и метод ИФА для оценки уровней амилоида-β белок 1-42 (Aβ1-42), Aβ1-40белок роста 43 (GAP-43), синаптофизин (SYN) и белок постсинаптической плотности 95 (PSD-95) в головном мозге мышей линии 5xFAD. Для количественного определения уровней секреторного фенотипа, ассоциированного со старением (SASP), в коре головного мозга использовался анализ цитокинов на системе Luminex. Количество ассоциированного со старением β-галактозидаза (SA-β-Gal), Aβ отложение, а количество дендритных шипиков в головном мозге животных измеряли с помощью SA-β-Gal-окрашивание, иммуногистохимический анализ и окрашивание по Гольджи-Коксу соответственно. Обработка QFY значительно снизила уровень кортикального Aβ нагрузка бляшками и снижение экспрессии p21 у мышей 5xFAD, согласно результатам иммунофлуоресцентного анализа. У мышей 5xFAD терапия QFY заметно улучшила показатели обучения и памяти, облегчила старению и привело к увеличению содержания белков GAP-43, PSD-95 и SYN в коре головного мозга мышей. После лечения QFY наблюдалось значительное снижение Aβ бляшка и SA-βактивность $\beta$-Gal в головном мозге, а также Aβ1-42 и Аβ1-42/Aβ1-40 уровни в гиппокампе. Уровни IL-1α, ИЛ-1β, ИЛ-6, ИЛ-17A и ИФН-γ были значительно снижены в коре головного мозга мышей линии 5xFAD. Анализ главных компонент (PCA) и корреляционный анализ Пирсона продемонстрировали сильную отрицательную связь между цитокинами SASP и уровнями синаптических белков. Эти результаты указывают на связь между применением QFY и улучшением когнитивных функций, связанных со старением, а также фенотипов клеточного старения у мышей 5xFAD, наряду с уменьшением структурных повреждений синапсов. Полученные данные обосновывают необходимость дальнейшего изучения QFY в качестве потенциального терапевтического средства для лечения болезни Альцгеймера.
Введение
Alzheimer's disease (AD)1 is the most prevalent form of dementia, characterized by amyloid-β protein (Aβ), hyperphosphorylated tau proteins (P-Tau), synaptic loss, and chronic inflammation. Currently available medications for AD have a number of side effects and are unable to stop the disease's progression2,3,4,5.
Senescence, which manifests as organism-wide disruptions across cellular and interstitial microenvironments rather than localized organ-specific alterations, is a key risk factor in AD pathogenesis. This systemic dysregulation distinguishes AD progression from single tissue-pathology models by fundamentally changing homeostatic mechanisms across biological systems6,7. Although cellular senescence initially serves as a homeostatic regulatory mechanism, the accumulation of senescent cells eventually causes progressive tissue degradation and persistent inflammatory cascades, fundamentally disrupting physiological homeostasis8. The ensuing inflammation may harm synapses and impair cognitive function9,10.
Cellular senescence is a complex cellular stress response characterized by telomere shortening, permanent cell-cycle arrest, and altered secretory activity11. Additional hallmarks include enlarged, flattened cell morphology, positive senescence-associated β-galactosidase (SA-β-Gal) staining, lipofuscin accumulation, and secretion of SASP factors12. Memory formation is affected by the notable decline in the levels of proteins associated with synaptic plasticity of axons and dendrites, which occurs with cellular senescence13,14. Because synaptic plasticity is essential for learning and memory, disruptions in synaptic proteins contribute to cognitive impairment. These proteins include GAP-43, SYN, and PSD-95. Undoubtedly, synaptic function is affected by reductions in dendritic numbers and functional abnormalities in the brains of the elderly15.
QFY is a traditional Chinese medicine formula derived from Jing Yue Quan Shu. It is composed of Panax ginseng C.A.Mey (Araliaceae), Polygala tenuifolia Willd (Polygalaceae), Rehmannia glutinosa (Gaertn.) Libosch. ex Fisch. & C. A. Mey (Orobanchaceae), Angelica sinensis (Oliv.) Diels (Apiaceae), Glycyrrhiza uralensis Fisch. ex DC. (Fabaceae), Atractylodes macrocephala Koidz (Asteraceae), Ziziphus jujuba Mill. var. spinosa (Bunge) Hu ex H.F. Chou (Rhamnaceae). Research has demonstrated that QFY significantly ameliorates cognitive dysfunction in rats with diabetes-induced brain injury16. Our previous study found that QFY could improve cognitive learning and memory functions impairment in 5xFAD and APP/PS1 mice. In addition, QFY demonstrated high safety in non-clinical studies, and no obvious acute, subacute, or long-term toxic reactions were observed17,18,19. Analysis of the clinical therapeutic effect of QFY showed that AD patients experienced a significant increase in their capacity for activities of daily living and MMSE scores after QFY treatment20. Following three consecutive days of QFY administration in male Sprague-Dawley rats, ten prototype QFY-derived components, including butylidenephthalide, butylphthalide, 20(S)-ginsenoside Rh1, 20(R)-ginsenoside Rh1, and zingibroside R1, were detected in cerebrospinal fluid21,22. However, the therapeutic mechanism of QFY in AD is still unclear. In this study, we investigated the association between QFY treatment, cellular senescence, and AD-related pathological changes in 5xFAD mice.
Although previous studies have demonstrated the neuroprotective effects of QFY in AD models, the specific involvement of cellular senescence in mediating these effects remains unexplored. Moreover, whether QFY confers cognitive benefits through senescence‑associated synaptic preservation, rather than solely through amyloid‑β reduction, has not been addressed. The present study was therefore designed to investigate whether QFY treatment attenuates cellular senescence and whether this attenuation is associated with improved synaptic plasticity in 5xFAD mice.
Протокол
Все эксперименты на животных были одобрены Комитетом по этике по благополучию экспериментальных животных Шаньдунского университета традиционной китайской медицины (SDUTCM20221101001).
Препараты
Порошок сухого крема из гранул QFY был подготовлен и протестирован в Центре исследований и разработок Lunan Pharmaceutical Houpu. Донепезил и мемантин были приобретены в компании Shanghai Yuanye Technology. В данном исследовании использовались самцы мышей линии 5xFAD с начальной массой тела в диапазоне 19–27 g. Дозировка QFY была рассчитана на основе клинической дозы для людей, составляющей 43 g/d, что соответствует 16.297 g/d с учетом поправки на порошок сухого крема из гранул QFY. Средняя доза для настоящего эксперимента была рассчитана исходя из клинической дозы для людей (16.297 g/70 kg x 9.1 = 2.11861 g/kg/d). Высокая доза была установлена в размере двукратной средней дозы (4.24 g/kg/d), а низкая доза — в размере половины средней дозы (1.06 g/kg/d). Все растворы препаратов вводились в объеме 0.1 mL на 10 g массы тела.
В качестве положительного контроля использовали комбинированное введение донепезила и мемантина гидрохлорида. Дозировки были определены с учетом их текущих клинических доз (10 mg/d и 20 mg/d соответственно) и предыдущих данных нашей исследовательской группы, в результате чего была установлена схема введения: донепезил в дозе 1.0 mg/kg/d плюс мемантин в дозе 2.8 mg/kg/d, что составило общую комбинированную дозу 3.8 mg/kg/d. Конечная концентрация смеси донепезила и мемантина была приготовлена в размере 0.38 mg/mL, что было рассчитано как 3.8 mg/kg, деленные на объем введения 0.1 mL на 10 g массы тела.
Растворы QFY в низких, средних и высоких дозах готовили следующим образом: 5,3 g, 10,6 g и 21,2 g сухого порошка QFY помещали в отдельные стаканы объемом 100 mL, смешивали с 30 mL очищенной воды при тщательном перемешивании, переносили в мерные цилиндры и доводили конечный объем до 50 mL очищенной водой, что позволило получить конечные массовые концентрации 0,106 g/mL, 0,212 g/mL и 0,424 g/mL соответственно. Для положительного контроля 5 mg донепезила и 14 mg мемантина растворяли в очищенной воде и доводили до конечного объема 50 mL. Животным в каждой группе соответствующий раствор препарата вводили один раз в день путем перорального зондирования.
Животные
Трансгенные мыши 5xFAD [B6. Cg-Tg (APPSwFlLon, PSEN1* M146L* L286V)6799Vas/Mmjax] разводились в лаборатории. Животные содержались в условиях SPF в Шаньдунском университете традиционной китайской медицины при температуре 22–24 oC, влажности 50–60% и 12-часовом цикле свет-темнота. Корм и вода были доступны животным постоянно.
В возрасте 2,5 месяцев самцы мышей 5xFAD были случайным образом разделены на пять групп: необработанные 5xFAD, группа, получавшая донепезил и мемантин, группа с низкой дозой QFY, группа со средней дозой QFY и группа с высокой дозой QFY. В качестве контрольной группы WT использовали самцов дикого типа (WT) из того же помета, соответствующих по возрасту. Препараты вводили один раз в сутки в течение 220 дней. (Рисунок 1).
Поведенческие тесты
Тест силы хвата
Сила скелетных мышц передних конечностей мышей измеряли с помощью динамометра для определения силы хвата23. В ходе эксперимента измерительный прибор располагали горизонтально, чтобы мышь находилась параллельно поверхности стола. После включения прибора мышь осторожно помещали на захватную пластину. Когда мышь надежно захватывала пластину, ее хвост тянули назад с постоянным усилием до тех пор, пока животное не разжимало хват. Регистрировали максимальную силу хвата. Измерение повторяли трижды, и среднее значение этих показателей использовали для определения силы хвата мыши.
Тест походки
Регулярность походки мышей измеряли с помощью системы CatWalk XT. Эксперимент был разделен на период обучения и период тестирования24. За один день до начала эксперимента подопытных мышей перевели в помещение для проведения исследований, чтобы они могли адаптироваться к новой среде. В период обучения мышей помещали в исходную точку, после чего они пробегали по каналу до конечной точки. Каждую мышь обучали три раза в день. После 3 дней обучения (до тех пор, пока каждая мышь не начала быстро проходить через канал) животных возвращали в клетки. Период тестирования проходил так же, как и период обучения, при этом компьютерное программное обеспечение автоматически анализировало траекторию каждого движения. При соответствии траектории критериям отображались зеленые точки, при несоответствии — оранжевые; для каждой мыши квалифицированными считались как минимум три зеленые точки, анализ которых проводился с помощью программного обеспечения CatWalkXT 10.0.
Тест с челночным ящиком
Для оценки способности к условному активному избеганию у мышей использовали тест в челночном боксе25. Установка состояла из челночного бокса (18 cm x 18 cm), помещенного в звукоизоляционную камеру. Эксперимент включал 4‑дневный период обучения с последующим 1‑дневным периодом тестирования. В каждый день обучения мышам предоставлялся 120‑с период адаптации в челночном боксе перед началом тренировки. Каждая проба начиналась с 6‑с условного стимула (тон 1000‑Hz интенсивностью 70‑dB в сочетании со светом 500‑lux), за которым следовал 3‑с удар током в лапки силой 0,3‑mA через решетчатый пол, и завершалась 12‑с межпробным интервалом. Если мышь переходила в противоположный отсек во время подачи условного стимула, удар током не наносился, и такая реакция регистрировалась как активное избегание. Если мышь не переходила в течение подачи условного стимула, но переходила во время удара током, это регистрировалось как реакция пассивного избегания. Если мышь не переходила в течение всей пробы, это регистрировалось как отсутствие реакции бегства. Обучение повторяли в течение 4 последовательных дней по 30 проб в день. В период тестирования (день 5) удар током исключали, в то время как все остальные параметры оставались такими же, как в период обучения. Количество реакций активного избегания регистрировали в качестве основного показателя обучения и памяти.
Водный лабиринт Морриса
Для оценки способностей к пространственному обучению и памяти экспериментальных животных использовали тест в водном лабиринте Мориса26. Эксперимент проводили в резервуаре диаметром 120 cm и глубиной 50 cm. Резервуар наполняли мутной белой водой, поддерживая температуру на уровне 21 °C. Платформу диаметром 10 cm устанавливали на 1 cm ниже поверхности воды в одном из квадрантов. Вокруг бассейна размещали визуальные ориентиры, служащие для мышей пространственными маркерами. Процесс обучения проводили в течение четырех дней подряд, при этом сессия каждого дня начиналась в одном из трех квадрантов. Положения старта варьировали псевдослучайным образом между четырьмя сторонами света. Каждая попытка заканчивалась, когда животное успешно достигало платформы. Максимальная продолжительность попытки составляла 60 s; если животное не могло найти платформу в течение этого времени, его осторожно направляли к ней. После достижения платформы животному предоставляли короткий перерыв в 10 s, после чего его возвращали в домашнюю клетку. По завершении периода обучения через 24 h начинался период тестирования. На 5-й день мышей помещали в квадрант, противоположный платформе. Регистрировали латентный период нахождения выхода в тестовый период, время перемещения в целевом квадранте и количество пересечений области, где изначально находилась подводная платформа.
Тест на вложенность колоний
Повседневная активность экспериментальных животных оценивали с помощью теста на гнездование в колонии27. Эксперимент длился 24 ч, в каждой группе было по три животных. После введения препарата в тот же день устанавливали новые клетки, выстилая их 6 г мягкой бумаги для гнездования; фотографии делали через 6 ч, 12 ч и 24 ч. По окончании эксперимента оценивали качество гнезда: если бумага была разбросана по всей клетке и не имела следов разгрызания — 1 балл; если кусочки бумаги были собраны сбоку клетки, но рыхло, без сформированного гнезда и явных признаков разрывания или складывания — 2 балла; если кусочки бумаги были собраны и сложены в сформированное, но относительно плоское гнездо без явных разрывов — 3 балла; глубокое гнездо с обильно измельченной бумагой оценивали в 4 балла. По окончании эксперимента оставшуюся неразрезанную ткань (под которой понимались фрагменты бумаги весом >0.1 g, которые не были измельчены или включены в состав гнезда) аккуратно собирали, высушивали на воздухе и взвешивали на электронных весах (точность: 0.01 g).
Отбор и сбор образцов
Образцы были собраны только из групп WT, 5xFAD и QFY (2.12 g/kg/d). После асфиксии CO2 головы были отделены, правое полушарие быстро вскрыли для выделения гиппокампа и коры, промыли фосфатно-солевым буферным раствором (PBS) и поместили в замороженные пробирки объемом 1.5 mL в жидкий азот. Образцы хранились при -80 oC для последующих биохимических анализов. Левое полушарие фиксировали путем погружения в 4% параформальдегид на 24 ч, обезвоживали в абсолютном этаноле, заливали в парафин, срезали сечения толщиной 5 µm и депарафинизировали для иммуногистохимического анализа.
Иммуноферментный анализ (ИФА)
Для количественного определения уровней целевых белков в тканях мозга были проведены анализы ИФА (ELISA). Содержание Aβ1–40 и Aβ1–42 в гомогенатах гиппокампа измеряли с помощью коммерческих наборов, в то время как уровни GAP-43, PSD-95 и SYN в коре определяли с использованием наборов компании Jiangsu Enzyme Immunoassay Industry. Все процедуры выполнялись в строгом соответствии с протоколами производителей. Серии стандартов готовили путем серийного разведения согласно инструкциям к наборам. Схема расположения лунок в микропланчинке включала холостые лунки, лунки со стандартами, лунки с образцами 5xFAD, лунки с образцами после введения QFY (2.12 g/kg/d) и лунки с образцами дикого типа. Перед внесением все образцы разводили вдвое с помощью прилагаемого разбавителя. Реагенты добавляли, удерживая наконечник пипетки перпендикулярно дну лунки, после чего осторожно перемешивали содержимое для обеспечения полного смешивания.
После герметизации планшета проводили первую инкубацию при 37 °C в течение 30 мин. В этот период готовили промывочный буфер, разводя концентрированный стоковый раствор ультрачистой водой в соотношении 1:29 (1 мл концентрата на 29 мл воды). После инкубации sealing-пленку удаляли, жидкость сливали, а планшет промакивали насухо. Затем в каждую лунку вносили 200 µL промывочного буфера, выдерживали в течение 30 с и сливали жидкость; цикл повторяли 5 раз. Затем во все лунки, кроме холостых, добавляли реагент с ферментативной меткой (50 µL), после чего планшет снова герметизировали и инкубировали при 37 °C в течение 30 мин, за чем следовал аналогичный этап промывки в пять циклов.
Для проявления цвета в каждую лунку добавляли 50 µL раствора хромогена A, затем 50 µL раствора хромогена B, осторожно перемешивая содержимое после каждого добавления. Планшет инкубировали при 37 °C в темноте в течение 10 min. Ферментативную реакцию останавливали добавлением 50 µL стоп-раствора в каждую лунку, что приводило к быстрому изменению цвета с синего на желтый. Оптическую плотность измеряли при 450 nm с помощью микропланшетного ридера, используя пустые лунки в качестве контроля; все измерения проводили в течение 15 min после остановки реакции.
Luminex
Уровни факторов SASP в коре измеряли с помощью набора Bio‑Plex Pro Mouse Cytokine 23‑plex Assay; все процедуры проводили в соответствии с инструкциями производителя. Реагенты извлекали из хранения при 4 °C и выдерживали при комнатной температуре в течение 30 min перед использованием. Стандартные стоки разводили серийно для построения стандартной кривой по семи точкам, плюс одна холостая лунка, согласно протоколу набора. Магнитные микросферы предварительно смешивали и разводили до рекомендуемой рабочей концентрации; детектирующие антитела готовили в виде рабочих растворов; концентрат промывочного буфера разводили деионизированной водой до 1x. Конъюгат PE‑стрептавидина также разводили до 1x, используя прилагаемый буфер для разведения.
Для проведения анализа в соответствующие лунки согласно схеме планшета последовательно добавляли по 50 µL суспензии микросфер, стандартов, контролей качества и разведенных образцов ткани (5,6 µg/µL). Затем планшет герметично закрывали и инкубировали в течение ночи при 4 °C с орбитальным перемешиванием при 800 rpm. После инкубации микросферы промывали трижды, используя по 200 µL промывочного буфера на лунку. Затем в каждую лунку добавляли по 50 µL приготовленного детектирующего антитела, и планшет инкубировали при комнатной температуре в течение 1 ч при перемешивании со скоростью 800 rpm. После еще трех циклов промывки добавляли по 50 µL рабочего раствора PE‑стрептавидина, и планшет инкубировали еще 30 min при комнатной температуре в тех же условиях перемешивания. Выполняли заключительный этап промывки (трижды по 200 µL промывочного буфера), после чего в каждую лунку добавляли по 150 µL промывочного буфера и перемешивали планшет при комнатной температуре в течение 2 min при 800 rpm перед считыванием результатов на приборе Bio‑Plex.
Окрашивание на SA-β-Gal и иммуногистохимия
Окрашивание на SA-β-Gal проводили с использованием набора Senescence β-Galactosidase Staining Kit. После окрашивания на SA-β-Gal срезы подвергали демаскировке антигенов путем нагревания в цитратном буфере (pH 6.0). Эндогенную пероксидазную активность блокировали путем инкубации срезов в блокирующем растворе пероксидазы в течение 10 min при комнатной температуре. Затем срезы инкубировали с кроличьими моноклональными антителами к Aβ₁-₄₂ (1:400) при 4 °C в течение ночи. После промывки срезы инкубировали с вторичными антителами к IgG кролика/мыши в течение 20 min при комнатной температуре. Последующая промывка была завершена визуализацией иммунореактивности с помощью DAB в течение 2 min. В завершение срезы подвергли дегидратации, просветлению и заключали в нейтральную смолу для микроскопического исследования.
Иммунофлуоресценция
Для иммунофлуоресцентного окрашивания парафиновые срезы депарафинизировали в ксилоле (3 x 15 мин) и регидратировали через серию этанола decreasing concentrations (100%, 95% и 75%; по 2 x 5 мин на каждый этап). Восстановление антигенов проводили путем погружения срезов в 1x натрий-цитратный буфер при 95 °C в течение 30 мин с последующим постепенным охлаждением до комнатной температуры. После трех промывок фосфатно-солевым буфером с Твеном 20 (PBST) (по 5 мин каждая) срезы пермеабилизировали и блокировали 10% нормальной сывороткой козы, содержащей 0.3% Triton X‑100, в течение 90 мин при комнатной температуре. Затем срезы инкубировали с первичными антителами против p21/CIP1/CDKN1A (1:200) и Aβ₁‑₄₂ (1:400) при 37 °C в течение 2 ч. После четырех промывок PBST (по 5 мин каждая) срезы инкубировали с соответствующими по виду вторичными антителами, конъюгированными с Alexa Fluor (1:500), при 37 °C в течение 2 ч в темноте. После дополнительной промывки (4 x 5 мин в PBST) срезы заключали в антизатухающий монтирующий среду с DAPI и визуализировали с помощью флуоресцентного микроскопа.
Окрашивание по методу Гольджи-Кокса
Окрашивание по Гольджи-Коксу проводили с использованием коммерческого набора в соответствии с инструкциями производителя. Растворы A и B смешивали за 24 ч до начала эксперимента. После эвтаназии мышей ткани мозга быстро извлекали, промывали PBS и погружали в смесь растворов A и B. Ткани хранили при комнатной температуре в темноте в течение 6 ч, после чего раствор для импрегнации заменяли свежим и продолжали инкубацию еще в течение 2 недель при комнатной температуре в темноте (используя не менее 2 mL раствора для импрегнации на одну единицу ткани мозга). Затем ткани переносили в раствор C и инкубировали в течение 24 ч, после чего раствор C заменяли свежим и инкубировали еще 7 дней при комнатной температуре в темноте. Срезы тканей мозга толщиной 100 µm изготавливали с помощью вибратома. Срезы закрепляли на предметных стеклах с желатиновым покрытием и высушивали при комнатной температуре в течение 3 дней. Стеклами дважды промывали дистиллированной водой (по 5 мин), затем погружали в смесь раствора D, раствора E и дистиллированной воды (в соотношении 1:1:2) на 15 мин. После двух дополнительных промывок дистиллированной водой (по 5 мин) срезы обезвоживали в сериях этанольных растворов (50%, 75% и 95%; по 5 мин каждый), затем четырежды промывали в абсолютном этаноле (по 4 мин) и трижды в ксилоле (по 5 мин). В завершение срезы закрывали покровным стеклом с использованием среды для заключения препаратов. Изображения регистрировали с помощью микроскопа, а плотность дендритных шипиков количественно определяли с помощью ImageJ.
Статистический анализ
Все результаты представлены в виде среднего значения ± SD. Анализ и графическая обработка данных проводились с использованием программы GraphPad Prism 8.1.0. t-критерий Стьюдента Пожалуйста, предоставьте текст для перевода.-тест использовали для сравнения двух групп. Для сравнения нескольких групп применяли однофакторный дисперсионный анализ (ANOVA) с последующим проведением попарных сравнений с помощью теста Даннетта. Статистическая значимость была установлена на уровне p < 0.05.
Многомерный и корреляционный анализы
Анализ главных компонентов (PCA) был выполнен с помощью GraphPad Prism 8.0.1 для визуализации групповой кластеризации факторов SASP (IL-1α, IL-1β, IL-6, IL-17A, IFN-γ, CCL3, CCL4 и CCL5) в группах WT, 5xFAD и QFY (2,12 г/кг/день) (n = 8 в группе). График показателей был построен на основе двух первых главных компонентов. Перед проведением PCA преобразование данных не применялось. Для оценки линейных взаимосвязей между факторами SASP и синаптическими белками (PSD-95, GAP-43 и SYN), а также Aβ₁₋₄₀, Aβ₁₋₄₂ и соотношением Aβ₁₋₄₂/Aβ₁₋₄₀ был проведен корреляционный анализ Пирсона. Анализ выполнялся с помощью GraphPad Prism с двусторонним порогом значимости p < 0,05. Для визуализации силы и направления взаимосвязей были построены корреляционные матрицы и тепловая карта.
Результаты
Administration of QFY enhances learning and memory in 5xFAD mice
After QFY administration, a shuttle box test was conducted to assess the conditional active avoidance response of mice (Figure 2A–C). The results showed the number of active avoidances on days 1-4 (Figure 2A, p < 0.05) and the area under the curve (AUC) of active avoidance (Figure 2B, p < 0.01) during the learning period, and the number of active avoidances (Figure 2C, p < 0.05) during the test period were significantly reduced in 5xFAD mice compared with WT mice. The administration of donepezil and memantine significantly increased the number of active avoidances on day 2 during the learning period in 5xFAD mice (Figure 2A, p < 0.05). The administration of QFY significantly increased the number of active avoidances on days 3 and 4 (Figure 2A, p < 0.05), and the AUC of active avoidance (Figure 2B, p < 0.01 in QFY high-dose group) during the learning period, and the number of active avoidances (Figure 2C, p < 0.05 in QFY low-dose group) during the test period. This data indicates that the ability to perform an active avoidance response was impaired in 5xFAD mice, whereas QFY administration improved it.
We used the Morris water maze to evaluate spatial learning and memory in mice. The results showed (Figure 2D–I) that the escape latency on the first day (Figure 2D, p < 0.05) and AUC of escape latency (Figure 2E, p < 0.01) during learning period, escape latency in testing period (Figure 2F, p < 0.05) were obviously increased in 5xFAD mice compared with WT mice, the number of platform crossings (Figure 2H, p < 0.05) was reduced significantly in 5xFAD mice compared with WT mice. The administration of donepezil and memantine significantly reduced the AUC of escape latency during the learning period (Figure 2E, p < 0.05) and during the testing period (Figure 2F, p < 0.01). The treatment of QFY significantly reduced the AUC of escape latency during the learning period (Figure 2E, p < 0.05 in QFY low-dose and high-dose groups, p < 0.01 in QFY medium-dose group) and escape latency (Figure 2F, p < 0.01 in three QFY groups) during the testing period, and also prolonged the time in the target quadrant (Figure 2G, p < 0.05 in low-dose QFY group), increased the number of crossings (Figure 2H, p < 0.05 in low-dose QFY), evidently. These results indicate spatial learning and memory deficits in 5xFAD mice and that QFY treatment ameliorated these deficits.
Administration of QFY alleviates aging in 5xFAD mice
After QFY administration, gait, grip strength, and colony nesting tests were used to evaluate mouse aging. The results (Figure 3A) showed that, compared with WT mice, run duration, run maximum variation, and the step sequence regularity index decreased significantly in 5xFAD mice (p < 0.05). Run average speed (Figure 3A, p < 0.05), right forelimb (RF) stand index (Figure 3A, p < 0.01), left hindlimb (LH) stand index (Figure 3A, p < 0.05), RF max contact (Figure 3A, p < 0.01), right hindlimb (RH) swing speed (Figure 3A, p < 0.05), LH swing speed (Figure 3A, p < 0.01) and duty cycle (FIGURE 3A, p < 0.05) in 5xFAD was significant increased. The treatment of donepezil and memantine increased RH, stand index left forelimb (LF) stand index (Figure 3A, p < 0.05) and decreased LH duty cycle (Figure 3A, p < 0.01), also reduced RH initial dual stance (Figure 3A, p < 0.05) and LH terminal dual stance (Figure 3A, p < 0.01) of 5xFAD mice. The administration of QFY reduced LH duty cycle (Figure 3A, p < 0.05 in QFY low- and p < 0.01 in medium-dose group), RH initial dual stance (Figure 3A, p < 0.05 in QFY low-dose and high-dose group, p < 0.01 in QFY medium-dose group) and LH terminal dual stance (Figure 3A, p < 0.05 in QFY low-dose group, p < 0.01, in QFY medium- and high-dose group), also increased the run duration (Figure 3A, p < 0.05 in QFY low-and medium-dose group), run maximum variation (Figure 3A, p < 0.05 in QFY low- and medium-dose group), step sequence regularity index (Figure 3A, p < 0.01 in QFY low- and medium-dose group), LF stand index (Figure 3A, p < 0.05 in QFY low-dose group) and LH stand index (Figure 3A, p < 0.05 in QFY low-dose group) of 5xFAD mice. These results indicate that 5xFAD mice exhibited an abnormal gait, which QFY treatment restored.
After QFY administration, a grip-strength test was conducted to assess forelimb strength. The experimental data (Figure 3B) show that the forelimb strength of the 5xFAD mice was significantly weaker than that of WT mice (p < 0.01). The administration of donepezil and memantine (Figure 3B, p < 0.01), QFY (Figure 3B, p < 0.01, in QFY low-dose and high-dose groups) significantly increased the grip strength of the 5xFAD mice. These studies suggest that forelimb strength in 5xFAD mice has been enhanced by QFY treatment.
The results of colony nesting test showed (Figure 3C–G) that the nesting score of the 5xFAD mice were significantly lower than the WT mice at 6 h (Figure 3C, p < 0.05), 12 h and 24 h after the start of colony nesting (Figure 3DE, p < 0.01), and the untorn tissue weight was significantly higher of 5xFAD mice (Figure 3F, p < 0.01). Administration with donepezil and memantine just decreases the untorn tissue weight (Figure 3F, p < 0.01). The treatment with QFY increased nesting scores at 12 h (Figure 3D; QFY p < 0.05 in the QFY medium-dose group) and 24 h (Figure 3E; QFY p < 0.05 in the QFY low- and medium-dose groups). Moreover, the untorn tissue weight was significantly lower in the QFY low- and medium-dose groups (Figure 3F, p < 0.01) and in the QFY high-dose group (Figure 3F, p < 0.05). These results indicated that QFY treatment enhanced daily activity in 5xFAD mice.
Treatment of QFY reduces the synaptic structure damage in the cerebral cortex of 5xFAD mice
After QFY treatment, the cerebral cortex of mice was collected to measure the protein levels of GAP-43, PSD-95, and SYN by ELISA. The results (Figure 4A–C) showed that the contents of GAP-43 (Figure 4A, p < 0.05), PSD-95 (Figure 4B, p < 0.01), and SYN (Figure 4C, p < 0.01) in the cerebral cortex of the 5xFAD mice were significantly lower than those in WT mice. The protein content of GAP-43 (Figure 4A, p < 0.05), PSD-95 (Figure 4B, p < 0.01), and SYN (Figure 4C, p < 0.01) significantly increased after the treatment of QFY. The results of Golgi-Cox staining (Figure 4D) showed that the length of dendrites in the cerebral cortex of the 5xFAD mice was shorter (Figure 4G, p < 0.05) than that of WT mice. The treatment with QFY tended to increase the length, number, and density of dendritic spines.
Treatment of QFY reduced Aβ deposition and cellular senescence in the brains of 5xFAD mice
Aβ deposition and cellular senescence play important roles in AD pathogenesis. We used a combination of SA-β-Gal staining and Aβ immunohistochemistry to assess co-localization between SA-β-Gal and Aβ plaques. The result showed there was a large amount of SA-β-Gal aggregation and Aβ plaque deposition in the cerebral cortex of 5xFAD mice (Figure 5A), while only a few SA-β-Gal aggregations and Aβ plaque depositions were found after QFY treatment (Figure 5A). In addition, there was co-localization of SA-β-Gal and Aβ plaque.
Immunofluorescence assays revealed that 5xFAD mice brains were heavily laden with both Aβ plaques and p21-positive cells (Figure 5B,C). Administration of QFY significantly curtailed cortical Aβ plaque and attenuated p21 expression in these animals (Figure 5B,C). The results of ELISA showed that compared with WT mice, the content of Aβ1-42 and the ratio of Aβ1-42/ AΒ1-40 was significantly increased in the hippocampus of 5xFAD mice (Figure 5D,F, p < 0.01), while the treatment of QFY reduced them obviously (Figure 5D, p < 0.01; Figure 5F, p < 0.05, respectively).
Senescent cells typically secrete large amounts of SASP factors. The results of Luminex analysis showed the contents of IL-1α (Figure 5G, p < 0.05), IL-1β (Figure 5H, p < 0.01), IL-17A (Figure 5J, p < 0.05), CCL3 (Figure 5K, p < 0.01), CCL4 (Figure 5L, p < 0.01), CCL5 (Figure 5M, p < 0.01) and IFN-γ (Figure 5N, p < 0.01) were significantly increased in cortex of 5xFAD mice. QFY treatment decreased the contents of IL-1α (Figure 5G, p < 0.05), IL-1β (Figure 5H, p < 0.05), IL-6 (Figure 5I, p < 0.05), IL-17A (Figure 5J, p < 0.05), and IFN-γ (Figure 5N, p < 0.01) in the cortex significantly.
These data indicate that cellular senescence appeared in the brain of 5xFAD mice, while the treatment of QFY reduced cellular senescence in 5xFAD mice.
Effects of QFY ameliorating cognitive impairment and reducing the aging of brain cells in 5xFAD mice correlated with synaptic damage
Principal component analysis (PCA) was performed to assess the overall SASP expression profiles (IL‑1α, IL‑1β, IL‑6, IL‑17A, CCL3, CCL4, CCL5, and IFN‑γ) among WT, 5xFAD, and QFY‑treated groups (Figure 6A). The first two principal components accounted for 44.11% and 23.46% of the total variance, respectively. As shown in the PCA score plot (Figure 6A), the WT group was clearly separated from the 5xFAD group. Notably, the QFY‑treated group showed an intermediate position, clustering more closely with the WT group than with the 5xFAD group, suggesting partial normalization of the SASP profile after QFY treatment. Statistical analysis of PC1 scores (Figure 6B) revealed that the 5xFAD group exhibited significantly higher PC1 values than the WT group. PC2 scores (Figure 6C) also showed significant differences between the 5xFAD and WT groups. Loading plot analysis (Figure 6D) indicated that IL‑1α, IL‑1β, and IFN‑γ were the major contributors to PC1, whereas IL‑6 and CCL3 contributed more substantially to PC2.
We performed Pearson correlation analyses between IL-1α, IL-1β, and IFN-γ and the contents of PSD-95, GAP-43, and SYN in the cortex, as well as the contents of Aβ1-40 and Aβ1-42 and the ratio of Aβ1-42/Aβ1-40 in the hippocampus, and developed heatmaps to visualize the interplay between synaptic-associated protein and SASP function. IL-1α, IL-1β, and IFN-γ levels positively correlated with the contents of Aβ1-40 and Aβ1-42 and the ratio of Aβ1-42/Aβ1-40 (Figure 6E, p < 0.05), and negatively correlated with the content of SYN protein. The levels of IL-1α and IFN-γ were negatively correlated with the content of GAP-43 protein, and IL-1β was negatively correlated with PSD-95 protein (Figure 6E, p < 0.05). These data suggest that IL-1α, IL-1β, and IFN-γ are major contributors to synaptic dysfunction.
Data Availability:
All raw data supporting the findings of this study have been deposited in Figshare and are accessible via the private reviewer link: https://doi.org/10.6084/m9.figshare.33208029.
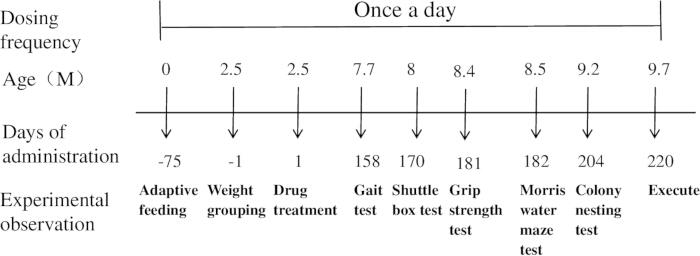
Figure 1: Schematic diagram of the experimental procedure. Please click here to view a larger version of this figure.
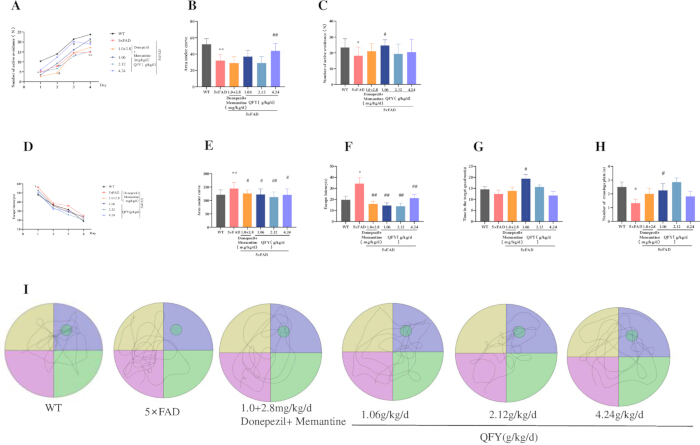
Figure 2: QFY administration improves learning and memory performance in 5xFAD mice. (A–C) Shuttle box test: (A) Number of active avoidance responses during the learning period. (B) Area under the curve (AUC) for active avoidance responses during the learning period. (C) Number of active avoidance responses during the test period. (D–I) Morris water maze test: (D) Escape latency during the learning period. (E) AUC for escape latency during the learning period. (F) Escape latency during the test period. (G) Time spent in the target quadrant. (H) Number of platform crossings. (I) Movement trajectories during the test period. Mean ± SD, n = 11–20 per group, with exact n indicated in each bar. * = p < 0.05, vs WT, Student`s t-test; # = p < 0.05, ## = p < 0.01, vs 5xFAD; One-way ANOVA followed by Dunnett's multiple comparisons test. Please click here to view a larger version of this figure.
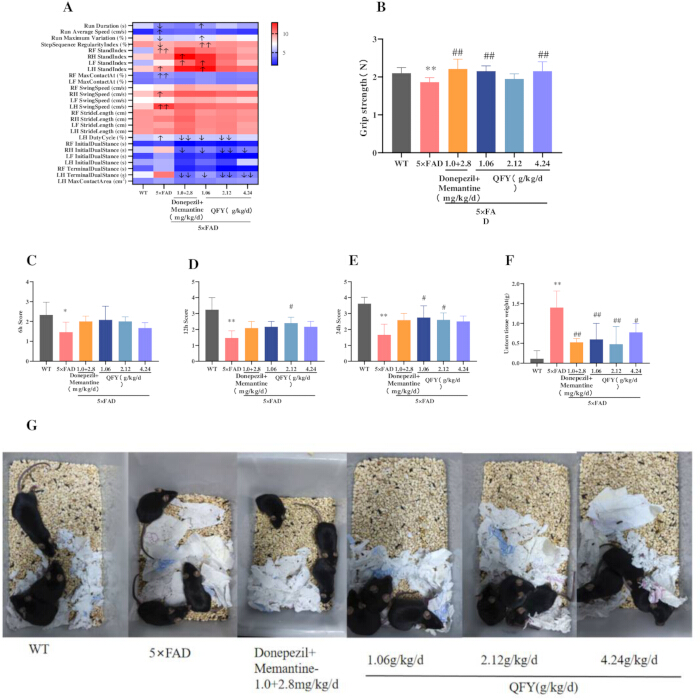
Figure 3: Effects of QFY administration on aging-associated functional measures in 5xFAD mice. (A) Gait heat map. The color scale is based on row‑wise Z‑score normalization, where red indicates values above the group mean, blue indicates values below the group mean, and white represents the mean level. (B) Grip strength test. (C–G) Colony nesting test: (C) Nesting score 6 h, (D) Nesting score at 12 h. (E) Nesting score at 24 h. (F) Untorn tissue weight. (G) Representative images of nests at 24 h. Mean ± SD, n = 3 per group, with exact n indicated in each bar. * = p < 0.05, ** = p < 0.01, vs WT, Student`s t-test; # = p < 0.05, ## = p < 0.01, vs 5x FAD, One-way ANOVA followed by Dunnett's multiple comparisons test. Please click here to view a larger version of this figure.
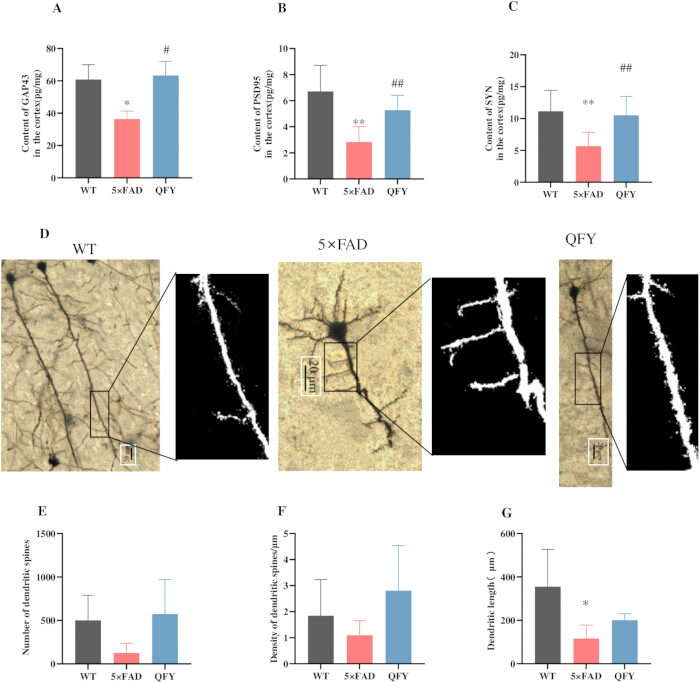
Figure 4: QFY attenuates synaptic structural alterations in the cerebral cortex of 5xFAD mice. (A) Content of GAP-43 in the cortex. (B) Content of PSD-95 in the cortex. (C) Content of SYN in the cortex. (D) Golgi-Cox staining. (E) Number of dendritic spines. (F) Density of dendritic spines. (G) Dendritic length. Mean ± SD, n = 3–14 per group, with exact n indicated in each bar. * = p < 0.05, ** = p < 0.01, vs WT, Student`s t-test; # = p < 0.05, ## = p < 0.01, vs 5xFAD, Student`s t-test. Please click here to view a larger version of this figure.
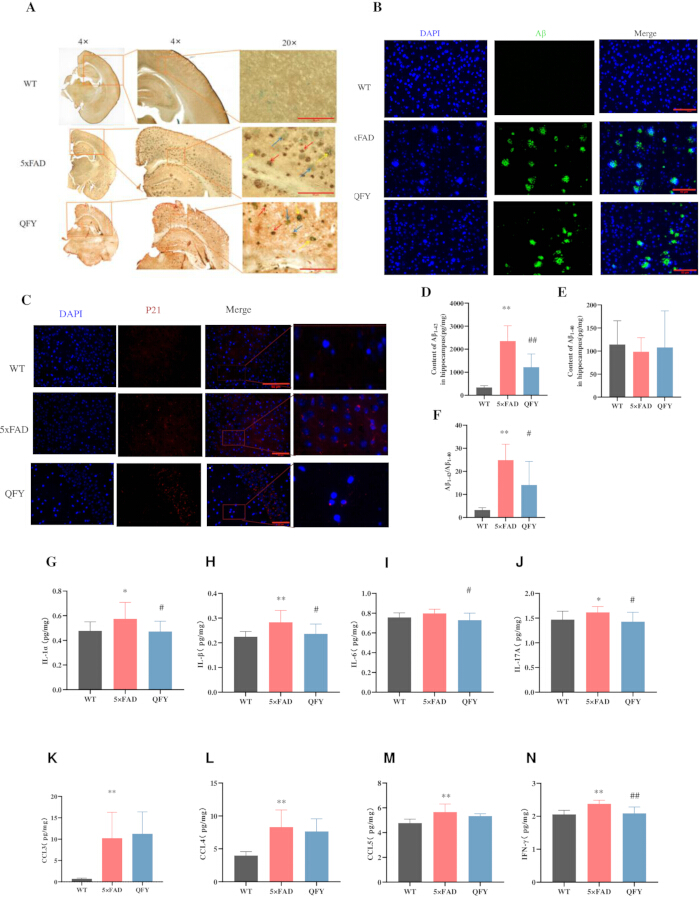
Figure 5: QFY reduced Aβ deposition and cell senescence in the brains of 5xFAD mice. (A) Combined SA-β-Gal staining and Aβ immunohistochemistry, SA-β-Gal (green, blue arrow), Aβ (brown, red arrow), SA-β-Gal + Aβ (yellow arrow), n = 3, Scale bar = 10 µm, 20x objective. (B) Immunofluorescence images showing Aβ in the cerebral cortex after treatment of QFY, n = 3, Scale bar = 50 µm, 40x objective. (C) Immunofluorescence images showing p21in the cerebral cortex after treatment of QFY. n = 1, Scale bar = 50 µm, 40x objective. (D–F) ELISA. (D) Content of Aβ1-42 in the hippocampus. (E) Content of Aβ1-40 in the hippocampus. (F) Aβ1-42/ Aβ1-40. (G–N) Luminex cytokine analysis. (G) Content of IL-1α in the cortex. (H) Content of IL-1β in the cortex. (I) Content of IL-6 in the cortex. (J) Content of IL-17A in the cortex. (K) Content of CCL3 in the cortex. (L) Content of CCL4 in the cortex. (M) Content of CCL5 in the cortex. (N) Content of IFN-γ in the cortex. Mean ± SD, n = 8–14 per group, with exact n indicated in each bar. * = p < 0.05, ** = p < 0.01, vs WT, Student’s t-test; # = p < 0.05 ## = p < 0.01, vs 5xFAD, Student’s t-test. Please click here to view a larger version of this figure.
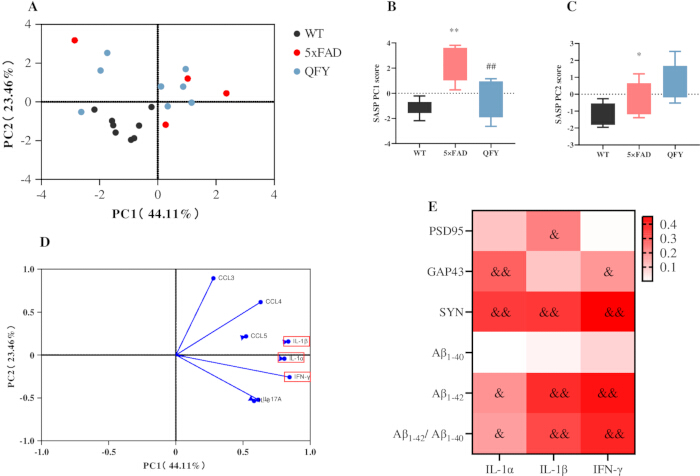
Figure 6: Principal component and correlation analyses of SASP factors, synaptic proteins, and Aβ levels in 5xFAD mice following QFY treatment. (A–D) Principal component analysis (PCA) of SASP factors. (A) PCA score plot. (B) PC1 scores. (C) PC2 scores. (D) PCA loading plot. (E) Heatmap generated from the correlation analysis between the SASP and PSD-95, GAP-43, SYN, Aβ1-40, Aβ1-42, and the ratio of Aβ1-42/Aβ1-40. Colors closer to red indicate higher R-values, while colors closer to white indicate lower R-values. Mean ± SD; n = 8 per group. * = p < 0.05, ** = p < 0.01,vs WT; ## = p < 0.01, vs 5xFAD, & = p < 0.05, && = p < 0.01, indicates a significant correlation. Pearson correlation analysis was used to assess associations between variables. Please click here to view a larger version of this figure.
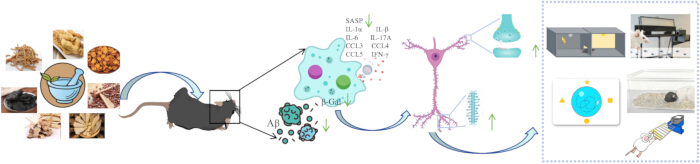
Figure 7: Proposed model of the effects of QFY on age-related cognitive decline and cellular senescence-associated phenotypes in 5xFAD mice. Please click here to view a larger version of this figure.
Обсуждение
Нейронная синаптическая пластичность играет ключевую роль в когнитивной функции. В головном мозге пациентов с болезнью Альцгеймера (БА) отложения Aβ распространяются по различным областям, что напрямую вызывает структурные повреждения синапсов, потерю возбуждающих синапсов и когнитивный decline28. GAP-43 (пресинаптический мембранный белок)29, PSD-95 (скаффолд-белок, локализованный в постсинаптической мембране)30 и SYN (фосфопротеин, связанный с синаптическими везикулами)31 играют важную роль в пластичности структуры синапсов и патогенезе БА32. В настоящем исследовании было обнаружено, что лечение QFY улучшает обучение и память, снижает нагрузку бляшек Aβ и восстанавливает структуру синапсов за счет увеличения количества дендритных шипиков и уровней белков GAP-43, PSD-95 и SYN в головном мозге мышей линии 5xFAD.
Старение является критическим фактором риска развития болезни Альцгеймера (БА) и способствует продукции Aβ. Признаки старения включают снижение мышечной силы, нарушение походки и ограничение в повседневной деятельности33,34. Было отмечено, что клеточное старение, характеризующееся экспрессией SA-β-Gal, связано со старением и возникновением возрастных заболеваний, таких как БА11,35. Селективное удаление стареющих клеток продлевает период здоровой жизни и замедляет развитие возрастных заболеваний36. Удаление стареющих клеток генетическими или фармакологическими методами уменьшало отложение Aβ и улучшало функции обучения и памяти у мышей с моделью БА37. Комбинированная терапия дазатинибом и кверцетином (D+Q) снижает старение клеток-предшественников олигодендроцитов, облегчает нейровоспаление, уменьшает количество бляшек Aβ и активность SA-β-Gal, а также предотвращает накопление Aβ и когнитивные нарушения у мышей APP/PS137. Лечение мемантином значительно снижало активность SA-β-Gal в головном мозге мышей SAMP8 и улучшало пространственное обучение и память; аналогичный эффект наблюдался при применении комбинации мемантина и донепезила38. В настоящем исследовании было обнаружено, что лечение QFY улучшало походку, укрепляло мышцы передних конечностей и улучшало способности в повседневной деятельности, в частности, за счет уменьшения клеточного старения, что подтверждается окрашиванием на SA-β-Gal в головном мозге мышей 5xFAD.
У пациентов с болезнью Альцгеймера (БА) и в моделях на животных наблюдаются стареющие астроциты, микроглия, эндотелиальные клетки и нейроны39,40. Секреция SASP, который включает хемокины и воспалительные цитокины, является отличительной чертой клеточного старения; избыточная секреция SASP может привести к хроническому воспалению, что влечет за собой повреждение тканей и клеточное старение41. Непрерывная секреция SASP, включая IL-1α, IL-1β, IL-6, IL-8, IFN-γ, CCL2, CCL3, CCL4, CCL5, CXCL1 и др., способствует развитию хронического воспаления, паракринному старению нормальных клеток, изменениям в клеточном метаболизме и эпигенетической регуляции, а также непрерывному производству Aβ42,43,44,45. Уровни IL-1α, IL-1β, IL-6, IL-17A и IFN-γ значительно повышены в мозге пациентов с БА и в моделях БА46. Исследования показали, что D+Q может подавлять секрецию воспалительных факторов, включая IL-1α, IFN-γ, а также снижать количество бляшек Aβ и активность SA-β-Gal у мышей APP/PS137. В исследовании было обнаружено, что QFY снижает экспрессию нескольких факторов SASP, включая IL-1α, IL-1β, IL-6, IL-17A и IFN-γ, тем самым ослабляя воспалительный фенотип старения.
p21 принадлежит к семейству ингибиторов циклин-зависимых киназ CIP/KIP и действует как проксимальный тормоз комплексов циклин-CDK2/4, обеспечивая остановку клеточного цикла в фазах G1/G2 при возникновении клеточного стресса, повреждении ДНК и старении. Стойкое повышение уровня p21 широко интерпретируется как переход к стабильной программе сенесценции47,48. Новые данные показывают, что у мышей 5xFAD наблюдается необычно высокая экспрессия p21 в головном мозге, которая заметно снижается при комбинированном лечении D+Q49. В соответствии с этим, в настоящем исследовании было обнаружено, что введение QFY значительно уменьшает количество бляшек Aβ в коре головного мозга и снижает экспрессию p21 у этих животных.
В совокупности эти результаты указывают на связь между применением QFY и улучшением показателей возрастного когнитивного снижения и фенотипов клеточного старения у мышей 5xFAD, а также на уменьшение структурных повреждений синапсов (Рисунок 7).
Следует признать ряд ограничений данного исследования. Во-первых, были использованы только самцы мышей 5xFAD, и вопрос о том, зависят ли наблюдаемые эффекты от пола, остается открытым. Во-вторых, хотя представленные данные демонстрируют сильную связь между ослаблением фенотипов, связанных со старением, и когнитивным улучшением, нами не проводились прямые эксперименты по механистическому вмешательству для установления причинно-следственной связи. В-третьих, трансляционная значимость полученных результатов для болезни Альцгеймера у людей ограничена межвидовыми различиями и отсутствием клинических фармакокинетических данных. Для расширения выводов необходимы дальнейшие исследования с участием самок животных, применением интервенций, специфичных для процессов старения, а также проведение тщательно спланированных клинических испытаний.
Раскрытие информации
Авторы заявляют об отсутствии конфликта интересов.
Благодарности
Данная работа была поддержана грантами Национального фонда естественных наук Китая (82205078, 82374062), Фонда естественных наук провинции Шаньдун (ZR2026MS1293, ZR2021QH157), Проектом в области науки и технологий традиционной китайской медицины провинции Шаньдун (M20251730), Научно-технологическими проектами Тибетского автономного района, Китай (XZ202601ZY0167) и Программой руководства технологическими инновациями провинции Шаньдун (Местный фонд развития науки и технологий под руководством центрального правительства) (YDZX2023137) в рамках проекта под названием «Разработка и исследование промышленного внедрения кишечнорастворимых капсул Тонли как нового традиционного китайского лекарственного средства 1-го класса».
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| Лекарственные препараты | |||
| Донепезил | Shanghai Yuanye Technology | партия J15HB188725 | |
| Мемантин | Shanghai Yuanye Technology | партия J21HB189391 | |
| Ци-фу-инь | Центр исследований и разработок Хоупу фармацевтической компании Lunan Pharmaceutical | партия 2209001 | |
| Поведенческие тесты | |||
| CatWalk XT | Noldus | программное обеспечение CatWalkXT 10.0 | |
| Динамометр кисти | Bileadbiosci | BLD-ZL-20 | |
| Водный лабиринт Морриса | Shanghai Xinruan Information Technology Co., Ltd | 120 см | |
| Челночная камера | Shanghai Xinruan Information Technology Co., Ltd | XR-XC404 | |
| Антитела | |||
| анти-Aβ1-42 антитело | Abcam | Кат. № ab201061 | |
| Антитело к p21/CIP1/CDKN1A | Novus Biologicals | Кат. № NBP3-15661 | |
| Наборы для анализа | |||
| Aβ1-40 набор для ИФА | Thermo Fisher Scientific | Кат. № KHB3482 | |
| Aβ1-42 Набор для ИФА | Thermo Fisher Scientific | Кат. № KHB3442 | |
| Набор для мультиплексного анализа 23 цитокинов мыши Bio-Plex Pro Mouse Cytokine 23-plex Assay kit | R&D Systems | Кат. № LXLBM23-1 | |
| Набор для ИФА на GAP-43 | Индустрия иммуноферментного анализа провинции Цзянсу | Кат. № MM-47506M1 | |
| Набор для окрашивания по методу Гольджи-Кокса | BeiJing Biolead Biology Sci & Tech Co | Кат. № PK401 | |
| Набор для ИФА на PSD-95 | Индустрия иммуноферментного анализа в провинции Цзянсу | Кат. № MM-45953M1 | |
| Сенесценция βНабор для окрашивания на $\beta$-галактозидазу | Beyotime | Кат. № C0602 | |
| Набор для ИФА на синаптофизин (SYN) | Индустрия иммуноферментного анализа в провинции Цзянсу | Кат. № MM-46504M1 | |
| Химические вещества & Реагенты | |||
| Антитела к IgG кролика и мыши (вторичные антитела) | Стартер | Кат. № S0C1001 | |
| хромоген DAB | Стартовая культура | Кат. № S0C1001 | |
| Программное обеспечение | |||
| CatWalk XT | Noldus Information Technology | Версия 10.0 | |
| ImageJ | Национальные институты здравоохранения (NIH) | Версия 1.53 |
Ссылки
- Joe E, Ringman JM. Cognitive symptoms of Alzheimer's disease: clinical management and prevention. BMJ. 2019;367:l6217.
- Scheff SW, et al. Synaptic alterations in CA1 in mild Alzheimer disease and mild cognitive impairment. Neurology. 2007;68(18):1501-8.
- Muralidar S, et al. Role of tau protein in Alzheimer's disease: the prime pathological player. Int J Biol Macromol. 2020;163:1599-617.
- Hardy JA, Higgins GA. Alzheimer's disease: the amyloid cascade hypothesis. Science. 1992;256(5054):184-5.
- Calsolaro V, Edison P. Neuroinflammation in Alzheimer's disease: current evidence and future directions. Alzheimers Dement. 2016;12(6):719-32.
- Campisi J. Senescent cells, tumor suppression, and organismal aging: good citizens, bad neighbors. Cell. 2005;120(4):513-22.
- Yao R. An in-silico assessment suggests the potential effects of goji (fruit of Lycium barbarum L.) against aging-related diseases. Food Med Homol. 2025;2(2):9420036.
- Campisi J, d'Adda di Fagagna F. Cellular senescence: when bad things happen to good cells. Nat Rev Mol Cell Biol. 2007;8(9):729-40.
- Salminen A, Kaarniranta K, Kauppinen A. ER stress activates immunosuppressive network: implications for aging and Alzheimer's disease. J Mol Med (Berl). 2020;98(5):633-50.
- Mirabella F, et al. Prenatal interleukin 6 elevation increases glutamatergic synapse density and disrupts hippocampal connectivity in offspring. Immunity. 2021;54(11):2611-31.e8.
- Baker DJ, Petersen RC. Cellular senescence in brain aging and neurodegenerative diseases: evidence and perspectives. J Clin Invest. 2018;128(4):1208-16.
- Lucas V, Cavadas C, Aveleira CA, Hook V. Cellular senescence: from mechanisms to current biomarkers and senotherapies. Pharmacol Rev. 2023;75(4):675-713.
- Bloss EB, et al. Evidence for reduced experience-dependent dendritic spine plasticity in the aging prefrontal cortex. J Neurosci. 2011;31(21):7831-9.
- Ye XS, et al. The food and medicine homologous Chinese medicine from Leguminosae species: a comprehensive review on bioactive constituents with neuroprotective effects on nervous system. Food Med Homol. 2025;2(2):9420033.
- Dickstein DL, Weaver CM, Luebke JI, Hof PR. Dendritic spine changes associated with normal aging. Neuroscience. 2013;251:21-32.
- Wang SY, et al. Qifu-Yin attenuates AGEs-induced Alzheimer-like pathophysiological changes through the RAGE/NF-kappaB pathway. Chin J Nat Med. 2014;12(12):920-8.
- Yang X, et al. Qi-fu-yin attenuated cognitive disorders in 5xFAD mice of Alzheimer's disease animal model by regulating immunity. Front Neurol. 2023;14:1183764.
- Xiao QY, et al. Effects of Qi-Fu-Yin on aging of APP/PS1 transgenic mice by regulating the intestinal microbiome. Front Cell Infect Microbiol. 2023;12:1048513.
- Chen K, et al. Safety and toxicity of Qi-Fu Yin, a classical traditional Chinese medicine prescription: a nonclinical research. J Appl Toxicol. 2025;45(9):1811-38.
- Wang L, Qiao P, Yue L, Sun R. Is Qi Fu Yin effective in clinical treatment of dementia? A meta-analysis of 697 patients. Medicine (Baltimore). 2021;100(5):e24526.
- Li H, et al. Identification of chemical components of Qi-Fu-Yin and its prototype components and metabolites in rat plasma and cerebrospinal fluid via UPLC-Q-TOF-MS. Evid Based Complement Alternat Med. 2021;2021:1995766.
- Lei X, et al. Integrating network pharmacology and component analysis to study the potential mechanisms of Qi-Fu-Yin Decoction in treating Alzheimer's disease. Drug Des Devel Ther. 2023;17:2841-58. doi:10.2147/DDDT.S402624.
- Takeshita H, et al. Modified forelimb grip strength test detects aging-associated physiological decline in skeletal muscle function in male mice. Sci Rep. 2017;7:42323.
- Caggiano V, et al. Midbrain circuits that set locomotor speed and gait selection. Nature. 2018;553(7689):455-60.
- Ehret B, et al. Population-level coding of avoidance learning in medial prefrontal cortex. Nat Neurosci. 2024;27(9):1805-15.
- Curdt N, et al. Search strategy analysis of Tg4-42 Alzheimer mice in the Morris water maze reveals early spatial navigation deficits. Sci Rep. 2022;12:5451.
- Deacon RMJ. Assessing nest building in mice. Nat Protoc. 2006;1(3):1117-9.
- Tu S, Okamoto SI, Lipton SA, Xu H. Oligomeric Aβ-induced synaptic dysfunction in Alzheimer's disease. Mol Neurodegener. 2014;9:48.
- Benowitz LI, Routtenberg A. GAP-43: an intrinsic determinant of neuronal development and plasticity. Trends Neurosci. 1997;20(2):84-91.
- Dore K, et al. PSD-95 protects synapses from β-amyloid. Cell Rep. 2021;35(9):109194.
- Kokotos AC, et al. Synaptophysin sustains presynaptic performance by preserving vesicular synaptobrevin-II levels. J Neurochem. 2019;151(1):28-37.
- Martin SB, et al. Synaptophysin and Synaptojanin-1 in Down syndrome are differentially affected by Alzheimer's disease. J Alzheimers Dis. 2014;42(3):767-75.
- Namioka N, et al. Oxidative stress and inflammation are associated with physical frailty in patients with Alzheimer's disease. Geriatr Gerontol Int. 2016;17(6):913-8.
- Kojima G, Liljas A, Iliffe S, Walters K. Prevalence of frailty in mild to moderate Alzheimer's disease: a systematic review and meta-analysis. Curr Alzheimer Res. 2017;14(12):1256-63.
- Dimri GP, et al. A biomarker that identifies senescent human cells in culture and in aging skin in vivo. Proc Natl Acad Sci U S A. 1995;92(20):9363-7.
- Baker DJ, et al. Naturally occurring p16Ink4a-positive cells shorten healthy lifespan. Nature. 2016;530(7589):184-9.
- Zhang P, et al. Senolytic therapy alleviates Abeta-associated oligodendrocyte progenitor cell senescence and cognitive deficits in an Alzheimer's disease model. Nat Neurosci. 2019;22(5):719-28.
- Ota H, Ogawa S, Ouchi Y, Akishita M. Protective effects of NMDA receptor antagonist, memantine, against senescence of PC12 cells: a possible role of nNOS and combined effects with donepezil. Exp Gerontol. 2015;72:109-16.
- Herdy JR, et al. Increased post-mitotic senescence in aged human neurons is a pathological feature of Alzheimer's disease. Cell Stem Cell. 2022;29(12):1637-52.e6.
- Hu Y, et al. Replicative senescence dictates the emergence of disease-associated microglia and contributes to Abeta pathology. Cell Rep. 2021;35(10):109228.
- Tchkonia T, et al. Cellular senescence and the senescent secretory phenotype: therapeutic opportunities. J Clin Invest. 2013;123(3):966-72.
- Guerrero A, De Strooper B, Arancibia-Cárcamo IL. Cellular senescence at the crossroads of inflammation and Alzheimer's disease. Trends Neurosci. 2021;44(9):714-27.
- Acosta JC, et al. A complex secretory program orchestrated by the inflammasome controls paracrine senescence. Nat Cell Biol. 2013;15(8):978-90.
- Wang B, Han J, Elisseeff JH, Demaria M. The senescence-associated secretory phenotype and its physiological and pathological implications. Nat Rev Mol Cell Biol. 2024;25(12):958-78.
- Gaikwad S, Senapati S, Haque MA, Kayed R. Senescence, brain inflammation, and oligomeric tau drive cognitive decline in Alzheimer's disease: evidence from clinical and preclinical studies. Alzheimers Dement. 2024;20(1):709-27.
- Si Z, Sun L, Wang X. Evidence and perspectives of cell senescence in neurodegenerative diseases. Biomed Pharmacother. 2021;137:111327.
- Chen X, et al. Senescence-like changes induced by expression of p21Waf1/Cip1 in NIH3T3 cell line. Cell Res. 2002;12(3-4):229-33.
- Engeland K. Cell cycle regulation: p53-p21-RB signaling. Cell Death Differ. 2022;29(5):946-60.
- Choi I, et al. Autophagy enables microglia to engage amyloid plaques and prevents microglial senescence. Nat Cell Biol. 2023;25(7):963-74.