В данном протоколе описывается внеклеточная электрофизиологическая регистрация визуально вызванных сигналов кардиостимулятора плавания из изолированного ропалия кубомедузы Tripedalia cystophora, что обеспечивает количественную оценку поведения по избеганию препятствий для точного исследования процессов обработки визуальной информации и сенсомоторной интеграции.
Методическая статья
Внеклеточная электрофизиологическая регистрация зрительно вызванных сигналов пейсмекера плавания изолированного ропалия Tripedalia cystophora
В этой статье
Краткое содержание
Аннотация
Кубомедуза Tripedalia cystophora сочетает в себе линзовидные глаза, формирующие изображение, и хорошо изученное визуально ориентированное поведение с доступной для исследования нервной системой ропалия, состоящей примерно из 10 нейронов, что делает ее перспективной моделью для системного изучения обработки визуальной информации и сенсомоторной интеграции. Нейроны-пейсмейкеры плавания генерируют двигательные команды, непосредственно управляющие сокращениями колокола; эти сигналы могут быть зарегистрированы внеклеточным методом из нерва эпидермального стебля изолированной ропалии, что служит количественным показателем визуально стимулированного моторного выхода. Сила отклика пейсмейкера, количественно определяемая как стандартизированная нейронная активность, выведенная из количества сигналов пейсмейкера и мгновенной частоты, масштабируется в зависимости от контраста стимула выше порога принятия решения (DTT), что позволяет проводить градуированную оценку визуально обусловленной сенсомоторной интеграции. В данном протоколе мы описываем изготовление внеклеточных вакуумных электродов, изоляцию ропалии, конфигурацию регистрирующей камеры, подачу визуального стимула на нижний линзовидный глаз, проверку синхронизации стимула на аппаратном уровне, размещение электрода на нерве эпидермального стебля, а также синхронизированный сбор электрофизиологических данных и данных о стимулах с использованием стандартного лабораторного оборудования.
Введение
Понимание того, как нервные системы обрабатывают сенсорную информацию и преобразуют ее в адаптивное поведение, является одной из центральных задач нейробиологии. Значительный прогресс был достигнут при изучении крупных сложных модельных организмов, таких как Drosophila melanogaster, чей мозг, состоящий примерно из 20 0 нейронов, позволил детально проанализировать организацию нейронных цепей1, наряду с другими генетически доступными моделями, для которых разработаны сложные инструменты визуализации и картирования цепей. Однако сама сложность этих систем затрудняет достижение полного системного понимания взаимосвязи между сенсорным входом, нейронными вычислениями и поведенческим выходом. На другом конце спектра сложности находятся небольшие полностью картированные системы, такие как система Caenorhabditis elegans, состоящая из 302 нейронов2, и другие модели с минимальным количеством нейронов; они обладают удобным для изучения размером, но лишены формирующих изображение глаз и зависящего от них визуально ориентированного поведения.
Tripedalia cystophora, карибская коробчатая медуза (Рисунок 1A), становится модельной системой для изучения обработки зрительной информации на системном уровне и сенсомоторной интеграции, занимая особое положение между этими крайностями3. Описанный здесь протокол (Рисунок 1) разработан для того, чтобы сделать весь экспериментальный потенциал этого животного доступным для широкого сообщества нейробиологов.
T. cystophora обладает зрительной системой исключительной сложности для животного с таким уровнем нейронной организации. Каждая из четырех сенсорных структур, называемых ропалиями, несет шесть глаз, включая два линзовых глаза, формирующих изображение: верхний линзовый глаз (ULE) и нижний линзовый глаз (LLE)4 (Рисунок 1B). Это не простые фоторецепторные органы — они оснащены линзой с градиентным показателем преломления типа Маттиссена (такая конструкция линзы также встречается в глазах позвоночных) и вывернутой сетчаткой, в которой примерно 60 фоторецепторов в LLE и 400 в ULE напрямую соединены с нейронами второго порядка5,6,7. Молекулярный состав фоторецепторного аппарата, включая книдопсы-опсины, гомологичные c-опсинам позвоночных, и связанные с ними компоненты фототрансдукции8,9,10, убедительно свидетельствует о том, что это гиперполяризующие фоторецепторы. Это относит зрительную систему T. cystophora к той же широкой функциональной категории, что и глаз позвоночных, несмотря на ее независимое эволюционное происхождение.
Важно отметить, что эти оптические особенности сочетаются со сложным, экспериментально характеризуемым поведением с визуальным управлением. T. cystophora ориентируется в оптически сложном биотопе мангровых зарослей, используя дальнюю навигацию и обнаружение световых столбов для поддержания своего положения в среде1,12, а также поведение по избеганию препятствий для обхода погруженных опорных корней12,13,14. Нейроэтологическая концепция, лежащая в основе данной работы, утверждает, что поведение является единственным достоверным показателем сенсорной обработки у животных, не владеющих языком. Поскольку мы не можем спросить животных о том, что они воспринимают, дизайн эксперимента должен быть адаптирован к стимулам, которые животное способно обнаружить и понять, и к действиям, которые оно способно совершить. Это означает, что экспериментальные вопросы должны формулироваться на условиях животного, а не исследователя. Поведение T. cystophora по избеганию препятствий служит примером этого принципа. Эпидермис коробки-медузы состоит всего из одного слоя клеток, поэтому столкновение с погруженным опорным корнем может стать фатальным из-за повреждения ее хрупкого тела. Поскольку межропалиальная интеграция происходит только ниже по течению через кольцевой нерв15, ни одна отдельная ропалиальная нервная система (RNS) не получает перекрывающихся бинокулярных сигналов, необходимых для вычисления глубины на основе стереоскопической диспаратности. Вместо этого животное использует фундаментальное свойство подводной оптики: контраст между объектом и окружающей водой быстро снижается с увеличением расстояния. Таким образом, высококонтрастное препятствие является близким и представляет непосредственную угрозу, в то время как низкоконтрастное препятствие находится далеко и пока не опасно. Животное использует контраст в качестве косвенного показателя расстояния16. У свободно перемещающихся животных поведение по избеганию препятствий (OAB) основано на принятии решения «идти/не идти»; событие инициируется, когда животное обнаруживает подводное препятствие, контраст которого превышает порог перехода принятия решения (DTT) — порог, выше которого препятствие считается достаточно близким, чтобы представлять угрозу, — и запускает ответную реакцию: 3–5 быстрых сокращений колокола, поворот на 120–180° и быстрое уплывание от препятствия14 (Рисунок 1C). Градуированный ответ водителя ритма при превышении DTT отражает степень срочности угрозы16. Таким образом, OAB представляет собой очень удобный поведенческий метод анализа сенсомоторной интеграции: один четко определенный визуальный параметр (контраст) управляет стереотипным, количественно измеримым моторным выходом, что делает эту систему идеальной для исследования нейронных основ принятия решений под визуальным контролем.
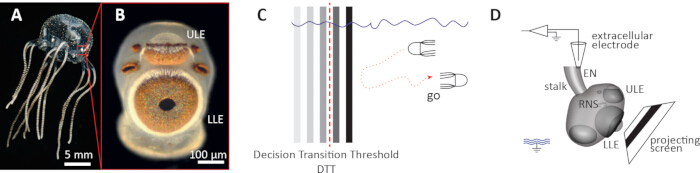
Рисунок 1Обзор Tripedalia cystophora приготовление изолированного ропалия для внеклеточной электрофизиологической регистрации. (A) Взрослые T. cystophora медуза. Масштабная линейка: 5 мм. Красным квадратом отмечено положение одного ропалия на крае зонтика. (B) Крупный план изолированного ропалия. Верхний линзовидный глаз (ULE) и нижний линзовидный глаз (LLE) являются формирующими изображение глазами. Масштабный отрезок: 100 µmИзображение Дана-Эрика Нильссона, воспроизведено с разрешения. (CСхематическое изображение поведения по обходу препятствия (OAB). Ниже порога принятия решения (DTT, красная пунктирная линия) животное продолжает плыть в сторону препятствия (отсутствие реакции). Выше DTT инициируется поведение по обходу препятствия (реакция).D) Схема электрофизиологической подготовки изолированного ропалия. Ропалий расположен лицом к наклонному проекционному экрану. Внеклеточный электрод регистрирует сигналы кардиопацемера плавания из эпидермального нерва стебелька (EN). RNS: нервная система ропалия; ULE: верхний линзовидный глаз; LLE: нижний линзовидный глаз; EN: эпидермальный нерв стебелька. Символ заземления обозначает референсный электрод ванны. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
Нейронным субстратом, опосредующим эту визуальную обработку, является RNS, состоящая примерно из 10 нейронов на один ропалиум17. Несмотря на ограниченное количество нейронов, RNS обладает сложной архитектурой. Иммуногистохимические данные свидетельствуют о том, что она организована в виде отдельных кластеров нейронов, экспрессирующих различные профили нейропептидов18, что соответствует компартментализированной архитектуре обработки. Предполагается, что визуальная информация обрабатывается через подчиненные осцилляторные кластеры (subOCs), каждый из которых связан с конкретным глазом ропалиума; эти кластеры сходятся в терминальном осцилляторном кластере (trmOC), который, как полагают, соответствует популяции клеток-пейсмейкеров, генерирующих двигательный выходной сигнал, контролирующий сокращения колокола3. Мы предполагаем, что trmOC интегрирует обработанную сенсорную информацию из subOCs и генерирует сигнал пейсмейкера плавания, который управляет поведенческим двигательным выходом, и что синхронизация между subOCs и trmOC лежит в основе преобразования визуального входного сигнала в выходной сигнал поведенческого контроля3 (Рисунок 2).
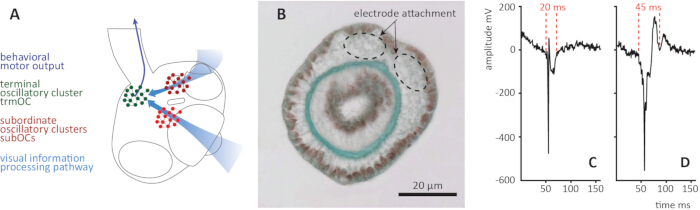
Рисунок 2Происхождение нейронной цепи и электрофизиологическая идентификация сигнала pacemaker-генератора плавания в Tripedalia cystophora. (AСхема нервной системы ропалия. Визуальная информация обрабатывается через подчиненные осцилляторные кластеры (subOCs, красные), связанные с отдельными глазами, и сходится в терминальном осцилляторном кластере (trmOC, зеленый). Предполагается, что trmOC интегрирует обработанную сенсорную информацию из subOCs и генерирует сигнал водителя ритма плавания, который определяет поведенческий моторный выход. Голубые стрелки указывают путь обработки визуальной информации; темно-синяя стрелка указывает поведенческий моторный выход.B) ПЭМ-микрофотография поверхности поперечного среза эпидермального стебля. Пунктирными кругами обозначены две точки прикрепления раздвоенного нерва эпидермального стебля на адоральной поверхности стебля, соответствующие местам размещения регистрирующих электродов. (C) Сигнал, подобный потенциалу действия. Форма волны характеризуется резким узким отклонением продолжительностью примерно 20 мс (отмечено красными пунктирными линиями). (D) Сигнал водителя ритма плавания, исходящий из trmOC. Форма волны более широкая, с характерной длительностью примерно 45 мс (отмечено красными пунктирными линиями), и обладает сложной морфологией, отражающей суммарную активность нескольких нейронов trmOC. Хотя амплитуды этих двух типов сигналов сопоставимы, длительность и морфология формы волны являются надежными дифференцирующими критериями для последующего анализа. Все электрофизиологические значения указаны после усиления (×100). Модифицировано с разрешения Bielecki et al.24. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
Такая архитектура создает исключительные экспериментальные возможности. Сигнал водителя ритма плавания, генерируемый trmOC, вызывает сокращения колокола в строгом соотношении один к одному19 и может быть зарегистрирован внеклеточным методом с эпидермального нерва стебля изолированного ропалия13,20. Это означает, что вызванные зрительным стимулом моторные команды и, следовательно, зрительно ориентированные поведенческие реакции могут отслеживаться с помощью электрофизиологических методов в препарате, из которого были полностью удалены сами моторные эффекторы14. Таким образом, изолированный ропалий занимает промежуточное методологическое положение, которое трудно достичь в других системах: он обеспечивает экспериментальный контроль, характерный для редуцированного препарата, включая точное определение пространственно-временных зрительных стимулов, сохраняя при этом возможность прямого количественного считывания нейронного выхода, значимого для поведения. В спокойном состоянии сигналы водителя ритма возникают с частотой 0,5–1 Hz; вызванные зрительным стимулом реакции избегания препятствий характеризуются увеличением частоты до 2–3 Hz, что обеспечивает четкое сигнальное окно для анализа14 (Рисунок 1D).
Такое сочетание свойств делает препарат изолированного ропалия T. cystophora подходящим для системного исследования процессов зрительного восприятия и сенсомоторной интеграции. Данный препарат будет полезен исследователям, стремящимся изучить зрительную обработку информации, сенсомоторную интеграцию или динамику осцилляторных сетей в доступной для изучения нервной системе с глазами, формирующими изображение, и хорошо охарактеризованным визуально-ориентированным поведением4. Для работы требуется стандартное электрофизиологическое оборудование, модифицированный коммерческий проектор и диссекционный микроскоп; такая установка может быть создана в лаборатории без специализированной инфраструктуры. Парадигма ассоциативного механо-визуального обучения — ассоциативное сопряжение одновременной визуальной и механосенсорной стимуляции, — ранее описанная для данного препарата14, может быть реализована в качестве расширения базового протокола регистрации, описанного здесь.
Протокол
Для данного исследования не требовалось получение этического разрешения по работе с животными. Стрекающие, включая Tripedalia cystophora, не подпадают под действие Директивы 2010/63/EU по защите животных, используемых в научных целях, которая распространяется только на головоногих моллюсков и позвоночных. Животных, использованных в этом исследовании, собирали в мангровых протоках у Ла-Паргеры, Пуэрто-Рико, США, которая не является участником Нагойского протокола по доступу к генетическим ресурсам и справедливому распределению выгод; таким образом, предварительное информированное согласие или соглашение об обеспечении доступа и распределении выгод не требовались. Вид Tripedalia cystophora не включён в список находящихся под угрозой исчезновения или охраняемых видов по Конвенции CITES или в соответствии с каким-либо национальным законодательством в области охраны природы.
1. Настройка сцены и сигнальной цепи
ПРИМЕЧАНИЕ: Все компоненты аппаратного обеспечения и их соединения показаны на Рисунке 3. Обращайтесь к Рисунку 3 на протяжении всего данного раздела. Все этапы в этом разделе должны быть завершены до начала работы с животным. На данном этапе камера для записи не заполняется морской водой.
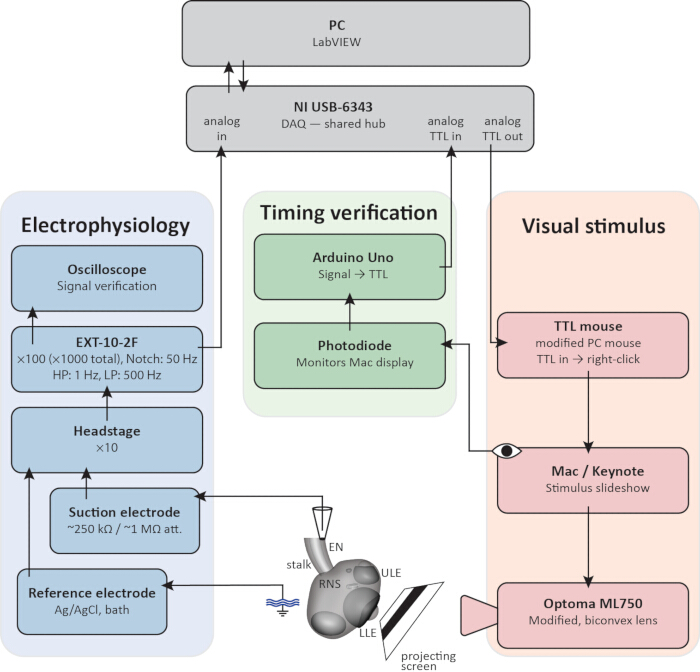
Рисунок 3: Схема подключения для внеклеточной электрофизиологической регистрации с изолированным ропалием. ПК, запускающий VI, и модуль сбора данных DAQ (вверху, серый) служат единым центром интеграции для всех трёх цепей сигнала. Электрофизиологическая цепь (синяя): сигналы пейсмекера плавания регистрируются с нерва эпидермального стебелька (EN) с помощью электрода-насадки (~250 кОм — сопротивление свободного кончика, ~1 МОм — прикреплённого) и ванночного опорного электрода из Ag/AgCl, усиливаются головным усилителем EXT-10-2F (×10) и основным усилителем (×100, суммарное усиление ×1000) с полосовым фильтром (HP: 1 Гц, LP: 500 Гц) и режекторным фильтром 50/60 Гц, отображаются на осциллографе и записываются модулем DAQ. Цепь визуального стимула (красная): импульс TTL с модуля DAQ переключает слайд-шоу стимулов через модифицированную компьютерную мышь (TTL-мышь), управляя DLP-проектором (модифицированный, с двояковыпуклой линзой), который проецирует стимул на наклонённую экранную стенку камеры записи перед нижним глазом с линзой (LLE). Цепь проверки синхронизации (зелёная): фотодиод отслеживает чёрно-белый индикаторный квадрат на экране компьютера, который переключается с белого на чёрный в момент начала стимула и возвращается к белому в момент его окончания; Arduino Uno преобразует этот сигнал в импульс TTL, который записывается модулем DAQ как подтверждённый временной интервал стимула. RNS: ропалиональная нервная система; ULE: верхний глаз с линзой; LLE: нижний глаз с линзой; EN: нерв эпидермального стебелька. Все значения амплитуды приведены после усиления (×1000). Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
- Создание камеры для записи
- Спроектируйте или изготовьте методом 3D-печати камеру для записи с внутренними размерами, достаточными для размещения препарата, наконечника удерживающей микропипетки и наконечника электрода для записи.
ПРИМЕЧАНИЕ: Ключевыми конструктивными элементами являются выступ для покровного стекла, который устанавливает ропалий на краю покровного стекла на расстоянии 2 мм от экрана проекции, и размеры экрана (16 мм × 12 мм, наклон 60°), которые совместно определяют угловое протяжение визуального стимула для глаза с нижним хрусталиком. Описываемая здесь камера имеет основание размером 30 мм × 30 мм и толщину стенок около 5 мм. Чертежи приведены в Рисунке 4. - Поместите гемоцитометрическое покровное стекло Roth размером 20 мм × 26 мм на выступы для покровного стекла в камере для записи. Покровное стекло удерживается за счёт отрицательной плавучести и не требует фиксации клеем.
- Закрепите камеру для записи на предметном столике микроскопа с использованием сквозных отверстий М6. Рекомендуется использовать столик с возможностью перемещения по осям x-y-z, так как это облегчает точную настройку проецируемого изображения на стенке экрана камеры для записи.
- Подключите входные и выходные порты проточного канала камеры для записи (Рисунок 4A) к термостату с циркулирующей водой, поддерживаемой при температуре 28 °C.
ПРИМЕЧАНИЕ: Температура в камере для записи должна поддерживаться в диапазоне 28–30 °C на протяжении всего эксперимента.
- Спроектируйте или изготовьте методом 3D-печати камеру для записи с внутренними размерами, достаточными для размещения препарата, наконечника удерживающей микропипетки и наконечника электрода для записи.
- Оптическая конфигурация (Рисунок 3, цепь визуального стимула)
ВНИМАНИЕ: Не смотрите непосредственно на выход проектора, особенно до установки светофильтров с нейтральной плотностью (раздел 4). Удаление заводской линзовой системы устраняет встроенное ослабление света и может привести к повреждению глаз.- Снимите заводскую линзовую систему с проектора.
- Установите перед выходным отверстием проектора одну двояковыпуклую линзу (f = 30 мм) для фокусировки проецируемого изображения на стенке экрана камеры для записи.
- Отрегулируйте положение проектора так, чтобы проецируемое изображение было сфокусировано на стенке экрана камеры для записи и заполняло весь экран (16 мм × 12 мм).
ПРИМЕЧАНИЕ: На этом этапе светофильтры с нейтральной плотностью ещё не устанавливаются. Подходящая плотность фильтра определяется эмпирически в ходе биологической калибровки в разделе 4.
- Сборка цепи сигнала (Рисунок 3, цепи электропроцессинга и проверки временных параметров)
- Подключите держатель электрода к рукоятке усилителя, поставляемой вместе с усилителем EXT-10-2F, и закрепите рукоятку в одном из микроманипуляторов MM33.
- Подключите рукоятку к основному усилителю. Коэффициент усиления рукоятки составляет ×10. Установите коэффициент усиления основного усилителя на ×100, что обеспечит общее усиление ×1000.
- Подключите выход усилителя к аналоговому входному каналу аналого-цифрового преобразователя (DAQ).
- Подключите DAQ к ПК, на котором запущена программа LabVIEW (версия 2018 или аналогичная), посредством USB.
- Подключите выход TTL микроконтроллера Arduino Uno к отдельному аналоговому входному каналу DAQ.
- Разместите фотодиод над чёрно-белым индикаторным квадратом на экране компьютера (шаг 1.4.2). Подключите положительный вывод фотодиода к аналоговому входу A0 микроконтроллера Arduino Uno, а отрицательный — к земле. Скетч для Arduino, реализующий логику мониторинга фотодиода и порогового выхода TTL, предоставлен в качестве дополнительного материала (Дополнительный файл 1).
- Проектирование геометрии стимула (Рисунок 3, цепь визуального стимула)
- Создайте визуальный стимул в программе для презентаций в виде движущейся вертикальной серой полосы на белом фоне, имитирующей препятствие в виде столбнякового корня мангрового дерева. Установите фон максимально белым.
ПРИМЕЧАНИЕ: Уровень серого полосы по отношению к белому фону определяет контраст стимула и устанавливается в ходе калибровки облучённости в разделе 4. Полоса должна занимать 30° угла зрения глаза с нижним хрусталиком (измеряется в центре поля зрения) и двигаться со скоростью 10° с-1 по всей ширине поля зрения, оставаясь в пределах поля зрения на всём протяжении движения. Угол зрения проецируемого препятствия можно определить по формуле:
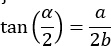
где α — угол зрения, a — ширина проецируемого элемента, b — расстояние от глаза с нижним хрусталиком до экрана. Движение полосы реализуется как непрерывная анимация одного объекта (например, эффект «Перемещение» в Keynote), применённая к объекту полосы в пределах одного слайда, а не как последовательность отдельных слайдов. Пример файла стимула с такой анимацией предоставлен в качестве дополнительного материала (Дополнительный файл 2). Поскольку ширина и скорость полосы задаются в угловых единицах, а не в физических, их необходимо пересчитать в миллиметры и мм/с с помощью приведённого выше уравнения, используя конкретное рабочее расстояние и размеры экрана камеры для записи, перед вводом значений размера объекта и длительности анимации в программе для презентаций. - Включите в угол слайда небольшой чёрно-белый индикаторный квадрат, который переключается с белого на чёрный в момент начала движения полосы и возвращается к белому цвету при окончании стимула. Контролируйте этот квадрат на экране компьютера с помощью фотодиода для проверки временных параметров стимула на шаге 3.3.
ПРИМЕЧАНИЕ: Чёрно-белый индикаторный квадрат обязательно появляется в проецируемом изображении на экране камеры для записи, поскольку он должен быть частью слайда, чтобы отображаться на экране компьютера во время презентации. Однако размер квадрата подобран так, чтобы он заполнял только чувствительную область фотодиода на экране компьютера. При проекции на экран камеры он настолько мал, что глаз с нижним хрусталиком не воспринимает его как отдельный визуальный элемент, а его вклад в общую яркость экрана пренебрежимо мал и не вызывает ответов на включение/выключение света4,13,20. - Переключение слайдов в программе для презентаций осуществляется с помощью автоматического или ручного триггера.
- Вариант А (автоматический): Создайте мышь с транзисторно-транзисторной логикой (TTL), модифицировав стандартную мышь для ПК так, чтобы кратковременный импульс 5 В по TTL от выхода DAQ заменял сигнал правого клика. Подключите TTL-мышь к компьютеру для презентаций по USB. Настройте программу для презентаций на переключение слайдов по сигналу правого клика.
- Вариант Б (ручной): Вручную переключайте слайды в момент начала стимула. Поскольку для анализа (шаг 6.2.1) в качестве окончательной временной метки используется подтверждённое Arduino временное окно стимула (канал 3), а не сам сигнал запуска, ручное переключение не снижает точность временных параметров, хотя и требует высокой точности действий оператора во время регистрации и менее удобно по сравнению с автоматическим вариантом.
- Создайте визуальный стимул в программе для презентаций в виде движущейся вертикальной серой полосы на белом фоне, имитирующей препятствие в виде столбнякового корня мангрового дерева. Установите фон максимально белым.
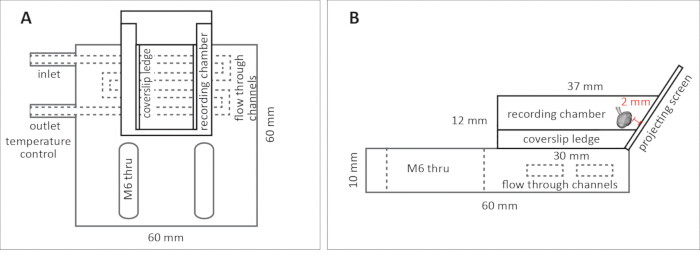
Рисунок 4: Измерительная камера для изолированного препараты ропалия. (А) Схема сверху. Измерительная камера снабжена каналами проточного типа для термостатирования с водяной рубашкой, с указанием входных и выходных портов (внешний диаметр 4,2 мм, внутренний диаметр 2,5 мм). Уступы для покровного стекла проходят в продольном направлении вдоль обеих внутренних стенок камеры, удерживая покровное стекло гемоцитометра на средней высоте камеры. Сквозные отверстия М6 служат для крепления камеры к предметному столику микроскопа. Общие размеры: 60 мм × 60 мм. (Б) Схема сбоку с указанием размеров. Внутренняя высота измерительной камеры составляет 12 мм, верхняя ширина — 37 мм. Одна из стенок камеры образует проекционный экран, наклонённый под углом 60° относительно вертикали для совмещения с оптической осью нижнего линзового глаза. Уступ для покровного стекла размещает ропалий у края покровного стекла, обращённого к проекционному экрану. Рабочее расстояние 2 мм, указанное на рисунке, соответствует конкретной конфигурации камеры, экрана и проектора, описанной в настоящем протоколе; читателям, адаптирующим данную конструкцию под другое оборудование, следует пересчитать подходящее рабочее расстояние для своей установки, используя уравнение из шага 1.4.1. Каналы проточного типа для контроля температуры проходят внутри основания измерительной камеры и не соприкасаются с препаратом. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
2. Изготовление электрода
ПРИМЕЧАНИЕ: Внеклеточные всасывающие электроды состоят из стеклянных капилляров с зауженными наконечниками, вытянутыми таким образом, чтобы образовалось отверстие, подходящее для создания всасывающего прилипания и регистрации электрических потенциалов. Стеклянный капилляр выполняет функцию электрической изоляции, обеспечивая регистрацию только потенциалов, возникающих в области наконечника. В капилляр вводится серебряный провод, который соединяется с усилителем. Такая конфигурация позволяет проводить многоканальную регистрацию, фиксируя электрические потенциалы от групп клеток-водителей ритма в области наконечника электрода по отношению к референтному электроду, помещённому в ванну. Электроды следует изготавливать в день использования, до начала сеанса регистрации. Хранение электродов может привести к закупорке наконечника, что препятствует втягиванию морской воды в капилляр и делает электрод неработоспособным. Вытянутые стеклянные капилляры имеют острые и хрупкие кончики. Осторожно обращайтесь с ними при изготовлении, чтобы избежать прокола, а сломанные, отбракованные или использованные капилляры утилизируйте в предназначенном для колюще-режущих отходов контейнере.
- Вытягивание стеклянной капиллярной трубки
- Загрузите капиллярную трубку из боросиликатного стекла (внутренний диаметр 1,16 мм × внешний диаметр 2,00 мм × длина 80 мм) в прибор для вытягивания микропипеток.
- Выполните следующую программу вытяжки: строка 1 (×1): нагрев 535, вытяжка 0, скорость 12, время 200, давление 600, подъём 540. Строки 2–4 (×3): нагрев 532, вытяжка 0, скорость 12, время 100.
ПРИМЕЧАНИЕ: Эти параметры зависят от используемого прибора, стекла и нити накаливания и могут потребовать корректировки при использовании другого оборудования или после износа нити; рассматривайте их как исходную точку, а не как фиксированную спецификацию. - Осторожно извлеките тянутый электрод и храните его в вертикальном положении, рабочим концом вверх, чтобы предотвратить механические повреждения.
- Полировка кончика электрода
- Отполируйте наконечник, чтобы создать гладкую поверхность, обеспечивающую вакуумное уплотнение, перпендикулярную оси капилляра. Обратитесь к двум приведённым ниже вариантам; рекомендуется вариант А (микроформовка).
- Вариант А: Полировка с помощью микровыжигателя (рекомендуется)
- Установите вытянутый электрод в микропечи.
- При увеличении 600× (объектив 40×, окуляр 15×) расположите наконечник вблизи нагревательной нити.
- Нагревайте и полируйте кончик, пока сопротивление отверстия не составит приблизительно 250 кОм (что соответствует ~1 МОм при контакте с тканью). При увеличении 600× это соответствует примерно трём делениям шкалы окулярного микрометра.
ПРИМЕЧАНИЕ: Для измерения сопротивления электрода подключите мультиметр между центральным контактом разъёма BNC (подключённым к серебряной проволоке электрода) и референтным электродом в ванне (таблетка Ag/AgCl) после заполнения электрода морской водой. Измерение электрического сопротивления не требуется для стандартных визуально вызванных записей, где основным критерием пригодности электрода является качество сигнала (шаг 6.1.5); оно становится необходимым, когда данная методика используется в парадигме ассоциативного обучения, требующей точной подачи тока, что выходит за рамки настоящего протокола.14. - Дайте электроду полностью остыть перед тем, как извлекать его из микровыжигателя.
- Вариант Б: Ручная полировка без использования микроплавильной установки
ОСТОРОЖНО: На этом этапе используется открытый огонь (спиртовая горелка). Держите легковоспламеняющиеся материалы подальше от огня и соблюдайте стандартные меры предосторожности при работе с открытым огнём в лаборатории.- Кратковременно поместите кончик капилляра в пламя спиртовой горелки до расплавления стекла и запечатывания кончика в виде мелкой капли.
- Дайте запечатанному наконечнику полностью остыть.
- Нанесите каплю деионизованной воды на лист мелкой наждачной бумаги (зернистость 1200) и удерживайте капилляр перпендикулярно поверхности бумаги.
- Обработайте наконечник, используя небольшие круговые движения, попеременно меняя направление по часовой стрелке и против часовой стрелки.
- Продолжайте осторожное шлифование, пока небольшое количество воды с осколками стекла не будет втянуто в наконечник за счёт капиллярного действия.
- Присоедините резиновую трубку к противоположному концу капилляра и подключите ее к шприцу.
- Аккуратно создайте слабое всасывание, чтобы протянуть деионизованную воду через наконечник и удалить осколки стекла.
- Если остатки загрязнений не удаляются, аккуратно отшлифуйте поверхность в течение небольшого дополнительного времени и повторите этап промывки.
ПРИМЕЧАНИЕ: Целевой расход через готовый микропипеточный электрод составляет приблизительно 1 см водяного столба за 10 с при слабом создаваемом вакууме. Успешность изготовления электрода определяется качеством регистрации сигнала (низкий уровень шума, высокая амплитуда), а не внешним видом наконечника. Примерно 40–50 % изготовленных электродов при использовании любого из методов полировки позволяют получать такие записи, хотя ограничивающие факторы различаются между ними. При полировке в микропечи (вариант А) неудачи чаще всего обусловлены неравномерной геометрией отверстия, возникающей на этапе вытягивания (шаг 2.1), которую последующая термополировка не может полностью исправить. При ручной полировке (вариант Б) успех в первую очередь зависит от мастерства оператора; наиболее распространённая ошибка — чрезмерно большое отверстие из-за избыточного шлифования. Гладкое, правильно подобранное по размеру и круглое отверстие значительно повышает вероятность получения качественной записи, но не гарантирует её — конечным и единственным критерием остаётся функциональный результат.
- Сборка электрода
- Вставьте отполированный капилляр в держатель электрода, убедившись, что провод Ag/AgCl (серебро/хлорид серебра) полностью протянут и не имеет изгибов внутри стеклянного капилляра, и закрепите его в держателе головки, поставляемом вместе с усилителем EXT-10-2F. Закрепите держатель головки в микроманипуляторе MM33.
ПРИМЕЧАНИЕ: Если серебряный провод не хлорирован, выполните хлорирование электролитически, погрузив серебряный провод электрода и отдельный твёрдый серебряный электрод в раствор KCl концентрацией 2 М, подключив их с помощью изолированных проводов к источнику постоянного тока 12 В. Подавайте ток интервально примерно по 2 минуты, визуально проверяя провод между циклами; провод считается достаточно хлорированным, когда его поверхность заметно потемнеет, что обычно происходит в течение 5 минут суммарно. После хлорирования тщательно промойте провод деионизованной водой. Нехлорированный провод может вызвать значительный и нестабильный постоянный сдвиг потенциала.
ОСТОРОЖНО: Электролитическое хлорирование в растворе KCl выделяет хлор и водород. Проводите процедуру в хорошо вентилируемом помещении. Утилизируйте использованный раствор KCl для хлорирования в соответствии с правилами институции по утилизации опасных отходов. - Заполните электрод непосредственно перед записью, втянув морскую воду непосредственно из заполненной камеры для записи в капилляр до тех пор, пока внутренний раствор не поднимется до середины серебряной проволоки. Процедура заполнения описана в шаге 3.1.
ПРИМЕЧАНИЕ: Для удерживающих микропипеток не требуются оптические или электрические характеристики, необходимые для регистрирующих электродов. Электроды, отбракованные при изготовлении (шаг 2.2) из-за чрезмерно большого диаметра наконечника (сопротивление ниже 250 кОм) или несоосной геометрии наконечника, подходят для этой цели и должны сохраняться. Изготовление специализированных удерживающих микропипеток не требуется.
- Вставьте отполированный капилляр в держатель электрода, убедившись, что провод Ag/AgCl (серебро/хлорид серебра) полностью протянут и не имеет изгибов внутри стеклянного капилляра, и закрепите его в держателе головки, поставляемом вместе с усилителем EXT-10-2F. Закрепите держатель головки в микроманипуляторе MM33.
3. Валидация системы
В этом разделе проверяется правильность работы всей системы регистрации — электрода, сигнальной цепи, подачи стимула и проверки временных параметров — до введения экспериментальной подготовки. Полная сигнальная цепь показана на Рисунке 3. Перед продолжением убедитесь, что все соединения выполнены.
- Заполнение камеры и подготовка электродов
- Заполните камеру для записи 0.20 µm профильтрованную морскую воду из культурального резервуара. Это обеспечивает постоянство химического состава между культуральной средой и камерой для записи, предотвращая воздействие на ропалий посторонних соединений или изменений в химическом составе воды, которые могут повлиять на активность водителя ритма или жизнеспособность препарата.
- Заполните регистрирующий всасывающий электрод, набрав морскую воду непосредственно из камеры для записи в капилляр до тех пор, пока внутренний раствор не достигнет середины серебряного провода. Наполните удерживающую микропипетку достаточным количеством морской воды из камеры для записи, чтобы обеспечить прилипание кристалла за счёт всасывания.
- Поместите спечённый электрод Ag/AgCl (серебро/хлорид серебра) в ванну для записи и подключите его к входу референтного электрода головной ступени.
- Заземление и проверка уровня шумов
ОСТОРОЖНО: данная установка предусматривает работу электрического оборудования в непосредственной близости от морской воды. Держите все электрические соединения и оборудование подальше от камеры и возможных разливов, соблюдайте установленные в учреждении правила электробезопасности при работе во влажной среде.- Подключите все приборы к одной общей заземляющей точке (конфигурация звездообразного заземления), чтобы предотвратить образование контуров заземления.
- Контролируйте сигнал на осциллографе. Перед продолжением убедитесь, что фоновая линия чистая и не содержит шумов.
ПРИМЕЧАНИЕ: В нашей лаборатории клетки Фарадея, как правило, не используются для внеклеточных записей, поскольку тщательное звездообразное заземление consistently оказывается более эффективным способом устранения электрических помех (50/60 Гц), чем физическое экранирование.
- Цепочка проверки временных параметров
- Запустите виртуальный прибор LabVIEW (VI), поставляемый в качестве дополнительного материала, Дополнительный файл 3). Запустите VI во время валидации системы. Это посылает TTL-импульс на TTL-мыши для запуска формирования стимула и генерирует выходной файл .txt, позволяющий проверить правильность регистрации всех каналов — электропизиологического сигнала, TTL от LabVIEW и TTL от Arduino — до введения экспериментальной подготовки.
ПРИМЕЧАНИЕ: Задержка между командой TTL, зарегистрированной в LabVIEW, и началом стимула, подтверждённым Arduino, варьируется непредсказуемо между записями и на данном этапе не устраняется; вместо этого она определяется и корректируется индивидуально для каждой записи на этапе анализа (шаг 7.2.1). - Убедитесь, что TTL-импульс от устройства сбора данных правильно запускает формирование стимула и что визуальный стимул доставляется на экран проекции в соответствии с заданным дизайном.
- Убедитесь, что Arduino Uno фиксирует изменение черно-белого индикаторного квадрата на экране компьютера и выдает импульс ТТЛ на устройство сбора данных (DAQ).
ПРИМЕЧАНИЕ: Arduino Uno считывает напряжение с фотодиода с помощью функции analogRead(A0). Когда значение становится ниже порогового уровня, определённого эмпирически (61 из диапазона 0–1023 функции analogRead в данной установке), цифровой выходной контакт 5 устанавливается в состояние 5 В (TTL высокий уровень); когда значение возвращается выше порога, выходной сигнал возвращается к 0 В. Данный порог зависит от конкретной установки и должен калиброваться заново для каждого экрана и каждой конфигурации окружающего освещения. - Убедитесь, что сигнал TTL от окна стимуляции с платы Arduino Uno корректно записан в файл .txt, созданный программой LabVIEW VI, вместе с данными электропизиологического канала и цифрового канала TTL самой программы LabVIEW VI.
ПРИМЕЧАНИЕ: Сигнал фотодиода не записывается напрямую с помощью системы сбора данных (DAQ), поскольку исходный выходной сигнал фотодиода слишком зашумлён для надёжного обнаружения стимула на входе DAQ. Преобразование сигнала в чистый импульс уровня TTL с помощью платы Arduino Uno обеспечивает надёжный временной сигнал с низким уровнем шумов. Программный скетч для Arduino, реализующий мониторинг сигнала фотодиода и формирование выходного сигнала TTL, предоставлен в качестве дополнительного материалаДополнительный файл 1). Частота обновления Arduino 1 кГц соответствует частоте дискретизации системы сбора данных, что гарантирует отсутствие потерь временной информации. - После проверки всех каналов опорожните камеру для записи и извлеките электрод из камеры для подготовки к разделу 4.
- Запустите виртуальный прибор LabVIEW (VI), поставляемый в качестве дополнительного материала, Дополнительный файл 3). Запустите VI во время валидации системы. Это посылает TTL-импульс на TTL-мыши для запуска формирования стимула и генерирует выходной файл .txt, позволяющий проверить правильность регистрации всех каналов — электропизиологического сигнала, TTL от LabVIEW и TTL от Arduino — до введения экспериментальной подготовки.
4. Калибровка освещения и определение контраста
ПРИМЕЧАНИЕ: В этом разделе устанавливается правильная оптическая конфигурация для визуальной стимуляции нижнего глаза с линзой и определяются значения облучённости, необходимые для расчёта контраста. Для биологической калибровки используется жертвенный ропалий. Характеристика облучённости проводится без какой-либо подготовки в камере. Этот раздел требует значительных временных затрат. Биологическая калибровка, характеристика облучённости на всех уровнях серого и расчёты контраста могут потребовать отдельного сеанса до дня записи. Ропалий, использованный для биологической калибровки, должен быть выброшен после выполнения этого раздела и не может использоваться для записи.
- Биологическая калибровка
- Заполните камеру для записи 0.20 µm фильтрованная морская вода из культурального резервуара
- Выделите ропалий и перенесите его в камеру для записи в соответствии с процедурой, описанной в разделе 5.
- Поместите ропалий на край покровного стекла, обращённый к проекционному экрану, с помощью удерживающей микропипетки (Рисунок 1D).
ПРИМЕЧАНИЕ: Размещение ропалия на краю покровного стекла, а не на его поверхности, преследует две цели: во-первых, край покровного стекла можно установить на фиксированном, воспроизводимом расстоянии от проекционного экрана, что обеспечивает постоянство рабочего расстояния во всех записях; во-вторых, нижний глаз с линзой не должен смотреть сквозь стекло покровного стекла на экран, что позволяет избежать угловых искажений визуального стимула. Расстояние от края покровного стекла до проекционного экрана определяет угловое протяжение всех проецируемых стимулов для нижнего глаза с линзой и должно оставаться постоянным во всех записях. В камере, описанной в данном протоколе, это расстояние составляет 2 мм. - Присоедините регистрирующий электрод к нерву эпидермального стебелька в соответствии с процедурой, описанной в шаге 6.1.
- Предъявите движущееся по всей ширине поля зрения препятствие с максимальным контрастом (c ≈ 1,0, черная полоса на белом фоне) и оцените ответ сигнала водителя ритма (Рисунок 1C; Рисунок 5).
ПРИМЕЧАНИЕ: Фотометрические измерения подтвердили максимально достижимый контраст c ≈ 0,99 между самым светлым и самым тёмным уровнями серого в используемой системе проекции, что обусловлено остаточной яркостью в чёрной точке проектора, а не ограничением в дизайне стимулов; именно это лежит в основе приближённого обозначения (c ≈ 1,0), используемого в настоящем протоколе для стимулов с максимальным контрастом.
ПРИМЕЧАНИЕ: (КРИТИЧЕСКИ ВАЖНО) Удовлетворительный ответ характеризуется выраженным увеличением частоты сигнала водителя ритма выше 2 Гц, возникающим в виде кратковременного, привязанного ко времени всплеска в момент, когда передний край препятствия достигает центра поля зрения, а не поддерживается на протяжении всего периода предъявления стимула, при этом во время всплеска возникает приблизительно 5–15 сигналов водителя ритмаРисунок 5B). Сила ответа, как по частоте, так и по количеству сигналов, возрастает с увеличением контрастности стимула; поэтому ответ на стимул с максимальным контрастом (c ≈ 1,0) должен быть максимально выраженным, поскольку это свидетельствует о правильной ориентации LLE, правильном подключении электрода и корректной калибровке проектора, а также обеспечивает достаточный динамический диапазон для различения ответов при более низких уровнях контраста. Это подтверждает, что фоторецепторы функционируют в пределах своего динамического диапазона и не насыщаются из-за чрезмерной облучённости. Если при здоровой препарате, демонстрирующем спонтанную активность водителя ритма с частотой 0,5–1 Гц, не наблюдается модуляции частоты водителя ритма, следует заподозрить насыщение фоторецепторов вследствие избыточной облучённости. Вставьте светофильтр нейтральной плотности (например, Thorlabs NE01A, оптическая плотность = 0,1, по мере необходимости) в объективную систему и повторите калибровку. Постепенно увеличивайте степень ослабления до тех пор, пока не будет достигнут выраженный ответ частоты водителя ритма. Все последующие записи должны выполняться с использованием данной конфигурации фильтра. - После достижения удовлетворительного биологического отклика зафиксируйте конфигурацию нейтрального светофильтра. Данная конфигурация остаётся неизменной для всех последующих записей с данной оптической установкой.
- Удалите ропалий из камеры записи и утилизируйте. Ропалий, использованный для биологической калибровки, нельзя применять для записи из-за времени, прошедшего в ходе процедуры калибровки.
- Характеристика облучённости
- Опустошите измерительную камеру и убедитесь, что поверхность проекционного экрана сухая. Разместите волокно спектрометра непосредственно на поверхности проекционного экрана и перпендикулярно ей.
ПРИМЕЧАНИЕ: Большинство оптических волокон спектрометров не являются водонепроницаемыми. Перед тем как поместить волокно на экран, камера должна быть пустой, а поверхность экрана — сухой. - С помощью программного обеспечения для презентаций равномерно осветите экран проектора каждым уровнем серого, подлежащим измерению, и зарегистрируйте облучённость (350–700 нм) с использованием спектрометра.
ПРИМЕЧАНИЕ: Рекомендуется работать от максимального к минимальному уровню серого (от белого к чёрному), поскольку спектрометр с наибольшей вероятностью будет пересвечен при высоких уровнях облучённости. В разных точках диапазона уровней серого может потребоваться повторная калибровка времени интегрирования для предотвращения как пересвечивания, так и недосвечивания. Этот процесс для всех уровней серого является трудоёмким и должен планироваться соответствующим образом. - Корректируйте каждое измеренное значение облучённости с учётом спектра поглощения T. cystophora 500 нм опсин, присутствующий в нижнем линзовом глазу21,22.
ПРИМЕЧАНИЕ: Коррекция опсина выполняется путем умножения измеренной облученности на каждой длине волны на соответствующий коэффициент поглощения из шаблона зрительного пигмента Говардовского для λmax 500 нм21, затем суммируя по всему измеренному диапазону длин волн для получения одного значения осцинов-скорректированной облучённости. Этот расчёт может быть выполнен в любом стандартном программном обеспечении для электронных таблиц после получения исходных данных спектральной облучённости. - Рассчитайте контраст каждого уровня серого с использованием скорректированных значений облучённости:

где Iw является опсин-скорректированной освещённостью белого фона Ig является осцином-скорректированной облучённостью серой или чёрной полосы. Значения контраста варьируются от 0 (полоса неотличима от фона) до 1 (максимальный контраст, чёрная полоса на белом фоне). - По рассчитанным значениям контрастности определите уровни серого, соответствующие требуемым уровням контрастности для экспериментального протокола. Обновите презентацию в программном обеспечении для демонстрации, используя эти уровни серого.
ПРИМЕЧАНИЕ: Контраст представляет собой отношение значений облучённости и поэтому не чувствителен к равномерным изменениям абсолютной мощности лампы на всех уровнях серого. Характеристику облучённости не нужно повторять между сеансами записи, если оптическая конфигурация остаётся неизменной. Однако пользователям рекомендуется проверить стабильность облучённости, если в ответах на стимул между сеансами наблюдаются неожиданные изменения.
- Опустошите измерительную камеру и убедитесь, что поверхность проекционного экрана сухая. Разместите волокно спектрометра непосредственно на поверхности проекционного экрана и перпендикулярно ей.
<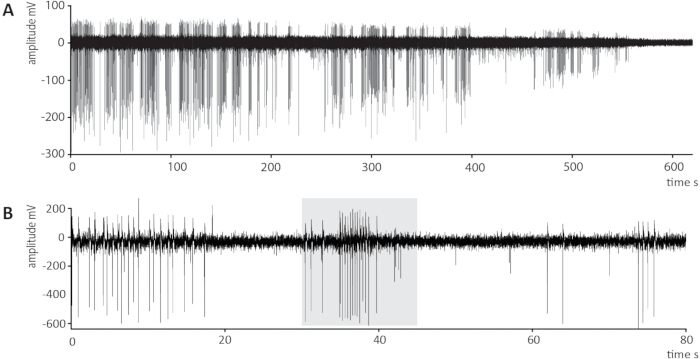
Рисунок 5: Типичные внеклеточные записи сигналов пейсмекеров плавания из изолированного ропалия Tripedalia cystophora. (А) Пример постепенной потери уплотнения электрода в ходе длительной сессии записи. Амплитуда сигнала пейсмекера начинает снижаться примерно на 200–250 с, что отражает ухудшение электрического контакта между кончиком электрода и нервом эпидермального стебелька, и сигнал полностью теряется к 580–600 с. Амплитуда сигнала и уровень фонового шума уменьшаются параллельно — это характерный признак потери уплотнения. (Б) Типичная запись визуально вызванного ответа на избегание препятствия над DTT. Серая заштрихованная область обозначает временное окно стимула, определённое TTL-сигналом с Arduino, в течение которого вертикальная полоса-препятствие с высоким контрастом (c = 0,80) перемещалась по всей ширине поля зрения нижнего линзового глаза. Частота сигнала пейсмекера резко возрастает в течение окна стимула, что соответствует визуально вызванному ответу избегания препятствия, и возвращается к базовому уровню после окончания стимула. Спонтанные сигналы пейсмекера, возникающие вне окна стимула, являются ожидаемыми и не относятся к визуально вызванным ответам. Обратите внимание, что различие в масштабе оси Y между панелями отражает различное качество записи и не указывает на разницу в силе сигнала; во внеклеточной электрофизиологии амплитуда сигнала зависит от качества уплотнения электрода, а не от величины физиологического ответа. Все значения приведены после усиления сигнала (×1000). Пожалуйста, нажмите здесь, чтобы посмотреть увеличенную версию этого рисунка.
5. Выделение и перенос ропалия
ПРИМЕЧАНИЕ: Эту процедуру выполняют каждый раз, когда требуется ропалий: один раз с использованием контрольного ропалия для биологической калибровки в разделе 4 и затем для каждого экспериментального ропалия, применяемого в разделе 6. Каждый раз всё оборудование необходимо полностью собрать и проверить до начала работы с животным. Количество экспериментальных ропалиев определяется экспериментальным планом.
- Используя одноразовую пластиковую пипетку для переноса, кончик которой срезан так, чтобы диаметр отверстия составлял приблизительно 8 мм, перенесите одно животное из культурального сосуда в чашку Петри диаметром 35 мм, содержащую 0.20 µm фильтрованная морская вода из культурального резервуара
- Удалите излишки морской воды, пока животное не прижмётся ко дну блюда и не станет неподвижным, но не пересушите его.
- Используя мелкие ножницы (ножницы Ваннаса, лезвие 0,025 мм × 0,015 мм), перережьте ножку, соединяющую ропалий с колокольчиком, приблизительно на расстоянии двух третей длины ножки от места прикрепления ропалия (т.е. дистальнее ропалия). Сразу после перерезания долейте в чашку Петри 0.20 µm фильтрованная морская вода из культурального резервуара
ОСТОРОЖНО: ножницы Ваннаса чрезвычайно остры. Во время диссекции обращайтесь с ними осторожно, чтобы избежать травм.
ПРИМЕЧАНИЕ: После пересечения ропалий может втягиваться в ропалиевую нишу. В большинстве случаев повторное наполнение чашки Петри фильтрованной морской водой приведёт к выпадению ропалия. Если это не произойдёт, аккуратно вымойте его с помощью пипетки Пастера.
С помощью пипетки Пастера (150 мм) перенесите выделенный ропалий в камеру для электрофизиологической регистрации, установленную на предметном столике микроскопа. (ВАЖНО) Следите за тем, чтобы ропалий постоянно оставался погружённым в морскую воду во время и после переноса. Контакт с воздухом необратимо повредит препарат. - С помощью пипетки перенесите животное обратно в культурный резервуар.
ПРИМЕЧАНИЕ: Потеря одного ропалия не оказывает существенного влияния на нормальное поведение кубомедуз; животные, сохранившие всего один ропалий, продолжают демонстрировать нормальное поведение при кормлении и взаимодействии со световыми лучами. Ропалии дополнительно восстанавливаются до полной функциональности, включая восстановление пейсмекерной сигнализации и нормальных ответов фоторецепторов, в течение двух недель после удаления23Животное может использоваться повторно в последующих сессиях до тех пор, пока все ропалии не будут удалены. Как только все четыре ропалии удалены, животное больше не способно генерировать сигналы пейсмекера плавания или сокращения колокольчика и подлежит гуманному уничтожению путем удаления через стандартную лабораторную раковину, в соответствии с утилизацией ткани ропалия (шаг 6.2.5).
6. Запись
- Позиционирование ропалия и присоединение электрода
- Заполните регистрирующий всасывающий электрод, втягивая морскую воду непосредственно из измерительной камеры в капилляр до тех пор, пока внутренний раствор не достигнет середины серебряной проволоки. Наполните удерживающую микропипетку достаточным количеством морской воды из измерительной камеры, чтобы обеспечить адгезию за счёт всасывания к кристаллу.
- Закрепите удерживающую микропипетку в микроманипуляторе. Присоедините кончик удерживающей микропипетки к кристаллу сульфата кальция (CaSO₄) на дистальном конце ропалия, приложив лёгкое всасывание с помощью присоединённого шприца с замком Люэра. Кристалл обеспечивает надёжную механическую точку крепления, не повреждая нервную ткань.
- С помощью удерживающей микропипетки поместите ропалий на край покровного стекла, обращённый к проекционному экрану (Рисунок 1D).
ПРИМЕЧАНИЕ: (КРИТИЧЕСКИ ВАЖНО) Расстояние между нижним глазом со стеклом и проекционным экраном должно быть измерено и зафиксировано, поскольку оно необходимо для расчёта углового размера (угла приёма) проецируемых изображений на нижнем глазе со стеклом по формуле:
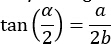
где α — визуальный угол, a — ширина элемента изображения, b — расстояние от нижнего глаза со стеклом до экрана. При рабочем расстоянии 2 мм проецируемое изображение размером 16 мм × 12 мм (ш × в) занимает приблизительно 150° по горизонтали и 120° по вертикали из 170° кругового визуального поля нижнего глаза со стеклом. Рабочее расстояние должно оставаться постоянным во всех записях, поскольку любое отклонение делает недействительными угловые расчёты для предъявляемых стимулов и исключает прямое сравнение между записями. - Удерживая ропалий в нужном положении с помощью микропипетки, подведите регистрирующий электрод к срезанной поверхности ножки с помощью второго микроманипулятора.
ПРИМЕЧАНИЕ: Эпидермальный нерв ножки проходит продольно по всей длине ножки — от точки прикрепления ропалия до кольцевого нерва15. На срезанной поверхности ножки видны окончания раздвоенного эпидермального нерва ножки, доступные для контакта с электродом на адоральной поверхности ножки — стороне, обращённой к глазам со стеклом (Рисунок 2B). - Приложите лёгкое всасывание с помощью шприца с замком Люэра до установления стабильного сигнала.
ПРИМЕЧАНИЕ: Окончания нервов не всегда визуально различимы на срезанной поверхности. Поместите кончик электрода в область, где, согласно анатомическим ориентирам, должен находиться эпидермальный нерв ножки, и приложите лёгкое всасывание. Достаточное присоединение электрода подтверждается появлением крупных, чётко различимых сигналов пейсмекера с постоянной формой волны на ожидаемой частоте 0,5–1 Гц (Рисунок 5). Сигналы пейсмекера отличаются от сигналов, подобных потенциалам действия, по длительности и морфологии формы волны (Рисунок 2C,D)13,20,24. Появление стабильных сигналов пейсмекера является окончательным критерием правильного размещения электрода, а не визуальное подтверждение контакта с нервом. Если сигнал не получен, отпустите всасывание, слегка измените положение кончика электрода на срезанной поверхности и повторите всасывание. Избыточное всасывание может привести к закупорке кончика тканевыми остатками или механическому повреждению окончания нерва. Постепенное снижение амплитуды сигнала и появление фонового шума во время записи указывают на потерю герметичности электрода (Рисунок 5A). - После присоединения электрода дайте препарату адаптироваться не менее 10 минут до начала записи. В этот период поддерживайте освещение проекционного экрана белым фоном, а серую полосу держите неподвижной с одной стороны визуального поля, вне центра.
ПРИМЕЧАНИЕ: Перед началом адаптации проверьте реактивность препарата, предъявив один стимул с максимальным контрастом (c ≈ 1,0); ропалии, не дающие ответа, исключаются из набора данных. Период адаптации позволяет препарату стабилизироваться после механического воздействия при присоединении электрода. Поддержание белого экрана с неподвижной полосой обеспечивает световую адаптацию фоторецепторов к базовым условиям, которые будут сохраняться во время визуальной стимуляции, и стабильную исходную частоту пейсмекера до предъявления первого стимула. Это ещё одно практическое преимущество использования программного обеспечения для управления стимулами. Содержимое экрана во время адаптации и между записями непосредственно видимо и полностью контролируемо без дополнительного программирования. - После установления стабильного сигнала пейсмекера оптимизируйте настройки полосового фильтра на внеклеточном усилителе для максимизации отношения сигнал/шум и сохранения амплитуды сигнала и морфологии формы волны, отслеживая эффект на дисплее осциллографа. Используйте следующие начальные настройки: высокочастотный фильтр 1 Гц и низкочастотный фильтр 500 Гц; включите режекторный фильтр 50/60 Гц (встроенный модуль EXT-10-2F). При необходимости корректируйте настройки в зависимости от наблюдаемого сигнала.
ПРИМЕЧАНИЕ: Повышение верхнего порога высокочастотного фильтра выше 1 Гц будет постепенно ослаблять низкочастотные компоненты сигнала пейсмекера, снижая его амплитуду и потенциально ухудшая обнаружение сигнала. Целевая амплитуда сигнала после усиления для чистых, легко идентифицируемых сигналов пейсмекера составляет 400–600 мВ, максимум — приблизительно 1 В.
- Сбор данных
- Настройте виртуальный прибор (VI) (предоставлен в качестве дополнительного материала, Дополнительный файл 3) для одновременной регистрации следующих каналов через модуль сбора данных (DAQ) с частотой дискретизации 1 кГц:
Канал 1: Электрофизиологический сигнал (усиленный и отфильтрованный сигнал пейсмекера с EXT-10-2F)
Канал 2: Аналоговый TTL-выход LabVIEW на мышь TTL)
Канал 3: Аналоговый TTL-метка времени с Arduino Uno (фиксирует подтверждённое окно стимула — начало определяется переходом TTL в высокое состояние, окончание — возвращением в низкое — как зафиксировано фотодиодом, отслеживающим чёрно-белый индикаторный квадрат на экране компьютера).
ПРИМЕЧАНИЕ: Канал 2 фиксирует предполагаемое время предъявления стимула, а Канал 3 — подтверждённое фактическое окно стимула. Для всех анализов следует использовать Канал 3 как окончательную временную запись стимула. - Установите продолжительность записи в соответствии с экспериментальным протоколом. Для стандартной последовательности предъявления стимулов, включающей 30-секундный фоновый период до стимула, около 15 секунд визуальной стимуляции и 35-секундный период после стимула, установите общую продолжительность записи 80 секунд.
ПРИМЕЧАНИЕ: Этот протокол обычно включает 10 биологических повторов (ропалий), предпочтительно полученных от 10 разных животных, для оценки силы ответа, что соответствует Bielecki et al. (2023)14. В рамках одного препарата изолированный ропалий последовательно получает весь протокол визуальных стимулов — от наименьшего к наибольшему контрасту; такой порядок предотвращает привыкание животного к отсутствию неприятных последствий при высоком контрасте, что могло бы снизить реактивность на последующие стимулы с более низким контрастом. Последующие записи начинаются с фиксированным интервалом в 2 минуты, что даёт 105-секундный интервал между окончанием одного периода стимуляции и началом следующего (достаточно для возврата частоты пейсмекера к исходному уровню до следующего стимула). Технические повторы не проводятся; каждый ропалий получает одну подачу стимула на каждом уровне контраста в рамках своей последовательности. - Виртуальный прибор LabVIEW (предоставлен в качестве дополнительного материала, Дополнительный файл 3) автоматически подаёт импульс TTL с модуля DAQ на мышь TTL в нужный момент внутри последовательности записи, перелистывая слайд и запуская начало визуального стимула. Сохраните собранные данные в виде табулированного файла .txt. При использовании предоставленного VI метаданные записи вводятся вручную в имя файла при сохранении.
ПРИМЕЧАНИЕ: Пользователям рекомендуется заранее установить единый формат именования файлов перед началом записи. Идентификатор препарата — это уникальный код (например, номер животного или сессии), позволяющий отследить конкретную запись до соответствующего ропалия и экспериментальной сессии. Конкретная схема именования остаётся на усмотрение исследователя, при условии её систематичности и возможности однозначного сопоставления любой записи с соответствующим препаратом — например, имя файла может включать дату и время записи вместе с параметрами стимула (например, уровень контраста, размеры полосы и скорость). - После завершения всех записей для данного ропалия утилизируйте ткань ропалия стандартным способом через лабораторную раковину.
ПРИМЕЧАНИЕ: Пользователям рекомендуется установить единый формат именования файлов перед началом записи. Систематическое имя файла, включающее дату, идентификатор препарата и условия стимула, достаточно для последующего анализа. Программное обеспечение для презентаций предпочтительнее визуальных стимулов, генерируемых LabVIEW, по двум практическим причинам: во-первых, оно гарантирует, что изображение, проецируемое на нижний глаз со стеклом между записями, всегда известно и контролируется, предотвращая непреднамеренную визуальную стимуляцию от интерфейсов программ или системных экранов; во-вторых, оно исключает риск затемнения экрана между сессиями записи, что вызвало бы ответ «выключение света» в фоторецепторах и внесло бы ложную активность пейсмекера в последующий фоновый период. Воспринимаемый угловой размер и скорость полосы будут нелинейно изменяться по визуальному полю из-за геометрии глаза со стеклом. Эта нелинейность не корректируется по двум причинам: во-первых, свободно плавающие животные не приближаются к препятствиям с постоянной скоростью или направлением, поэтому угловая коррекция имеет ограниченную естественную значимость; во-вторых, коррекция углового размера потребовала бы изменения общей яркости экрана, что активировало бы ответ «включение/выключение света», участвующий в обнаружении световых столбов в мангровых зарослях.
- Настройте виртуальный прибор (VI) (предоставлен в качестве дополнительного материала, Дополнительный файл 3) для одновременной регистрации следующих каналов через модуль сбора данных (DAQ) с частотой дискретизации 1 кГц:
7. Анализ данных
- Разделение сигналов водителя ритма в Igor Pro
ПРИМЕЧАНИЕ: Сигналы водителя ритма плавания отделяются от сигналов, подобных потенциалам действия, на исходной электрофизиологической кривой до проведения анализа частоты. Оба типа сигналов могут одновременно присутствовать в записи и должны быть различены до извлечения временных данных водителя ритма. Характерные примеры обоих типов сигналов и их различающихся форм волн приведены на Рисунке 2C,D.- Импортируйте файл данных .txt в Igor Pro (версия 6.37 или выше) с использованием плагина Neuromatic (версия 2.00).
- Разделяйте сигналы водителя ритма плавания и сигналы, подобные потенциалам действия, на основе длительности сигнала и морфологии формы волны.
ПРИМЕЧАНИЕ: Сигналы водителя ритма плавания имеют характерную длительность около 45 мс и сложную форму волны, отражающую суммарную активность нескольких нейронов-водителей ритма. Сигналы, подобные потенциалам действия, короче — около 10 мс — и имеют более резкую, единую форму волны. Амплитуда сигнала сама по себе не является надёжным критерием различения, поскольку оба типа сигналов могут достигать сопоставимых амплитуд24 (Рисунок 2C,D). Приведён иллюстративный рисунок, демонстрирующий различающиеся характеристики формы волны сигналов водителя ритма плавания и сигналов, подобных потенциалам действия (Рисунок 2C,D). Пользователям рекомендуется ознакомиться с обоими типами сигналов до начала анализа, поскольку ошибочная идентификация приведёт к погрешностям в оценке частоты водителя ритма. Характеристики формы волны остаются стабильными в пределах одной подготовки, но могут несколько варьироваться между разными подготовками; поэтому критерии разделения следует оценивать для каждой подготовки индивидуально, используя описанные выше характеристики формы волны как общее руководство, а не жёсткие универсальные пороги. В случае неоднозначных или промежуточных форм волн, которые нельзя уверенно классифицировать, разрешайте неоднозначность в направлении, противоположном ожидаемому или гипотетическому результату — например, исключайте неоднозначное событие, если большее количество сигналов поддерживает проверяемую гипотезу, или включайте его, если меньшее количество поддерживает гипотезу — чтобы избежать завышения видимой силы результата. - Извлеките временные метки каждого идентифицированного сигнала водителя ритма плавания, чтобы получить временной ряд событий водителя ритма для каждой записи, и экспортируйте эти временные метки (например, в электронную таблицу или файл .csv) для последующего статистического анализа.
- Анализ частоты
- Рассчитайте частоту сигнала водителя ритма как обратную величину интервала между сигналами по всей записи.
- Оцените влияние визуального стимула, сравнив частоту водителя ритма в период до стимула (базовый уровень), во время стимула и после стимула, используя временные метки сигналов водителя ритма, скорректированные с учётом задержки между зарегистрированной в LabVIEW командой TTL (канал 2) и подтверждённым Arduino началом стимула (канал 3).
ПРИМЕЧАНИЕ: Глаз с нижним объективом реагирует на стимул по времени подтверждённого сигнала TTL, а не по команде, зафиксированной программным обеспечением, поэтому для каждой записи время подтверждённого начала экспортируется вместе с исходными временными метками водителя ритма и TTL в электронную таблицу (Дополнительная таблица 1) и непосредственно используется скриптом анализа SAS для классификации каждого сигнала водителя ритма в окно до стимула, во время стимула или после стимула (Рисунок 6); на этапе электронной таблицы значения временных меток не изменяются. В условиях спокойного базового состояния частота сигнала водителя ритма составляет 0,5–1 Гц. Вызванные визуально реакции избегания препятствий над DTT характеризуются увеличением частоты водителя ритма до 2–3 Гц. Физиологический максимум составляет приблизительно 4 Гц, что соответствует минимальному интервалу между сигналами 250–280 мс25. Поскольку базовая частота водителя ритма варьируется между подготовками, значения частоты для каждой записи стандартизируются относительно средней частоты этой записи, рассчитанной по периодам до и после стимула (исключая сам период стимула). Эта нормализация позволяет сравнивать величину ответа между подготовками независимо от различий в базовой частоте водителя ритма. Полные статистические процедуры для оценки значимости ответа, включая нелинейную модель, используемую для сравнения периодов до стимула, во время стимула и после стимула, описаны в работе Bielecki et al. (2023)14; соответствующий код анализа SAS доступен по адресу doi: 10.17632/csgymw8kjk.1. Пример рабочего процесса анализа — от исходного сигнала через разделение, расчёт частоты и стандартизацию до конечного показателя ответа — приведён на Рисунке 7.
- Оцените влияние визуального стимула, сравнив частоту водителя ритма в период до стимула (базовый уровень), во время стимула и после стимула, используя временные метки сигналов водителя ритма, скорректированные с учётом задержки между зарегистрированной в LabVIEW командой TTL (канал 2) и подтверждённым Arduino началом стимула (канал 3).
- Рассчитайте частоту сигнала водителя ритма как обратную величину интервала между сигналами по всей записи.
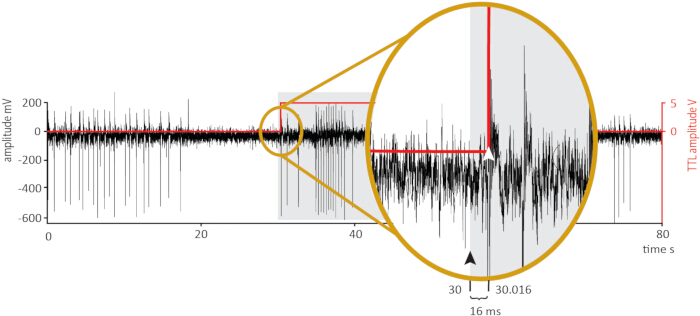
Рисунок 6: Типичная демонстрация коррекции временных меток пейсмекера для подтверждённого стимулом временного интервала. Пример записи, иллюстрирующий задержку между командой TTL, зафиксированной в виртуальном приборе (VI), и началом стимула, подтверждённого с помощью Arduino, проверяемой индивидуально для каждой записи посредством цепочки синхронизации Arduino/фотодиод и экспортируемой в электронную таблицу (Дополнительная таблица 1) для непосредственного использования скриптом анализа SAS при классификации каждой временной метки сигнала пейсмекера в окно до стимула, во время стимула или после стимула. Чёрный след (левая ось Y): электрофизиологический сигнал (мВ). Красный след (правая ось Y): амплитуда TTL (В). Серая заштрихованная область обозначает номинальное окно стимуляции, отмеченное по временной метке команды TTL, зафиксированной программным обеспечением. Вставка: увеличенный фрагмент начала сигнала TTL. Чёрный треугольник указывает время отправки команды TTL, зафиксированное в LabVIEW (t = 30,000 с, канал 2); белый треугольник указывает подтверждённое начало стимула, зафиксированное с помощью цепочки Arduino/фотодиод (t = 30,016 с, канал 3). Показанный интервал в 16 мс является типичным примером в пределах диапазона <20 мс, указанного для автоматической триггерной активации мыши по TTL (Результаты). Поскольку эта задержка постоянна в пределах одной записи, соответствующий сдвиг по времени не показан отдельно. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
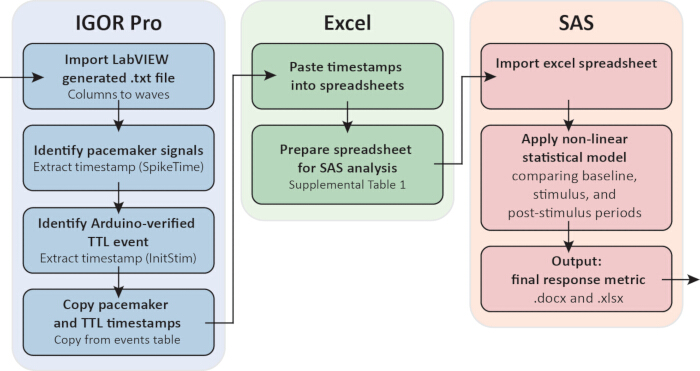
Рисунок 7: Типичный рабочий процесс анализа — от исходной записи до итогового показателя ответа. Сигнал пейсмейкера и метки времени TTL извлекаются из таблицы событий Igor Pro/Neuromatic: события сигнала пейсмейкера определяются по продолжительности и морфологии формы волны (шаг 7.1.2), а подтверждённое с помощью Arduino начало стимула (InitStim, канал 3) извлекается для каждой записи в виде абсолютной временной метки, а не расчётной задержки. Эти временные метки копируются в электронную таблицу (Дополнительная таблица 1), которая подготавливается для анализа в SAS путём вычисления интервала между импульсами (Intval) и временной метки середины интервала (MidTime) для каждого события сигнала пейсмейкера. SAS импортирует подготовленную таблицу и применяет нелинейную статистическую модель (Bielecki et al., 202314) для сравнения частоты пейсмейкера в периоды до стимула, во время стимула и после стимула, классифицированные относительно подтверждённого начала стимула в каждой записи, с целью получения итогового показателя ответа (резюме в формате .docx, таблицы данных в формате .xlsx). Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
Результаты
Качество сигнала и спонтанная активность водителя ритма
После успешного прикрепления электрода к перерезанному нерву эпидермального стебля на осциллографе должны сразу стать заметны спонтанные сигналы кардиостимулятора. Высококачественная запись характеризуется крупными, четко разрешенными сигналами кардиостимулятора с амплитудой после усиления 40–60 mV, возникающими со стабильной спонтанной частотой 0.5–1 Hz на фоне низкого уровня шума (пиковое отклонение примерно 10–15 mV в обе стороны от нуля, что соответствует отношению сигнал/шум примерно 27–40:1 в целевом диапазоне амплитуд) (Рисунок 5B). Могут быть проанализированы записи с амплитудой сигнала всего 10 mV, однако они существенно увеличивают время дискриминации сигналов в Igor Pro и не рекомендуются, особенно для неопытных операторов. Сложная морфология формы волны сигнала кардиостимулятора, отражающая суммарную активность множества нейронов trmOC, отличает его от более коротких и резких сигналов, похожих на потенциалы действия, которые также могут присутствовать в записи24 (Рисунок 2C,D). Как описано в шаге 7.1, эти два типа сигналов должны быть разграничены перед анализом на основании длительности сигнала (~45 ms для сигналов кардиостимулятора против ~10 ms для сигналов, похожих на потенциалы действия) и морфологии формы волны. Одна только амплитуда не является надежным критерием дискриминации. Дискриминация сигналов в данном протоколе выполнялась одним опытным оператором; поэтому формальная статистическая оценка надежности межэкспертного анализа не рассчитывалась (см. раздел «Обсуждение», «Ограничения»).
Зрительно вызванный ответ кардиостимулятора
В здоровом, функциональном препарате предъявление стимула в виде движущейся вертикальной полосы над DTT глазу с нижней линзой вызывает четкий, синхронизированный с временем ответ пейсмейкера. Частота сигнала пейсмейкера увеличивается до 2–3 Hz, что совпадает с прохождением переднего края препятствия через центр зрительного поля, и возвращается к базовой частоте после прекращения стимуляции14 (Рисунок 5B). Время начала стимула было проверено с помощью цепи синхронизации Arduino/фотодиод (шаг 3.3), а не на основе временной метки, предоставляемой самой программой LabVIEW. При использовании TTL-мыши для управления программным обеспечением предъявления верифицированный диапазон составляет <20 ms; при ручном запуске (нажатии оператором обычной мыши, синхронизированном с желаемым началом) верифицированный диапазон составляет 10–150 ms. Поскольку анализ ответа основан на верифицированном моменте начала (Канал 3), а не на триггере, фиксируемом программным обеспечением (Канал 2), этот диапазон не влияет на количественную оценку ответа независимо от метода запуска. Данное увеличение частоты представляет собой электрофизиологический коррелят поведения по избеганию препятствий, наблюдаемого у свободно плавающих животных, и его наличие подтверждает как жизнеспособность препарата, так и правильную оптическую юстировку глаза с нижней линзой относительно проекционного экрана.
Величина отклика кардиостимулятора оценивается по мгновенной частоте сигнала, которая рассчитывается как величина, обратная межсигнальному интервалу между последовательными событиями стимуляции. Этот подход требует наличия минимум двух последовательных сигналов кардиостимулятора для определения значения частоты, что обеспечивает внутреннюю защиту от ложноположительного обнаружения отклика при наличии одиночных изолированных сигналов.
Контрастность стимула в виде движущейся полосы определяет величину вызванного ответа. В работе Bielecki et al. (2023)14 использовались три уровня контрастности (c = 0.20, 0.40 и 0.80) с шагом в одну ступень диафрагмирования (f-stop). Эти конкретные значения контрастности были выбраны для того, чтобы общая продолжительность протокола оставалась в пределах допустимого окна записи, составляющего примерно 1 h. Исследователям, изучающим пределы контрастной чувствительности глаза с нижней линзой или другие специфические свойства зрительного ответа, следует выбирать уровни контрастности в соответствии с их экспериментальной задачей, а не слепо использовать данные значения.
Неоптимальные записи и виды отказов
На практике примерно 90% (9 из 10) препаратов, соответствующих критерию жизнеспособности после акклиматизации (шаг 6.1.6), в дальнейшем демонстрируют стабильную спонтанную активность и измеримый зрительно вызванный ответ; эта доля сильно зависит от опыта оператора. Остальные препараты чаще всего оказываются непригодными по одной из следующих причин: наиболее распространенным видом сбоя является прогрессирующая потеря герметичности электрода во время сеанса записи. Это проявляется в постепенном снижении как амплитуды сигнала кардиостимулятора, так и уровня фонового шума, что отражает ухудшение электрического контакта между кончиком электрода и окончанием нерва (Рисунок 5A). При наблюдении такой картины следует снять вакуум и применить его снова после небольшого перемещения кончика электрода по поверхности пересеченного стебля. Если амплитуда сигнала не восстанавливается, необходимо оценить жизнеспособность препарата, проверив наличие спонтанной активности кардиостимулятора. Полное отсутствие сигнала после попыток повторного закрепления в препарате, который был изолирован более 1 h, скорее всего, свидетельствует о деградации препарата, а не о выходе электрода из строя, и следует использовать свежий препарат.
Вторым типом сбоя является отсутствие зрительно вызванного ответа при стабильной спонтанной активности кардиостимулятора. Это должно стать сигналом для пересмотра оптической конфигурации, прежде чем делать вывод о нечувствительности препарата. Наиболее распространенными причинами являются смещение нижней линзы глаза относительно проекционного экрана и насыщение фоторецепторов из-за избыточного облучения. Следует повторить процедуру биологической калибровки, описанную в шаге 4.1.5, и, при необходимости, увеличить ослабление с помощью нейтрального светофильтра. Также необходимо убедиться, что стимул в виде движущейся полосы остается в поле зрения на протяжении всего движения, так как выход стимула за пределы поля зрения вызовет ответ на выключение света (light-OFF response) и приведет к появлению ложной активности кардиостимулятора в записи.
Третий вариант — высокий уровень фонового шума, перекрывающий сигналы кардиостимулятора, — чаще всего указывает на проблему с заземлением или помехи от электросети. Необходимо проверить конфигурацию «звездообразного» заземления, описанную в шаге 3.2.1, и убедиться, что включен режекторный фильтр 50/60 Hz.
Дополнительный файл 1: Скетч Arduino. Реализует обнаружение начала стимула на основе фотодиода: Arduino Uno считывает данные с фотодиода, отслеживая черно-белый индикаторный квадрат на дисплее презентации (шаг 1.4.2) с частотой 1 kHz, преобразует исходный аналоговый сигнал в чистый цифровой TTL-импульс посредством сравнения с пороговым значением и выводит этот импульс в качестве проверенного сигнала синхронизации стимула (канал 3, шаг 6.2.1).Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительный файл 2: Репрезентативный файл стимула. Пример файла программы для презентаций (Keynote), в котором визуальный стимул в виде движущейся полосы реализован как единая непрерывная анимация объекта, а также черно-белый квадрат-индикатор для проверки синхронизации (шаг 1.4). Авторам, разрабатывающим собственные последовательности стимулов, следует убедиться, что изображение остается стабильным в течение достаточного периода аккомодации перед началом каждого стимула; контур обратной связи фотодиод/Arduino (шаг 3.3) подтверждает точное время подачи стимула независимо от используемого программного обеспечения для презентаций или дизайна слайдов.Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительный файл 3: Виртуальный прибор (VI) LabVIEW. Настройте модуль сбора данных NI USB-6343 DAQ с двумя аналоговыми входными каналами — AI0 (электрофизиологический сигнал с усилителя) и AI1 (TTL-сигнал начала стимуляции, подтвержденный Arduino, сигнал обратной связи с фотодиода) — и одним аналоговым выходным каналом AO0, который подает TTL-импульс на TTL-мышь в запрограммированное время стимуляции для переключения слайда в программе презентации. Полученный выходной файл в формате .txt содержит три столбца: электрофизиологический сигнал (AI0), зафиксированную в LabVIEW временную метку команды триггера AO0 (программная запись, а не повторно полученный сигнал) и подтвержденный Arduino сигнал TTL (AI1).Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительная таблица 1: Формат входного файла SAS. Определения столбцов и пример заполнения электронной таблицы, загружаемой в SAS для статистического анализа (шаг 7.2.1). Четыре последовательные временные метки сигнала кардиостимулятора из репрезентативной записи иллюстрируют расчет межпикового интервала (Intval) и временной метки середины интервала (MidTime), используемых при вычислении частоты; для последнего перечисленного события значения Intval/MidTime отсутствуют, так как нет последующей временной метки для завершения интервала.Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Обсуждение
Несколько этапов данного протокола имеют решающее значение для получения надежных записей. Наиболее важным является изготовление и подготовка всасывающего электрода. Хотя для стандартных записей визуально вызванных ответов кардиостимулятора приемлем любой электрод, оптимизирующий соотношение сигнал/шум, значение присоединенного сопротивления примерно 1 MΩ становится критически важным, когда препарат используется для подачи электрического безусловного стимула, так как это необходимо для расчета подаваемого тока14. Если запись является единственной целью, основным критерием является качество сигнала, а не конкретное значение сопротивления.
Не менее важной является биологическая калибровка оптической системы перед началом записей (шаг 4.1.5). Поскольку мощность выходного сигнала проектора, конфигурация линз и отражательная способность экрана взаимовлияют на эффективную облученность в области нижнего глаза с линзой, невозможно указать универсальное значение облученности. Биологическая калибровка (использующая частотную характеристику кардиостимулятора при стимуляции с максимальным контрастом в качестве критерия динамического диапазона фоторецепторов) представляет собой самовалидируемый, не зависящий от оборудования метод установления подходящей интенсивности стимула. Этот этап нельзя пропускать, так как насыщение фоторецепторов из-за избыточной облученности приведет к исчезновению зрительно вызванных ответов кардиостимулятора, что может быть ошибочно принято за отсутствие реакции препарата.
Критически важно поддерживать погружение ропалия в жидкость на протяжении всего процесса изоляции и переноса. Нервная система ропалия чрезвычайно чувствительна к высыханию, и даже кратковременное воздействие воздуха может привести к необратимому повреждению препарата. Все этапы переноса должны выполняться в присутствии морской воды, а регистрирующая камера должна быть заполнена морской водой из культурального бака, отфильтрованной через мембрану 0.20 µm, до помещения в нее ропалия.
Наконец, размещение электродов на поверхности пересеченного стебля требует терпения. Нервные окончания эпидермиса стебля не всегда можно идентифицировать визуально, поэтому правильность размещения должна быть подтверждена появлением спонтанных сигналов водителя ритма на осциллографе.
Наиболее распространенной причиной сбоя при регистрации является нарушение герметичности прилегания электрода (seal) во время сессии. Чтобы минимизировать этот риск, все протоколы должны быть завершены в течение одного часа после изоляции ропалия. Рекомендуемый здесь одночасовой лимит является консервативным практическим выбором, отражающим общее ожидание того, что изолированный нейронный препарат, отделенный от остального организма животного, не может считаться полностью репрезентативным для интактной физиологической функции неопределенно долго, даже если сохраняется активность пейсмейкера. Изолированные ропалии остаются жизнеспособными в смысле генерации детектируемых сигналов пейсмейкера значительно дольше, чем окно регистрации, используемое в данном протоколе — примерно до 5 h после изоляции; однако вопрос о том, остаются ли ответы, зарегистрированные в конце этого окна, полностью репрезентативными для интактного препарата, не был систематически изучен, и лимит в 1 h используется в качестве консервативного буфера, а не как точно определенный порог. Постепенная потеря герметичности электрода представляет собой отдельный, легко идентифицируемый вид технического сбоя и является наиболее частой причиной потери сигнала в рамках одной сессии записи (см. ниже), но это не исключает влияния состояния препарата на более тонкие изменения реактивности с течением времени. Если во время записи происходит потеря герметичности, можно снять вакуум, повторно расположить электрод на поверхности срезанного стебля и снова приложить вакуум. Однако, если препарат был изолирован более одного часа, рекомендуется начать работу с новым препаратом, а не тратить время на устранение неполадок с ухудшающимся образцом.
Настройки фильтров следует рассматривать как отправную точку, а не как фиксированные параметры. Значения полосового фильтра, указанные в данном протоколе (ФВЧ 1 Hz, ФНЧ 50 Hz, режекторный фильтр 50/60 Hz), оптимизируют соотношение сигнал/шум в условиях записи авторов. Лабораториям с другим уровнем электрических помех или при использовании других моделей усилителей может потребоваться эмпирически настроить эти параметры с помощью органов управления усилителя, контролируя сигнал на экране осциллографа в начале каждого сеанса.
Если после прикрепления электрода спонтанная пейсмейкерная активность отсутствует, следует оценить состояние препарата перед поиском неисправностей электрода. У здорового изолированного ропалия спонтанные пейсмейкерные сигналы с частотой 0,5–1 Hz проявляются в течение нескольких минут после прикрепления электрода. Отсутствие спонтанной активности чаще всего свидетельствует о повреждении препарата во время изоляции или переноса, а не об отказе электрода. И наоборот, если спонтанная активность присутствует, но визуально вызванный ответ не регистрируется, перед заключением о нереактивности препарата следует повторить оптическую калибровку.
Для лабораторий, адаптирующих данный протокол под другое оборудование, цепочку верификации тайминга с использованием TTL-мыши и Arduino Uno, описанную в шаге 3.3, можно заменить любой системой, обеспечивающей запись окна стимула на аппаратном уровне, независимо от программного обеспечения, и синхронно с электрофизиологической записью. Конкретная реализация, описанная здесь, была разработана для связи среды сбора данных LabVIEW на ПК с программным обеспечением для презентации на отдельном компьютере и представляет собой практическое инженерное решение распространенной проблемы кроссплатформенной интеграции. Базовый принцип, согласно которому одних программных триггеров недостаточно для точного анализа временных характеристик стимул-реакции, применим независимо от используемой аппаратной платформы.
Основным ограничением препарата с изолированным ропалиумом является то, что запись производится с одного отдельного ропалиума. У целого животного четыре ропалиума соединены кольцевым нервом15, и их выходные сигналы интегрируются для обеспечения скоординированного плавательного поведения. Межропалиальная коммуникация в данном препарате недоступна. Однако для целей изучения обработки визуальной информации внутри нервной системы одного ропалиума такая изоляция является скорее преимуществом, чем недостатком. Она устраняет мешающее влияние сигналов от других ропалиумов и позволяет полностью охарактеризовать свойства визуального ответа одной НС ропалиума.
Изоляция ропалия также исключает мультимодальный сенсорный контекст за пределами самого ропалия; предполагаемые хеморецепторы, анатомически описанные на его поверхности17, не были функционально связаны с ответом кардиостимулятора, поэтому сигнал можно обоснованно интерпретировать как результат зрительной обработки, в значительной степени не осложненный незрительными входными данными. Более фундаментальным ограничением является то, что внеклеточная запись с нерва стебелька фиксирует только интегрированный моторный выходной сигнал trmOC. Индивидуальные вклады subOC в зрительную обработку невозможно разделить электрофизиологически; для этого требуются методы визуализации in vivo с пространственным разрешением. Таким образом, описанный здесь электрофизиологический метод является мерой конечной интегрированной моторной команды, а не промежуточных этапов обработки внутри RNS.
Это имеет важное практическое значение: протокол электрофизиологии изолированного ропалия не является самостоятельным методом. Крайне важно провести поведенческий анализ всего животного до разработки экспериментов с изолированным ропалием, чтобы определить, какие зрительные стимулы вызывают поведение, изменяющее частоту сокращений колокола. Поведение, не приводящее к изменению частоты сигналов кардиостимулятора, не может быть оценено с помощью данного подхода. Электрофизиологический показатель представляет собой конкретную меру выходного сигнала моторного аппарата плавания, и дизайн экспериментов должен опираться на предварительную поведенческую характеристику, чтобы гарантировать, что выбранные стимулы активируют этот выходной сигнал.
Успех записи и классификация сигналов зависят от опыта оператора. Примерно в 90% препаратов, соответствующих критерию жизнеспособности после акклиматизации (шаг 6.1.6), при работе опытного оператора наблюдается стабильная спонтанная активность и измеримый зрительно вызванный ответ; ожидается, что эта доля будет ниже на ранних этапах обучения. Дифференциация сигналов между формами волн кардиостимулятора и потенциалами действия (шаг 7.1.2) в данном исследовании проводилась одним опытным оператором; поскольку формальная проверка надежности оценивания требует наличия нескольких независимых наблюдателей, рассчитать статистику согласия между экспертами не представилось возможным. Вместо этого внутренняя согласованность поддерживалась путем сравнения неоднозначных форм волн с сигналом известной природы в рамках той же записи, обычно с вызванным ответом максимального контраста.
Выбор аппаратного и программного обеспечения в данном протоколе — модифицированный объектив проектора, специализированная TTL-мышь, цепь синхронизации на базе Arduino и ПО LabVIEW/Igor Pro/SAS — обусловлен наличием оборудования и компетенций в лаборатории авторов, а не является обязательным требованием метода. Объектив проектора был модифицирован, так как стандартная конфигурация не соответствовала требованиям установки. TTL-мышь служит связующим звеном между компьютером стимуляции и компьютером сбора данных: LabVIEW посылает TTL-импульс на мышь и регистрирует время отправки (канал 2), а щелчок мыши инициирует подачу стимула через USB. Поскольку задержка между этим зарегистрированным триггером и фактическим изменением изображения на экране варьируется, независимая цепь из фотодиода и Arduino верифицирует истинный момент начала стимуляции и подает второй TTL-сигнал обратно в систему сбора данных (канал 3); возможно существование коммерческого аналога этой мыши, о котором авторам не известно. Ни один из этих компонентов не требует специальных навыков изготовления или больших затрат, и любая альтернативная система сбора данных должна лишь обеспечивать синхронную многоканальную дискретизацию с частотой 1 kHz, а также обладать соответствующими электронными или программными возможностями. За одним исключением: настройка подходящего аналогового усилителя требует знаний в области проектирования малошумящих схем, которые не подразумеваются у читателя.
T. cystophora сочетает в себе визуальную сложность генетически доступных систем, таких как Drosophila и данио-рерио, с возможностью анализа на уровне цепей, характерной для численно простых систем, таких как C. elegans: нервная система ропалия состоит примерно из 10 нейронов, по сравнению с порядком 20 00 в мозге Drosophila1 и 302 во всей нервной системе C. elegans2. Дополнительным преимуществом данной системы является ее сенсорная иерархия: T. cystophora обладает несколькими сенсорными модальностями, включая механорецепцию (функционально связанную с ассоциативным обучением14) и предполагаемую хеморецепцию (описанную анатомически, но не продемонстрированную функционально17), помимо зрения. Однако в препарате изолированной ропалии функционально было показано, что только зрение вызывает ответ кардиостимулятора, оцениваемый в данном протоколе, что позволяет интерпретировать сигнал как сравнительно однозначный показатель визуальной обработки, без интерпретационных сложностей, возникающих, когда несколько одновременно активных чувств совместно формируют поведенческий ответ. Визуальные стимулы могут быть точно заданы в пространстве, времени и по контрастности, в то время как сигнал кардиостимулятора может использоваться в качестве количественного прокси-показателя вызванного зрением моторного выхода, имеющего значение для поведения животного в целом14.
Помимо визуальной электрофизиологии, препарат изолированного ропалия успешно применялся для фармакологического исследования RNS с помощью анализов с добавлением нейромедиаторов и нейромодуляторов в ванну, что позволило идентифицировать медиаторные системы, модулирующие работу кардиостимулятора24. Данный препарат также пригоден для методов кальциевого и вольтажного имиджинга. Предварительные неопубликованные работы в лаборатории авторов с использованием проникающего в клетку кальциевого индикатора подтверждают возможность проведения кальциевого имиджинга в этом препарате; вольтажный имиджинг остается непроверенным. Такие подходы могли бы позволить напрямую протестировать саму архитектуру сети subOC–trmOC, которая на данный момент остается рабочей моделью, и обеспечили бы пространственное разрешение, необходимое для независимого изучения активности subOC и trmOC во время визуальной стимуляции, что недоступно при использовании только внеклеточной регистрации. В совокупности эти взаимодополняющие подходы делают изолированный ропалий T. cystophora высокоэффективным препаратом для системного исследования визуальной обработки и сенсомоторной интеграции в нервной системе с определенной и ограниченной сложностью.
Раскрытие информации
Авторы заявляют об отсутствии конфликта интересов.
Благодарности
Авторы выражают благодарность Dan-eric Nilsson за предоставление изображения ропалия (Рисунок 1B), Mathias Hoppe, Ingo Klein, Olaf Wendt и Holger Voigt (Кильский университет) за техническую помощь, а также сотрудникам группы сенсорной биологии (Копенгагенский университет) за помощь в поддержании культур. Работа финансировалась Deutsche Forschungsgemeinschaft (DFG, Немецкий исследовательский фонд) — проект ID 567357102 (J.B.)
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| чашка Петри 35 мм | Nunc | 153066 | Подходит любая эквивалентная чашка Петри |
| Arduino Uno | Arduino | — | Преобразует сигнал фотодиода в TTL-сигнал для верификации синхронизации стимулов; частота обновления 1 кГц |
| Двояковыпуклая линза f = 30 мм | Linos | G063-02-0 | Заменил штатный объектив производителя; фокусирует изображение на стене-экране проекции записывающей камеры |
| Боросиликатная стеклянная капиллярная трубка, внутренний диаметр 1,16 мм × вн. диам. 2,0 мм × 80 мм L | Научная продукция | GB20-8P | Для изготовления присочных электродов |
| Одноразовая переносная пипетка | Sarstedt | 86.1171 | Обрежьте кончик до отверстия диаметром ~8 мм для переноса животного |
| Держатель электродов PPH-OP-BNCPC | ALA Scientific Instruments | PPH-OP-BNCPC | Держатель BNC-типа с портом для вакуумного отсоса; поставляется с серебряной проволокой диаметром ~0,25 мм |
| Внеклеточный усилитель EXT-10-2F | NPI Electronic | — | Дифференциальный усилитель с развязкой по постоянному току; головной блок (headstage) ×10, основной усилитель ×10, общее усиление ×10; встроенный полосовой фильтр: фильтр высоких частот 1 Гц, фильтр низких частот 50 Гц; подключен дополнительный режекторный фильтр 50/60 Гц; поставляется с кронштейном для головного усилителя |
| Покрывальное стекло для гемоцитометра 20 мм × 26 мм | Carl Roth | L 189 | Удерживается на кромках покровного стекла за счет отрицательной плавучести; более прочные, чем стандартные покровные стекла |
| Igor Pro 6.37 | WaveMetrics Inc. | Версия 6.37 | Лейк-Освего, штат Орегон, США; для анализа сигналов кардиостимулятора |
| LabVIEW 2016 | National Instruments | Версия 2016 | Программное обеспечение для сбора данных и управления стимулами; ВИ предоставлены в качестве дополнительных материалов |
| Шприц с люэр-локом | — | — | Универсальный; любой стандартный лабораторный шприц с Luer-lock соединителем |
| Microforge MF-2 | Narishige | — | Для полировки кончика электрода (вариант А) |
| Микроманипулятор MM3 | Mäржкäпользователь Ветцлар | 0-42-101-0 (правый) / 0-42-102-00 (левый) | Ручной трехкоординатный манипулятор; требуется два (для удержания пипетки и регистрирующего электрода) |
| Вытягиватель микропипеток, Flaming/Brown P-10 | Sutter Instrument | P-100 | Программа вытягивания: линия 1×1: нагрев 535, вытяжка 0, скор. 12, время 20, давление 600, подъем 540; Линии 2–4 × 3: нагрев 532, вытяжка 0, скор. 12, время 10 |
| Плагин Neuromatic v2.0 | — | Версия 2.0 | Для Igor Pro; дискриминация сигналов кардиостимулятора и извлечение временных меток |
| Нейтральный светофильтр | Thorlabs | NE10A | 10% пропускания; затухание должно быть подтверждено эмпирически путем биологической калибровки (шаг 4.1) |
| NI USB-6343 DAQ | National Instruments | 781438-01 | 16-битная многофункциональная система сбора данных (DAQ); регистрация электрофизиологических показателей, подача TTL-стимулов мышам, TTL-вход Arduino; частота дискретизации 1 кГц |
| DLP-проектор Optoma ML750 | Optoma | ML750 | Заводская система линз удалена; вместо нее установлена одна двояковыпуклая линза с фокусным расстоянием f = 30 мм |
| Осциллограф DS102E | Rigol | DS102E | Для мониторинга сигнала в режиме реального времени во время размещения электродов и оптимизации фильтров |
| Пипетка Пастера 150 мм | Carl Roth | 4518 | Для переноса ропалия |
| Фотодиод BRW21 | OSRAM | BRW21 | Кремниевый фотодиод; контролирует черно-белый индикаторный квадрат на экране компьютера |
| SAS | SAS Institute Inc. | doi: 10.17632/csgymw8kjk.1 | Кэри, Северная Каролина, США; статистический анализ отклика кардиостимулятора; код доступен по адресу doi: 10.17632/csgymw8kjk.1 |
| Силиконовые трубки | Erich Eydam KG | 9205000 | Для подключения вакуумного отсоса между держателем электрода и шприцем |
| шприцевой фильтр Filtropur S, 0.20 µm ПЭС | Sarstedt | 83.1826.001 | Для фильтрации морской воды из культурального резервуара для регистрационной камеры и чашек для подготовки образцов |
| Ножницы Ваннаса | World Precision Instruments | 500086 | 0,025 мм × лезвие 0,015 мм; для перерезки ножки ропалия |
| WTE var 3185 | Ассистент | — | Контроллер температуры водяной бани |
Ссылки
- Raji JI, Potter CJ. The number of neurons in Drosophila and mosquito brains. PLoS ONE. 2021;16(5):e0250381.
- Sasakura H, Mori I. Behavioral plasticity, learning, and memory in C. elegans. Curr Opin Neurobiol. 2013;23(1):92-99.
- Bielecki J, et al. Pattern recognition in the box jellyfish rhopalial nervous system mimicked by an ensemble of pulsed coupled oscillators. Springer Series on Bio- and Neurosystems. Springer, Cham, 2024.
- Bielecki J, Garm A. Vision made easy: Cubozoans can advance our understanding of systems-level visual information processing. Marine organisms as model systems in biology and medicine. Springer, Cham, 2018.
- Nilsson D-E, Gislén L, Coates MM, Skogh C, Garm A. Advanced optics in a jellyfish eye. Nature. 2005;435(7039):201-205.
- Yatsu N. Notes on the physiology of Charybdea rastonii. J Coll Sci Imp Univ Tokyo. 1917;40:1-12.
- Bielecki J, et al. Ocular and extraocular expression of opsins in the rhopalium of Tripedalia cystophora (Cnidaria: Cubozoa). PLoS One. 2014;9(6):e98870.
- Plachetzki DC, Degnan BM, Oakley TH. The origins of novel protein interactions during animal opsin evolution. PLoS One. 2007;2(10):e1054.
- Koyanagi M, et al. Jellyfish vision starts with cAMP signaling mediated by opsin-Gs cascade. Proc Natl Acad Sci U S A. 2008;105(40):15576-15580.
- Kozmik Z, et al. Assembly of the cnidarian camera-type eye from vertebrate-like components. Proc Natl Acad Sci U S A. 2008;105(26):8989-8993.
- Garm A, Oskarsson M, Nilsson D-E. Box jellyfish use terrestrial visual cues for navigation. Curr Biol. 2011;21(9):798-803.
- Buskey E. Behavioral adaptations of the cubozoan medusa Tripedalia cystophora for feeding on copepod (Dioithona oculata) swarms. Mar Biol. 2003;142(2):225-232.
- Garm A, Mori S. Multiple photoreceptor systems control the swim pacemaker activity in box jellyfish. J Exp Biol. 2009;212(24):3951.
- Bielecki J, Dam Nielsen SK, Nachman G, Garm A. Associative learning in the box jellyfish Tripedalia cystophora. Curr Biol. 2023;33(19):4150-4159.e5.
- Garm A, Poussart Y, Parkefelt L, Ekström P, Nilsson D-E. The ring nerve of the box jellyfish Tripedalia cystophora. Cell Tissue Res. 2007;329(1):147-157.
- Garm A, Hedal I, Islin M, Gurska D. Pattern- and contrast-dependent visual response in the box jellyfish Tripedalia cystophora. J Exp Biol. 2013;216(24):4520-4529.
- Skogh C, Garm A, Nilsson D-E, Ekström P. Bilaterally symmetrical rhopalial nervous system of the box jellyfish Tripedalia cystophora. J Morphol. 2006;267(12):1391-1405.
- Nielsen SKD, Koch TL, Wiisbye SH, Grimmelikhuijzen CJP, Garm A. Neuropeptide expression in the box jellyfish Tripedalia cystophora—new insights into the complexity of a "simple" nervous system. J Comp Neurol. 2021;529(11):2865-2882.
- Satterlie RA, Spencer AN. Swimming control in a cubomedusan jellyfish. Nature. 1979;281(5727):141-142.
- Garm A, Bielecki J. Swim pacemakers in box jellyfish are modulated by the visual input. J Comp Physiol A. 2008;194(7):641.
- Govardovskii VI, Fyhrquist N, Reuter T, Kuzmin DG, Donner K. In search of the visual pigment template. Vis Neurosci. 2000;17(4):509-528.
- Garm A, Coates MM, Gad R, Seymour J, Nilsson D-E. The lens eyes of the box jellyfish Tripedalia cystophora and Chiropsalmus sp. are slow and color-blind. J Comp Physiol A. 2007;193(5):547-557.
- Stamatis S-A, Worsaae K, Garm A. Regeneration of the rhopalium and the rhopalial nervous system in the box jellyfish Tripedalia cystophora. Biol Bull. 2018;234(1):22-36.
- Bielecki J, Nachman G, Garm A. Swim pacemaker response to bath applied neurotransmitters in the cubozoan Tripedalia cystophora. J Comp Physiol A. 2013;199(9):785-797.
- Bielecki J, Høeg JT, Garm A. Fixational eye movements in the earliest stage of metazoan evolution. PLoS ONE. 2013;8(6):e66442.