Интегрированный биоинформатический и экспериментальный анализы позволили определить LINC01871 в качестве потенциального предиктора чувствительности к ингибиторам циклин-зависимых киназ 4/6 и показали, что гиперэкспрессия LINC01871 подавляет пролиферацию клеток рака молочной железы и связана со снижением сигналинга NF-κB.
Исследовательская статья
Опосредованная LINC01871 чувствительность к ингибиторам циклин-зависимых киназ 4/6 при раке молочной железы у человека
В этой статье
Краткое содержание
Аннотация
Рак молочной железы остается наиболее часто диагностируемым злокачественным новообразованием у женщин, а резистентность к ингибиторам циклин-зависимых киназ 4 и 6 (CDK4/6) ограничивает долгосрочную эффективность лечения. Данное исследование было направлено на выявление длинных некодирующих РНК (lncRNAs), связанных с прогнозируемой чувствительностью к ингибиторам CDK4/6, и изучение их биологических функций при раке молочной железы. Были интегрированы транскриптомные данные из The Cancer Genome Atlas (TCGA) и данные о чувствительности к препаратам из базы данных Genomics of Drug Sensitivity in Cancer 2 (GDSC2), а чувствительность к лекарствам прогнозировалась с помощью алгоритма oncoPredict. Кандидатные lncRNAs были определены посредством анализа дифференциальной экспрессии, анализа взвешенных генных коэкспрессионных сетей, прогностического анализа и машинного обучения. Биологические функции LINC01871 впоследствии оценивались в экспериментах in vitro и in vivo. Было выявлено шестьдесят две lncRNAs, связанные с прогнозируемой чувствительностью к рибоциклибу и палбоциклибу, и отобрано шесть основных lncRNAs. LINC01871 продемонстрировал самую высокую дискриминационную способность в отношении прогнозируемой чувствительности к препаратам. Оверэкспрессия LINC01871 была связана с повышенной чувствительностью клеток рака молочной железы к рибоциклибу и палбоциклибу, подавлением пролиферации клеток, стимуляцией апоптоза и подавлением сигналинга ядерного фактора kappa B (NF-κB). Транскриптомный анализ единичных клеток показал высокую экспрессию LINC01871 в Т-клетках и натуральных киллерах (NK-клетках), в то время как анализ иммунной инфильтрации на основе транскриптома показал, что высокая экспрессия LINC01871 связана с усилением иммунной инфильтрации. Эти результаты позволяют рассматривать LINC01871 в качестве потенциального биомаркера чувствительности к ингибиторам CDK4/6 и демонстрируют его опухолеподавляющие эффекты при раке молочной железы. Для подтверждения его прогностической ценности и терапевтической значимости необходимы дальнейшие клинические и механистические исследования.
Введение
Рак молочной железы остается одной из основных причин смертности от онкологических заболеваний среди женщин во всем мире, несмотря на постоянные успехи в методах клинического лечения1,2. Спектр терапии постепенно расширился за пределы эндокринной терапии и химиотерапии, включив в себя методы молекулярно-таргетного воздействия3. Среди них ингибиторы циклин-зависимых киназ 4 и 6 (CDK4/6), такие как рибоциклиб, палбоциклиб и абемациклиб, обеспечили значительный клинический эффект при лечении рака молочной железы с положительным статусом рецепторов эстрогена и/или прогестерона4,5,6. Тем не менее, длительное лечение может сопровождаться развитием приобретенной резистентности, что ограничивает продолжительность терапевтического эффекта7.
Ингибирование CDK4/6 действует преимущественно через регуляторную ось клеточного цикла Rb–E2F. Подавление активности комплексов CDK4/6–циклин D снижает фосфорилирование белка ретинобластомы (Rb), что позволяет гипофосфорилированному Rb сдерживать E2F-зависимую транскрипцию и, следовательно, способствовать остановке клеточного цикла в фазе G1 и ограничивать пролиферацию опухолевых клеток8. Хотя были охарактеризованы несколько механизмов, способствующих развитию резистентности к ингибиторам CDK4/6, они не в полной мере объясняют различия в ответе на лечение. Эти механизмы включают аберрантную активацию пути фосфатидилинозитол-3-киназы/протеинкиназы B/мишени рапамицина у млекопитающих (PI3K/AKT/mTOR) и повышенную экспрессию комплексов циклин–CDK9,10. Примечательно, что компоненты пути PI3K/AKT/mTOR сами по себе являются терапевтическими мишенями при запущенных стадиях заболевания11. В совокупности эти наблюдения указывают на то, что дополнительные молекулярные детерминанты чувствительности и резистентности к ингибиторам CDK4/6 еще предстоит идентифицировать. Клиническая значимость прогностических биомаркеров иллюстрируется новыми стратегиями терапии HR-положительного метастатического рака молочной железы, основанными на использовании биомаркеров. Например, серийный анализ циркулирующей опухолевой ДНК (ctDNA) позволяет обнаружить появление мутаций в гене ESR1 в ходе лечения ингибиторами CDK4/6. Исследования PADA-1 и SERENA-6 показали, что такое молекулярное обнаружение может стать основанием для ранней смены эндокринной терапии при сохранении ингибирования CDK4/612,13. Однако мутации ESR1 представляют собой лишь один из детерминантов терапевтического ответа и не могут объяснить все случаи чувствительности или резистентности. Это ограничение приобретает все большую клиническую значимость, поскольку пациенты с HR-положительным/HER2-отрицательным метастатическим раком молочной железы, у которых наблюдается прогрессирование на фоне терапии ингибиторами CDK4/6, теперь имеют несколько последующих вариантов лечения, включая пероральные селективные деградаторы рецепторов эстрогена, ингибиторы пути PI3K/AKT и конъюгаты антитело-лекарственное средство. Таким образом, идентификация дополнительных потенциальных биомаркеров, связанных с различной чувствительностью к ингибиторам CDK4/6, может помочь отличить пациентов, которые с большей вероятностью получат пользу от этой терапии, от тех, кому может потребоваться более ранняя адаптация лечения.
Длинные некодирующие РНК (днкРНК) представляют собой транскрипты, не обладающие способностью кодировать белки, которые участвуют в регуляции многочисленных биологических процессов. Ряд днкРНК вовлечен в прогрессирование рака и ответ на лечение. Было показано, что при плоскоклеточном раке полости рта LOC100506114 способствует пролиферации и миграции за счет взаимодействия с фактором транскрипции RUNX и последующей регуляции экспрессии нижестоящих генов14. При раке молочной железы HISLA ассоциировался с усилением гликолиза и повышенной резистентностью к апоптозу15, в то время как LINC02568 способствует развитию эндокринной резистентности через регуляцию ESR1 и CA1216. Несмотря на признанную роль днкРНК в биологии рака, их связь с резистентностью к ингибиторам CDK4/6 остается недостаточно изученной. В данном исследовании была использована интегрированная стратегия мультиомиксного анализа и машинного обучения для идентификации днкРНК, связанных с прогнозируемой чувствительностью к рибоциклибу и палбоциклибу, в результате чего в качестве кандидата была определена LINC01871. Впоследствии мы изучили связь LINC01871 с чувствительностью к обоим препаратам и оценили ее влияние на пролиферацию клеток рака молочной железы с использованием экспериментальных подходов in vitro и in vivo.
Протокол
All procedures involving animals were performed under institutional animal-welfare requirements and received approval from the Animal Ethical and Welfare Committee of Fujian Cancer Hospital & Fujian Medical University Cancer Hospital (Approval No. SQ2021-159-01).
Data acquisition
Bulk transcriptomic profiles were downloaded from TCGA in January 2025 and converted to transcripts per million (TPM) before downstream analysis. Single-cell RNA-sequencing data were obtained from the Gene Expression Omnibus (GEO), using dataset GSE161529.
Drug sensitivity estimation of ribociclib and palbociclib
GDSC2 data were used to train the drug-response prediction model, and TCGA-BRCA transcriptomic profiles were used as the test dataset. Clinical information required for the subgroup analysis was retrieved from the TCGA Pan-Cancer Atlas Clinical with Follow-up dataset. Four clinical variables were considered: ER status (breast_carcinoma_estrogen_receptor_status), PR status (breast_carcinoma_progesterone_receptor_status), HER2 status determined by IHC (lab_proc_her2_neu_immunohistochemistry_receptor_status), and HER2 status determined by FISH (lab_procedure_her2_neu_in_situ_hybrid_outcome_type). A tumor was classified as HR-positive if either ER or PR was annotated as “Positive.” A tumor was classified as HER2-negative when at least one of the HER2 IHC or FISH results was negative and neither test had a positive result. Cases for which HR or HER2 status could not be definitively determined were excluded. Using these criteria, 601 patients were identified as HR-positive/HER2-negative. Among them, 599 had corresponding records in both the Pan-Cancer clinical dataset and the TCGA-BRCA expression matrix and were included in the subgroup analysis. Ribociclib and palbociclib IC₅₀ values were estimated with the oncoPredict R package (version 1.2) using default parameters. Scatter plots generated with ggplot2 were used to display the distribution of predicted IC₅₀ values among patients. Patients within the highest 25% of predicted IC₅₀ values were designated as resistant, whereas those within the lowest 25% were designated as sensitive.
Identification of CDK4/6 inhibitor resistance–related genes
Differential expression between the predicted sensitive and resistant groups was assessed using the limma package, and the resulting gene-expression patterns were displayed as volcano plots with ggplot2. Weighted gene co-expression network analysis (WGCNA) was then conducted with the WGCNA package to identify expression modules associated with resistance to both CDK4/6 inhibitors. Genes shared across the four resulting datasets were identified and illustrated using the VennDiagram package. The intersecting genes were subsequently evaluated by Kaplan–Meier survival analysis and univariate Cox regression using the survival and survminer packages, with corresponding survival curves generated for visualization. Genes reaching statistical significance in both survival analyses were entered into LASSO regression with the glmnet package to select core prognostic factors. The ability of the selected genes to discriminate predicted drug resistance was then assessed by ROC analysis using pROC, with performance quantified by the area under the ROC curve. AUC values for the different drugs were compared graphically using bar plots generated with ggplot2.
Single-gene analysis of LINC01871
LINC01871 expression was first compared between tumor and normal tissues by differential expression analysis. Its prognostic association across multiple cancer types was subsequently examined by Kaplan–Meier survival analysis and univariate Cox regression using the survival and survminer R packages. Differences in LINC01871 expression among clinicopathological groups were assessed with the Wilcoxon rank-sum test and displayed as boxplots using ggpubr. For the single-cell RNA-sequencing analysis, data preprocessing and downstream analysis were carried out with Seurat. Inter-batch variation was corrected using Harmony with its default parameter settings. Following batch correction, the resulting cell clusters were represented in a UMAP embedding. Cell identities were then assigned automatically with SingleR using reference transcriptomic profiles.
Functional enrichment analysis
Genes showing differential expression between the high- and low-LINC01871 groups were determined with the limma package. In parallel, Pearson correlation analysis was used to identify mRNAs whose expression levels were correlated with LINC01871 expression. GO and KEGG enrichment analyses were subsequently conducted with clusterProfiler. The resulting enrichment profiles were presented as bar and bubble plots generated using ggplot2.
Immune infiltration analysis
Immune cell infiltration was initially characterized using CIBERSORT with the LM22 signature matrix, which was applied to estimate the relative distribution of 22 immune cell populations. Differences in these estimates between the high- and low-LINC01871 expression groups were visualized using ggpubr. Stromal, immune, and ESTIMATE scores were then calculated for individual samples with the estimate package and displayed as violin plots. In addition, single-sample gene set enrichment analysis (ssGSEA) was performed using the GSVA package to estimate the relative abundance of immune cell populations in each sample. Differences in the resulting immune infiltration estimates between the two LINC01871 expression groups were evaluated and visualized with ggpubr.
Cell culture
MDA-MB-231, MCF-10A, and HEK293T cell lines were used in this study. MDA-MB-231 and HEK293T cells were grown in DMEM containing 10% fetal bovine serum, whereas MCF-10A cells were maintained in medium specifically formulated for this cell line. Cultures were kept at 37°C under humidified conditions with 5% CO₂. To establish LINC01871-overexpressing cells, the LINC01871 overexpression construct and lentiviral packaging plasmids were co-transfected into HEK293T cells for lentiviral production. Virus-containing supernatant was subsequently harvested and used to transduce MDA-MB-231 cells. Transduced cells were selected with 1 μg/mL puromycin. Wild-type control and transduced cells were both subjected to puromycin treatment, and selection was terminated after 3–4 days once all wild-type control cells had died.
Reverse transcription quantitative polymerase chain reaction (RT-qPCR)
Cellular RNA was isolated using RNAiso Plus reagent, and RNA concentrations were adjusted to equivalent levels before reverse transcription. Complementary DNA (cDNA) was generated with a reverse transcription kit following the manufacturer’s protocol. RT-qPCR amplification began with denaturation at 95°C for 30 s and was followed by 40 cycles consisting of 95°C for 5 s, 60°C for 30 s, and 72°C for 30 s. Transcript abundance was determined by the 2−ΔΔCt method using GAPDH for normalization. Primer sequences used for the analysis are listed in Supplementary Table 1.
Cell proliferation and cytotoxicity assays
For assessment of drug cytotoxicity, 8,000 cells per well were plated in 96-well plates and allowed to grow for 24 h. The culture medium was subsequently exchanged for fresh medium containing the indicated drug concentrations, followed by a further 24 h of incubation. CCK-8 reagent was then applied, and the plates were maintained in the dark for 2 h before absorbance was recorded at 450 nm. These measurements were used to construct drug dose–response curves and determine IC₅₀ values. For proliferation measurements, cells were prepared at a density of 1,000 cells/mL, and 100 μL of the cell suspension was added to each well of a 96-well plate. CCK-8 measurements were performed at 24 h intervals. At each time point, the reagent was added and the plates were incubated in the dark for 2 h before absorbance was measured at 450 nm to assess cell proliferation.
Colony formation assay
For colony formation experiments, 1,000 cells were plated per well in 6-well plates, with three replicates included for each experimental group. Cells were maintained for 1–2 weeks to permit visible colony development. The medium was then discarded, and the cells were fixed in 4% paraformaldehyde, rinsed with PBS, and subsequently stained with 1% crystal violet.
5-Ethynyl-2′-deoxyuridine incorporation assay
Cells from each experimental group were plated in 12-well plates and maintained overnight. The following day, cells were exposed to the EdU working solution for 2 h. After fixation and permeabilization, EdU labeling was carried out, followed by nuclear counterstaining with Hoechst. Fluorescence microscopy was then used to acquire images for evaluation of EdU incorporation.
Western blot
Cells were lysed in RIPA buffer supplemented with protease and phosphatase inhibitors to obtain total protein. Protein concentrations were quantified by BCA assay. Following addition of loading buffer, the protein samples were denatured at 95°C and resolved by SDS–PAGE before transfer to PVDF membranes. The membranes were blocked at room temperature for 1 h and subsequently incubated with the designated primary antibodies at 4°C overnight (Supplementary Table 2). After three TBST washes, the corresponding secondary antibodies were applied for 45 min at room temperature. Protein signals were detected by enhanced chemiluminescence (ECL) and subsequently imaged. GAPDH or β-actin served as the loading control.
Flow cytometry analysis
For cell-cycle assessment, cells were collected by trypsinization, rinsed with PBS, and fixed overnight in 70% ethanol at 4°C. The fixed cells were washed again with PBS and incubated with a cell-cycle detection reagent before flow cytometric measurement. For apoptosis assessment, harvested cells were washed with PBS and suspended in binding buffer. The cell suspension was stained with Annexin V and propidium iodide (PI) for 10–15 min at room temperature under light-protected conditions. Flow cytometry was subsequently performed to quantify the apoptotic cell populations.
Xenograft mouse models
In vivo experiments were conducted using five-week-old NOD/ShiLtJGpt immunodeficient mice. Animals were maintained in a specific pathogen-free (SPF) facility on a 12 h light/dark schedule, with no more than four animals housed in each cage. Before tumor-cell implantation, mice were anesthetized by inhaled isoflurane. Following confirmation of adequate anesthesia, the animals were allocated to two groups and received abdominal fat-pad injections of either control or LINC01871-overexpressing MDA-MB-231 cells. Tumor growth was designated as the primary outcome. Tumor dimensions were recorded with calipers at intervals of 3–4 days. Tumor volume was determined as V = ( L x W2 ) / 2', where L denotes the longest tumor diameter and W the shortest, with volume expressed in mm3. The study was terminated before any tumor reached a maximum diameter of 1.5 cm or a volume of 2,000 mm3. At the experimental endpoint, mice were anesthetized with isoflurane, and cervical dislocation was performed only after deep anesthesia had been confirmed. Animals were euthanized before the scheduled endpoint if substantial signs of distress were observed, including lethargy, weight loss, hunched posture, or inability to eat or drink. At study completion, tumors were removed and subsequently weighed and imaged.
Statistical analysis
Data analyses were conducted using GraphPad Prism version 10.3.1 and R version 4.3.1. The statistical method applied to each comparison was selected according to the study design and distribution of the corresponding data. As appropriate, analyses included Student’s t-test, paired t-test, Wilcoxon signed-rank test, Mann–Whitney U test, one-way or two-way analysis of variance (ANOVA), Kaplan–Meier analysis with the log-rank test, univariate Cox proportional hazards regression, and Pearson or Spearman correlation analysis. Statistical significance was defined using a two-sided P value <0.05.
Результаты
LINC01871 тесно связан с чувствительностью к рибоциклибу и палбоциклибу
Предполагаемые значения IC50 для рибоциклиба и палбоциклиба были рассчитаны для пациентов когорты TCGA-BRCA с использованием данных GDSC2 и расположены в порядке возрастания. Пациенты, попавшие в нижний квартиль прогнозируемых значений IC50, были отнесены к группе чувствительных, тогда как пациенты из верхнего квартиля — к группе резистентных (Рисунок 1A,B). Сравнение этих групп позволило выявить дифференциально экспрессируемые lncRNA для каждого препарата (Дополнительный рисунок 1A,B). С помощью WGCNA были дополнительно определены модули lncRNA, значимо связанные с прогнозируемой чувствительностью к рибоциклибу и палбоциклибу (Рисунок 1C,D; Дополнительный рисунок 1C,D). Интеграция четырех полученных наборов генов позволила выделить 62 общие lncRNA (Рисунок 1E), из которых 18 были значимо связаны с прогнозом как в однофакторном регрессионном анализе Кокса, так и в анализе выживаемости Каплана-Мейера. Затем была применена LASSO-регрессия для дальнейшего уточнения этого набора, в результате чего было отобрано шесть прогностически значимых lncRNA: ANKRD44-AS1, AC083837.1, AC242842.1, DBH-AS1, LINC00926 и LINC01871 (Рисунок 1F,G; Дополнительный рисунок 2A). Их способность различать прогнозируемую лекарственную резистентность впоследствии сравнивали с помощью анализа AUC. Среди шести кандидатов LINC01871 показал самое высокое среднее значение AUC для рибоциклиба и палбоциклиба (Рисунок 1H–J; Дополнительный рисунок 2B,C).
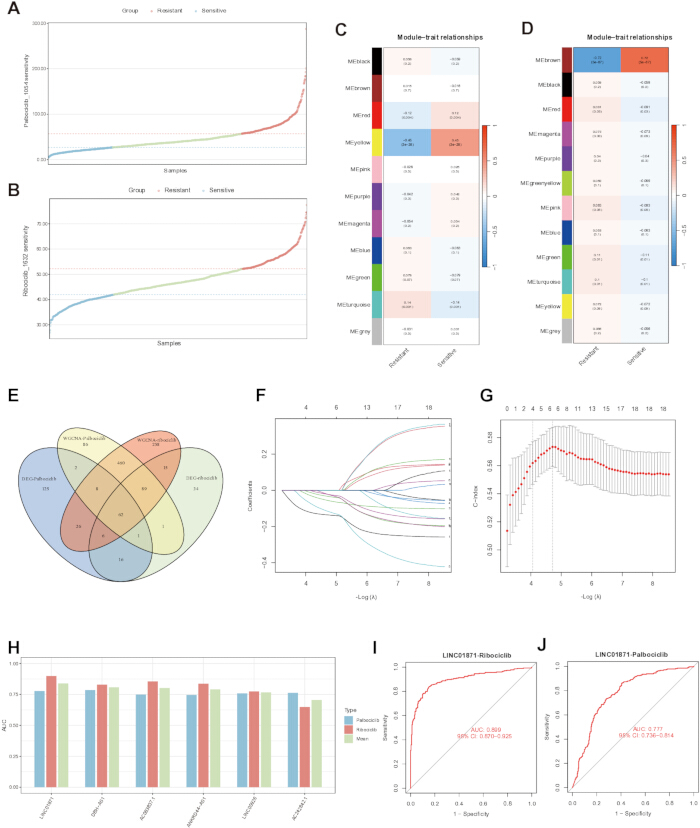
Рисунок 1. Идентификация длинных некодирующих РНК, связанных с прогнозируемой чувствительностью к рибоциклибу и палбоциклибу.
(A,B) Распределение прогнозируемых значений полумаксимальной ингибирующей концентрации (IC50) для палбоциклиба (A) и рибоциклиба (B) в когорте инвазивной карциномы молочной железы The Cancer Genome Atlas (TCGA-BRCA), оцененных с использованием набора данных Genomics of Drug Sensitivity in Cancer 2 (GDSC2). (C,D) Взвешенный анализ сетей коэкспрессии генов (WGCNA), показывающий ассоциации модулей и признаков для палбоциклиба (C) и рибоциклиба (D). (E) Диаграмма Венна, иллюстрирующая общие гены между наборами дифференциально экспрессируемых генов и наборами генов, полученными с помощью WGCNA и связанными с двумя препаратами. (F,G) Регрессия методом наименьшего абсолютного сжатия и отбора (LASSO) для выбора прогностически значимых длинных некодирующих РНК (lncRNAs). (H) Сравнение значений площади под рабочей характеристической кривой (AUC) для шести lncRNAs, отобранных методом LASSO. (I,J) Рабочие характеристические (ROC) кривые, оценивающие способность LINC01871 дифференцировать прогнозируемую чувствительность к рибоциклибу (I) и палбоциклибу (J). Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
Оверэкспрессия LINC01871 повышает чувствительность клеток рака молочной железы к лекарственным препаратам
В когорте TCGA-BRCA более высокая экспрессия LINC01871 была связана с более низкими прогнозируемыми значениями IC50 как для рибоциклиба, так и для палбоциклиба (Рисунок 2A,B). Эта взаимосвязь была дополнительно изучена в клинически значимой подгруппе HR-положительных/HER2-отрицательных опухолей (n = 599). В этой подгруппе прогнозируемые значения IC50 для обоих препаратов были значительно ниже у пациентов с высокой экспрессией LINC01871, чем у пациентов с низкой экспрессией. Кроме того, экспрессия LINC01871 обратно коррелировала с прогнозируемыми значениями IC50 рибоциклиба и палбоциклиба (Дополнительный рисунок 3A,B). Выявленная с помощью компьютерного моделирования связь была впоследствии исследована экспериментально. Тесты на цитотоксичность продемонстрировали более высокую чувствительность к рибоциклибу и палбоциклибу в клетках рака молочной железы с оверэкспрессией LINC01871 по сравнению с клетками векторного контроля (Рисунок 2C,D). Проточная цитометрия показала увеличение доли клеток в фазе G1 и снижение доли клеток в фазе S после оверэкспрессии LINC01871, что соответствует усилению ареста клеточного цикла в фазе G1 (Рисунок 2E). В тестах на формирование колоний увеличение концентрации рибоциклиба или палбоциклиба приводило к прогрессирующему снижению числа образующихся колоний (Рисунок 2F,G). При эквивалентных концентрациях препаратов способность к формированию колоний была значительно ниже в клетках с оверэкспрессией LINC01871, чем в клетках векторного контроля. Вестерн-блот-анализ дополнительно выявил более низкие уровни CDK4, CDK6 и циклина D1, сопровождающиеся снижением фосфорилирования RB в клетках с оверэкспрессией LINC01871 (Рисунок 2H). Эти молекулярные изменения согласуются с более выраженным арестом в фазе G1, наблюдавшимся после оверэкспрессии LINC01871.
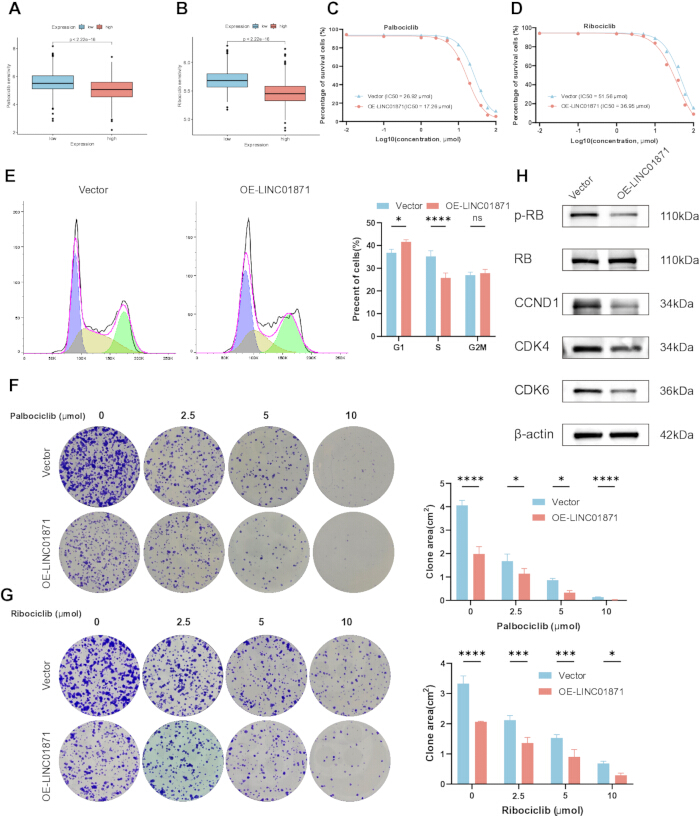
Рисунок 2. Связь гиперэкспрессии LINC01871 с чувствительностью к ингибиторам циклин-зависимых киназ 4/6 в клетках рака молочной железы. (A,B) Прогнозируемая чувствительность к пальбоциклибу (A) и рибоциклибу (B) в зависимости от низкого или высокого уровня экспрессии LINC01871. (C,D) Кривые «доза-ответ» для пальбоциклиба (C) и рибоциклиба (D) в контрольных клетках (вектор) и клетках с гиперэкспрессией LINC01871; на каждой панели указаны соответствующие значения полумаксимальной ингибирующей концентрации (IC50). (E) Оценка распределения клеток по фазам клеточного цикла методом проточной цитофлуориметрии в контрольных клетках (вектор) и клетках с гиперэкспрессией LINC01871. (F,G) Колониеобразование после обработки возрастающими концентрациями пальбоциклиба (F) и рибоциклиба (G). (H) Анализ экспрессии циклин-зависимой киназы 4 (CDK4), циклин-зависимой киназы 6 (CDK6), циклина D1 (CCND1), белка ретинобластомы (RB) и фосфорилированного RB (p-RB) методом вестерн-блоттинга; β-актин использован в качестве контроля загрузки. OE-LINC01871 — гиперэкспрессия LINC01871; ns — статистически не значимо. Все эксперименты проводились независимо в трех повторах. Данные представлены как среднее ± SD. Значения IC50 определяли методом нелинейной регрессии. Данные по распределению фаз клеточного цикла и колониеобразованию анализировали с помощью двухфакторного ANOVA. *P < 0.05, **P < 0.01, ***P < 0.001 и ****P < 0.0001; ns — статистически не значимо. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
Пациенты с высокой экспрессией LINC01871 имели тенденцию к более благоприятным клиническим исходам
Прогностическая значимость LINC01871 была дополнительно изучена в когорте TCGA-BRCA. Анализ Каплана–Мейера показал, что более высокая экспрессия LINC01871 в целом была связана с более длительной общей выживаемостью и выживаемостью без прогрессирования (Рисунок 3A; Дополнительный рисунок 3C). Сравнение как парных, так и непарных образцов также выявило значимо более низкую экспрессию LINC01871 в опухолевых тканях по сравнению с нормальными тканями (Рисунок 3B,C). Далее мы изучили взаимосвязь между экспрессией LINC01871 и клинико-патологическими характеристиками. Более низкая экспрессия LINC01871 имела тенденцию быть связанной с большим размером опухоли и наблюдалась у пациентов, зарегистрированных как умершие, по сравнению с теми, кто остался жив (Рисунок 3D,E). Среди пациентов, получавших лучевую терапию, анализ в подгруппах дополнительно показал значимо более благоприятные показатели выживаемости у лиц с высокой экспрессией LINC01871 (Дополнительный рисунок 3D). Впоследствии была разработана прогностическая номограмма, объединяющая экспрессию LINC01871 с несколькими клиническими характеристиками (Дополнительный рисунок 3E). Калибровочный анализ показал тесное соответствие между вероятностями выживаемости, рассчитанными с помощью номограммы, и наблюдаемыми исходами (Дополнительный рисунок 3F).
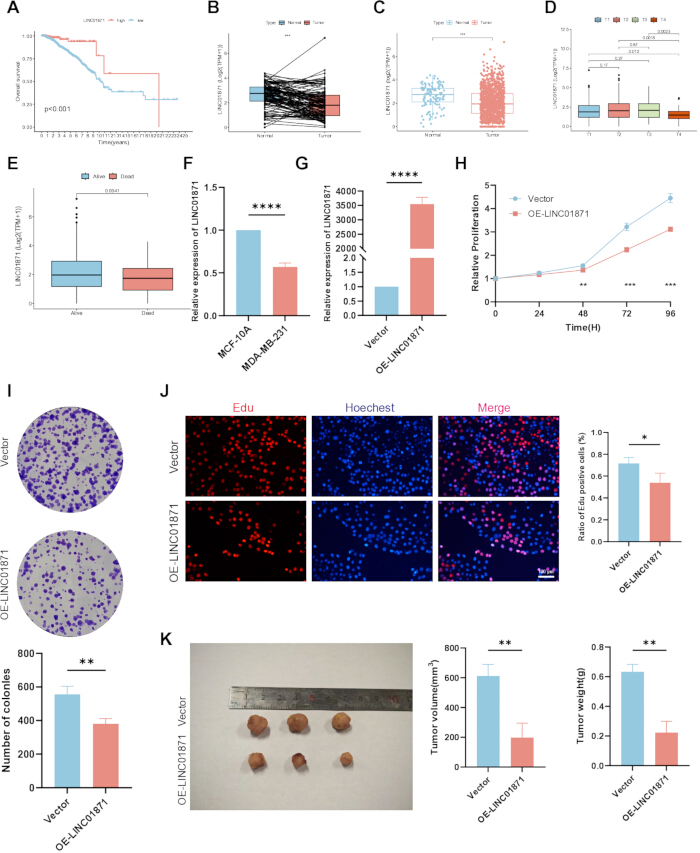
Рисунок 3Экспрессия LINC01871, ее прогностическая значимость и подавление пролиферации клеток рака молочной железы.
(A) Анализ общей выживаемости по методу Каплана–Мейера в зависимости от уровня экспрессии LINC01871. (B,C) Парный (B) и непарный (C) анализы сравнения экспрессии LINC01871 в нормальных тканях и тканях опухоли. (D,E) Экспрессия LINC01871 в зависимости от T-категории опухоли (D) и статуса выживаемости (E). (F) Сравнение относительной экспрессии LINC01871 в клетках MCF-10A и MDA-MB-231. (G) Подтверждение гиперэкспрессии LINC01871 в клетках MDA-MB-231 с помощью количественной полимеразной цепной реакции с обратной транскрипцией. (H–J) Оценка пролиферации клеток с помощью теста Cell Counting Kit-8 (CCK-8) (H), анализа формирования колоний (I) и 5-этинил-2-′анализ включения 5-дезоксиуридина (EdU) (J). Масштабный отрезок на панели J соответствует 100 μm(K) Вид, объем и вес ксенографтов опухоли в группах с векторным контролем и с гиперэкспрессией LINC01871. TPM — количество транскриптов на миллион; OE-LINC01871 — гиперэкспрессия LINC01871. Общую выживаемость оценивали с помощью анализа Каплана–Мейера с применением лог-рангового критерия. Парные сравнения между опухолевыми и нормальными тканями проводили с помощью критерия знаковых рангов Уилкоксона. Для остальных сравнений двух групп выбирали непарный t-критерий Стьюдента или U-критерий Манна–Уитни после проверки нормальности распределения с помощью критерия Шапиро–Уилка. Результаты измерений CCK-8 анализировали с помощью двухфакторного дисперсионного анализа. Эксперименты in vitro включали три независимых биологических повтора, в то время как в эксперименты с ксенографтами было включено по три мыши в каждой группе. Данные представлены в виде среднего значения ± стандартное отклонение. *P < 0,05, **P < 0,01, ***P < 0,001, и ****P < 0,0001; ns — статистически не значимо. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
Оверэкспрессия LINC01871 подавляет пролиферацию опухолевых клеток и связана со снижением передачи сигналов NF-κB
Ингибирующий эффект LINC01871 на пролиферацию опухолевых клеток был дополнительно изучен с использованием моделей in vitro и in vivo. Экспрессия LINC01871 была значительно выше в линии нормальных эпителиальных клеток молочной железы, чем в линии клеток рака молочной железы (Рисунок 3F). Успешное создание модели оверэкспрессии LINC01871 было подтверждено методом RT-qPCR, который показал заметно повышенную экспрессию LINC01871 по сравнению с группой векторного контроля (Рисунок 3G). Последующий анализ с помощью CCK-8 выявил значительное снижение пролиферативной способности в клетках с оверэкспрессией LINC01871 (Рисунок 3H). В соответствии с этим результатом, оверэкспрессия LINC01871 снижала способность к формированию колоний (Рисунок 3I) и уменьшала долю EdU-положительных клеток (Рисунок 3J). В модели ксенографтов опухоли, полученные из клеток с оверэкспрессией LINC01871, были значительно меньше, чем опухоли, полученные из клеток векторного контроля (Рисунок 3K).
Для изучения потенциальных механизмов, лежащих в основе этих эффектов, был проведен функциональный анализ обогащения с использованием двух наборов генов: генов с дифференциальной экспрессией между группами с высоким и низким уровнем экспрессии LINC01871 и генов, идентифицированных как коэкспрессируемые с LINC01871 с помощью корреляционного анализа Пирсона. GO-анализ этих наборов генов выявил связи с несколькими иммуно-связанными функциями, включая связывание с Т-клеточным рецептором, связывание с белковым комплексом главного комплекса гистосовместимости (MHC), положительную регуляцию активации лейкоцитов и активность иммунных рецепторов (Figure 4A,C). KEGG-анализ аналогично выявил иммуно-ассоциированные пути, включая сигнализацию Т-клеточного рецептора, а также путь экспрессии лиганда программируемой смерти 1 (PD-L1) и контрольную точку белка программируемой клеточной смерти 1 (PD-1) в раке. Обогащение также наблюдалось для сигнальных путей Janus-киназы/сигнализатора и активатора транскрипции (JAK-STAT) и NF-κB (Figure 4B,D). Поскольку сигнализация NF-κB была выявлена в обоих анализах обогащения, ее активность была дополнительно изучена с помощью вестерн-блоттинга. Фосфорилирование p65 было заметно ниже в клетках с гиперэкспрессией LINC01871, чем в контрольной группе (Figure 4E), что согласуется со снижением активации пути NF-κB. Также была оценена взаимосвязь между гиперэкспрессией LINC01871 и апоптозом. Вестерн-блоттинг показал повышенную экспрессию проапоптотического белка Bax и сниженную экспрессию антиапоптотического белка Bcl-2 после гиперэкспрессии LINC01871 (Figure 4F). Проточная цитометрия дополнительно выявила значительно большую долю апоптотических клеток в группе с гиперэкспрессией LINC01871 по сравнению с контрольной группой вектора (Figure 4G).
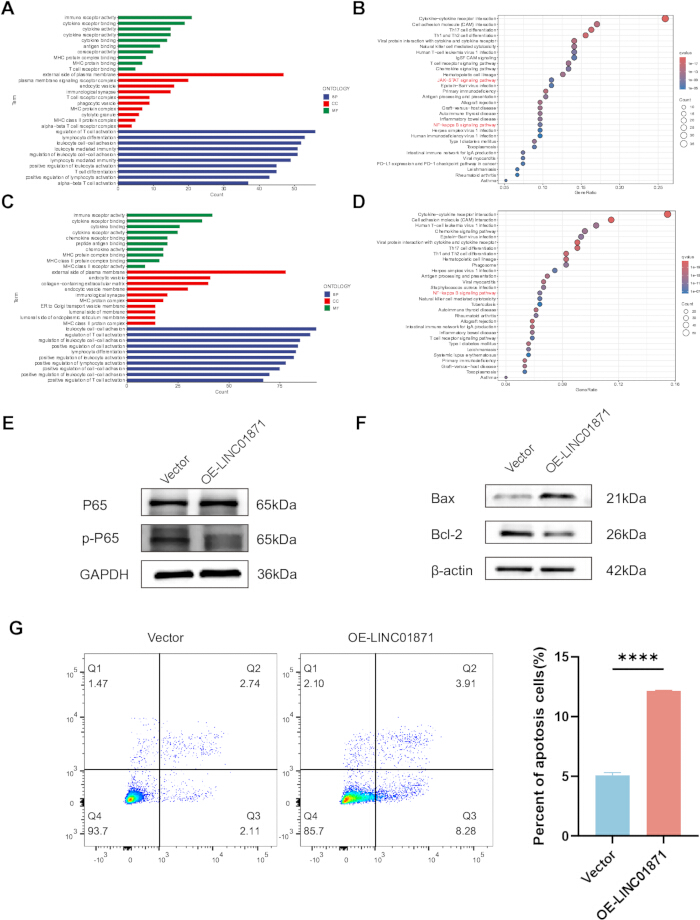
Рисунок 4Связь LINC01871 с сигнальным путем ядерного фактора каппа B и апоптозом.
(A,B) Анализ обогащения Gene Ontology (GO) (A) и Kyoto Encyclopedia of Genes and Genomes (KEGG) (B) для генов с дифференциальной экспрессией между группами с высоким и низким уровнем экспрессии LINC01871. (C,D) Анализ обогащения GO (C) и KEGG (D) для генов, коэкспрессирующихся с LINC01871. (E) Вестерн-блот анализ ядерного фактора «каппа B» (NF-κB) белки сигнального пути P65 и фосфорилированный P65 (p-P65), при этом глицеральдегид-3-фосфатдегидрогеназа (GAPDH) использовалась в качестве контроля загрузки. (F) Вестерн-блот анализ белков, связанных с апоптозом: B-клеточного лимфомы 2 (Bcl-2) и белка Bax (Bcl-2-associated X protein), с использованием β-актин в качестве контроля загрузки. (G) Оценка и количественное определение апоптоза методом проточной цитометрии в клетках с векторным контролем и клетках с гиперэкспрессией LINC01871. Все эксперименты in vitro включали три независимых биологических повтора. Представленные изображения вестерн-блоттинга являются репрезентативными для трех независимых биологических экспериментов. Данные представлены в виде среднего значения ± СО. Сравнения между клетками с векторным контролем и клетками с гиперэкспрессией LINC01871 проводились с использованием непарного t-критерия Стьюдента t—тест или U-критерий Манна — Уитни после оценки нормальности распределения с помощью критерия Шапиро — Уилка. *P < 0,05, **P < 0,01, ***P < 0,001, и ****P < 0,0001; ns — статистически не значимо. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
Панраковый анализ LINC01871
Учитывая свойства LINC01871 как супрессора опухолей при раке молочной железы, мы расширили анализ на несколько типов рака, чтобы охарактеризовать его экспрессию и прогностическую значимость. Дифференциальная экспрессия LINC01871 наблюдалась при нескольких злокачественных новообразованиях, помимо рака молочной железы (Рисунок 5A). При аденокарциноме толстой кишки (COAD), светлоклеточной карциноме почки (KIRC), папиллярно-почечноклеточном раке (KIRP), плоскоклеточном раке легкого (LUSC) и карциноме щитовидной железы (THCA) были выявлены значимые различия между опухолевыми и нормальными тканями как при парных, так и при непарных сравнениях (Рисунок 5B). Анализ выживаемости дополнительно выявил значимые прогностические связи для LINC01871 при плоскоклеточном раке головы и шеи (HNSC), KIRC, глиоме головного мозга низкой степени злокачественности (LGG), аденокарциноме прямой кишки (READ), кожевой меланоме (SKCM), эндометриоидной карциноме тела матки (UCEC), уротелиальной карциноме мочевого пузыря (BLCA), гепатоцеллюлярной карциноме печени (LIHC) и аденокарциноме предстательной железы (PRAD) (Рисунок 5C–E).
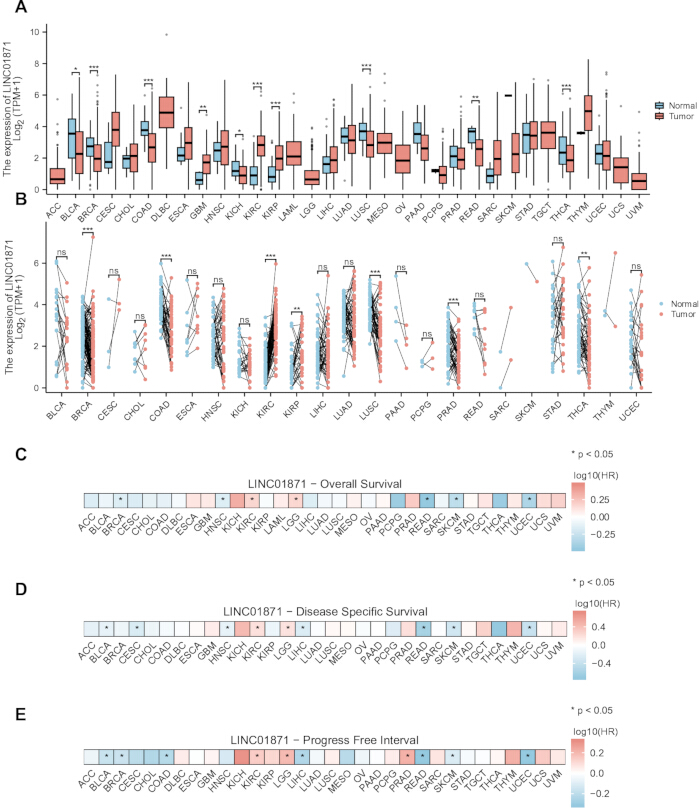
Рисунок 5. Панракный анализ экспрессии и прогностический анализ LINC01871.
(A, B) Сравнение экспрессии LINC01871 в опухолевых и нормальных тканях для различных типов рака с использованием непарного (A) и парного (B) анализа. (C–E) Прогностические связи LINC01871, представленные в виде логарифмически преобразованных отношений рисков для общей выживаемости (C), специфической выживаемости (D) и интервала до прогрессирования заболевания (E). HR — отношение рисков; TPM — количество транскриптов на миллион; ns — статистически не значимо. Сокращения типов рака приведены в соответствии с номенклатурой The Cancer Genome Atlas. Непарные данные опухоль–норма оценивались с помощью U-критерия Манна–Уитни (A), а парные данные опухоль–норма — с помощью критерия Вилкоксона (B). Связи с общей выживаемостью, специфической выживаемостью и интервалом до прогрессирования заболевания изучались с помощью одномерной регрессии пропорциональных рисков Кокса (C–E). *P < 0.05, **P < 0.01, ***P < 0.001 и ****P < 0.0001; ns — статистически не значимо. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
Корреляция между экспрессией LINC01871 и инфильтрацией иммунных клеток
Далее мы охарактеризовали клеточное распределение LINC01871, используя данные секвенирования РНК отдельных клеток из образцов рака молочной железы (GSE161529). После контроля качества, коррекции пакетных эффектов, кластеризации и аннотации типов клеток были выявлены следующие популяции: эпителиальные клетки, CD8⁺ T-клетки, T-клетки, макрофаги, фибробласты, естественные киллеры (NK-клетки) и B-клетки (Рисунок 6A). Среди этих популяций экспрессия LINC01871 была наиболее выражена в T-клетках и NK-клетках (Рисунок 6B,C). В связи с этим мы дополнительно изучили взаимосвязь между LINC01871 и иммунным микроокружением, используя оценки инфильтрации на основе транскриптома. Анализ CIBERSORT показал, что в группе с высокой экспрессией LINC01871 наблюдались более высокие расчетные доли нескольких популяций иммунных клеток, включая CD8⁺ T-клетки, NK-клетки и M1-макрофаги, наряду с более низкими расчетными долями регуляторных T-клеток (Tregs) и M2-макрофагов (Рисунок 6D). Аналогично, иммунные показатели, полученные с помощью ESTIMATE, были выше в образцах с высокой экспрессией LINC01871 (Рисунок 6E). Анализ методом ssGSEA с использованием ранее описанных генов-маркеров иммунных клеток дал в целом согласованные результаты (Рисунок 6F). Расширение этого анализа на различные типы рака выявило значимые корреляции между экспрессией LINC01871 и расчетным обилием множества популяций иммунных клеток (Рисунок 6G).
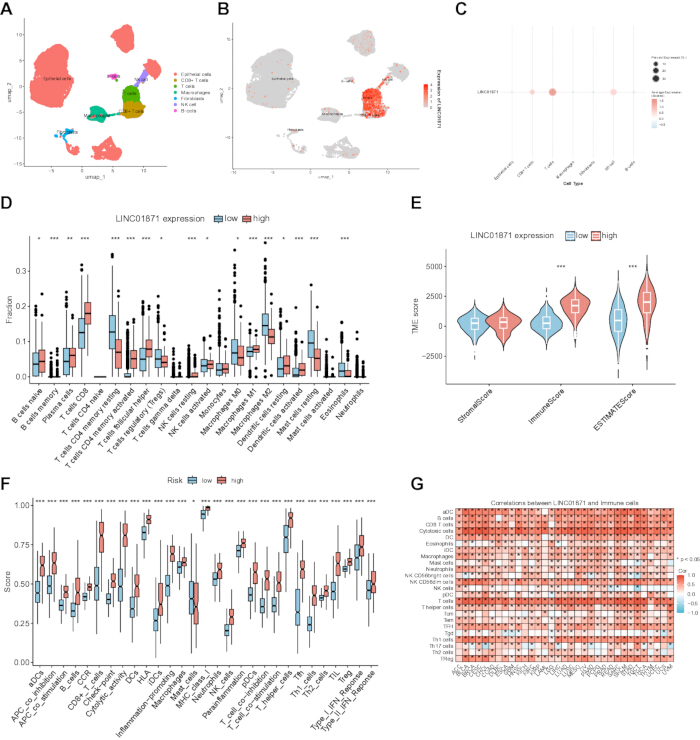
Рисунок 6Анализ экспрессии LINC01871 на уровне отдельных клеток и анализ иммунной инфильтрации.
(A) Представление методом однообразного аппроксимированного проецирования (UMAP) аннотированных популяций клеток, идентифицированных на основе данных секвенирования РНК отдельных клеток. (B) График признаков UMAP, отображающий распределение экспрессии LINC01871 среди аннотированных популяций клеток. (C) Точечная диаграмма, демонстрирующая долю экспрессирующих LINC01871 клеток и масштабированный средний уровень экспрессии для каждого типа клеток. (D) Относительные пропорции 22 популяций иммунных клеток в группах с низкой и высокой экспрессией LINC01871, оцененные методом идентификации типов клеток путем оценки относительных подмножеств РНК-транскриптов (CIBERSORT). (E) Баллы стромального, иммунного компонентов и микроокружения опухоли, полученные с помощью метода оценки стромальных и иммунных клеток в тканях злокачественных опухолей по данным экспрессии (ESTIMATE). (F) Баллы, связанные с иммунным ответом, полученные с помощью анализа обогащения наборов генов в одной пробе (ssGSEA) в группах с низкой и высокой экспрессией LINC01871. (G) Панраксовые ассоциации между экспрессией LINC01871 и инфильтрацией иммунных клеток, оцененные с помощью ssGSEA. NK — естественные киллеры; TME — микроокружение опухоли. Сокращения типов рака приведены в соответствии с номенклатурой The Cancer Genome Atlas. Различия между группами с низкой и высокой экспрессией LINC01871 оценивали с помощью U-критерия Манна–Уитни (D–F). Панраковые ассоциации между экспрессией LINC01871 и инфильтрацией иммунных клеток оценивали с помощью корреляционного анализа Спирмена (G). *P < 0,05, **P < 0,01, ***P < 0,001, и ****P < 0,0001; ns — статистически не значимо. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
Доступность данных:
Наборы данных, проанализированные в этом исследовании, находятся в открытом доступе в Атласе генома рака (TCGA; https://portal.gdc.cancer.gov) и базе данных Gene Expression Omnibus (GEO; https://www.ncbi.nlm.nih.gov/geo/). Использованные наборы данных включают когорту TCGA-BRCA и GSE161529 (https://www.ncbi.nlm.nih.gov/geo/query/acc.cgi?acc=GSE161529). Дополнительные рисунки 1–3 содержат дополнительные биоинформатические и прогностические анализы. В Дополнительной таблице 1 приведены последовательности праймеров, использованных для количественной полимеразной цепной реакции с обратной транскрипцией (RT-qPCR), а в Дополнительной таблице 2 перечислены первичные и вторичные антитела, использованные для вестерн-блот-анализа. Скрипты на языке R, использованные для биоинформатического и статистического анализа, представлены в Дополнительном файле 1.
Дополнительная фигура 1. Идентификация дифференциально экспрессируемых генов и модулей взвешенной сети коэкспрессии генов, связанных с прогнозируемой чувствительностью к ингибиторам CDK4/6.
(A,B) Графики «вулкан» (volcano plots), демонстрирующие дифференциальную экспрессию генов между группами с прогнозируемой резистентностью и прогнозируемой чувствительностью к рибоциклибу (A) и палбоциклибу (B). (C,D) Дендрограммы кластеризации, полученные с помощью WGCNA, показывающие кластеризацию генов и назначение модулей для рибоциклиба (C) и палбоциклиба (D). Дифференциально экспрессируемыми генами считались гены с абсолютным значением log2 кратности изменения (fold change) ≥0.5 и скорректированным значением P <0.05. Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительная фигура 2. Прогностическая и предиктивная эффективность пяти дополнительных кандидатных lncRNA.
(A) Анализ выживаемости по методу Каплана–Майера для пяти дополнительных кандидатных lncRNA, идентифицированных с помощью LASSO-регрессии. (B,C) Анализ кривых рабочих характеристик приемника (ROC-кривых), демонстрирующий диагностическую эффективность этих пяти lncRNA при прогнозировании резистентности к рибоциклибу (B) и палбоциклибу (C). Соответствующие анализы LINC01871 представлены на Рисунках 1 и 3. Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительный рисунок 3. Прогностическая оценка LINC01871 при раке молочной железы.
(A) Прогнозируемые значения полумаксимальной концентрации ингибирования (IC50) для рибоциклиба и пальбоциклиба в группах с высокой и низкой экспрессией LINC01871 в подгруппе с положительным гормональным рецептором/отрицательным рецептором эпидермального фактора роста человека 2 (HR-положительный/HER2-отрицательный). (B) Корреляционный анализ Спирмена между экспрессией LINC01871 и прогнозируемыми значениями IC50 для рибоциклиба и пальбоциклиба в HR-положительной/HER2-отрицательной подгруппе. (C) Анализ выживаемости Каплана-Майера для интервала до прогрессирования (PFI) в зависимости от экспрессии LINC01871. (D) Анализ выживаемости Каплана-Майера для пациентов, получавших лучевую терапию, стратифицированный по экспрессии LINC01871. (E) Номограмма, интегрирующая экспрессию LINC01871 и клинико-патологические характеристики для прогнозирования общей выживаемости в общей когорте TCGA-BRCA. (F) Калибровочные кривые, оценивающие соответствие между прогнозируемой и наблюдаемой вероятностью выживаемости для номограммы через 1, 3 и 5 лет. Сравнения на панели A анализировались с помощью U-критерия Манна-Уита, а корреляции на панели B оценивались с помощью корреляционного анализа Спирмена. IC50 — полумаксимальная концентрация ингибирования; PFI — интервал до прогрессирования; HR — гормональный рецептор; HER2 — рецептор эпидермального фактора роста человека 2. *P < 0.05, **P < 0.01, ***P < 0.001 и ****P < 0.0001; ns — статистически не значимо. Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительная таблица 1. Последовательности праймеров, использованных для количественной полимеразной цепной реакции с обратной транскрипцией (RT-qPCR).
Последовательности прямых и обратных праймеров (5′→3′), использованных для RT-qPCR анализа LINC01871 и эндогенного референсного гена GAPDH. Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительная таблица 2. Первичные и вторичные антитела, использованные для вестерн-блот-анализа.
Первичные и вторичные антитела, использованные для вестерн-блот-анализа, включая целевой белок или специфичность антител, поставщика, номер по каталогу, вид животного-хозяина, рабочее разведение и идентификатор исследовательского ресурса (RRID). Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительный файл 1. R-скрипты, использованные для биоинформатического и статистического анализа.
Данный дополнительный файл содержит R-скрипты, использованные для проведения биоинформатического анализа и построения рисунков, представленных в этом исследовании, включая транскриптомный анализ, анализ дифференциальной экспрессии, анализ сетей коэкспрессии генов с весовыми коэффициентами (WGCNA), регрессию LASSO (least absolute shrinkage and selection operator), анализ выживаемости, анализ ROC-кривых (receiver operating characteristic), анализ функционального обогащения, анализ иммунной инфильтрации, анализ секвенирования РНК единичных клеток и генерацию рисунков. Отдельные скрипты соответствуют основным и дополнительным рисункам, представленным в рукописи. Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Обсуждение
Расширение понимания биологии рака привело к выявлению новых терапевтических мишеней и утвердило таргетную терапию в качестве важного компонента лечения онкологических заболеваний17. Однако развитие резистентности к лечению продолжает ограничивать их долгосрочную эффективность. В данном исследовании интеграция мультиомиксного анализа с методами машинного обучения позволила определить LINC01871 в качестве кандидата, связанного с прогнозируемой чувствительностью к рибоциклибу и палбоциклибу. Экспериментальный анализ дополнительно показал, что гиперэкспрессия LINC01871 повышала чувствительность к обоим препаратам in vitro и подавляла пролиферацию клеток рака молочной железы в клеточных и ксенографных моделях. Эти эффекты сопровождались снижением активности пути NF-κB, что указывает на потенциальную связь между LINC01871 и этим сигнальным путем. Данные наблюдения могут быть актуальны в контексте растущего использования биомаркеров для принятия решений о лечении при терапии ингибиторами CDK4/6. Тем не менее, доказательства в поддержку LINC01871 существенно отличаются от тех, что доступны для установленных подходов с использованием биомаркеров. Например, мониторинг циркулирующей опухолевой ДНК на наличие мутаций в ESR1 прошел проспективную оценку как стратегия адаптации эндокринной терапии. LINC01871, напротив, остается кандидатом в биомаркеры и пока не должен считаться подходящим для принятия клинических решений. Это различие особенно важно, поскольку варианты лечения после прогрессирования на терапии ингибиторами CDK4/6 при HR-положительном/HER2-отрицательном метастатическом раке молочной железы теперь включают пероральные селективные деградаторы рецепторов эстрогена, ингибиторы пути PI3K/AKT и конъюгаты антитело-лекарство18,19. В условиях этого развивающегося терапевтического ландшафта биомаркеры, способные дифференцировать различия в чувствительности к ингибиторам CDK4/6, могли бы помочь в стратификации лечения. Хотя наши результаты подтверждают связь между LINC01871 и чувствительностью к рибоциклибу и палбоциклибу, на данный момент эти данные основаны на вычислительных оценках чувствительности к препаратам в сочетании с экспериментами in vitro. Таким образом, потребуются проспективные когорты с задокументированным применением ингибиторов CDK4/6 и клиническими исходами, чтобы определить, обладает ли LINC01871 прогностической ценностью для пациентов.
Терапевтическая эффективность ингибиторов CDK4/6 при раке молочной железы с положительным статусом рецепторов эстрогена и/или прогестерона была продемонстрирована в многочисленных клинических исследованиях4,5,6. Возможность их применения при трижды негативном раке молочной железы также стала предметом изучения20,21. Например, Yang и соавт. обнаружили, что одновременное воздействие на CDK4/6 и CDK7 подавляло пролиферацию клеток трижды негативного рака молочной железы22. В других исследованиях были выявлены молекулярные изменения, которые могут модифицировать ответ на ингибирование CDK4/6. Было отмечено, что ингибирование GPX4 повышает чувствительность к палбоциклибу как при эстрогенрецептор-положительном, так и при трижды негативном раке молочной железы23, в то время как C9orf142 связывали с резистентностью к ингибиторам CDK4/6 при трижды негативном раке молочной железы20. Напротив, сообщалось, что ингибирование ACAA1 повышает чувствительность клеток рака молочной железы к ингибиторам CDK4/624. Большая часть существующих работ по молекулярным детерминантам ответа на ингибиторы CDK4/6 была сосредоточена на белкодирующих генах, в результате чего вклад lncRNAs остался менее изученным. Наши результаты расширяют эту область, идентифицируя LINC01871 как потенциальную некодирующую РНК, связанную с ответом на ингибиторы CDK4/6. Анализы цитотоксичности и колониеобразования, наряду с проточной цитометрией и анализом белков клеточного цикла, последовательно связывали гиперэкспрессию LINC01871 с повышенной чувствительностью к рибоциклибу и палбоциклибу. Отдельные тесты на пролиферацию и модель ксенографтов дополнительно подтвердили ингибирующую связь между гиперэкспрессией LINC01871 и ростом рака молочной железы.
Чтобы исследовать механизмы, которые могут лежать в основе этих наблюдений, мы изучили функциональные профили генов, дифференциально экспрессирующихся в группах с высоким и низким уровнем LINC01871, а также генов, ко-экспрессирующихся с LINC01871. Анализы GO и KEGG связали оба набора генов с иммунными процессами и сигналингом NF-κB. Этот результат имеет значение для регуляции клеточного цикла, поскольку ранее сообщалось, что сигналинг NF-κB повышает экспрессию циклина D и тем самым способствует прогрессированию клеточного цикла25,26. Zhou и др. далее показали, что NF-κB может взаимодействовать с промотором CDK6 и стимулировать транскрипцию CDK627. Также было описано перекрестное взаимодействие между NF-κB и путем PI3K/AKT/mTOR28, причем последний путь задействован в развитии резистентности к ингибиторам CDK4/611. В совокупности эти наблюдения обосновывают необходимость изучения активности NF-κB в контексте LINC01871. В соответствии с результатами обогащения, клетки с гиперэкспрессией LINC01871 демонстрировали более низкий уровень фосфорилирования P65. Тем не менее, эти данные устанавливают связь, а не прямой регуляторный механизм, и то, каким образом LINC01871 влияет на сигналинг NF-κB, еще предстоит определить.
Иммунное микроокружение представляет собой еще один потенциальный фактор, влияющий на ответ на ингибиторы CDK4/6. Например, сообщалось, что γδ T-клетки способствуют развитию резистентности посредством механизмов, опосредованных макрофагами CX3CR1⁺29. Luo и др. наблюдали более выраженную инфильтрацию CD8⁺ T-клеток и NK-клеток в опухолях пациентов, у которых резистентность к ингибиторам CDK4/6 развилась на более поздних этапах30. Наш анализ на уровне единичных клеток показал, что экспрессия LINC01871 была более выражена в T-клетках и NK-клетках, чем в эпителиальных клетках. Дополнительный анализ транскриптома связал более высокую экспрессию LINC01871 с более высокой расчетной инфильтрацией CD8⁺ T-клеток, M1-макрофагов и NK-клеток, а также с более низкой расчетной инфильтрацией M2-макрофагов и Treg-клеток. CD8⁺ T-клетки, M1-макрофаги и NK-клетки ассоциированы с противоопухолевой иммунной активностью, тогда как M2-макрофаги связаны с функциями, способствующими росту опухоли31,32,33,34. В совокупности наши результаты позволяют предположить, что более высокая экспрессия LINC01871 может быть связана с более иммуноактивным микроокружением опухоли. Однако данная интерпретация остается предварительной, поскольку оценки количества иммунных клеток были выведены из транскриптомных профилей, а не измерены напрямую; для того чтобы установить, играет ли LINC01871 роль в формировании иммунного микроокружения, потребуются функциональные исследования.
При интерпретации данных результатов следует учитывать несколько ограничений. Во-первых, LINC01871 был идентифицирован с помощью интегративного мультиомиксного анализа, в котором ответ на лекарственную терапию вычислялся компьютерным методом, а не был получен от пациентов, принимавших ингибиторы CDK4/6. Хотя прямые эксперименты in vitro показали повышенную чувствительность к палбоциклибу и рибоциклибу после гиперэкспрессии LINC01871, эти результаты не устанавливают его прогностическую ценность для пациентов. Следовательно, для оценки LINC01871 в качестве прогностического биомаркера потребуются независимые когорты с документально подтвержденным воздействием ингибиторов CDK4/6 и данными о клиническом ответе. Во-вторых, анализ поиска изначально проводился на всей когорте TCGA-BRCA, которая охватывает клинически гетерогенные подтипы рака молочной железы. Связь между LINC01871 и прогнозируемой чувствительностью к препаратам также наблюдалась в подгруппе HR-положительных/HER2-отрицательных опухолей; однако необходимо подтверждение в клинически леченных популяциях HR-положительных/HER2-отрицательных пациентов. В-третьих, наш анализ ответа на препараты был ограничен палбоциклибом и рибоциклибом, так как соответствующие данные об ответе на абемациклиб отсутствовали в наборе данных GDSC2, использованном в этом исследовании. Таким образом, остается неизвестным, распространяется ли наблюдаемая связь на абемациклиб. В-четвертых, несмотря на опухолесупрессивные эффекты, наблюдаемые в экспериментах на клеточных линиях и ксенографтах, молекулярная связь между LINC01871 и сигнальным путем NF-κB не была установлена. Гиперэкспрессия LINC01871 сопровождалась снижением фосфорилирования P65, но механизм, ответственный за эту связь, требует дальнейшего изучения. Аналогичным образом, наблюдения, связанные с иммунитетом, были получены преимущественно в результате компьютерного анализа транскриптома и должны интерпретироваться как ассоциации, а не как доказательство того, что LINC01871 напрямую регулирует иммунное микроокружение опухоли. Наконец, резистентность к ингибиторам CDK4/6 включает множество биологических процессов, и маловероятно, что LINC01871 объясняет всю сложность ответа на лечение. Следовательно, дальнейшие исследования должны включать специфические для подтипов когорты, оценку абемациклиба, экспериментальную проверку иммуноопосредованных ассоциаций, механистические исследования взаимосвязи между LINC01871 и сигнализацией NF-κB, а также проспективную клиническую оценку для определения пригодности LINC01871 в качестве прогностического биомаркера.
Раскрытие информации
Конфликт интересов:
Авторы заявляют об отсутствии конкурирующих интересов.
Благодарности
Данное исследование было поддержано Фондом естественных наук провинции Фуцзянь (грант № 2022J011056). Авторы выражают благодарность The Cancer Genome Atlas (TCGA) и Gene Expression Omnibus (GEO) за предоставление общедоступных наборов данных, использованных в этой работе.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| Иглы для шприцев 25 G | Beyotime | FS802-30pcs | Одноразовые иглы для шприцев, используемые для роторатора рта и опционального предварительного разрыхления периодонтальной связки |
| 4% раствор параформальдегида | Solarbio | P1110 | 4% раствор параформальдегида, используемый для фиксации образцов |
| 75% этанол | Ouse Medical Devices Store | N/A | 75% медицинский этанол, используемый для дезинфекции поверхностей |
| Мыши C57BL/6 | Charles River | 213 | Самцы мышей C57BL/6 в возрасте 8 недель весом 22–29 g |
| Каропрофен | Solarbio | C5350 | Послеоперационный анальгетик, вводимый подкожно в дозе 5 mg/kg |
| Ватные тампоны | Ouning Medical Devices | N/A | Стерильные ватные тампоны, используемые для очистки полости рта и гемостаза |
| CTAn v1.18.4.0+ | SkyScan | N/A | Программное обеспечение, используемое для анализа μCT-изображений |
| DataViewer v1.5.6.2 | SkyScan | N/A | Программное обеспечение, используемое для просмотра и экспорта реконструированных μCT-изображений |
| Напальчники | LeSu Office | MEKU-1/2/3B | Напальчники, используемые для защиты больших пальцев во время экстракции |
| Пенопластовая доска | Dongguan Lijianglong Industrial Co., Ltd. | N/A | Пенопластовая доска, используемая в качестве операционной платформы и платформы для фиксации |
| Гелевая диета | ReadyDietech | J10001 | Послеоперационный рацион, размещаемый на дне клетки в течение 3 дней (при необходимости) |
| GraphPad Prism v10.1.2 | GraphPad | RRID: SCR_002798 | Программное обеспечение, используемое для статистического анализа и построения графиков |
| Налобный фонарь | Bazhou Pengen Protective Equipment Factory | N/A | Налобный фонарь, используемый для освещения операционного поля |
| Нагревательная подушка | Shijiazhuang Jianuan Electrical Appliances Co., Ltd. | N/A | Нагревательная подушка, предварительно нагретая примерно до 38 °C для послеоперационного восстановления |
| Фантом из гидроксиапатита | QRM | QRM-70127 | Калибровочный фантом, используемый для преобразования значений затухания КТ в минеральную плотность кости |
| Увеличительный прибор | Olympus Corporation | SZX10 | Прибор, используемый для осмотра кончиков зубчатого пинцета и лунки экстракции под увеличением |
| Маска | Senlun Medical Devices Specialty Store | N/A | Хирургическая маска |
| Микрокомпьютерный томограф | Bruker SkyScan | SkyScan 1276 | μCT-сканер, используемый при 80 kV, 500 μA и разрешении вокселя 10 μm |
| Mimics Research v21.0 | Materialise | RRID: SCR_015802 | Программное обеспечение, используемое для трехмерной реконструкции |
| Пентобарбитал натрия | Sigma-Aldrich | P3761 | Соль пентобарбитала натрия, используемая в виде 1% анестезирующего раствора |
| Фосфатно-солевой буферный раствор | Solarbio | P1010 | 0.01 M порошок фосфатно-солевого буфера, pH 7.2–7.4 |
| Антисептический раствор повидон-йода | Belkon Pharmacy Flagship Store | N/A | Раствор повидон-йода, используемый для дезинфекции брюшной полости |
| Резинки | Foshan Puli Rubber Products Factory | N/A | Резинки, используемые для сборки роторатора рта |
| Физраствор | Thermo Fisher | BR0053G | Таблетки для приготовления физиологического раствора для очистки полости рта |
| Стандартный зерновой корм | Jiangsu Xietong Pharmaceutical and Biotechnology Engineering Co., Ltd. | XTC01WC-001 | Стандартный корм, используемый для обычного содержания и размягчаемый для послеоперационного кормления |
| Паровой стерилизатор | Institutional facility | N/A | Оборудование, используемое для стерилизации зубчатого пинцета и физраствора |
| Стерильные ватные палочки | Kangbailai Medical Devices Store | N/A | Одноразовые стерильные ватные палочки |
| Стерильные перчатки | Senlun Medical Devices Specialty Store | N/A | Стерильные латексные перчатки |
| Стерильный нетканый материал | Shandong Xinhua Infection Control Supplies Hangzhou Store | N/A | Стерильный нетканый материал, используемый для покрытия операционной поверхности и нагревательной подушки |
| Стерильная хирургическая шапочка | Senlun Medical Devices Specialty Store | N/A | Стерильная хирургическая шапочка |
| Хирургический костюм | Senlun Medical Devices Specialty Store | N/A | Чистый хирургический костюм, надеваемый во время процедуры |
| Лента | Thermo Fisher | 15947 | Адгезивная лента, используемая для фиксации конечностей мыши |
| Зубчатый офтальмологический пинцет | Beyotime | FS229 | Зубчатый офтальмологический зажим, используемый в качестве зубного пинцета |
| Ветеринарная офтальмологическая мазь | Dechra Veterinary Products | 143-16 | Офтальмологическая мазь, наносимая после анестезии для предотвращения пересыхания роговицы |
Ссылки
- Bray F, et al. Global cancer statistics 2022: GLOBOCAN estimates of incidence and mortality worldwide for 36 cancers in 185 countries. CA Cancer J Clin. 2024;74(3):229-63.
- Xiong X, et al. Breast cancer: Pathogenesis and treatments. Signal Transduct Target Ther. 2025;10(1):49.
- Ye F, et al. Advancements in clinical aspects of targeted therapy and immunotherapy in breast cancer. Mol Cancer. 2023;22(1):105.
- Johnston SRD, et al. Abemaciclib plus endocrine therapy for hormone receptor-positive, HER2-negative, node-positive, high-risk early breast cancer (monarchE): Results from a preplanned interim analysis of a randomised, open-label, phase 3 trial. Lancet Oncol. 2023;24(1):77-90.
- Slamon D, et al. Ribociclib plus endocrine therapy in early breast cancer. N Engl J Med. 2024;390(12):1080-91.
- Finn RS, et al. The cyclin-dependent kinase 4/6 inhibitor palbociclib in combination with letrozole versus letrozole alone as first-line treatment of oestrogen receptor-positive, HER2-negative, advanced breast cancer (PALOMA-1/TRIO-18): A randomised phase 2 study. Lancet Oncol. 2015;16(1):25-35.
- Morrison L, Loibl S, Turner NC. The CDK4/6 inhibitor revolution-a game-changing era for breast cancer treatment. Nat Rev Clin Oncol. 2024;21(2):89-105.
- Guo Z, et al. Cyclin-dependent kinase 4 and 6 inhibitors in breast cancer treatment. Oncogene. 2025;44(17):1135-52.
- Vora SR, et al. CDK4/6 inhibitors sensitize PIK3CA-mutant breast cancer to PI3K inhibitors. Cancer Cell. 2014;26(1):136-49.
- Foffano L, et al. Cyclin-dependent kinase 4 and 6 inhibitors (CDK4/6i): Mechanisms of resistance and where to find them. Breast. 2025;79:103863.
- Hao C, et al. PI3K/AKT/mTOR inhibitors for hormone receptor-positive advanced breast cancer. Cancer Treat Rev. 2025;132:102861.
- Bidard FC, et al. Switch to fulvestrant and palbociclib versus no switch in advanced breast cancer with rising ESR1 mutation during aromatase inhibitor and palbociclib therapy (PADA-1): A randomised, open-label, multicentre, phase 3 trial. Lancet Oncol. 2022;23(11):1367-77.
- Bidard FC, et al. First-line camizestrant for emerging ESR1-mutated advanced breast cancer. N Engl J Med. 2025;393(6):569-80.
- Zhang D, et al. Cancer-associated fibroblasts promote tumor progression by lncRNA-mediated RUNX2/GDF10 signaling in oral squamous cell carcinoma. Mol Oncol. 2022;16(3):780-94.
- Chen F, et al. Extracellular vesicle-packaged HIF-1α-stabilizing lncRNA from tumour-associated macrophages regulates aerobic glycolysis of breast cancer cells. Nat Cell Biol. 2019;21(4):498-510.
- Chen X, et al. Estrogen-induced lncRNA LINC02568 promotes estrogen receptor-positive breast cancer development and drug resistance through both in trans and in cis mechanisms. Adv Sci (Weinh). 2023;10(25):e2206663.
- Huang R, Zhou PK. DNA damage repair: Historical perspectives, mechanistic pathways and clinical translation for targeted cancer therapy. Signal Transduct Target Ther. 2021;6(1):254.
- Güren AK, et al. Post-CDK4/6 inhibitor treatment landscape in metastatic hormone receptor-positive breast cancer: A narrative review. Expert Rev Anticancer Ther. 2026;26(4):425-35.
- Güren AK, et al. Efficacy and safety of sacituzumab govitecan in hormone receptor-positive metastatic breast cancer: A systematic review and meta-analysis. J Oncol Pharm Pract. 2026. doi:10.1177/10781552261462434.
- Liao L, et al. C9orf142 transcriptionally activates MTBP to drive progression and resistance to CDK4/6 inhibitors in triple-negative breast cancer. Clin Transl Med. 2023;13(11):e1480.
- Zhu X, et al. Efficacy and mechanism of the combination of PARP and CDK4/6 inhibitors in the treatment of triple-negative breast cancer. J Exp Clin Cancer Res. 2021;40(1):122.
- Yang Y, et al. Dual inhibition of CDK4/6 and CDK7 suppresses triple-negative breast cancer progression via epigenetic modulation of SREBP1-regulated cholesterol metabolism. Adv Sci (Weinh). 2025;12(5):e2413103.
- Herrera-Abreu MT, et al. Inhibition of GPX4 enhances CDK4/6 inhibitor and endocrine therapy activity in breast cancer. Nat Commun. 2024;15(1):9550.
- Peng WT, et al. Inhibition of ACAA1 restrains proliferation and potentiates the response to CDK4/6 inhibitors in triple-negative breast cancer. Cancer Res. 2023;83(10):1711-24.
- Joyce D, et al. NF-κB and cell-cycle regulation: The cyclin connection. Cytokine Growth Factor Rev. 2001;12(1):73-90.
- Iwanaga R, et al. Activation of the cyclin D2 and CDK6 genes through NF-κB is critical for cell-cycle progression induced by HTLV-I Tax. Oncogene. 2008;27(42):5635-42.
- Zhou B, et al. Bortezomib suppresses self-renewal and leukemogenesis of leukemia stem cells by NF-κB-dependent inhibition of CDK6 in MLL-rearranged myeloid leukemia. J Cell Mol Med. 2021;25(6):3124-35.
- Yu M, et al. Baicalein increases cisplatin sensitivity of A549 lung adenocarcinoma cells via the PI3K/AKT/NF-κB pathway. Biomed Pharmacother. 2017;90:677-85.
- Petroni G, et al. IL-17A-secreting γδ T cells promote resistance to CDK4/CDK6 inhibitors in HR-positive/HER2-negative breast cancer via CX3CR1-positive macrophages. Nat Cancer. 2025;6(10):1656-75.
- Luo L, et al. Single-cell RNA sequencing identifies molecular biomarkers predicting late progression to CDK4/6 inhibition in patients with HR-positive/HER2-negative metastatic breast cancer. Mol Cancer. 2025;24(1):48.
- Komuro H, et al. Single-cell sequencing of CD8-positive tumor-infiltrating lymphocytes revealed the nature of exhausted T cells recognizing neoantigens and cancer/testis antigens in non-small cell lung cancer. J Immunother Cancer. 2023;11(8):e007180.
- Rafei H, et al. CREM is a regulatory checkpoint of CAR and IL-15 signalling in NK cells. Nature. 2025;643(8073):1076-86.
- Van Elsas MJ, et al. Immunotherapy-activated T cells recruit and skew late-stage activated M1-like macrophages that are critical for therapeutic efficacy. Cancer Cell. 2024;42(6):1032-50.e1010.
- Yang J, et al. STK11 coordinates IL-4 signaling with metabolic reprogramming to control M2 macrophage polarization and antitumor immunity. Sci Adv. 2025;11(39):eadx5495.