Данный протокол объединяет прогнозирование мишеней микробных метаболитов, транскриптомику слизистой оболочки прямой кишки, анализ белок-белковых взаимодействий и обогащения путей, молекулярный докинг, моделирование молекулярной динамики и оценку свободной энергии связывания методом молекулярной механики/поверхности Пуассона — Больцмана (MM-PBSA) для формирования ранжированного списка гипотетических генов-кандидатов хозяина, связанных с метаболитами, и структурно приоритетных белок-лигандных комплексов для последующей экспериментальной проверки.
Методическая статья
Вычислительный рабочий процесс для приоритизации генов хозяина, связанных с микробными метаболитами, при синдроме раздраженного кишечника с преобладанием запоров
В этой статье
Краткое содержание
Аннотация
На данный момент не существует стандартизированного вычислительного конвейера для систематического определения приоритетных генов хозяина, ассоциированных с микробными метаболитами, и белок-лигандных комплексов на основе общедоступных химических, геномных и структурных баз данных. В данной статье описывается восьмиэтапный рабочий процесс, который принимает заданный пользователем набор метаболитов, производных микробиоты кишечника, и формирует ранжированный сокращенный список потенциальных ассоциированных с метаболитами генов хозяина, обогащенных биологических путей и структурно приоритетных белок-лигандных комплексов для последующих экспериментальных исследований. Конвейер объединяет в себе (i) хемоинформационное профилирование метаболитов; (ii) предсказание потенциальных мишеней с использованием нескольких баз данных с помощью инструментов предсказания мишеней на основе белково-химического взаимодействия и лигандов, а также программы молекулярного докинга; (iii) анализ дифференциальной экспрессии генов на основе общедоступных транскриптомных данных; (iv) поиск пересечений между мишенями и дифференциально экспрессируемыми генами; (v) построение сети белок-белковых взаимодействий и анализ обогащения путей; (vi) молекулярный докинг с помощью программы молекулярного докинга; (vii) молекулярно-динамическое моделирование продолжительностью 200 ns с использованием движка молекулярной динамики и силового поля белков, применяемого для моделирования молекулярной динамики; и (viii) оценку свободной энергии связывания методом MM-PBSA. В качестве практического примера девять производных или модифицированных микробиотой кишечника метаболитов, представляющих короткоцепочечные жирные кислоты, желчные кислоты, метаболиты триптофана и уролитин A, были обработаны с использованием общедоступного набора транскриптомных данных слизистой оболочки прямой кишки при IBS-C GSE36701. В результате рабочего процесса были ранжированы 17 уникальных предсказанных ассоциированных с метаболитами генов, которые дифференциально экспрессировались в данном наборе данных. Анализы докинга, молекулярно-динамического моделирования и MM-PBSA позволили структурно приоритезировать пять комплексов метаболит-белок: литохолевая кислота-VDR, литохолевая кислота-NR1H4/FXR, урсодезоксихолевая кислота-NR1H4/FXR, триптамин-HTR2A (моделирование проводилось в явном липидном бислое 1-Palmitoyl-2-oleoyl-sn-glycero-3-phosphocholine (POPC)) и уролитин A-CASP3. Данный протокол разработан с возможностью адаптации к другим наборам метаболитов, транскриптомным наборам данных заболеваний и классам мишеней; все результаты представляют собой генерирующие гипотезы вычислительные предсказания, которые требуют независимой транскриптомной репликации, валидации на уровне белка и функциональных анализов ответа на лиганд, прежде чем можно будет сделать причинно-следственные или терапевтические выводы.
Введение
Синдром раздраженного кишечника с запорами (СРК-З) представляет собой распространенное функциональное желудочно-кишечное расстройство, характеризующееся рецидивирующими болями в животе, изменением характера дефекации, вздутием и запорами; по оценкам, глобальная распространенность этого заболевания составляет примерно 10–15% от общей численности населения1,2. Современные методы фармакологической терапии, включая секретагоги, прокинетики и спазмолитики, могут облегчить отдельные симптомы у части пациентов, однако ответ на лечение остается неоднородным, а стойкая ремиссия достигается редко, что отражает сложную многофакторную патобиологию данного состояния1,3,4. Таким образом, для формулирования проверяемых гипотез о новых терапевтических мишенях требуется более полное механистическое понимание того, как сигналы микробиоты кишечника передаются на слизистом уровне.
Микробиота кишечника способствует поддержанию гомеостаза в нижних отделах желудочно-кишечного тракта посредством продукции и биотрансформации химически разнообразных метаболитов, включая короткоцепочечные жирные кислоты (КЦЖК), вторичные желчные кислоты, соединения, производные триптофана, и метаболиты полифенолов, такие как уролитины5,6,7,8. Эти молекулы взаимодействуют с клетками хозяина через широкий и не полностью охарактеризованный набор молекулярных мишеней, который выходит далеко за рамки канонических мембранных рецепторов, распознающих метаболиты, и включает ядерные рецепторы, цитозольные ферменты, белки, модифицирующие гистоны, предшественники пептидных гормонов и внутриклеточные сигнальные белки9. Изменения в составе микробного сообщества кишечника и профилях метаболитов были зафиксированы у пациентов с синдромом раздраженного кишечника (СРК), что дает биологическое обоснование для исследования того, нарушена ли транскрипция генов хозяина, связанных с реакцией на микробные метаболиты, в слизистой оболочке прямой кишки при СРК с запорами (СРК-З)10.
Панель из девяти метаболитов была определена априори для создания компактного, химически разнообразного и биологически интерпретируемого набора малых молекул, производных от микробиоты кишечника или модифицированных ею. Отбор основывался на пяти критериях: представленность основных классов микробных метаболитов, участвующих в сигнализации между хозяином и микробиотой; доказанное или вероятное воздействие на слизистую оболочку дистального отдела кишечника; наличие однозначных идентификаторов PubChem и канонических структур; размер молекулы и структурная доступность для предсказания мишеней на основе лигандов и докинга; а также предварительная вероятность участия в эпителиальной, нейроиммунной, энтероэндокринной, ядерно-рецепторной сигнализации или процессах, связанных с моторикой при СРК с запорами (IBS-C). Выбранная панель включала бутират и пропионат в качестве короткоцепочечных жирных кислот (SCFA); хенодезоксихолевую кислоту, литохолевую кислоту и урсодезоксихолевую кислоту в качестве желчных кислот; триптамин, индол-3-пропионовую кислоту и индол-3-молочную кислоту в качестве метаболитов, производных триптофана; а также уролитин A в качестве полифенольного метаболита, производного микробиоты кишечника5,6,7,8,9,10.
Большинство предыдущих вычислительных и экспериментальных исследований были сосредоточены на изучении отдельных пар метаболит–рецептор или метаболит–фермент в изоляции; такой подход не позволяет охватить распределенный, конвергентный характер сигналинга микробных метаболитов в путях хозяина9,11. Интеграция нескольких аналитических этапов обеспечивает взаимно усиливающую фильтрующую способность, которую не может обеспечить ни один отдельный этап самостоятельно. Вычислительное предсказание мишеней с использованием курируемых баз данных позволяет получить широкий набор белков-кандидатов хозяина для каждого метаболита. Пересечение с релевантными заболеванию транскриптомными данными существенно фильтрует этот набор, оставляя только тех кандидатов, чьи транскрипты изменены в контексте заболевания. Затем анализ обогащения путей и сети белок-белковых взаимодействий позволяют соотнести сокращенный список кандидатов с известными биологическими модулями. Молекулярный докинг обеспечивает первоначальную вычислительную оценку комплементарности связывающего кармана для каждого кандидатного комплекса, а дополнительная симуляция молекулярной динамики (MD) продолжительностью 200 ns с разложением свободной энергии связывания по методу MM-PBSA добавляет временное разрешение и термодинамическое измерение к структурной приоритизации, что недоступно при использовании только показателей докинга. Выполнение каждого шага независимо, без систематической интеграции и последовательной фильтрации, привело бы к созданию списков кандидатов, слишком обширных для экспериментальной проверки, и не позволило бы выявить конвергентную архитектуру путей.
В рамках данного протокола под термином «ген, связанный с метаболитом» (metabolite-associated gene, MAG) понимается ген человека, белковый продукт которого был определен как предполагаемая молекулярная мишень одного или нескольких метаболитов, производных микробиоты кишечника, по крайней мере одной курируемой базой данных вычислительного прогнозирования, и транскрипт которого дифференциально экспрессируется в соответствующем заболеванию транскриптомном наборе данных, используемом для демонстрации рабочего процесса. Это операциональное определение намеренно включает мембранные и ядерные рецепторы, цитозольные ферменты, сигнальные белки, предшественники пептидных гормонов и другие внутриклеточные белки. Обозначение MAG не является экспериментальным доказательством того, что метаболит связывается, образует белок-лигандный комплекс, активирует рецептор, изменяет количество белка или вызывает заболевание; это полученная вычислительным путем гипотеза, требующая экспериментального подтверждения.
В данном протоколе подробно описан полный восьмиэтапный вычислительный рабочий процесс (Рисунок 1), содержащий достаточно операционных деталей для обеспечения независимого воспроизведения, адаптации к другим панелям метаболитов или наборам данных о заболеваниях, а также расширения на другие контексты взаимодействия между хозяином и микробиотой. Данный рабочий процесс четко определен как основа для генерации гипотез и структурной приоритизации, которая оперирует исключительно общедоступными омиксными и структурными ресурсами и не позволяет делать выводы об изменении концентрации метаболитов, состояниях активации рецепторов, изменениях экспрессии белков, активности нижележащих сигнальных путей или клинической значимости только на основании результатов вычислительного анализа. В данной работе мы демонстрируем протокол на конкретном примере, используя девять метаболитов, производных от микробиоты кишечника или модифицированных ею, и общедоступный транскриптомный набор данных слизистой оболочки прямой кишки при IBS-C GSE36701, с целью идентификации MAG и приоритизации комплексов метаболит–белок для последующего экспериментального подтверждения.
Протокол
При проведении анализа использовались только общедоступные деидентифицированные транскриптомные данные из GSE36701, а также общедоступные химические, белковые и структурные базы данных. Доступ к базам данных осуществлялся в период с января по май 2026 года. Любая более поздняя дата доступа была задокументирована в отдельной таблице материалов (Table of Materials).
1. Дизайн исследования, требования к оборудованию и программному обеспечению
- Определите рабочий процесс перед началом анализа. Используйте восемь этапов: выбор метаболитов, предсказание мишеней, анализ дифференциальной экспрессии, перекрытие мишеней и дифференциально экспрессируемых генов (DEG), анализ белок-белковых взаимодействий (PPI) / обогащение путей, молекулярный докинг, МД-моделирование и расчет MM-PBSA.
- Отметьте, что докинг, МД и MM-PBSA являются исключительно инструментами структурной приоритизации. Не интерпретируйте эти результаты как экспериментальные доказательства связывания, активации рецептора, изменения содержания белка, терапевтической эффективности или причинно-следственной связи с заболеванием.
- Проверьте компьютерное оборудование перед запуском МД-моделирования. Используйте 64-разрядную ОС Linux, 6-ядерный процессор или лучше, платформу с GPU-ускорением с объемом VRAM ≥8 GB или эквивалентную платформу с GPU-ускорением с объемом VRAM ≥8 GB, минимум 32 GB оперативной памяти и не менее 200 GB свободного места на диске для каждой МД-системы.
- Зафиксируйте основное программное обеспечение: движок молекулярной динамики, программу для молекулярного докинга метаболитов-лигандов к целевым белкам, средство конвертации химических форматов файлов12, программу генерации трехмерных структур лигандов, инструмент подготовки лигандов, инструментарий по подготовке входных данных для докинга, программу для молекулярного докинга метаболитов-лигандов к целевым белкам, среду программирования общего назначения, среду статистических вычислений с биоинформатическим программным каркасом и пакет для анализа дифференциальной экспрессии генов.
- Зафиксируйте инструменты структурного анализа: веб-инструмент для построения мембранных систем, сервис параметризации лигандов, совместимый с CHARMM, инструмент расчета энергии связывания методом молекулярной механики/континуальной модели растворителя, библиотеку конвертации молекулярной топологии и параметров, программу трехмерной молекулярной визуализации, а также инструмент молекулярной визуализации и построения двухмерных диаграмм взаимодействий 2021 (см. Таблицу материалов для получения ссылок на скачивание и информации о версиях).
- Запишите в Таблицу материалов/файл окружения точные идентификаторы версий использованного силового поля белков для МД-моделирования, CGenFF, CHARMM-GUI, программного каркаса R/биоинформатики и инструмента расчета энергии связывания методом молекулярной механики/континуальной модели растворителя. Отсутствующие идентификаторы помечайте как «невосстановимые» (not recoverable); не пытайтесь их угадать.
2. Выбор метаболитов и хемоинформатическая характеристика
- Определите панель метаболитов перед прогнозированием мишеней. Включите бутират (PubChem CID: 264), пропионат (CID: 1032), хенодезоксихолевую кислоту (CID: 10133), литохолевую кислоту (CID: 9903), урсодезоксихолевую кислоту (CID: 31401), триптамин (CID: 1150), индол-3-пропионовую кислоту (CID: 3744), индол-3-молочную кислоту (CID: 92904) и уролитин A (CID: 5488186).
- Получите канонические строки SMILES (Simplified Molecular Input Line Entry System) и идентификаторы PubChem CID для каждого метаболита. Проверьте синонимы и дубликаты структур перед прогнозированием мишеней. Сохраните итоговые идентификаторы в основном листе метаболитов.
- Введите канонические строки SMILES в веб-инструмент для предсказания физико-химических свойств и ADME13 (см. Таблицу материалов). Зафиксируйте молекулярную массу, топологическую полярную площадь поверхности (TPSA), консенсусный logP, количество доноров и акцепторов водородных связей, количество вращающихся связей, прогнозируемую абсорбцию в желудочно-кишечном тракте, прогноз по P-гликопротеину, а также соответствие правилам Липински, Вебера, Гозе, Игана, Мюгге и наличие PAINS-оповещений.
- Оставьте метаболиты, для которых структура была успешно распознана, молекулярная масса составляет ≤500 Da и отсутствуют PAINS-оповещения. Зафиксируйте любое несоответствие критериям и решение об удержании или исключении метаболита.
- Определите состояния ионизации перед последующим прогнозированием мишеней и докингом. Используйте депротонированные карбоксилаты для бутирата и пропионата, нейтральные формы карбоновых кислот для желчных кислот, протонированный аммоний для триптамина и нейтральные формы для остальных метаболитов.
3. Прогнозирование потенциальных мишеней человека
- Откройте инструмент для прогнозирования мишеней химического взаимодействия с белками14 (см. Таблицу материалов). Введите название каждого метаболита или PubChem CID, выберите Homo sapiens (ID таксономии: 9606) и установите минимальное комбинированное значение показателя взаимодействия ≥0.700.
- При прогнозировании мишеней химического взаимодействия с белками отдайте приоритет каналам данных из экспериментальных и курируемых баз данных. Загрузите полную таблицу ассоциаций с белками для каждого метаболита.
- Откройте программу для молекулярного докинга15 (см. Таблицу материалов). Введите каждую каноническую строку SMILES, выбрав Homo sapiens, и оставьте мишени с вероятностью ≥0.70.
- Объедините результаты прогнозирования мишеней химического взаимодействия с белками и программы молекулярного докинга в виде объединения множеств для каждого метаболита. Оставьте все мишени, соответствующие порогу любой из баз данных, и удалите повторяющиеся записи символов генов.
- Стандартизируйте записи белков в соответствии с утвержденными символами генов Комитета по номенклатуре генов человека (HGNC), используя сопоставление идентификаторов белков со стандартизированными символами HGNC или интегрированную базу данных информации о генах человека (см. Таблицу материалов). Приведите псевдонимы, устаревшие символы и аннотации изоформ к одному символу гена для каждого белка.
- Классифицируйте каждую мишень как мембранный рецептор, ядерный рецептор, фермент, внутриклеточный сигнальный белок, пептидный гормон, гормон-связывающий белок или другой внутриклеточный белок. Занесите класс в таблицу мишеней.
4. Транскриптомный набор данных и анализ дифференциальной экспрессии генов
- Получите доступ к набору данных GSE36701 с помощью веб-инструмента анализа дифференциальной экспрессии генов NCBI16,17 (см. Таблицу материалов). Отметьте, что набор данных включает данные экспрессии биоптатов слизистой оболочки прямой кишки из групп пациентов с СРК с преобладанием запоров (СРК-З), СРК с преобладанием диареи (СРК-Д), постинфекционным СРК и группы здоровых добровольцев18.
- Выполните поиск независимой валидационной когорты в базах GEO и ArrayExpress. Используйте комбинации терминов IBS-C, constipation-predominant irritable bowel syndrome, rectal mucosa, colonic mucosa, biopsy, transcriptome, microarray и RNA-seq. Зафиксируйте репозитории, поисковые запросы, дату поиска и информацию о том, был ли найден сопоставимый валидационный набор данных.
- Запустите веб-инструмент анализа дифференциальной экспрессии генов из записи GSE36701 (см. Таблицу материалов). Назначьте 18 образцов СРК-З группе СРК-З, 40 здоровых добровольцев — контрольной группе, а образцы СРК-Д и постинфекционного СРК оставьте нераспределенными.
- Проведите анализ дифференциальной экспрессии с использованием программного пакета для анализа дифференциальной экспрессии генов с коррекцией ложноположительных результатов (FDR) по методу Бенджамини-Хохберга19. Загрузите полную таблицу результатов, содержащую ID зонда, символ гена, название гена, logFC, AveExpr, модерированную t-статистику, исходное значение P-value и скорректированное значение P-value.
- Объедините данные зондов на уровне генов. Удалите зонды, не имеющие символов генов; при наличии дубликатов символов оставьте зонд с наименьшим значением FDR; в случае равенства значений FDR используйте большее абсолютное значение logFC.
5. Анализ перекрытия мишеней с дифференциально экспрессируемыми генами и статистическая оценка
- Пересеките каждый список предсказанных мишеней для конкретного метаболита со списком дифференциально экспрессируемых генов (DEG) на уровне генов при FDR < 0.05. Зафиксируйте пересекающиеся гены, исходный метаболит, logFC, скорректированное P-значение и направление экспрессии.
- Объедините списки пересечений по конкретным метаболитам в недублирующий список MAG. Подсчитайте общее количество предсказанных мишеней, пересечений по конкретным метаболитам и общее количество уникальных MAG.
- Оцените согласованность направления экспрессии на уровне зондов для генов с несколькими зондами. Отметьте любой ген, зонды которого указывают на разное направление экспрессии.
- Составьте таблицу сопряженности для точного теста Фишера, используя общее количество записей с коллапсом генов, общее число DEG, общее число уникальных предсказанных мишеней и наблюдаемые MAG. Рассчитайте одностороннее P-значение, отношение шансов и 95% доверительный интервал с помощью реализации точного теста Фишера.
- Если фоновая частота DEG превышает 50%, интерпретируйте пересечение как описательное, а не как независимо подтвержденное обогащение. Рассматривайте единообразное снижение экспрессии как описательный направленный паттерн, если не проводится отдельный тест на направленность.
6. Анализ сети белок-белковых взаимодействий и обогащение сигнальных путей
- Загрузите полный список уникальных MAG в программу для построения сети белок-белковых взаимодействий и анализа обогащения путей20 (см. Таблицу материалов). Выберите Homo sapiens и установите минимальный показатель взаимодействия (interaction score) на уровне 0.700.
- Экспортируйте объединенную сеть белок-белковых взаимодействий и анализа обогащения путей, а также полную таблицу взаимодействий. Если текстовый майнинг (text-mining) приводит к созданию искусственно плотной топологии, отключите этот метод и оставьте только экспериментальные данные, данные по коэкспрессии и базы данных.
- Сгенерируйте подсети по классам метаболитов для MAG, связанных с КЦЖК (SCFA), желчными кислотами и триптамином/серотонином. Используйте те же настройки организма и уровни достоверности, что и при построении сети белок-белковых взаимодействий и анализа обогащения путей.
- Проведите анализ обогащения путей по базам данных Kyoto Encyclopedia of Genes and Genomes (KEGG)21, Reactome22 и Gene Ontology (GO) Biological Process23,24. Примените поправку Бенджамини-Хохберга (BH FDR) <0.05 и экспортируйте все таблицы обогащения.
7. Молекулярный докинг
- Получите экспериментально определенные структуры рецепторов из Protein Data Bank RCSB PDB25 Исследовательского коллаборатора по структурной биоинформатике (см. Таблицу материалов). Для пяти приоритетных белок-лигандных комплексов используйте VDR/1DB1, NR1H4/FXR/3DCT, CASP3/2DKO и HTR2A/6A93.
- Подготовьте каждый рецептор, сохранив цепь A и удалив воду, кокристаллизованные лиганды, кофакторы, ионы и записи HETATM, не относящиеся к белку. Для 6A93 перед подготовкой рецептора удалите сегмент слияния с T4-лизоцимом.
- Добавьте полярные атомы водорода, присвойте заряды Гастейгера и сохраните каждый рецептор в формате PDBQT с помощью инструментария для анализа молекулярных структур. Перед конвертацией в PDBQT проверьте состояния протонирования гистидинов в сайте связывания и задокументируйте выбранные состояния.
- Сгенерируйте трехмерную структуру каждого лиганда в инструменте конвертации файлов химических структур. Проведите минимизацию энергии с использованием универсального силового поля (UFF) в течение 500 шагов, установите состояние ионизации для pH 7.4, присвойте заряды Гастейгера и сохраните в формате PDBQT.
- Определите область докинга (док-бокс) размером 25 Å x 25 Å x 25 Å с центром в центре масс кокристаллизованного лиганда. Используйте следующие координаты центра: (10, 19, 33) для VDR, (137, 31, 78) для FXR, (37, 34, 32) для CASP3 и (12, −1, 61) для HTR2A.
- Выполните молекулярный докинг лигандов-метаболитов к целевым белкам26,27 со следующими параметрами: exhaustiveness = 8, seed = 42, num_modes = 9 и energy_range = 3 kcal/mol. Зафиксируйте наилучший показатель Vina score и значения среднеквадратичного отклонения (RMSD) для всех поз.
- Выберите модус 1 для каждого приоритетного комплекса. Постройте двухмерные диаграммы взаимодействий лиганд-остатки с помощью инструментов молекулярной визуализации и построения 2D-диаграмм взаимодействий, а также создайте трехмерные виды рецептор-лиганд в программе трехмерной молекулярной визуализации.
- Проведите контрольный редокинг для VDR/1DB1 и FXR/3DCT. Считайте настройки докинга рецептора приемлемыми, если RMSD по тяжелым атомам составляет <2.0 Å относительно кристаллографической позы.
- Проведите контроль перекрестного докинга, выполнив докинг литохолевой кислоты (LCA) в CASP3 и триптамина в VDR. Сравните показатели для когнатных и некогнатных пар и зафиксируйте случаи, когда разница в показателях составляет <1.0 kcal/mol.
8. Моделирование молекулярной динамики
- Сгенерируйте параметры лиганда с помощью сервиса параметризации лигандов, совместимого с CHARMM28 (см. Таблицу материалов). Проверьте все показатели штрафов (penalty scores) и отметьте любой параметр со значением штрафа >50.
- Преобразуйте стрим-файлы лигандов в файлы .itp и .prm, совместимые с движком молекулярной динамики, с помощью скрипта конвертации топологии силового поля. Объедините файлы топологии лиганда и белка для каждого комплекса.
- Выполните перераспределение масс водорода с помощью библиотеки конвертации молекулярной топологии и параметров. Создайте водные топологии с использованием силового поля белка, применявшегося для моделирования молекулярной динамики29, и явной трехточечной модели воды30.
- Проведите сольватацию водных комплексов в додекаэдрическом боксе с минимальным расстоянием от растворенного вещества до края бокса 1.2 nm. Нейтрализуйте системы и добавьте NaCl до концентрации 0.15 M.
- Соберите мембранную систему триптамин-HTR2A с помощью веб-инструмента для конструирования мембранных систем31,32,33 (см. Таблицу материалов). Используйте координаты рецептора, выровненные по базе данных ориентации мембранных белков34 (см. Таблицу материалов), чистый бислой POPC, слои воды толщиной 22.5 Å и NaCl 0.15 M.
- Проведите минимизацию энергии всех систем методом наискорейшего спуска до 50,000 шагов. Перед уравновешиванием подтвердите сходимость при Fmax <1000 kJmol-1nm-1.
- Проведите уравновешивание водных систем в фазах с постоянным числом частиц, объемом и температурой (NVT), а также с постоянным числом частиц, давлением и температурой (NPT). Уравновешивание мембранной системы выполните с использованием шестиэтапного веб-процесса многостадийной подготовки и уравновешивания молекулярных систем с постепенным снятием ограничений.
- Выполните продуктивное моделирование MD продолжительностью 200 ns для всех пяти комплексов. Используйте шаг интегрирования 4 fs с перераспределением масс водорода (HMR), термостат V-rescale при 310 K, баростат Парринелло-Рамана при 1 bar, электростатику по методу Particle mesh Ewald (PME)35 и ограничения LINCS36.
- Проанализируйте финальные траектории с помощью утилит анализа траекторий молекулярной динамики. Рассчитайте RMSD остова, среднеквадратичные флуктуации (RMSF) атомов Cα, радиус гирации, площадь поверхности, доступную для растворителя (SASA), и водородные связи белок-лиганд, используя последние 150 ns в качестве основного окна анализа.
9. Оценка свободной энергии связывания методом MM-PBSA
- Извлеките снимки траектории для анализа MM-PBSA. Используйте 2001 кадр для каждого комплекса в водной среде и 201 обработанный кадр для подсистемы HTR2A, встроенной в мембрану.
- Запустите инструмент расчета энергии связывания методом молекулярной механики/континуального растворителя37 с сольватацией по Пуассону-Больцману, внутренней диэлектрической проницаемостью = 1, внешней диэлектрической проницаемостью = 80, неполярной сольватацией на основе SASA и без поправки на энтропию. Укажите среднюю свободную энергию связывания и стандартное отклонение.
- Выполните декомпозицию по остаткам для всех пяти комплексов. Укажите стабилизирующие и дестабилизирующие остатки с абсолютным вкладом ≥0.5 kcalmol−1.
Результаты
Потенциальные мишени, связанные с метаболитами
Девять метаболитов сформировали неоднородные наборы прогнозируемых мишеней при использовании программы прогнозирования взаимодействий «химическое вещество — белок» и программы молекулярного докинга. Пропионат, триптамин, желчные кислоты и уролитин A дали несколько мишеней, имеющих известное значение для желудочно-кишечной сигнализации. Прогнозируемый ландшафт мишеней включал канонические мембранные рецепторы, ядерные рецепторы, внутриклеточные ферменты, сигнальные белки и белки, связанные с пептидными гормонами. Таким образом, последующие результаты описываются как метаболит-ассоциированные гены (MAG), а не только как находки, связанные с рецепторами (Таблица 1).
Сравнение с опубликованными данными о взаимодействиях метаболитов с белками
Для сопоставления результатов прогнозирования мишеней с существующими экспериментальными данными предсказанные взаимосвязи между метаболитами и их мишенями были разделены на три уровня доказательности: (i) экспериментально подтвержденные прямые или близкие взаимодействия метаболита с белком на уровне класса, при которых было сообщено, что данный метаболит или близкородственный эндогенный метаболит связывается, активирует, ингибирует или функционально регулирует соответствующий белок; (ii) взаимодействия, подтвержденные на уровне метаболического пути или класса мишеней, когда предсказанная мишень принадлежит к установленному метаболит-зависимому пути или семейству рецепторов, но прямые доказательства для конкретной пары метаболит-белок ограничены; и (iii) исключительно вычислительные ассоциации, для которых в изученной литературе не было выявлено прямых экспериментальных взаимодействий. Данное сопоставление использовалось для контекстуализации, а не для валидации, предсказанных групп ассоциаций метаболитов с мишенями (MAGs).
Несколько предсказаний воспроизводили ранее описанные биологические данные. Взаимодействие пропионат-FFAR2 было расценено как экспериментально подтвержденное, поскольку FFAR2/GPR43 является каноническим рецептором короткоцепочечных жирных кислот. Взаимодействие бутират-HDAC3 было классифицировано как подтвержденное экспериментально или на уровне класса, так как бутират является признанным ингибитором гистондеацетилазы, а предсказанное перекрытие затрагивало представителя семейства HDAC. Предсказания, связанные с желчными кислотами и затрагивающие NR1H4/FXR и VDR, были признаны подтвержденными установленными данными о биологии ядерных рецепторов желчных кислот, особенно для гидрофобных желчных кислот, таких как LCA; предсказания для FXR, связанные с урсодезоксихолевой кислотой (UDCA), интерпретировались с осторожностью, поскольку UDCA обычно является более слабым или контекстно-зависимым лигандом FXR. Предсказания для HTR1B, HTR2A, HTR2B и HTR6, связанные с триптамином, были классифицированы как подтвержденные серотонинергическим путем, а не как подтвержденные прямые рецептор-специфические взаимодействия, поскольку триптамин является микробным моноамином, производным триптофана, а серотониновые рецепторы являются установленными регуляторами моторики и секреции желудочно-кишечного тракта. Взаимодействие уролитин А-CASP3 считалось подтвержденным на уровне метаболического пути на основании опубликованных связей между уролитином А и апоптотическими/каспаза-зависимыми ответами, но не на основании прямых доказательств связывания с CASP3. Взаимодействия индол-3-молочная кислота-KYAT1 и индол-3-пропионовая кислота-KYAT1 были сохранены как чисто вычислительные гипотезы, поскольку в литературе в целом описана передача сигналов хозяину с помощью микробных производных индола, но нет данных о прямом связывании этих конкретных метаболитов с KYAT17,8,38,39,40.
Соответственно, в Таблице 1 приведено разграничение между вычислительным определением мишеней и уровнем предварительных экспериментальных данных или данных по сигнальным путям. Также для каждой мишени указан источник предсказания (предсказание мишени на основе химического взаимодействия с белком, программа молекулярного докинга или и то, и другое), комбинированный показатель взаимодействия для предсказания мишени на основе химического взаимодействия с белком, а также вероятность в программе молекулярного докинга в случаях, когда мишень была определена с помощью этой программы. Предсказанные мишени без прямых предварительных экспериментальных доказательств описываются как гены-кандидаты, ассоциированные с метаболитами, которые требуют независимой валидации на уровне белков и ответов на лиганды.
Пересечение между предсказанными мишенями и дифференциально экспрессируемыми генами при IBS-C
Пересечение объединенных списков прогнозируемых мишеней и результатов дифференциальной экспрессии на уровне генов позволило выявить 17 уникальных прогнозируемых генов, связанных с метаболитами, которые были значимо дифференциально экспрессированы при сравнении группы с IBS-C и группы здоровых добровольцев. Все 17 генов имели пониженную экспрессию. Данный набор включал мембранные и ядерные рецепторы (CASR, FFAR2, GPR68, HTR1B, HTR2A, HTR2B, HTR6, NR1H4, TBXA2R, VDR) и нерецепторные белки (CASP3, GCG, GNAQ, GPHN, HDAC3, KYAT1, MLN) (Таблица 1, Рисунок 2A,B).
Все 17 MAG имели порог частоты ложноположительных результатов (FDR) ниже 0,05; 16 из 17 соответствовали более строгому критерию FDR < 0,01, при этом для оставшегося гена (HTR1B) значение было значимым при FDR < 0,05. Семь из 17 мишеней (CASP3, GCG, GNAQ, GPHN, GPR68, HDAC3, TBXA2R) удовлетворяли обоим условиям: FDR < 0,01 и абсолютный логарифмический коэффициент изменения log2 более 1,0 (диапазон logFC от −1,34 до −1,10), что указывает на выраженную и стабильную пониженную регуляцию для данной подгруппы. Остальные мишени демонстрировали умеренную, но статистически значимую пониженную регуляцию (|logFC| в диапазоне от 0,45 до 0,97). Данная единообразная описательная закономерность интерпретировалась с осторожностью с учетом характеристик экспрессии по всему геному в данном наборе данных (см. статистическую оценку ниже).
Статистическая оценка перекрытия целевых DEG
Для формальной оценки статистической значимости пересечения 17 генов был применен односторонний точный тест Фишера, где в качестве запрашиваемого набора использовались 17 прогнозируемых генов-мишеней, а в качестве геномного фона — все 18 296 уникальных записей с объединенными генами, обнаруженных в GSE36701. Из этого фона 17 296 генов (94,5%) имели дифференциальную экспрессию при FDR < 0.05, что отражает почти повсеместное транскрипционное подавление при сравнении слизистой оболочки прямой кишки при IBS-C. Все 17 прогнозируемых генов-мишеней оказались среди дифференциально экспрессируемых генов (наблюдаемое пересечение 17/17, 10%). При уровне дифференциальной экспрессии фона 94,5% ожидаемое пересечение для любого случайно выбранного набора из 17 генов составляет 16,1 гена. Точный тест Фишера дал значение p = 0.384 с поправкой на непрерывность отношения шансов 2.03 (95% доверительный интервал 0.12–33.73), что не было статистически значимым при α = 0.05 (Рисунок 3A–C).
Этот результат указывает на то, что наблюдаемое перекрытие 17/17 не превышает перекрытия, ожидаемого случайно при профиле экспрессии по всему геному для данного набора данных. Соответственно, эти результаты интерпретируются как описательная направленная закономерность, при которой все 17 предсказанных мишеней последовательно и значимо подавлялись в ткани слизистой оболочки прямой кишки при СРК с запорами, а не как доказательство статистического обогащения или независимой валидации на фоне генома. Формальное тестирование на обогащение потребовало бы репликации в транскриптомных наборах данных с более селективными профилями дифференциальной экспрессии, в которых значимость достигают существенно менее половины всех генов. Следует подчеркнуть, что однонаправленное подавление всех 17 перекрывающихся генов является описательным наблюдением, а не отдельно подтвержденным статистическим результатом, поскольку фон дифференциально экспрессируемых генов в данном наборе данных сам по себе преимущественно подавлен; общее направление снижения экспрессии среди перекрывающихся генов было ожидаемым и не подвергалось формальному тесту на направленность. Таким образом, эта единообразная направленность не должна интерпретироваться как независимое статистическое доказательство скоординированной, метаболит-специфической регуляции.
Специфические паттерны метаболитов
Пропионат имел наибольшее количество перекрывающихся генов, включая CASR, FFAR2, GCG, GNAQ, GPHN, GPR68, MLN и TBXA2R, что указывает на возможную вовлеченность сигналинга, чувствительного к короткоцепочечным жирным кислотам и связанного с Gq. Бутират перекрывался с HDAC3, что согласуется с биологией гистон-деацетилаз, связанной с бутиратом, хотя одно лишь снижение экспрессии мРНК не доказывает изменение чувствительности к бутирату. Перекрытия, связанные с желчными кислотами, включали ядерные рецепторы VDR и NR1H4, оба из которых являются признанными эффекторами сигналинга желчных кислот в кишечнике38,39. Триптамин перекрывался с HTR1B, HTR2A, HTR2B и HTR6, что указывает на серотонинергический сигналинг как на возможный кандидатный модуль — систему с хорошо изученной ролью в моторике и секреции желудочно-кишечного тракта40. Индол-3-молочная кислота и индол-3-пропионовая кислота перекрывались с KYAT1, а уролитин A перекрывался с CASP3.
Обогащение путей
Функциональный анализ обогащения 17 перекрывающихся генов выявил пути, связанные с нижележащим сигналингом G-белоксопряженных рецепторов (GPCR), сигналингом Gαq, связыванием лигандов GPCR, серотонинергическим синапсом, взаимодействием нейроактивных лигандов и рецепторов, передачей сигнала кальция, сигналингом цАМФ и секрецией пептидных гормонов. Эти результаты согласуются с составом набора генов и подтверждают его биологическую когерентность, однако они отражают функциональную аннотацию представленных генов, а не являются независимым доказательством активности на уровне путей.
Структура сети белок-белковых взаимодействий
Построение сети белок-белковых взаимодействий и анализ обогащения путей были интерпретированы на основе трех взаимодополняющих сетей. В комбинированной мета-сети из 17 генов (Сеть 1) наиболее выраженной структурой, подтвержденной аннотациями, был компонент сигналинга GPCR/Gαq с центром в GNAQ, связывающий GNAQ с рецептор-ассоциированными генами, включая TBXA2R, CASR, HTR2A и HTR2B. Также сохранилась ограниченная связность серотониновых рецепторов, наиболее заметная между HTR2A и HTR2B, в то время как несколько других генов остались изолированными или слабо связанными при выбранном пороге достоверности. Пропионат-специфическая сеть (Сеть 2) продемонстрировала более ограниченную топологию, при которой GNAQ сохранил подтвержденные аннотациями связи с CASR и TBXA2R, тогда как FFAR2, GPR68, GCG, GPHN и MLN оказались изолированными или слабо связанными. Сеть триптамина/серотонина (Сеть 3) включала HTR1B, HTR2A, HTR2B и HTR6; в этом подмножестве HTR2A и HTR2B показали основную связь, подтвержденную аннотациями, в то время как HTR1B и HTR6 не были напрямую связаны при выбранном пороге (Рисунок 4A–C).
Молекулярный докинг
Молекулярный докинг был проведен для пяти выбранных комплексов метаболит-белок. Пары желчные кислоты-ядерный рецептор продемонстрировали более благоприятные значения Vina, чем уролитин A-CASP3 и триптамин-HTR2A. LCA-VDR показал лучший результат, составивший −10.0 kcal/mol, за которым следовали LCA-NR1H4/FXR (−9.9 kcal/mol) и UDCA-NR1H4/FXR (−9.4 kcal/mol). Уролитин A-CASP3 и триптамин-HTR2A имели более низкие, но все же приемлемые значения −7.1 kcal/mol (Таблица 2).
Для комплекса LCA-VDR (PDB ID: 1DB1) предсказанная поза была подтверждена классической водородной связью между кислородом карбоксилата LCA и Ser278 (4,29 Å), а также обширными гидрофобными контактами с Leu230, Val234, Trp286, Val300, His305, Tyr295, Leu23 и His397, и дополнительными ван-дер-ваальсовыми контактами с Met272, Leu313, Ile271, Ile268, Leu309, Phe42, Val418, Ala231, Ala303, Cys288, Ser275 и Phe150. Поза с наивысшим рейтингом имела показатель Vina −10,0 kcal/mol, размер полости 205 Å3 и центр сетки (10, 19, 3) (Таблица 3, Рисунок 5A,B).
Для комплекса LCA-NR1H4/FXR (PDB ID: 3DCT) значение скоринга докинга −9.9 kcal/mol сопровождалось предсказанными водородными связями с участием His294 и Ile35, π-Sigma взаимодействием с His294, а также гидрофобными Alkyl или π-Alkyl контактами с Met290, Met328, Ala291, Leu287, Ile352 и His47; дополнительные ван-дер-ваальсовы контакты способствовали размещению стероидного остова в кармане FXR (Таблица 4, Рисунок 6A,B).
Предполагаемая поза комплекса UDCA-NR1H4/FXR (PDB ID: 3DCT) продемонстрировала наличие традиционной водородной связи с His47 (3,66 Å), другой водородной связи с Gly32 (3,46 Å), π-анионного взаимодействия с Val325 (4,96 Å) и углерод-водородной связи с Trp469 (4,51 Å). Карта взаимодействий также выявила неблагоприятные донорно-донорные контакты с Arg395 (3,89 Å) и Gln396 (3,40 Å), что позволяет предположить, что более низкий показатель Vina для UDCA по сравнению с LCA в том же кармане рецептора может быть обусловлен менее благоприятной локальной геометрией или электростатикой (Таблица 5, Рисунок 7A,B).
В комплексе уролитин А-CASP3 (PDB ID: 2DKO) прогнозируемый способ связывания характеризовался наличием обычных водородных связей с Gln161 (3.78 и 4.19 Å), Ser120 (3.95 Å) и Arg207 (3.05 и 3.7 Å); комплекс дополнительно стабилизировался за счет π-катионных взаимодействий с Arg207, π-донорной водородной связи с Cys163, а также дополнительных π-алкильных контактов и ван-дер-ваальсовых взаимодействий с участием Arg64, Ala162, His121, Ser205 и Trp206 (Таблица 6, Рисунок 8A,B).
Для комплекса триптамин-HTR2A (PDB ID: 6A93) предсказанная поза была стабилизирована электростатическим солевым мостиком между протонированным амином триптамина и Asp15 — консервативным остатком аспартата в трансмембранной спирали 3 (D3.32 по нумерации Ballesteros-Weinstein), который закрепляет протонированный амин аминергических лигандов в серотониновых и родственных им рецепторах41,42,43, а также водородными связями с Thr160 и Ser159, ароматическими контактами с Phe340 и Trp36 и π-алкильными взаимодействиями с Val156 и Ile163. Дополнительные ван-дер-ваальсовы контакты с Tyr370, Phe39, Ser242, Phe243, Phe32 и Leu123 подтверждали паттерн связывания в ортостерическом кармане (Таблица 7, Рисунок 9A,B).
Валидация протокола докинга
Для оценки надежности протокола докинга были проведены два взаимодополняющих контрольных эксперимента. В качестве контролей передокинга (положительных контролей) кокристаллизованные лиганды были извлечены из их эталонных рентгеновских структур и повторно задоканы в свои нативные сайты связывания. Предсказанная поза с наивысшим рангом для аналога витамина D VDX в VDR/1DB1 отклонялась на 0.87 Å от кристаллографической позиции, а кокристаллизованный лиганд WAY-362450 в FXR/3DCT отклонялся на 1.79 Å; оба значения оказались ниже общепринятого порога приемлемости 2.0 Å, что подтверждает геометрическую достоверность протокола докинга для этих рецепторных систем (Рисунок 10A,B). Для перекрестного докинга (отрицательных контролей) литохолевая кислота была задокана в каспазу-3 (2DKO), цистеиновую протеазу, для которой она не является известным лигандом, что дало предсказанный скор (−8.3 kcal/mol), на 1.7 kcal/mol более слабый, чем для ее когнатной мишени VDR (−10.0 kcal/mol), что согласуется с предсказанной селективностью сайта связывания. Докинг триптамина в VDR дал предсказанный скор −6.4 kcal/mol по сравнению с −7.1 kcal/mol для его когнатной мишени HTR2A; разница в 0.7 kcal/mol находится в пределах зарегистрированной неопределенности скоров молекулярного докинга метаболитов-лигандов к белкам-мишеням и, следовательно, указывает лишь на умеренную предсказанную селективность для этого более мелкого лиганда (Рисунок 10C). В совокупности эти контроли показывают, что протокол докинга воспроизводит известные геометрии связывания и разграничивает когнатные и некогнатные пары в протестированных условиях, оставаясь при этом вычислительным прогнозом, который не заменяет экспериментальные измерения аффинности (Таблица 8).
Молекулярно-динамическое моделирование
Моделирование молекулярной динамики было проведено для пяти приоритетных комплексов с использованием продуктивных траекторий продолжительностью 20 ns. Четыре комплекса с растворимыми и ядерными рецепторами моделировались в явном водном растворителе, в то время как комплекс триптамин-HTR2A моделировался в явном липидном бислое POPC для обеспечения физиологически соответствующего мембранного окружения для этого рецептора, сопряженного с G-белком. Анализ позволил проверить динамическую стабильность пристыкованных поз в условиях зависимости от времени и сравнить относительное структурное поведение различных комплексов (Таблица 9).
Профиль RMSD комплекса LCA-VDR/1DB1 продемонстрировал короткий период уравновешивания в течение первых 10 ns, за которым следовало стабильное плато с колебаниями преимущественно в диапазоне 0,20–0,28 nm (Рисунок 1A). Значения RMSF были низкими, а колебания основной цепи составляли < 0,15 nm для большинства остатков (Рисунок 11B). Анализ водородных связей выявил устойчивую сеть из 2–5 водородных связей с периодическим увеличением их количества до 7 (Рисунок 1C). Радиус гирации (Rg) оставался в пределах 1,25–1,75 nm, а площадь доступной растворителю поверхности (SASA) поддерживалась на уровне около 130 nm2 (Рисунок 1D,E).
Комплекс urolithin A-CASP3/2DKO продемонстрировал более высокую динамическую активность. Значение RMSD изначально увеличивалось, а затем колебалось в пределах от 0.4 до 0.7 nm, с кратковременным событием высокого отклонения около 165 ns (Рисунок 12A). Анализ RMSF показал высокую мобильность на уровне остатков, при этом наибольшие колебания наблюдались в области гибкой петли около остатка 175 (Рисунок 12B). Анализ водородных связей выявил первоначальную разветвленную сеть из примерно 2–5 связей в течение первых 30–40 ns, за которой следовало образование преимущественно 0–2 прерывистых связей (Рисунок 12C). Соответствующие профили радиуса гирации и SASA представлены на Рисунке 12D,E.
Для систем с желчными кислотами NR1H4/FXR (3DCT) профиль RMSD остова оставался в относительно узком диапазоне на протяжении большей части траектории (Рисунок 13A), в то время как профиль RMSF показал более низкую подвижность в основных областях и более сильные флуктуации в гибких областях (Рисунок 13B). Комплекс LCA-3DCT сохранял примерно от трех до четырех устойчивых водородных связей на протяжении всей траектории, тогда как комплекс UDCA-3DCT демонстрировал большие флуктуации водородных связей и снижение их количества примерно после 125 ns. Профили радиуса гирации для систем с введенными LCA и UDCA показаны на Рисунке 13C,D соответственно, а соответствующие профили SASA представлены на Рисунке 13E,F.
Молекулярная динамика мембран комплекса триптамин-HTR2A
Моделирование комплекса триптамин-HTR2A/6A93 проводилось в течение 20 ns в явном липидном бислое POPC, состоящем из 258 молекул липидов, с использованием явной трехточечной модели воды и 0,15 M NaCl, при общем размере системы примерно 10 925 атомов3,4,45. Рецептор оставался стабильно встроенным в бислой на протяжении всей траектории (Рисунок 14). RMSD основной цепи вырос примерно с 0,10 nm до стабильного плато около 0,15–0,20 nm в течение первых 10 ns и оставался стабильным в дальнейшем, при этом все значения были ниже 0,25 nm, что указывает на сохранение рецептором стабильной конформации в мембранном окружении без глобального разворачивания (Рисунок 15A). RMSF по каждому остатку продемонстрировал низкие значения флуктуаций в трансмембранном спиральном ядре с ожидаемой более высокой подвижностью в петлевых и терминальных областях, что соответствует типичной гибкости GPCR (Рисунок 15B). Радиус гирации был строго ограничен диапазоном примерно от 2,06 до 2,12 nm, а SASA колебался в узком пределе без прогрессирующего дрейфа, что подтверждает сохранение компактного трансмембранного пучка (Рисунок 15C,D).
Водородные связи между белком и лигандом сохранялись на протяжении всей траектории (Рисунок 15E), при этом наблюдались значительные колебания количества водородных связей в диапазоне от 1 до 3. Для конкретной оценки устойчивости ключевого ионного взаимодействия на протяжении всей траектории контролировалось минимальное расстояние между протонированным азотом аммония триптамина и атомами кислорода карбоксилата Asp15 (D3.32). Это расстояние имело узкое распределение вокруг среднего значения 0.270 nm (минимум 0.247 nm, максимум 0.424 nm), и контакт солевого мостика (< 0.4 nm) сохранялся в течение 9.9% симуляции с лишь двумя кратковременными отклонениями, без случаев устойчивой диссоциации (Рисунок 16). Эти результаты позволяют предположить, что консервативное ионное взаимодействие с Asp155 было достаточным для стабилизации триптамина в ортостерическом кармане HTR2A на протяжении всего моделирования в мембране.
Свободная энергия связывания по методу MM-PBSA и декомпозиция по остаткам
Анализ MM-PBSA был проведен для добавления дополнительного уровня энергетической приоритизации для пяти комплексов (Таблица 10). Для четырех водных комплексов декомпозиция по остаткам позволила определить основные энергетические вклады для каждого предсказанного режима связывания. В комплексе LCA-VDR/1DB1 лиганд и Gln317 внесли благоприятный вклад, в то время как Trp286 внес неблагоприятный вклад. В комплексе уролитин A-CASP3/2DKO Arg64 и Arg207 продемонстрировали сильно отрицательные вклады по остаткам, что указывает на существенную полярную или электростатическую стабилизацию; тем не менее, соответствующая траектория оставалась высокодинамичной, что доказывает, что одних только благоприятных энергетических взаимодействий на уровне остатков недостаточно для обеспечения устойчивой стабильности комплекса. Для систем 3DCT связывание LCA в основном определялось Arg31, тогда как связывание UDCA включало более распределенную энергетическую сеть, состоящую из Glu326, Asp394, Arg395, Arg441 и Asp470. Для четырех водных систем декомпозиция MM-PBSA подтвердила относительную приоритизацию комплексов на основе LCA.
Для встроенного в мембрану комплекса триптамин-HTR2A/6A93 анализ MM-PBSA был проведен для подсистемы белок-лиганд, извлеченной из траектории бислоя46,47. Благоприятный вклад наблюдался для лиганда и Asp15 (D3.32), который оказался основным стабилизирующим остатком, что согласуется с взаимодействием через солевой мостик, выявленным как при докинге, так и при анализе расстояний в траектории. Trp137 продемонстрировал наибольший неблагоприятный вклад на уровне отдельного остатка среди окружающих остатков ортостерического кармана (Ser86, Phe87, Phe133, Phe140, Phe141, Val156, Ser159, Thr160, Ile163, Val167, Tyr171), которые совместно формируют сеть ароматических и полярных контактов, выстилающих карман связывания. Эти значения представляют собой относительные расчетные оценки для структурной приоритизации и не являются экспериментальными значениями аффинности связывания.
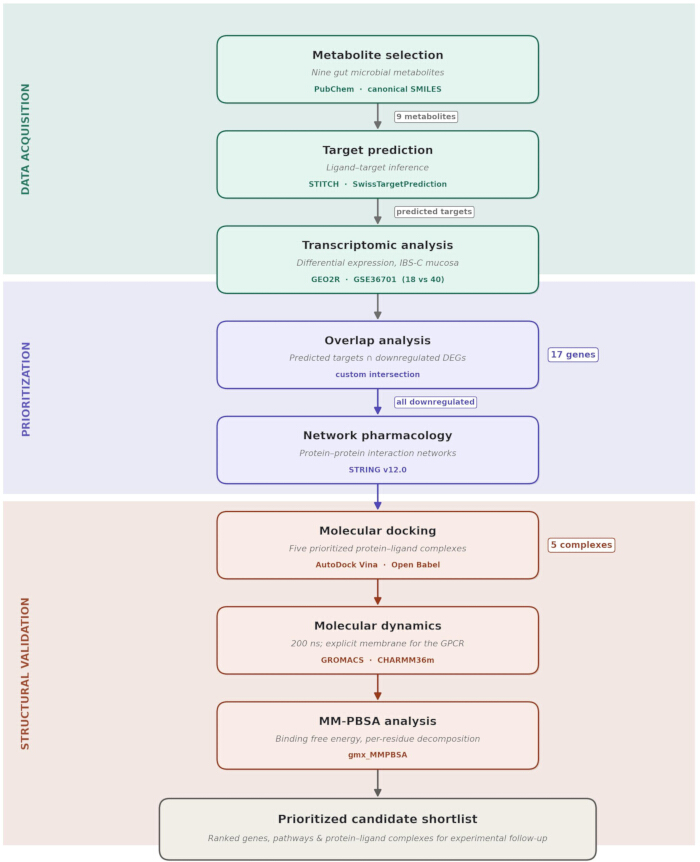
Рисунок 1Вычислительный рабочий процесс для приоритезации генов хозяина, ассоциированных с метаболитами, при СРК с преобладанием запоров. Схематическое представление восьмиэтапного рабочего процесса, объединяющего отбор метаболитов, предсказание мишеней, транскриптомный анализ дифференциальной экспрессии, анализ перекрытия, обогащение сетей и путей, молекулярный докинг, моделирование молекулярной динамики и анализ свободной энергии связывания методом MM-PBSA. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
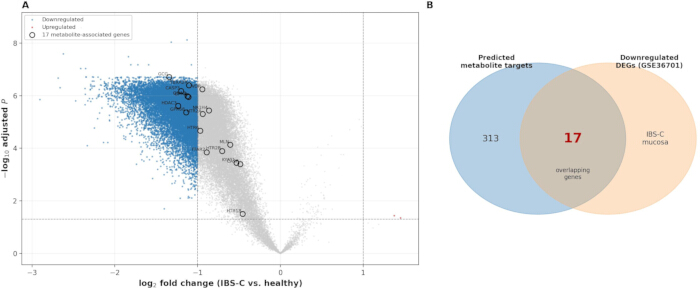
Рисунок 2Анализ дифференциальной экспрессии и перекрытия метаболитов-мишеней в слизистой оболочке при СРК с преобладанием запоров. (AГрафик «вулкан» (Volcano plot) дифференциальной экспрессии генов на уровне отдельных генов в GSE36701. Синие точки — значимо подавленные гены; красные точки — значимо активированные гены; серые точки — статистически не значимые гены. Отмечены выбранные перекрывающиеся гены, связанные с метаболитами.B) Диаграмма Венна, показывающая пересечение между 30 уникальными предсказанными мишенями-метаболитами и гены с пониженной экспрессией в GSE36701; общими оказались 17 генов. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
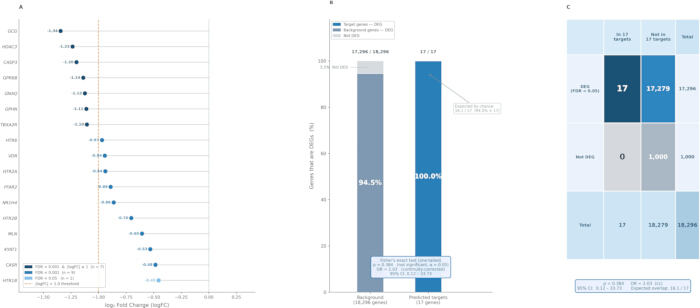
Рисунок 3Статистическая оценка 17 прогнозируемых генов-мишеней метаболитов по данным GSE36701. (A) Логарифм с основанием 2 кратности изменения (log2 fold change) для каждого из 17 генов, где цвет соответствует уровню значимости. (B) Сравнение уровней дифференциальной экспрессии фоновых генов и прогнозируемых мишеней с помощью точного теста Фишера. (CДля проведения точного критерия Фишера используется таблица сопряженности «два на два». Все 17 мишеней были достоверно подавлены; перекрытие интерпретируется как описательный направленный паттерн, а не как статистическое обогащение. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
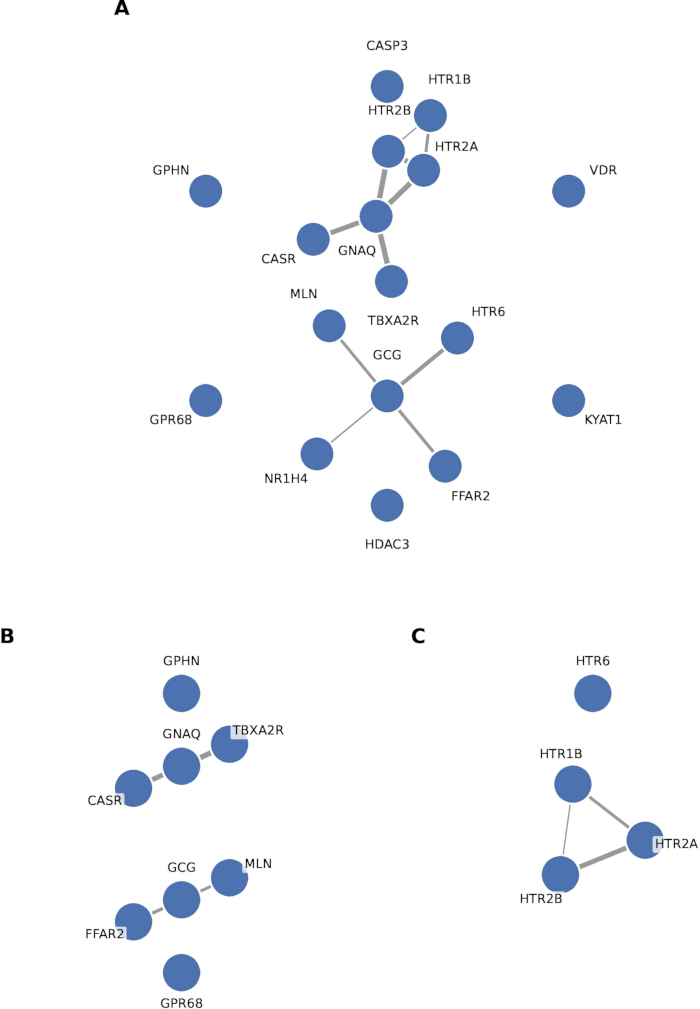
Рисунок 4Построение композитной сети белок-белковых взаимодействий и анализ обогащения путей в сетях белок-белковых взаимодействий перекрывающихся генов, связанных с метаболитами. (A) Сеть 1: комбинированная метасеть всех 17 генов. (BСеть 2: специфическая для пропионата сеть из восьми генов (CASR, FFAR2, GCG, GNAQ, GPHN, GPR68, MLN, TBXA2R).C) Сеть 3: триптамин/серотониновая сеть из четырех генов (HTR1B, HTR2A, HTR2B, HTR6). Сети были построены как минимум для Homo sapiens с использованием конструирования сети белок-белковых взаимодействий и уровнем достоверности обогащения путей ≥ 0,70. Ребра представляют функциональную связь, подтвержденную аннотацией. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
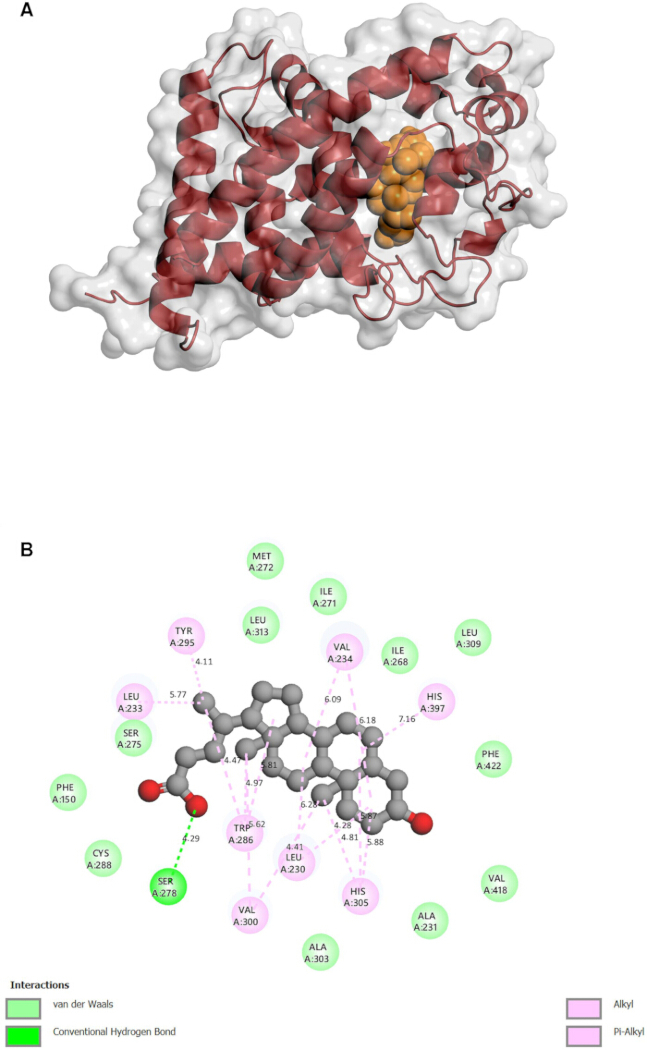
Рисунок 5Трехмерное и двухмерное структурное представление литохолевой кислоты в комплексе с VDR (PDB ID: 1DB1). (A) Трехмерное представление поверхности и мультяшная модель (cartoon representation), где литохолевая кислота показана в виде сфер. (B) Двумерная карта взаимодействий, демонстрирующая водородную связь Ser278 и окружающие гидрофобные контакты и контакты Ван-дер-Ваальса. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
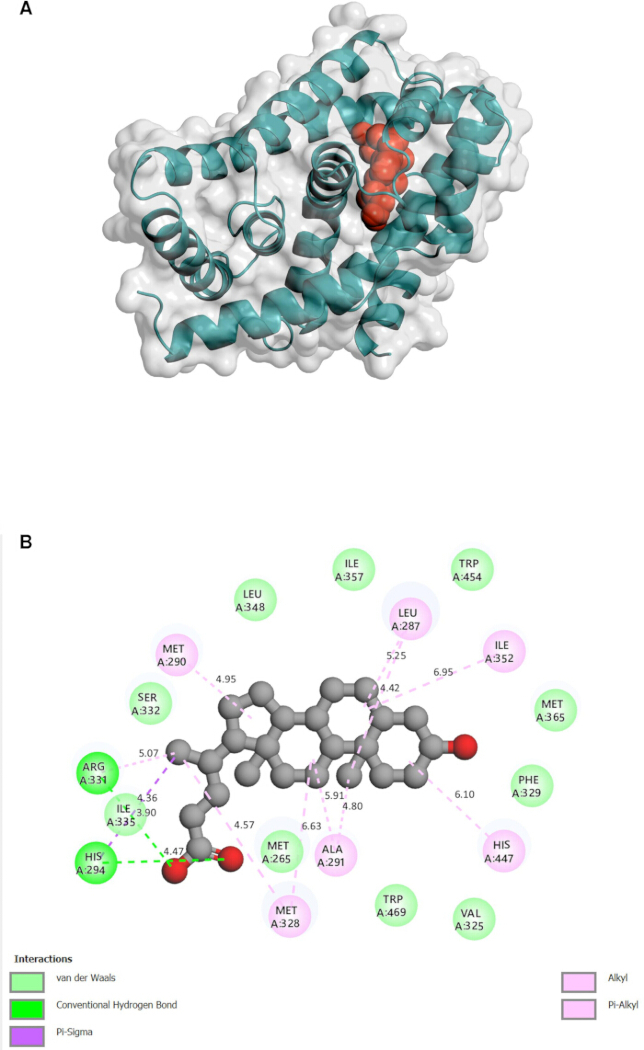
Рисунок 6Трехмерное и двухмерное структурное представление литохолевой кислоты в комплексе с NR1H4/FXR (PDB ID: 3DCT). (A) Трехмерное представление поверхности и схематическое изображение (cartoon). (BДвумерная карта взаимодействий, демонстрирующая водородные связи с His294 и Ile35, $\pi$-$\sigma$-взаимодействие и окружающие контакты. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
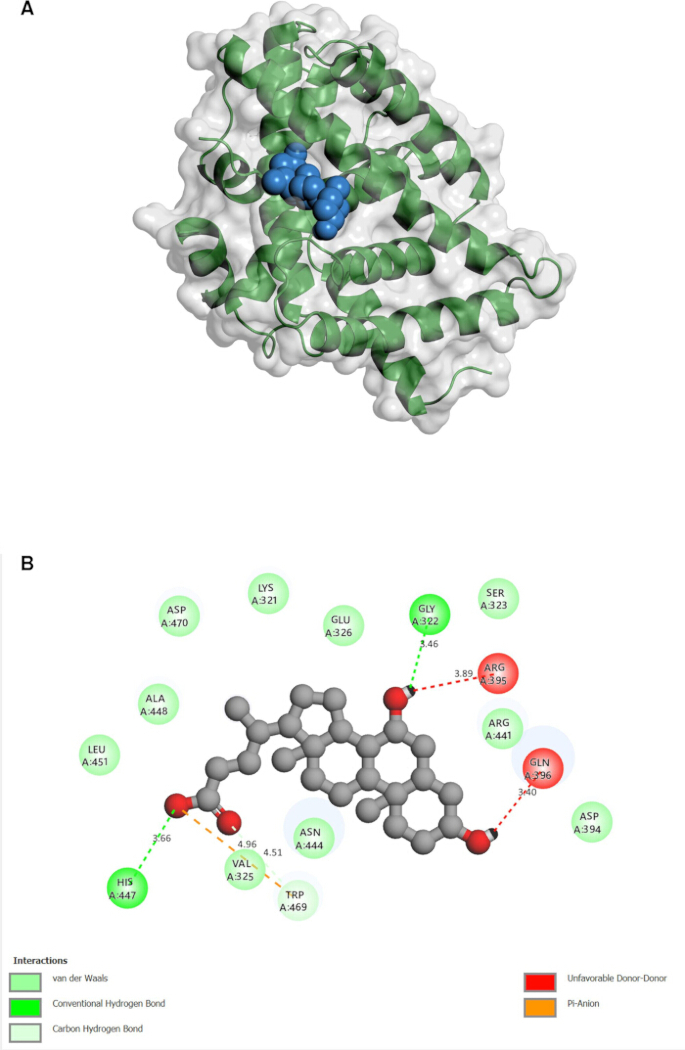
Рисунок 7Трехмерное и двухмерное структурное представление урсодезоксихолевой кислоты в комплексе с NR1H4/FXR (PDB ID: 3DCT). (A) Трехмерное представление поверхности и структуры в виде лент. (BДвумерная карта взаимодействий, демонстрирующая водородные связи с His47 и Gly322, $\pi$-анионное взаимодействие с Val325, углерод-водородную связь с Trp469, а также неблагоприятные донорно-донорные контакты с Arg395 и Gln396. Пожалуйста, нажмите здесь, чтобы просмотреть эту фигуру в увеличенном размере.
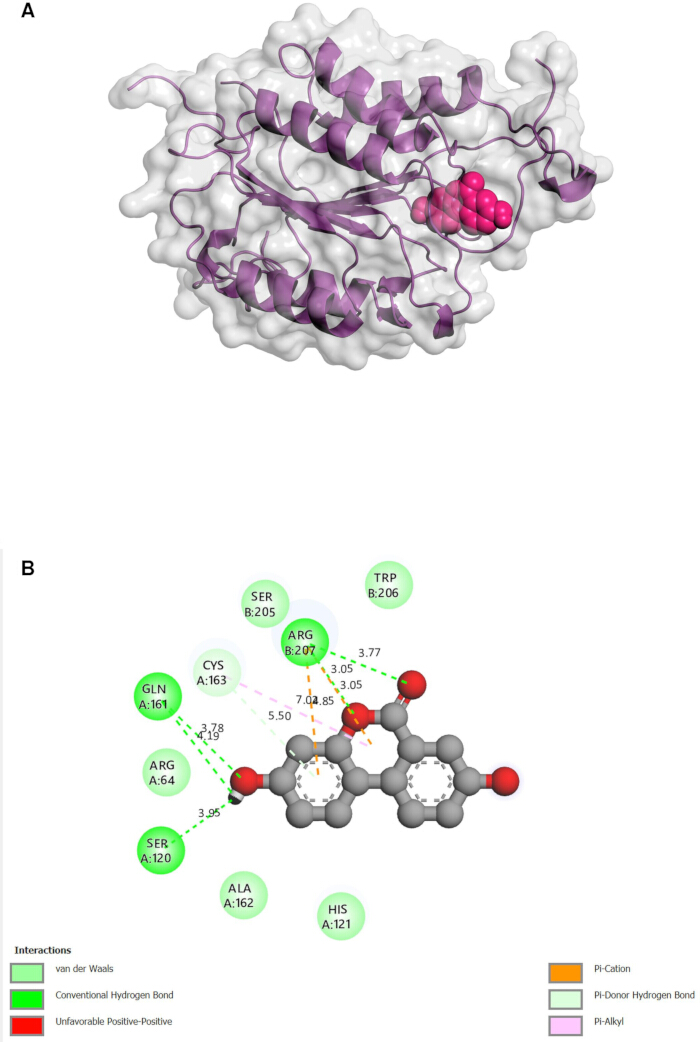
Рисунок 8Трехмерное и двухмерное структурное представление уролитина А в комплексе с CASP3 (PDB ID: 2DKO). (A) Трехмерное представление поверхности и мультяшная модель. (B) Двумерная карта взаимодействий, демонстрирующая водородные связи с Gln161, Ser120 и Arg207, π-катионные взаимодействия с Arg207, π-донорную водородную связь с Cys163 и окружающие контакты. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
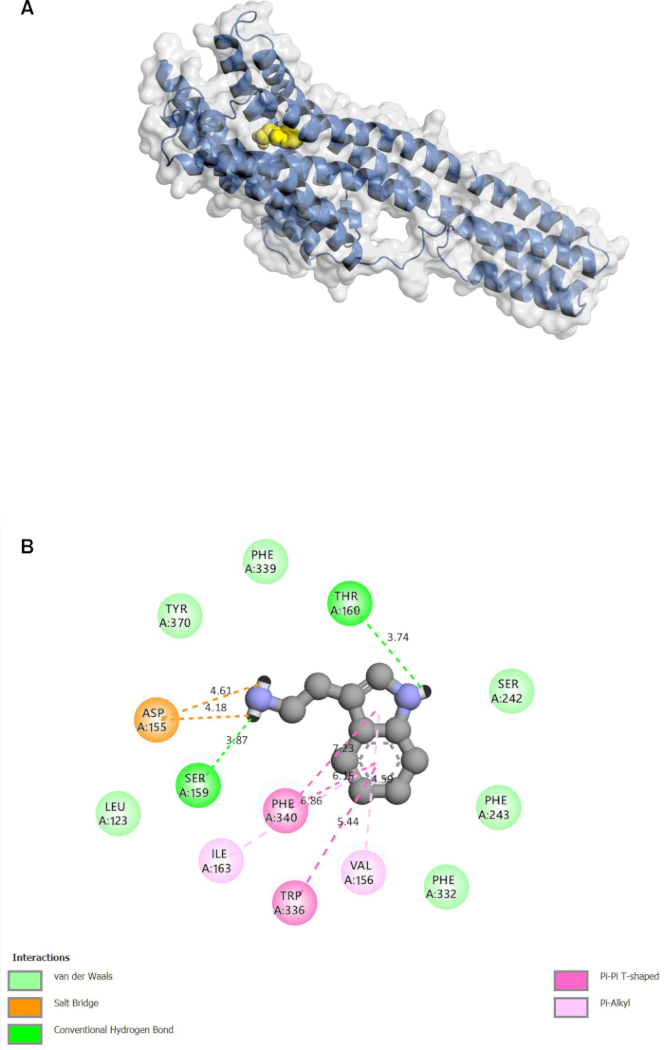
Рисунок 9Трехмерное и двумерное структурное представление триптамина в комплексе с HTR2A (PDB ID: 6A93). (A) Трехмерное представление поверхности и структуры в виде упрощенной схемы (cartoon), созданное в программе для трехмерной визуализации молекул. (B) Двумерная карта взаимодействий, созданная с помощью инструментов молекулярной визуализации и построения двумерных диаграмм взаимодействий, иллюстрирующая солевой мостик Asp15 и дополнительные взаимодействия в сайте связывания. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
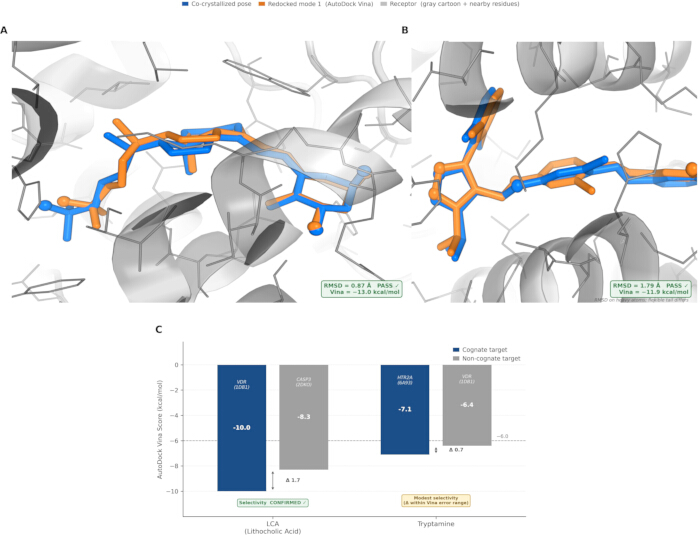
Рисунок 10Валидация протокола докинга. (А, Б) Редокинг кокристаллизованных лигандов в VDR/1DB1 (RMSD 0,87 Å) и FXR/3DCT (RMSD 1,79 Å); кристаллографические позы и позы после редокинга наложены друг на друга, обе находятся ниже порога допустимости 2,0 Å. (C) Селективность перекрестного докинга: значения Vina для когнатных и некогнатных связей литохолевой кислоты и триптамина. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
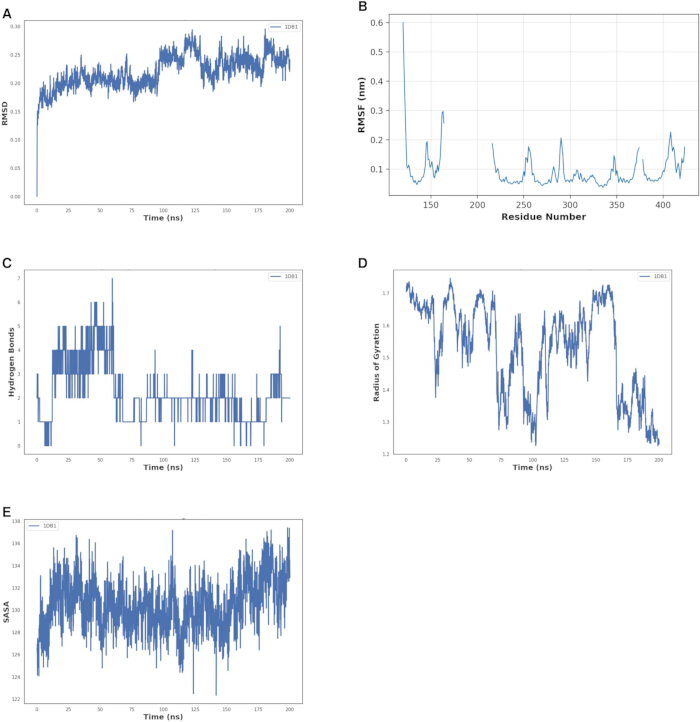
Рисунок 11Анализ траекторий молекулярной динамики комплекса LCA-VDR/1DB1 в течение 20 нс. (A) профиль RMSD. (B) Профиль RMSF. (C) Количество водородных связей. (D) Профиль радиуса гирации. (ЕПрофиль SASA. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
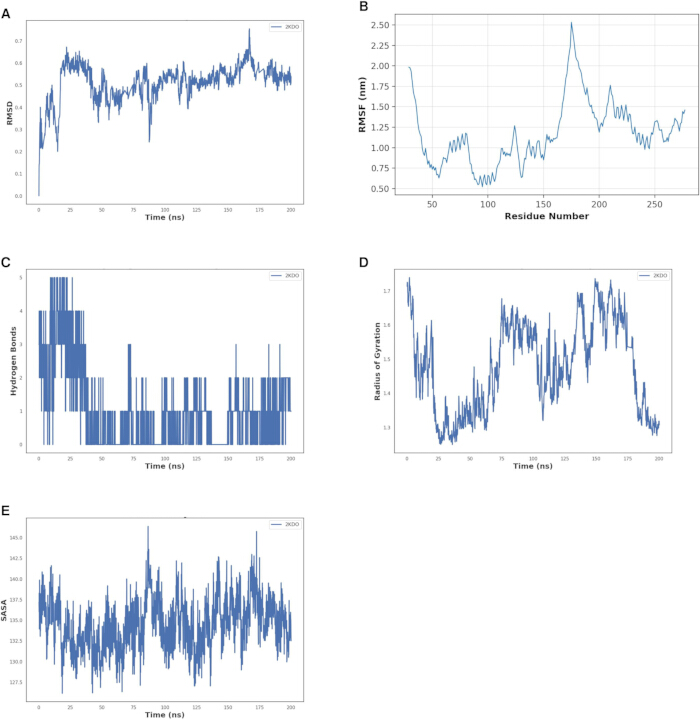
Рисунок 12Анализ траектории молекулярной динамики комплекса уролитин А-CASP3/2DKO на протяжении 20 нс. (A) Профиль RMSD, демонстрирующий значительные конформационные флуктуации и кратковременный всплеск отклонения в районе 165 нс. (B) Профиль RMSF, демонстрирующий выраженную гибкость на уровне отдельных остатков вблизи остатка 175. (C) Количество водородных связей. (D) Профиль радиуса гирации. (Епрофиль SASA (доступной поверхности растворителя). Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
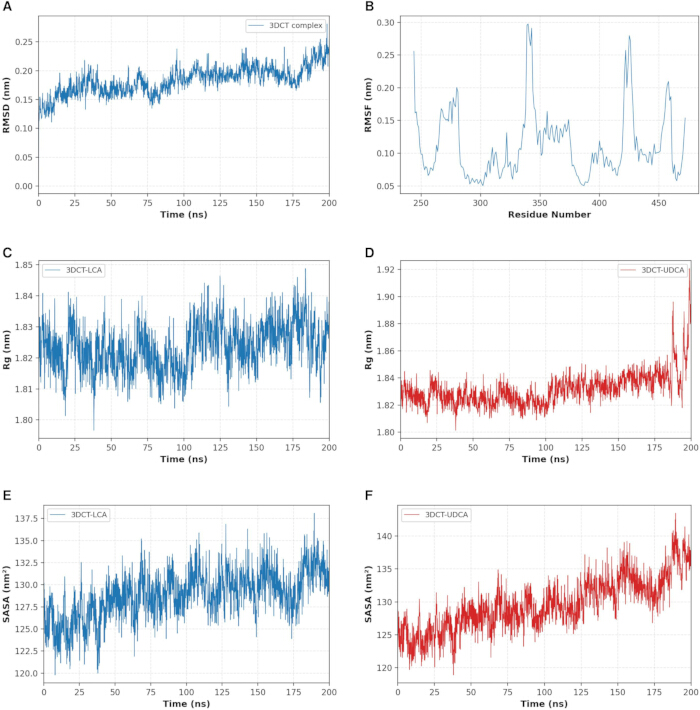
Рисунок 13Анализ траекторий молекулярной динамики систем желчных кислот NR1H4/FXR (3DCT) на протяжении 20 нс. (A) Профиль среднеквадратичного отклонения (RMSD) остова для комплекса 3DCT. (B) Профиль RMSF остова. (C) Профиль радиуса инерции для 3DCT-LCA. (D) Профиль радиуса гирации для 3DCT-UDCA. (Е) Профиль SASA для 3DCT-LCA. (F) Профиль SASA для 3DCT-UDCA. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
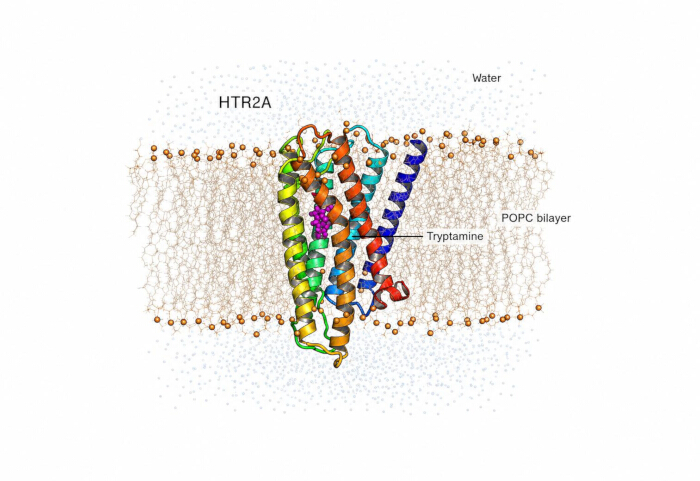
Рисунок 14Комплекс триптамина с рецептором HTR2A, встроенный в эксплицитный липидный бислой POPC. Рецептор представлен в виде упрощенной схемы (cartoon), пересекающей бислой; липиды POPC — в виде линий с выделенными фосфатными головными группами; триптамин находится внутри ортостерического кармана. Вода показана над мембраной и под ней. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
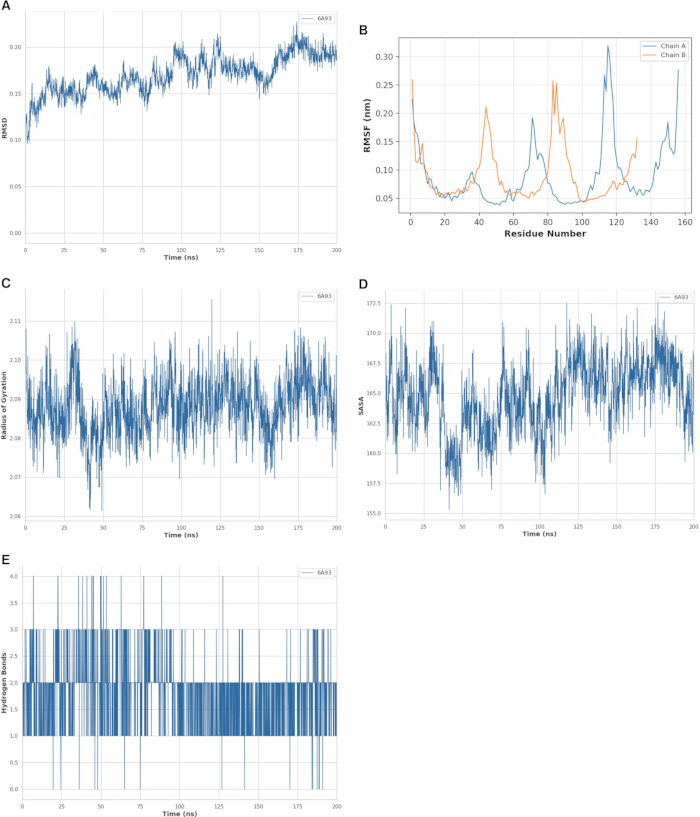
Рисунок 15Анализ траектории молекулярной динамики комплекса триптамина с HTR2A/6A93 в течение 20 нс в эксплицитном липидном бислое POPC. (A) Профиль RMSD остова. (B) Профиль среднеквадратичных флуктуаций (RMSF) для каждого остатка. (C) Профиль радиуса гирации. (D) профиль SASA. (Е) Количество водородных связей между белком и лигандом. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
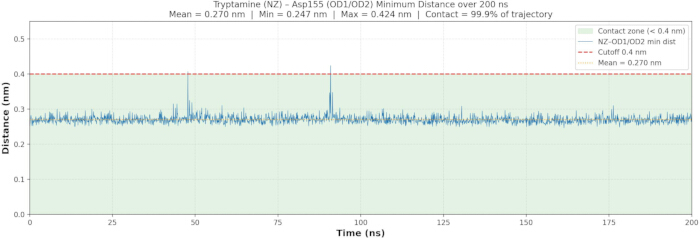
Рисунок 16Сохранение ионного взаимодействия между триптамином и Asp15 (D3.32) на протяжении 20 нс траектории в мембране. График зависимости минимального расстояния между атомом азота аммониевой группы триптамина и атомами кислорода карбоксилата Asp15 от времени; пунктирная линия отмечает порог образования солевого мостика 0,4 нм. Контакт сохранялся в течение 9,9% времени симуляции. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
| Символ гена | Исходный метаболит(ы) | Функциональная категория | log2FC | FDR (скоррект. P-значение) | Уровень значимости |
| GCG | Пропионат | Белок, связанный с пептидными гормонами | −1.342 | 1.97e−7 | FDR <0.01 & |logFC > 1 |
| HDAC3 | Бутират | Фермент | −1.234 | 2.4e−6 | FDR <0.01 & |logFC| > 1 |
| CASP3 | Уролитинин А | Фермент | −1.198 | 6.6e−7 | FDR <0.01 & |logFC| > 1 |
| GPR68 | Пропионат | Мембранный рецептор | −1.137 | 4.35e−6 | FDR <0.01 & |logFC| > 1 |
| GNAQ | Пропионат | Внутриклеточный сигнальный белок | −1.12 | 1.05e−6 | FDR <0.01 & |logFC| > 1 |
| GPHN | Пропионат | Другой внутриклеточный белок | −1.109 | 1.13e−6 | FDR <0.01 & |logFC| > 1 |
| TBXA2R | Пропионат | Мембранный рецептор | −1.104 | 4.04e−7 | FDR <0.01 & |logFC| > 1 |
| HTR6 | Триптамин | Мембранный рецептор | −0.967 | 2.17e−5 | FDR <0.01 |
| VDR | Литохолевая кислота | Ядерный рецептор | −0.942 | 5.73e−7 | FDR <0.001 |
| HTR2A | Триптамин | Мембранный рецептор | −0.937 | 4.9e−6 | FDR <0.01 |
| FFAR2 | Пропионат | Мембранный рецептор | −0.89 | 1.4e−4 | FDR <0.001 |
| NR1H4 | Литохолевая кислота / Урсодезоксихолевая кислота | Ядерный рецептор | −0.861 | 3.68e−6 | FDR <0.01 |
| HTR2B | Триптамин | Мембранный рецептор | −0.702 | 1.29e−4 | FDR <0.001 |
| MLN | Пропионат | Белок, связанный с пептидными гормонами | −0.605 | 7.39e−5 | FDR <0.01 |
| KYAT1 | Индол-3-молочная кислота / Индол-3-пропионовая кислота | Фермент | −0.530 | 3.61e−4 | FDR <0.01 |
| CASR | Пропионат | Мембранный рецептор | −0.483 | 4.05e−4 | FDR <0.01 |
| HTR1B | Триптамин | Мембранный рецептор | −0.45 | 3.18e−2 | FDR <0.05 |
Таблица 1: Прогнозируемые гены-мишени, ассоциированные с метаболитами, которые перекрываются с дифференциально экспрессируемыми генами в наборе данных слизистой оболочки прямой кишки при СРК с запорами (IBS-C). Все перечисленные перекрывающиеся гены были подавлены. Таблица 1 представлена отдельно в виде электронной таблицы и содержит для каждой мишени: исходный метаболит(ы), функциональную категорию, источник прогнозирования мишени (прогноз взаимодействия химическое вещество-белок, программа молекулярного докинга или и то, и другое), комбинированный показатель взаимодействия прогноза взаимодействия химическое вещество-белок и вероятность программы молекулярного докинга, где применимо, уровень прогнозирования, log2 кратности изменения и FDR с уровнем значимости экспрессии. Источник: значения экспрессии генов были получены из таблицы дифференциальной экспрессии GSE36701 с объединением генов (зонд с наименьшим FDR на ген). Источник прогнозирования мишени и значения достоверности были скомпилированы из результатов прогноза взаимодействия химическое вещество-белок и программы молекулярного докинга с использованием пороговых значений комбинированного показателя взаимодействия прогноза взаимодействия химическое вещество-белок ≥ 0,70 и вероятности программы молекулярного докинга ≥ 0,70. Показатели прогноза взаимодействия химическое вещество-белок представляют собой комбинированные баллы по шкале 0–1; STP обозначает вероятность программы молекулярного докинга. Уровень 1 = строгая поддержка прогноза взаимодействия химическое вещество-белок; Уровень 1+ = строгая поддержка прогноза взаимодействия химическое вещество-белок, подтвержденная программой молекулярного докинга.
| Комплекс | Белок (PDB ID) | Лиганд | Оценка Vina (ккал/моль) | Размер полости (ų) | Центр сетки X, Y, Z (A) | Поле поиска (A) |
| LCA-VDR | VDR (1DB1) | Литохолевая кислота | −10.0 | 2055 | 10, 19, 33 | 25 x 25 x 25 |
| LCA-NR1H4/FXR | NR1H4/FXR (3DCT) | Литохолевая кислота | −9.9 | 3395 | 137, 31, 78 | 25 x 25 x 25 |
| UDCA-NR1H4/FXR | NR1H4/FXR (3DCT) | Урсодезоксихолевая кислота | −9.4 | 3395 | 137, 31, 78 | 25 x 25 x 25 |
| Уролитин А-CASP3 | CASP3 (2DKO) | Уролитин A | −7.1 | 233 | 37, 34, 32 | 25 x 25 x 25 |
| Триптамин-HTR2A | HTR2A (6A93) | Триптамин | −7.1 | 3238 | 12, −1, 61 | 25 x 25 x 25 |
Таблица 2: Результаты молекулярного докинга: лучшие показатели молекулярного докинга метаболитов-лигандов с белками-мишенями и параметры полости для пяти приоритетных комплексов белок-лиганд. Размер полости указан в Å3. Источник: Docking_Validation/Results/Docking_Validation_Results.xlsx, лист 'Original_Docking_Scores'. Молекулярный докинг метаболитов-лигандов с белками-мишенями; exhaustiveness = 8, seed = 42 (фиксированный), num_modes = 9 для всех комплексов; указана наилучшая (mode 1) поза.
| Тип взаимодействия | Остаток(и) | Расстояние (A) | Примечания |
| Обычная водородная связь | Ser278 | 4.29 | Кислород карбоксилата LCA |
| Гидрофобный / Пи-алкильный контакт | Leu230, Val234, Trp286, Val30, His305, Tyr295, Leu233, His397 | - | |
| Контакт Ван-дер-Ваальса | Met272, Leu313, Ile271, Ile268, Leu309, Phe42, Val418, Ala231, Ala303, Cys28, Ser275, Phe150 | - |
Таблица 3: Способы связывания, полученные при докинге литохолевой кислоты с VDR (PDB ID: 1DB1). Источник: инструмент молекулярной визуализации и двухмерные диаграммы взаимодействия лиганда с остатками, представленные в разделе «Результаты (Молекулярный докинг)» рукописи. «-» означает, что значение расстояния для данного контакта не было указано отдельно.
| Тип взаимодействия | Остаток(и) | Расстояние (A) | Примечания |
| Водородная связь | His294 | - | |
| Водородная связь | Ile35 | - | |
| $\pi$-$\sigma$ взаимодействие | His294 | - | |
| Алкильный / Пи-алкильный (гидрофобный) | Met290, Met328, Ala291, Leu287, Ile352, His47 | - | |
| Контакт Ван-дер-Ваальса | Дополнительные остатки кармана (не указаны индивидуально в источнике) | - | Обеспечивает размещение стероидного остова |
Таблица 4: Режимы связывания, созданные при докинге литохолевой кислоты с NR1H4/FXR (PDB ID: 3DCT).
Источник: инструмент молекулярной визуализации и построения двухмерных диаграмм взаимодействий; 2D-диаграммы взаимодействий лиганд-остаток, представленные в разделе «Результаты (Молекулярный докинг)» рукописи. «-» означает, что значение расстояния для данного контакта не было указано отдельно.
| Тип взаимодействия | Остаток(и) | Расстояние (А) | Примечания |
| Обычная водородная связь | His47 | 3.66 | |
| Водородная связь | Gly32 | 3.46 | |
| Пи-анионное взаимодействие | Val325 | 4.96 | |
| Углерод-водородная связь | Trp469 | 4.51 | |
| Неблагоприятный донор-донорный контакт | Arg395 | 3.89 | |
| Неблагоприятный донорно-донорный контакт | Gln396 | 3.40 |
Таблица 5: Режимы связывания, полученные при докинге урсодезоксихолевой кислоты с NR1H4/FXR (PDB ID: 3DCT).Источник: инструмент молекулярной визуализации и двумерные диаграммы взаимодействия лиганда с остатками, представленные в разделе «Результаты» (Молекулярный докинг) рукописи. «-» означает, что значение расстояния для данного контакта не было указано отдельно.
| Тип взаимодействия | Остаток(и) | Расстояние (А) | Примечания |
| Обычная водородная связь | Gln161 | 3.78 | |
| Обычная водородная связь | Gln161 | 4.19 | вторичный контакт |
| Обычная водородная связь | Ser120 | 3.95 | |
| Обычная водородная связь | Arg207 | 3.05 | |
| Обычная водородная связь | Arg207 | 3.77 | вторичный контакт |
| $\pi$-катионное взаимодействие | Arg207 | - | |
| Водородная связь с $\pi$-донором | Cys163 | - | |
| Пи-алкильный контакт / ван-дер-ваальсовы контакты | Arg64, Ala162, His121, Ser205, Trp206 | - |
Таблица 6: Режимы связывания, полученные при докинге уролитина А с CASP3 (PDB ID: 2DKO). Источник: инструменты молекулярной визуализации и построения двумерных диаграмм взаимодействий; двумерные диаграммы взаимодействий лиганд-остаток, представленные в разделе «Результаты» (Молекулярный докинг) рукописи. «-» означает, что значение расстояния для данного контакта не было указано отдельно.
| Тип взаимодействия | Остаток(и) | Расстояние (А) | Примечания |
| Электростатический солевой мостик | Asp15 (D3.32) | - | протонированная аминогруппа триптамина |
| Водородная связь | Thr160 | - | |
| Водородная связь | Ser159 | - | |
| Ароматический контакт | Phe340, Trp336 | - | |
| $\pi$-алкильное взаимодействие | Val156, Ile163 | - | |
| Контакт Ван-дер-Ваальса | Tyr370, Phe39, Ser242, Phe243, Phe32, Leu123 | - |
Таблица 7: Способы связывания, полученные при докинге триптамина с HTR2A (PDB ID: 6A93).Источник: инструмент молекулярной визуализации и двухмерные диаграммы взаимодействия лигандов с остатками, представленные в разделе «Результаты» (Молекулярный докинг) рукописи. «-» означает, что значение расстояния для данного контакта не было указано отдельно.
| (A) Валидация путем повторного докинга (положительные контроли) | ||||||
| ID PDB | Белок | Кокристаллический лиганд | Оценка Vina (ккал/моль) | RMSD (Å) | Порог (A) | Результат |
| 1DB1 | VDR | VDX (аналог витамина D) | −13.0 | 0.87 | 2.0 | ПРОХОДИТЬ/ПРОЙТИ (в зависимости от контекста: например, «пройти проверку» или «пропуск») |
| 3D-КТ (компьютерная томография в 3D) | FXR | WAY-362450 (064) | −11.9 | 1.79 | 2.0 | ПРОЙТИ |
| (B) Валидация кросс-докинга (отрицательный контроль) | ||||||
| Лиганд | Когнатная мишень (PDB) | Показатель когната (ккал/моль) | Некогнатная мишень (PDB) | Показатель некогнатности (ккал/моль) | Δ (ккал/моль) | Селективность |
| Литохолевая кислота | VDR (1DB1) | −10.0 | CASP3 (2DKO) | −8.3 | 1.7 | Подтверждено |
| Триптамин | HTR2A (6A93) | −7.1 | VDR (1DB1) | −6.4 | 0.7 | Незначительный (в пределах погрешности Vina ±0,5–1,0) |
Таблица 8: Результаты валидации протокола докинга: значения RMSD при повторном докинге (положительные контроли) и показатели кросс-докинга (отрицательные контроли).Источник: Docking_Validation/Results/Docking_Validation_Results.xlsx и Docking_Validation/Logs/*.log (молекулярный докинг лигандов-метаболитов с белками-мишенями, exhaustiveness = 8, seed = 42, область поиска 25 Å × 25 Å × 25 Å). RMSD рассчитано по соответствию тяжелых атомов и имен атомов (без суперпозиции).
| Комплекс | RMSD (нм), среднее ± SD (диапазон) | Rg (нм), среднее ± SD (диапазон) | SASA (нм²), среднее ± SD (диапазон) | H-связи, среднее ± SD (диапазон) | RMSF (нм), среднее (макс.) |
| LCA-VDR/1DB1 | 0.230 + / – 0.025 (0.167–0.296) | 1.889 + / − 0.009 (1.863–1.919) | 130.4 + / − 2.3 (122.3–137.4) | 1.9 + / − 0.9 (0–7) | 0,093 (макс. 0,60 в остатке 120) |
| LCA-NR1H4/FXR/3DCT | 0.190 + / – 0.020 (0.135–0.281) | 1.824 + / − 0.008 (1.804–1.849) | 129.7 + / − 2.3 (121.9–138.1) | 3.8 + / − 0.7 (1–6) | 0,13 (макс. 0,298) |
| UDCA-NR1H4/FXR/3DCT | 0.190 + / – 0.020 (0.135–0.281) | 1.834 + / − 0.013 (1.809–1.921) | 131.0 + / −3.4 (121.6–143.5) | 1.1 + / − 1.1 (0–5) | 0,13 (макс. 0,298) |
| Urolithin A-CASP3/2DKO | 0.521 + / – 0.058 (0.244–0.755) | 1.892 + / − 0.024 (1.839–1.984) | 134.9 + / − 3.0 (126.4–146.4) | 0.6 + / − 0.7 (0–3) | 1,172 (макс. 2,532 в остатке 175) |
| Триптамин-HTR2A/6A93 (мембрана) | 0.177 + / –0.017 (0.131–0.227) | 2.089 + / − 0.007 (2.070–2.116) | 165.1 + / − 2.7 (156.–172.7) | 1.7 + / − 0.7 (0–4) | 0,090 (макс. 0,319) |
Таблица 9: Резюме поведения при молекулярно-динамическом моделировании в течение 20 ns для пяти приоритетных комплексов белок-лиганд, включая систему триптамина-HTR2A, встроенную в мембрану.Источник: файлы анализа траекторий молекулярной динамики (.xvg) — gmx rms, gmx gyrate, gmx sasa, gmx hbond, gmx rmsf — рассчитанные за последние 150 ns (50–20 ns) каждого основного прогона продолжительностью 20 ns, согласно шагу 8.8 протокола. RMSD/Rg рассчитаны с подгонкой по остову; радиус зонда SASA 0.14 nm; порог донора-акцептора H-связи 0.35 nm / 30 °. LCA-3DCT и UDCA-3DCT имеют одну общую траекторию остова белка (RMSD, RMSF) с индивидуальными для каждого лиганда значениями Rg/SASA/H-связей.
| Триптамин-HTR2A/6A93 (мембрана) — количественный посекулярный анализ вклада остатков | ||
| Остаток | Общий вклад в ddG (kcal/mol), среднее ± SD | Направление |
| Asp15 (D3.32) | −89.94 + / − 6.81 | Стабилизирующий (доминирующий) |
| Триптамин (лиганд) | −13.01 + / − 6.2 | Стабилизирующий |
| Tyr171 | 13.62 + / − 4.54 | Дестабилизирующий |
| Val167 | 23.32 + / − 3.96 | Дестабилизирующий |
| Val156 | 20.03 + / − 3.81 | Дестабилизирующий |
| Thr160 | 4.86 + / − 3.64 | Дестабилизирующий |
| Ser159 | 24.16 + / − 3.48 | Дестабилизирующий |
| Ser86 | 24.48 + / − 3.65 | Дестабилизирующий |
| Phe87 | 35.18 + / − 4.04 | Дестабилизирующий |
| Phe13 | 32.80 + / −3.70 | Дестабилизирующий |
| Phe140 | 30.63 + / − 3.84 | Дестабилизирующий |
| Phe141 | 35.25 + / − 3.5 | Дестабилизирующий |
| Ile163 | 27.64 + / − 3.71 | Дестабилизирующий |
| Trp137 | 53.7 + / − 4.32 | Дестабилизирующий (наибольший неблагоприятный вклад) |
| Другие четыре комплекса — остатки, выявленные при посекулярном анализе (качественный) | ||
| Комплекс | Остаток | Направление |
| LCA-VDR/1DB1 | Лиганд (LCA) | Благоприятное |
| LCA-VDR/1DB1 | Gln317 | Благоприятное |
| LCA-VDR/1DB1 | Trp286 | Неблагоприятное |
| LCA-NR1H4/FXR/3DCT | Arg31 | Благоприятное (доминирующее) |
| UDCA-NR1H4/FXR/3DCT | Glu326 | Смешанная/распределенная сеть |
| UDCA-NR1H4/FXR/3DCT | Asp394 | Смешанная/распределенная сеть |
| UDCA-NR1H4/FXR/3DCT | Arg395 | Смешанная/распределенная сеть |
| UDCA-NR1H4/FXR/3DCT | Arg41 | Смешанная/распределенная сеть |
| UDCA-NR1H4/FXR/3DCT | Asp470 | Смешанная/распределенная сеть |
| Urolithin A-CASP3/2DKO | Arg64 | Сильно благоприятное (полярное/электростатическое) |
| Urolithin A-CASP3/2DKO | Arg207 | Сильно благоприятное (полярное/электростатическое) |
Таблица 10: Порезидуальная декомпозиция MM-PBSA. КРАТКАЯ АННОТАЦИЯ: стабилизирующие и дестабилизирующие остатки (абсолютный вклад ≥ 0.5 kcal mol⁻1) для каждого из пяти приоритетных белок-лигандных комплексов, включая встроенную в мембрану систему триптамин-HTR2A.Источник: Membrane Simulation/03_MMPBSA/results/FINAL_DECOMP_MMPBSA.dat (инструмент расчета энергии связывания методом молекулярной механики/континуального растворителя порезидуальная декомпозиция Обобщенного Борна (GB), «Complex: Total Energy Decomposition»). Номера остатков переведены из внутренней нумерации системы, созданной в CHARMM-GUI (смещение +68), в оригинальную нумерацию PDB 6A93, которая используется в других частях данной рукописи.
Источник: Данные предыдущего моделирования молекулярной динамики Previous_MD Simulation data/1DB1,2KD0, LCA & UDCA_3DCT}/mmpbsa_*/Decomposition_NORMAL_GB_Complex_TDC*.svg и раздел результатов рукописи (свободная энергия связывания MM-PBSA и разложение по остаткам). Для этих четырех комплексов в директории проекта отсутствуют числовые выходные данные по остаткам в форматах .dat/.csv (имеются только отрисованные SVG-графики с текстом в виде векторных путей, который невозможно извлечь машинным способом); сообщены только идентификаторы остатков и направление (благоприятное/неблагоприятное), как указано в тексте рукописи. Точные значения вкладов в kcal/mol для этих четырех комплексов в исходном репозитории отсутствуют.
Обсуждение
Данное поисковое вычислительное исследование демонстрирует интегрированный воспроизводимый рабочий процесс для приоритизации генов хозяина, связанных с микробными метаболитами, и комплексов белок-лиганд, примененный в данном случае к общедоступному набору транскриптомных данных слизистой оболочки прямой кишки при СРК-З. С помощью этого рабочего процесса подмножество предсказанных генов, связанных с микробными метаболитами, совпало с последовательно сниженными генами в наборе данных, которые объединились в кластеры путей GPCR, серотонинергических, кальциевых сигнальных, нейроактивных лиганд-рецепторных и ядерных рецептор-ассоциированных путей — систем, которые все чаще вовлекаются в коммуникацию между микробиотой и хозяином48,49. Эти результаты следует интерпретировать строго как генерацию гипотез: анализ не измеряет концентрации микробных метаболитов, содержание рецепторных белков, связывание лигандов, активацию рецепторов, нисходящий сигналинг, моторику, секрецию, болевые реакции или клинические исходы. Наиболее обоснованным выводом является то, что выявленные гены и пути являются кандидатами для экспериментальной валидации, а не подтвержденными механизмами заболевания.
Критическая значимость данного протокола по сравнению с предыдущими работами, в которых отдельные пары «метаболит-рецептор» изучались изолированно, заключается в интеграции прогнозирования мишеней, общедоступных транскриптомных данных, сетевого анализа, докинга с контролями валидации, молекулярной динамики и метода MM-PBSA в единый последовательный конвейер приоритезации. Каждый этап сужает и контекстуализирует набор кандидатов, полученный на предыдущем этапе, и именно эта последовательная фильтрация делает итоговый список кандидатов доступным для экспериментальной проверки. Выявленные здесь модуль GPCR, центрированный на GNAQ, и модуль, ассоциированный с серотониновым рецептором, биологически обоснованы, учитывая роль сигналинга Gq в активации фосфолипазы C, выработке инозитол-1,4,5-трифосфата, мобилизации кальция, секреции и энтероэндокринной функции, а также установленную роль сигналинга короткоцепочечных жирных кислот и производных триптофана в гомеостазе слизистой оболочки и серотонинергического сигналинга в моторике желудочно-кишечного тракта, секреции, висцеральной чувствительности и взаимодействии оси «кишечник-мозг»10,18,50,51.
Ключевой методологической особенностью данного исследования является подход к работе с встроенным в мембрану рецептором HTR2A. Поскольку моделирование в растворе не позволяет воспроизвести липидное окружение, определяющее конформационное поведение рецептора, сопряженного с G-белком, комплекс триптамин-HTR2A моделировался в эксплицитном бислое POPC. В условиях данной мембраны рецептор оставался структурно стабильным на протяжении всей траектории в 200 ns, а солевой мостик между аммонийной группой триптамина и Asp155 (D3.32) сохранялся практически в течение всего моделирования. Тот факт, что три независимых доказательства — поза докинга, постоянное расстояние контакта на протяжении всей траектории и доминирующий вклад каждого остатка в расчетах MM-PBSA — указывают на одно и то же консервативное взаимодействие с D3.32, подтверждает внутреннюю согласованность предсказанного способа связывания триптамина, который повторяет каноническую геометрию связывания аминергических лигандов с серотониновыми рецепторами.
При воспроизведении данного рабочего процесса следует учитывать определенные методологические аспекты. Ошибки в канонической структуре или наличие соединений, помеченных как Pan-assay interference compounds (PAINS), распространяются на этапы предсказания мишеней и докинга, что требует точного подбора метаболитов и хемоинформатической курации. Чтобы минимизировать наборы мишеней, вызванные шумом, необходимо последовательно применять критерии достоверности (предсказание взаимодействий химическое вещество-белок: ≥0.700; программа молекулярного докинга: ≥0.70; построение сети белок-белковых взаимодействий и анализ обогащения путей: ≥0.700). Предсказанные мишени следует группировать по функциональным категориям, чтобы избежать ошибочной характеристики всех ассоциированных с метаболитом генов как рецепторов. Важными аспектами докинга являются точная предварительная обработка структур PDB, минимизация энергии лигандов и размещение сетки вокруг известных остатков связывания, а введенные здесь контроли в виде редокинга и кросс-докинга обеспечивают объективную оценку корректности методологии докинга. Границы воспроизводимости в молекулярной динамике определяются сочетанием параметризации силового поля, правильной сольватации или построения мембраны, поэтапной эквилибрации и адекватного отбора проб на этапе продуктивного моделирования.
Типичные варианты адаптации и шаги по устранению неполадок включают снижение строгости порогов, если целевое предсказание не дает результатов, проверку согласованности направлений на уровне зондов для генов с несколькими зондами, а также интерпретацию отдельных узлов при построении сетей белок-белковых взаимодействий и анализе обогащения путей как зависящих от порога, а не как биологически нерелевантных. Для мембранных рецепторов следует использовать эксплицитное моделирование липидного бислоя вместо моделирования в водной среде, как показано на примере метода HTR2A, описанного здесь. В случаях, когда необходима декомпозиция энергии по остаткам, вычисления должны выполняться с использованием движка, поддерживающего декомпозицию, а сообщаемая нумерация остатков должна быть приведена в соответствие с нативной нумерацией рецептора во избежание неоднозначности. Мы полагаем, что результаты обогащения путей лучше рассматривать как организационный контекст для списка кандидатов, а не как валидацию на уровне путей. С технической точки зрения, обогащение терминов GPCR, серотонинергических путей или сигналинга кальция будет происходить всякий раз, когда список генов содержит несколько генов серотониновых рецепторов, независимо от корегуляции на уровне белков. Значения RMSD, Rg и RMSF для встроенной в мембрану системы HTR2A следует интерпретировать с учетом липидного бислоя: снижение Rg на более поздних этапах траектории может отражать вызванную бислоем конформационную адаптацию трансмембранного пучка, а не глобальное развертывание, а устойчивые водородные связи между лигандом и белком следует интерпретировать совместно с общей стабильностью RMSD.
Ограничения данного исследования существенны и накладывают определенные рамки на интерпретацию результатов. Исследование было основано на одном относительно небольшом общедоступном наборе данных; поиск в основных публичных репозиториях транскриптомных данных (веб-инструмент для анализа дифференциальной экспрессии генов и ArrayExpress) на момент анализа не выявил независимого набора данных транскриптома слизистой оболочки прямой кишки при СРК-З сопоставимого дизайна и платформы, который мог бы послужить когортой для репликации. Отсутствие независимой транскриптомной репликации является серьезным ограничением, и ни одно утверждение в данной рукописи не должно интерпретироваться как внешняя валидация результатов, полученных на основе одного набора данных. Набор данных демонстрирует почти повсеместную дифференциальную экспрессию (примерно 94,5% генов значимы, при этом подавляющее большинство из них понижено), что делает стандартную статистику обогащения неинформативной и не позволяет сделать выводы о специфичности подавления целевых генов относительно геномного фона; поэтому перекрытие представлено как описательный направленный паттерн, а не как статистическое обогащение. Общая транскриптомная analysis слизистой оболочки не позволяет отличить фактическую регуляцию генов от изменений в клеточном составе. Экспрессия мРНК не определяет содержание белка или функциональный ответ. Базы данных для предсказания мишеней подвержены систематической ошибке аннотирования, а результаты докинга, MD и MM-PBSA зависят от выбора силового поля, параметризации лиганда, начального положения, времени симуляции и адекватности выборки. Точные идентификаторы версий/сборок для некоторых веб-серверов и компонентов пакетов, включая сервис параметризации лигандов, совместимый с CHARMM, CHARMM-GUI и среду статистических вычислений, не указаны.
версии сборок пакетов и подверсии инструментов расчета энергии связывания методом молекулярной механики/континуального растворителя не были полностью восстановлены из архивной записи проекта и должны быть указаны как доступные в отдельной Таблице материалов. Значения MM-PBSA являются относительными оценками, не содержат явного члена конфигурационной энтропии и не должны интерпретироваться как экспериментальные показатели сродства. В исследовании отсутствуют метаболомные данные, вследствие чего невозможно определить, изменяется ли доступность лигандов при IBS-C, а также являются ли наблюдаемые изменения экспрессии причинами, следствиями, компенсаторными ответами или несущественными корреляциями.
Будущие применения данного метода должны включать независимую транскриптомную репликацию, количественную полимеразную цепную реакцию (qPCR) и валидацию на уровне белков, определение локализации по типам клеток с помощью одноклеточной или пространственной транскриптомики, метаболомное профилирование соответствующих классов метаболитов, а также функциональные анализы лигандного ответа в колоноидах, полученных от пациентов, эксплантатах слизистой оболочки или сопоставимых моделях. Сравнение с когортами пациентов с СРК с преобладанием диареи, смешанным типом СРК, воспалительными заболеваниями кишечника и запорами без СРК1,2 поможет установить специфичность заболевания. Что касается структурного компонента, воспроизведение траекторий молекулярной динамики (MD), проведение анализа чувствительности с альтернативными начальными позами, а также полное документирование депозиции топологии, траекторий и входных и выходных файлов MM-PBSA способствовали бы дальнейшему повышению воспроизводимости. Экспериментальные анализы лигандного ответа остаются необходимыми для определения функциональной значимости приоритетных комплексов; представленные результаты не являются основанием для клинических или терапевтических утверждений.
Раскрытие информации
Автор заявляет об отсутствии конфликта интересов.
Благодарности
Для данного исследования внешнее финансирование не привлекалось. Авторы выражают благодарность за открытый доступ к набору данных GSE36701 и ресурсам STITCH, SwissTargetPrediction, SwissADME, STRING, RCSB Protein Data Bank, Gene Expression Omnibus, CHARMM-GUI и Orientations of Proteins in Membranes (OPM), а также за программное обеспечение AutoDock Vina, GROMACS, CHARMM36m, CGenFF, gmx_MMPBSA, Open Babel, PyMOL и Discovery Studio Visualizer.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| AutoDock Vina | Scripps Research / открытый исходный код | v1.2.7; https://vina.scripps.edu/ | Молекулярный докинг метаболитов-лигандов с белками-мишенями. |
| CGenFF/ParamChem | SilcsBio / Мэрилендский университет | v4.6; https://cgenff.com/ | Параметризация силового поля лиганда для молекулярной динамики. |
| силовое поле CHARMM36m | разработчики CHARMM / открытое исходное приложение | CHARMM36m; https://www.charmm.org/charmm/resources/charmm-force-fields/ | Силовое поле белка, используемое для моделирования молекулярной динамики. |
| Конструктор мембран CHARMM-GUI | CHARMM-GUI / Университет Лихай | Веб-сервер; точная версия не определена; https://www.charmm-gui.org/?doc=input/membrane | Создание и настройка уравновешивания системы явной мембраны POPC. |
| Discovery Studio Visualizer | BIOVIA (Dassault Systèmes)èмесяцы) | 2021; https://discover.3ds.com/discovery-studio-visualizer-download | Двумерный анализ взаимодействий лиганд-остаток. |
| GEO2R | Архив экспрессии генов NCBI (Gene Expression Omnibus) | Веб-инструмент; доступ в январе-мае 2026 г.; https://www.ncbi.nlm.nih.gov/geo/geo2r/ | Анализ дифференциальной экспрессии GSE36701. |
| GeneCards | Институт науки Вейцмана | Веб-база данных; доступ в январе–мае 2026 г.; https://www.genecards.org/ | Верификация символов и информации о генах при стандартизации мишеней. |
| gmx_MMPBSA | Открытый исходный код (Vald)éс-Tresanco и др.) | 1.5.x; https://valdes-tresanco-ms.github.io/gmx_MMPBSA/ | Оценка свободной энергии связывания методом MM-PBSA и поостаточное разложение. |
| GROMACS | Команда разработчиков GROMACS / открытый исходный код | 2024.2; https://www.gromacs.org/ | Программный комплекс для моделирования молекулярной динамики. |
| транскриптомный набор данных GSE36701 | NCBI Gene Expression Omnibus | GSE36701; https://www.ncbi.nlm.nih.gov/geo/query/acc.cgi?acc=GSE36701 | Общедоступный набор данных экспрессии слизистой оболочки прямой кишки при СРК с запорами. |
| Open Babel | Открытый исходный код | 3.2.0; https://openbabel.org/ | Конвертация форматов химических файлов, генерация трехмерных структур лигандов и подготовка лигандов. |
| База данных OPM | Мичиганский университет | Веб-база данных; доступ в январе-мае 2026 г.; https://opm.phar.umich.edu/ | Ориентация белков в мембранах, координаты, использованные для выравнивания HTR2A. |
| ParmEd | разработчики ParmEd / открытое программное обеспечение | 4.x; https://parmed.github.io/ParmEd/html/index.html | Перераспределение массы водорода и обработка топологии молекулярного моделирования. |
| PyMOL | Шрвödinger / открытое программное обеспечение | 2.x; https://www.pymol.org/ | Трехмерная структурная визуализация и схемы взаимодействия рецептора с лигандом. |
| Банк данных белков RCSB (RCSB Protein Data Bank) | RCSB PDB | Веб-база данных; доступ в январе-мае 2026 г.; https://www.rcsb.org/ | Источник экспериментальных структур белков и координат PDB. |
| STITCH | консорциум STITCH (EMBL) | v5.0; https://stitch.embl.de/ | Предсказание мишеней химического белкового взаимодействия. |
| Пожалуйста, предоставьте текст (STRING), который необходимо перевести. | Консорциум STRING / ELIXIR | v12.0; https://version-12-0.string-db.org/ | Построение сети белок-белковых взаимодействий и анализ обогащения путей. |
| SwissADME | SIB Швейцарский институт биоинформатики / Лозаннский университет | Веб-инструмент; доступ в январе-мае 2026 г.; https://www.swissadme.ch/ | Хемоинформационные дескрипторы, фармакокинетические прогнозы и оценка PAINS. |
| SwissTargetPrediction | SIB Швейцарский институт биоинформатики / Лозаннский университет | Веб-инструмент; доступ в январе–мае 2026 г.; https://www.swisstargetprediction.ch/ | Прогнозирование белков-мишеней человека на основе лигандов. |
| Сопоставление идентификаторов UniProt | Консорциум UniProt | Веб-сервис; доступ в январе–мае 2026 г.; https://www.uniprot.org/id-mapping | Сопоставление идентификаторов белков со стандартизированными символами генов, утвержденными HGNC. |
| NVIDIA RTX 3080 | NVIDIA Corporation | RTX 3080; ≥8 ГБ видеопамяти (VRAM); версия CUDA/драйвера в рукописи не указана | Графический процессор с поддержкой CUDA, используемый для моделирования молекулярной динамики. |
| GPU с поддержкой CUDA | NVIDIA Corporation | версия CUDA toolkit не указана в рукописи; ≥8 ГБ видеопамяти (VRAM) | Графический процессор (GPU) с поддержкой CUDA с ≥8 ГБ видеопамяти (VRAM); также потребовалась рабочая станция ≥32 ГБ оперативной памяти и 6-ядерный процессор. |
| Ubuntu Linux | Canonical Ltd. / открытое программное обеспечение | 22.04 LTS | 64-разрядная операционная система Linux. |
| Python 3.9 | Python Software Foundation | 3.9 | Среда программирования общего назначения, используемая для написания сценариев рабочих процессов и анализа данных. |
| Архив экспрессии генов (Gene Expression Omnibus, GEO) | NCBI / Национальная медицинская библиотека США | Общедоступный веб-репозиторий; версия программного обеспечения в рукописи не указана | Общедоступный репозиторий данных функциональной геномики. |
| AutoDockTools/MGLTools | Лаборатория молекулярной графики, Scripps Research | 1.5.7 | Инструментарий для подготовки молекулярных структур и входных данных для докинга. |
| Инструменты анализа GROMACS | команда разработчиков GROMACS / открытое программное обеспечение | 2024.2 | Инструменты анализа траекторий молекулярной динамики. |
| Шестиэтапный протокол CHARMM-GUI | CHARMM-GUI / Университет Лихай | Веб-протокол; точная версия выпуска не определена | Веб-ориентированный многоэтапный рабочий процесс подготовки и уравновешивания молекулярных систем. |
| cgenff_charmm2gmx_py3.py | Скрипт конвертации с открытым исходным кодом; источник в рукописи не указан | Версия в рукописи не указана | Скрипт для конвертации топологии силового поля. |
| Python | Python Software Foundation | 3.9 | Среда программирования общего назначения. |
| SciPy | Сообщество SciPy / открытое программное обеспечение | Версия в рукописи не указана | Библиотека для научных вычислений. |
| scipy.stats.fisher_exact | Сообщество SciPy / открытое программное обеспечение | Версия SciPy не указана в рукописи | Fisher’реализация точного теста. |
| R | R Foundation for Statistical Computing | 4.3.x | Среда статистических вычислений. |
| Bioconductor | Проект Bioconductor / открытое программное обеспечение | 3.18 | Программный комплекс для биоинформатики. |
| limma | Проект Bioconductor / открытое программное обеспечение | Версия не указана в рукописи | Пакет для анализа дифференциальной экспрессии генов. |
| Беньямини–Процедура Хохберга | Статистический метод | Неприменимо (статистическая процедура) | Метод корректировки ложного уровня значимости. |
| NVIDIA RTX 3080 | NVIDIA Corporation | RTX 3080; ≥8 ГБ видеопамяти (VRAM); версия CUDA/драйвера в рукописи не указана | Графический процессор с объемом видеопамяти не менее 8 ГБ. |
| GPU с поддержкой CUDA | NVIDIA Corporation | версия инструментария CUDA не указана в рукописи; ≥8 ГБ видеопамяти (VRAM) | Графический процессор с поддержкой параллельных вычислений общего назначения. |
| Ubuntu Linux 22.04 LTS | Canonical Ltd. / открытое программное обеспечение | 22.04 LTS | 64-битная операционная система Linux. |
| TIP3P | Разработчики силового поля CHARMM / открытое программное обеспечение | TIP3P; версия программного обеспечения не применима | Трехточечная модель явной воды. |
| MM/PBSA | разработчики gmx_MMPBSA / открытое программное обеспечение | gmx_MMPBSA 1.5.x | Молекулярная механика/Пуассон–Метод расчета энергии связывания на основе площади поверхности Больцмана. |
Ссылки
- Ford AC, Lacy BE, Talley NJ. Irritable bowel syndrome. N Engl J Med. 2017;376(26):2566–2578.
- Sperber AD, et al. Worldwide prevalence and burden of functional gastrointestinal disorders: results of the Rome Foundation Global Study. Gastroenterology. 2021;160(1):99–114.e3.
- Chang L, et al. AGA clinical practice guideline on the pharmacological management of irritable bowel syndrome with constipation. Gastroenterology. 2022;163(1):118–136.
- Lacy BE, et al. ACG clinical guideline: management of irritable bowel syndrome. Am J Gastroenterol. 2021;116(1):17–44.
- Lavelle A, Sokol H. Gut microbiota-derived metabolites as key actors in inflammatory bowel disease. Nat Rev Gastroenterol Hepatol. 2020;17(4):223–237.
- Morrison DJ, Preston T. Formation of short-chain fatty acids by the gut microbiota and their impact on human metabolism. Gut Microbes. 2016;7(3):189–200.
- Ridlon JM, et al. Consequences of bile salt biotransformations by intestinal bacteria. Gut Microbes. 2016;7(1):22–39.
- Roager HM, Licht TR. Microbial tryptophan catabolites in health and disease. Nat Commun. 2018;9(1):3294. doi:10.1038/s41467-018-05470-4.
- Krautkramer KA, Fan J, Bäckhed F. Gut microbial metabolites as multi-kingdom intermediates. Nat Rev Microbiol. 2021;19(2):77–94.
- Pittayanon R, et al. Gut microbiota in patients with irritable bowel syndrome: a systematic review. Gastroenterology. 2019;157(1):97–108.
- Hopkins AL. Network pharmacology: the next paradigm in drug discovery. Nat Chem Biol. 2008;4(11):682–690.
- O’Boyle NM, et al. Open Babel: an open chemical toolbox. J Cheminform. 2011;3:33. doi:10.1186/1758-2946-3-33.
- Daina A, Michielin O, Zoete V. SwissADME: a free web tool to evaluate pharmacokinetics, drug-likeness, and medicinal chemistry friendliness of small molecules. Sci Rep. 2017;7:42717. doi:10.1038/srep42717.
- Szklarczyk D, et al. STITCH 5: augmenting protein–chemical interaction networks with tissue and affinity data. Nucleic Acids Res. 2016;44(D1):D380–D384.
- Daina A, Michielin O, Zoete V. SwissTargetPrediction: updated data and new features for efficient prediction of protein targets of small molecules. Nucleic Acids Res. 2019;47(W1):W357–W364.
- Barrett T, et al. NCBI GEO: archive for functional genomics data sets—update. Nucleic Acids Res. 2013;41(D1):D991–D995.
- Edgar R, Domrachev M, Lash AE. Gene Expression Omnibus: NCBI gene expression and hybridization array data repository. Nucleic Acids Res. 2002;30(1):207–210.
- Swan C, et al. Identifying and testing candidate genetic polymorphisms in irritable bowel syndrome: association with TNFSF15 and TNFα. Gut. 2013;62(7):985–994.
- Ritchie ME, et al. Limma powers differential expression analyses for RNA-sequencing and microarray studies. Nucleic Acids Res. 2015;43(7):e47. doi:10.1093/nar/gkv007.
- Szklarczyk D, et al. The STRING database in 2023: protein–protein association networks and functional enrichment analyses for any sequenced genome of interest. Nucleic Acids Res. 2023;51(D1):D638–D646.
- Kanehisa M, Goto S. KEGG: Kyoto Encyclopedia of Genes and Genomes. Nucleic Acids Res. 2000;28(1):27–30.
- Gillespie M, et al. The Reactome pathway knowledgebase 2022. Nucleic Acids Res. 2022;50(D1):D687–D692.
- Ashburner M, et al. Gene Ontology: tool for the unification of biology. Nat Genet. 2000;25(1):25–29.
- Gene Ontology Consortium, et al. The Gene Ontology knowledgebase in 2023. Genetics. 2023;224(1):iyad031. doi:10.1093/genetics/iyad031.
- Berman HM, et al. The Protein Data Bank. Nucleic Acids Res. 2000;28(1):235–242.
- Eberhardt J, Santos-Martins D, Tillack AF, Forli S. AutoDock Vina 1.2.0: new docking methods, expanded force field, and Python bindings. J Chem Inf Model. 2021;61(8):3891–3898.
- Trott O, Olson AJ. AutoDock Vina: improving the speed and accuracy of docking. J Comput Chem. 2010;31(2):455–461.
- Vanommeslaeghe K, et al. CHARMM general force field: a force field for drug-like molecules compatible with the CHARMM all-atom additive biological force fields. J Comput Chem. 2010;31(4):671–690.
- Huang J, MacKerell AD Jr. CHARMM36 all-atom additive protein force field: validation based on comparison to NMR data. J Comput Chem. 2013;34(25):2135–2145.
- Jorgensen WL, et al. Comparison of simple potential functions for simulating liquid water. J Chem Phys. 1983;79(2):926–935.
- Abraham MJ, et al. GROMACS: high-performance molecular simulations through multi-level parallelism from laptops to supercomputers. SoftwareX. 2015;1–2:19–25.
- Jo S, Kim T, Iyer VG, Im W. CHARMM-GUI: a web-based graphical user interface for CHARMM. J Comput Chem. 2008;29(11):1859–1865.
- Wu EL, et al. CHARMM-GUI Membrane Builder toward realistic biological membrane simulations. J Comput Chem. 2014;35(27):1997–2004.
- Lomize MA, et al. OPM database and PPM web server: resources for positioning proteins in membranes. Nucleic Acids Res. 2012;40(D1):D370–D376.
- Darden T, York D, Pedersen L. Particle mesh Ewald: an N log(N) method for Ewald sums in large systems. J Chem Phys. 1993;98(12):10089–10092.
- Hess B, Bekker H, Berendsen HJC, Fraaije JGEM. LINCS: a linear constraint solver for molecular simulations. J Comput Chem. 1997;18(12):1463–1472.
- Valdés-Tresanco MS, Valdés-Tresanco ME, Valiente PA, Moreno E. gmx_MMPBSA: a new tool to perform end-state free-energy calculations with GROMACS. J Chem Theory Comput. 2021;17(10):6281–6291.
- Fiorucci S, Distrutti E. Bile acid-activated receptors, intestinal microbiota, and the treatment of metabolic disorders. Trends Mol Med. 2015;21(11):702–714.
- Wahlström A, Sayin SI, Marschall HU, Bäckhed F. Intestinal crosstalk between bile acids and microbiota and its impact on host metabolism. Cell Metab. 2016;24(1):41–50.
- Gershon MD, Tack J. The serotonin signaling system: from basic understanding to drug development for functional gastrointestinal disorders. Gastroenterology. 2007;132(1):397–414.
- Kim K, et al. Structure of a hallucinogen-activated Gq-coupled 5-HT2A serotonin receptor. Cell. 2020;182(6):1574–1588.e19.
- Ballesteros JA, Weinstein H. Integrated methods for the construction of three-dimensional models and computational probing of structure–function relations in G protein-coupled receptors. In: Sealfon SC, editor. Receptor Molecular Biology. Methods in Neurosciences. Vol. 25. San Diego: Academic Press; 1995. p. 366–428.
- McCorvy JD, Roth BL. Structure and function of serotonin G protein-coupled receptors. Pharmacol Ther. 2015;150:129–142.
- Klauda JB, et al. Update of the CHARMM all-atom additive force field for lipids: validation on six lipid types. J Phys Chem B. 2010;114(23):7830–7843.
- Lee J, et al. CHARMM-GUI input generator for NAMD, GROMACS, AMBER, OpenMM, and CHARMM/OpenMM simulations using the CHARMM36 additive force field. J Chem Theory Comput. 2016;12(1):405–413.
- Genheden S, Ryde U. The MM/PBSA and MM/GBSA methods to estimate ligand-binding affinities. Expert Opin Drug Discov. 2015;10(5):449–461.
- Kollman PA, et al. Calculating structures and free energies of complex molecules: combining molecular mechanics and continuum models. Acc Chem Res. 2000;33(12):889–897.
- Cryan JF, et al. The microbiota–gut–brain axis. Physiol Rev. 2019;99(4):1877–2013.
- Koh A, De Vadder F, Kovatcheva-Datchary P, Bäckhed F. From dietary fiber to host physiology: short-chain fatty acids as key bacterial metabolites. Cell. 2016;165(6):1332–1345.
- Tan J, et al. The role of short-chain fatty acids in health and disease. Adv Immunol. 2014;121:91–119.
- Agus A, Planchais J, Sokol H. Gut microbiota regulation of tryptophan metabolism in health and disease. Cell Host Microbe. 2018;23(6):716–724.