Стандартизированный рабочий процесс подготовки образцов костной ткани, фиксированных в формалине и залитых парафином, для пространственной транскриптомики включает этап декальцинации в EDTA в течение 10 дней для сохранения целостности РНК. Ключевые контрольные точки контроля качества помогают определить, соответствуют ли образцы требованиям для последующего анализа пространственной экспрессии генов.
Методическая статья
Подготовка образцов костного мозга, фиксированных в формалине и залитых парафином, для пространственной транскриптомики с использованием декальцинации на основе ЭДТА
В этой статье
Краткое содержание
Аннотация
Костный мозг (КМ) представляет собой сложную и динамичную структуру, в которой пространственные взаимосвязи влияют на поведение, сигнализацию и функции клеток. В связи с этим полное понимание динамики клеточных взаимодействий требует применения дополнительных методов пространственного анализа, которые позволяют сохранить и картировать архитектуру клеточных популяций in situ. Несмотря на значительные успехи в технологиях анализа единичных клеток, способствовавшие пониманию транскрипционной гетерогенности здоровой и пораженной патологией ткани КМ, пространственная организация различных типов клеток, специфичные для ниш регуляторные программы и их взаимодействия все еще требуют дальнейшего изучения. Современные достижения в области пространственной транскриптомики позволили проводить объективный анализ экспрессии генов с учетом пространственного контекста в различных тканях, что делает эти технологии дополнительными к методам анализа единичных клеток, в которых отсутствует пространственное разрешение. Хотя пространственная транскриптомика широко применяется для мягких тканей, ее использование в минерализованных тканях, таких как КМ, остается ограниченным из-за сложностей, связанных с обработкой костной ткани. Описанный здесь протокол использовался для подготовки образцов здоровых и пораженных тканей мыши и человека, фиксированных формалином и залитых парафином (FFPE). Для сохранения целостности РНК и обеспечения возможности применения пространственной транскриптомики к образцам трубчатых костей включен 10-дневный этап декальцинации на основе этилендиаминтетрауксусной кислоты (EDTA). В данном протоколе описывается подготовка образцов КМ для пространственного транскриптомного анализа, включая обработку, консервацию и секционирование тканей, а также основные этапы оценки качества, такие как проверка целостности срезов, морфологии ткани и качества РНК. Рабочий процесс также поддерживает идентификацию типов клеток и интеграцию с данными транскриптомики единичных клеток для характеристики клеточного состава, определения межклеточных взаимодействий и визуализации пространственного распределения транскрипционно гетерогенных клеток в здоровом и патологическом состояниях. В целом, этот рабочий процесс позволяет подготовить полностью минерализованные здоровые и злокачественные ткани для пространственного транскриптомного анализа с сохранением архитектуры КМ.
Введение
Костный мозг (КМ) представляет собой высокосложный и компартментализированный орган, который служит основным местом гемопоэза и созревания иммунных клеток1,2. Эта гетерогенная ткань состоит из разнообразного набора линий гемопоэтических, мезенхимальных, эндотелиальных и иммунных клеток, которые сосуществуют в высокоспециализированной и организованной трехмерной нише3,4. В этой нише каждая популяция клеток занимает определенные анатомические области, и пространственный контекст играет фундаментальную роль в регуляции поведения, сигналинга и функций клеток4,5. Физическая близость к определенным структурам, таким как трабекулярная кость или сосудистые сети, определяет основные физиологические процессы, включая поддержание состояния покоя гемопоэтических стволовых клеток (ГСК) и ремоделирование кости6,7. Следовательно, это динамичное микроокружение и строго регулируемые взаимодействия между его клеточными и стромальными компонентами формируют регуляторные сети, которые поддерживают гомеостаз и влияют на прогрессирование гематологических злокачественных новообразований8,9,10,11,12,13.
Достижения в области секвенирования РНК единичных клеток (scRNA-seq) революционизировали наше понимание клеточного разнообразия костного мозга (КМ), позволив обнаружить ранее неизвестные подтипы клеток и предсказать их взаимодействия внутри ниши3,10,11,12,14,15,16. Однако транскриптомика единичных клеток, хотя и предоставляет информацию высокого разрешения об отдельных компонентах гемопоэтической ниши, по своей сути ограничена процессом диссоциации ткани, который отделяет клетки от их естественной среды и потенциально изменяет их исходное состояние17, а также отсутствием пространственного контекста, определяющего организацию костной ткани4,18. Эта потеря позиционного контекста делает невозможным точное картирование мест расположения конкретных транскрипционно различных популяций или определение того, как они взаимодействуют с соседними клетками19. Кроме того, плотная костная ткань часто диссоциируется лишь частично, что приводит к недостаточному представлению ключевых клеточных популяций, таких как остеоциты и адипоциты, в наборах данных scRNA-seq и к смещению в представлении гетерогенности ткани20,21. Пространственная транскриптомика позволяет изучать экспрессию генов in situ, в пространственно сохраненных срезах ткани, восстанавливая тем самым контекстную информацию и устраняя ограничения технологий анализа единичных клеток8,19,22,23,24,25,26. Данная технология представляет собой важнейший шаг вперед в этой области, так как она обеспечивает точное пространственное позиционирование и структурную организацию различных клеточных популяций, составляющих КМ, что необходимо для понимания их взаимодействий и функциональных ролей в их естественном микроокружении8,26. Более того, в контексте заболеваний пространственная транскриптомика позволяет исследователям и клиницистам преодолеть разрыв между традиционной патологией и высокопроизводительной геномикой, позволяя накладывать молекулярные данные на морфологические изображения1,8. Технологии пространственной транскриптомики можно разделить на две основные группы: методы на основе секвенирования и методы на основе визуализации17,24. Платформы на основе секвенирования, такие как Visium, Curio Seeker, GeoMx Digital Spatial Profiler (GeoMx DSP), Stereo-seq, Deterministic Barcoding in Tissue sequencing (DBiT-seq) и открытая платформа Open-ST, фиксируют мРНК на массивах или бусинках с пространственными штрихкодами перед секвенированием следующего поколения. Методы на основе визуализации, включая Multiplexed Error-Robust Fluorescence in Situ Hybridization (MERFISH), Molecular Cartography, RNAscope, CosMX и Xenium, напрямую визуализируют транскрипты in situ с помощью мультиплексной гибридизации или химии замок-зондов (padlock probe chemistry)27,28. Кроме того, платформы могут быть классифицированы как таргетные или нетаргетные, в зависимости от того, требуют ли они детекции на основе зондов17,24.
Методы пространственной транскриптомики успешно применяются для исследования мягких тканей, таких как мозг, сердце и печень, где получение интактных гистологических срезов является простой задачей29,30,31. Напротив, внедрение пространственной транскриптомики в исследованиях костной ткани значительно более затруднено из-за ее минерализованной структуры, что требует проведения процесса декальцинации32,33 — контролируемого удаления фосфата кальция для размягчения ткани, что делает возможным ее секционирование и последующий гистологический или молекулярный анализ8,20,23,34. Традиционные методы декальцинации, обычно используемые в клинической практике, чаще всего основаны на применении агрессивных кислотных растворов, таких как соляная, азотная, муравьиная или фосфорная кислоты, которые серьезно нарушают целостность RNA и деградируют морфологию клеток35,36. Такая молекулярная деградация снижает соотношение сигнал/шум в пространственных анализах, что часто приводит к неприемлемо низким показателям детекции генов по сравнению с мягкими тканями8,10. Данное ограничение подчеркивает необходимость в стандартизированных протоколах декальцинации, которые надежно сохраняют целостность mRNA в минерализованных образцах для проведения пространственного анализа на основе секвенирования8,20.
В данном протоколе представлен стандартизированный рабочий процесс подготовки образцов костного мозга (КМ), фиксированных в формалине и залитых парафином (FFPE), для пространственной транскриптомики, который ранее применялся Muiños-Lopez et al.8. Рабочий процесс включает 10-дневный этап декальцинации с использованием этилендиаминтетрауксусной кислоты (EDTA) при контролируемом значении pH. В отличие от агрессивных кислот, EDTA действует как мягкий хелатор, который сохраняет микроскопическую структуру и поддерживает качество нуклеиновых кислот, что обосновывает ее применение в молекулярных исследованиях8,20,33,36,37. В качестве подтверждения концепции протокол был реализован на образцах костной ткани мышиных моделей здоровых животных и животных с множественной миеломой (ММ), а также на образцах КМ человека от здоровых лиц и пациентов с патологиями; в дальнейшем образцы были секвенированы на платформе Visium Spatial Gene Expression38. Рабочий процесс включает стандартизированные процедуры забора тканей из образцов костей человека и мыши, фиксацию, декальцинацию, дегидратацию, заливку парафином и микротомию с последующим комплексным контролем качества, который охватывает оценку целостности срезов, окрашивание гематоксилином и эозином (H&E), оценку качества РНК (DV200) и опциональную иммунофлуоресценцию (ИФ) для верификации типов клеток. Эти подготовительные этапы гарантируют, что только высококачественные срезы будут переданы на последующие этапы пространственной транскриптомики, включая предобработку срезов ткани, конструирование библиотек, секвенирование и последующий контроль качества и анализ данных.
Данная стандартизированная процедура предназначена для подготовки и оценки качества образцов костного мозга человека и мыши для пространственного транскриптомного анализа. Она призвана облегчить исследование нише-специфических регуляторных программ при гематологических и скелетных заболеваниях.
Протокол
Все эксперименты на животных проводились в соответствии с Директивой Европейского союза 2010/63/EU по охране животных, используемых в научных целях, и были одобрены Комитетом по этике работы с животными Университета Наварры (Comité de Ética para la Experimentación Animal; протоколы CEEA082-20 и CEEA039-20). Уход за животными, обращение с ними и эвтаназия осуществлялись в соответствии с законодательством Испании с целью минимизации боли и страданий.
Исследование с участием людей было одобрено Комитетом по этике исследований Медицинского факультета Университета Наварры (Comisión de Ética de Investigación, CEI; проекты 2022.100mod1 и 2023.172) и Комитетом по этике исследований Службы здравоохранения Наварры (CEIm–Departamento de Salud de Navarra; PI_2022/92 MS-1). Все процедуры с участием людей проводились в соответствии с этическими принципами Хельсинкской декларации. Обработка персональных данных осуществлялась конфиденциально в соответствии с Органическим законом Испании 3/2018 о защите персональных данных и гарантии цифровых прав, а также Законом Испании 14/2007 о биомедицинских исследованиях.
ПРИМЕЧАНИЕ: Подробный список реагентов и оборудования, использованных в данном исследовании, приведен в Таблица материаловКомплексная схема экспериментального процесса реализации пространственной транскриптомики в костных тканях представлена на Рисунок 1 и разделен на три операционных этапа: получение образцов, контроль качества (КК) и пространственное транскриптомное профилирование. Получение образцов включает сбор фрагментов кости человека или мыши с последующей фиксацией, декальцинацией с помощью ЭДТА, дегидратацией, заливкой в парафин, а также нарезкой и подготовкой стекол. На этапе КК оценивается гистологическая целостность и сохранность РНК. Валидированные срезы костной ткани затем подвергаются пермеабилизации ткани непосредственно на стекле, подготовке библиотек, секвенированию и анализу данных.
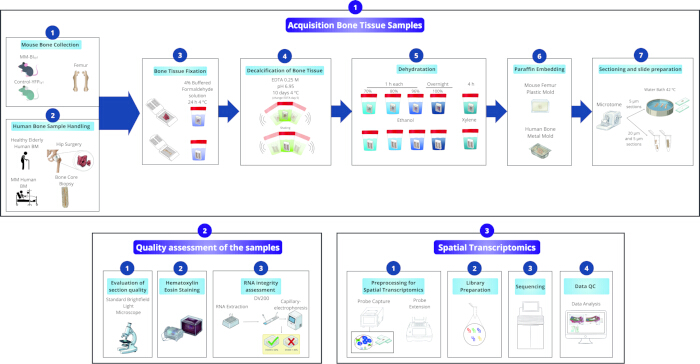
Рисунок 1: Схема сбора образцов и подготовки костных тканей мыши и человека с использованием EDTA. Бедренные кости мышей и образцы костной ткани человека собирают, фиксируют, декальцинируют в EDTA, обезвоживают, заливают в парафин и делают срезы. Качество образцов оценивают с помощью окрашивания гематоксилином и эозином (H&E), а также оценки целостности РНК (DV200), после чего проводят предварительную обработку тканей для пространственной транскриптомики, подготовку библиотек, секвенирование и контроль качества данных. Сокращения: BM = костный мозг; DV200 = процент фрагментов РНК длиннее 200 нуклеотидов; EDTA = этилендиаминтетрауксусная кислота; H&E = гематоксилин и эозин; QC = контроль качества. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
1. Получение и обработка образцов костной ткани
- Сбор костной ткани мышей
- Анестезируйте животных 5% изофлураном и подтвердите потерю рефлексов.
- После полного засыпания проведите эвтаназию путем вывиха шейного позвонка в соответствии с институциональными и нормативными правилами.
ПРИМЕЧАНИЕ: Эвтаназия должна проводиться обученным персоналом; перед началом сбора тканей необходимо подтвердить смерть животного. - Дезинфицируйте кожу, распылив 70% этанол на спинную поверхность мыши, затем с помощью хирургических ножниц сделайте небольшой разрез, чтобы осторожно удалить кожу и обнажить задние конечности.
- Отсеките задние конечности выше тазобедренного сустава и перенесите их в пробирку объемом 50 mL, содержащую 10 mL холодного фосфатно-солевого буферного раствора Дульбекко (DPBS). Поместите пробирку на лед.
- Удалите прикрепленные мышцы и соединительную ткань с помощью стерильного пинцета и скальпеля.
- Перенесите кости в стерильный контейнер объемом 50 mL, предварительно наполненный чистым холодным DPBS, затем поместите контейнер на лед.
- Немедленно приступите к фиксации образцов ткани для сохранения ее целостности.
- Работа с образцами костной ткани человека
- Получите трепан-биоптаты кости или хирургические фрагменты кости в стерильных контейнерах объемом 100 mL.
- Перенесите фрагменты кости в чистый стерильный контейнер объемом 100 mL, предварительно наполненный холодным DPBS, затем поместите его на лед.
- Немедленно приступите к фиксации образцов для сохранения целостности ткани.
ПРЕДОСТЕРЕЖЕНИЕ: Работа с образцами человеческого материала должна проводиться в условиях уровня биобезопасности BSL 2.
- Фиксация костной ткани
- Возьмите контейнер объемом 50 mL или 100 mL с образцом кости и слейте DPBS.
- Промаркируйте пластиковые кассеты и поместите образцы кости в отдельные кассеты. Плотно закройте крышки, чтобы предотвратить потерю ткани в процессе последующей обработки.
ПРИМЕЧАНИЕ: Для образцов мышей помещайте одну кость в кассету. Для образцов кости человека, при необходимости, используйте стерильный скальпель, чтобы разрезать ткань на фрагменты, достаточно малые для размещения в стандартных кассетах, и помещайте один фрагмент в одну кассету. Если образцы кости человека слишком твердые для разрезания на этом этапе, их можно оставить целыми и перенести в раствор для декальцинации; после декальцинации размягченную ткань можно будет разрезать на фрагменты соответствующего размера и поместить в промаркированные кассеты. - Добавьте 4% буферный раствор формальдегида в соотношении образца к фиксатору 1:20 и инкубируйте образец в течение 24 h при 4 °C.
ПРЕДОСТЕРЕЖЕНИЕ: Работайте с фиксатором в вытяжном шкафу из-за его токсичности и летучих паров.
ПРИМЕЧАНИЕ: Избегайте избыточной фиксации (>48 h), так как это снижает целостность РНК в рабочих процессах с FFPE-образцами39.
- Декальцинация минерализованной костной ткани
- Слейте формалин и промойте образец кости ультрачистой водой. Прополощите водой, кратковременно перемешайте и слейте жидкость, чтобы удалить остатки формалина.
- Приготовьте 0,25 M раствор EDTA в ультрачистой воде и доведите pH до 6,95.
ПРИМЕЧАНИЕ: Хотя в традиционных протоколах декальцинации pH EDTA часто доводят до 8,0, в данном рабочем процессе используется EDTA с pH приблизительно 6,95 для обеспечения эффективного хелатирования при сохранении морфологии ткани и качества РНК8. - Добавьте раствор EDTA в контейнер с образцом кости и инкубируйте в течение 10 дней при 4 °C при осторожном перемешивании.
ПРИМЕЧАНИЕ: Для образцов мышей обычно достаточно примерно 50 mL раствора EDTA. Для образцов кости человека обычно используют около 100 mL. Однако этот объем может быть скорректирован в зависимости от размера кости, чтобы обеспечить полное погружение и эффективную декальцинацию. - После 5 дней декальцинации слейте раствор EDTA и замените его таким же объемом свежего раствора EDTA, так как хелатирующая способность со временем насыщается. Продолжите инкубацию в тех же условиях.
- После 10 дней инкубации слейте раствор EDTA и оцените полноту декальцинации.
- Сделайте небольшой надрез стерильным скальпелем или введите тонкую стерильную иглу в угол или периферическую область ткани, выбирая участок с низкой аналитической значимостью, чтобы не повредить интересующие области. Поместите кость в стерильную чашку Петри для стабилизации образца при надрезании или введении иглы. Если ткань легко режется или игла проходит с минимальным сопротивлением, образец считается достаточно декальцинированным.
- В случае с бедренными костями мышей осторожно согните кость пинцетом, чтобы оценить ее гибкость, что является надежным индикатором полного удаления минералов.
ПРИМЕЧАНИЕ: Продолжительность этапа декальцинации зависит от размера и толщины образца кости, а также от используемого объема EDTA. Если кость остается твердой после начального периода инкубации, продолжайте декальцинацию до тех пор, пока ткань не станет достаточно мягкой для легкого разрезания. Чрезмерное продление этого этапа может ухудшить качество ткани и целостность РНК, поэтому продление должно быть ограничено минимальным временем, необходимым для достижения достаточного размягчения20.
- Дегидратация
- Промойте образец, добавив ультрачистую воду в контейнер с костью, затем инкубируйте в течение 5 min при 4 °C при перемешивании.
- Слейте воду и замените ее 70% раствором этанола. Инкубируйте в течение 1 h при 4 °C.
ПРИМЕЧАНИЕ: Этот этап может служить точкой остановки. Образцы можно хранить в 70% этаноле при 4 °C перед переходом к следующим шагам. Максимальный срок хранения в данном протоколе экспериментально не подтвержден, поэтому пользователям следует руководствоваться стандартной практикой своей лаборатории. - Последовательно дегидратируйте образец в растворах этанола возрастающей концентрации (70%, 80%, 96%; по 1 h каждый при 4 °C), затем в 100% этаноле в течение ночи при 4 °C.
- Слейте 100% этанол и замените его ксилолом. Инкубируйте в течение 4 h при комнатной температуре (RT).
- Слейте ксилол и поместите кассету с образцом в стеклянную емкость с расплавленным чистым парафином. Инкубируйте в расплавленном парафине в течение ночи при 60 °C.
ПРИМЕЧАНИЕ: При наличии систем обработки с вакуумным усилением можно использовать более короткое время инфильтрации, так как такие устройства способствуют более эффективному проникновению парафина40,41,42.
ПРЕДОСТЕРЕЖЕНИЕ: Все этапы, включающие работу с ксилолом и градуированными растворами этанола, должны выполняться в вытяжном шкафу для обеспечения надлежащей вентиляции и минимизации воздействия токсичных и легковоспламеняющихся паров.
- Заливка парафином
ПРИМЕЧАНИЕ: Очистите поверхности станции для заливки раствором для деконтаминации РНКаз, чтобы предотвратить деградацию РНК.- Включите станцию для заливки и предварительно нагрейте резервуар для парафина, ванну для кассет с парафином, ванну для форм с парафином и подогревающую пластину для форм до 60 °C. Активируйте охлаждающую пластину, чтобы она остыла перед началом заливки.
- Дождитесь полного расплавления парафина, и только после этого поместите кассеты с инфильтрированными парафином образцами в ванну для кассет. Инкубируйте в течение 2 h для полного удаления ксилола перед заливкой.
- Поместите все необходимые формы в ванну для форм с парафином.
ПРИМЕЧАНИЕ: Для образцов человека используйте стандартные металлические формы для заливки. Для образцов мышей используйте пластиковые формы, совместимые с платформой Visium, которые имеют квадратную полость с размерами, подходящими для правильного размещения среза на слайдах Visium. Поскольку целые кости мыши не помещаются полностью в квадратную полость таких форм, непосредственно перед заливкой разрежьте кости стерильным скальпелем, чтобы получить фрагменты подходящего размера. В одну форму можно залить один или два фрагмента кости, в зависимости от их размеров. - Создайте тонкий базовый слой свежего парафина, dispensed расплавленный парафин из центрального отверстия станции для заливки.
- Откройте кассету и аккуратно перенесите ткань из кассеты в форму с помощью теплого пинцета.
- Поместите заполненную парафином форму на подогревающую пластину и, пока парафин остается жидким, ориентируйте ткань в нужной плоскости среза с помощью теплого пинцета.
- Поместите форму на холодную поверхность станции для заливки, чтобы временно зафиксировать положение фрагмента кости.
- Полностью заполните форму расплавленным парафином из дозатора, убедившись, что ткань полностью покрыта и не осталось крупных пузырьков воздуха.
- Поместите промаркированную кассету сверху на форму, чтобы она стала основанием парафинового блока.
- Перенесите форму с прикрепленной кассетой на охлаждающую пластину станции для заливки. Дайте парафину полностью затвердеть в течение 10 min, пока блок не станет непрозрачным и твердым.
- После затвердевания извлеките парафиновый блок из формы и храните его при 4 °C до момента изготовления срезов.
ПРИМЕЧАНИЕ: Этот этап может служить точкой остановки. Парафиновый блок можно хранить при 4 °C; однако, по возможности, изготовление срезов ткани и последующий пространственный транскриптомный анализ следует проводить как можно скорее после заливки, чтобы минимизировать деградацию РНК при хранении43,44.
- Изготовление срезов и подготовка слайдов
ПРИМЕЧАНИЕ: Очистите микротом и водяную баню раствором для деконтаминации РНКаз, чтобы предотвратить деградацию РНК.- Наполните водяную баню дистиллированной водой и предварительно нагрейте ее до 42 °C. Включите микротом и установите новое лезвие. Промаркируйте предметные стекла карандашом.
- Закрепите парафиновый блок в держателе для образцов, убедившись, что кассета ориентирована в соответствии с желаемой продольной плоскостью среза.
ПРИМЕЧАНИЕ: Подготовьте пластиковый пакет со льдом; если резание затруднено из-за мягкости парафина, положите пакет со льдом непосредственно на блок, пока он закреплен в микротоме, зафиксировав его резинкой на несколько минут, чтобы уплотнить парафин и улучшить качество срезов. - Установите толщину среза на микротоме на 20 µm и выполните обрезку.
- Измените настройку микротома на 5 µm. Соберите четыре среза толщиной 5 µm в промаркированную безРНказную микроцентрифужную пробирку объемом 1,5 mL. Держите пробирку на сухом льду и храните при -80 °C.
- Продолжайте делать срезы толщиной 5 µm и помещайте ленты срезов в водяную баню. Как только срез полностью расправится и станет ровным, подберите его промаркированным стеклом.
- Через определенное количество срезов (например, каждые 5-10 лент, в зависимости от размера ткани) собирайте дополнительные 4 среза толщиной 5 µm в новую промаркированную пробирку объемом 1,5 mL. Повторяйте этот процесс до получения в общей сложности трех пробирок объемом 1,5 mL со срезами 5 µm.
ПРИМЕЧАНИЕ: Если ткань трескается, ломается или не получается получить непрерывный срез, это означает, что образец декальцинирован не полностью и требует дополнительного времени декальцинации. Восстановите образец, выполнив шаги рабочего процесса в обратном порядке до этапа декальцинации. Для этого расплавьте парафиновый блок при 60 °C в течение примерно 2 h и перенесите образец в ксилол (2 h). Регидратируйте образец с помощью градуированных растворов этанола (100%, 96%, 80%, 70%) с последующим использованием дистиллированной воды. Верните регидратированный образец в свежий 0,25 M раствор EDTA (pH 6,95) и продлите период декальцинации по мере необходимости, прежде чем приступить к дегидратации, повторной заливке и изготовлению срезов. Эта процедура восстановления должна использоваться строго как крайняя мера, так как обращение процесса FFPE может ухудшить целостность РНК.
- Через определенное количество срезов (например, каждые 5-10 лент, в зависимости от размера ткани) собирайте дополнительные 4 среза толщиной 5 µm в новую промаркированную пробирку объемом 1,5 mL. Повторяйте этот процесс до получения в общей сложности трех пробирок объемом 1,5 mL со срезами 5 µm.
- Поместите слайды в термостат при 37 °C на ночь для испарения остатков воды, затем храните их при 4 °C.
- Для улучшения адгезии ткани при желании подвергните слайды прогреву в течение 3 h при 42 °C перед инкубацией в течение ночи при 37 °C.
ПРИМЕЧАНИЕ: Этот этап обычно не требуется при использовании предметных стекол, указанных в Таблице материалов, так как эти стекла обеспечивают сильную адгезию и ткань обычно остается прочно прикрепленной на протяжении всей обработки. Этот этап может служить точкой остановки. Слайды можно хранить при 4 °C; однако, по возможности, последующий пространственный транскриптомный анализ следует проводить как можно скорее после заливки, чтобы минимизировать деградацию РНК при хранении43,44.
2. Оценка качества образца
- Оценка качества срезов
- Изучите все срезы по одному с помощью стандартного светового микроскопа в режиме светлого поля (4×–10×). Осмотрите каждый предметный стеклом, чтобы убедиться в отсутствии фрагментации срезов, и зафиксируйте качество каждого из них.
ПРИМЕЧАНИЕ: Проверьте наличие складок, морщин, сжатий или «дробления» (chatter marks), которые могут указывать на проблемы с твердостью парафина, остротой лезвия или неполным декальцинатом. Убедитесь, что участки ткани не отсутствуют из-за отслоения при нарезке или переносе на водяную баню. - Выберите наиболее хорошо сохранившиеся срезы для пространственной транскриптомики (наиболее полные, с лучшей морфологией).
- Определите последовательные срезы, прилегающие к выбранным, и зарезервируйте их для окрашивания гематоксилином и эозином (H&E) и иммунофлуоресценции (IF), чтобы окрашенное изображение максимально соответствовало ткани, которая будет подвергнута секвенированию.
- Изучите все срезы по одному с помощью стандартного светового микроскопа в режиме светлого поля (4×–10×). Осмотрите каждый предметный стеклом, чтобы убедиться в отсутствии фрагментации срезов, и зафиксируйте качество каждого из них.
- Окрашивание H&E для оценки целостности ткани
- Поместите стекла в штатив для окрашивания и инкубируйте их в течение 15 мин при 60 °C.
- Перенесите штатив в стеклянные стаканы для окрашивания с ксилолом на 15 мин.
- Регидратируйте срезы, последовательно перемещая штатив через стаканы с 100%, 96%, 80% и 70% этанолом, инкубируя по 5 мин в каждом растворе.
ПРЕДОСТЕРЕЖЕНИЕ: Все этапы с использованием ксилола и растворов этанола разных концентраций должны проводиться в химическом вытяжном шкафу для обеспечения надлежащей вентиляции и минимизации воздействия токсичных и легковоспламеняющихся паров. - Промойте стекла в течение 5 мин в стакане с водой.
- Погрузите штатив в гематоксилин на 10 мин, затем промойте под проточной водой до тех пор, пока промывочная вода не станет прозрачной.
- Погрузите штатив в воду, содержащую пять капель концентрированной соляной кислоты, осторожно перемешивая до появления красноватого оттенка.
- Перенесите штатив в воду, насыщенную карбонатом лития, до появления стабильного синего окрашивания, затем коротко промойте в воде.
- Окрасьте срезы 1% (масс/об) раствором эозина в течение 5 мин, затем снова промойте в воде.
- Дегидратируйте стекла, последовательно перемещая штатив через стаканы с водой, 70%, 80%, 96% и 100% этанолом, инкубируя по 5 мин в каждом растворе.
- Проведите прозрачивание стекол в ксилоле в течение 15 мин.
- Осторожно просушите обратную сторону каждого стекла, нанесите среду для заключения на покровное стекло и закройте срезы. Оставьте стекла высыхать при RT в течение 24 ч перед получением изображений.
- Выполните визуализацию ткани с помощью микроскопа высокого разрешения при 20-кратном увеличении.
ПРИМЕЧАНИЕ: Сначала проведите окрашивание H&E на прилегающих срезах в качестве этапа контроля качества для оценки пригодности образца для пространственной транскриптомики. После отбора проведите повторное окрашивание H&E непосредственно на срезе, предназначенном для пространственной транскриптомики, следуя руководству производителя по подготовке тканей для платформы анализа пространственной экспрессии генов, указанной в Таблице материалов.
- Оценка целостности РНК (DV200)
ПРИМЕЧАНИЕ: Для протокола анализа пространственной экспрессии генов традиционный индекс целостности РНК (RIN) неэффективен, так как пики рибосомальной РНК 18S и 28S в фиксированных тканях обычно отсутствуют. Поэтому метрика DV200, определяемая как процент фрагментов РНК длиной более 200 нуклеотидов, обычно используется как более информативный параметр качества, чем RIN, для деградированных клинических образцов. Для Visium v2 компания 10x Genomics рекомендует использовать блоки FFPE со значением DV200 ≥ 30% для обеспечения эффективной гибридизации зондов и оптимальной работы анализа. Выбор блоков ткани с максимально возможными значениями DV200 помогает предотвратить выпадение данных при секвенировании и максимально повысить чувствительность спотов.- Возьмите пробирки объемом 1,5 mL, содержащие срезы толщиной 5 µm, собранные на этапе нарезки ткани, и поместите их на лед для экстракции РНК.
- Экстрагируйте общую РНК. Эта стандартизированная процедура включает депарафинизацию образца, обработку протеиназой K для разрыва формалиновых сшивок, удаление геномной ДНК с помощью DNase I и финальное элюирование очищенной РНК в воде, свободной от РНКаз.
- Оцените целостность РНК с помощью системы на основе капиллярного электрофореза с использованием высокочувствительного анализа РНК. Краткое описание рабочего процесса приведено в Дополнительном файле 142,45,46,47,48.
- Опциональная IF для верификации типов клеток
- Поместите стекло FFPE в штатив для окрашивания и инкубируйте его в течение 15 мин при 60 °C.
- Перенесите штатив в стеклянные стаканы для окрашивания с ксилолом на 15 мин.
- Регидратируйте срез, последовательно перемещая штатив через 100%, 96%, 80% и 70% этанол по 2 мин в каждом, затем 5 мин в воде и 5 мин в PBS-Tween (1x PBS с добавлением 0,1% Tween-20).
ПРЕДОСТЕРЕЖЕНИЕ: Все этапы с использованием ксилола и этанола должны проводиться в химическом вытяжном шкафу. - Проведите восстановление антигенов в соответствии с рекомендациями производителя для первичных антител, убедившись, что буфер восстановления, pH и условия нагрева соответствуют паспорту антител. ПРИМЕЧАНИЕ: В данном рабочем процессе восстановление антигенов проводится с использованием 10 mM Tris и 1 mM EDTA, pH 9,0, в системе нагрева в виде котла в течение 30 мин при 95 °C, с последующим охлаждением в течение 20 мин при RT.
- Промойте стекло дважды по 10 мин каждый раз в PBS-Tween.
- Нанесите гидрофобный барьер вокруг ткани с помощью специального маркера и заблокируйте неспецифическое связывание, нанеся 5% BSA в 1x DPBS на срезы ткани минимум на 40 мин при RT в увлажненной камере.
ПРИМЕЧАНИЕ: Увлажненная камера подготавливается путем размещения листа фильтровальной бумаги в пластиковом боксе для окрашивания стекол и его тщательного увлажнения дистиллированной водой для поддержания стабильной влажной среды во время инкубации с антителами. - Приготовьте раствор первичных антител в 1x DPBS в рекомендованном разведении для каждого антитела.
ПРИМЕЧАНИЕ: В данном рабочем процессе для идентификации эндотелиальных клеток (EC) и мезенхимальных стволовых клеток (MSC) мыши использовались первичные антитела против Emcn (V.7C7) и Cd271 (ME20.4) соответственно, а для идентификации их человеческих аналогов — антитела против CD31 (JC70A) или PRRX1 (поликлональные), согласно протоколу производителя. - Удалите блокирующий раствор, осторожно промакивая край стекла абсорбирующей бумагой для удаления остаточных капель, затем нанесите смесь первичных антител и инкубируйте стекло в течение ночи при 4 °C в увлажненной камере.
- Промойте стекло дважды по 5 мин в PBS-Tween и приготовьте раствор вторичных антител в разведении, рекомендованном производителем, убедившись, что флуорофоры спектрально совместимы и не перекрываются.
ПРИМЕЧАНИЕ: В данном рабочем процессе использовались вторичные антитела, конъюгированные с Alexa Fluor, в разведении 1:200. - Нанесите смесь вторичных антител и инкубируйте в течение 30 мин при RT в увлажненной камере в защищенном от света месте.
- Промойте стекло дважды по 5 мин в PBS-Tween.
- Нанесите разведение 1:10 среды для заключения, содержащей DAPI (см. Таблицу материалов), приготовленной в растворе PBS–глицерина 1:1, и инкубируйте образец в течение 5 мин.
- Закройте срез покровным стеклом и загерметизируйте края лаком для ногтей, чтобы предотвратить высыхание.
- Визуализируйте окрашенную ткань с помощью мультиспектральной платформы имиджинга.
Дополнительный файл 1: Резюме этапов протокола для оценки целостности РНК и рабочего процесса пространственной транскриптомики Visium. В данном дополнительном файле представлено подробное резюме процедурных этапов, выполненных в соответствии с инструкциями производителя. Он включает: (i) анализ High Sensitivity RNA ScreenTape, используемый для оценки целостности РНК (DV200), как описано в этапе 2.3.3 основного протокола, и (ii) обзор рабочего процесса Visium CytAssist Spatial Gene Expression, охватывающий предварительную подготовку тканей, подготовку библиотек и секвенирование (этапы 3.1–3.3 основного протокола).Пожалуйста, нажмите здесь, чтобы скачать этот файл.
3. Пространственная транскриптомика
ПРИМЕЧАНИЕ: Выполняйте рабочий процесс пространственной транскриптомики, используя платформу и реагенты, перечисленные в Таблице материалов, в соответствии с соответствующими руководствами пользователя42,45,46. В Дополнительном файле 1 обобщены основные этапы предварительной обработки тканей, подготовки библиотек и секвенирования.
- Контроль качества данных пространственной транскриптомики
- Выполните демультиплексирование данных пространственной транскриптомики с использованием стандартного конвейера для наборов данных Visium (см. Таблицу материалов).
- Картируйте риды на соответствующий референсный геном Ensembl 105.
ПРИМЕЧАНИЕ: Для образцов человека использовался GRCh38, для образцов мыши — mm10. - Сгенерируйте отфильтрованные матрицы признаков и штрихкодов с помощью того же конвейера и импортируйте их в среду для последующего анализа отдельных клеток и пространственного анализа (см. Таблицу материалов).
- Осмотрите изображения H&E в интерфейсе визуализации, предоставляемом конвейером пространственной транскриптомики (см. Таблицу материалов), и вручную удалите споты, которые перекрывают область кортикальной кости или костную ткань, в зависимости от набора данных.
- Нормализуйте наборы данных с помощью метода стабилизирующего дисперсию преобразования, который обычно применяется в рабочих процессах анализа отдельных клеток (см. Таблицу материалов).
Результаты
Для оценки применимости данного рабочего процесса на основе ЭДТА для различных видов и патологических состояний протокол был применен к четырем образцам костного мозга: двум бедренным костям мыши и двум образцам костей человека, представляющим здоровое состояние и состояние при множественной миеломе (ММ) (Таблица 1 и Рисунок 1).
| Идентификация образцов | Виды | Пол | Возраст | Заболевание |
| YFPcγ1 | Мышь | Самка | 210 дней | Здоровый |
| мМ | Мышь | Самец | 314 дней | ММ |
| hHBM | Человек | Самец | 76 лет | Здоровый |
| hMM | Человек | Самка | 50 лет | ММ |
Таблица 1: Образцы костной ткани мышей и человека, включенные в исследование. Для каждого образца указаны вид, пол, возраст и состояние здоровья. Сокращения: hHBM = здоровый костный мозг человека; hMM = множественная миелома человека; mMM = множественная миелома мыши; MM = множественная миелома; YFPcγ1 = контрольная мышь (здоровая).
Образцы, использованные в данном исследовании, были ранее охарактеризованы и описаны в предыдущих публикациях исследовательской группы, в частности в работах Muiños-Lopez et al. и Cenzano et al., за исключением образца мыши MM. Для ранее описанных образцов данные и результаты пространственной транскриптомики представлены в тех исследованиях8,10. Таким образом, материал, включенный здесь, используется для оценки технической пригодности протокола для пространственной транскриптомики, а не для представления новых биологических данных.
Образцы бедренных костей мышей были получены от генетически модифицированной модели мышей с множественной миеломой (MM) BIC (BIcγ1), которая воспроизводит клинические и иммунологические характеристики пациентов с MM, а также от соответствующих здоровых мышей контроля (YFPcγ1)8,49. У каждого животного была извлечена одна бедренная кость, очищена и обработана в соответствии со стандартизированным протоколом (Рисунок 2A). Бедренные кости были выбраны для данных анализов, поскольку они характеризуются достаточным количеством костного мозга, превосходным качеством ниши и простотой воспроизводимой обработки, что делает их подходящими для платформы пространственной транскриптомики на основе секвенирования8,10. Успешная декальцинация бедренной кости мыши контроля была подтверждена макроскопически по заметному увеличению гибкости ткани при ручном манипулировании пинцетом (Рисунок 2B). Впоследствии этот фрагмент кости был эффективно залит в парафин с использованием специальной формы, совместимой с пространственной транскриптомикой, для сохранения целостности РНК и архитектуры ткани для последующего молекулярного анализа (Рисунок 2C).
Также были проанализированы два образца костного мозга (КМ) человека с различной историей обработки8,10. Образец свежего КМ гематологически здорового человека был получен из хирургических отходов при проведении ортопедического эндопротезирования тазобедренного сустава в Hospital Universitario de Navarra (Рисунок 2D–F). Чтобы продемонстрировать трансляционную применимость протокола, этот образец обрабатывали так же, как и образцы мышей. В соответствии с результатами, полученными на тканях мыши, успешная декальцинация человеческой кости с помощью EDTA была подтверждена макроскопически по полному размягчению ткани, о чем свидетельствовало легкое проникновение иглы (Рисунок 2E). Декальцинированный фрагмент человеческой кости был успешно залит в парафин с использованием стандартной металлической формы для последующей обработки (Рисунок 2F). Второй образец человека представлял собой архивные биопсии КМ из гребня подвздошной кости пациента с множественной миеломой (ММ), хранящиеся в отделении патологии Clínica Universidad de Navarra (CUN). Примечательно, что этот архивный образец с ММ был предварительно декальцинирован с использованием стандартного клинического протокола с применением сильных кислот36. Данный образец обеспечивает качественный контраст с образцами, обработанными EDTA; однако различия в источнике ткани, истории фиксации, условиях хранения и методе декальцинации означают, что наблюдаемые различия не могут быть приписаны исключительно воздействию декальцинирующего агента.
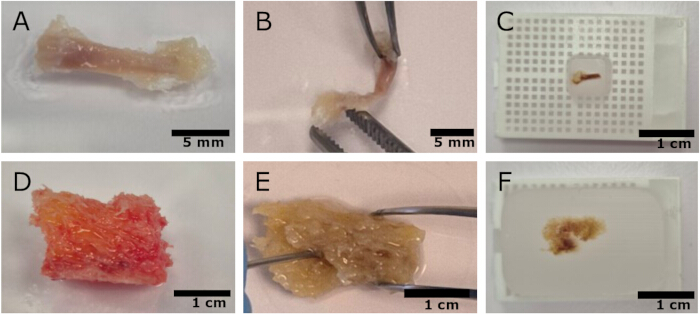
Рисунок 2: Образцы костей мыши и человека в процессе подготовки с использованием EDTA. (A) Целые контрольные бедренные кости мыши до декальцинации. (B) Декальцинированная контрольная бедренная кость мыши, демонстрирующая повышенную гибкость. (C) Контрольные фрагменты кости мыши, залитые в парафин. (D) Фрагменты здоровой кости человека, полученные в ходе операции на тазобедренном суставе, до декальцинации. (E) Тот же фрагмент после декальцинации EDTA, демонстрирующий проникновение иглы. (F) Декальцинированная с помощью EDTA здоровая кость человека, залитая в парафин. Масштабные отрезки: (A, B) 5 mm; (C–F) 1 cm. Сокращение: EDTA = этилендиаминтетрауксусная кислота. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
Для анализа общей архитектуры ткани было выполнено окрашивание гематоксилином и эозином (H&E) (Рисунок 3). Более высокая степень сохранности морфологии, наблюдаемая в срезах мыши, может отражать различия в обращении с образцами и их обработке, а не присущие конкретным видам особенности. Бедренные кости мышей собирались специально для пространственной транскриптомики и обрабатывались немедленно в виде целых костей, что позволило сохранить их архитектуру (Рисунок 3A, B). Напротив, образцы человека были получены либо из остаточного материала в ходе операции по замене тазобедренного сустава (Рисунок 3C) , либо из диагностических биоптатов кости при множественной миеломе (MM) (Рисунок 3D); в обоих случаях преаналитическое качество ткани могло быть различным. В результате морфологические различия между декальцинированным EDTA-методом образцом человека и декальцинированным кислотой биоптатом при MM незначительны, поскольку оба человеческих образца уже имеют базовые структурные ограничения, вызванные не только декальцинацией, но и общей обработкой ткани (Рисунок 3C, D). Следовательно, для комплексной оценки качества образцов для пространственной транскриптомики требуется анализ нескольких различных параметров. Во-первых, необходимо тщательно контролировать целостность ткани, так как сохранность структуры может существенно варьироваться в зависимости от конкретного типа образца, а не только от используемой кислоты для декальцинации. Во-вторых, следует оценить качество РНК, поскольку условия декальцинации могут влиять на него20,35,36.
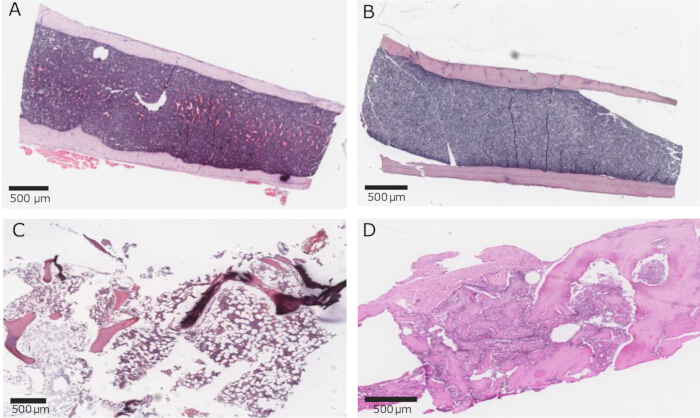
Рисунок 3: Срезы, окрашенные гематоксилином и эозином (H&E), используемые для оценки качества тканей. Последовательные срезы FFPE соответствуют (A) здоровой контрольной мыши10, (B) мыши с MM, (C) здоровой кости человека8,10 и (D) биоптату MM человека8. Масштабные отрезки = 500 µm. Сокращения: FFPE = формалин-фиксированный, парафин-залитый; H&E = гематоксилин и эозин; MM = множественная миелома. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
Для дополнения гистологического анализа была проведена оценка качества РНК. В то время как окрашивание гематоксилином и эозином (H&E) выявило неоднозначные различия, целостность РНК четко дифференцировала эффекты двух методов декальцинации (Таблица 2). Значения DV200 как в образцах мышей, так и в образце здоровой кости человека превысили порог, рекомендуемый для анализов Visium FFPE, что указывает на достаточное распределение длин фрагментов РНК для гибридизации зондов и конструирования библиотек. Образец здоровой мыши YFP имеет DV200 82.55%, а образец здоровой кости человека (hHBM) достигает 58%, что значительно выше порога приемлемости в 30%, определенного компанией 10x Genomics. Образец мыши с множественной миеломой (mMM) демонстрирует DV200 31.3%, что близко к нижнему пределу приемлемости; это может быть следствием длительного хранения парафинового блока при 4 °C перед срезанием, наряду с другими факторами, специфичными для образца. Напротив, биопсия человека с множественной миеломой (hMM), подвергнутая кислотной декальцинации, имеет DV200 всего 8%, что было связано с заметно более низкой целостностью РНК, даже при менее выраженном морфологическом ухудшении. Таким образом, проведение как структурной, так и молекулярной оценки имеет важное значение для определения пригодности образцов для последующего пространственного анализа.
| Идентификация образцов | DV200 (%)1 |
| YFPcγ1 | 82.55 |
| мМ | 31.3 |
| hHBM | 58 |
| hMM2 | 8 |
| 1DV200: Процент всех фрагментов РНК > 200 нуклеотидов. | |
| 2Данный образец был подвергнут декальцинации с использованием стандартного клинического протокола с применением сильных кислот. | |
Таблица 2: Качество РНК исследуемых образцов. DV200 представляет собой процент фрагментов РНК длиной более 200 нуклеотидов; значения не менее 30% считались подходящими для последующего пространственного транскриптомного анализа. Сокращения: hHBM = здоровый костный мозг человека; hMM = множественная миелома человека; mMM = множественная миелома мыши.
Также могут быть проведены дополнительные оценки качества. Для дальнейшего подтверждения целостности тканей и сохранения специфических клеточных компартментов после декальцинации ЭДТА было выполнено опциональное окрашивание методом иммунофлуоресценции (IF) на соседних FFPE-срезах тканей мыши и человека. Антитела к эндомуцину (Emcn) и Cd271 использовались для визуализации эндотелиальных клеток (EC) и мезенхимальных клеток (MSC) соответственно в образце мыши с множественной миеломой (MM) (Рисунок 4A). Данное окрашивание показало, что ткани, обработанные ЭДТА, имели четко выраженные сосудистые структуры с непрерывным окрашиванием на Emcn и сохранные стромальные сети, что свидетельствует о том, что тестируемые маркеры оставались определяемыми после обработки. Кроме того, визуализация с высоким разрешением с использованием автоматизированной мультиспектральной системы визуализации предоставила дополнительные доказательства того, что тестируемые антигены оставались определяемыми для верификации типов клеток, обеспечивая дополнительный уровень контроля качества перед пространственным транскриптомным анализом. Кроме того, эти результаты наблюдались и в здоровых образцах тканей пожилых людей, в которых экспрессия EC также определялась с помощью антител к CD31, а MSC — с помощью антител к PRRX1 (Paired Related Homeobox 1), что показало, что тестируемые маркеры ниши оставались идентифицируемыми после декальцинации ЭДТА (Рисунок 4B). Напротив, эти результаты не удалось воспроизвести на биоптатах MM человека, подвергнутых различным протоколам декальцинации на основе кислот. Как упоминалось ранее, целостность РНК в этих образцах была низкой, что ограничивало последующий транскриптомный анализ. Из-за деградированного состояния этих человеческих образцов их дальнейшее использование было ограничено базовым транскриптомным профилированием8 и иммуногистохимической (IHC) оценкой злокачественных плазматических клеток (PC) (Рисунок 4C).
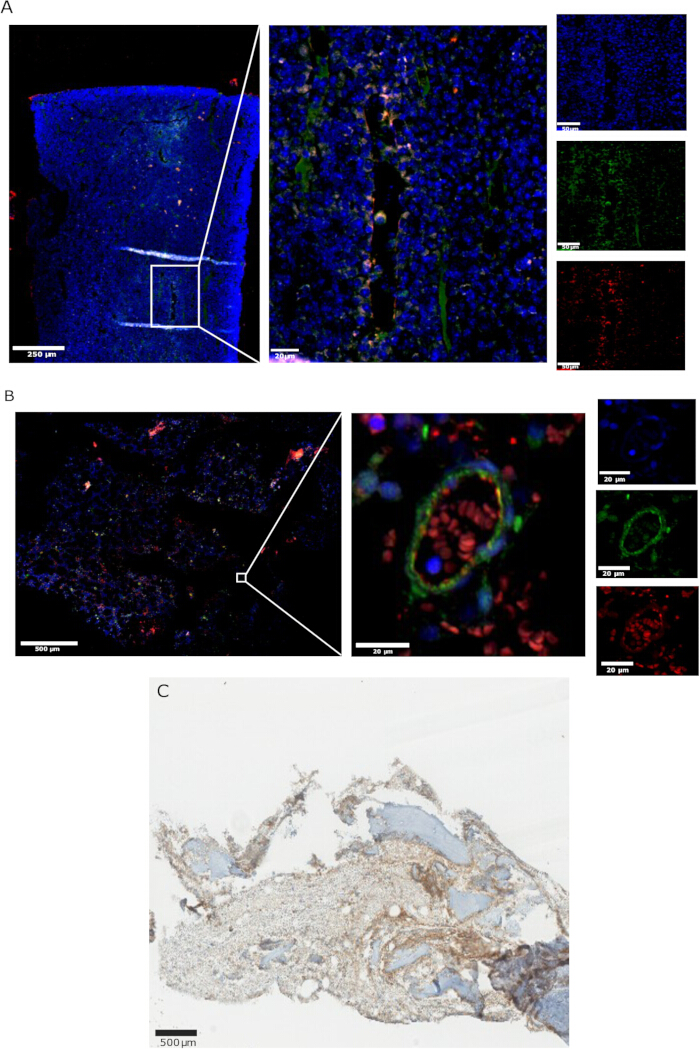
Рисунок 4: Дополнительный иммунофлуоресцентный и иммуногистохимический анализ для верификации типов клеток. (A) Ткань ММ мыши с окрашиванием ядер DAPI (синий), CD271-положительных МСК (зеленый) и EMCN-положительных ЭК (красный). (B) Здоровая костная ткань человека с окрашиванием ядер DAPI (синий), PRRX1-положительных МСК (зеленый) и CD31-положительных ЭК (красный)10. (C) Биоптат ММ человека с окрашиванием CD138-положительных злокачественных ПК8. Масштабные отрезки: (A) 250 µm (обзор), 20 µm (комбинированное увеличение) и 50 µm (изображения в одном канале); (B) 500 µm (обзор) и 20 µm (комбинированное и одноканальное увеличения); (C) 500 µm. Сокращения: DAPI = 4′,6-диамидино-2-фенилиндол; ЭК = эндотелиальная клетка; ММ = множественная миелома; МСК = мезенхимальная стромальная клетка; ПК = плазматическая клетка. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
В совокупности морфология тканей и результаты DV200 подтверждают пригодность образцов, обработанных ЭДТА, для последующего анализа пространственной транскриптомики. Применение данного рабочего процесса подготовки для пространственной транскриптомики было описано ранее8,10.
Обсуждение
Благодаря интеграции контролируемой декальцинации на основе EDTA, стандартизированной обработки FFPE-блоков и строгих контрольных точек контроля качества, данный протокол преодолевает многие ограничения, традиционно связанные с подготовкой костной ткани для пространственной транскриптомики, в частности те, которые касаются деградации РНК и морфологических повреждений, вызванных методами декальцинации на основе сильных кислот8,10,20,33,36. Самым критическим этапом обработки минерализованных образцов для пространственной транскриптомики является декальцинация. Недостаточная декальцинация приводит к тому, что кость остается слишком жесткой для микротомии, что делает физически невозможным получение высококачественных срезов для пространственной транскриптомики8,20,23,37,50. Если костная ткань остается слишком твердой, она крошится или вибрирует при контакте с лезвием микротома, что приводит к разрывам срезов или появлению пустот, которые неточно отражают нативную архитектуру костного мозга. Важно отметить, что успех декальцинации невозможно полностью подтвердить до этапа микротомии: даже образцы, которые кажутся размягченными, могут содержать остаточные минералы, которые обнаруживаются только при попытке изготовления тонких FFPE-срезов. По этой причине тщательный мониторинг процесса декальцинации имеет важное значение для обеспечения воспроизводимых результатов.
В данном рабочем процессе используется 0.25 M EDTA при pH 6.95 в течение 10 дней при постоянном перемешивании и замене раствора на пятый день8,10. В ходе разработки протокола оценивались EDTA в чистом виде, EDTA с добавлением поливинилпирролидона и 10% муравьиная кислота, а также различные сроки декальцинации и графики замены раствора; сравнительные данные здесь не представлены. Сроки менее 10 дней часто приводили к разрыву тканей при изготовлении срезов образцов мышей, в то время как поведение образцов человека зависело от конкретного образца. Таким образом, для бедренных костей мышей используется 10-дневный период, тогда как образцы человека могут потребовать более длительной декальцинации в зависимости от плотности и содержания трабекул. Перед заливкой в парафин следует использовать контрольные точки физического контроля качества. Если в процессе микротомии обнаружится недостаточная декальцинация, используйте процедуру повторной обработки только в качестве крайней меры спасения, так как дополнительный нагрев, воздействие растворителя и регидратация могут ухудшить качество RNA.
Основным ограничением данного метода является длительное время обработки, что резко контрастирует с быстрыми протоколами на основе кислот, обычно используемыми в клинической патологии20,36. Хотя более длительное время обработки в целом допустимо в исследовательских условиях, недавние работы, такие как протокол, описанный Miao et al., в котором для декальцинации в течение 24 h используется раствор Морса (22.5% муравьиной кислоты и 10% цитрата натрия), подчеркивают растущий интерес к ускорению подготовки костной ткани для пространственного анализа20. Однако методы на основе кислот исторически несут гораздо более высокий риск деградации РНК, что снижает значения DV200 и, в конечном счете, ограничивает их совместимость с пространственной транскриптомикой1,8,35,36. Данный подход на основе ЭДТА отдает приоритет сохранению РНК, а не скорости, обеспечивая совместимость с пространственными платформами на основе секвенирования, такими как Visium.
Потенциальным ограничением пространственной транскриптомики костного мозга является высокая концентрация транскриптов иммуноглобулинов, происходящих от плазматических клеток, что может затруднить обнаружение малопредставленных генов. По аналогии со стратегиями контроля качества и фильтрации, применявшимися в предыдущем исследовании данной группы, которые включали удаление низкокачественных спотов (<200 UMIs и <150 обнаруженных генов), фильтрацию малозначимых типов клеток (<20% на спот) при анализе деконволюции и отбор маркерных генов, обнаруженных в наборах данных пространственной транскриптомики, транскрипты иммуноглобулинов также могут быть отфильтрованы вычислительными методами в ходе последующего анализа для минимизации их влияния, если это уместно8. Таргетные подходы к пространственной транскриптомике могут дополнительно улучшить обнаружение малопредставленных транскриптов в конкретных приложениях.
Потенциальные области применения данного метода обширны. Недавняя интеграция пространственных данных и данных секвенирования единичных клеток выявила специализированные остеогенные ниши человека и сложные градиенты сигнальных молекул, исходящие от трабекулярной кости3,26. Более того, пространственная транскриптомика показала, что старение перестраивает микроокружение костного мозга (КМ), изменяя пространственную организацию и взаимодействие эндотелиальных клеток (ЭК), что приводит к нарушению остеогенной поддержки и возникновению воспалительных сигнальных сетей в стареющей нише10. Мультиомикное профилирование также позволило выявить отдельные микроокружающие области, такие как артерио-эндостеальные зоны, поддерживающие ранний миелопоэз, и пери-адипоцитарные зоны, обогащенные гемопоэтическими стволовыми клетками и клетками-предшественниками3. В контексте множественной миеломы (ММ) данный протокол позволяет интегрировать пространственные и одноклеточные транскриптомные подходы для характеристики состава пораженного КМ мыши и межклеточных взаимодействий. Предыдущие работы выявили пространственно разделенное распределение злокачественных плазматических клеток (ПК) и идентифицировали иммунные и воспалительные программы, такие как NETоз и сигналинг IL-17, которые были обратно пропорциональны регионам, обогащенным опухолью. Кроме того, увеличение плотности злокачественных ПК коррелировало с переходом Т-клеток из эффекторного состояния в состояние истощения. Эти результаты были также подтверждены на образцах КМ человека, фиксированных формалином и залитых парафином (FFPE), что демонстрирует их трансляционную значимость при различной степени выраженности заболевания8. В конечном итоге, данный рабочий процесс подготовки образцов обеспечивает техническую основу для изучения сложных клеточных взаимодействий внутри минерализованной архитектуры КМ.
Платформы пространственной экспрессии генов с высоким разрешением позволяют проводить профилирование всего транскриптома с разрешением, близким к одноклеточному38,51,52. Эти подходы могут расширить применение данного протокола подготовки образцов для анализа пространственно организованного костного мозга и гематологических злокачественных новообразований с более высоким разрешением. Таким образом, данный рабочий процесс закладывает техническую основу для будущих исследований физиологического и злокачественного гемопоэза.
Раскрытие информации
Авторы заявляют об отсутствии конфликта интересов. Патент на ноу-хау и экспериментальное использование мышиных моделей множественной миеломы MIcγ1 был лицензирован компании MIMO Biosciences (заявка № PCT/EP2023/071025).
Благодарности
Данная работа была поддержана Instituto de Salud Carlos III и софинансирована ERDF A way of making Europe (PI22/00983); CIBERONC (CB16/12/00489), RICORS TERAV (RD21/0017/0009) и RICORS TERAV Plus (RD24/0014/0010); AGATA 0011-1411-2020- 000010/0011-1411-2020-000011; Departamento de Salud Gobierno de Navarra (GN2024/04); Cancer Research UK [C355/A26819]; FC AECC и AIRC в рамках программы Accelerator Award; The International Myeloma Foundation (Brian van Novis) и The Paula and Rodger Riney Foundation (грант FP). IAC поддерживался грантом Мари Кюри (H2020- MSCA-IF-837491) Европейской комиссии, грантом AECC Talent (INVES258003CALV) и Departamento de Salud, Gobierno de Navarra (GN2023/03). MC поддерживался стипендией FPU (FPU22/03283) от Ministerio de Ciencia, Innovación y Universidades. Мы хотели бы поблагодарить сотрудников Лаборатории передовой геномики (Advanced Genomics Laboratory) и Вивария (Animal Facility) CIMA Universidad de Navarra за их неоценимую техническую и интеллектуальную помощь. Мы также выражаем признательность отделениям патоморфологии Clínica Universidad de Navarra (CUN) и Hospital Universitario de Navarra за предоставление образцов костного мозга (BM) и за выдающееся сотрудничество. Особая благодарность выражается Хосе Анхелю Мартинесу-Клименту и Марте Ларрайос за их мышиные модели множественной миеломы (MM). Благодарим Патчи Сан Мартин-Уриса, Танию Лопес и Эдуардо Лареки за отличную поддержку в оптимизации технологий, разработке протоколов и решении проблем при подготовке образцов костного мозга мышей и человека для пространственной транскриптомики. Мы также благодарим Бената Арисету и Асьера Уллате за всю их вычислительную работу по пространственной транскриптомике. Наконец, мы глубоко признательны пациентам и здоровым донорам, которые щедро приняли участие в этом исследовании.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| Пробирки 1,5 mL | Eppendorf | 15625367 | |
| Стерильный контейнер 100 mL | deltalab | 723-510 | |
| 4200 TapeStation | Agilent | G2991A | Система на основе капиллярного электрофореза–для оценки целостности РНК |
| Стерильный контейнер 50 mL | IberoMed | REOR001 | |
| Пробирка 50 mL | FALCON | 352070 | |
| Advanced PAP Pen | Ted Pella 22309 | Z377821-1EA | Маркер для создания гидрофобного барьера |
| Антитело к PRRX1, полученное в кролике | Sigma-Aldrich | HPA051084 | |
| BSA (бычий сывороточный альбумин) | Sigma-Aldrich | A9418-50G | |
| Кассеты | KartellLABWARE | 2921 | |
| Моноклональное антитело к CD271 (рецептор NGF) (ME20.4) | Invitrogen | 14-9400-82 | |
| CD31, антитело к эндотелиальным клеткам (концентрат), клон JC70A | Aligent Dako | M0823 | |
| Покрывные стекла | Fisher Scientific | 12-544-EP | 50 mm x 24 mm |
| DAPI (монтирующая среда VECTASHIELD Antifade с DAPI) | Vector Laboratories | H-1200-10 | |
| Раствор для депарафинизации | Qiagen | 19093 | |
| DPBS | Thermo Scientific | AAJ67802AP | Фосфатно-солевой буфер (DPBS, 1×), формула Дульбекко, без кальция, без магния, Thermo Scientific Chemicals |
| Среда для заключения срезов DPX для гистологии | Sigma-Aldrich | 06522-500ML | |
| EDTA | Thermo Scientific | 15748687 | Этилендиаминтетрауксусная кислота (EDTA), 0,5 M раствор, для молекулярной биологии, сверхчистый |
| Станция для заливки | Leica Biosystems | 14 0388 81101 | Leica EG1150H |
| Антитело к Emcn (V.7C7) | Santa Cruz Biotechnology | sc-65495 | |
| Референсный геном Ensembl (GRCh38 / mm10, выпуск 105) | EMBL-EBI | N/A | Референсный геном, использованный для выравнивания чтений. |
| Эозин | Millipore Sigma | HT110116 | |
| Этанол | Millipore Sigma | E7023-500ML | Хирургические ножницы |
| Гистологическая водяная баня Falc Instruments B-I | Falc | 610.1030.00 | |
| Формалин 4% | PanReac AppliChem | 2524311315 | Формальдегид 3,7%–4,0% масс./об., буферизированный до pH = 7 и стабилизированный метанолом (CE-IVD) для клинической диагностики |
| Стойка для окрашивания предметных стекол | WHEATON | Z710970-3EA | |
| Стеклянные стаканы для окрашивания | BRAND | BR472200-10EA | Mastercycler X50 |
| Глицерин | Sigma-Aldrich | C3H803 | |
| Козьи вторичные антитела против IgG мыши (H+L), кросс-адсорбированные, Alexa Fluo 568 | Invitrogen | A11004 | |
| Козьи вторичные антитела против IgG мыши (H+L), высоко кросс-адсорбированные, Alexa Fluo Plus 488 | Invitrogen | A32723 | |
| Козьи вторичные антитела против IgG кролика (H+L), высоко кросс-адсорбированные, Alexa Fluor 488 | Invitrogen | A11034 | |
| Гематоксилин | Millipore Sigma | MHS16 | |
| High Sensitivity RNA ScreenTape | Agilent | 5067-5579 | Оценка целостности РНК |
| High Sensitivity RNA ScreenTape Ladder | Agilent | 5067-5581 | Оценка целостности РНК |
| High Sensitivity RNA ScreenTape Sample Buffer | Agilent | 5067-5580 | Оценка целостности РНК |
| Микроскоп высокого разрешения | Leica Biosystems | N/A | Сканер Aperio CS2 |
| Соляная кислота (0,1 N HCl) | Fisher Chemical | SA54-1 | |
| Платформа Illumina NextSeq 2000 | Illumina | 20038897 | |
| Козьи вторичные антитела Invitroge против IgG крысы (H+L), кросс-адсорбированные, Alexa Fluo 568 | Invitrogen | A11077 | |
| Ирисные ножницы - ToughCut | F.S.T | 14058-11 | |
| Isovet | BRAUN | BR3009 | Изофлуран |
| Карбонат лития | Merck | 554-13-2 | |
| Loupe Browser (v6.0.0) | 10x Genomics | N/A | Программное обеспечение, используемое для визуализации изображений Г&Э и курирования спотов Visium; открывает файлы .cloupe, созданные конвейером анализа. |
| Металлические формы для заливки | Bio-Optica | 07-BM24256 | |
| Предметные стекла | avantor | 631-0108 | Предметные стекла Superfrost Plus |
| Лезвия для микротома | FEATHER | FEAT207500006_U | |
| Микротом HM 340E | Epredia | N/A | Модель HM 340E |
| Игла | BD | 301156 | Игла BD Microlanc 3 Needle 21 G 1 IN (25 MM) |
| Nikon Optiphot-2 | Nikon | 71052 | Световой микроскоп в светлом поле |
| Парафин | PanReac AppliChem | 256993 | Парафин T.пл. 55–58°C пластифицированный + гранулы DMSO (CE-IVD) для клинической диагностики |
| Чашка Петри | Corning | CLS430167-100EA | |
| Пластиковые формы для заливки | Bio-Optica | 07-MP7070 | |
| Пинцет Поттса-Смита | F.S.T | 11012-18 | Пинцет |
| Флуориметр Qubit 3.0 | Invotrogen | Q33216 | |
| Пробирки для анализа Qubit | Invotrogen | Q32856 | |
| Набор для анализа Qubit RNA HS Assay Kit | Invotrogen | Q32855 | |
| Микроцентрифужная пробирка 1,5 mL, без РНКаз | Thermo Scientific | AM12400 | |
| Вода, свободная от РНКаз | Merk | W4502 | |
| RNaseZap Rnase | Invotrogen | AM9780 | Раствор для деконтаминации |
| Набор RNeasy FFPE Kit (50) | Qiagen | 73504 | Экстракция общей РНК |
| SCTransform (v0.3.5) | Satija Lab | N/A | Метод стабилизирующей дисперсию нормализации, реализованный в Seurat. |
| Seurat (v4.3.0.1) | Satija Lab | N/A | R-пакет, используемый для анализа одноклеточной и пространственной транскриптомики. |
| Space Ranger (v2.0.1) | 10x Genomics | N/A | Программное обеспечение, используемое для демультиплексирования, выравнивания и создания матриц признак-штрихкод для наборов данных Visium. |
| Скальпель Stlime | Schreiber GmbH | 51-11-030 | |
| STutility (v1.1.1) | Bergen Lab | N/A | R-пакет, используемый для визуализации и интеграции пространственной транскриптомики. |
| Лезвие хирургического скальпеля №23 | Swann-Morton | 210 | Лезвия хирургических скальпелей |
| Термоциклер | Eppendorf | 6313000018 | |
| Tween-200 | Sigma-Aldrich | P2287-500ML | |
| Vectra Polaris | PerkinElmer | CLS143455 | Платформа для мультиспектральной визуализации для ИФ |
| Набор аксессуаров Visium 10X Genomics | 10x Genomics | PN-1000194 | |
| Visium CytAssist | 10x Genomics | PN-1000441 | |
| Набор зондов для транскриптома человека Visium Human Transcriptome Probe Kit Small 10X Genomics | 10x Genomics | PN-1000363 | |
| Набор зондов для транскриптома мыши Visium Mouse Transcriptome Probe Kit Small 10X Genomics | 10x Genomics | PN-1000365 | |
| Набор предметных стекол для пространственной экспрессии генов Visium Spatial Gene Expression Slide Kit 4 rxns 10X Genomics | 10x Genomics | PN-1000188 | |
| Ксилол | Panreac | 214736 | Ксилол, смесь изомеров для анализа, ACS, ISO |
Ссылки
- Cooper RA, et al. Spatial transcriptomic approaches for characterising the bone marrow landscape: pitfalls and potential. Leukemia. 2025;39(2):291-295.
- Mercier FE, Ragu C, Scadden DT. The bone marrow at the crossroads of blood and immunity. Nat Rev Immunol. 2012;12(1):49-60.
- Bandyopadhyay S, et al. Mapping the cellular biogeography of human bone marrow niches using single-cell transcriptomics and proteomic imaging. Cell. 2024;187(12):3120-3140.e29.
- Tikhonova AN, et al. The bone marrow microenvironment at single-cell resolution. Nature. 2019;569(7755):222-228.
- Baccin C, et al. Combined single-cell and spatial transcriptomics reveal the molecular, cellular and spatial bone marrow niche organization. Nat Cell Biol. 2020;22(1):38-48.
- Kunisaki Y, et al. Arteriolar niches maintain haematopoietic stem cell quiescence. Nature. 2013;502(7473):637-643.
- Kusumbe AP, Ramasamy SK, Adams RH. Coupling of angiogenesis and osteogenesis by a specific vessel subtype in bone. Nature. 2014;507(7492):323-328.
- Muiños-Lopez E, et al. Characterization of the bone marrow architecture of multiple myeloma using spatial transcriptomics. Commun Biol. 2025;8(1):1620.
- Gui G, et al. Single-cell spatial transcriptomics reveals immunotherapy-driven bone marrow niche remodeling in AML. Sci Adv. 2025;11(28):eadw4871.
- Cenzano I, et al. Single-cell profiling reveals RAB13+ endothelial cells and profibrotic mesenchymal cells in aged human bone marrow. Aging Cell. 2026;25(4):e70475.
- de Jong MME, et al. The multiple myeloma microenvironment is defined by an inflammatory stromal cell landscape. Nat Immunol. 2021;22(6):769-780.
- de Jong MME, et al. An IL-1β-driven neutrophil–stromal cell axis fosters a BAFF-rich protumor microenvironment in individuals with multiple myeloma. Nat Immunol. 2024;25(5):820-833.
- Cenzano I, et al. Stromal and endothelial transcriptional changes during progression from MGUS to myeloma and after treatment response. Nat Commun. 2026;17:74389.
- Ye J, et al. Deconvolution of the hematopoietic stem cell microenvironment reveals a high degree of specialization and conservation. iScience. 2022;25(5):104225.
- Chen L, et al. An inflammatory T-cell-stromal axis contributes to hematopoietic stem/progenitor cell failure and clonal evolution in human myelodysplastic syndrome. Nat Commun. 2025;16(1):10041.
- Prummel KD, et al. Inflammatory stromal and T cells mediate human bone marrow niche remodeling in clonal hematopoiesis and myelodysplasia. Nat Commun. 2025;16(1):10042.
- De Jonghe J, et al. scTrends: A living review of commercial single-cell and spatial 'omic technologies. Cell Genom. 2024;4(12):100723.
- van den Brink SC, et al. Single-cell sequencing reveals dissociation-induced gene expression in tissue subpopulations. Nat Methods. 2017;14(10):935-936.
- Asp M, Bergenstråhle J, Lundeberg J. Spatially resolved transcriptomes—next generation tools for tissue exploration. Bioessays. 2020;42(10):1900221.
- Miao J, et al. A practical protocol of processing mineralized tissue for Visium spatial transcriptomics. Mechanobiol Med. 2025;3(4):100163.
- Baldwin M, et al. A roadmap for delivering a human musculoskeletal cell atlas. Nat Rev Rheumatol. 2023;19(11):738-752.
- Duan H, Cheng T, Cheng H. Spatially resolved transcriptomics: advances and applications. Blood Sci. 2023;5(1):1-12.
- Xiao X, et al. Spatial transcriptomic interrogation of the murine bone marrow signaling landscape. Bone Res. 2023;11(1):59.
- Jain S, Eadon MT. Spatial transcriptomics in health and disease. Nat Rev Nephrol. 2024;20(10):659-671.
- Tilburg J, et al. Spatial transcriptomics of murine bone marrow megakaryocytes at single-cell resolution. Res Pract Thromb Haemost. 2023;7(4):100158.
- Lin W, et al. Mapping the spatial atlas of the human bone tissue integrating spatial and single-cell transcriptomics. Nucleic Acids Res. 2025;53(2):gkae1298.
- Marx V. Method of the Year: spatially resolved transcriptomics. Nat Methods. 2021;18(1):9-14.
- Yue L, et al. A guidebook of spatial transcriptomic technologies, data resources and analysis approaches. Comput Struct Biotechnol J. 2023;21:940-955.
- Joglekar A, et al. A spatially resolved brain region- and cell type-specific isoform atlas of the postnatal mouse brain. Nat Commun. 2021;12(1):463.
- Madissoon E, et al. A spatially resolved atlas of the human lung characterizes a gland-associated immune niche. Nat Genet. 2023;55(1):66-77.
- Wang F, et al. Single-cell and spatial transcriptome analysis reveals the cellular heterogeneity of liver metastatic colorectal cancer. Sci Adv. 2023;9(24):eadf5464.
- Robinson MH, et al. Regulation of antigen-specific T cell infiltration and spatial architecture in multiple myeloma and premalignancy. J Clin Invest. 2023;133(15):e167303.
- Wehrle E, et al. Protocol for preparing formalin-fixed paraffin-embedded musculoskeletal tissue samples from mice for spatial transcriptomics. STAR Protoc. 2024;5(2):103089.
- Sangeetha R, Uma K, Chandavarkar V. Comparison of routine decalcification methods with microwave decalcification of bone and teeth. J Oral Maxillofac Pathol. 2013;17(3):386-391.
- Yip RKH, et al. Profiling the spatial architecture of multiple myeloma in human bone marrow trephine biopsy specimens with spatial transcriptomics. Blood. 2025;146(15):1837-1849.
- Miquelestorena-Standley E, et al. Effect of decalcification protocols on immunohistochemistry and molecular analyses of bone samples. Mod Pathol. 2020;33(8):1505-1517.
- Ambrosi TH, et al. Human skeletal development and regeneration are shaped by functional diversity of stem cells across skeletal sites. Cell Stem Cell. 2025;32(5):811-823.e11.
- 10x Genomics. Visium Spatial Platform. Pleasanton (CA): 10x Genomics. 2026: Available from: https://www.10xgenomics.com/platforms/visium#assays
- Amemiya K, et al. Influence of formalin fixation duration on RNA quality and quantity from formalin-fixed paraffin-embedded hepatocellular carcinoma tissues. Pathol Int. 2023;73(12):593-600.
- Srinivasan M, Sedmak D, Jewell S. Effect of fixatives and tissue processing on the content and integrity of nucleic acids. Am J Pathol. 2002;161(6):1961-1971.
- Nam SK, et al. Effects of fixation and storage of human tissue samples on nucleic acid preservation. Korean J Pathol. 2014;48(1):36-42.
- 10x Genomics. Visium Spatial Gene Expression Reagent Kits for FFPE User Guide. Document CG000407, Revision E. Pleasanton (CA): 10x Genomics. 2026: Available from: https://www.10xgenomics.com/support/spatial-gene-expression-ffpe/documentation/steps/library-construction/visium-spatial-gene-expression-reagent-kits-for-ffpe-user-guide
- Eccher A, et al. Pathology laboratory archives: conservation quality of nucleic acids and proteins for NSCLC molecular testing. J Pers Med. 2024;14(4):333.
- Bai Z, et al. Spatially exploring RNA biology in archival formalin-fixed paraffin-embedded tissues. Cell. 2024;187(23):6760-6779.e24.
- 10x Genomics. Visium CytAssist Spatial Gene Expression for FFPE—Tissue Preparation Guide. Document CG000518, Revision D. Pleasanton (CA): 10x Genomics. 2026: Available from: https://www.10xgenomics.com/support/cytassist-spatial-gene-expression/documentation/steps/tissue-prep/visium-cyt-assist-spatial-gene-expression-for-ffpe-tissue-preparation-guide
- 10x Genomics. Visium CytAssist Spatial Gene Expression Reagent Kits for FFPE User Guide. Document CG000495, Revision G. Pleasanton (CA): 10x Genomics. 2026. Available from: https://www.10xgenomics.com/support/cytassist-spatial-gene-expression/documentation/steps/library-construction/visium-cyt-assist-spatial-gene-expression-reagent-kits-for-ffpe
- Agilent Technologies. High Sensitivity RNA ScreenTape assay for TapeStation systems quick guide. Version A.01.05. Santa Clara (CA): Agilent Technologies. 2024: Available from: https://www.agilent.com/cs/library/usermanuals/public/HS-RNA_QuickGuide.pdf
- Agilent Technologies. Agilent 4200 TapeStation system—System manual. Publication G2991-90000, Version A.02.02. Santa Clara (CA): Agilent Technologies. 2024: Available from: https://download.chem.agilent.com/software/4200_tapestation_user_info_package_v2/tapestation%20user%20information/tapestation%20manuals/agilent%204200%20tapestation%20system%20manual_g2991-90000.pdf
- Larrayoz M, et al. Preclinical models for prediction of immunotherapy outcomes and immune evasion mechanisms in genetically heterogeneous multiple myeloma. Nat Med. 2023;29(3):632-645.
- Wang S. Resolving the bone – optimizing decalcification in spatial transcriptomics and molecular pathology. J Histotechnol. 2025;48(1):68-77.
- Oliveira MF, et al. High-definition spatial transcriptomic profiling of immune cell populations in colorectal cancer. Nat Genet. 2025;57(6):1512-1523.
- Bourgain-Chang E, Kuang X, Cang Z, Nie Q. Reconstructing single-cell resolution from spatial transcriptomics with CellRefiner. Nat Commun. 2026;17(1):3304.
Перепечатки и разрешения
Эта статья была опубликована
Видео скоро будет доступно