В данном материале представлено подробное описание процедуры измерения социального распознавания между новыми, краткосрочными и долгосрочными партнерами с использованием поведенческой экспериментальной парадигмы «Четыре стакана» (Four Cups). Мы описываем преимущества и потенциальные возможности применения данной парадигмы, а также важную информацию для точной интерпретации полученных результатов.
Методическая статья
Парадигма социального распознавания у мышей для разграничения краткосрочных и долгосрочных отношений
В этой статье
Краткое содержание
Аннотация
Социальная память — это способность помнить и распознавать особей своего вида. Она является фундаментальным аспектом поведения млекопитающих, обеспечивающим явные преимущества для выживания высокосоциальных млекопитающих, таких как мыши и люди. Грызуны, в частности мыши, представляют собой общепринятую модель животного, широко используемую для изучения социальной памяти и лежащих в ее основе механизмов. Большинство существующих парадигм социальной памяти преимущественно оценивают краткосрочное социальное распознавание, при котором продолжительность отношений и уровень знакомства между субъектом и агентом составляют от 5 до 15 мин. Следовательно, существующие парадигмы и прошлые исследования не позволяют зафиксировать социальную память о долгосрочных отношениях и фокусируются на дихотомии «новизна против краткосрочного знакомства», что оставляет значительный пробел в нашем понимании механизмов социальной памяти. Чтобы восполнить этот пробел, мы разработали простой тест, который фиксирует реакции мышей на разные уровни знакомства, позволяя перевести сложные процессы воспроизведения социальной памяти в наблюдаемый и количественно измеримый контекст. В парадигме «четырех стаканчиков» мышь-субъект свободно исследует арену, в которой в каждом углу расположены четыре перфорированных стаканчика. В этих стаканчиках находятся три мыши-агента с разным уровнем знакомства (социальные стимулы): давно знакомая особь (сожитель по клетке; совместное содержание в течение 1 месяца), недавно знакомая особь (предварительный контакт в течение 10 мин), новая особь того же вида, а также пустой стаканчик в качестве контроля. Самцы мышей линии CD-1 в данной парадигме демонстрируют предпочтение при исследовании новой и давно знакомой мыши по сравнению с недавно знакомыми мышами. Эта задача позволяет продемонстрировать распознавание уровня знакомства и минимизирует агрессивное поведение, при этом учитывая историю контактов. Данный новый тест предоставляет платформу для прямого сравнения нейронных механизмов социальной памяти в отношении давно знакомых, недавно знакомых и новых особей. Парадигма «четырех стаканчиков» служит новым методом измерения для распознавания долгосрочного знакомства, который дополнит существующие тесты на краткосрочное распознавание.
Введение
Социальная память является ключевой особенностью социального поведения млекопитающих и особенно развита у высокосоциальных видов, таких как мыши и люди. У грызунов распознавание других особей лежит в основе поведенческой динамики, критически важной для выживания внутри семейных и конспецифических групп, включая групповую сплоченность, иерархию доминирования, брачное поведение и родительскую заботу1,2. Помимо эволюционно значимой роли в выживании животных, нарушение социальной памяти у людей является распространенным признаком множества нейропсихиатрических и неврологических расстройств, включая расстройства аутистического спектра, шизофрению и болезнь Альцгеймера3,4,5,6. Поскольку социальное распознавание имеет фундаментальное значение для повседневного функционирования социальных видов и обладает явной клинической значимостью, крайне важно разрабатывать поведенческие тесты, которые точно отражают его многомерную природу и нейронные механизмы. Хотя существующие парадигмы позволяют измерить некоторые аспекты социального распознавания у мышей, большинство тестов предназначены для оценки предпочтения новизны путем сравнения новых и краткосрочных отношений , сформированных в течение минут или часов, а не для количественной оценки распознавания долгосрочных социальных связей.
Существующие подходы, такие как парадигма с тремя камерами или парадигмы привыкания-депривитации, позволяют оценить предпочтение новизны после лишь кратковременного предварительного воздействия, которое часто ограничено 5–15 минутами.7,8,9,10,11Эти методы предоставили глубокое понимание нейронные механизмы из эти краткосрочный социальный память у мышей12,13. Однако натуралистическая социальная память и социальные функции должны учитывать специфические механизмы, действующие в долгосрочных отношениях, сформированные путем длительного совместного проживания социальные иерархии или партнеры по спариванию. Хотя в некоторых исследованиях используется парадигма с тремя камерами с участием однопометников14 или знакомых мышей, содержавшихся в одной клетке с подопытным животным на протяжении до 72 ч15,16основное применение данной парадигмы по-прежнему сосредоточено на простом разграничении между «новым» и «знакомым» объектом. Это ограничивает возможность проведения сравнений между несколькими разными знакомыми мышами. Поскольку установленные парадигмы социального распознавания ориентированы на изучение что касается краткосрочных отношений, мы отмечаем явный пробел в наших знаниях о нейронных механизмах, лежащих в основе социального распознавания при долгосрочных отношениях.
Для устранения этого ограничения мы разработали парадигму четырех стаканов: простой и гибкий метод анализа разработанный для дифференциации распознавание несколько уровней социальной знакомности в рамках одной сессии тестирования. В данной парадигме мышь-испытуемый исследует четыре угла открытой арены, каждый содержащий a перфорированный стакан удерживание a конспецифический или контрольный пустой стакан. В стаканах находится давно знакомая особь того же вида (сокамерник), а краткосрочное привыкание конспецифичный с ограниченным предварительным опытом (10 мин), а новый мышь и один Поскольку исходный текст отсутствует, я не могу выполнить перевод. Пожалуйста, предоставьте текст, который необходимо перевести на русский язык. контроль. Время исследования служит количественным показателем социального распознавания и социального предпочтения. Такая конфигурация позволяет проводить одновременные сравнения между уровнями знакомства, сводя к минимуму прямое физическое взаимодействие и возможные агрессивные столкновения.
Протокол
Все процедуры с использованием животных должны проводиться в соответствии с институциональными правилами и быть одобрены Институциональным комитетом по уходу и использованию животных (IACUC) Университета Флориды.
1. Подготовка и содержание животных
- Используйте взрослых особей однополый мыши группового содержания для всех экспериментов. В течение как минимум 2 дней проводите манипуляции с мышами, чтобы они привыкли к обращению и у них снизился уровень тревожности перед экспериментальным тестированием.
- Разместите мышей в стандартные лабораторные клетки с обратным циклом «свет-темнота» и свободным доступом к корму и воде.
ПРИМЕЧАНИЕ: Для проведения репрезентативных экспериментов использовали взрослых мышей линий CD-1 и C57BL/6 (в возрасте 3–4 месяцев). Мышей содержали группами по 3–4 животных в одной клетке. Репрезентативные наборы данных включали 10 самцов мышей CD-1, 12 самок мышей CD-1 и 31 самца мышей C57BL/6. Поведенческие тесты следует проводить в активную фазу субъекта (темновую фазу). Мыши, включенные в данное исследование, проходили тестирование с 9:00 до 18:00 и содержались в условиях инвертированного светового цикла (темновая фаза с 8:00 до 20:00). - Определите долгосрочный знакомый агент как сокамерник того же пола и той же линии который находился в одной клетке с подопытной мышью в течение как минимум за 3–4 недели до начала тестирования.
- Выберите знакомого и незнакомого представителя того же вида для краткосрочного взаимодействия агенты той же линии и пола, что и мышь-субъект.
- Убедитесь, что новые мыши ранее не имели физического или ольфакторного контакта с подопытной мышью.
- Выберите одного нового агента и одного знакомого краткосрочного агента из разных домашних клеток, чтобы избежать сходства ольфакторных стимулов у этих двух агентов.
ПРИМЕЧАНИЕ: Зафиксируйте приблизительный возраст всех используемых животных и постарайтесь свести к минимуму многократное повторное использование одних и тех же новых и краткосрочных препаратов в течение одного дня. Если препараты подлежат повторному использованию, обеспечьте >Перерыв в домашней клетке продолжительностью 2 ч между тестовыми пробами для предотвращения стресса животных.
2. Подготовка арены
- Поместите чистую квадратную арену для открытого поля (49,5 cm x 49,5 cm x 49,5 cm; Таблица материалов) в тихом помещении для поведенческого тестирования.
- Осветите область с помощью одной высокой или потолочной лампы, настроив освещенность примерно на 8–20 lux.
- Поместите четыре одинаковых по весу перфорированных пластиковых стаканчика в каждый угол арены (Рисунок 1A).
- По возможности используйте визуально идентичные стаканы. Если используются стаканы разных цветов, используйте контрбалансировку при назначении стаканов и их расположении в разных испытаниях.
- Прижмите две стороны каждого стаканчика вплотную к стенкам арены, чтобы ограничить доступ, минимизировать стремление спрятаться и стандартизировать углы обследования.
- Используйте стаканы, которые достаточно тяжелые, чтобы предотвратить побег, и достаточно высокие, чтобы предотвратить вылезание.
ПРИМЕЧАНИЕ: В данном исследовании стаканы с репрезентативными данными и положение агента были псевдорандомизированы для каждого субъекта путем поворота цветных пластиковых стаканов по часовой стрелке, в то время как тип агента перемещался против часовой стрелки в ходе испытаний.
- Разместите камеру достаточно высоко, чтобы весь бокс для анализа попадал в кадр, чтобы избежать слепых зон при кодировании поведения. Обеспечьте минимальный блеск и равномерное освещение всего пола бокса (Рисунок 1A).
- Тщательно очищайте пол арены и стаканчики между испытаниями, используя подходящее дезинфицирующее средство, затем промойте водой для удаления остаточных запахов.
- Дайте арене полностью высохнуть перед повторным помещением животных.
3. Привыкание к арене в день 0
- Поместите подопытное животное и его сокамерников в арену, содержащую четыре пустых перфорированных стаканчика, и предоставьте им возможность свободного исследования в течение 20 min.
ПРИМЕЧАНИЕ: Для экспериментов с использованием фиксирующих тросов привыкание животных следует проводить индивидуально. Могут потребоваться дополнительные сеансы привыкания. Рекомендуется проводить привыкание в течение нескольких дней, если мыши не исследуют всю арену полностью после первого дня. - Уберите всех мышей из арены и верните их в домашнюю клетку.
- Поместите всех социальных агентов под стаканчики на 10 min, чтобы они привыкли к ограничению подвижности. Привыкание агентов из одной домашней клетки следует проводить одновременно, по одному животному в стаканчик (Рисунок 1B).
- Очистите арену и стаканчики перед введением мышей из новой домашней клетки.
ПРИМЕЧАНИЕ: После транспортировки в помещение дайте мышам отдохнуть не менее 15 min перед началом сеанса.
4. Исходный уровень
- Подготовьте арену согласно разделу 2. Сохраняйте одинаковую конфигурацию арены на протяжении всех дней эксперимента.
- Поместите подопытное животное в арену с четырьмя пустыми стаканчиками и предоставьте возможность свободного исследования в течение 10 min.
ПРИМЕЧАНИЕ: Не приостанавливайте запись; она должна вестись непрерывно на всех этапах текущей пробы.
5. Краткосрочный сбор данных
- Используйте утяжеленный перфорированный стакан, чтобы ограничить перемещение подопытного животного, поместив рядом назначенного "краткосрочно знакомого" агента. В качестве альтернативы можно подвергнуть подопытное животное воздействию краткосрочного агента в чистой клетке.
- Если выбран вариант воздействия в арене, поместите назначенного краткосрочно знакомого агента под один перфорированный стакан в арене, оставив остальные три стакана пустыми.
- Выпустите подопытное животное и позвольте ему свободно исследовать пространство в течение 10 min (Рисунок 1B).
ПРИМЕЧАНИЕ: При использовании метода воздействия краткосрочного агента в арене чередуйте угол, в котором находится краткосрочно знакомый агент, для разных животных, чтобы избежать пространственного смещения.
6. Межпробный интервал (ITI)
- Заберите краткосрочно знакомого агента и верните его в домашнюю клетку. Оставьте подопытную мышь одну в арене для свободного перемещения в течение 10 min.
- Подготовьте новых и долгосрочно знакомых мышей-агентов для фазы тестирования.
ПРИМЕЧАНИЕ: Поместите краткосрочно знакомого агента в тот же стакан, который использовался во время краткосрочного ознакомления (раздел 5). Это рекомендуется для того, чтобы избежать эффекта новизны пространственного расположения, если краткосрочное ознакомление проводилось в арене.
7. Фаза социального распознавания
- Поместите дополнительный утяжеленный перфорированный стакан на подопытную мышь.
- Поместите по одной мыши под каждый из трех утяжеленных перфорированных стаканов: давно знакомую особь (сокамерника), недавно знакомую особь и незнакомую особь того же вида. Оставьте четвертый назначенный стакан пустым в качестве контроля.
ПРИМЕЧАНИЕ: Маркируйте верхние части стаканов, чтобы определить расположение агентов во время оценки поведения. - Снимите перфорированный стакан с подопытной мыши в центре арены и позвольте ей свободно исследовать пространство в течение 10 min (Рисунок 1A).
- Уберите всех мышей по окончании 10 min интервала и остановите запись.
- Верните всех мышей в их домашние клетки.
- Тщательно очистите арену и стаканы перед следующим испытанием.
ПРИМЕЧАНИЕ: Имейте в наличии запасные стаканы на случай повреждения.
8. Оценка поведения
- Импортируйте все записанные видео в программное обеспечение для поведенческого анализа с возможностью ручной разметки, такое как Behavioral Observation Research Interactive Software (BORIS).
ПРИМЕЧАНИЕ: Оценка поведения не была «слепой» в отношении расположения сокамерников, поскольку метки с ID агента находились над каждым стаканчиком и были видны на видео, а номер клетки можно было определить. Оценщики не обращали активного внимания на видимые метки и не знали, кто из агентов был новым, а кто — краткосрочным знакомым. Все оценщики следовали заранее определенным операциональным определениям исследовательского поведения и стандартизированным критериям оценки. - Определите поведенческую матрицу перед началом оценки.
- Определите эпизод исследования как положение носа мыши-подопытного в пределах 1 cm от стаканчика при демонстрации стойкой исследовательской позы.
ПРИМЕЧАНИЕ: Считайте жевание и грызение стаканчика эпизодами исследования. - Вручную разметьте общую продолжительность исследования для каждого стаканчика на протяжении 10-минутной фазы теста на социальное распознавание. При необходимости оцените базовый уровень и фазу приобретения.
ПРИМЕЧАНИЕ: Можно использовать автоматическое отслеживание поз с полуциркулярной областью интереса радиусом 1 cm вокруг каждого стаканчика. - Экспортируйте размеченные данные для последующего статистического анализа.
Результаты
При использовании протокола парадигмы четырех стаканов самцы мышей линии CD-1 демонстрировали различное поведение при социальном исследовании долгосрочно знакомого (сокамерника), краткосрочно знакомого и нового представителя своего вида (Рисунок 2). Для каждого объекта рассчитывали индекс дискриминации (DI) на основе времени в секундах, затраченного на исследование данного объекта по сравнению с пустым стаканом, по формуле (объект − пустой)/(объект + пустой) в течение 10-минутной фазы социального распознавания. Согласно тесту Шапиро-Уилка, данный индекс имел нормальное распределение; следовательно, мы использовали статистические тесты, предполагающие нормальность распределения данных. Мыши демонстрировали значительно более выраженную дискриминацию по отношению к новому представителю своего вида по сравнению с краткосрочно знакомым (Рисунок 2; новый против краткосрочного t(9) = 3.70, p с поправкой Бонферрони-Холма = 0.01). Парадигма также показала, что мыши проявляли значительно более выраженную дискриминацию по отношению к долгосрочно знакомому сокамернику по сравнению с краткосрочно знакомым представителем своего вида (Рисунок 2; сокамерник против краткосрочного t(9) = 2.87, p с поправкой Бонферрони-Холма = 0.04). Значимых различий в дискриминации между новым представителем своего вида и сокамерником обнаружено не было (Рисунок 2; новый против сокамерника t(9) = -1.13, скорректированное p = 0.29), что свидетельствует о том, что мыши предпочитали исследовать как новых, так и долгосрочно знакомых особей своего вида больше, чем краткосрочно знакомую мышь. Время исследования у каждого стакана во время базового этапа в пустой арене не различалось в зависимости от того, какой социальный объект впоследствии будет занимать эту конкретную позицию стакана, что подтверждает отсутствие предшествующего предпочтения стаканов, которое могло бы повлиять на наши результаты (базовый уровень для нового против базового уровня для сокамерника t(9) = -1.99, p = 0.23; базовый уровень для нового против базового уровня для краткосрочного t(9) = -1.97, p = 0.23; базовый уровень для сокамерника против базового уровня для краткосрочного t(9) = 0.54, p = 0.60).
Напротив, у самок мышей линии CD-1 не было выявлено значимых различий в индексе дискриминации между новыми, кратковременно знакомыми и длительно знакомыми сородичами (Рисунок 3). Не было обнаружено статистически значимых различий между новыми и кратковременно знакомыми особями (p = 0.35), новыми и сокамерниками (p = 0.69), а также между кратковременно знакомыми особями и сокамерниками (p = 0.70). Самки мышей в целом исследовали всех агентов над пустым стаканом, демонстрируя иную модель поведения в данном тесте, что, возможно, отражает более выраженную социальность по сравнению с самцами мышей.
Аналогично, у самцов мышей линии C57BL/6 наблюдалась тенденция в том же направлении: более выраженная дискриминация в отношении нового сородича по сравнению с краткосрочно знакомым сородичем. Эта разница приблизилась к уровню значимости, но не достигла его после поправки Бонферрони-Холма, что указывает на большую межсубъектную вариабельность в этой более многочисленной когорте C57BL/6 (n = 31), чем у самцов CD-1 (Рисунок 4; скорректированное p = 0.055). Значимых различий между новым сородичем и сокамерником (p = 0.62) или между краткосрочно знакомым сородичем и сокамерником (p = 0.62) обнаружено не было. Эти результаты позволяют предположить, что выраженное исследовательское поведение по отношению к сокамерникам, наблюдаемое у самцов CD1, варьирует в зависимости от линии и пола.
Чтобы определить, способствовало ли социальное доминирование исследованию сокамерника, баллы Дэвида по маркировке мочой были сопоставлены с индексом различения сокамерников. Значимой корреляции не наблюдалось ни у самцов мышей CD-1 (коэффициент Пирсона r = 0.28, p = 0.44), ни у самцов мышей C57BL/6 (коэффициент Пирсона r = 0.10, p = 0.57), что свидетельствует о том, что социальный ранг не влиял на индекс различения сокамерников.
В совокупности эти результаты демонстрируют, что парадигма с четырьмя стаканами позволяет выявлять различия в социальном исследовании, одновременно оценивая долгосрочную и краткосрочную привыкаемость, а также социальную новизну в рамках одной поведенческой сессии. Важно отметить, что пол и линия животных могут влиять на поведение в данном тесте.
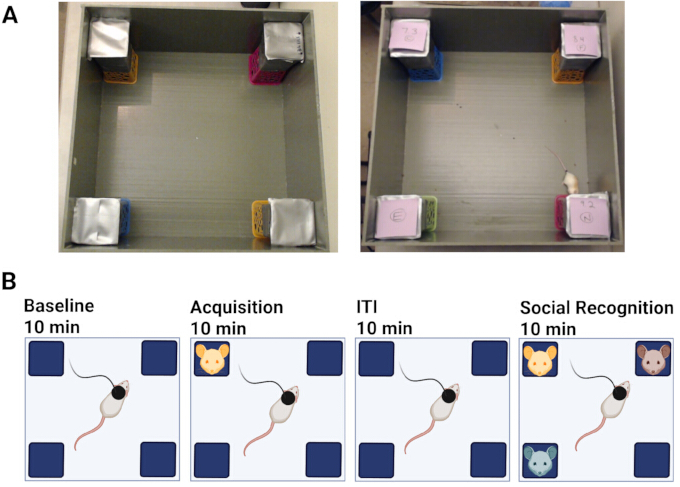
Рисунок 1: Схема установки и процесс проведения эксперимента по парадигме четырех стаканчиков. (A) Слева — бокс парадигмы четырех стаканчиков с четырьмя перфорированными пустыми стаканчиками. Справа — подопытное животное, исследующее бокс парадигмы четырех стаканчиков с четырьмя перфорированными стаканчиками, в которых находятся агенты. Метки указывают личность социального агента для обеспечения точности оценки поведения. (B) Поведенческая схема первого дня парадигмы. Цвета мышей указывают на личность агентов. Обратите внимание, что изображения были сделаны со вспышкой камеры, из-за чего арена выглядит более светлой по сравнению с освещенностью 8–20 lux, использовавшейся при проведении эксперимента. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
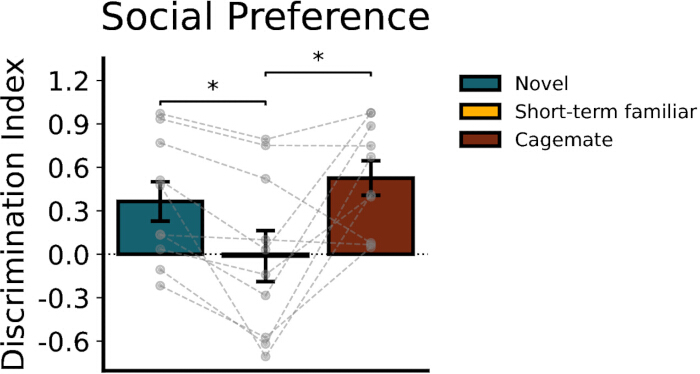
Рисунок 2: Социальное предпочтение в парадигме четырех стаканов у самцов мышей линии CD-1. Индекс дискриминации (DI) при исследовании нового, кратковременно знакомого и длительно знакомого (сожителя) конспецификов в течение 10-минутной фазы социального распознавания. DI рассчитывался как (агент – пустой)/(агент + пустой). Мыши демонстрировали значительно более выраженную дискриминацию в отношении нового объекта и сожителя по сравнению с кратковременно знакомым конспецификом (p < 0.05), в то время как значимых различий между дискриминацией нового объекта и сожителя не наблюдалось. Данные представлены как среднее ± стандартная ошибка для 10 мышей. Статистические сравнения проводились с использованием парных t-тестов с поправкой Бонферрони-Холма для множественных сравнений. *p < 0.05. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
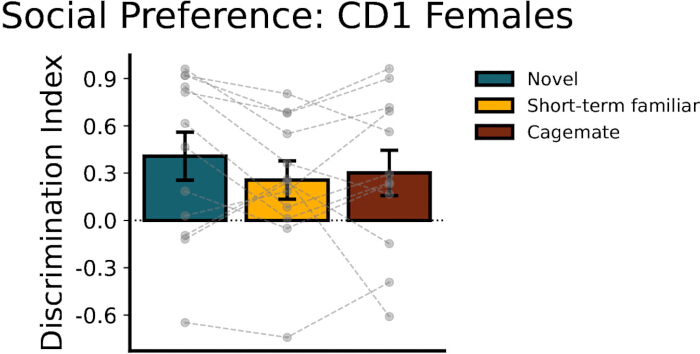
Рисунок 3: Социальное предпочтение в парадигме четырех стаканов у самок мышей CD-1. Индекс дискриминации (DI) при исследовании нового, краткосрочно знакомого и долгосрочно знакомого (сокамерника) конспецификов в течение 10-минутной фазы социального распознавания. DI рассчитывался как (агент – пустой стакан)/(агент + пустой стакан). Значимых различий в индексе дискриминации между тремя социальными стимулами не наблюдалось. Данные представлены как среднее значение ± стандартная ошибка среднего для 12 мышей. Статистические сравнения проводились с использованием парных t-тестов с поправкой Бонферрони-Холма для множественных сравнений. *p < 0.05. Нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
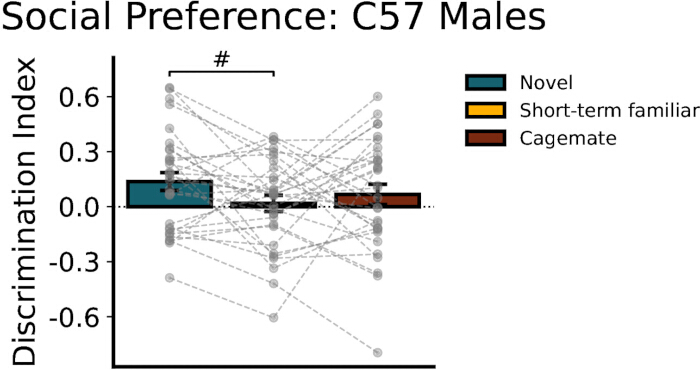
Рисунок 4: Социальное предпочтение в парадигме четырех стаканчиков у самцов мышей C57BL/6. Индекс дискриминации (DI) при исследовании нового, краткосрочно знакомого и долгосрочно знакомого (сокамерника) представителя своего вида в течение 10-минутной фазы социального распознавания. DI рассчитывался как (объект − пусто)/ (объект + пусто). Наблюдалась тенденция к более выраженной дискриминации нового представителя вида по сравнению с краткосрочно знакомым, однако она не осталась значимой после поправки Бонферрони-Холма (p = 0.055). Значимых различий между новым животным и сокамерником, а также между краткосрочно знакомым животным и сокамерником не обнаружено. Данные представлены как среднее значение ± стандартная ошибка среднего для 31 мыши. Статистические сравнения проводились с использованием парных t-критериев с поправкой Бонферрони-Холма для множественных сравнений. #p < 0.06. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
Обсуждение
При применении парадигмы четырех стаканов для эффективного и надежного измерения этих социальных взаимодействий в других лабораторных условиях следует учитывать ряд ключевых факторов. Габитуация в день 0 снижает уровень несоциального исследовательского поведения, вызванного новизной арены и стаканов, которое в противном случае может маскировать социальные исследования во время тестирования7,8,9. Точный контроль продолжительности краткосрочного ознакомления также имеет решающее значение, поскольку небольшие различия во времени воздействия могут существенно изменить последующие паттерны предпочтений8,9,10. 10-минутный период ознакомления был выбран для формирования устойчивой краткосрочной социальной памяти, что соответствует ранее описанным парадигмам социального распознавания, в которых используются короткие периоды воздействия для дифференциации знакомых и новых особей того же вида7,8,10. Кроме того, был выбран период совместного содержания в течение 3–4 недель для установления стабильной долгосрочной социальной близости посредством длительного совместного проживания, а не повторяющихся кратковременных воздействий. Такая продолжительность обеспечивает достаточную возможность для устойчивых социальных взаимодействий и формирования прочной знакомности между сокамерниками10. Различие между 10-минутным периодом ознакомления и 3–4 недельным периодом совместного содержания было намеренно разработано для создания двух качественно разных уровней знакомства (недавнего и долгосрочного) в рамках одного поведенческого сеанса. В ходе экспериментирования необходимо проводить контрбалансировку идентичности агентов по позициям стаканов в разных пробах, чтобы исключить врожденные пространственные предпочтения мышей7,8. Повторное использование мышей-агентов в разных пробах может изменить уровень стресса у агентов и, следовательно, повлиять на исследовательское поведение испытуемого. Чтобы минимизировать возможные искажающие факторы, по возможности мыши-агенты не использовались повторно в течение одного дня тестирования, а идентичность агента и расположение стакана контрбалансировались для каждого испытуемого. Кроме того, поскольку социальное доминирование может влиять на социальные исследования, иерархия доминирования оценивалась с использованием показателей доминирования на основе территории и индексов Дэвида. Между индексом Дэвида и индексом дискриминации сокамерников у самцов мышей CD-1 и C57BL/6 значимой связи обнаружено не было, что свидетельствует о том, что наблюдаемое предпочтение долгосрочно знакомых особей того же вида не объясняется статусом доминирования. При анализе требуются согласованные операциональные определения исследовательского поведения, в частности продолжительности исследования, для обеспечения воспроизводимости результатов разными экспертами и в разных экспериментальных когортах. Одной из потенциальных проблем всех социальных парадигм, основанных на исследовании, является «эффект пола» — близкие к нулю показатели времени исследования, которые делают невозможным проведение сравнений. Для линий мышей, проявляющих низкий уровень социального исследования, дальнейшее снижение интенсивности видимого освещения и использование инфракрасного видеотрекинга могут снизить уровень тревожности и усилить исследовательское поведение.
Данный протокол допускает гибкость и модификации в зависимости от целей эксперимента, однако некоторые адаптации требуют тщательного рассмотрения. Материал стаканов является ключевой переменной в анализе. Хотя в настоящем протоколе используются перфорированные пластиковые стаканы, утяжеленные металлические стаканы с более мелкими отверстиями могут снизить частоту разгрызания и попыток побега по сравнению с легкими пластиковыми стаканами. Использование пластиковых стаканов может усилить манипулятивное поведение, включая грызение или попытки выбраться, что следует отслеживать и фиксировать при подсчете показателей. Альтернативный подход заключается в замене перфорированных стаканов высокими перфорированными вертикальными разделителями, которые отделяют каждый угол от центральной арены, сохраняя при этом ольфакторную и ограниченную визуальную коммуникацию. Хотя такая конструкция может дополнительно снизить выраженность поведения по подъему, съемные перфорированные стаканы дают практическое преимущество в виде возможности быстро превратить стандартную арену открытого поля в парадигму с четырьмя стаканами без необходимости внесения постоянных модификаций. Чрезмерное взаимодействие со стаканами можно минимизировать, увеличив вес стаканов, изменив размер перфорации и поддерживая единообразие цвета для уменьшения источников систематической ошибки. Кроме того, мыши-агенты должны быть сбалансированы (counterbalanced) и не использоваться повторно в течение одного дня тестирования для снижения нежелательных эффектов привыкания.
Следует признать ряд ограничений парадигмы четырех стаканов. Поскольку социальное взаимодействие ограничено перфорированными барьерами, данный тест в первую очередь оценивает инициируемое субъектом нереципрокное исследование, основанное на обонятельных и ограниченных визуальных сигналах, а не на прямом физическом контакте8,9. Более того, использование стаканов в качестве физического и визуального барьера вносит потенциальную двусмысленность в интерпретацию исследовательского поведения. В случаях, когда наблюдается усиленное исследование сокамерников, особенно у самцов CD-1, остается неясным, отражает ли это только социальное распознавание или сочетание исследовательского и аффилиативного стимулов, включая поведение, связанное с помощью знакомому представителю своего вида (например, попытки помочь сокамернику выбраться, перегрызая пластиковый стакан). Эти соображения подчеркивают важность осторожной интерпретации и, по возможности, использования дополнительных поведенческих тестов. Ранее сложившиеся социальные отношения между сокамерниками, включая иерархию доминирования, аффилиативные взаимодействия и предшествующий социальный опыт, также могут влиять на предпочтения при исследовании. Однако мы не обнаружили явной связи между рангом доминирования и исследовательским поведением по отношению к сокамерникам. Тем не менее, эти факторы могут различаться в зависимости от линии, условий содержания и экспериментальных парадигм, и их следует учитывать при интерпретации предпочтений, основанных на долгосрочном знакомстве.
По сравнению с существующими тестами на социальное распознавание, парадигма четырех стаканов позволяет одновременно сравнивать нескольких агентов, таких как давно знакомый, недавно знакомый и новый представитель того же вида, в рамках одного поведенческого сеанса. Традиционные парадигмы, такие как тест с тремя камерами и тест на привыкание-депривацию привыкания, в основном оценивают краткосрочное предпочтение новизны после коротких периодов воздействия7,8,9,10. В предыдущих исследованиях также использовались долгосрочные сокамерники наряду с новыми представителями вида, включая парадигмы неограниченного социального взаимодействия и модифицированные многокамерные арены, предназначенные для оценки социальной знакоммости17,18. Однако эти подходы не позволяют одновременно сравнивать давно знакомые, недавно знакомые и новые социальные стимулы в рамках одного теста. Включая долгосрочных сокамерников наряду с краткосрочными агентами, парадигма четырех стаканов предоставляет возможность исследовать устойчивую социальную память, возникающую в результате длительного совместного проживания. Репрезентативные данные для мышей CD-1 обоих полов демонстрируют, что парадигма четырех стаканов может быть успешно применена независимо от пола, выявляя специфические для пола поведенческие паттерны. Аналогично, репрезентативные данные для мышей линий CD-1 и C57BL/6 дополнительно подтверждают, что парадигма четырех стаканов может быть успешно реализована для нескольких широко используемых лабораторных линий. Хотя социальное распознавание и предпочтение новизны часто варьируют в зависимости от линии мышей7,19, общий паттерн дискриминации знакоммости, наблюдаемый у самцов обеих линий, говорит о широкой применимости данного теста. Тем не менее, поскольку поведение при социальном распознавании может варьировать в зависимости от линии, пола, возраста и экспериментального контекста, исследователям следует валидировать тест на конкретной модели животного, соответствующей их научной задаче. Кроме того, хотя эта парадигма могла бы быть адаптирована для арены с 4 рукавами или 4 камерами, проведение теста на арене с открытым полем обеспечивает большее разграничение между навигационной/пространственной памятью и социальной памятью. Нагрузка на пространственную память выше при перемещении между отдельными отсеками или рукавами; следовательно, при исследовании механизмов социальной памяти пространственная память должна быть важной оцениваемой переменной. Netser et al (2017) также обсуждают эти ограничения в отношении типичной арены с 3 камерами, предлагая аналогичную альтернативу в виде двухкамерной арены, которая сводит к минимуму необходимость пространственной навигации20. Данный метод хорошо подходит для исследований нейронного представления социальной знакоммости, лонгитюдных изменений в социальном познании и условий, при которых долгосрочная социальная память может быть избирательно нарушена.
Раскрытие информации
Авторы не имеют конфликтов интересов, подлежащих раскрытию.
Благодарности
Данная работа была поддержана грантами McKnight Neuroscience Award и Klingenstein Neuroscience Award, предоставленными NPC.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| Программное обеспечение для оценки поведения | Behavioral Observation Research Interactive Software | Версия 9.12.7 | Программное обеспечение для ручной аннотации событий |
| Арена «открытое поле» | Rafferty Machine and Tool | Индивидуальный заказ | Структурный стеклопластиковый лист, квадратная арена (49.5 cm x 49.5 cm x 49.5 cm); непрозрачные стенки; если арена прозрачная, обклеить внешние стенки бумагой, чтобы минимизировать отвлекающие факторы для животного |
| Надголовная камера | Logitech | Logitech C920x HD Pro PC Webcam | Камера, способная осуществлять непрерывную видеозапись; установлена над центром арены |
| Перфорированные стаканы | Chinco Store | ONG-Chinco-0279 | размеры стаканов: 4.01"L x 4.01"W x 4.52"H; перфорированные пластиковые или металлические стаканы, могут быть квадратными или цилиндрическими |
| Prism | Graph Pad | Версия 10.6.0 | Программное обеспечение для анализа данных; может быть использовано другое ПО |
Ссылки
- Wolff JO, Sherman PW, editors. Rodent societies: an ecological and evolutionary perspective. University of Chicago Press; Chicago; 2008.
- Thor DH, Holloway WR. Social memory of the male laboratory rat. J Comp Physiol Psychol. 1982;96(6):1000-1006.
- Theory of mind and autism: A review. International Review of Research in Mental Retardation. Academic Press; 2000.
- Bediou B, et al. Impaired social cognition in mild Alzheimer disease. J Geriatr Psychiatry Neurol. 2009;22(2):130-140.
- Green MF, Horan WP, Lee J. Social cognition in schizophrenia. Nat Rev Neurosci. 2015;16(10):620-631.
- Bäckman L, Herlitz A. The relationship between prior knowledge and face recognition memory in normal aging and Alzheimer's disease. J Gerontol. 1990;45(3):P94-P100.
- Moy SS, et al. Sociability and preference for social novelty in five inbred strains: An approach to assess autistic-like behavior in mice. Genes Brain Behav. 2004;3(5):287-302.
- Engelmann M, Hädicke J, Noack J. Testing declarative memory in laboratory rats and mice using the nonconditioned social discrimination procedure. Nat Protoc. 2011;6(8):1152-1162.
- van der Kooij MA, Sandi C. Social memories in rodents: Methods, mechanisms and modulation by stress. Neurosci Biobehav Rev. 2012;36(7):1763-1772.
- Cum M, et al. A systematic review and meta-analysis of how social memory is studied. Sci Rep. 2024;14(1):2221.
- Oliva A, Fernández-Ruiz A, Leroy F, Siegelbaum SA. Hippocampal CA2 sharp-wave ripples reactivate and promote social memory. Nature. 2020;587(7833):264-269.
- Oliva A. Neuronal ensemble dynamics in social memory. Curr Opin Neurobiol. 2023;78:102654.
- Okuyama T. Social memory engram in the hippocampus. Neurosci Res. 2018;129:17-23.
- Hitti FL, Siegelbaum SA. The hippocampal CA2 region is essential for social memory. Nature. 2014;508(7494):88-92.
- Dykstra B, Kim P, Lin A, Berman GJ, Murugan M. The intermediate CA1 and CA3 subfields of the hippocampus differentially encode social recognition. bioRxiv. 2025; doi.org/10.1101/2025.10.27.684580.
- Rashid M, et al. A ventral hippocampal-lateral septum pathway regulates social novelty preference. eLife. 2025;13:RP97259.
- Phillips ML, Robinson HA, Pozzo-Miller L. Ventral hippocampal projections to the medial prefrontal cortex regulate social memory. eLife. 2019;8:e44182.
- Medeiros D, Polepalli L, Li W, Pozzo-Miller L. Altered activity of mPFC pyramidal neurons and parvalbumin-expressing interneurons during social interactions in a Mecp2 mouse model for Rett syndrome. J Neurophysiol. 2025;134(6):2070-2085.
- Netser S, et al. Distinct dynamics of social motivation drive differential social behavior in laboratory rat and mouse strains. Nat Commun. 2020;11(1):5908.
- Netser S, Haskal S, Magalnik H, Wagner S. A novel system for tracking social preference dynamics in mice reveals sex- and strain-specific characteristics. Mol Autism. 2017;8:53.
Перепечатки и разрешения
Эта статья была опубликована
Видео скоро будет доступно