Гены, связанные с N6-метиладенозином (m6A), нарушены при раке молочной железы, с ограниченной корреляцией с метилированием или изменением числа копий. Шесть генов, включая YTHDF3, были прогностическими. YTHDF3 является независимым прогностическим фактором, участвующим в метаболизме РНК, репарации ДНК, стабильности теломер и инфильтрации иммунитета. Его повышение было подтверждено клинически, что потребовало дальнейшего изучения.
Исследовательская статья
Комплексный анализ регуляторов m6A выявляет YTHDF3 как перспективный прогностический биомаркер рака молочной железы
* These authors contributed equally
В этой статье
Краткое содержание
Аннотация
Ландшафт экспрессии и прогностическая значимость генов, связанных с N6-метиладенозином (m6A), остаются в значительной степени нехарактеризованными при раке молочной железы. Здесь мы провели интегративный анализ их профилей экспрессии и клинической значимости. Используя мультиомические наборы данных и экспериментальную валидацию, мы провели систематическое исследование генов, связанных с m6A, при раке молочной железы. Эти гены демонстрировали выраженную дифференциальную экспрессию при раке молочной железы, однако их корреляция с молекулярными особенностями, такими как метилирование промоторов и изменение числа копий, была ограничена. Одномерный анализ выживаемости показал, что аномальная экспрессия RBM15B, METTL16, HNRNPC, YTHDF1, YTHDF3 и IGF2BP1 была существенно связана с прогнозом пациента. Многомерная регрессия Кокса дополнительно выявила повышенную экспрессию YTHDF3 как независимый прогностический фактор. Анализ функциональных сетей показал, что YTHDF3 потенциально участвует не только в обработке и метаболизме РНК, но и в репарации ДНК, обработке при-миРНК, стабильности теломер и инфильтрации иммунной системы. Кроме того, арегуляция мРНК YTHDF3 была подтверждена в клинических образцах рака молочной железы. В совокупности гены, связанные с m6A, нарушены при раке молочной железы и коррелируют с исходами пациентов, подчёркивая их потенциал биомаркеров, при этом YTHDF3 требует глубокого изучения.
Введение
Рак молочной железы — это крайне гетерогенная злокачественная опухоль, которая стала самым часто диагностируемым в мире, являясь ведущей причиной смертности женщин, связанных с раком, с оценками в 2,3 миллиона новых случаев и более 680 000 смертей в 2020году 1,2. Несмотря на терапевтические достижения, окончательное решение для всех пациентов остаётся недостижимым, что подчёркивает необходимость выявления молекулярных биомаркеров для ранней диагностики и прогноза.
Аномальные эпигенетические модификации являются отличительной чертой рака3. Среди различных модификаций РНК N6-метиладенозин (m6A) является эпитранскриптомической меткой, всё более признанной своей ролью в ракемолочной железы 4. m6A — это обратимая модификация, преимущественно отложенная в 3'-UTR мРНК млекопитающих и координируемая «писателями» (метилтрансферазами), «ласками» (деметилазами) и «ридерами» (связывающими белками)5. Новые данные указывают на участие генов, связанных с m6A, в развитии и прогрессированииопухолей 6. Однако ландшафт регуляторных факторов m6A при раке молочной железы остаётся плохо определенным, а комплексные генетические и эпигенетические анализы отсутствуют.
В этом исследовании мы идентифицировали дифференциально экспрессированные гены, связанные с m6A, при раке молочной железы с помощью публичных баз данных OMICS и экспериментальной валидации. Мы дополнительно оценили их клиническую прогностическую ценность и изучили лежащие в основе молекулярные механизмы с помощью анализа выживаемости и прогнозирования регуляторных сетей.
Протокол
Экспрессия генов и данные о выживаемости
Данные когорты Атласа генома рака (TCGA), включающие 1 034 образца опухолей рака молочной железы и 104 нормальных смежных тканей (NAT), были получены из Атласа человеческого белка, а также клиническую информацию для 947пациентов 7. Эти данные использовались для анализа профилей экспрессии мРНК генов, связанных с m6A, и их связи с прогнозом. Кроме того, мы использовали онлайн-инструмент Kaplan-Meier Plotter (KMplotter), который агрегирует несколько наборов данных по раку молочной железы, чтобы подтвердить связь между экспрессией YTHDF3 ивыживаемостью 8. Для дальнейшей проверки паттернов экспрессии мы также включили данные из 92 здоровых тканей молочной железы из проекта Genotype-Tissue Expression (GTEx) с помощью Breast Cancer Gene-Expression Miner v4.7 9,10. Уровни белка и мРНК YTHDF3 в различных подтипах рака молочной железы и в нормальных тканях были проанализированы UALCAN на основе Клинического консорциума по анализу протеомных опухолей (CPTAC) и набора данныхTCGA 11.
Генетическая и эпигенетическая оценка
Генетические изменения изучались с помощью cBioPortal, с акцентом на инвазивный набор данных по раку молочной железы (TCGA, Provisional, 1 108 случаев)12. Данные о метилировании промоторов были получены из MethHC, включавшие 839 образцов рака молочной железы и частично парные соседние нормальныеконтрольные группы 13.
Сеть регуляции генов и анализ иммунной инфильтрации
Белок-белковые взаимодействия исследовались с помощью STRING (доверительный балл установлен на 0,4)14. Аннотация генов и обогащение путей проводились с помощью Metascape (p < 0,01, минимальное количество 3, коэффициент обогащения > 1,5)15. Связь экспрессии YTHDF3 при раке молочной железы с иммунной инфильтрацией, включая B-клетки, CD8+ T-клетки, CD4+ T-клетки, макрофаги, нейтрофилы и дендритные клетки (DC), была проанализирована с помощью Tumor Immune Estimation Resource (TIMER). Уровень экспрессии генов, нормализованный при чистоте опухоли, был показан на самой левойпанели 16.
Количественная обратная транскрипционная полимеразная цепная реакция (qRT-ПЦР)
Все участники предоставили письменное информированное согласие, и исследование было одобрено этическим комитетом аффилированной больницы Юго-Западного медицинского университета (одобрение No KY2022124) и проводилось в соответствии с принципами Хельсинкской декларации. Для полной экстракции РНК использовались замороженные образцы опухолей молочной железы и соответствующие соседние неопухолевые образцы. Концентрация и чистота экстракционной РНК оценивались с помощью спектрофотометра, и были включены только образцы с соотношением A260/A 280 1,8–2,0. Целостность РНК была подтверждена электрофорезом 1,5% агарозного геля. Затем кДНК первой цепи была получена из 1 мкг общей РНК в реакции 20 мкл согласно инструкциям производителя. Проводилась количественная ПЦР в реальном времени, при этом каждая реакция на 20 мкл содержала 10 мкл 2× SYBR Green мастер-смеси, 0,4 мкл прямых и обратно праймеров (каждый по 10 мкм), 2 мкл разбавленной кДНК (1:10) и 7,2 мкл воды без нуклеазы. qRT-ПЦР была проведена как описаноранее 17. Праймеры были: β-актин-F, GAAGATCAAGATCATTGCTCT; β-актин-R, TACTCCTGCTTGCTGATCCA; YTHDF3-F, AAAAGACGGGGCCCCTTCCTC; YTHDF3-R, TTGGCCGAGTGATTGTTCCA. Условия термоциклирования включали 95 °C в течение 3 минут, затем следовали 40 циклов по 95 °C в течение 10 секунд, 55 °C в течение 20 с и 72 °C в течение 20 секунд (флуоресценция при 72 °C). Был проведен анализ кривой расплава (95 °C до 60 °C, увеличение 0,5 °C/с) для подтверждения специфичности праймера. Относительная экспрессия была рассчитана с помощью метода 2−ΔΔCt .
Статистический метод
Для сравнения двух групп использовались непарные t-тесты. Для оценки прогностических факторов использовался анализ выживаемости Каплана-Мейера с помощью логарифмического теста и многомерной регрессии Кокса. Для валидации qRT-PCR парные выборки сравнивались с использованием двухстороннего парного t-теста Стьюдента на значения ΔCt. Для рисунка 1 были проведены парные сравнения с помощью теста Даннетта-Тьюки-Крамера. P < 0,05 считался статистически значимым.
Результаты
Дифференциальная экспрессия мРНК генов, связанных с m6A, при раке молочной железы
Анализ данных TCGA и GTEx (1 034 опухоли, 104 NAT, 92 здоровых ткани) показал, что большинство генов, связанных с m6A, были дифференцированно экспрессированы (рисунок 1). По сравнению со здоровыми тканями молочной железы 10 генов были значительно повышены: KIAA1429, RBM15, RBM15B, HNRNPC, YTHDF1, YTHDF2, YTHDF3, IGF2BP1, IGF2BP3 и ALKBH5 (все P < 0,0001, кроме RBM15 P < 0,001). Восемь генов были понижены: WTAP, METTL3, METTL14, HNRNPA2B1, YTHDC1, YTHDC2, IGF2BP2 и FTO (P < 0,05 до P < 0,0001). METTL16 и eIF3A не показали значимой разницы. При сравнении опухолей с NAT HNRNPA2B1 был повышен, тогда как YTHDF3, eIF3A и ALKBH5 были понижены; RBM15, RBM15B и YTHDF2 не показали различий (см. рисунок 1). Использование NAT в качестве контроля ставится под сомнение, что, возможно, объясняет расхождения со сравнением здоровыхтканей 18,19. Интересно, что в наборе данных CPTAC наблюдалась тенденция к увеличению содержания белка YTHDF3 во всех подтипах рака молочной железы по сравнению с нормальными тканями (P < 0,0001). Кроме того, значительно более высокая экспрессия мРНК YTHDF3 наблюдалась только у люминальных подтипов рака молочной железы по сравнению с нормальными тканями (P = 0,004, < 0,01) (Дополнительный рисунок S1). В целом, при раке молочной железы заметна значительная дисрегуляция генов, связанных с m6A.
Метилирование промоторов и амплификация генов, связанных с m6A, при раке молочной железы
Метилирование ДНК играет важную роль в эпигенетической регуляции транскрипции генов, а гиперметилирование промотора подавляет экспрессиюмРНК 20. Анализ MethHC показал значимые различия в метилировании промоторов только для IGF2BP1, IGF2BP2 и IGF2BP3 у опухолей по сравнению с контролем (P < 0,005). Снижение уровня IGF2BP2 мРНК частично связано с её гиперметилированием. Анализ cBioPortal показал, что WTAP и ALKBH5 демонстрировали снижение регуляции мРНК, тогда как KIAA1429 (VIRMA), YTHDF1, YTHDF3 и IGF2BP1 демонстрировали амплификацию генов, связанную с их апрегуляцией (дополнительная рисунок S2, дополнительная рисунок S3 и дополнительная рисунок S4). Эти данные свидетельствуют о том, что уровни мРНК генов, связанных с m6A, не в основном обусловлены метилированием промоторов или амплификацией генов.
Анализ выживаемости генов, связанных с m6A, при раке молочной железы
Анализ выживаемости 947 пациентов показал, что низкая экспрессия RBM15B и высокая экспрессия METTL16, HNRNPC, YTHDF1, YTHDF3 и IGF2BP1 были существенно коррелированы с снижением общей выживаемости (см. рисунок 2 и рисунок 3). Многомерная регрессия Кокса с учётом возраста, стадии и расы подтвердила, что апрегуляция YTHDF3 является независимым предиктором низкой общей выживаемости (HR: 1,024, 95% ДИ: 1,003–1,046, P = 0,024) (Таблица 1 ).Для внешней валидации анализ с помощью онлайн-инструмента KMplotter показал, что высокая экспрессия YTHDF3 предсказывает неблагоприятный прогноз заболевания (дополнительный рисунок S5). Другие гены не имели независимой значимости (Дополнительная таблица S1).
Потенциальная молекулярная сеть и иммунная инфильтрация гена, связанного с m6A, YTHDF3
Анализ STRING YTHDF3 (с ограниченными интеракторами до 50) выявил сеть с 224 рёбрами и значительным обогащением (P < 1e-16). YTHDF3 тесно связан с METTL3, ALKBH5, WTAP, METTL14 и другими (см. рисунок 4A). Анализ обогащения метаскейпа выявил 13 значимых функциональных кластеров (P < 0,01, минимальный счёт 3, коэффициент обогащения > 1,5; Рисунок 4B). Первое место занимает регуляция метаболизма мРНК (GO1903311, 22 гена). Дополнительные кластеры, связанные с раком, включали восстановление делкилирования ДНК (GO0006307), обработку при-миРНК (GO0031053) и стабилизацию теломеразы (GO1904356), среди прочих. Полный список названий кластеров, связанных генов и статистики обогащения приведён в дополнительной таблице S2. Кроме того, результаты выявили значимые положительные корреляции между экспрессией YTHDF3 и иммунными клетками (все P < 0,01) (Дополнительный рисунок S6). Таким образом, арегуляция YTHDF3 может быть связана с метаболизмом мРНК, восстановлением ДНК, поддержанием теломер и иммунной инфильтрацией.
Повышенная экспрессия мРНК YTHDF3 при раке молочной железы
Ткани рака молочной железы и соответствующие сопутствующие нормальные ткани молочной железы были собраны у 20 пациенток, перенесших операции в Департаменте хирургии молочной железы, аффилированной больнице Юго-Западного медицинского университета, с июля 2023 по октябрь 2023 года. qRT-ПЦР-анализ этих парных образцов показал значительно более высокую экспрессию мРНК YTHDF3 в тканях опухоли, чем в соседних нормальных тканях (P = 0,001) (Дополнительный рисунок S7 и Дополнительная таблица S3).
Доступность данных
Все анализируемые в этом исследовании наборы данных доступны публично из следующих репозиториев открытого доступа. Экспрессия генов и клинические данные: Данные экспрессии РНК-секвенции при раке молочной железы и соответствующая клиническая информация были получены из Атласа генома рака (TCGA-BRCA) через Атлас человеческого белка (https://www.proteinatlas.org/). Дополнительные данные о нормальной экспрессии тканей молочной железы были получены из проекта Genotype-Tissue Expression (GTEx) (dbGaP accession phs000424.v8.p2) с помощью Breast Cancer Gene-Expression Miner v4.7 (http://bcgenex.ico.unicancer.fr/). Валидация выживания проводилась с помощью плоттера Каплана-Майера (https://kmplot.com). Данные экспрессии белков и мРНК были получены с помощью UALCAN (http://ualcan.path.uab.edu/). Генетические изменения: Данные о соматических мутациях и изменении числа копий для инвазивного набора данных по раку молочной железы (TCGA, Provisional, 1108 образцов) были получены через cBioPortal (https://www.cbioportal.org/). Метилирование промоторов ДНК: Данные о метилировании были получены из MethHC (http://methhc.mbc.nctu.edu.tw/), который содержит 839 образцов рака молочной железы и частично парные соседние нормальные контрольные группы. Взаимодействие белков и обогащение путей: Анализ функциональных сетей проводился с использованием STRING v12.0 (https://string-db.org/, доверительный балл 0,4) и Metascape (http://metascape.org/). Анализ иммунной инфильтрации проводился с использованием TIMER (https://cistrome.shinyapps.io/timer/). Любые дополнительные данные, лежащие в основе этих цифр, доступны соответствующим автором по разумному запросу.
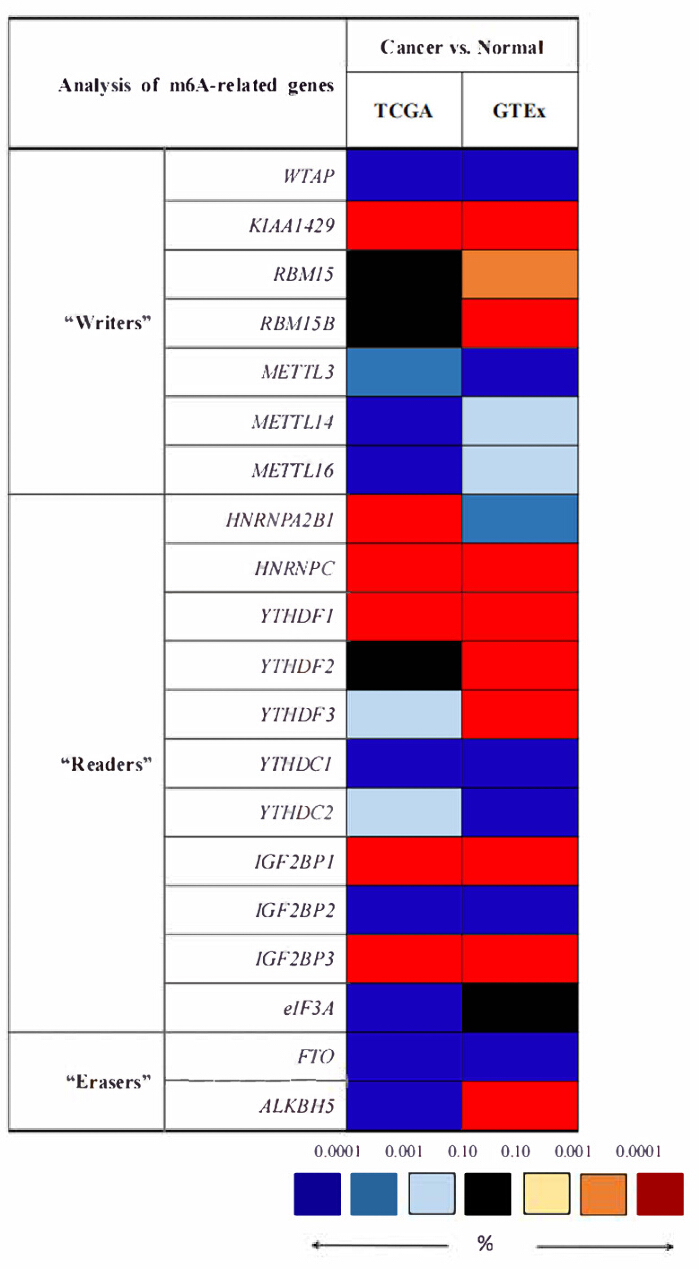
Рисунок 1. Дифференциальная экспрессия мРНК генов, связанных с N6-метиладенозином (m6A), при раке молочной железы. Красный — это повышение регуляции; Синий означает понижение регуляции, чёрный — отсутствие разницы в экспрессии, а белый — отсутствие данных по экспрессии генов. Цветовое кодирование отражает статистическую значимость. Для парных сравнений использовался тест Даннетта-Тьюки-Крамера. Примечание: «Норма» включает сравнение опухолей и NAT в TCGA, а также сравнение опухолей и здоровых тканей в GTEx. Сокращения: NAT = нормальные смежные ткани; TCGA = Атлас генома рака; GTEx = экспрессия генотипа и тканей. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
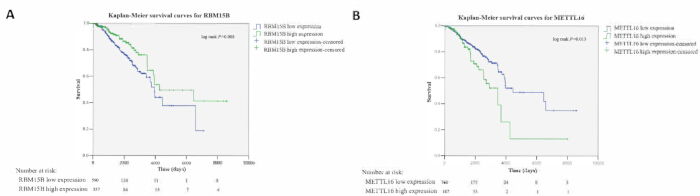
Рисунок 2. Связь между аномальной экспрессией мРНК «писателей» m6A RBM15B и METTL16 и общей выживаемостью у пациенток с раком молочной железы. (A) Низкая экспрессия RBM15B была связана с более короткой общей выживаемостью (лог-ранг-тест, P = 0,008, <0,01); (B) Высокая экспрессия METTL16 была связана с плохим прогнозом (тест log-rank, P = 0,013, <0,05). Пациентов дихотомизировали на группы с высоким и низким уровнем экспрессии с использованием оптимального порога значения. n = 947 (когорта TCGA-BRCA). Синяя и зелёная кривые обозначают группы с низким и высоким выражением соответственно. Единица экспрессии мРНК составляла фрагменты на килобазу транскрипта на миллион отображённых чтений. Аббревиатура: TCGA-BRCA = Атлас генома рака Инвазивная карцинома молочной железы; m6A = N6-метиладенозин. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
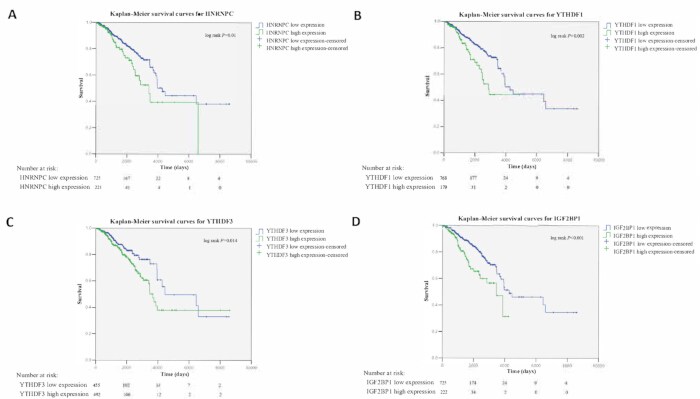
Рисунок 3. Корреляция между аномальной экспрессией мРНК у m6A «ридеров» HNRNPC, YTHDF1, YTHDF3 и IGF2BP1 с общей выживаемостью у пациенток с раком молочной железы. (A) Высокая экспрессия мРНК HNRNPC была связана с снижением общей выживаемости (лог-ранговый тест, P = 0,01, <0,05). (B-D) Высокая экспрессия YTHDF1, YTHDF3 и IGF2BP1 была существенно связана с более плохим прогнозом (лог-ранговый тест, P = 0,002, P = 0,014 и P < 0,001 соответственно). Пациентов дихотомизировали на группы с высоким и низким уровнем экспрессии с использованием оптимального порога значения. n = 947 (когорта TCGA-BRCA). Синяя и зелёная кривые обозначают группы с низким и высоким выражением соответственно. Единица экспрессии мРНК генов составляла фрагменты на килобазу транскрипта на миллион картированных считываний. Сокращения: TCGA-BRCA = Атлас генома рака Инвазивная карцинома молочной железы; m6A = N6-метиладенозин. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
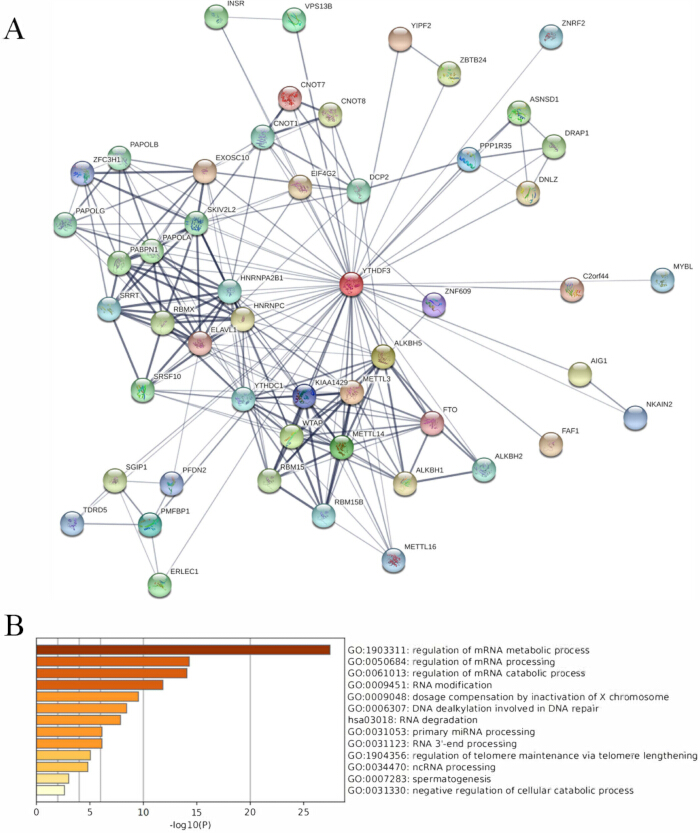
Рисунок 4. Потенциальная молекулярная регуляторная сеть YTHDF3. (A) Сеть взаимодействия белков, построенная путём запроса к базе данных STRING с YTHDF3 в качестве приманки (доверительный балл ≥ 0,4, максимальные интеракторы = 50). Ширина рёбер указывает на прочность подтверждающих доказательств. (B) Анализ метаскейпа выявил 13 значимых функциональных кластеров (P < 0,01, минимальное количество = 3, коэффициент обогащения > 1,5). Источники по онтологии включали Киотскую энциклопедию генов и геномных путей и биологические процессы генной онтологии. Пожалуйста, нажмите здесь, чтобы увидеть увеличенную версию этой фигуры.
| Параметры | HR | 95% ДИ | p-значение |
| YTHDF3 | 1.024 | 1.003-1.046 | 0.024 |
| Возраст | 1.036 | 1.023-1.050 | <0.001 |
| Гонка | 1.275 | 0.892-1.821 | 0.182 |
| Сцена | 2.263 | 1.796-2.851 | <0.001 |
Таблица 1: Результаты многомерного регрессионного анализа выживаемости Кокса для гена, связанного с m6A , YTHDF3. Сокращения: HR = отношение опасности; 95% ДИ = доверительный интервал.
Дополнительная рисунок S1. Уровни белка и мРНК YTHDF3 в различных подтипах рака молочной железы и в нормальных тканях из наборов данных CPTAC и TCGA. Экспрессия белка YTHDF3 в (A) первичных опухолях и нормальных тканях, а также (B) в подтипах инвазивной карциномы молочной железы. Z-значения обозначают количество стандартных отклонений от медианного значения по выборкам для соответствующего типа рака. Значения спектрального подсчёта CPTAC log2 были нормированы сначала внутри каждого профиля выборки, а затем по всем выборкам. (C) Экспрессия мРНК (РНК-последовательность, фрагменты на килобазу транскрипта на миллион картированных считываний) YTHDF3 в различных подтипах инвазивной карциномы молочной железы. Сокращения: CPTAC = Консорциум клинического анализа протеомных опухолей; TCGA = Атлас генома рака. Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительная рисунок S2. Статус метилирования промоторов генов, связанных с m6A, получен из базы данных MethHC. (A) Метилирование промоторов m6A «писателей» при раке молочной железы и нормальных контролях. (B) Промоторное метилирование m6A «ластиков» при раке молочной железы и в нормальных контролях. (C) Метилирование промоторов m6A «читателей» при раке молочной железы и в нормальных контролях. Ред — рак груди; Зелёный, нормальное управление. *P < 0,05, **P < 0,005. Аббревиатура: m6A = N6-метиладенозин. Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительная рисунок S3. Мутации генов и изменения количества копий, проанализированные cBioPortal для m6A «писателей» и «ластителей» (TCGA, Provisional, n = 1,108). (A) Изменения в m6A «writers». (B) Изменения в «ластиках» m6A. Бар-графики показывают частоту каждого типа изменений: missense мутации, усиления, глубокие делеции и множественные изменения. Показаны только гены с частотой изменения ≥ 1%. Общая частота изменений на ген отображается справа. Сокращения: TCGA = Атлас генома рака; m6A = N6-метиладенозин. Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительная рисунок S4. Мутации генов и изменения числа копий анализировали cBioPortal для m6A «считывателей» (TCGA, Provisional, n = 1 108). Бар-графики показывают частоту каждого типа изменений: missense мутации, усиления, глубокие делеции и множественные изменения. Показаны только гены с частотой изменения ≥ 1%. Общая частота изменений на ген отображается справа. Сокращения: TCGA = Атлас генома рака; m6A = N6-метиладенозин. Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительная рисунок S5. Корреляция YTHDF3 с выживаемостью пациенток с раком молочной железы в KMplotter. (A) Высокая экспрессия мРНК YTHDF3 была связана с снижением общей выживаемости (P = 0,011, <0,05). (B-D) Высокая экспрессия YTHDF3 была существенно связана с более низкой выживаемостью без рецидивов, выживаемостью без метастазирования на расстоянии и выживаемостью после прогрессирования (P = 1,9e-09, P = 0,06 и P = 0,029 соответственно). Все значения P были вычислены с помощью логарифмического теста. Количество пациентов, находящихся в группе риска, показано под каждым графиком. Оптимальный порог определялся автоматическим выбором лучшего среза инструмента. Сокращение: KMplotter = плоттер Каплана-Майера. Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительная рисунок S6. Корреляция экспрессии YTHDF3 с иммунной инфильтрацией при раке молочной железы. Экспрессия YTHDF3 положительно коррелировала с уровнями инфильтрации B-клеток, CD4+ T-клеток, CD8+ T-клеток, макрофагов, нейтрофилов и DC в наборе данных TIMER. Чистота опухоли использовалась как ковариат в частичном анализе корреляции Спирмана. Сокращения: DCs = дендритные клетки; ТАЙМЕР = Ресурс оценки иммунитета опухоли. Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительная рисунок S7. Количественная обратная транскрипционная полимеразная цепная реакция экспрессии мРНК YTHDF3 в 20 парных тканях рака молочной железы и прилегающих нормальных тканях. Уровни мРНК YTHDF3 были нормализованы до β-актина. Данные представлены в виде значений 2⁻ΔΔCt. Статистическое сравнение проводилось с использованием двухстороннего парного t-теста Стьюдента позначениям ΔC t (P = 0,001). Сокращения: NC = соседние нормальные ткани молочной железы; BrCa = ткани рака молочной железы. Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительная таблица S1. Обобщённые результаты многомерного анализа выживаемости в генах, связанных с m6A. Сокращения: HR = отношение опасности; 95% ДИ = доверительный интервал. Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительная таблица S2. Результаты аннотации и обогащения 13 генов, связанных с YTHDF3, на основе Metascape.Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительная таблица S3. Клиническая информация о 20 парных образцах рака молочной железы.Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Обсуждение
Несмотря на терапевтические улучшения, ранняя диагностика и персонализированная терапия рака молочной железы остаются вызовом, что требует открытия новых молекулярныхмишеней 21. В этом исследовании были интегрированы мультиомические данные для характеристики генов, связанных с m6A, при раке молочной железы. Наши результаты демонстрируют широкое нарушение регуляции этих генов, в значительной степени независимое от метилирования промоторов или амплификации генов, и связывают аномалионную экспрессию нескольких генов, особенно YTHDF3, с плохим прогнозом. Мы также подтвердили апрегуляцию YTHDF3 в клинических образцах и предсказали его участие в онкологических путях.
Метилирование m6A устанавливается с помощью комплекса «записывающих», включающего WTAP, KIAA1429, RBM15, METTL3 и METTL1422. Хотя WTAP онкогенен при различных злокачественныхопухольях 23,24,25, его снижение регуляции при раке молочной железы подразумевает контекстно-зависимые функции. KIAA1429 урегуляция соответствует её сообщаемой роли в регулировании CDK1 при ракемолочной железы 25. RBM15, известный тем, что влияет на гемопоэз исаркомы 26,27, был повышен регуляцией, тогда как арегуляция RBM15B была связана с улучшением выживаемости, что соответствует положительной корреляции с BAP128. Снижение уровня METTL3, несмотря на сообщения о его ингибировании let-7g, наблюдалосьдругими 29,30. METTL14 снижение регуляции соответствует её роли супрессора опухолей через модификациюm6A 31. METTL16 выражение остаётся спорным и требует дальнейшегоизучения 29,32.
Что касается «ластиков», FTO был понижен в нашей группе, как и в некоторых исследованиях на основеTCGA 29, хотя противоположные данные свидетельствуют о том, что он способствует прогрессированию через BNIP333. ALKBH5 показал варьирующую экспрессию в зависимости от контрольной группы и был причастен к поддержанию ствола рака молочной железы пригипоксии 34,35.
Считыватели, содержащие домен YTH, распознают m6A, а также HNRNPC и HNRNPA2B136. HNRNPA2B1 был усилен в соответствии с её ролью в STAT3/ERK1/2 сигнализации37,38. Апрегуляция HNRNPC соответствует его функции в регулировании интерферонных ответов, вызванныхdsRNA, 39.
YTHDF1 и YTHDF2 выполняют двойную роль в различных видах рака40,41. Накопленные данные указывают на участие YTHDF3 в онкогенных процессах: он способствует гепатоцеллюлярной карциноме через EGFR/STAT3 42, глиобластому с помощью EGFR/ATK/ERK/p2143 и метастазированию рака шейки матки путём метаболического перепрограммирования44. Наше исследование выявило апрегуляцию YTHDF1, YTHDF2 и YTHDF3 при раке молочной железы по сравнению со здоровыми тканями, при этом апрегуляция YTHDF3 была дополнительно подтверждена экспериментально. Это способствует дальнейшим исследованиям YTHDF3 при раке молочной железы. YTHDC1 и YTHDC2 были снижены регуляцией, хотя другие исследования сообщают об их прометастатической роли при раке эндометрияи толстой кишки 45,46.
Белки IGF2BP также служат m6Aсчитывателями 47. IGF2BP1 урегуляция соответствует её известной роли в поддержке клоногенногороста 48. IGF2BP2 был снижен регуляцией, возможно, из-за метилирования промоторов, в отличие от сообщений о его промигрирующейроли 49. IGF2BP3 арегуляция соответствует её стимулированию пролиферации через TRIM2550 и кооперативному метастазированию с IGF2BP2 при тройном отрицательном раке молочнойжелезы 51. eIF3A, хотя и пониженная здесь, была предложена в качестве терапевтической цели52,53. Прирост числа копий коррелирует с YTHDF1 и экспрессией IGF2BP1 у других видов рака54. Эти данные подтверждают, что дисрегуляция m6A широко распространена при раке молочной железы.
Ключевым стало то, что мы определили YTHDF3 как независимый прогностический фактор, подтверждающий недавниеисследования 55,56,57,58,59. Другие гены m6A, такие как FTO и IGF2BP3, также связаны с плохим прогнозом и химиорезистентностью при ракемолочной железы 33,60,61.
Наше обогащение путей подчеркнуло ожидаемую роль YTHDF3 в метаболизмеРНК 62. Более того, он предполагал участие в ремонте делкилирования ДНК через членов семьиALKBH 63,64. Кроме того, связи с обработкой при-миРНК через HNRNPA2B1, SRRT и METTL3 65,66,67,68, а также стабилизацией теломеразы через EXOSC10 и DCP2 69, указывают на возможные многогранные механизмы. Любопытно, что гиперэкспрессия YTHDF3 связана с метастазами в мозг при раке молочной железы путём усиления трансляции ST6GALNAC5 и GJA170. Недавние исследования ещё больше расширили его онкогенный репертуар: показало, что YTHDF3 усиливает гликолиз и пролиферацию через ось mTOR-HIF1α-LDHA71; для стимулирования остеолитического метастазирования костей через m6A-зависимую трансляцию ZEB1 иSMAD5 72; при тройной отрицательной раке молочной железы YTHDF3 стабилизирует мРНК CENPI для стимулирования опухологенеза73; а также облегчает эпителиально-мезенхимальный переход и метастазы, привлекая eIF4B для стимуляции переноса Notch274. Неизменно, недавние исследования дополнительно подчёркивают более широкую регуляторную сеть m6A при раке молочной железы, включая перепрограммирование метилирования, опосредованное piR-1170/WTAP, при метастазах вмозге 75 и POP1-зависимую, YTHDF-признанную деградацию CDKN1A мРНК вTNBC 76. Эти исследования предполагают, что YTHDF3 может участвовать в различных злокачественных процессах. Таким образом, YTHDF3 может представлять собой перспективный прогностический биомаркер, хотя дальнейшие механистические исследования его роли в росте, апоптозе и метастазах молочной железы необходимы.
Интересно, что анализ TIMER показал общую положительную корреляцию между экспрессией YTHDF3 и уровнем инфильтрации нескольких подгрупп иммунных клеток при раке молочной железы. Биологическая основа этого наблюдения в настоящее время неизвестна и может отражать общее изменение микросреды опухолей при опухолях с высоким содержанием YTHDF3. Для анализа специфической роли YTHDF3 в формировании иммунного ландшафта рака молочной железы требуются специализированные иммуногеномные и функциональные исследования.
У этого исследования есть несколько ограничений. Во-первых, анализы в основном опираются на публичные наборы данных; интеграция данных TCGA и GTEx может вводить пакетные эффекты из-за различий в обработке выборок, платформах секвенирования и конвейерах нормализации, а ретроспективный характер этих баз баз данных несёт врожденные смещения при выборе и аннотации. Во-вторых, когорта клинической валидации была небольшой и с ограниченным наблюдением, и недавно обнаруженные гены, связанные с m6A, не были включены. В-третьих, независимая когортная валидация прогностической ценности YTHDF3 отсутствует, и несоответствия между экспрессией мРНК и белка остаются нерешёнными. Кроме того, отсутствуют прямые in vivo и in vitro доказательства биологической функции YTHDF3 при раке молочной железы, не проводились анализы чувствительности к лекарствам или ответа на лечение, а специфические механизмы, с помощью которых YTHDF3 опосредует модификацию m6A на своих последующих целях, не изучены. Эти оговорки требуют осторожной интерпретации наших выводов. Для подтверждения YTHDF3 как биомаркера и прояснения его механической роли в раке молочной железы необходимы будущие проспективные исследования со стандартизированными протоколами, увеличенными размерами выборок и функциональными экспериментами.
В заключение, этот интегративный анализ всесторонне оценил гены, связанные с m6A, при раке молочной железы. Хотя генетические и эпигенетические изменения имели ограниченное влияние на экспрессию генов, эти гены были в целом дисрегированы и ассоциировались с прогнозом. Наши результаты показывают, что YTHDF3 может служить независимым прогностическим биомаркером, требующим дальнейших биологических исследований рака молочной железы.
Раскрытие информации
У авторов нет конфликта интересов, которые можно было бы заявлять.
Благодарности
Эта работа была профинансирована Фондом естественных наук провинции Сычуань (номер гранта: 2022NSFSC1425), Специальным исследовательским проектом по опухолям Сычуаньской медицинской ассоциации (номер гранта: 2024HR20), исследовательским проектом Медицинского университета Лучжоу — Юго-Западного медицинского университета (номер гранта: 2024LZXNYDJ051), Пекинским фондом клинической онкологии Xisike (номер гранта: Y-SS2025MS-0009) и Пекинским фондом медицинского развития Кэчуана (номер гранта: KC2023-JX-0288-BM74).
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| Breast Cancer Gene-Expression Miner v4.7 | Omics Data Science Unit of Integrated Center for Oncology | http://bcgenex.ico.unicancer.fr/ | Используется для получения данных по выражению генома GTEx нормальной ткани грудной железы; указано в Методы/Доступность данных |
| cBioPortal | Не применимо | https://www.cbioportal.org/ | Анализ генетических изменений и изменений копируемого числа; указано в Методы/ Доступность данных |
| Clinical Proteomic Tumor Analysis Consortium (CPTAC) | Clinical Proteomic Tumor Analysis Consortium | Не применимо | Данные протеомного набора используются через UALCAN; указано в Методы/Доступность данных |
| Genotype-Tissue Expression (GTEx) project | GTEx Consortium | dbGaP accession phs000424.v8.p2 | Источник данных по выражению нормальной ткани грудной железы; указано в Методы/Доступность данных |
| Hieff qPCR SYBR Green Master Mix (No Rox) | YEASEN | qPCR мастер-микс; указано в редакции автора | |
| Hifair III 1st Strand cDNA Synthesis SuperMix for qPCR | YEASEN | Синтез первой цепи cDNA; указано в редакции автора | |
| Kaplan-Meier Plotter (KMplotter) | Не применимо | https://kmplot.com | Онлайн инструмент для валидации выживаемости; указано в Методы/Доступность данных |
| Metascape | Поддерживается грантами NIH U19 AI106754 U19 AI135972 R01 DA03373 | http://metascape.org/ | Аннотация генов и анализ обогащения путей; указано в Методы/Доступность данных |
| MethHC | Не применимо | http://methhc.mbc.nctu.edu.tw/ | Данные по метилированию промоторов ДНК/ресурс; указано в Методы/Доступность данных |
| NanoDrop 2000 спектрофотометр | Thermo Fisher Scientific | Измерение концентрации РНК и ее чистоты; указано в редакции автора | |
| QuantStudio 7 Flex Real-Time PCR System | Applied Biosystems | Количественная реакция ПЦР в реальном времени; указано в редакции автора | |
| SPSS 13.0 | Не предоставлено в рукописи | Версия 13.0 | Статистические анализы; указано в редакции автора |
| STRING v12.0 | STRING Consortium | https://string-db.org/ | Анализ сети взаимодействий белков; оценка достоверности 0,4; указано в Рисунок 4/Доступность данных |
| The Cancer Genome Atlas (TCGA-BRCA) | The Cancer Genome Atlas | TCGA-BRCA | Источник данных по выражению генов, клиническим данным, генетическим изменениям/ копируемому числу; указано в Методы/Доступность данных |
| The Human Protein Atlas | The Human Protein Atlas | https://www.proteinatlas.org/ | Источник, используемый для получения данных по выражению RNA-seq рака молочной железы TCGA и клинических данных; указано в Методы/Доступность данных |
| TIMER | X Shirley Liu Lab | https://cistrome.shinyapps.io/timer/ | Анализ иммунной инфильтрации; указано в Методы/Доступность данных |
| TRIzol reagent | Invitrogen | Извлечение РНК; указано в редакции автора | |
| UALCAN | The University of Alabama at Birmingham | http://ualcan.path.uab.edu/ | Анализ выражения белков и мРНК на основе данных CPTAC и TCGA; указано в Методы/Доступность данных |
Ссылки
- Yeo SK, Guan JL. Breast cancer: multiple subtypes within a tumor? Trends Cancer. 2017;3(11):753-60.
- Sung H et al. Global cancer statistics 2020: GLOBOCAN estimates of incidence and mortality worldwide for 36 cancers in 185 countries. CA Cancer J Clin. 2021;71(3):209-49.
- Bennett RL, Licht JD. Targeting epigenetics in cancer. Annu Rev Pharmacol Toxicol. 2018;58:187-207.
- Wu L et al. Changes of N6-methyladenosine modulators promote breast cancer progression. BMC Cancer. 2019;19(1):326.
- Roignant JY, Soller M. m6A in mRNA: an ancient mechanism for fine-tuning gene expression. Trends Genet. 2017;33(6):380-90.
- Pan Y et al. Multiple functions of m6A RNA methylation in cancer. J Hematol Oncol. 2018;11(1):48.
- Uhlen M et al. Towards a knowledge-based Human Protein Atlas. Nat Biotechnol. 2010;28(12):1248-50.
- Győrffy B. Survival analysis across the entire transcriptome identifies biomarkers with the highest prognostic power in breast cancer. Comput Struct Biotechnol J. 2021;19:4101-9.
- Jézéquel P et al. bc-GenExMiner 4.5: new mining module computes breast cancer differential gene expression analyses. Database (Oxford). 2021;2021:baab007.
- GTEx Consortium. The GTEx Consortium atlas of genetic regulatory effects across human tissues. Science. 2020;369(6509):1318-30.
- Chandrashekar DS et al. UALCAN: an update to the integrated cancer data analysis platform. Neoplasia. 2022;25:18-27.
- Cerami E et al. The cBio cancer genomics portal: an open platform for exploring multidimensional cancer genomics data. Cancer Discov. 2012;2(5):401-4.
- Huang WY et al. MethHC: a database of DNA methylation and gene expression in human cancer. Nucleic Acids Res. 2015;43(Database issue):D856-61.
- Szklarczyk D et al. STRING v10: protein-protein interaction networks, integrated over the tree of life. Nucleic Acids Res. 2015;43(Database issue):D447-52.
- Zhou Y et al. Metascape provides a biologist-oriented resource for the analysis of systems-level datasets. Nat Commun. 2019;10(1):1523.
- Li T et al. TIMER: a web server for comprehensive analysis of tumor-infiltrating immune cells. Cancer Res. 2017;77(21):e108-10.
- Wang Y et al. Zinc finger and SCAN domain-containing 18 suppresses the proliferation, self-renewal, and drug resistance of glioblastoma cells. Heliyon. 2023;9(6):e17000.
- Cancer Genome Atlas Research Network. The Cancer Genome Atlas Pan-Cancer analysis project. Nat Genet. 2013;45(10):1113-20.
- Aran D et al. Comprehensive analysis of normal adjacent to tumor transcriptomes. Nat Commun. 2017;8(1):1077.
- Xiang TX et al. Aberrant promoter CpG methylation and its translational applications in breast cancer. Chin J Cancer. 2013;32(1):12-20.
- Pasculli B, Barbano R, Parrella P. Epigenetics of breast cancer: biology and clinical implication in the era of precision medicine. Semin Cancer Biol. 2018;51:22-35.
- Meyer KD, Jaffrey SR. Rethinking m6A readers, writers, and erasers. Annu Rev Cell Dev Biol. 2017;33:319-42.
- Jo HJ et al. WTAP regulates migration and invasion of cholangiocarcinoma cells. J Gastroenterol. 2013;48(11):1271-82.
- Chen Y et al. WTAP facilitates progression of hepatocellular carcinoma via m6A-HuR-dependent epigenetic silencing of ETS1. Mol Cancer. 2019;18(1):127.
- Qian JY et al. KIAA1429 acts as an oncogenic factor in breast cancer by regulating CDK1 in an N6-methyladenosine-independent manner. Oncogene. 2019;38(33):6123-41.
- Garcia-Dios DA et al. MED12, TERT promoter and RBM15 mutations in primary and recurrent phyllodes tumours. Br J Cancer. 2018;118(2):277-84.
- Hu M, Yang Y, Ji Z, Luo J. RBM15 functions in blood diseases. Curr Cancer Drug Targets. 2016;16(7):579-85.
- Shahriyari L, Abdel-Rahman M, Cebulla C. BAP1 expression is prognostic in breast and uveal melanoma but not colon cancer and is highly positively correlated with RBM15B and USP19. PLoS One. 2019;14(2):e0211507.
- Zhang B et al. Expression and prognostic characteristics of m6A RNA methylation regulators in breast cancer. Front Genet. 2020;11:604597.
- Cai X et al. HBXIP-elevated methyltransferase METTL3 promotes the progression of breast cancer via inhibiting tumor suppressor let-7g. Cancer Lett. 2018;415:11-9.
- Gu C et al. Mettl14 inhibits bladder TIC self-renewal and bladder tumorigenesis through N6-methyladenosine of Notch1. Mol Cancer. 2019;18(1):168.
- Yeon SY et al. Frameshift mutations in repeat sequences of ANK3, HACD4, TCP10L, TP53BP1, MFN1, LCMT2, RNMT, TRMT6, METTL8 and METTL16 genes in colon cancers. Pathol Oncol Res. 2018;24(3):617-22.
- Niu Y et al. RNA N6-methyladenosine demethylase FTO promotes breast tumor progression through inhibiting BNIP3. Mol Cancer. 2019;18(1):46.
- Zhang C et al. Hypoxia-inducible factors regulate pluripotency factor expression by ZNF217- and ALKBH5-mediated modulation of RNA methylation in breast cancer cells. Oncotarget. 2016;7(40):64527-42.
- Zhang C et al. Hypoxia induces the breast cancer stem cell phenotype by HIF-dependent and ALKBH5-mediated m6A-demethylation of NANOG mRNA. Proc Natl Acad Sci U S A. 2016;113(14):E2047-56.
- Liao S, Sun H, Xu C. YTH domain: a family of N6-methyladenosine (m6A) readers. Genomics Proteomics Bioinformatics. 2018;16(2):99-107.
- Alarcón CR et al. HNRNPA2B1 is a mediator of m6A-dependent nuclear RNA processing events. Cell. 2015;162(6):1299-308.
- Hu Y et al. Splicing factor hnRNPA2B1 contributes to tumorigenic potential of breast cancer cells through STAT3 and ERK1/2 signaling pathway. Tumour Biol. 2017;39(3):1010428317694318.
- Wu Y et al. Function of HNRNPC in breast cancer cells by controlling the dsRNA-induced interferon response. EMBO J. 2018;37(23):e99017.
- Nishizawa Y et al. Oncogene c-Myc promotes epitranscriptome m6A reader YTHDF1 expression in colorectal cancer. Oncotarget. 2018;9(7):7476-86.
- Zhong L et al. YTHDF2 suppresses cell proliferation and growth via destabilizing the EGFR mRNA in hepatocellular carcinoma. Cancer Lett. 2019;442:252-61.
- Hu B et al. m6A reader YTHDF3 triggers the progression of hepatocellular carcinoma through the YTHDF3/m6A-EGFR/STAT3 axis and EMT. Mol Carcinog. 2023;62(10):1599-614.
- Lee HH et al. YTHDF3 modulates EGFR/AKT/ERK/p21 signaling axis to promote cancer progression and osimertinib resistance of glioblastoma cells. Anticancer Res. 2023;43(12):5485-98.
- Zhong S et al. The inhibition of YTHDF3/m6A/LRP6 reprograms fatty acid metabolism and suppresses lymph node metastasis in cervical cancer. Int J Biol Sci. 2024;20(3):916-36.
- Zhang B et al. YT521 promotes metastases of endometrial cancer by differential splicing of vascular endothelial growth factor A. Tumour Biol. 2016;37(12):15543-9.
- Tanabe A et al. RNA helicase YTHDC2 promotes cancer metastasis via the enhancement of the efficiency by which HIF-1α mRNA is translated. Cancer Lett. 2016;376(1):34-42.
- Huang H et al. Recognition of RNA N6-methyladenosine by IGF2BP proteins enhances mRNA stability and translation. Nat Cell Biol. 2018;20(3):285-95.
- Fakhraldeen SA et al. Two isoforms of the RNA binding protein, coding region determinant-binding protein (CRD-BP/IGF2BP1), are expressed in breast epithelium and support clonogenic growth of breast tumor cells. J Biol Chem. 2015;290(21):13386-400.
- Li Y, Francia G, Zhang JY. p62/IMP2 stimulates cell migration and reduces cell adhesion in breast cancer. Oncotarget. 2015;6(32):32656-68.
- Wang Z et al. Blockade of miR-3614 maturation by IGF2BP3 increases TRIM25 expression and promotes breast cancer cell proliferation. EBioMedicine. 2019;41:357-69.
- Kim HY, Ha Thi HT, Hong S. IMP2 and IMP3 cooperate to promote the metastasis of triple-negative breast cancer through destabilization of progesterone receptor. Cancer Lett. 2018;415:30-9.
- Meyer KD et al. 5′ UTR m6A promotes cap-independent translation. Cell. 2015;163(4):999-1010.
- Yin JY et al. eIF3a: a new anticancer drug target in the eIF family. Cancer Lett. 2018;412:81-7.
- Bell JL et al. IGF2BP1 harbors prognostic significance by gene gain and diverse expression in neuroblastoma. J Clin Oncol. 2015;33(11):1285-93.
- Liu L et al. N6-methyladenosine-related genomic targets are altered in breast cancer tissue and associated with poor survival. J Cancer. 2019;10(22):5447-59.
- Anita R, Paramasivam A, Priyadharsini JV, Chitra S. The m6A readers YTHDF1 and YTHDF3 aberrations associated with metastasis and predict poor prognosis in breast cancer patients. Am J Cancer Res. 2020;10(8):2546-54.
- Zhao G et al. Gene signatures and cancer-immune phenotypes based on m6A regulators in breast cancer. Front Oncol. 2021;11:756412.
- Demircan T, Yavuz M, Akgul S. m6A pathway regulators are frequently mutated in breast invasive carcinoma and may play an important role in disease pathogenesis. OMICS. 2021;25(10):660-78.
- Lv W et al. Analysis and validation of m6A regulatory network: a novel circBACH2/hsa-miR-944/HNRNPC axis in breast cancer progression. J Transl Med. 2021;19(1):527.
- Ohashi R et al. IMP3 contributes to poor prognosis of patients with metaplastic breast carcinoma: a clinicopathological study. Ann Diagn Pathol. 2017;31:30-5.
- Ohashi R et al. Prognostic value of IMP3 expression as a determinant of chemosensitivity in triple-negative breast cancer. Pathol Res Pract. 2017;213(9):1160-5.
- Chen XY, Zhang J, Zhu JS. The role of m6A RNA methylation in human cancer. Mol Cancer. 2019;18(1):103.
- Drabløs F et al. Alkylation damage in DNA and RNA: repair mechanisms and medical significance. DNA Repair (Amst). 2004;3(11):1389-407.
- Fedeles BI et al. The AlkB family of Fe(II)/α-ketoglutarate-dependent dioxygenases: repairing nucleic acid alkylation damage and beyond. J Biol Chem. 2015;290(34):20734-42.
- Villarroya-Beltri C et al. Sumoylated hnRNPA2B1 controls the sorting of miRNAs into exosomes through binding to specific motifs. Nat Commun. 2013;4:2980.
- Hu X et al. Depletion of Ars2 inhibits cell proliferation and leukemogenesis in acute myeloid leukemia by modulating the miR-6734-3p/p27 axis. Leukemia. 2019;33(5):1090-101.
- Chen Y et al. Ars2 promotes cell proliferation and tumorigenicity in glioblastoma through regulating miR-6798-3p. Sci Rep. 2018;8(1):15602.
- Alarcón CR et al. N6-methyladenosine marks primary microRNAs for processing. Nature. 2015;519(7544):482-5.
- Shukla S et al. Inhibition of telomerase RNA decay rescues telomerase deficiency caused by dyskerin or PARN defects. Nat Struct Mol Biol. 2016;23(4):286-92.
- Chang G et al. YTHDF3 induces the translation of m6A-enriched gene transcripts to promote breast cancer brain metastasis. Cancer Cell. 2020;38(6):857-71.e7.
- Liu Z et al. YTHDF3 mediates the occurrence and development of breast cancer by regulating glycolysis through the mTOR-HIF1α-LDHA axis. J Cell Mol Med. 2026;30(9):e71105.
- Xu L et al. YTHDF3 promotes breast cancer osteolytic bone metastasis by enhancing the translation of ZEB1 and SMAD5. Oncogenesis. 2025;14(1):41.
- Zhang Y, Chen S, Wu Q. The m6A reader YTHDF3 promotes TNBC progression by regulating CENPI stabilization. Front Oncol. 2025;15:1546723.
- Chen H et al. YTHDF3 drives tumor growth and metastasis by recruiting eIF4B to promote Notch2 translation in breast cancer. Cancer Lett. 2025;614:217534.
- Luo Y et al. piR-1170 drives brain metastasis and immune evasion via WTAP-mediated m6A methylation reprogramming in triple-negative breast cancer. Mol Cancer. 2026;25(1):52.
- Zhang C et al. POP1 facilitates proliferation in triple-negative breast cancer via m6A-dependent degradation of CDKN1A mRNA. Research (Wash D C). 2024;7:0472.