В данном протоколе описаны подходы in vivo и in vitro для изучения влияния N-лактоил-фенилаланина на диабетическую кардиомиопатию, липидный обмен в сердце и синтез холестерина с акцентом на сигнальный путь аденозинмонофосфат-активируемой протеинкиназы альфа 1 / 3-гидрокси-3-метилглутарил-коэнзим А-редуктазы.
Для просмотра этого контента требуется подписка на JoVE. Войдите или начните свой бесплатный пробный период.
Исследовательская статья
N-лактоил-фенилаланин улучшает сердечную функцию на мышиной модели диабетической кардиомиопатии посредством регуляции липидного обмена
В этой статье
Краткое содержание
Аннотация
Диабетическая кардиомиопатия (ДКМ) является одним из самых серьезных осложнений диабета. N-лактоил-фенилаланин (Lac-Phe), эндогенный метаболит, может способствовать снижению веса и улучшению гомеостаза глюкозы. Данное исследование было направлено на изучение терапевтического эффекта Lac-Phe при ДКМ и дальнейшее исследование лежащего в его основе механизма. Мышам с сахарным диабетом 2-го типа и ДКМ вводили Lac-Phe. Lac-Phe улучшил сократительную функцию сердца, смягчил патологическое ремоделирование и снизил накопление липидов в сердце. In vitro эффекты Lac-Phe изучались на клетках H9c2, стимулированных высокой концентрацией глюкозы и пальмитиновой кислоты. Lac-Phe снизил накопление липидов за счет подавления синтеза холестерина в клетках H9c2. С точки зрения механизма, Lac-Phe стимулировал фосфорилирование и активацию альфа-1 субъединицы АМФ-активируемой протеинкиназы (AMPKα1). Впоследствии активированная AMPKα1 фосфорилировала и ингибировала свою нижестоящую мишень, 3-гидрокси-3-метилглутарил-коэнзим А-редуктазу (HMGCR), что привело к снижению синтеза холестерина и, в конечном итоге, к устранению дисбаланса липидного обмена в клетках H9c2. Эти результаты показывают, что Lac-Phe улучшает липидный обмен в клетках H9c2 при ДКМ через путь AMPKα1/HMGCR, тем самым улучшая сократительную функцию сердца и смягчая патологическое ремоделирование. Lac-Phe может представлять собой потенциальный терапевтический подход для лечения диабетической кардиомиопатии.
Введение
Диабет представляет собой метаболическое заболевание, характеризующееся стойкой гипергликемией1. За последние два десятилетия диабет стал одной из десяти основных причин смерти во всем мире: ежегодно от диабета и его осложнений умирает более шести миллионов человек2. Диабетическая кардиомиопатия (ДКМ) — патологическое состояние сердца, развивающееся вследствие диабета, является одним из наиболее тяжелых осложнений, связанных с этим заболеванием3,4. Она выступает в качестве независимого фактора риска сердечной недостаточности и характеризуется структурными и функциональными изменениями миокарда5,6, включая фиброз миокарда и гипертрофию кардиомиоцитов, что в конечном итоге приводит как к диастолической, так и к систолической дисфункции. Несмотря на то, что в настоящее время при лечении ДКМ применяются несколько стандартных методов сердечно-сосудистой терапии, такие как β-блокаторы, ингибиторы ангиотензинпревращающего фермента и блокаторы рецепторов ангиотензина II 1-го типа7,8, их эффективность в клинической практике остается субоптимальной. Поскольку механизмы, лежащие в основе ДКМ, не были изучены достаточно подробно9, на данный момент не существует четкой стратегии лечения этого заболевания10,11. Клинические проявления ДКМ прогрессируют от бессимптомной диастолической дисфункции на ранней стадии до систолической дисфункции и клинической сердечной недостаточности на поздней стадии, вплоть до летального исхода12,13. Таким образом, существует острая необходимость в поиске и разработке эффективных методов лечения данного состояния.
Нарушение липидного обмена является ключевой характеристикой DCM14. При DCM повышенный уровень свободных жирных кислот (СЖК) в крови может привести к избыточному поглощению жирных кислот кардиомиоцитами15,16. Метаболизм жирных кислот в кардиомиоцитах в основном зависит от окисления жирных кислот. Со временем окисления жирных кислот в кардиомиоцитах становится недостаточно для полного метаболизма всех поглощенных жирных кислот, в результате чего в кардиомиоцитах накапливаются избыточные жирные кислоты и их промежуточные метаболиты17. Эта избыточная липидная нагрузка вызывает липотоксичность, нарушает энергоснабжение миокарда, способствует развитию окислительного стресса и воспалительных реакций в сердце, что в конечном итоге приводит к серьезному повреждению кардиомиоцитов18,19. Таким образом, активная регуляция липидного обмена в сердце может стать потенциальной терапевтической мишенью при DCM20.
N-лактоил-фенилаланин (Lac-Phe) представляет собой эндогенный метаболит, концентрация которого быстро повышается после физических нагрузок21. С точки зрения механизма, Lac-Phe синтезируется цитозольным ферментом карнозиндипептидазой 2 (CNDP2) путем конденсации лактата и фенилаланина. Этот биосинтетический путь широко распространен в различных типах клеток, включая макрофаги, эпителиальные клетки и мезенхимальные стволовые клетки, которые секретируют Lac-Phe в кровоток после физической активности22. Было показано, что хроническое введение Lac-Phe эффективно снижает потребление пищи, уменьшает ожирение и массу тела, а также улучшает гомеостаз глюкозы21. Недавнее исследование показало, что Lac-Phe может улучшить способность микроглии/макрофагов к липидному обмену после повреждения спинного мозга23. Интересно, что исследования указывают на то, что как острое, так и хроническое введение метформина, препарата первой линии для лечения диабета 2 типа, может повышать уровни Lac-Phe, и что Lac-Phe опосредует противоожирение эффекты метформина22. Более того, Sha и соавт. недавно продемонстрировали, что Lac-Phe уменьшает гибель клеток миокарда, облегчая митохондриальную дисфункцию, тем самым улучшая состояние при сердечной недостаточности, индуцированной поперечным сужением аорты (TAC)24. Длительная гипергликемия и ожирение являются важными факторами, способствующими нарушению липидного обмена при DCM25. В совокупности эти данные свидетельствуют о том, что Lac-Phe может оказывать потенциальный терапевтический эффект при DCM. Однако на сегодняшний день роль Lac-Phe конкретно при DCM не изучалась.
В данном исследовании мы обнаружили, что экзогенное введение Lac-Phe мышам с диабетической кардиомиопатией эффективно улучшало сократительную функцию сердца и уменьшало патологическое ремоделирование миокарда. Было установлено, что Lac-Phe улучшает функцию сердца у мышей с DCM путем регуляции дисбаланса липидного обмена. Lac-Phe снижал накопление липидных капель (LD) в кардиомиоцитах мышей с DCM и уменьшал содержание холестерина в сердце. С точки зрения механизмов, Lac-Phe стимулировал фосфорилирование и активацию аденозинмонофосфат-активируемой протеинкиназы альфа 1 (AMPKα1), тем самым способствуя фосфорилированию 3-гидрокси-3-метилглутарил-коэнзим А-редуктазы (HMGCR). Фосфорилирование HMGCR снижает ее активность, что приводит к уменьшению выработки холестерина и, следовательно, к устранению дисбаланса липидного обмена в кардиомиоцитах. Эти результаты создают теоретическую основу для потенциального лечения DCM с помощью Lac-Phe.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Протокол
Протокол исследования на животных был одобрен Институциональным комитетом по этике больницы Drum Tower в Нанкине (номер одобрения: 2025AE1065, 26 сентября 2025 г.) и проводился в соответствии с принципами, изложенными в Guidelines for the Care and Use of Laboratory Animals (8-е издание), опубликованном Национальными институтами здравоохранения США.
Животные
В данном исследовании было использовано тридцать 5-недельных самцов мышей линии C57BL/6J. После 1 недели адаптивного кормления все мыши содержались с неограниченным доступом к корму и воде при сменяющемся 12-часовом дневном и ночном цикле, температуре 22°C ± 2°C и влажности 40%–60%. Для создания модели дилатационной кардиомиопатии (ДКМ) у мышей использовали сочетание высокожировой диеты (HFD) и низких доз STZ (Рисунок 1A). Через четыре недели после начала кормления высокожировой диетой (HFD; 60% жиров, 20% белков и 20% углеводов) мыши подвергались ночному голоданию, после чего им вводили стрептозотоцин (STZ; 8 mg/mL в цитратном буфере, pH 4.5) путем внутрибрюшинных инъекций в дозе 35 mg/kg/day в течение трех дней подряд. Мыши контрольной группы получали контрольную диету (10% жиров, 20% белков и 70% углеводов) и эквивалентные объемы цитратного буфера. После еще 15 недель поддержания высокожировой диеты модели ДКМ считались успешно созданными, если мыши соответствовали обоим критериям: уровень случайного глюкозы в крови ≥13.3 mmol/L и фракция выброса левого желудочка (LVEF) <55%. Эти валидированные мыши с ДКМ были пронумерованы и случайным образом распределены по группам ДКМ и ДКМ + Lac-Phe с помощью таблицы случайных чисел. Примерно у половины мышей модель не развилась; эти животные были подвергнуты эвтаназии в соответствии с этическими требованиями по содержанию животных. Вкратце, мыши были разделены на три группы: Контроль, ДКМ и ДКМ + Lac-Phe (n = 10 в каждой группе). Всем 10 мышам в каждой группе проводили эхокардиографию, измерение массы тела и ПГТТ. По окончании 28-дневного периода лечения сердца были извлечены для последующего анализа. В каждой группе было по 10 мышей. Из них три мыши из каждой группы были использованы для секвенирования транскриптома, три — для трансмиссионной электронной микроскопии и гистологического окрашивания, и три — для анализа экспрессии белков. Оставшаяся мышь в каждой группе была зарезервирована в качестве подстраховки. После успешного создания модели ДКМ Lac-Phe растворяли в физиологическом растворе до конечной концентрации 10 mg/mL. Мыши в группе ДКМ + Lac-Phe получали Lac-Phe внутрибрюшинно в дозе 50 mg/kg/day при объеме инъекции 5 mL/kg один раз в день в течение 28 дней подряд. Мышам в группах Контроля и ДКМ вводили эквивалентный объем физиологического раствора в качестве плацебо-контроля.
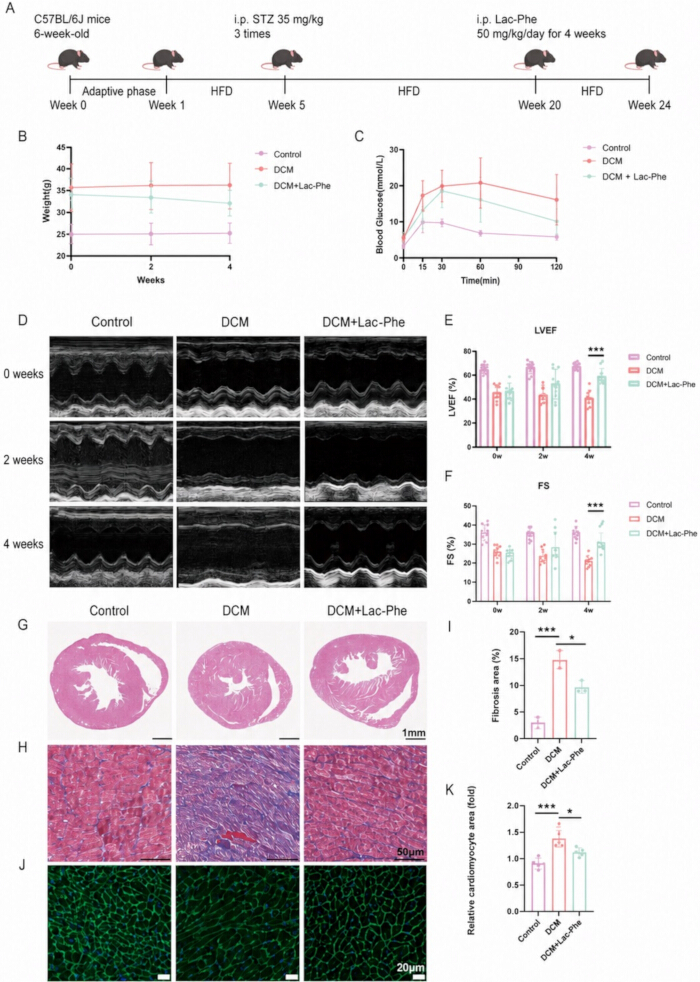
Рисунок 1Lac-Phe улучшает функцию сердца и патологическое ремоделирование у мышей с диабетической кардиомиопатией. (A) Схема модели DCM у мышей, индуцированной HFD/STZ, и протокола лечения Lac-Phe. (B) Масса тела мышей в группах Control, DCM и DCM + Lac-Phe в течение 4-недельного периода лечения; n = 10 в группе. (C) Пероральный тест на толерантность к глюкозе (ПТТГ) в указанных группах; n = 10 в группе. (D) Репрезентативные эхокардиографические изображения на 0, 2 и 4 неделе лечения. (E, F) Количественная оценка фракции выброса левого желудочка (ФВЛЖ) (E) и фракционного сокращения (ФС) (F); n = 10 в группе. (G) Репрезентативные срезы, окрашенные гематоксилином и эозином (H&(E) Окрашенные срезы сердца. Масштабная линейка = 1 мм. (H, I) Репрезентативное окрашивание срезов сердца по методу Массона (H) и количественное определение площади фиброза (I); n = 3 в группе. Масштабная линейка = 50 μm(J, K) Репрезентативное окрашивание срезов сердца агглютинином пшеничных зародышей (WGA) (J) и количественная оценка относительной площади кардиомиоцитов (K); n = 3 на группу. Масштабная линейка = 20 μmДанные представлены в виде среднего значения ± стандартное отклонение P < 0.05, **P < 0.001. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
Функция сердца
После проведения анестезии путем ингаляции изофлурана мышей фиксировали в положении лежа на спине на платформе с контролируемой температурой (37°C). Размеры левого желудочка и скорость кровотока через митральный клапан во время диастолы и систолы измеряли с помощью эхокардиографа, оснащенного датчиком с частотой 40 MHz, на основе которых рассчитывали LVEF и фракцию укорочения (FS). Для каждой мыши регистрировали три последовательных сердечных цикла.
Обработка клеток
Клетки H9c2 культивировали в модифицированной среде Игла в модификации Дульбекко с добавлением 10% эмбриональной бычьей сыворотки и 1% пенициллина-стрептомицина при 37°C в увлажненной атмосфере, содержащей 5% CO₂. Пассирование клеток проводили каждые 2–3 дня при достижении 70%–80% конфлюэнтности. Для проведения экспериментов клетки высевали в чашки диаметром 10 см, после чего разделяли на три группы: контрольную группу, группу с высоким содержанием глюкозы/пальмитиновой кислоты (HG/PA) и группу HG/PA + Lac-Phe. Клетки в группах HG/PA и HG/PA + Lac-Phe предварительно подвергали воздействию 0.25 mM пальмитиновой кислоты и 50 mM глюкозы в течение 24 ч. Затем клетки в группе HG/PA + Lac-Phe обрабатывали Lac-Phe в концентрации 10 μg/mL в течение еще 24 ч при сохранении воздействия HG/PA; клетки в группе HG/PA получали эквивалентный объем PBS в тех же условиях HG/PA. В экспериментах по ингибированию p-AMPK одновременно с Lac-Phe на 24 ч добавляли 10 μM AMPK-IN-3 (растворенного в DMSO), а соответствующие контрольные группы получали равный объем DMSO. В экспериментах с аторвастатином клетки H9c2 в условиях HG/PA обрабатывали 10 μM аторвастатина в течение 24 ч либо самостоятельно, либо в комбинации с 10 μg/mL Lac-Phe.
Гистологическое окрашивание
После 28 дней введения Lac-Phe сердца мышей извлекали и фиксировали методом погружения в 4% параформальдегиде (pH 7.4) в течение 24 ч. Фиксированные ткани сердца заливали парафином и нарезали на срезы толщиной 6-μm. Срезы тканей окрашивали гематоксилином и эозином, лектином из пшеничного зародыша (WGA) и по методу трихрома Массона. Все процедуры окрашивания проводили в строгом соответствии с протоколами производителей. Сканирование всего предметного стекла выполняли при 20× увеличении с использованием светлопольного микроскопа высокого разрешения, оснащенного системой цифровой камеры.
Вестерн-блот анализ
Концентрацию белка определяли с помощью метода Брэдфорда. Лизаты тканей разделяли методом SDS-PAGE на 10% (w/v) акриламидных гелях с последующим электрофоретическим переносом на поливинилиденфторидные мембраны. Неспецифические сайты связывания блокировали 5% бычьим сывороточным альбумином в течение 2 ч при комнатной температуре. Затем мембраны инкубировали в течение ночи при 4°C с первичными антителами (разведение 1:1,000), после чего проводили шесть промывок раствором TBST (по 5 мин каждая) на шейкере. Затем мембраны инкубировали с вторичными антителами, конъюгированными с пероксидазой хрена (разведение 1:5,000), в течение 2 ч при комнатной температуре с последующими еще шестью промывками TBST (по 5 мин каждая). Визуализацию полос белков проводили с использованием набора реагентов для усиленной хемилюминесценции. Количественный анализ результатов вестерн-блоттинга выполняли с помощью денситометрического анализа в программе ImageJ. Все антитела, использованные в данном исследовании, перечислены в Таблице материалов.
Транскриптомика
Общую РНК выделяли из тканей сердца мышей C57BL/6J с использованием реагента TRIzol и наборов RNeasy mini. Качество РНК оценивали с помощью биоанализатора 2100, что подтвердило высокую чистоту и целостность РНК. Библиотеки для RNA-seq подготавливали с использованием набора VAHTS Universal V10 RNA-seq Library Prep Kit и секвенировали на системе Illumina NovaSeq 6000 (одностороннее чтение, 150 bp). Дифференциально экспрессируемые гены определяли с помощью DESeq2; статистически значимыми считали результаты с скорректированным значением P < 0.05 и абсолютным значением log₂ fold change > 1. Для дифференциально экспрессируемых генов проводили анализ обогащения по Gene Ontology (GO), а значимость обогащения дифференциально экспрессируемых генов в категориях GO рассчитывали с помощью алгоритма гипергеометрического распределения.
Окрашивание Oil Red O и окрашивание липидов LD540
Ткань сердца заливали в компаунд OCT, затем нарезали на срезы толщиной 10 μm. Замороженные срезы выдерживали при комнатной температуре в течение 30 min, после чего фиксировали 4% параформальдегидом в течение 10 min. После промывки PBS срезы помещали в 60% изопропиловый спирт на 15 s, а затем покрывали рабочим раствором Oil Red O на 30 min. Далее срезы обрабатывали 60% изопропиловым спиртом в течение 15 s и трижды промывали PBS. Для окрашивания липидов красителем LD540 клетки H9c2 промывали PBS и фиксировали 4% параформальдегидом в течение 10 min при комнатной температуре. Затем клетки инкубировали с 10 μM LD540 в течение 30 min при комнатной температуре.
Просвечивающая электронная микроскопия (ПЭМ)
Свежую ткань сердца мыши нарезали на кусочки размером 1–2 мм3, фиксировали в фиксаторе для электронного микроскопа при 4°C в течение 4 ч, затем промывали дважды дистиллированной водой и погружали в растворы этанола с постепенно возрастающей концентрацией. Образцы заливали, срезали и затем исследовали с помощью просвечивающего электронного микроскопа.
Общее содержание холестерина (ОХ)
Уровни общего холестерина (TC) в образцах сыворотки и клеток H9c2 измеряли с помощью набора Amplex Red Cholesterol and Cholesteryl Ester Assay Kit в соответствии с инструкциями производителя.
Пероральный глюкозотолерантный тест (ПГТТ)
Мышей подвергали голоданию в течение 14 ч (с 19:00 до 9:00), после чего проводили зондовое введение глюкозы (20% стоковый раствор, 2 g/kg). Уровни глюкозы в крови определяли по образцам крови, взятым из хвостовой вены через 0, 15, 30, 60 и 120 мин после введения.
Измерение с помощью набора для подсчета клеток-8 (CCK-8)
Для определения жизнеспособности клеток использовали CCK-8. Клетки H9c2 высевали в 96-луночные планшеты с начальной плотностью 3 × 10⁴ клеток/лунку. После воздействия различных концентраций Lac-Phe в условиях HG/PA в течение 24 ч в каждую лунку к 100 μL культурной среды добавляли 10 μL реагента из набора, затем инкубировали при 37°C в течение 4 ч. Оптическую плотность (OD) определяли по значению абсорбции при 450 nm с помощью мультимодального планшетного ридера.
Молекулярный докинг
Кристаллические структуры Lac-Phe и AMPKα1 были загружены из PubChem26. Процесс молекулярного докинга был выполнен с использованием CB-DOCK227.
Статистический анализ
Все эхокардиографические измерения, гистологическое окрашивание и количественный анализ изображений проводились исследователями, которые не знали о распределении объектов по группам. Весь анализ данных выполнялся с помощью программ Prism и SPSS 20.0. Каждый эксперимент повторяли не менее трех раз; данные представлены как среднее значение ± стандартное отклонение. Гомогенность дисперсии оценивали с помощью теста Левена. Нормальность распределения подтверждали путем графического анализа остатков. Сравнения между несколькими группами проводили с помощью однофакторного дисперсионного анализа с последующим апостериорным тестом Тьюки для попарных сравнений. Для данных ПГТТ использовали двухфакторный дисперсионный анализ с повторными измерениями, где группой был межсубъектный фактор, а временем — внутрисубъектный фактор, с последующим апостериорным тестом Бонферрони. Значение P < 0.05 считалось статистически значимым.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Результаты
Lac-Phe улучшает функцию сердца у мышей с диабетической кардиомиопатией
Мы индуцировали дилатационную кардиомиопатию (ДКМ) у мышей линии C57BL/6J с помощью высокожировой диеты (HFD) в сочетании с инъекциями стрептозотоцина (STZ) (Рисунок 1А) и случайным образом распределили мышей с успешно индуцированной DCM по двум группам: группе без лечения (группа DCM) и группе, получавшей Lac-Phe, при этом контрольные мыши линии C57BL/6J служили отрицательным...
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Обсуждение
В данном исследовании мы приводим данные, подтверждающие терапевтический эффект Lac-Phe при DCM. Lac-Phe улучшал ремоделирование и функцию сердца при DCM, одновременно снижая выработку холестерина в кардиомиоцитах и смягчая дисбаланс липидного обмена. С точки зрения механизмов, Lac-Phe усиливал фосфорилирование AMPKα1. Впоследствии усиление фосфорилирования AMPKα1 было связано с повышенным фосфорилированием и ингибированием его нижележащей мишени HMGCR, что привело к снижению синтеза холестерина и, в конечном итоге, к ус...
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Раскрытие информации
Конфликт интересов:
Авторы не имеют сведений о конфликте интересов.
Благодарности
Мы выражаем искреннюю благодарность исследователям и сотрудникам Клинического колледжа госпиталя Барабанной башни города Нанкин и Аффилированной больницы медицинской школы Нанкинского университета за техническую поддержку. Данное исследование было профинансировано грантами Национального фонда естественных наук Китая (гранты № 81870291 и 82300384), Китайского фонда постдокторских исследований (грант № 2023M731625) и Фонда естественных наук провинции Цзянсу (грант № BK20220175). Мы также признательны за ресурсы и совместную поддержку, предоставленные Институтом передового синтеза Нанкинского технологического университета.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| AMPK-IN-3 (ингибитор p-AMPK) | MedChemExpress (MCE) | HY-132921 | Используется при 10 μM в ходе экспериментов по ингибированию AMPK для подавления сигналинга AMPK в клетках, обработанных Lac-Phe. |
| Набор для определения холестерина и эфиров холестерина Amplex Red | Beyotime | S0211S | Используется для определения общего уровня холестерина в образцах сыворотки и клеток H9c2. |
| антитела к AMPKα1 | Технологии клеточной сигнализации | 2532; RRID: AB_330331 | Первичные антитела, использованные для вестерн-блот анализа AMPKα1. |
| антитела к GAPDH | Cell Signaling Technology | 5174; RRID: AB_10622025 | Первичные антитела, используемые для вестерн-блот-анализа GAPDH. |
| анти-ГМГ-КоА-редуктазные | Abcam | ab174830; RRID: AB_2749818 | Первичный антитело, использованное для вестерн-блот-анализа HMGCR. |
| Анти-p-AMPKα1 (Thr172) | Cell Signaling Technology | 2535; RRID: AB_331250 | Первичные антитела, используемые для вестерн-блот-анализа фосфорилированной AMPKα1. |
| Анти-p-HMGCR (Ser872) | Abcam | ab124350 | Первичные антитела, использованные для вестерн-блот-анализа фосфорилированной HMGCR. |
| Антитела к IgG кролика, конъюгированные с HRP | Cell Signaling Technology | 7074; RRID: AB_2099233 | Использовать в разведении 1:5000 для вестерн-блоттинга. |
| Анти-β$\alpha$-тубулин | Cell Signaling Technology | 2128; RRID: AB_823664 | Первичные антитела, использованные для вестерн-блот-анализа β-тубулин. |
| Аторвастатин | MedChemExpress (MCE) | HY-17379 | Использовали отдельно или в сочетании с Lac-Phe для оценки влияния на накопление липидов, уровень общего холестерина и фосфорилирование HMGCR в клетках H9c2, обработанных HG/PA. |
| Бычий сывороточный альбумин | Sigma-Aldrich | A7906 | Используется в концентрации 5% для блокирования неспецифического связывания при проведении вестерн-блот-анализа. |
| Реагент/набор для метода Брэдфорд | Thermo Fisher Scientific | 23200 | Используется для определения концентрации белка перед проведением вестерн-блот анализа. |
| Мыши линии C57BL/6J (5 недель, самцы) | Центр исследований на животных моделях Нанкинского университета | Поскольку исходный текст не был предоставлен, пожалуйста, введите текст, который необходимо перевести. | Используется для создания мышиной модели диабетической кардиомиопатии, индуцированной диетой с высоким содержанием жиров (HFD) и стрептозотоцином (STZ). |
| Набор для подсчета клеток-8 (CCK-8) | Sharebio | SB-CCK8S | Используется для измерения жизнеспособности клеток H9c2 после обработки. |
| Цитратный буфер | Приготовлено самостоятельно | Поскольку исходный текст не был предоставлен, пожалуйста, введите текст, который необходимо перевести. | Раствор готовили при pH 4,5 и использовали для растворения STZ, а также в качестве соответствующего контрольного раствора (плацебо). |
| Контрольный рацион (10% жиров, 20% белков, 70% углеводов) | Research Diets, Inc. | D12450J | Использовался в качестве рациона для мышей контрольной группы. |
| D-(+)-глюкоза | Sigma-Aldrich | Поскольку исходный текст не был предоставлен, пожалуйста, введите текст, который необходимо перевести. | Используется для обработки клеток HG/PA и для проведения перорального глюкозотолерантного теста. |
| Диметилсульфоксид (ДМСО) | Sigma-Aldrich | D2650 | Использовался в качестве растворителя для AMPK-IN-3 и в качестве соответствующего контроля растворителя. |
| Дюльбекко’модифицированная среда Eagle’среда | Gibco, Thermo Fisher Scientific | 11965092 | Используется в качестве базовой питательной среды для клеток H9c2. |
| Эхокардиограф с датчиком 40 МГц | FUJIFILM VisualSonics | Vevo 3100 LT; датчик 40 МГц | Используется для измерения размеров левого желудочка и скорости кровотока через митральный клапан, а также для расчета фракции выброса левого желудочка (ФВЛЖ) и фракции укорочения (ФУ). |
| Фиксатор для электронной микроскопии | ServiceBio | G1102 | Используется для фиксации свежей ткани сердца мыши для трансмиссионной электронной микроскопии. |
| Этанол | Sigma-Aldrich | E7023 | Используется в прогрессивно возрастающих концентрациях для дегидратации при подготовке образцов для трансмиссионной электронной микроскопии. |
| Фетальная бычья сыворотка | Gibco, Thermo Fisher Scientific | 10099141 | Используется в концентрации 10% в качестве добавки к среде для культивирования клеток H9c2. |
| линия клеток H9c2 | Sunncell | RRID: CVCL_0286 | Использовалась в качестве модели сердечных клеток in vitro для экспериментов по воздействию HG/PA и Lac-Phe. |
| Окрашивание гематоксилином и эозином | ServiceBio | G1005-1/2 | Используется для гистологической оценки тканей сердца. |
| Диета с высоким содержанием жиров (60 ккал% жиров) | Research Diets, Inc. | D12492 | Используется в сочетании с низкой дозой STZ для создания мышиной модели диабетической кардиомиопатии. |
| Светлопольный микроскоп высокого разрешения | Leica | DM2500 | Используется для сканирования всего препарата окрашенной ткани сердца при 20-кратном увеличении× увеличение |
| ImageJ | Национальные институты здравоохранения | Поскольку исходный текст не был предоставлен, я не могу выполнить перевод. Пожалуйста, отправьте текст, который необходимо перевести на русский язык. | Используется для денситометрического количественного анализа результатов вестерн-блоттинга. |
| Изофлуран | Sigma-Aldrich | 792632 | Используется для анестезии при проведении эхокардиографии у мышей. |
| Изопропиловый спирт | Sigma-Aldrich | I9516 | Использовать в концентрации 60% при окрашивании замороженных срезов тканей сердца Oil Red O. |
| окрашивание липидов LD540 | Beyotime | C2050S-1 | Используется при 10 μM для окрашивания внутриклеточных липидов. |
| Массон’окраска трихромом | ServiceBio | G1006 | Используется для гистологического окрашивания тканей сердца. |
| N-лактоил-фенилаланин (Lac-Phe) | MedChemExpress (MCE) | HY-146098 | Препарат вводили мышам с дилатационной кардиомиопатией (ДКМ) и использовали для лечения клеток H9c2, подвергнутых воздействию высокой концентрации глюкозы (ВКГ) и пальмитиновой кислоты (ПК). |
| Рабочий раствор масляного красного О | ServiceBio | G1015-100ML | Используется для окрашивания липидов в замороженных срезах тканей сердца. |
| Набор для эффективной хемилюминесценции Omni-ECL | EpiZyme | SQ203L | Используется для хемилюминесцентной визуализации белковых полос после вестерн-блоттинга. |
| Пальмитиновая кислота | Sigma-Aldrich | P0500 | Использовали в концентрации 0,25 мМ совместно с высокой концентрацией глюкозы для создания модели клеток H9c2, подвергнутых воздействию HG/PA. |
| Параформальдегид | Sigma-Aldrich | P6148 | Готовится в виде 4%-ного раствора и используется для фиксации тканей и клеток сердца перед гистологическим окрашиванием или окрашиванием на липиды. |
| Пенициллин-стрептомицин | Gibco, Thermo Fisher Scientific | 15140122 | Использовать в концентрации 1% в питательной среде для культуры клеток H9c2. |
| Фосфатно-солевой буферный раствор (PBS) | Gibco, Thermo Fisher Scientific | 10010023 | Используется для промывки в ходе процедур окрашивания, а также в качестве соответствующего растворителя в экспериментах по воздействию на клетки. |
| Prism | Программное обеспечение GraphPad | Версия 8.0 | Используется для статистического анализа экспериментальных данных. |
| переносящая мембрана из ПВДФ, 0.45 μm | Thermo Fisher Scientific | 88518 | Используется для электрофоретического переноса белков при проведении вестерн-блот анализа. |
| Набор RNeasy Mini Kit | QIAGEN | 74104 | Используется для выделения/очистки тотальной РНК из тканей сердца мыши. |
| Раствор хлорида натрия 0,9% (физиологический раствор) | Sigma-Aldrich | S8776 | Используется для растворения Lac-Phe, а также в качестве контрольного растворителя для мышей групп Control и DCM. |
| SPSS | IBM | Версия 20.0 | Используется для статистического анализа экспериментальных данных. |
| Стрептозотоцин (STZ) | Sigma-Aldrich | S0130 | Применялось совместно с кормлением диетой с высоким содержанием жиров (HFD) для создания мышиной модели диабетической кардиомиопатии. |
| Буфер TBS с Tween-20 (20×) | Thermo Fisher Scientific | 28360 | Используется для промывки мембран после инкубации с первичными и вторичными антителами при проведении вестерн-блот-анализа. |
| Состав Tissue-Tek O.C.T. | Sakura Finetek | 4583 | Используется для заливки сердечной ткани перед приготовлением замороженных срезов для окрашивания масляным красным О. |
| Пропускающий электронный микроскоп | HITACHI | HT7800 | Используется для изучения ультраструктурных изменений в тканях сердца мыши. |
| Реагент TRIzol | Invitrogen | 15596026 | Используется для выделения тотальной РНК из тканей сердца мыши. |
| Набор для подготовки универсальных библиотек РНК-секвенирования VAHTS Universal V10 RNA-seq Library Prep Kit | Vazyme | NR616-01 | Используется для подготовки библиотек RNA-seq для транскриптомного анализа. |
| Лектин пшеничного зародыша (WGA) | ServiceBio | W7024 | Используется для гистологической оценки сердечной ткани. |
Ссылки
- Pan KL, Hsu YC, Chang ST, Chung CM, Lin CL. The role of cardiac fibrosis in diabetic cardiomyopathy: from pathophysiology to clinical diagnostic tools. Int J Mol Sci. 2023;24(10):8604.
- Saeedi P, et al. Global and regional diabetes prevalence estimates for 2019 and projections for 2030 and 2045: results from the International Diabetes Federation Diabetes Atlas, 9th edition. Diabetes Res Clin Pract. 2019;157:107843.
- Zou R, et al. PGAM5-mediated PHB2 dephosphorylation contributes to diabetic cardiomyopathy by disrupting mitochondrial quality surveillance. Research. 2022;2022:0001.
- Jia G, DeMarco VG, Sowers JR. Insulin resistance and hyperinsulinaemia in diabetic cardiomyopathy. Nat Rev Endocrinol. 2016;12(3):144–53.
- Low Wang CC, Hess CN, Hiatt WR, Goldfine AB. Clinical update: cardiovascular disease in diabetes mellitus: atherosclerotic cardiovascular disease and heart failure in type 2 diabetes mellitus—mechanisms, management, and clinical considerations. Circulation. 2016;133(24):2459–502.
- Liu P, Zhang Z, Chen H, Chen Q. Pyroptosis: mechanisms and links with diabetic cardiomyopathy. Ageing Res Rev. 2024;94:102182.
- Park JJ. Epidemiology, pathophysiology, diagnosis and treatment of heart failure in diabetes. Diabetes Metab J. 2021;45(2):146–57.
- Gilca GE, et al. Diabetic cardiomyopathy: current approach and potential diagnostic and therapeutic targets. J Diabetes Res. 2017;2017:1310265.
- Nakamura K, et al. Pathophysiology and treatment of diabetic cardiomyopathy and heart failure in patients with diabetes mellitus. Int J Mol Sci. 2022;23(7):3587.
- Han X, et al. Cardiomyocyte OTUD1 drives diabetic cardiomyopathy via directly deubiquitinating AMPKα2 and inducing mitochondrial dysfunction. Nat Commun. 2025;16(1):666.
- Jia G, Hill MA, Sowers JR. Diabetic cardiomyopathy: an update of mechanisms contributing to this clinical entity. Circ Res. 2018;122(4):624–38.
- Yao Y, Yang B, Shi J. TiO(x)(OH)(4-2x) nanosheets with catalytic antioxidative activity alleviate oxidative injury in diabetic cardiomyopathy. J Am Chem Soc. 2025;147(4):3885–95.
- Seferovic PM, et al. Diabetic myocardial disorder: a clinical consensus statement of the Heart Failure Association of the ESC and the ESC Working Group on Myocardial & Pericardial Diseases. Eur J Heart Fail. 2024;26(9):1893–903.
- Wang H, et al. Inhibition of fatty acid uptake by TGR5 prevents diabetic cardiomyopathy. Nat Metab. 2024;6(6):1161–77.
- Zhao Y, et al. Ferroptosis: roles and molecular mechanisms in diabetic cardiomyopathy. Front Endocrinol. 2023;14:1140644.
- Nakamura M. Lipotoxicity as a therapeutic target in obesity and diabetic cardiomyopathy. J Pharm Pharm Sci. 2024;27:12568.
- Nakamura M, et al. Glycogen synthase kinase-3α promotes fatty acid uptake and lipotoxic cardiomyopathy. Cell Metab. 2019;29(5):1119–34.e12.
- Ritchie RH, Abel ED. Basic mechanisms of diabetic heart disease. Circ Res. 2020;126(11):1501–25.
- Thakur M, Tupe RS. Lipoxin and glycation in SREBP signaling: insight into diabetic cardiomyopathy and associated lipotoxicity. Prostaglandins Other Lipid Mediat. 2023;164:106698.
- Dhar A, et al. A comprehensive review of the novel therapeutic targets for the treatment of diabetic cardiomyopathy. Ther Adv Cardiovasc Dis. 2023;17:17539447231210170.
- Li VL, et al. An exercise-inducible metabolite that suppresses feeding and obesity. Nature. 2022;606(7915):785–90.
- Xiao S, et al. Lac-Phe mediates the effects of metformin on food intake and body weight. Nat Metab. 2024;6(4):659–69.
- Ying W, et al. N-lactoyl-phenylalanine modulates lipid metabolism in microglia/macrophage via the AMPK-PGC1α-PPARγ pathway to promote recovery in mice with spinal cord injury. J Neuroinflammation. 2025;22(1):167.
- Sha L, et al. N-Lac-Phe ameliorates myocardial cell death by improving mitochondrial dysfunction, ultimately improving TAC-induced heart failure. Cardiovasc Drugs Ther. 2026;40:1391–401.
- Ke J, Pan J, Lin H, Gu J. Diabetic cardiomyopathy: a brief summary on lipid toxicity. ESC Heart Fail. 2023;10(2):776–90.
- PubChem. PubChem. Available from: https://pubchem.ncbi.nlm.nih.gov/. Accessed August 15, 2026.
- Liu Y, Yang X, Gan J, et al. CB-Dock2: improved protein-ligand blind docking by integrating cavity detection, docking and homologous template fitting. Nucleic Acids Res. 2022;50(W1):W159–W164.
- GeneCards. GeneCards: the Human Gene Database. Version 6.1, June 17, 2026.
- Daina A, Michielin O, Zoete V. SwissTargetPrediction: updated data and new features for efficient prediction of protein targets of small molecules. Nucleic Acids Res. 2019;47(W1):W357–W364.
- Jo Y, DeBose-Boyd RA. Post-translational regulation of HMG CoA reductase. Cold Spring Harb Perspect Biol. 2022;14(12):a041253.
- Steinberg GR, Hardie DG. New insights into activation and function of the AMPK. Nat Rev Mol Cell Biol. 2023;24(4):255–72.
- Istvan ES, Deisenhofer J. Structural mechanism for statin inhibition of HMG-CoA reductase. Science. 2001;292(5519):1160–4.
- Beaudry D, et al. Statin therapy in cardiovascular diseases other than atherosclerosis. Curr Atheroscler Rep. 2007;9(1):25–32.
- Koch CG. Statin therapy. Curr Pharm Des. 2012;18(38):6284–90.
- Dewanjee S, et al. Autophagy in the diabetic heart: a potential pharmacotherapeutic target in diabetic cardiomyopathy. Ageing Res Rev. 2021;68:101338.
- Madonna R, et al. Empagliflozin inhibits excessive autophagy through the AMPK/GSK3β signalling pathway in diabetic cardiomyopathy. Cardiovasc Res. 2023;119(5):1175–89.
- Madhavi YV, et al. Targeting AMPK in diabetes and diabetic complications: energy homeostasis, autophagy and mitochondrial health. Curr Med Chem. 2019;26(27):5207–29.
- Fang C, et al. The AMPK pathway in fatty liver disease. Front Physiol. 2022;13:970292.
- Liu S, et al. AICAR-induced activation of AMPK inhibits TSH/SREBP-2/HMGCR pathway in liver. PLoS One. 2015;10(5):e0124951.
- Zhou H, et al. Empagliflozin rescues diabetic myocardial microvascular injury via AMPK-mediated inhibition of mitochondrial fission. Redox Biol. 2018;15:335–46.
- Lu QB, et al. METRNL ameliorates diabetic cardiomyopathy via inactivation of cGAS/STING signaling dependent on LKB1/AMPK/ULK1-mediated autophagy. J Adv Res. 2023;51:161–79.
- Wang D, et al. FGF1(ΔHBS) prevents diabetic cardiomyopathy by maintaining mitochondrial homeostasis and reducing oxidative stress via AMPK/Nur77 suppression. Signal Transduct Target Ther. 2021;6(1):133.
- He L. Metformin and systemic metabolism. Trends Pharmacol Sci. 2020;41(11):868–81.
- Yang F, et al. Metformin inhibits the NLRP3 inflammasome via AMPK/mTOR-dependent effects in diabetic cardiomyopathy. Int J Biol Sci. 2019;15(5):1010–9.
- Regitz-Zagrosek V, Gebhard C. Gender medicine: effects of sex and gender on cardiovascular disease manifestation and outcomes. Nat Rev Cardiol. 2023;20(4):236–47.
- Evrony GD, Hinch AG, Luo C. Applications of single-cell DNA sequencing. Annu Rev Genomics Hum Genet. 2021;22:171–97.
- Verboom K, et al. Smarter single cell total RNA sequencing. Nucleic Acids Res. 2019;47(16):e93.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Перепечатки и разрешения
Эта статья была опубликована
Видео скоро будет доступно