Инфекция почвенными нематодами рода Reniform значительно снижает урожайность хлопка и качество волокна. Лигнин укрепляет клеточные стенки растений и способствует формированию структурной защиты от вредителей, однако его роль в устойчивости хлопка к Reniform-нематодам ранее не изучалась. В данном исследовании описывается гистохимический метод визуализации отложения лигнина в корнях устойчивых и восприимчивых генотипов хлопка (Gossypium arboreum) с использованием окрашивания флороглюцинолом.
Исследовательская статья
Гистохимический анализ различий в содержании лигнина между устойчивыми и восприимчивыми к почвенным нематодам генотипами хлопчатника
В этой статье
Краткое содержание
Аннотация
Почечные нематоды (Rotylenchulus reniformis) являются серьезным сдерживающим фактором для производства хлопка, особенно на юге США. Почечная нематода занимает второе место по значимости среди более чем 400 видов нематод. Эти нематоды представляют угрозу для глобальной продовольственной безопасности. Растущая обеспокоенность состоянием окружающей среды и здоровьем людей, а также высокая стоимость нематицидов усилили интерес к устойчивому гермоплазматическому материалу хлопка. Клеточная стенка растения, и особенно лигнин, является критически важным биополимером, участвующим в устойчивости к биотическому стрессу. Поскольку нематоды поражают ткани корня, компоненты клеточной стенки, такие как лигнин, могут способствовать защите; однако лигнин-опосредованные барьеры в корнях хлопка недостаточно изучены. В данном исследовании использовался стандартизированный протокол гистохимического окрашивания флороглюцинолом-HCl для визуализации различий в отложении лигнина у устойчивых (A2-514, A2-995) и восприимчивых генотипов хлопка (Gossypium arboreum) на стадии появления настоящих листьев в условиях отсутствия инфекции. Этот краситель связывается специфически с гидроксициннамильальдегидами лигнина, такими как конифериловый альдегид и синапиловый альдегид, в присутствии кислоты и придает розово-пурпурный цвет для визуализации лигнина. Между устойчивыми и восприимчивыми генотипами наблюдались различные паттерны окрашивания лигнина, что подтверждает потенциальную роль структурных механизмов защиты, связанных с лигнином.
Введение
Хлопчатник выращивают по всему миру ради его волокна, и он крайне уязвим для почвенных вредителей, особенно нематод, которые могут вызвать значительные потери урожая. Среди них почвенная почечная нематода (Rotylenchulus reniformis) является основным патогеном, поражающим хлопчатник и другие культуры во всем мире; особенно заметно ее влияние на юге США, где заражение может привести к снижению урожайности более чем на 50%1. Этот микроскопический почвенный организм паразитирует на корнях хлопчатника2, ухудшая жизнеспособность растения, его биомассу и выход волокна за счет нарушения поглощения воды и питательных веществ, а также создания зон питания (Рисунок 1). Инфекция, вызванная почечной нематодой, изменяет рост хлопчатника, задерживая время цветения, уменьшая размер и количество коробочек и снижая качество линта3. О серьезных потерях сообщалось в Миссисипи, Алабаме и Луизиане4. Для борьбы с заражением нематодами обычно применяют нематициды, однако их высокая стоимость и негативное воздействие на окружающую среду и здоровье человека обусловили необходимость поиска альтернатив5,6. Разработка устойчивого гермоплазматического материала представляет собой перспективный подход к смягчению ущерба от почечной нематоды4. Поскольку нематоды питаются внутри тканей корня, предполагается, что защитные механизмы на основе клеточных стенок, в частности лигнификация, ограничивают инвазию, ингибируют ферменты, расщепляющие клеточную стенку и вырабатываемые патогеном, а также ограничивают создание и расширение зон питания нематод7,8,9. Повышенная лигнификация коррелирует со снижением восприимчивости к патогенам у различных видов растений10,11,12,13,14. Предыдущие исследования хлопчатника связали экспрессию генов лигнина и лакказы с устойчивостью к Verticillium dahliae15, а исследования устойчивых и восприимчивых к Fusarium сортов выявили более высокий уровень лигнина в устойчивых сортах16. Аналогичные наблюдения у Arabidopsis и риса, где подавление генов биосинтеза лигнина повышало восприимчивость, подчеркивают важность лигнификации в защите растений.
Лигнин представляет собой сложный фенольный биополимер, который содержится во вторичных клеточных стенках сосудистых растений, где он обеспечивает структурную жесткость, механическую прочность и гидрофобность17. Синтезируемый через шикиматный и фенилпропаноидный пути, лигнин является вторым по распространенности наземным биополимером после целлюлозы, составляя примерно 30% органического углерода Земли18,19. Укрепляя сеть целлюлоза-гемицеллюлоза, лигнин упрочняет несущие ткани и поддерживает общее развитие растения. Лигнин особенно выражен в высокоспециализированных тканях, таких как ксилема, склеренхима, волокна флоэмы и перидерма, создавая водоотталкивающий барьер, необходимый для эффективного транспорта воды и минералов. Помимо структурных функций, лигнин служит биохимическим и физическим защитным барьером, ограничивающим проникновение патогенов и минимизирующим повреждения от биотических и абиотических стрессов20,21,22. Лигнификация является динамическим процессом, играющим центральную роль в устойчивости к широкому спектру патогенов, включая некротрофов, биотрофов и гемибиотрофов. Его биосинтез из первичных монолигнолов — синапилового, кониферилового и п-кумарилового спиртов — варьируется в зависимости от вида, типа ткани и стадии развития, что влияет на степень устойчивости. Инвазия патогенов или абиотический стресс часто вызывают локальное отложение лигнина, что дополнительно укрепляет защитные механизмы растения23,24.
Выяснение роли лигнина в устойчивости к почвенным нематодам рода Rotylenchulus (reniform nematode) имеет решающее значение для совершенствования стратегий управления посевами хлопчатника. Визуальная и биохимическая характеристика распределения лигнина позволяет понять пространственную и временную динамику модификаций клеточных стенок, которые лежат в основе ранних защитных реакций. В данной работе используется гистохимическое окрашивание флороглюцинолом для анализа паттернов отложения лигнина, естественным образом присущих устойчивым и восприимчивым к почвенным нематодам генотипам хлопчатника, что создает практическую предварительную основу для оценки признаков устойчивости, связанных с клеточной стенкой, и предоставляет данные для селекционных программ, направленных на повышение жизнестойкости сельскохозяйственных культур.
Протокол
Эксперименты проводились в теплице с использованием растительных материалов, описанных ниже. Все химические вещества, оборудование и реагенты, использованные в данном исследовании, подробно указаны в Таблице материалов.
Растительный материал
Семена были получены как для восприимчивого (A2‑20, PI 129742; A2‑40, PI 183202), так и для устойчивого гермоплазматического материала (A2‑514, PI 616008; A2‑995, PI 629323). Кроме того, в исследование был включен восприимчивый сорт Deltapine 16. Семена поместили в стерильную воду и вымачивали в течение 24 h при комнатной температуре. После вымачивания семена тщательно промыли свежей стерильной водой для удаления остаточных загрязнений. Затем промытые семена перенесли в стерильные чашки Петри, выстланные предварительно увлажненными автоклавированными бумажными полотенцами, и инкубировали в течение 2 дней при комнатной температуре для стимуляции прорастания (Рисунок 2).
Посадка в теплице
Пластиковые горшки наполняли предварительно увлажненным почвенным субстратом для контроля влажности. Почву увлажняли за два дня до пересадки. Затем проросшие сеянцы осторожно пересаживали в увлажненную почву и содержали в контролируемых условиях теплицы при дневном/ночном цикле температур 28 °C/25 °C до стадии появления настоящих листьев (Рисунок 2). Для каждого генотипа высаживали по три биологических повторности.
Сбор образцов
Растения на стадии появления настоящих листьев осторожно извлекали из почвы, разрыхляя окружающий почвенный субстрат, чтобы минимизировать повреждение корней. Корни промывали водой 2–3 раза для удаления прилипших частиц почвы. Ткани корня и побега каждого генотипа собирали для последующего секционирования (Рисунок 3).
Приготовление окрашивающего раствора флороглюцинола
3% раствор флороглюцинола готовили в вытяжном шкафу, растворяя 0,45 g флороглюцинола в смеси из двух частей 100% этанола (10 mL) и одной части концентрированной HCl (5 mL). Раствор для окрашивания готовили по ранее описанному методу16.
Подготовка срезов и процедура окрашивания для гистохимического анализа лигнина
Ткани корня и побега разрезали стерильным лезвием бритвы для получения тонких поперечных срезов (Рисунок 3). Свежие срезы переносили на предметные стекла и на 1 мин покрывали 20 µL 3% раствора флороглюцинола для окрашивания. Затем срезы промывали стерильной водой, закрепляли под покровными стеклами и фотографировали (Рисунок 4, Рисунок 5, Рисунок 6). Та же процедура применялась для тканей стебля (Дополнительный рисунок 1).
Микроскопическая визуализация
Визуализацию проводили с помощью цифрового микроскопа. Подготовленные предметные стекла с окрашенными образцами тканей помещали на платформу микроскопа для получения изображений. После запуска программного обеспечения микроскопа в режиме светлого поля выбирали требуемые увеличения: 100x, 200x и 300x. Для четкой визуализации паттернов окрашивания лигнина в срезах тканей выполняли грубую и точную фокусировку. Изображения записывали и сохраняли с соответствующими идентификационными номерами образцов. Затем проводили сравнительный анализ, изучая изображения как устойчивых, так и восприимчивых генотипов, чтобы оценить различия в окрашивании лигнина. Сравнение изображений устойчивых и восприимчивых генотипов осуществляли в программе ImageJ для определения различий в проценте окрашенной площади с использованием единых пороговых значений. После обработки всех трех повторностей результаты экспортировали в файлы CSV. Затем строили графики для сравнения устойчивых и восприимчивых генотипов.
Результаты
Гистохимический анализ устойчивых и восприимчивых генотипов хлопчатника
Гистохимическое исследование поперечных срезов корня и стебля на стадии развития настоящих листьев выявило визуальные различия между резистентными и восприимчивыми генотипами, что продемонстрировано на Рисунке 4, Рисунке 5 и Дополнительном рисунке 1 (поперечные срезы стебля). Большее увеличение (100x–300x) позволило детально рассмотреть эти различия (Рисунок 4A–C и Рисунок 5A–C для резистентных генотипов и Рисунок 4D–F и Рисунок 5D–F для восприимчивых генотипов). Характер окрашивания лигнина различался в зависимости от типа ткани: у резистентных генотипов наблюдалось более слабое или аналогичное окрашивание лигнина в стеблях, в то время как у восприимчивых генотипов визуально отмечалась относительно более высокая степень лигнификации стебля (Дополнительный рисунок 1A–D).
Количественный анализ изображений окрашивания лигнина
Сорт Deltapine 16, восприимчивый культивар, включенный в данное исследование, продемонстрировал более слабую окраску лигнина (Рисунок 6A–C) со значениями процента окрашенной площади 12, 17,8 и 16,3 (Рисунок 6D). У восприимчивого генотипа A2-40 значения процента окрашенной площади составили 25,2, 19,9 и 28,75, тогда как устойчивый генотип A2-995 показал значения процента окрашенной площади 54,95, 58,71 и 69,85 (Рисунок 7). При этом у A2-20 значения процента окрашенной площади составили 16,6, 21,3 и 20,4, в то время как A2-514 показал значения процента окрашенной площади 49,8, 34,1 и 43,38 (Рисунок 8). Сравнение дало значение p = 0,06. Поскольку эти значения были получены с использованием разных пороговых параметров, был проведен анализ в ImageJ с единым порогом, при котором использовались идентичные пороги цветового тона (hue), насыщенности (saturation) и яркости (brightness) для обеспечения воспроизводимости между повторностями. Устойчивый генотип (A2-514) показал относительно более интенсивную окраску, чем восприимчивый генотип (A2-20). Процент окрашенной площади рассчитывали как отношение количества лигнин-положительных пикселей к общему количеству пикселей ткани в срезе. Количественное сравнение восприимчивого генотипа A2-20 и устойчивого генотипа A2-514 с использованием единого порога показано на Рисунке 9. В целом, анализ с единым порогом демонстрирует наличие генотип-специфических различий в лигнификации между этими генотипами.
ДОСТУПНОСТЬ ДАННЫХ:
Исходные данные добавлены в качестве дополнительного файла.
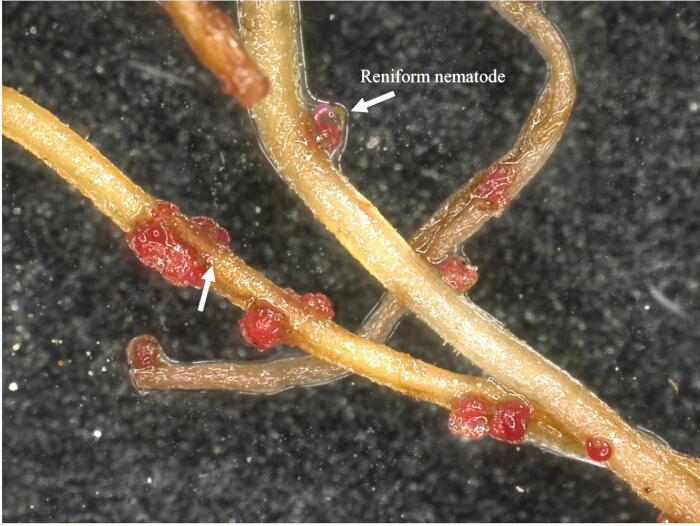
Рисунок 1: Микроскопический вид почвенных нематод рода Rotylenchulus, питающихся корнями хлопчатника. Показаны нематоды рода Rotylenchulus, питающиеся корнями хлопчатника, при 50-кратном увеличении после окрашивания красным пищевым красителем. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
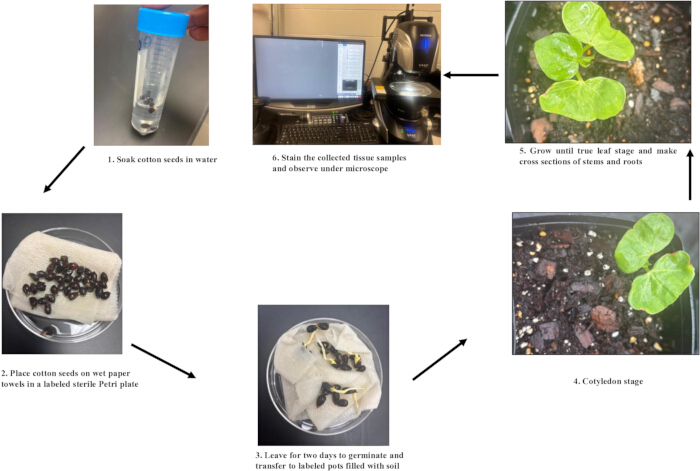
Рисунок 2: Подготовка растительного материала для гистохимического анализа лигнина. Рабочий процесс состоит из следующих этапов: (1) замачивание семян хлопчатника в воде; (2) размещение семян на влажных бумажных полотенцах в промаркированной стерильной чашке Петри; (3) проращивание семян в течение 2 дней и перенос проростков в промаркированные горшки с почвой; (4) выращивание проростков до стадии семядолей; (5) дальнейшее выращивание растений до стадии настоящих листьев и приготовление поперечных срезов стеблей и корней; и (6) окрашивание собранных срезов тканей и их исследование под микроскопом. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
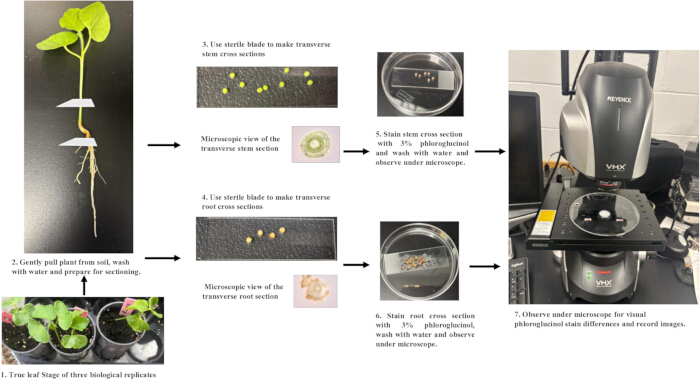
Рисунок 3: Сбор и окрашивание срезов корня и стебля хлопчатника с использованием флорглюцинола-HCl. Рабочий процесс состоит из следующих этапов: (1) выращивание трех биологических повторностей до стадии появления настоящих листьев; (2) осторожное извлечение растений из почвы, промывка водой и подготовка к секционированию; (3) подготовка поперечных срезов стебля с помощью стерильного лезвия; (4) подготовка поперечных срезов корня с помощью стерильного лезвия; (5) окрашивание срезов стебля 3% раствором флорглюцинола-HCl, промывка водой и исследование под микроскопом; (6) окрашивание срезов корня 3% раствором флорглюцинола-HCl, промывка водой и исследование под микроскопом; и (7) изучение окрашенных срезов под микроскопом для визуализации различий в окрашивании флорглюцинолом и фиксации изображений. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
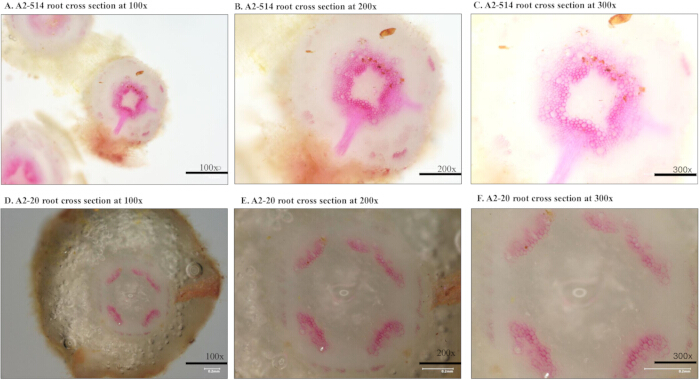
Рисунок 4: Окрашивание на лигнин в поперечных срезах корня генотипов хлопчатника A2-514 и A2-20. Поперечные срезы корня устойчивого генотипа A2-514, окрашенные на лигнин, при увеличении (A) 100x, (B) 200x и (C) 300x. Поперечные срезы корня восприимчивого генотипа A2–20, окрашенные на лигнин, при увеличении (D) 100x, (E) 200x и (F) 300x. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
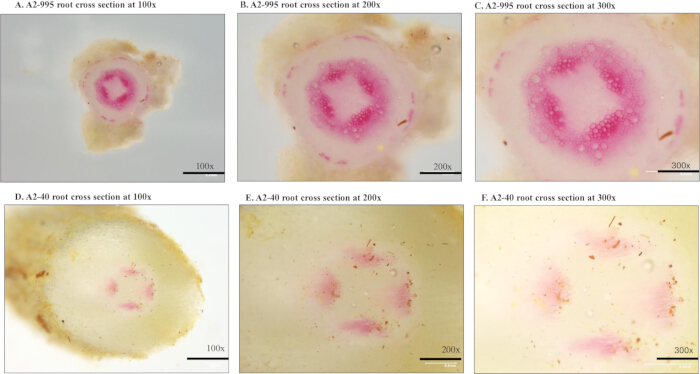
Рисунок 5: Окрашивание на лигнин в поперечных срезах корня генотипов хлопчатника A2-995 и A2-40. Окрашенные на лигнин поперечные срезы корня устойчивого генотипа A2-995 при увеличении (A) 100x, (B) 200x и (C) 300x. Окрашенные на лигнин поперечные срезы корня восприимчивого генотипа A2-40 при увеличении (D) 100x, (E) 200x и (F) 300x. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
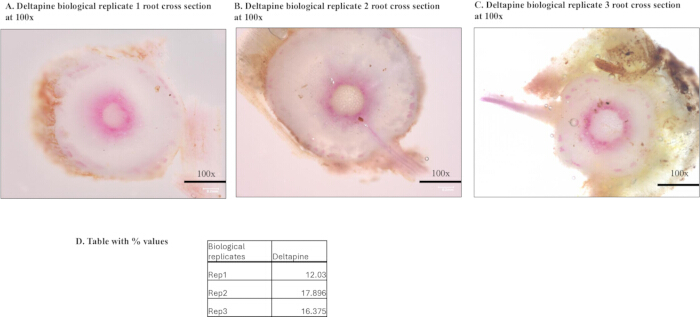
Рисунок 6: Окрашивание на лигнин и количественный анализ поперечных срезов корня сорта Deltapine 16. Поперечные срезы корня трех биологических повторностей восприимчивого сорта Deltapine 16, окрашенные на лигнин, при увеличении 100x: (A) биологическая повторность 1, (B) биологическая повторность 2 и (C) биологическая повторность 3. (D) Процент окрашенной площади для трех биологических повторностей, определенный с помощью количественного анализа в ImageJ. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
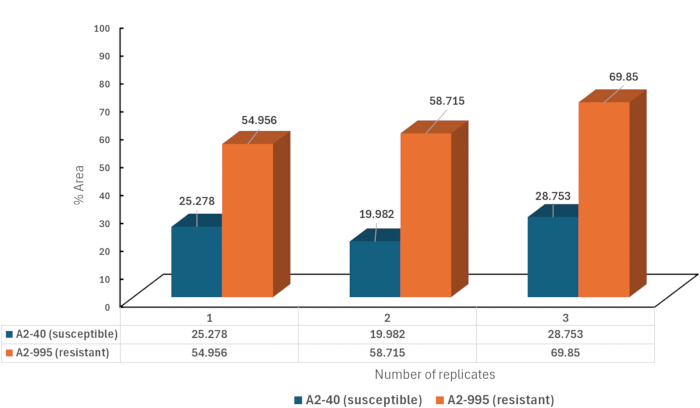
Рисунок 7: Количественный анализ окрашивания лигнина в генотипах хлопчатника A2-40 и A2-995. Процент окрашенной области, определенный с помощью анализа в ImageJ для трех биологических повторностей восприимчивого генотипа A2-40 и устойчивого генотипа A2-995. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
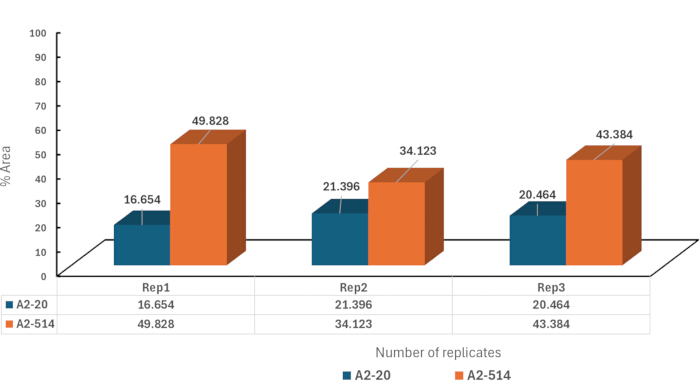
Рисунок 8: Количественный анализ окрашивания лигнина в генотипах хлопчатника A2-20 и A2-514. Процент окрашенной области, определенный с помощью анализа в ImageJ для трех биологических повторностей восприимчивого генотипа A2-20 и устойчивого генотипа A2-514. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
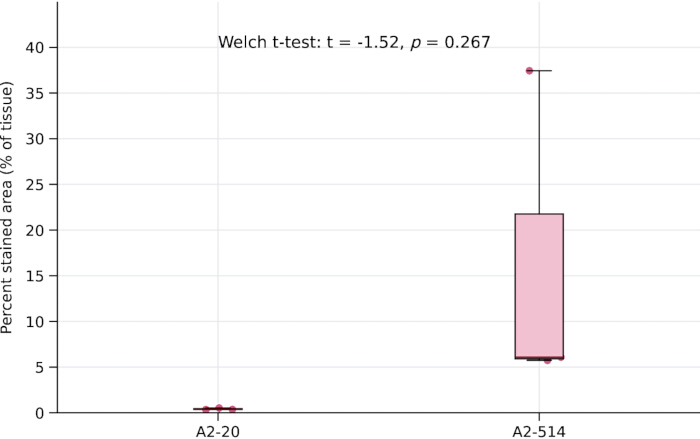
Рисунок 9: Количественный анализ окрашивания лигнина в генотипах хлопчатника A2-20 и A2-514 с использованием единого порога. Процент окрашенной области у восприимчивого генотипа A2-20 и устойчивого генотипа A2-514 по результатам анализа изображений с единым порогом. Статистическое сравнение проводилось с помощью t-критерия Уэлча (t = −1.52, p = 0.267). Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
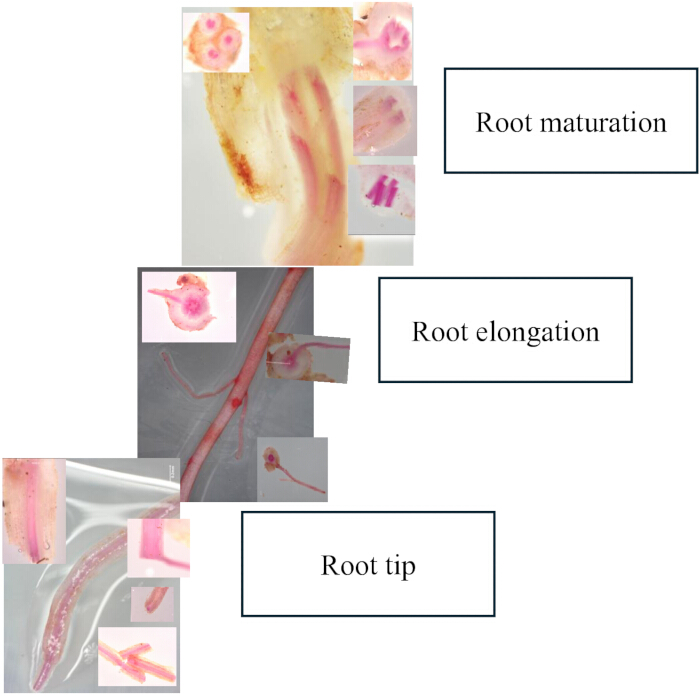
Рисунок 10: Визуализация окрашивания лигнина в различных областях корня. Репрезентативные изображения, демонстрирующие окрашивание лигнина в зонах созревания корня, растяжения корня и в области кончика корня. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
Дополнительный рисунок 1: Окрашивание лигнина в поперечных срезах стебля устойчивых и восприимчивых генотипов хлопчатника. Поперечные срезы стебля, окрашенные на лигнин, при 100-кратном увеличении для (A) восприимчивого A2-20, (B) устойчивого A2-514, (C) восприимчивого A2-40 и (D) устойчивого A2-995. Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Обсуждение
Лигнин, связанный с клеточными стенками растений, служит важным физическим барьером против вредителей, включая нематод. В настоящем исследовании резистентные и восприимчивые генотипы хлопчатника продемонстрировали отчетливые визуальные различия при окрашивании на лигнин, что соответствует закономерностям, описанным ранее для сортов, устойчивых и восприимчивых к Fusarium. Окрашивание позволило четко визуализировать распределение лигнина в различных зонах корня — зоне созревания, зоне растяжения и в кончике корня, при этом интенсивность лигнина последовательно возрастала от верхней части корня к его кончику (Рисунок 10). Хотя эти закономерности дают полезную анатомическую информацию, динамика лигнина в ответ на инфицирование нематодами в данном исследовании не оценивалась и требует подтверждения в будущих работах. Предыдущие исследования показывают, что присутствие патогена может индуцировать биосинтез лигнина, что подчеркивает необходимость изучения изменений содержания лигнина под воздействием нематод. Включение биохимического анализа количества и состава лигнина позволило бы более точно интерпретировать паттерны окрашивания, наблюдаемые у данных генотипов. В целом, эти результаты подчеркивают роль структурной защиты, опосредованной лигнином, в устойчивости хлопчатника к почвенной реноформной нематоде, и демонстрируют эффективность окрашивания флороглюцинолом для характеристики этих признаков. Дальнейшая интеграция анатомических, биохимических и молекулярных подходов позволит глубже понять биосинтез лигнина и его вклад в развитие стойкой устойчивости к реноформным нематодам.
Раскрытие информации
Авторы не заявляют о наличии конфликта интересов.
ОТКАЗ ОТ ОТВЕТСТВЕННОСТИ
USDA является поставщиком, работодателем и кредитором, предоставляющим равные возможности. Упоминание торговых марок или коммерческих продуктов в данной публикации служит исключительно целью предоставления конкретной информации и не означает рекомендацию или одобрение со стороны Министерства сельского хозяйства США. Выводы и заключения в этой статье принадлежат автор(ам) и не должны истолковываться как официальное решение или политика USDA или правительства США.
Благодарности
Авторы благодарят доктора Кэтрин Парис (Katherine Parys) за предоставление доступа к оборудованию лаборатории микроскопии, использованному в данном исследовании. Авторы также благодарят доктора Цзюньпина Чена (Junping Chen) и доктора Абдулрахима (Abdulraheem) за их предложения и помощь в доработке рукописи. Данное исследование было поддержано проектом USDA-ARS 6066-21000-053-00D.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| Почвосмесь с контролем влажности | Miracle-Gro | 073561005197 032247557832 | Веб-сайт Amazon |
| Микроскоп | Keyence VHX | VHX3000 | Можно использовать любой аналогичный микроскоп в светлом поле |
| Стерильные лезвия бритвы | Workpro | W018057 | Веб-сайт Amazon |
| Разделочная доска | Freshware | 15.75"L x 9.8"W x 0.3"Th | Веб-сайт Amazon |
| Предметные и покровные стекла | Amscope | BS-50P-100S-22X4 | Можно использовать любую марку. Данный вариант доступен на Amazon. |
| Стерильная вода/ Дистиллированная вода/ Автоклавированная вода | Gibco | 15230147 | Можно использовать любую марку/ стерильную автоклавированную воду |
| Краситель флороглюцин | Fischer Scientific | AC241761000 | Доступен в Fischer Scientific |
| Концентрированный HCl | Fischer Scientific | CAS: 7647-01-0 | Доступен в Fischer Scientific |
| Абсолютный этанол | Fischer Scientific | 64-17-5 | Доступен в Fischer Scientific |
| Горшки | BTPLASTIK | B0DSBQMXHN | Можно использовать любые пластиковые горшки, доступны на Amazon |
| Чашки Петри | Kingdder | B0BS95MCGS | Доступны на Amazon; можно использовать любую другую марку |
| Бумажные полотенца | Tork | MB540A | Доступны на Amazon; можно использовать любую другую марку |
| Image J | Программное обеспечение | Доступно онлайн | Бесплатное программное обеспечение |
Ссылки
- Robinson AF. Reniform in US cotton: when, where, why, and some remedies. Annu Rev Phytopathol. 2007;45(1):263-88.
- Li R, Erpelding JE, Stetina SR. Genome-wide association study of Gossypium arboreum resistance to reniform nematode. BMC Genet. 2018;19(1):52.
- Koebernick JC et al. Response to nematicide by cotton genotypes varying in reniform nematode resistance. Crop Sci. 2021;61(2):929-35.
- Singh B et al. Reniform nematode impact on cotton growth and management strategies: A review. Agron J. 2023;115(5):2140-58.
- Riga E. The effects of Brassica green manures on plant parasitic and free-living nematodes used in combination with reduced rates of synthetic nematicides. J Nematol. 2011;43(2):119.
- Khanal C, McGawley EC, Overstreet C, Stetina SR. The elusive search for reniform nematode resistance in cotton. Phytopathology. 2018;108(5):532-41.
- Moura JCMS et al. Abiotic and biotic stresses and changes in the lignin content and composition in plants. J Integr Plant Biol. 2010;52(4):360-76.
- Schutzendubel A, Polle A. Plant responses to abiotic stresses: heavy metal-induced oxidative stress and protection by mycorrhization. J Exp Bot. 2002;53(372):1351-65.
- Liu Q et al. Transcriptional and physiological analyses identify a regulatory role for hydrogen peroxide in the lignin biosynthesis of copper-stressed rice roots. Plant Soil. 2015;387(1-2):323-36.
- Fujimoto T, Mizukubo T, Abe H, Seo S. Sclareol induces plant resistance to root-knot nematode partially through ethylene-dependent enhancement of lignin accumulation. Mol Plant Microbe Interact. 2015;28(4):398-407.
- Wang Y et al. CmMYB19 over-expression improves aphid tolerance in chrysanthemum by promoting lignin synthesis. Int J Mol Sci. 2017;18(3):619.
- Mandal S, Kar I, Mukherjee AK, Acharya P. Elicitor-induced defense responses in Solanum lycopersicum against Ralstonia solanacearum. ScientificWorldJournal. 2013;2013(1):561056.
- Santiago R, Barros-Rios J, Malvar RA. Impact of cell wall composition on maize resistance to pests and diseases. Int J Mol Sci. 2013;14(4):6960-80.
- Gallego-Giraldo L et al. Elicitors and defense gene induction in plants with altered lignin compositions. New Phytol. 2018;219(4):1235-51.
- Smit F, Dubery IA. Cell wall reinforcement in cotton hypocotyls in response to a Verticillium dahliae elicitor. Phytochemistry. 1997;44(5):811-15.
- Mendu L et al. Lignin and cellulose content differences in roots of different cotton cultivars associated with different levels of Fusarium wilt race 4 (FOV4) resistance-response. J Agric Food Res. 2022;10:100420.
- Tiwari RK et al. Mechanistic insights on lignin-mediated plant defense against pathogen infection. Plant Physiol Biochem. 2025;228:110224.
- Ralph J et al. Lignins: Natural polymers from oxidative coupling of 4-hydroxyphenyl-propanoids. Phytochem Rev. 2004;3(1):29-60.
- Dixon RA et al. The phenylpropanoid pathway and plant defence-a genomics perspective. Mol Plant Pathol. 2002;3(5):371-90.
- Vance CP, Kirk TK, Sherwood RT. Lignification as a mechanism of disease resistance. Annu Rev Phytopathol. 1980;18(1):259-88.
- Nicholson RL, Hammerschmidt R. Phenolic compounds and their role in disease resistance. Annu Rev Phytopathol. 1992;30(1):369-89.
- Shah SWA et al. Lignin-based additive materials: A review of current status, challenges, and future perspectives. Addit Manuf. 2023;74:103711.
- Yadav S, Chattopadhyay D. Lignin: the building block of defense responses to stress in plants. J Plant Growth Regul. 2023;42(10):6652-66.
- Weng JK, Chapple C. The origin and evolution of lignin biosynthesis. New Phytol. 2010;187(2):273-85.