Данное исследование демонстрирует, что гранулы Циммин (Qiming Granule, QMG) облегчают течение диабетической ретинопатии (ДР) путем модуляции оси «кишечник–сетчатка». QMG изменили состав микробиоты кишечника, подавили системное воспаление и восстановили регуляторную сеть с центральной ролью CMKLR1, тем самым обратив вспять гистопатологические повреждения сетчатки. Эти результаты позволяют рассматривать QMG как перспективную терапевтическую стратегию лечения ДР, воздействующую на ось «кишечник–сетчатка».
Исследовательская статья
Корреляционный анализ действия гранул Циммин в сочетании с сетью, центрированной на CMKLR1, и системным воспалением через ось «кишечник — сетчатка» при диабетической ретинопатии
В этой статье
Краткое содержание
Аннотация
Диабетическая ретинопатия (ДР) представляет собой нейроваскулярное осложнение, вызванное хронической гипергликемией и системным воспалением, при этом новые данные указывают на ось «кишечник-сетчатка» как на критическую, но недостаточно используемую терапевтическую мишень. В данном исследовании изучается, оказывает ли препарат Qiming Granule (QMG) свое защитное действие при ДР посредством модуляции оси «кишечник-сетчатка». Мыши линии C57BL/6 были рандомизированы по экспериментальным группам и подвергнуты различным воздействиям. Гистопатологические изменения сетчатки оценивали с помощью окрашивания гематоксилином и эозином (HE). Уровни воспалительных цитокинов (IL-1β, IL-6, TNF-α) в сыворотке крови измеряли методом иммуноферментного анализа (ELISA). Экспрессию ключевых регуляторных белков (CMKLR1, Wnt5a, PPAR-γ, AP-1, TP53) в тканях сетчатки и толстой кишки определяли методом вестерн-блоттинга (WB). Состав и разнообразие микробиоты кишечника характеризовали с помощью полноразмерного секвенирования 16S рДНК. Корреляционный анализ проводился для оценки взаимосвязей между микробиотой кишечника и воспалительными факторами или ключевыми белками. Лечение QMG привело к улучшению гистопатологических аномалий сетчатки, о чем свидетельствовало восстановление ламинарной архитектуры сетчатки, частичное восстановление количества ганглионарных клеток сетчатки (P < 0.001) и обращение процесса истончения сетчатки (P < 0.01). Также было отмечено значительное снижение уровней IL-1β, IL-6 и TNF-α в сыворотке крови (P < 0.0001). Вдоль оси «кишечник-сетчатка» QMG обратил аномальную экспрессию ключевых регуляторных белков, в частности сети с центральной ролью CMKLR1 (Wnt5a, PPAR-γ, AP-1, TP53). Кроме того, QMG восстановил состав, разнообразие и функцию микробиоты кишечника, а корреляционный анализ показал, что QMG связывает системное воспаление с этими регуляторными белками для модуляции оси «кишечник-сетчатка». Данное исследование предоставляет предварительные фармакологические доказательства того, что QMG облегчает течение ДР, связывая регуляторную сеть с центром в CMKLR1 (включая Wnt5a, PPAR-γ, AP-1 и TP53) и системное воспаление через ось «кишечник-сетчатка», что позиционирует QMG как перспективную терапевтическую стратегию воздействия на ось «кишечник-сетчатка» при ДР.
Введение
Диабетическая ретинопатия (ДР), одно из наиболее распространенных микрососудистых осложнений сахарного диабета (СД), является ведущей причиной слепоты среди взрослого трудоспособного населения во всем мире1. В глобальном масштабе ДР поражает примерно 20–30% людей с СД2. Хроническая гипергликемия определяет патогенез ДР, запуская каскад патологических событий, включая нарушение нейроваскулярного сопряжения, усиление воспалительных реакций и окислительный стресс3. В последнее время у пациентов с сахарным диабетом и ретинопатией наблюдались изменения разнообразия и состава микробиоты кишечника по сравнению с пациентами без ретинопатии4,5. Следовательно, ось «кишечник — сетчатка» — двунаправленная коммуникационная сеть, связывающая гомеостаз кишечника со здоровьем сетчатки, — стала рассматриваться как новый фактор прогрессирования ДР. Однако специфические молекулярные медиаторы, которые преобразуют сигналы оси «кишечник — сетчатка» в патологию сетчатки, остаются в значительной степени неизученными, что ограничивает поиск надежных биомаркеров и терапевтических мишеней.
Ось «кишечник-сетчатка» представляет собой сложную сеть двусторонней связи между микробиотой кишечника и ее метаболитами и тканями сетчатки через иммунологические, метаболические, нейроэндокринные и сосудистые пути, модулируя тем самым их гомеостатическое равновесие6. На молекулярном уровне ось «кишечник-сетчатка» характеризуется нарушением регуляции ключевых стресс-реактивных белков и белков, определяющих судьбу клеток, в частности AP-1 и TP537,8,9. Кроме того, CMKLR1, ключевой рецептор хемокина, выступает в качестве основного медиатора эндотелиальной дисфункции и метаболической дисрегуляции, устанавливая критическую связь между изменениями микробиоты кишечника и патогенезом диабетической ретинопатии10. Важно отметить, что Wnt-сигнализация играет двойную регуляторную роль в поддержании гомеостаза сосудов сетчатки и функции эпителиального барьера кишечника11, в то время как PPAR-сигнализация служит главным регулятором воспалительных ответов и метаболических процессов как в тканях глаза, так и кишечника12,13. Эти молекулярные компоненты в совокупности образуют взаимосвязанную сигнальную сеть в пределах оси «кишечник-сетчатка», предоставляя новые механистические представления и терапевтические возможности для лечения осложнений, связанных с диабетом. Таким образом, воздействие на структурные и функциональные изменения вдоль этой оси представляет собой перспективную стратегию лечения DR.
Традиционная китайская медицина (ТКМ) исторически играет значительную роль в лечении сахарного диабета и сопутствующей ретинопатии, при этом терапевтические решения основываются на дифференциации синдромов14. Гранулы Цимэнь (Qiming Granule, QMG), состоящие из Astragalus membranaceus, Pueraria lobata, Rehmannia glutinosa, Lycium barbarum, Senna obtusifolia, Leonurus japonicus, Typha angustifolia и Whitmania pigra, широко применяются при лечении диабетической ретинопатии (ДР). Одобренные Национальным управлением по медицинской продукции Китая (регистрационный номер Z20090036), гранулы QMG успешно прошли клинические испытания и получили разрешение на продажу. QMG оказывает защитный эффект, предотвращая утолщение базальной мембраны капилляров сетчатки, снижая повреждение перицитов и микрососудов сетчатки, а также сохраняя локальную патологическую морфологию глаза15, что делает этот препарат перспективным средством для терапии ДР. Воздействуя на ключевые белки и воспалительные факторы, активные компоненты QMG оказывают противовоспалительное, антиоксидантное и антиапоптотическое действие, создавая механизм для модуляции оси «кишечник — сетчатка»16. Эти свойства служат механистической основой для потенциальной модуляции оси «кишечник — сетчатка» с помощью QMG, однако лишь немногие исследования были посвящены изучению этой связи. Таким образом, данная работа направлена на подтверждение эффективности QMG в модуляции оси «кишечник — сетчатка» для получения экспериментальных доказательств ее терапевтического потенциала при ДР.
В данном исследовании теоретические прогнозы сопоставляются с экспериментальными данными in vivo для подтверждения эффективности QMG в модуляции оси «кишечник — сетчатка». Полученные результаты демонстрируют, что QMG облегчает течение DR, связывая регуляторную сеть с центром в CMKLR1 (включая Wnt5a, PPAR-γ, AP-1 и TP53) с системным воспалением через ось «кишечник — сетчатка», что позиционирует QMG как перспективную терапевтическую стратегию лечения DR, направленную на ось «кишечник — сетчатка». Графический абстракт представлен на Рисунке 1.
Протокол
Все эксперименты на животных проводились в соответствии с рекомендациями ARRIVE. Исследование было одобрено Комитетом по этике компании Sichuan Scientist Biotechnology Co., Ltd. (IACUC ISSUE SYST-2024-011). Подробный график проведения экспериментов, обобщающий дизайн исследования, представлен в Дополнительный рисунок 1.
Подготовка и обработка животных
Мышей глубоко наркотизировали путем ингаляции 2% изофлурана. В состоянии глубокого наркоза проводили забор крови путем ретроорбитальной энуклеации. Сразу после забора крови выполняли энуклеацию глазных яблок для получения тканей сетчатки. Затем, для обеспечения эвтаназии, проводили вывих шейного позвонка в состоянии глубокого наркоза. После этого незамедлительно извлекали ткани толстой кишки. Животные с неблагоприятными явлениями были оперативно исключены из исследования и получили соответствующую ветеринарную помощь.
Рандомизация и ослепление
Самцов мышей линии C57BL/6 в возрасте 5 недель и массой от 20 до 30 граммов содержали в строго регулируемых условиях, включая температуру и влажность. После одной недели акклиматизации мышей C57BL/6 случайным образом распределили по трем группам (контрольная группа, группа модели и группа вмешательства), используя последовательность случайных чисел, сгенерированную компьютером. Последовательность рандомизации была создана исследователем, который не принимал участия в работе с животными или оценке результатов.
Для обеспечения ослепления весь уход за животными, введение препаратов и сбор данных осуществлялись исследователями, не знавшими о распределении по группам. Коды распределения по группам были раскрыты только после завершения всех экспериментов и статистического анализа. Ослепление применялось к: технику, выполнявшему пероральное зондирование; патологоанатому, оценивавшему гистологию сетчатки; и аналитику, количественно определявшему интенсивность полос вестерн-блоттинга (WB).
Расчет размера выборки
Размер выборки был определен на основании предварительного эксперимента по подсчету ганглионарных клеток сетчатки (RGC) при тех же экспериментальных условиях. При допущении двустороннего уровня значимости (α) 0,05 и статистической мощности (1-β) 0,80 для обнаружения клинически значимого различия в количестве RGC между модельной и интервенционной группами требовалось минимум 5 мышей в каждой группе. С учетом потенциального процента выбывания примерно 20%, размер каждой группы был установлен в количестве 6 мышей.
Создание моделей диабета у животных
Группа контроля получала стандартный рацион, в то время как группам вмешательства и модели в течение четырех недель давали диету с высоким содержанием жиров и сахаров (HFHSD). По окончании этого периода группам вмешательства и модели вводили внутрибрюшинно 1% раствор стрептозотоцина (STZ) в дозе 35 mg/kg17,18,19,20. Через семьдесят два часа после инъекции мыши с уровнем глюкозы в крови натощак выше 16.7 mmol/L считались имеющими успешно индуцированную модель сахарного диабета (СД) и были отобраны для дальнейших экспериментов. Животным с СД продолжали давать диету с высоким содержанием жиров и сахаров в течение следующих четырех месяцев, в то время как группа контроля оставалась на стандартном рационе.
Таксономическая валидация и оценка качества
Восемь ингредиентов в составе QMG были таксономически валидированы с помощью системы Modernized Plant Names Search (MPNS, http://mpns.kew.org/mpns-portal/). Качество отчетности о составе QMG оценивали с помощью инструмента ConPhYMP.
Методы введения
Животным в группе вмешательства перорально вводили QMG. Препарат QMG был приобретен у компании Zhejiang Sansheng Mandi Pharmaceutical Co., Ltd. (номер одобрения препарата в КНР Z20090036). Суспензию QMG готовили путем равномерного смешивания QMG с дистиллированной водой. Мышам в группе вмешательства вводили суспензию с помощью перорального зондирования в объеме, эквивалентном объему для модельной и контрольной групп. Дозировка была рассчитана на основе клинической разовой терапевтической дозы 4,5 g на 60 kg взрослого человека (стандартная единичная доза коммерческого препарата) с использованием метода нормализации по площади поверхности тела (BSA), рекомендованного FDA и Reagan-Shaw21. Коэффициент пересчета между взрослыми людьми (Km = 37) и мышами (Km = 3) составил 12,33, что соответствует дозе для мышей 0,9 g/kg массы тела. Животные в модельной и контрольной группах получали эквивалентный объем физиологического раствора путем перорального зондирования. Введение препарата проводили ежедневно с 9:00 до 11:00 в течение 3 месяцев подряд.
Показатели наблюдения и тестирования
Общий мониторинг показателей жизненно важных функций
Общие показатели жизненно важных функций и физиологические индикаторы, включая массу тела, уровень глюкозы в крови, потребление воды и корма, диурез, уровень активности и поведение, температуру тела, а также состояние шерсти и кожи, систематически наблюдались и фиксировались для комплексной оценки терапевтического воздействия и выявления возможных осложнений.
Наблюдение морфологических изменений в сетчатке с помощью анализа окрашивания гематоксилином и эозином
Все образцы после фиксации обрабатывали в автоматическом дегидраторе, используя серию растворов этанола и ксилола, с последующей заливкой в парафин. Затем нарезали парафиновые срезы толщиной 4 µm, окрашивали их гематоксилином и эозином (HE) и заключали в нейтральный канадский бальзам. Изображения сетчатки сканировали с помощью сканера 3DHISTECH Pannoramic SCAN. Анализ изображений и измерение данных выполняли с помощью программы Image-Pro Plus.
Определение уровней IL-6, TNF-α и IL-1β в сыворотке крови методом ИФА
Образцы крови собирали путем ретроорбитальной энуклеации. Сыворотку отделяли центрифугированием при 1,000 × g в течение 15 мин при 4 °C и хранили при -80 °C до проведения анализа. Уровни IL‑1β, IL‑6 и TNF‑α в сыворотке определяли по стандартным процедурам, включающим уравновешивание реагентов, внесение образцов, инкубацию, промывку, добавление конъюгата и субстрата, остановку реакции, измерение оптической плотности и расчет концентрации по стандартной кривой. Оптическую плотность измеряли при 450 nm с помощью микропланшетного ридера, а концентрации цитокинов рассчитывали по стандартным кривым.
Определение ключевых регуляторных белков в сетчатке и толстой кишке с помощью вестерн-блоттинга
Три независимых биологических повтора были выполнены на одной мембране, которую последовательно инкубировали с антителами к целевым белкам. Все повторы были получены из одной когорты животных, забитых одновременно. В случаях, когда молекулярная масса целевого белка была слишком близка к массе GAPDH (<(разница в 5 кДа), их анализировали на разных мембранах, чтобы избежать перекрытия сигналов. Каждая мембрана зондировалась исключительно либо на целевой белок, либо на GAPDH для обеспечения точного количественного определения. Использовались следующие первичные антитела: GAPDH поликлональный антитело (1:5000), поликлональное антитело к CMKLR1 (1:1000), поликлональное антитело к Wnt5a (1:1000), поликлональное антитело к TP53 (1:1000), моноклональное антитело к AP-1 (1:5000) и антитело к PPAR гамма (PPAR-γ) поликлональные антитела (1:1000). Общие белки получали путем лизиса клеток с последующим центрифугированием. Концентрации белков определяли с помощью анализа BCA. Экстрагированные белки разделяли методом SDS-PAGE с использованием разделяющего геля с концентрацией 12%, после чего переносили на мембраны. Мембраны блокировали в буфере TBST с добавлением 5% обезжиренного молока и инкубировали с соответствующими первичными антителами в течение ночи при 4 °CПосле промывки мембраны инкубировали с конъюгированными с HRP вторичными антителами к кролику или мыши в разведении 1:10 000. В завершение визуализацию и анализ белковых полос проводили с помощью хемилюминесцентной визуализации. При визуализации и обработке данных блоты обрезали по горизонтали для удаления областей с нерелевантным молекулярным весом; при этом все дорожки образцов были сохранены без удаления участков между ними. При обрезке нерелевантных областей геля могли возникнуть незначительные искажения краев.
Определение состава микробиоты кишечника с помощью анализа секвенирования 16S рДНК
Перед проведением терминальных процедур у каждой мыши собирали свежие образцы фекалий. Мышей individually помещали в стерильные клетки на 10–15 min для спонтанной дефекации. Фекальные гранулы немедленно собирали стерильным пинцетом, переносили в стерильные пробирки объемом 1.5 mL, подвергали мгновенной заморозке в жидком азоте и хранили при -80 °C до экстракции ДНК. Все процедуры проводились в стерильных условиях для минимизации перекрестного загрязнения. Интервал между дефекацией и замораживанием составлял не более 10 min для обеспечения сохранности микробного состава. Образцы геномной ДНК (гДНК) фекалий очищали с использованием набора для экстракции Fecal gDNA, после чего проводили амплификацию полноразмерного гена 16S рДНК методом полимеразной цепной реакции (ПЦР) с универсальными праймерами 8F (5’-AGAGTTTGATCATGGCTCAG-3’) и 1492R (5’-CGGTTACCTTGTTACGACTT-3’). Продукты ПЦР затем анализировали с помощью электрофореза в агарозном геле, очищали и количественно определяли для последующего использования. Высокопроизводительное секвенирование проводили на секвенаторе Nanopore GridION. Процесс анализа данных включал бейсколлинг, контроль качества данных, аннотацию видов, построение филогенетического дерева, анализ сообщества, анализ альфа- и бета-разнообразия, анализ дифференциально представленных видов и прогнозирование функций сообщества. В ходе анализа использовались различные инструменты и базы данных, такие как NanoFilt, Usearch, язык программирования R, Python и база данных SILVA.
Корреляционный анализ оси «кишечник — сетчатка» с системным воспалением и многоуровневым составом микробиоты кишечника
Для изучения потенциальных взаимосвязей между многоуровневым составом микробиоты кишечника, воспалительными цитокинами сыворотки и ключевыми регуляторными белками был проведен корреляционный анализ с использованием платформы Luoning Bio-Cloud. Сначала из результатов секвенирования были извлечены данные об обилии видов на уровнях царства, типа, класса, порядка, семейства, рода и вида. Физико-химические факторы, включая уровни воспалительных цитокинов сыворотки и экспрессию белков, были собраны в файл факторов окружающей среды. Для обеспечения достоверности и визуализации корреляций данные прошли процедуру нормализации, чтобы устранить различия в масштабах между обилием микроорганизмов и единицами клинических измерений. Были рассчитаны коэффициенты корреляции (R-значения) и соответствующие уровни значимости (P-значения). Результаты были визуализированы с помощью тепловой карты корреляций, где цветовые градиенты указывают на силу и направление корреляции (красный цвет — положительная корреляция, синий цвет — отрицательная корреляция), а звездочки (**) обозначают статистическую значимость (P < 0,01).
Статистические методы
Весь статистический анализ и визуализация данных выполнялись с помощью GraphPad Prism. Для данных с нормальным распределением для сравнения средних значений использовался t-критерий. В случаях отклонения данных от нормального распределения применялся критерий Краскела — Уоллиса. Для анализа взаимосвязей между переменными использовалась корреляция Спирмена или Пирсона. Все статистические тесты были двусторонними, уровень статистической значимости был установлен на уровне 0,05.
Результаты
General situation of experimental animals
Blood glucose levels were significantly elevated in the model group (27.21 ± 6.03 mmol/L) compared with the blank group (P < 0.001), indicating the successful induction of the DM model. During the study period, the experimental animals showed stable body weight, continuous water and food intake, normal urine output, body temperature, healthy fur and skin condition, and normal behavior during the experiment.
Composition and validation of QMG
QMG, a proprietary Chinese medicine that passed Phase III clinical trials, encompasses Astragalus membranaceus (Fisch.) Bunge [Fabaceae, Astragali radix], Pueraria lobata (Willd.) Ohwi [Fabaceae, Puerariae lobatae radix], Rehmannia glutinosa (Gaertn.) Libosch. Ex Fisch. & C.A. Mey. [Orobanchaceae; Rehmanniae radix], Lycium barbarum L. [Solanaceae; Lycii fructus], Senna obtusifolia (L.) H.S. Irwin & Barneby [Fabaceae; Cassiae semen], Leonurus japonicus Houtt. [Lamiaceae, Leonuri herba], Typha angustifolia L. [Typhaceae; Typhae pollen], Whitmania pigra Whitman [Hirudinidae; Hirudo]15. The detailed information, including the Chinese name, scientific name by MPNS validation, species, family, part used, representative bioactive compounds, was summarized in Table 1, which defined the QMG and provided a transparent, scientifically grounded basis for the formulas under investigation.
| No. | Chinese name | Scientific name by MPNS validation | Species | Family | Part Used | Representative bioactive compounds | |||||||
| 1 | HuangQi | Astragalus membranaceus (Fisch.) Bunge [Fabaceae, Astragali radix] | Astragalus mongholicus (Fisch.) Bunge | Fabaceae | Radix | Astragaloside IV, Calycosin | |||||||
| 2 | GeGen | Pueraria lobata (Willd.) Ohwi [Fabaceae, Puerariae lobatae radix] | Pueraria lobata (Willd.) | Fabaceae | Radix | Puerarin, Daidzin | |||||||
| 3 | DiHuang | Rehmannia glutinosa (Gaertn.) Libosch. Ex Fisch. & C.A. Mey. [Orobanchaceae; Rehmanniae radix] | Rehmannia glutinosa (Gaertn.) Libosch. Ex Fisch. & C.A. Mey. | Orobanchaceae | Radix | Catalpol, Rehmannioside D | |||||||
| 4 | GouQiZi | Lycium barbarum L. [Solanaceae; Lycii fructus] | Lycium barbarum L. | Solanaceae | Fructus | Lycium barbarum polysaccharides, Betaine | |||||||
| 5 | JueMingZi | Senna obtusifolia (L.) H.S. Irwin & Barneby [Fabaceae; Cassiae semen] | Senna obtusifolia (L.) H.S. Irwin & Barneby | Fabaceae | Semen | Aurantio-obtusin, Emodin | |||||||
| 6 | Chong WeiZi | Leonurus japonicus Houtt. [Lamiaceae, Leonuri fructus] | Leonurus japonicus Houtt. | Lamiaceae | Fructus | Stachydrine, Leonurine | |||||||
| 7 | PuHuang | Typha angustifolia L. [Typhaceae; Typhae pollen] | Typha angustifolia L. | Typhaceae | Pollen | Isorhamnetin, Kaempferol | |||||||
| 8 | ShuiZhi | Whitmania pigra Whitman [Hirudinidae; Hirudo] | Whitmania pigra Whitman | Hirudinidae | Body | Hirudin, Calin | |||||||
Table 1: The composition and quality information of QMG ingredients. Detailed information on the composition and quality information of QMG ingredients, including the Chinese name, scientific name by MPNS validation, species, family, part used, and representative bioactive compounds.
QMG ameliorates the retinal morphology
As depicted in Figure 2A, the retina of the blank group exhibited a well-organized structure. The cellular arrangement was dense and orderly across all layers, with no evidence of structural disruption, exudation, or inflammatory infiltration. Compared with the blank group, retinal sections from the model group (Figure 2B) exhibited marked structural disorganization, characterized by disordered cellular arrangement, a significant reduction in RGC counts (P < 0.0001, Table 2, Figure 3A), and pronounced thinning of the total retinal thickness (P < 0.0001, Figure 3B). Notably, neovascular tufts penetrating the inner limiting membrane were observed (indicated by a red arrow), confirming successful establishment of the DR model. In contrast, the intervention group (Figure 2C) demonstrated significant attenuation of histopathological abnormalities relative to the model group, as evidenced by restoration of retinal laminar architecture, partial recovery of RGC numbers (P < 0.001, Table 2, Figure 3A), and reversal of retinal thinning (P < 0.01, Table 2, Figure 3B). These data provide strong evidence for QMG as an effective intervention for DR.
QMG attenuates systemic inflammatory response in DR
Compared with the blank group, the expression levels of IL-1β, IL-6, and TNF-α were significantly upregulated in the model group (P < 0.0001), confirming that the modeling procedure successfully induced a marked inflammatory response. Conversely, compared with the model group, the expression levels of IL-1β, IL-6, and TNF-α were significantly downregulated in the intervention group (p < 0.0001), indicating a potent inhibitory effect of QMG on systemic inflammation. The serum concentrations of IL-1β, IL-6, and TNF-α across the three groups are summarized in Table 3 and illustrated in Figure 4A–C.
QMG modulates the CMKLR1-centered regulatory network along the gut–retina axis
As shown in Figure 5, Figure 6, Figure 7, and Supplementary Figure 2, the results of this study showed that in DR model mice, the expression levels of five key regulatory proteins—AP-1, Wnt5a, CMKLR1, TP53, and PPAR-γ—exhibited a consistent downward trend in both colonic and retinal tissues. Following QMG intervention, the expression of these proteins showed varying degrees of recovery, with some proteins reaching statistical significance. Specifically, after QMG intervention, the expression of AP-1, Wnt5a, and CMKLR1 in colonic tissue was significantly higher than that in the model group (P < 0.05), while in retinal tissue, the expression of CMKLR1 and TP53 was significantly higher than that in the model group (P < 0.01). These findings may suggest that AP-1 and Wnt5a are more sensitive responders in the colon, whereas TP53, as an apoptosis regulator, plays a more critical role in retinal neuroprotection. Notably, CMKLR1 was the only protein that achieved significant recovery in both tissues, indicating that QMG may facilitate bidirectional communication along the gut–retina axis through systemic regulation of CMKLR1 expression.
The consistent directionality of expression changes for these five proteins in both colonic and retinal tissues holds important biological significance. As the primary habitat of the gut microbiota, changes in colonic protein expression reflect the state of the intestinal microenvironment, while the retina is the effector organ of DR. The consistency of expression patterns between these two tissues strongly supports the gut–retina axis as an important participant in the pathophysiological processes of DR.
QMG restores and improves the composition, diversity, and function of gut microbiota
The results of the community composition
Hierarchical clustering analysis revealed distinct shifts in gut microbial composition and clustering at multiple taxonomic levels following QMG intervention. At the phylum level (Figure 8A), the model group exhibited a marked reduction in Firmicutes abundance and a significant enrichment of Bacteroidetes compared with the blank group, indicating a diabetes-driven shift in the Firmicutes/Bacteroidetes ratio; notably, the intervention restored the proportions of both Firmicutes and Bacteroidetes to levels approaching those of the blank group, accompanied by an elevated relative abundance of Proteobacteria. At the class level (Figure 8B), the model group manifested an elevation in Bacteroidia and Clostridia and a lessening in Bacilli and Erysipelotrichia compared with the blank group; in contrast, the intervention group showed restoration in Bacteroidia and Erysipelotrichia to levels approaching those of the blank group, accompanied by elevated relative abundance of Clostridia and Alphaproteobacteria. At the order level (Figure 8C), the model group demonstrated an elevated proportion of Bacteroidales, and a decreased proportion of Erysipelotrichales and Lactobacillales compared with the blank group; conversely, the intervention group restored the proportions of Bacteroidales and Erysipelotrichales to levels approaching those of the blank group, accompanied by an elevated relative abundance of Clostridiales. At the family level (Figure 8D), the model group presented a growth in Odoribacteraceae, Peptostreptococcaceae, Rikenellaceae, and Tannerellaceae, and a decrease in Erysipelotrichaceae, Lactobacillaceae, Muribaculaceae, and Ruminococcaceae compared with the blank group; in contrast, the intervention group downregulated the proportions of Odoribacteraceae and Peptostreptococcaceae compared with the model group; restored the proportions of Erysipelotrichaceae and Ruminococcaceae to levels approaching those of the blank group, accompanied by an elevated relative abundance of Lachnospiraceae. At the genus level (Figure 8E), the model group exhibited an upward trend in Odoribacter, Paeniclostridium, Alistipes, Parabacteroides, and Clostridioides, and a decrease trend in Lactobacillus, Faecalibaculum, Ruminococcus, Bacteroides, and Muribaculum compared with the blank group; notably, the intervention group downregulated the proportions of Odoribacter, Clostridioides, and Paeniclostridium compared with the model group; restored the proportions of Faecalibaculum and Ruminococcus to levels approaching those of the blank group; and increased the relative abundance of Lachnoclostridium, Sphingomonas, Flavonifractor, and Blautia. At the species level (Figure 8F), the model group showed an increase in Odoribacter splanchnicus, Clostridioides difficile, and Paeniclostridium sordellii, and a decrease in Faecalibaculum rodentium, Bacteroides salanitronis, Muribaculum intestinale compared with the blank group; in contrast, the intervention group downregulated the proportion of Odoribacter splanchnicus and Clostridioides difficile compared with the model group; restored the proportions of Faecalibaculum rodentium, and Muribaculum intestinale, accompanied by elevated relative abundance of Lachnoclostridium phocaeense, and Flavonifractor plautii. Collectively, these findings indicate that QMG restored gut microbial composition across multiple taxonomic levels, shifting the community structure toward a homeostatic state.
The results of the Alpha diversity and Beta diversity
As indicated by the Alpha diversity results (Figure 9A), the intervention group exhibited the highest Chao1, PD, Simpson, and Shannon indices, while the model group displayed the lowest, with the blank group showing intermediate levels. These findings underscore the detrimental impact of DR on gut microbiota diversity and demonstrate that QMG intervention effectively restores and enhances microbial richness and evenness in DR mice.
As indicated by the Beta diversity representative results (Figure 9B,C), the principal coordinates analysis (PCoA) plots revealed a distinct separation of microbial communities across the three groups, which was statistically supported by the Permutational Multivariate Analysis of Variance (PERMANOVA). Specifically, the Bray-Curtis-based analysis indicated a significant structural divergence (PERMANOVA: R2 = 0.67, P < 0.001), suggesting that the DR model and QMG intervention accounted for a substantial proportion of the variation in microbial community composition. Consistent with this, the analysis based on Weighted unique fraction (UniFrac) distance, which incorporates phylogenetic relationships between taxa, further confirmed the significant community shift (PERMANOVA: R2 = 0.58, P < 0.01).
As displayed by the Beta diversity results (Figure 9D), the non-metric multidimensional scaling (NMDS) ordination plot demonstrated a clear spatial clustering of samples according to the respective groups, with a stress value of 0.04. Given that a stress value below 0.05 is generally considered to represent an excellent representation of the community structure in a reduced-dimensional space, these results collectively suggest that the QMG intervention significantly altered the global composition of the gut microbiota.
The results of the differential abundance analysis
According to the linear discriminant analysis effect size (LEfSe) analysis (Figure 9E), the results revealed that Clostridia, Clostridiales, Lachnospiraceae, and Lachnoclostridium were remarkably enriched in the intervention group, whereas Odoribacteraceae, Odoribacter, Peptostreptococcaceae, and Paeniclostridium were notably enriched in the model group. Therefore, the above gut microbiota might be the primary differential microbiota responsible for the intergroup differences between the model and intervention groups.
The results of community function prediction
The predicted functional profiles at Level 2 and Level 3 showed distinct clustering patterns across the three groups (Figure 9F,G). Specifically, compared with the blank group, the model group exhibited a significant deviation in the relative abundance of metabolic pathways. Notably, this functional perturbation in the model group was largely ameliorated in the intervention group. The functional composition of the intervention group showed a substantial shift back towards the profile observed in the blank group, indicating that the QMG intervention effectively modulated the gut microbial functional structure. These results suggest that the intervention not only reshaped the taxonomic composition and structure of the gut microbiota but also restored its functional metabolic capacity toward a homeostatic state.
QMG modulates the gut–retina axis by coupling systemic inflammation and key regulatory proteins
Associations at global levels
At the kingdom level (Figure 10A–C), QMG improved the CMKLR1-centered network mainly by modulating Bacteria along the gut-retina axis. Specifically, Bacteria positively correlated with retinal PPAR-γ in the blank group (P < 0.01), but this association was not observed in the model group. Following QMG intervention, bacterial abundance positively correlated with retinal CMKLR1 and Wnt5a yet negatively correlated with colonic TP53 and PPAR-γ (P < 0.01).
At the phylum level (Figure 10D–F), QMG improved the CMKLR1-centered network mainly by modulating Candidatus and Bacteroidetes along the gut-retina axis. Specifically, the positive correlation between Candidatus and colonic CMKLR1 observed in the blank group was lost following DR induction, but was restored by QMG intervention, which was accompanied by a negative correlation with serum IL-1β and TNF-α, while positively correlated with retinal PPAR-γ, AP-1, TP53, colonic AP-1, and serum IL-6 (P < 0.01). Proteobacteria in the model group negatively correlated with colonic CMKLR1 (P < 0.01), a trend that persisted following QMG intervention. Meanwhile, Firmicutes were positively correlated with retinal CMKLR1 in the model group, whereas Bacteroidetes and Tenericutes were negatively correlated with retinal CMKLR1 (P < 0.01). Following QMG intervention, Bacteroidetes shifted to positive correlations with retinal PPAR-γ, AP-1, TP53, and colonic CMKLR1 (P < 0.01). Additionally, Actinobacteria positively correlated with retinal CMKLR1 and Wnt5a (P < 0.01).
At the class level (Figure 10G–I), QMG improved the CMKLR1-centered network mainly by regulating Cytophagia and Bacteroidia along the gut-retina axis. Specifically, Cytophagia and Chitinophagia negatively correlated with retinal CMKLR1 in the blank group (P < 0.01). In the model group, Cytophagia, Bacteroidia, and Mollicutes negatively correlated with retinal CMKLR1, while colonic CMKLR1 positively correlated with Flavobacteriia and Epsilonproteobacteria, yet negatively with Tissierellia, Alphaproteobacteria, Clostridia, and Bacilli (P < 0.01). Following QMG intervention, Bacteroidia and Cytophagia positively correlated with colonic CMKLR1, retinal PPAR-γ, AP-1, TP53, colonic AP-1 and serum IL-6, whereas Mollicutes, Deltaproteobacteria, Alphaproteobacteria, and Gammaproteobacteria showed the opposite pattern (P < 0.01). Moreover, Chlamydiia, Actinobacteria, Tissierellia, Bacilli, and Negativicute negatively correlated with retinal CMKLR1 and Wnt5a, while Coriobacteriia exhibited the reverse correlation (P < 0.01).
At the order level (Figure 10J–L), QMG improved the CMKLR1-centered network mainly by modulating Bacteroidales, Bacillales, and Clostridiales along the gut–retina axis. Specifically, Cytophagales and Chitinophagales negatively correlated with retinal CMKLR1, whereas Marinilabiliales positively correlated with colonic CMKLR1 in the blank group (P < 0.01). In the model group, Mycoplasmatales, Cytophagales, Bacteroidales, and Marinilabiliales negatively correlated with retinal CMKLR1, while colonic CMKLR1 positively correlated with Flavobacteriales and Campylobacterales, yet negatively with Tissierellales, Bacillales, Sphingomonadales, Clostridiales, and Lactobacillales (P < 0.01). Following QMG intervention, Bacteroidales and Clostridiales positively correlated with colonic CMKLR1, AP-1, retinal PPAR-γ, AP-1, TP53, and serum IL-6, whereas Desulfovibrionales, Rhizobiales, Sphingomonadales, and Enterobacterales showed the opposite pattern (P < 0.01). Moreover, Eggerthellales and Coriobacteriales positively correlated with retinal CMKLR1 and Wnt5a, yet negatively with colonic TP53 and PPAR-γ, whereas Chlamydiales, Thermoanaerobacterales, Corynebacteriales, Tissierellales, and Bacillales exhibited the reverse correlation (P < 0.01).
Associations at Fine levels
At the family level (Figure 11A–C), QMG improved the CMKLR1-centered network primarily by modulating Lachnospiraceae, Bacteroidaceae, and Lactobacillaceae along the gut–retina axis. Specifically, Ruminococcaceae negatively correlated with retinal CMKLR1, whereas Lachnospiraceae positively correlated with retinal CMKLR1 in the blank group (P < 0.01). In the model group, Peptostreptococcaceae positively correlated with retinal CMKLR1, while Tannerellaceae, Bacteroidaceae, Odoribacteraceae, and Lachnospiraceae showed the opposite pattern (P < 0.01). Meanwhile, colonic CMKLR1 positively correlated with Marinilabiliaceae, Rikenellaceae, and Flavobacteriaceae, yet negatively with Lachnospiraceae and Lactobacillaceae (P < 0.01). Following QMG intervention, Enterobacteriaceae, Sphingomonadaceae, and Oscillospiraceae negatively correlated with colonic CMKLR1, AP-1, and serum IL-6, as well as retinal PPAR-γ, AP-1, and TP53, while positively correlating with serum IL-1β and TNF-α, whereas Peptococcaceae, Bacteroidaceae, Muribaculaceae, and Rikenellaceae showed the opposite pattern (P < 0.01). Moreover, Veillonellaceae, Peptostreptococcaceae, Lactobacillaceae, and Ruminococcaceae negatively correlated with retinal CMKLR1 and Wnt5a, yet positively with colonic TP53 and PPAR-γ, whereas Eggerthellaceae, Lachnospiraceae, and Hungateiclostridiaceae exhibited the reverse correlation (P < 0.01).
At the genus level (Figure 11D–F), QMG improved the CMKLR1-centered network primarily by modulating Lachnoclostridium, Clostridioides, and Bacteroides along the gut–retina axis. Specifically, Ruminococcus negatively correlated with retinal CMKLR1, whereas Lachnoclostridium showed the opposite pattern in the blank group (P < 0.01). In the model group, Lactobacillus and Sphingomonas negatively correlated with colonic CMKLR1, while Alistipes and Croceibacter positively correlated with colonic CMKLR1 (P < 0.01). Meanwhile, retinal CMKLR1 positively correlated with Paeniclostridium and Clostridioides, yet negatively with Mucinivorans, Intestinimonas, Flavonifractor, Parabacteroides, Bacteroides, Odoribacter, and Lachnoclostridium (P < 0.01). Following QMG intervention, Sphingomonas and Oscillibacter negatively correlated with colonic CMKLR1, AP-1, and serum IL-6, as well as retinal PPAR-γ, AP-1, and TP53, while positively correlating with serum IL-1β and TNF-α, whereas Bacteroides, Muribaculum, and Alistipes showed the opposite pattern (P < 0.01). Moreover, Dialister, Flavonifractor, Clostridioides, Ruminococcus, and Paeniclostridium negatively correlated with retinal CMKLR1 and Wnt5a, yet positively with colonic TP53 and PPAR-γ, whereas Pseudoclostridium, Lachnoclostridium, and Blautia exhibited the reverse correlation (P < 0.01).
At the species level (Figure 11G–I), QMG improved the CMKLR1-centered network primarily by modulating Clostridioides difficile, Alistipes shahii, and Paeniclostridium sordellii along the gut–retina axis. Specifically, Ruminococcus bicirculans and endosymbiont 'TC1' of Trimyema compressum negatively correlated with retinal CMKLR1, whereas Lactobacillus fermentum and Lactobacillus helveticus displayed the opposite pattern in the blank group (P < 0.01). In the model group, Croceibacter atlanticus, Alkalitalea saponilacus, Alistipes finegoldii, and Alistipes shahii positively correlated with colonic CMKLR1, while Sphingomonas panacis, Paeniclostridium sordellii, Clostridioides difficile, and Lactobacillus murinus positively correlated with retinal CMKLR1, yet Odoribacter splanchnicus, Mucinivorans hirudinis, Lachnoclostridium phocaense, Flavonifractor plautii, and Intestinimonas butyriciproducens showed the opposite pattern (P < 0.01). Following QMG intervention, Alistipes shahii and Muribaculum intestinale positively correlated with colonic CMKLR1, AP-1, and serum IL-6, as well as retinal PPAR-γ, AP-1, and TP53, while negatively correlating with serum IL-1β and TNF-α, whereas Sphingomonas panacis, Oscillibacter sp. PEA192, and Oscillibacter valericigenes exhibited the reverse pattern (P < 0.01). Moreover, Pseudoclostridium thermosuccinogenes, Lachnoclostridium phocaense, Bacteroides salanitronis, and Blautia sp. N6H1-15 positively correlated with retinal CMKLR1 and Wnt5a, yet negatively with colonic TP53 and PPAR-γ, whereas Paeniclostridium sordellii, Flavonifractor plautii, endosymbiont 'TC1' of Trimyema compressum, Clostridioides difficile, and Dialister pneumosintes showed the reverse correlation (P < 0.01). The detailed correlation results at kingdom, phylum, class, order, family, genus, and species levels are presented in Supplementary File 1.
DATA AVAILABILITY:
The 16S rDNA sequencing datasets generated and analyzed during the current study are available in the National Center for Biotechnology Information (NCBI) Sequence Read Archive (SRA) repository under the BioProject accession number: PRJNA1281561. All other data generated or analyzed during this study are included in this article.
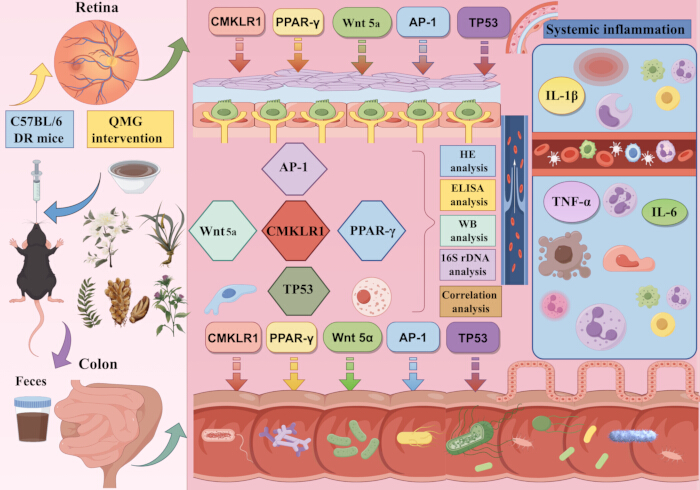
Figure 1: Graphical abstract. The graphical abstract shows the process of this study. Please click here to view a larger version of this figure.
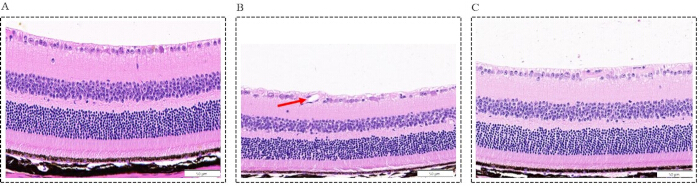
Figure 2: Morphological changes in the retina across the three groups (Scale bar = 50 µm, Magnification: ×400). (A) Blank group: representative photomicrographs of hematoxylin-eosin (HE)-stained retinal sections, showing an intact, well-organized retinal architecture with neatly arranged cellular layers; (B) Model group: representative photomicrographs of HE-stained retinal sections, showing marked structural disorganization, characterized by disordered cellular arrangement, a significant reduction in retinal ganglion cell (RGC) counts (P < 0.0001), pronounced thinning of the retinal thickness (P < 0.0001), and neovascular tufts penetrating the inner limiting membrane (indicated by a red arrow); (C) Intervention group: representative photomicrographs of HE-stained retinal sections, showing significant attenuation of histopathological abnormalities relative to the model group, as evidenced by restoration of retinal laminar architecture, partial recovery of RGC numbers (P < 0.001), and restoration of retinal thinning (P < 0.01). Please click here to view a larger version of this figure.
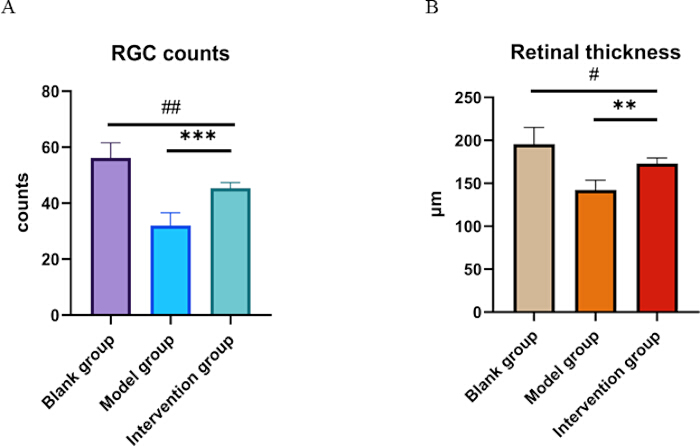
Figure 3: Histological quantification of RGC counts and retinal thickness. (A) Quantification of RGC counts in the ganglion cell layer. (B) Measurement of total retinal thickness (µm). Data are shown as mean ± SD (n = 6 per group). Compared with the blank group: #P <0.05, ##P <0.01; compared with the model group: **P <0.01, ***P <0.001. Please click here to view a larger version of this figure.
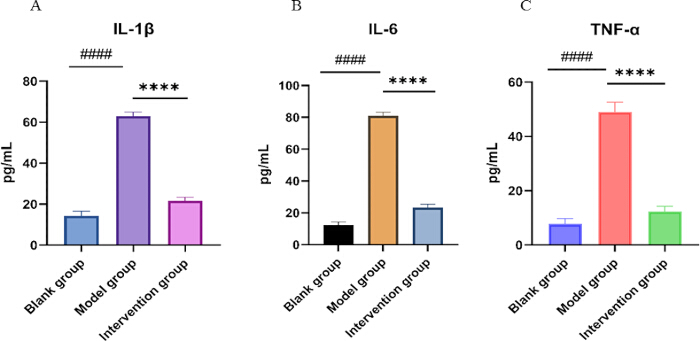
Figure 4: Serum concentrations of inflammatory cytokines in the three groups. Bar charts showing ELISA‑based quantification of serum IL‑1β (A), IL‑6 (B), and TNF‑α (C) levels in the blank control, model group, and intervention groups. Data are expressed as mean ± SD (n = 6 per group). Compared with the blank group: ####P < 0.0001; compared with the model group: ****P < 0.0001. Please click here to view a larger version of this figure.
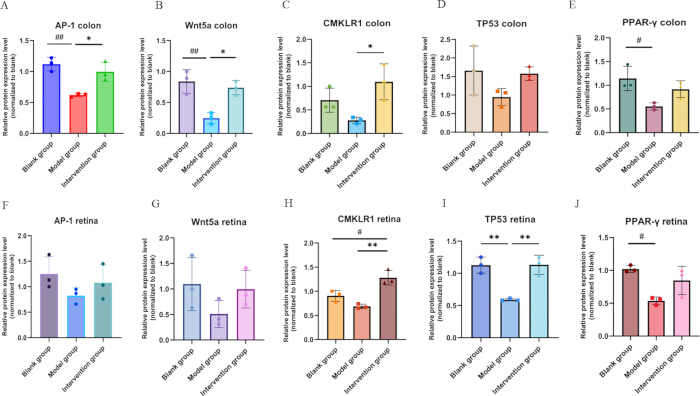
Figure 5: Bar chart of the expression levels of key regulatory proteins in the retina and colon. (A) Relative protein expression level (normalized to blank) of AP-1 in the colon (n = 3); (B) Relative protein expression level (normalized to blank) of Wnt5a in the colon (n = 3); (C) Relative protein expression level (normalized to blank) of CMKLR1 in the colon (n = 3); (D) Relative protein expression level (normalized to blank) of TP53 in the colon (n = 3); (E) Relative protein expression level (normalized to blank) of PPAR-γ in the colon (n = 3); (F) Relative protein expression level (normalized to blank) of AP-1 in the retina (n = 3); (G) Relative protein expression level (normalized to blank) of Wnt5a in the retina (n = 3); (H) Relative protein expression level (normalized to blank) of CMKLR1 in the retina (n = 3); (I) Relative protein expression level (normalized to blank) of TP53 in the retina (n = 3); (J) Relative protein expression level (normalized to blank) of PPAR-γ in the retina (n = 3). Compared with the blank group: #P < 0.05, ##P < 0.01; compared with the model group: *P < 0.05, **P < 0.01. Please click here to view a larger version of this figure.
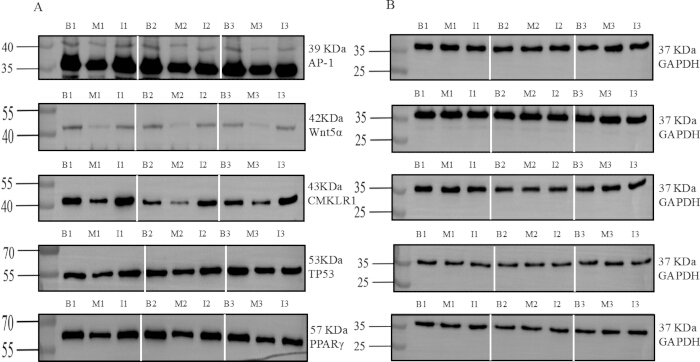
Figure 6: Representative WB grayscale blots of key regulatory proteins in the colon. (A) Target protein expression: AP-1, Wnt5a, CMKLR1, TP53, and PPAR-γ; (B) Loading control: GAPDH. Vertical white lines separate replicate sets (Rep1, Rep2, Rep3); Molecular weight markers (kDa) are indicated on the left, and protein names with corresponding kDa are shown on the right. Lanes are labeled as: B1 (Blank group 1), M1 (Model group 1), I1 (Intervention group 1); B2 (Blank group 2), M2 (Model group 2), I2 (Intervention group 2); B3 (Blank group 3), M3 (Model group 3), I3 (Intervention group 3). Full-length, uncropped Western blot (WB) images with visible molecular weight markers have been provided as Supplementary Figure 2. Please click here to view a larger version of this figure.
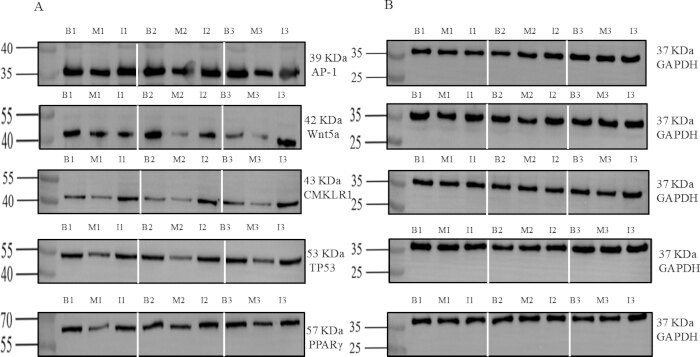
Figure 7: Representative WB grayscale blots of key regulatory proteins in the retina. (A) Target protein expression: AP-1, Wnt5a, CMKLR1, TP53, and PPAR-γ; (B) Loading control: GAPDH. Vertical white lines separate replicate sets (Rep1, Rep2, Rep3); Molecular weight markers (kDa) are indicated on the left, and protein names with corresponding kDa are shown on the right. Lanes are labeled as: B1 (Blank group 1), M1 (Model group 1), I1 (Intervention group 1); B2 (Blank group 2), M2 (Model group 2), I2 (Intervention group 2); B3 (Blank group 3), M3 (Model group 3), I3 (Intervention group 3). Full-length, uncropped WB images with visible molecular weight markers have been provided as Supplementary Figure 2. Please click here to view a larger version of this figure.
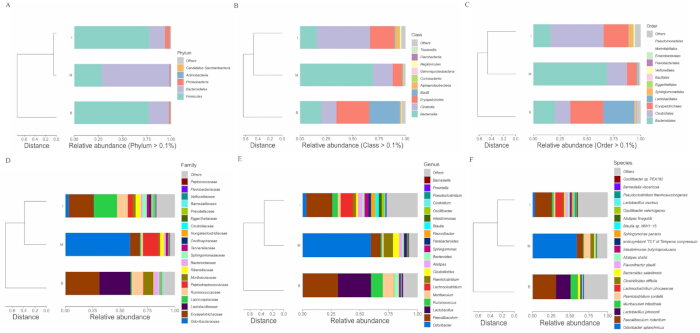
Figure 8: Hierarchical clustering of gut microbiota composition at different levels. Hierarchical clustering dendrogram based on Bray-Curtis dissimilarity among the blank control (B), model group(M), and intervention group (I). The branch length represents the degree of structural divergence. Stacked bar chart depicting the relative abundances of dominant phyla across the three groups. Phyla falling below the threshold are aggregated as “Others”. (A) Qiming granule (QMG) rebalances the gut microbiota composition at the phylum level; (B) QMG rebalances the gut microbiota composition at the class level; (C) QMG rebalances the gut microbiota composition at the order level; (D) QMG rebalances the gut microbiota composition at the family level; (E) QMG rebalances the gut microbiota composition at the genus level; (F) QMG rebalances the gut microbiota composition at the species level. Abbreviation: B, blank group; M, model group; I, intervention group. Please click here to view a larger version of this figure.
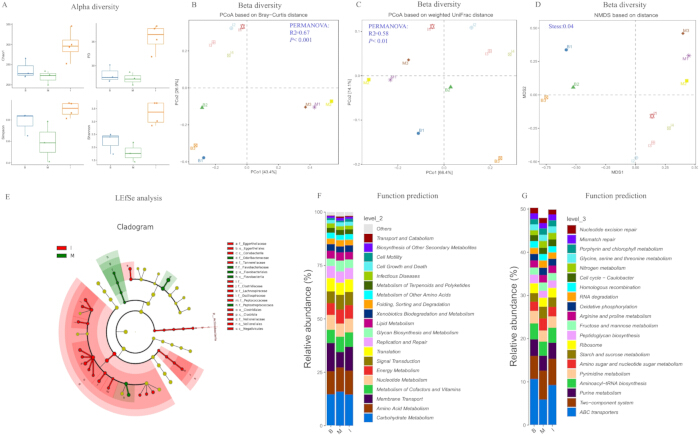
Figure 9: Analysis of gut microbiota diversity, differential abundance, and predicted functional pathways. (A) Alpha diversity analysis assessed by Chao1, PD, Simpson, and Shannon indices revealed that the intervention group exhibited higher microbial diversity than the model group, indicating that QMG treatment effectively restores gut microbial richness and evenness. (B) Beta diversity analysis assessed by principal coordinates analysis (PCoA) based on Bray-Curtis distance revealed significant differences among groups (PERMANOVA: R2=0.67, P < 0.001), indicating that the DR model and QMG intervention accounted for a substantial proportion of the variation in microbial community composition. (C) Beta diversity analysis assessed by PCoA based on weighted unique fraction (UniFrac) distance further confirmed the significant community shift (PERMANOVA: R2= 0.58, P < 0.01). (D) Beta diversity analysis assessed by non-metric multidimensional scaling (NMDS) ordination demonstrated a stress value of 0.04, suggesting that the QMG intervention significantly altered the global composition of the gut microbiota. (E) Cladogram of differential abundance analysis assessed by linear discriminant analysis effect size (LEfSe) revealed the primary differential microbiota between the model and intervention groups. Functional prediction of the gut microbiota at KEGG Level 2 (F) and KEGG Level 3 (G) suggested that the intervention not only reshaped the taxonomic composition and structure of the gut microbiota but also restored its functional metabolic capacity toward a homeostatic state. Please click here to view a larger version of this figure.
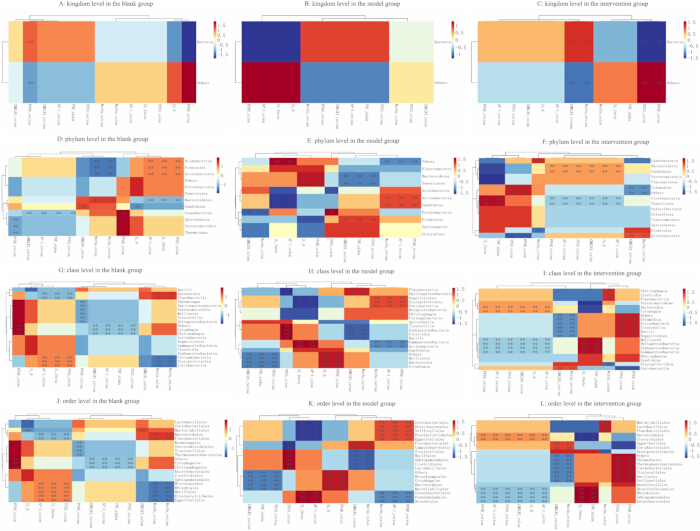
Figure 10: Global association of gut microbiota with inflammatory and regulatory factors. (A) Association of gut microbiota at kingdom level in the blank group; (B) Association of gut microbiota at kingdom level in the model group; (C) Association of gut microbiota at kingdom level in the intervention group; (D) Association of gut microbiota at phylum level in the blank group; (E) Association of gut microbiota at phylum level in the model group; (F) Association of gut microbiota at phylum level in the intervention group; (G) Association of gut microbiota at class level in the blank group; (H) Association of gut microbiota at class level in the model group; (I) Association of gut microbiota at class level in the intervention group; (J) Association of gut microbiota at order level in the blank group; (K) Association of gut microbiota at order level in the model group; (L) Association of gut microbiota at order level in the intervention group. Please click here to view a larger version of this figure.
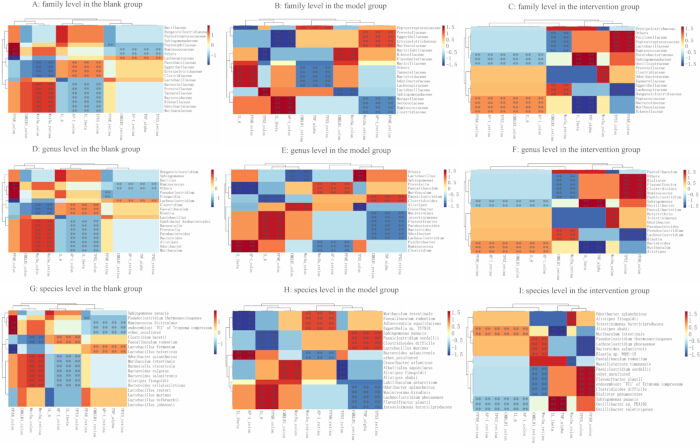
Figure 11: Fine association of gut microbiota with inflammatory and regulatory factors. (A) Association of gut microbiota at the family level in the blank group; (B) Association of gut microbiota at the family level in the model group. (C) Association of gut microbiota at family level in the intervention group; (D) Association of gut microbiota at genus level in the blank group; (E) Association of gut microbiota at genus level in the model group; (F) Association of gut microbiota at genus level in the intervention group; (G) Association of gut microbiota at species level in the blank group; (H) Association of gut microbiota at species level in the model group;(I) Association of gut microbiota at species level in the intervention group. Please click here to view a larger version of this figure.
| Groups (n = 6) | RGCs counts | Retinal thickness |
| Blank group | 56.17 ± 5.382 | 195.50 ± 19.54 μm |
| Model group | 32.00 ± 4.561#### | 142.30 ± 11.34 μm#### |
| Intervention group | 45.33 ± 2.066 ##*** | 173.00 ± 6.575 μm#** |
| p | <0.0001 | <0.0001 |
Table 2: Quantitative analysis of RGC counts and retinal thickness in the three experimental groups. Data are presented as Mean ± SD (n = 6 per group). Compared with the blank group: #P <0.05, ##P <0.01, ####P <0.0001; compared with the model group: **P <0.01, ***P <0.001.
| Groups (n = 6) | IL-1β | IL-6 | TNF-α |
| Blank group | 14.31 ± 2.28 | 12.48 ± 1.774 | 7.728 ± 2.048 |
| Model group | 62.88 ± 2.01#### | 80.95 ± 2.247#### | 49.00 ± 3.647#### |
| Intervention group | 21.7 ± 1.654**** | 23.27 ± 2.074**** | 12.35 ± 1.891**** |
| P | <0.0001 | <0.0001 | <0.0001 |
Table 3: Serum expression levels of IL-1β, IL-6, and TNF-α in the three experimental groups. Data are presented as Mean ± SD (n = 6 per group). Cytokine concentrations were determined by enzyme‑linked immunosorbent assay (ELISA) and are reported in pg/mL. Compared with the blank group: ####P < 0.0001; compared with the model group: ****P < 0.0001.
Supplementary Figure 1: Experimental Design and Study Timeline. Schematic overview of the experimental design.Please click here to download this file.
Supplementary Figure 2: Original, full-length, uncropped WB images corresponding to Figure 6 and Figure 7. Raw images without modification contain all molecular weight markers in colon and retina blots for AP-1, Wnt5a, TP53, CMKLR1, PPAR-γ, and loading control GAPDH. Molecular weight markers (kDa) are indicated. Lanes are labeled: B1 (Blank group 1), M1 (Model group 1), I1 (Intervention group 1); B2 (Blank group 2), M2(Model group 2), I2 (Intervention group 2); B3 (Blank group 3), M3 (Model group 3), I3 (Intervention group 3). The original blots were not subjected to high-contrast adjustments.Please click here to download this file.
Supplementary File 1: Detailed correlation analyses of gut microbiota with inflammatory and regulatory factors.Please click here to download this file.
Обсуждение
Диабетическая ретинопатия (ДР) представляет собой сложное нейроваскулярное осложнение, вызванное хронической гипергликемией, воспалением и метаболической дисрегуляцией22. Американская академия офтальмологии разделяет ДР на непролиферативную и пролиферативную, которая характеризуется началом неоваскуляризации23. Учитывая ограниченность современных терапевтических стратегий, поиск новых механизмов стал перспективным направлением в лечении ДР. Примечательно, что в результате последних открытий ось «кишечник — сетчатка» была определена как важная, но недостаточно изученная терапевтическая мишень при ДР. Концепция оси «кишечник — сетчатка», впервые представленная и описанная Шелдоном Роуэном в 2017 году6, получила распространение в исследованиях патофизиологических процессов глазных заболеваний. Однако конкретные молекулярные механизмы, лежащие в основе роли оси «кишечник — сетчатка» в патогенезе и прогрессировании ДР, остаются неясными, что препятствует разработке и клиническому применению терапевтических стратегий, направленных на эту ось.
В данном исследовании мы систематически оценили эффективность и лежащие в ее основе механизмы действия QMG против DR. Эти результаты предоставляют предварительные доказательства того, что QMG уменьшает гистопатологические повреждения сетчатки, подавляет системное воспаление, восстанавливает гомеостаз микробиоты кишечника и двунаправленно модулирует ключевые регуляторные белки (регуляторную сеть с центром в CMKLR1) как в толстой кишке, так и в сетчатке, тем самым представляя QMG в качестве потенциального модулятора оси «кишечник-сетчатка». Хроническое системное воспаление низкой степени тяжести является характерным признаком DM и основным фактором микрососудистого повреждения сетчатки и прогрессирования DR24. Результаты ELISA показали, что уровни IL-1β, IL-6 и TNF-α в сыворотке крови были значительно повышены у мышей с моделью DR (P < 0,0001), что подтверждает наличие выраженного системного воспалительного ответа при DR. Неконтролируемое высвобождение этих цитокинов может нарушить гематоретинальный барьер, стимулировать апоптоз RGC и приводить к патологической неоваскуляризации. После применения QMG уровни этих цитокинов значительно снизились (P < 0,0001), при этом восстановилась структурная целостность сетчатки, увеличилась выживаемость RGC и сохранилась толщина сетчатки. Эти результаты указывают на то, что ретинопротекторные эффекты QMG тесно связаны с его мощной системной противовоспалительной активностью. Примечательно, что этот системный противовоспалительный эффект не проявляется изолированно, а сопряжен с опосредованной QMG модуляцией микробиоты кишечника и восстановлением ключевых регуляторных белков в толстой кишке; это позволяет предположить, что QMG может оказывать свое терапевтическое действие через ось «кишечник — системное воспаление — сетчатка».
Для дальнейшего выяснения молекулярного механизма, посредством которого QMG оказывает анти-DR эффект вдоль оси «кишечник–сетчатка», была изучена экспрессия белков регуляторной сети, центрированной вокруг CMKLR1 (включая CMKLR1, Wnt5a, TP53, AP-1 и PPAR-γ), в тканях толстой кишки и сетчатки. Результаты показали, что после индукции модели DR экспрессия всех пяти белков имела устойчивую тенденцию к снижению как в толстой кишке, так и в сетчатке, что предполагает системное блокирование передачи сигналов между кишечником и сетчаткой в условиях DR. После применения QMG экспрессия CMKLR1 значительно повысилась как в толстой кишке, так и в сетчатке (P < 0.05 и P < 0.01), что указывает на способность QMG восстанавливать двустороннюю связь вдоль оси «кишечник–сетчатка» посредством системной активации CMKLR1. Кроме того, QMG значительно восстановил экспрессию AP-1 и Wnt5a в толстой кишке, а также экспрессию TP53 в сетчатке, что позволяет предположить, что различные белки могут играть тканеспецифические функциональные роли вдоль этой оси: AP-1 и Wnt5a являются более чувствительными к действию QMG в толстой кишке, в то время как TP53, будучи регулятором апоптоза, играет более важную роль в нейропротекции сетчатки. Дальнейший корреляционный анализ показал, что экспрессия AP-1, CMKLR1, PPAR-γ и Wnt5a в толстой кишке значительно отрицательно коррелировала с уровнями системных воспалительных цитокинов (IL-1β, IL-6, TNF-α) (P < 0.05 – P < 0.001), тогда как прямой корреляции между цитокинами в сыворотке и экспрессией белков в сетчатке обнаружено не было. Это расхождение имеет важные механистические последствия: QMG может воздействовать преимущественно на микросреду кишечника, восстанавливая экспрессию ключевых регуляторных белков в толстой кишке и тем самым подавляя системное воспаление; восстановление же белков сетчатки может происходить через косвенные пути, такие как транслокация метаболитов, производных микробиоты кишечника, в кровоток, которые затем дистанционно регулируют сигнальные каскады сетчатки, а не опосредовано системными воспалительными факторами. Этот результат поддерживает регуляторную модель оси «кишечник–системное воспаление–сетчатка» и предоставляет ключевые механистические доказательства терапевтического эффекта QMG при DR через ось «кишечник–сетчатка». Среди исследованных мишеней CMKLR1 продемонстрировал значительные изменения как в тканях сетчатки, так и в тканях толстой кишки, выступив в качестве потенциального первичного биомаркера, связывающего ось «кишечник–сетчатка». В предыдущих исследованиях CMKLR1 был связан с гликолипидным обменом, степенью тяжести DR и модуляцией микробиоты кишечника25,26,27,28,29,30, что позволяет предположить, что его дифференциальная экспрессия вдоль оси «кишечник–сетчатка» может отражать его участие в множественных патологических процессах. Эти данные позиционируют CMKLR1 как перспективного кандидата в биомаркеры для диагностики DR и терапевтического вмешательства, что требует дальнейшей механистической валидации.
В то время как CMKLR1 функционирует как центральный узел оси «кишечник–сетчатка», терапевтический эффект QMG достигается за счет многомерной регуляторной сети, в которой Wnt5a, TP53, AP-1 и PPAR-γ обеспечивают необходимую синергетическую поддержку. Сигнализация Wnt имеет решающее значение для гомеостаза эпителия кишечника и здоровья толстой кишки, включая ее роль в поддержании целостности эпителия, модуляции воспаления и обеспечении защиты слизистой оболочки посредством микробиоты31,32,33,34. PPAR-γ регулирует воспалительные реакции; было показано, что он ингибирует липид-активированные фагоциты при DR и способствует выживанию фоторецепторов за счет модуляции микроглии35,36,37. AP-1 служит фактором транскрипции, через который метаболиты микробиоты кишечника, такие как дезоксихолевая кислота, влияют на воспалительный и иммунный гомеостаз38,39,40,41. TP53 участвует в аутофагии, апоптозе и повреждении нейронов сетчатки в условиях гипергликемии42,43,44,45. В совокупности эти сигнальные узлы образуют взаимосвязанную сеть, которая связывает динамику микробиоты кишечника с патологией сетчатки, что побудило нас исследовать, модулирует ли QMG эту сеть вдоль оси «кишечник–сетчатка».
Ключевой механизм регуляции системного воспаления берет свое начало в экосистеме кишечника. Анализ секвенирования 16S рДНК выявил вызванный диабетом структурный дисбиоз в модельной группе, характеризующийся значительным дисбалансом соотношения Firmicutes/Bacteroidetes, обогащением потенциально патогенных таксонов (например, Odoribacter и Clostridioides) и истощением полезных таксонов (например, Lactobacillus и Faecalibaculum). Примечательно, что лечение QMG сработало как агент по восстановлению микробиоты, обратив эти патологические изменения следующим образом: (i) восстановление микробного гомеостаза: нормализация пропорций ключевых семейств и родов (Faecalibaculum, Ruminococcus, Erysipelotrichaceae) до базового уровня контрольной группы; (ii) таргетная модуляция патобионтов: подавление связанного с диабетом избыточного роста Odoribacter splanchnicus и Clostridioides difficile; (iii) стимулирование формирования полезного сообщества: индуцирование пролиферации противовоспалительных или продуцирующих метаболиты таксонов, таких как Lachnoclostridium, Blautia и Flavonifractor plautii. Кроме того, анализ разнообразия и многоуровневый корреляционный анализ Спирмена показали, что вмешательство QMG эффективно восстанавливает многоуровневый базовый состав таким образом, что это способствует защитным взаимодействиям между хозяином и микробами вдоль оси кишечник–сетчатка. Этот результат не только подтверждает регуляторный эффект QMG на микробиоту кишечника, но и раскрывает потенциальную терапевтическую стратегию, с помощью которой QMG координирует ремоделирование микробиоты с активностью ключевых регуляторных белков (например, IL-6, TP53) для совместного подавления системного воспаления и, следовательно, облегчения диабетической ретинопатии.
Последние исследования иметь было подтверждено, что ТКМ оказывает многоцелевое регулирующее воздействие на ось «микробиота — метаболизм — иммунитет», что отличает ее от одноцелевых фармацевтических препаратов46Накапливающиеся данные свидетельствуют о терапевтическом потенциале QMG при диабетической ретинопатии (ДР) и сопутствующих заболеваниях глаз. Многоцентровое рандомизированное контролируемое исследование показало, что QMG значительно сокращает время артериовенозного кровотока в сетчатке у пациентов с ДР, что указывает на улучшение ретинального кровотока и уменьшение гипоксии.47Метаанализы дополнительно подтвердили, что сочетание QMG с традиционной терапией значительно улучшает показатели центральной толщины макулы, остроты зрения и общую эффективность лечения при диабетическом макулярном отеке.48, а также увеличение времени разрыва слезной пленки и усиление секреции слез у пациентов с синдромом сухого глаза49У пациентов с повреждением нервов, ассоциированным с непролиферативной диабетической ретинопатией (НПР), QMG продемонстрировал не меньшую эффективность по сравнению с кальция doběзилатом в сохранении толщины слоя нервных волокон сетчатки и площади фовеальной аваскулярной зоны.50Механистические исследования показали, что QMG защищает сетчатку от повреждений с помощью нескольких путей, включая ингибирование пироптоза клеток Мюллера и иммунного воспаления через путь P2X7R/NLRP3.51активация сигнального пути PI3K/Akt для снижения апоптоза и модуляция белков плотных контактов для сохранения целостности гематоретинального барьера52С помощью сетевого фармакологического анализа было выявлено несколько биоактивных соединений в QMG, которые синергически воздействуют на мишени, связанные с диабетической ретинопатией.16, а в клинических исследованиях не было зарегистрировано серьезных нежелательных явлений, что указывает на благоприятный профиль безопасности50Терапевтическая эффективность QMG обусловлена синергетическим действием его активных компонентов, включая кверцетин, кемпферол, изорамнетин, формононетин и β‑ситостерол, которые в совокупности оказывают противовоспалительное, антиоксидантное и антиапоптотическое действие, воздействуя на IL‑6, TNF‑α, TP53 и AP-153,54,55,56,57,58,59Настоящее исследование расширяет эти знания, демонстрируя, что защитные эффекты QMG также опосредованы модуляцией оси «кишечник — сетчатка», а именно путем восстановления гомеостаза микробиоты кишечника и регуляции молекулярной сети, центрированной на CMKLR1, для подавления системного воспаления и уменьшения повреждения сетчатки.
Следует отметить несколько ограничений данного исследования, которые требуют дальнейшего изучения в будущих работах. Во-первых, причинно-следственная связь между изменениями микробиоты кишечника и улучшением функций сетчатки требует дополнительного подтверждения. Хотя была отмечена сильная корреляция между ремоделированием микробиоты, вызванным QMG, и защитными фенотипами сетчатки, в будущих исследованиях для подтверждения этой связи было бы ценно провести эксперименты по прямому установлению причинности, такие как трансплантация фекальной микробиоты, использование моделей животных, не имеющих микрофлоры (germ-free), или истощение микробиоты с помощью антибиотиков. Во-вторых, для профилирования состава микробиоты использовалось секвенирование 16S rDNA, которое обеспечивает достаточное таксономическое разрешение на уровне рода и выше, но имеет ограниченные возможности для получения функциональной информации на уровне штаммов или точного определения метаболического потенциала. В последующих исследованиях будут применены метагеномное секвенирование или метаболомный анализ для идентификации ключевых функциональных путей микробиоты, регулируемых QMG. В-третьих, изменения микробиоты оценивались только в конечной точке эксперимента, что исключало динамическое отслеживание временной эволюции реконструкции микробиоты в ходе воздействия QMG. Продольный отбор проб в будущих исследованиях поможет определить кинетику ремоделирования микробиоты под воздействием QMG и её временную связь с защитой сетчатки. В-четвертых, хотя при гистопатологическом анализе наблюдались истончение сетчатки, потеря RGC и неоваскулярные пучки, в будущих работах следует изучить протоколы многократного введения STZ и генетические модели диабета, а также обеспечить более комплексную характеристику фенотипа DR.
Таким образом, данное исследование демонстрирует, что QMG облегчает течение DR, связывая молекулярную сеть с центром в CMKLR1 с системным воспалением через ось кишечник–сетчатка. Механизм действия QMG проявляется на трех уровнях: на микробном уровне QMG обращает вспять вызванный диабетом дисбиоз кишечника (например, восстанавливая соотношение Firmicutes/Bacteroidetes, подавляя Odoribacter и Clostridioides и стимулируя рост полезных бактерий, таких как Faecalibaculum); на молекулярном уровне QMG регулирует путь CMKLR1/Wnt5a/PPAR-γ/AP-1/TP53 и уменьшает системное воспаление; на тканевом уровне QMG защищает морфологию сетчатки. Эти результаты подтверждают, что QMG является перспективной терапевтической стратегией воздействия на ось кишечник–сетчатка при DR, и обеспечивают механистическую основу для применения TCM в лечении осложнений сахарного диабета.
Раскрытие информации
Авторы заявляют, что у них нет известных конфликтов финансовых интересов или личных отношений, которые могли бы повлиять на работу, описанную в данной статье.
Благодарности
Автор выражает благодарность всем членам своей команды, которые оказали значительную поддержку и помощь в проведении данного исследования.
Данное исследование было поддержано Национальным фондом естественных наук Китая (грант № 82474580) и Проектом по свободным исследованиям Фонда больницы при Больнице Университета традиционной китайской медицины города Чэнду (№ 23ZYTS1601).
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| Моноклональное антитело к AP-1 | Proteintech | 66313-1-IG | 1:5000 |
| Поликлональное антитело к CMKLR1 | Affinity | AF5291 | 1:1000 |
| Поликлональное антитело к GAPDH | Affinity | AF7021 | 1:5000 |
| Козьи антитела GoatAnti-Mouse IgG(H+L) HRP | MULTI SCIENCES | GAM0072 | 1:10000 |
| Козьи антитела GoatAnti-Rabbit IgG(H+L) HRP | MULTI SCIENCES | GAR0072 | 1:10000 |
| GraphPad Prism | / | version 9.5 | |
| Image-Pro Plus | Media Cybernetics, Inc., Rockville, MD, USA | version 6.0 | |
| Платформа Luoning Bio-Cloud | http://www.biomediv.cn/login.html | ||
| Набор ELISA для определения IL-1β(интерлейкина 1 бета) мыши | Elabscience | E-EL-M0037 | Определение цитокинов в сыворотке |
| Набор ELISA для определения IL-6(интерлейкина-6) мыши | Elabscience | E-EL-M0044 | Определение цитокинов в сыворотке |
| Набор ELISA для определения TNF-α(фактора некроза опухоли альфа) мыши | Elabscience | E-EL-M3063 | Определение цитокинов в сыворотке |
| NanoFilt | / | version 2.7.1 | |
| Секвенатор Nanopore GridION | Oxford Nanopore Technologies | https://store.nanoporetech.com/gridion.html | |
| Pannoramic SCAN II | Сканер 3DHISTECH Pannoramic SCAN | https://www.3dhistech.com/scanners/pannoramic-scan-ii-digital-scanner/ | |
| Поликлональное антитело к PPAR гамма (PPAR-γ) | ImmunoWay | bs-0530R | 1:1000 |
| Python | / | version 3.7.4 | |
| Гранулы Qiming | Zhejiang Sansheng Mandi Pharmaceutical Co., Ltd. | Chinese National Drug Approval No. Z20090036 | 0.9 g/kg, зондовое введение |
| Язык программирования R | / | version 4.0.3 | |
| База данных SILVA | / | version 138 | |
| Стрептозотоцин (STZ) | Sigma-Aldrich | S0130 | 35 mg/kg, в/б |
| Поликлональное антитело к TP53 | Abcam | ab131442 | 1:1000 |
| Usearch | / | version 10.0.240 | |
| Поликлональное антитело к Wnt5a | Proteintech | 55184-1-AP | 1:1000 |
| Набор Zymo Research BIOMICS DNA Microprep Kit | Zymo Research | D4301 | Экстракция гДНК из фекалий |
Ссылки
- Lei C, et al. Homocysteine and diabetic retinopathy. Exp Eye Res. 2026;262:110729.
- Owens DR, et al. IDF diabetes Atlas: A worldwide review of studies utilizing retinal photography to screen for diabetic retinopathy from 2017 to 2024 inclusive. Diabetes Res Clin Pract. 2025;226:112346.
- Zhu J, Huang J, Sun Y, Xu W, Qian H. Emerging role of extracellular vesicles in diabetic retinopathy. Theranostics. 2024;14(4):1631–1646.
- Xie L, Lin W. The role of gut microbiota dysbiosis in the inflammatory pathogenesis of diabetic retinopathy. Front Immunol. 2025;16:1604315.
- Niu J, Liu Y, Peng H, Chen J, Chen L. Early-stage diabetic retinopathy: gut-metabolic triggers, immune-neurodegeneration, and interventions. Graefes Arch Clin Exp Ophthalmol. 2025;263(10):2723–2736.
- Rowan S, et al. Involvement of a gut-retina axis in protection against dietary glycemia-induced age-related macular degeneration. Proc Natl Acad Sci U S A. 2017;114(22):E4472–E4481.
- Rzeczycki P, Pęciak O, Plust M, Droździk M. Gut Microbiota in the Regulation of Intestinal Drug Transporters: Molecular Mechanisms and Pharmacokinetic Implications. Int J Mol Sci. 2025;26(24):11897.
- Yang H, et al. Mediating role of aging and obesity in the relationship between dietary index for gut microbiota and metabolic syndrome and its potential regulatory mechanisms. Eur J Med Res. 2025;31(1):137.
- Zahavi EE, et al. Repeat-element RNAs integrate a neuronal growth circuit. Cell. 2025;188(16):4350–4365.e22.
- Dander E, et al. The chemerin/CMKLR1 axis regulates intestinal graft-versus-host disease. JCI Insight. 2023;8(5):e154440.
- Zhang J, et al. Therapeutic targets in the Wnt signaling pathway: Treating cancer with specificity. Biochem Pharmacol. 2025;236:116848.
- Liu M, Lim ST, Song W, Coffman TM, Wang X. Beyond lipids: fenofibrate in diabetic retinopathy and nephropathy. Trends Pharmacol Sci. 2026;47(3):325–341.
- Wu Y, et al. The active ingredient β-sitosterol in the anti-inflammatory agents alleviates perianal inflammation in rats by inhibiting the expression of Srebf2, activating the PPAR signaling pathway, and altering the composition of gut microbiota. Int Immunopharmacol. 2025;152:114470.
- Lin T, Chen C, Zhao LC, Zhu HY, Li W. The beneficial effects of Traditional Chinese Medicine on diabetic retinopathy: mechanisms, therapeutics, and prospects. Acupunct Herb Med 2026;6(2):188–204.
- Huo J, et al. Evaluation of individualized treatment of nonproliferative diabetic retinopathy: a multicenter, randomized, parallel-controlled study. J Tradit Chin Med. 2022;42(1):90–95.
- Huang Y, et al. Pharmacological mechanism and clinical study of Qiming granules in treating diabetic retinopathy based on network pharmacology and literature review. J Ethnopharmacol. 2023;302(Pt A):115861.
- Salma B, et al. Ameliorative Efficacy of the Cassia auriculata Root Against High-Fat-Diet + STZ-Induced Type-2 Diabetes in C57BL/6 Mice. ACS Omega. 2020;6(1):492–504.
- Srinivasan K, Viswanad B, Asrat L, Kaul CL, Ramarao P. Combination of high-fat diet-fed and low-dose streptozotocin-treated rat: a model for type 2 diabetes and pharmacological screening. Pharmacol Res. 2005;52(4):313–320.
- Liu Y, Deng J, Fan D. Ginsenoside Rk3 ameliorates high-fat-diet/streptozocin-induced type 2 diabetes mellitus in mice via the AMPK/Akt signaling pathway. Food Funct. 2019;10(5):2538–2551.
- Hu RY, et al. AFG Ameliorates Diabetic Retinopathy through AMPK-Dependent Autolysosomal Pathway: From Network Pharmacology to In Vivo and In Vitro Validation. J Agric Food Chem. 2026;74(2):2124–2139.
- Reagan-Shaw S, Nihal M, Ahmad N. Dose translation from animal to human studies revisited. FASEB J. 2008;22(3):659–661.
- Zou Q, et al. Oxidative stress in diabetic retinopathy. Clin Chim Acta. 2026;584:120871.
- Clements JN, Mesawich J, Twisdale C. Current and Emerging Pharmacologic Therapies for Diabetic Retinopathy. Pharmacotherapy. 2026;46(3):e70119.
- Rezvani Z, Khani F, Afarid M, Asadian F, Takhshid MA. Clinical values of systemic inflammatory indices in diabetic retinopathy. Clin Exp Optom. 2026;109(3):371–385.
- Zhu Z, et al. Targeting the CMKLR1-Mediated Signaling Rebalances Immunometabolism State in Middle-Age Testicular Macrophages. Adv Sci (Weinh). 2026;13(14):e15166.
- Lin Y, et al. Epithelial chemerin-CMKLR1 signaling restricts microbiota-driven colonic neutrophilia and tumorigenesis by up-regulating lactoperoxidase. Proc Natl Acad Sci U S A. 2022;119(29):e2205574119.
- Puthanmadhom Narayanan S, et al. Epigenetic Alterations Are Associated With Gastric Emptying Disturbances in Diabetes Mellitus. Clin Transl Gastroenterol. 2020;11(3):e00136.
- Wang L, et al. Chemerin/CMKLR1 Axis Promotes the Progression of Proliferative Diabetic Retinopathy. Int J Endocrinol. 2021;2021:4468625.
- Zheng C, et al. α-NETA down-regulates CMKLR1 mRNA expression in ileum and prevents body weight gains collaborating with ERK inhibitor PD98059 in turn to alleviate hepatic steatosis in HFD-induced obese mice but no impact on ileal mucosal integrity and steatohepatitis progression. BMC Endocr Disord. 2023;23(1):9.
- Dranse HJ, et al. The impact of chemerin or chemokine-like receptor 1 loss on the mouse gut microbiome. PeerJ. 2018;6:e5494.
- Flores-Hernández E, et al. Canonical and non-canonical Wnt signaling are simultaneously activated by Wnts in colon cancer cells. Cell Signal. 2020;72:109636.
- Qi Y, et al. Heat-inactivated Bifidobacterium adolescentis ameliorates colon senescence through Paneth-like-cell-mediated stem cell activation. Nat Commun. 2023;14(1):6121.
- Ou W, et al. Cooperation of Wnt/β-catenin and Dll1-mediated Notch pathway in Lgr5-positive intestinal stem cells regulates the mucosal injury and repair in DSS-induced colitis mice model. Gastroenterol Rep (Oxf). 2024;12:goae090.
- Dong Y, et al. Berberine ameliorates DSS-induced intestinal mucosal barrier dysfunction through microbiota-dependence and Wnt/β-catenin pathway. Int J Biol Sci. 2022;18(4):1381–1397.
- Escandon P, et al. The role of peroxisome proliferator-activated receptors in healthy and diseased eyes. Exp Eye Res. 2021;208:108617.
- Blot G, et al. Perilipin 2-positive mononuclear phagocytes accumulate in the diabetic retina and promote PPARγ-dependent vasodegeneration. J Clin Invest. 2023;133(19):e161348.
- Zhou W, et al. TREM2-dependent activation of microglial cell protects photoreceptor cell during retinal degeneration via PPARγ and CD36. Cell Death Dis. 2024;15(8):623.
- Bala Kumar S, et al. Gut microbial metabolites targeting JUN in renal cell carcinoma via IL-17 signaling pathway: network pharmacology approach. Mol Divers. 2026;30(1):613–632.
- Wang L, et al. Gut microbial bile acid metabolite skews macrophage polarization and contributes to high-fat diet-induced colonic inflammation. Gut Microbes. 2020;12(1):1–20.
- Hagan T, et al. Antibiotics-Driven Gut Microbiome Perturbation Alters Immunity to Vaccines in Humans. Cell. 2019;178(6):1313–1328.e13.
- Meng Y, et al. Jinlida ameliorates diabetic kidney disease via gut microbiota-dependent production of pyridoxamine targeting renal AGEs/RAGE and TGF-β pathways. Phytomedicine. 2026;150:157744.
- Zhou H, Zhang L, Ding C, Zhou Y, Li Y. Upregulation of HMOX1 associated with M2 macrophage infiltration and ferroptosis in proliferative diabetic retinopathy. Int Immunopharmacol. 2024;134:112231.
- Mohammad HMF, et al. Neuroprotective effect of levetiracetam in mouse diabetic retinopathy: Effect on glucose transporter-1 and GAP43 expression. Life Sci. 2019;232:116588.
- Peng H, et al. Autophagy and senescence of rat retinal precursor cells under high glucose. Front Endocrinol (Lausanne). 2023;13:1047642.
- Ding Y, Chen L, Xu J, Feng Y, Liu Q. APAF1 Silencing Ameliorates Diabetic Retinopathy by Suppressing Inflammation, Oxidative Stress, and Caspase-3/GSDME-Dependent Pyroptosis. Diabetes Metab Syndr Obes. 2024;17:1635–1649.
- Yang T, et al. Clinical study on the modulating effects of Jiaotaiwan on the modulating effects of microbiota–SCFAs–neurotransmitter/immune axis in patients with depression. Acupunct Herb Med 2025;5(4):456–468.
- Luo XX, et al. Effect of qiming granule on retinal blood circulation of diabetic retinopathy: a multicenter clinical trial. Chin J Integr Med. 2009;15(5):384–388.
- Hu Z, et al. Add-on effect of Qiming granule, a Chinese patent medicine, in treating diabetic macular edema: A systematic review and meta-analysis. Phytother Res. 2021;35(2):587–602.
- Yang M, et al. The Efficacy and Safety of Qiming Granule for Dry Eye Disease: A Systematic Review and Meta-Analysis. Front Pharmacol. 2020;11:580.
- Ma XF, et al. Efficacy and Safety of Qiming Granule for Nerve Injury Associated with Non-proliferative Diabetic Retinopathy: A Multicenter, Randomized, Non-inferiority, Active-Controlled Clinical Trial. Chin J Integr Med. 2026;32(3):195–203.
- Zhou Q, et al. Qiming granules regulate Müller cell pyroptosis and the P2X7R/NLRP3 immune inflammatory pathway in diabetic retinopathy. Chin Med. 2026;21(1):89.
- Zhou L, Qin T, Lv Y, Wu Z. Qiming Granules Ameliorate Diabetic Retinopathy by Regulating the PI3K/Akt Signaling Pathway. J Ocul Pharmacol Ther. 2026;42(3):202–212.
- Li HD, Li MX, Zhang WH, Zhang SW, Gong YB. Effectiveness and safety of traditional Chinese medicine for diabetic retinopathy: A systematic review and network meta-analysis of randomized clinical trials. World J Diabetes. 2023;14(9):1422–1449.
- Chen F, et al. Isorhamnetin promotes functional recovery in rats with spinal cord injury by abating oxidative stress and modulating M2 macrophages/microglia polarization. Eur J Pharmacol. 2021;895:173878.
- Naudhani M, Thakur K, Ni ZJ, Zhang JG, Wei ZJ. Formononetin reshapes the gut microbiota, prevents progression of obesity and improves host metabolism. Food Funct. 2021;12(24):12303–12324.
- Qu Y, et al. Kaempferol Alleviates Murine Experimental Colitis by Restoring Gut Microbiota and Inhibiting the LPS-TLR4-NF-κB Axis. Front Immunol. 2021;12:679897.
- Saikia L, et al. Therapeutic Potential of Quercetin in Diabetic Neuropathy and Retinopathy: Exploring Molecular Mechanisms. Curr Top Med Chem. 2024;24(27):2351–2361.
- Yao H, et al. Kaempferol Protects Blood Vessels From Damage Induced by Oxidative Stress and Inflammation in Association With the Nrf2/HO-1 Signaling Pathway. Front Pharmacol. 2020;11:1118.
- Zhang HX, Li YY, Liu ZJ, Wang JF. Quercetin effectively improves LPS-induced intestinal inflammation, pyroptosis, and disruption of the barrier function through the TLR4/NF-κB/NLRP3 signaling pathway in vivo and in vitro. Food Nutr Res. 2022;66:10.