В данной работе мы описываем подход к получению генетически модифицированных эмбрионов с использованием редактирования генов CRISPR-Cas9 и переноса ядер соматических клеток для создания моделей заболеваний человека на овцах. Этот метод идеально подходит для точного редактирования генов в донорских клетках и получения клонированных эмбрионов без генетического мозаицизма.
Для просмотра этого контента требуется подписка на JoVE. Войдите или начните свой бесплатный пробный период.
Методическая статья
Создание генетически модифицированных эмбрионов с использованием редактирования генов и переноса ядер соматических клеток для получения моделей заболеваний человека на овцах
В этой статье
Краткое содержание
Аннотация
Модели на крупных животных являются ценными инструментами для исследования заболеваний человека. Овцы, свиньи и козы часто лучше воспроизводят анатомию и физиологию органов человека, а также сложность человеческих заболеваний, что повышает их клиническую значимость по сравнению с грызунами. Технологии CRISPR-Cas9 и перенос ядер соматических клеток (SCNT) позволяют создавать модели на крупных животных с большей точностью, универсальностью и генетической однородностью. Основным преимуществом этого подхода по сравнению с микроинъекцией зиготы является возможность подтвердить in vitro наличие желаемой генетической модификации и потенциальных нецелевых мутаций в отредактированных клетках до получения животных. Кроме того, SCNT исключает вероятность генетического мозаицизма, который часто возникает при микроинъекции зиготы. В данной работе мы описываем получение генетически отредактированных клеток овец с помощью негомологичного соединения концов (NHEJ) и гомологичной рекомбинации (HDR) с последующим созданием клонированных эмбрионов, несущих интересующие мутации. Генетические модификации вводятся путем трансфекции культивируемых соматических клеток, обычно фетальных фибробластов, системой CRISPR-Cas9. Эффективность мутагенеза в пуле клеток оценивается с помощью полимеразной цепной реакции (PCR) и секвенирования по Сэнгеру отредактированных генов и анализируется с помощью программного обеспечения Tracking of Indels by DEcomposition (TIDE)/Tracking of Insertions, Deletions, and Recombination events (TIDER). Для получения колоний, происходящих от одной клетки, проводится лимитирующее разведение пула клеток, которые затем скринируют с помощью PCR и секвенирования ДНК отредактированных генов. Донорские клетки с интересующей модификацией (модификациями) затем экспансируют и используют для получения эмбрионов методом SCNT. После лимитирующего разведения и скрининга клеток 2/14 (19,3%) колоний, модифицированных с помощью NHEJ, содержали нокаутные (KO) мутации, а 4/56 (7,1%) колоний, модифицированных с помощью HDR, содержали мутацию F508del. Из четырех колоний было создано в общей сложности 370 генетически модифицированных эмбрионов. Данные методы успешно применяются для точного редактирования генов в фетальных фибробластах и создания генно-инженерных эмбрионов для получения моделей человеческих заболеваний на овцах.
Введение
Модели на животных являются незаменимыми инструментами для понимания биологических механизмов заболеваний человека и разработки новых методов терапии. Модели in vitro, такие как культуры клеток или органоидов, не воспроизводят сложность клеточных субтипов и межклеточных взаимодействий, которые происходят in vivo в органах1,2. Таким образом, животные позволяют создавать модели целого организма с более детальным отображением взаимодействий на клеточном и системном уровнях, прогрессирования заболевания и безопасности терапевтических средств. Грызуны являются практическими модельными организмами благодаря их низкой стоимости, короткому времени смены поколений и всесторонней генетической характеристике. Однако модели заболеваний человека на грызунах ограничены физиологическими и анатомическими различиями с людьми, а также их более быстрым метаболизмом и более коротким сроком жизни3,4. Об этом свидетельствует высокая доля методов терапии, которые прошли испытания на животных моделях (большинство из которых — грызуны), но оказались неэффективными в клинических исследованиях5,6,7,8. Для создания моделей широкого спектра заболеваний человека использовали овец, свиней, коз, собак и приматов, что может помочь повысить показатель клинической трансляции новых методов терапии и лекарственных препаратов3,9,10,1,12. Эти виды также обладают многими преимуществами по сравнению с моделями на грызунах благодаря большему сходству с человеком. Таким образом, модели заболеваний человека на крупных животных обеспечивают наиболее точное из доступных моделирование и играют критическую роль в трансляции результатов исследований на животных в клиническую практику.
Система коротких палиндромных повторов, регулярно расположенных группами (CRISPR)-Cas9 представляет собой универсальный и программируемый метод генетической модификации клеток животных и введения точных болезнетворных мутаций. Редактирование генов с помощью CRISPR-Cas9 использует направляющую РНК (гРНК), комплементарную целевому участку, что позволяет CRISPR-ассоциированному белку 9 (Cas9) создавать двухцепочечный разрыв (ДЦР) направленным образом13. Клеточное восстановление ДЦР происходит преимущественно по двум механизмам: негомологичному соединению концов (NHEJ) и гомологично-направленной репарации (HDR). Путь NHEJ восстанавливает ДЦР путем соединения концов ДНК; этот подверженный ошибкам механизм может привести к образованию случайных вставок или делеций (инделей) в месте разрыва14. Такие мутации могут привести к нокауту (KO) гена за счет создания мутации сдвига рамки считывания или преждевременного стоп-кодона, что нарушает функцию гена. HDR, происходящая в основном во время S- и G2-фаз клеточного цикла, представляет собой процесс восстановления клеткой ДЦР с использованием гомологичного аллеля в качестве матрицы репарации15,16. Внесение специфических вставок, делеций или замен, известных как нок-ин (KI), возможно путем введения синтетического одноцепочечного олигодезоксинуклеотида (ssODN) или другой матрицы ДНК с интересующим изменением, которую клетка может использовать для восстановления разрыва. CRISPR-Cas9 также может использоваться для мультиплексного редактирования с целью одновременного введения нескольких мутаций для моделирования мультигенных заболеваний3. По сравнению с предыдущими методами редактирования генов, такими как нуклеазы «цинковые пальцы» (ZFNs) или нуклеазы TALEN (транскрипционные активаторы, подобные эффекторам), CRISPR-Cas9 гораздо проще и экономичнее в использовании в клетках крупных животных17. Разные локусы можно легко таргетировать путем разработки новой гРНК, что помогло ускорить создание новых моделей крупных животных с использованием CRISPR-Cas93,13. Тем не менее, сохраняется ряд ограничений, включая эффективность редактирования CRISPR-Cas9, которая может значительно варьироваться в зависимости от вида, клеточной среды и характера редактирования18,19. В частности, показатели HDR ниже, чем показатели NHEJ, и сильно зависят от типа клеток, геномных локусов и стадии клеточного цикла20,21. Кроме того, проблемой остается внесение непреднамеренных изменений в нецелевых (off-target) локусах или даже в целевых локусах2. Несмотря на это, CRISPR-Cas9 стала основной платформой редактирования генов для создания генетически модифицированных моделей крупных животных.
Перенос ядра соматической клетки (SCNT) позволяет с высокой точностью и однородностью создавать генетически модифицированные эмбрионы. Этот процесс, впервые успешно проведенный на млекопитающих в 197 году, заключается в переносе ядра клетки в энуклеированный ооцит23. SCNT обладает многими преимуществами по сравнению с другими методами, такими как микроинъекция в зиготу, при которой генетический материал или системы редактирования ДНК вводятся непосредственно в зиготу или ранний эмбрион24,25,26. Микроинъекция в зиготу несет в себе внутренний риск генетической гетерогенности, или мозаицизма, между клетками эмбриона, что может произойти, если репликация ДНК или деление клеток occur до генетической модификации27,28,29. Ценность таких мозаичных эмбрионов для создания животных моделей снижается из-за сложности генотипирования и фенотипической характеристики29. При SCNT редактирование генов отделено от производства эмбрионов; каждый клонированный эмбрион происходит из одной клетки, что исключает риск мозаицизма и гарантирует генетическую однородность эмбриона30,31,32. Кроме того, донорские клетки редактируются и тщательно проверяются in vitro для подтверждения клональности и наличия желаемой модификации перед процедурой SCNT, что экономит время и ресурсы25,26. Это особенно важно при введении специфических KIs. Скрининг клеток также позволяет выявить потенциальные мутации в нецелевых участках, тем самым снижая риск генетических нарушений в других локусах. Эти преимущества снимают многие опасения, связанные с CRISPR-Cas9. Таким образом, SCNT обеспечивает более строгий контроль над генетикой получаемых эмбрионов по сравнению с микроинъекцией в зиготу, особенно при более сложных модификациях, таких как мультиплексное редактирование, крупные вставки и гуманизированные аллели3. Хотя SCNT ограничен низкой эффективностью клонирования, техническими требованиями и аномальным эпигенетическим перепрограммированием (последнее из которых может привести к молекулярным и фенотипическим нарушениям в клонах, потенциально маскируя эффекты генетической модификации у животных-основателей), эти эпигенетические изменения не передаются потомству32,3. Несмотря на эти ограничения, сочетание SCNT с CRISPR-Cas9 позволяет осуществлять точную инженерию генома со строгим контролем генетики эмбриона, поддерживая надежное создание моделей заболеваний на крупных животных без мозаицизма. Здесь мы описываем детальный подход к генетической модификации фетальных фибробластов овец (SFF) с использованием NHEJ или HDR с последующим SCNT для получения клонированных эмбрионов с конечной целью создания моделей заболеваний человека на овцах. Этот подход в значительной степени применим и к другим видам сельскохозяйственных животных, хотя редактирование генов может потребовать оптимизации для различных типов клеток, и данный протокол может служить полезной отправной точкой.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Протокол
Все процедуры с животными были одобрены Институциональным комитетом по уходу и использованию животных (IACUC: № 15508 и № 10089) Университета штата Юта и проведены в соответствии с рекомендациями Национальных институтов здравоохранения (NIH). В данном исследовании использовались домашние овцы породы Ромни (Ovis aries) использовались для выделения фибробластов плода овцы (Дополнительный файл 134). См. Рисунок 1 для ознакомления с общим описанием протокола.
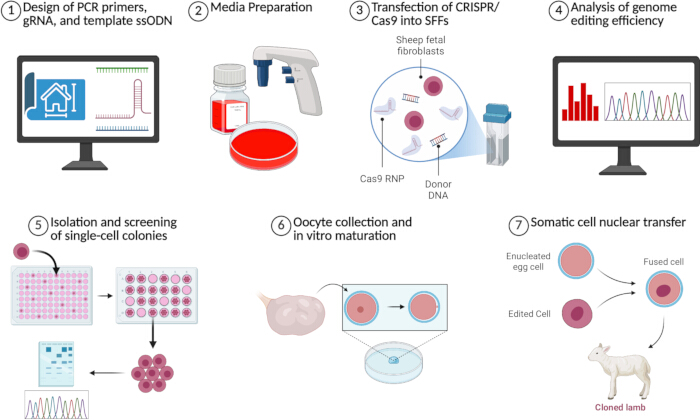
Рисунок 1: Обзор методов CRISPR-Cas9 и SCNT, используемых для получения генетически модифицированных эмбрионов. Представлено краткое описание каждого из семи основных этапов протокола. Создано в BioRender. Perisse, I. (2026). Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
1. Дизайн ПЦР-праймеров, гРНК и матрицы ssODN
- Откройте геномную область, подлежащую редактированию, в Benchling (https://www.benchling.com/academic).
- Спроектируйте ПЦР-праймеры для амплификации и секвенирования интересующей геномной области.
- Выделите целевой регион, который необходимо амплифицировать, добавив по 200 пар оснований выше и ниже целевого региона, чтобы обеспечить достаточное расстояние для качественного считывания трейсов и точного анализа эффективности мутации с помощью ПО TIDE.
- На панели навигации справа выберите Primers > Create Primers > Wizard.
- В разделе Region нажмите Use Selection. В разделе Amplicon соответствующим образом отрегулируйте Size и настройте любые другие параметры по желанию.
- Нажмите Generate Primers. Выберите для заказа одну или несколько пар праймеров с низкими показателями штрафов (penalty scores).
ПРИМЕЧАНИЕ: В зависимости от вносимого изменения рекомендуется проектировать праймеры, которые будут связываться только с правильно отредактированной ДНК, что позволит ускорить скрининг положительных колоний.
- Спроектируйте гРНК для редактирования ДНК с помощью CRISPR-Cas9.
- В Benchling выделите целевой регион, подлежащий редактированию, затем на панели навигации справа выберите CRISPR > Design and analyze guides.
- Откройте выпадающее меню Genome и выберите или импортируйте геном модельного организма. Отрегулируйте любые другие параметры по желанию.
- Нажмите Finish > +.
- В разделе Genome Region нажмите No region set и выберите или введите геномную область, содержащую целевой сайт. Нажмите Set genome region.
- Для заказа выберите одну или несколько гидов с высокими показателями как специфичности к мишени (on-target), так и отсутствия нецелевого связывания (off-target).
- Если выполняется редактирование путем нокинга (KI), спроектируйте шаблон ssODN.
- На панели навигации справа выберите CRISPR > Design HR template (ssODN).
- Откройте выпадающее меню Genome и выберите или импортируйте геном модельного организма. Нажмите Create.
- Перейдите на вкладку SEQUENCE MAP, выделите основания, которые необходимо отредактировать, и создайте модифицированную версию последовательности ДНК, введя нужные изменения с клавиатуры. Вернитесь на вкладку DESIGN HR TEMPLATE и нажмите Next.
- Отрегулируйте Template region так, чтобы с каждой стороны от места редактирования было не менее 50 пар оснований плеч гомологии, затем нажмите Next.
- Введите последовательность гРНК, выбранную в пункте 1.3.5, в поле Guide, чтобы ввести бесшумные мутации, нарушающие PAM-последовательность (Protospacer Adjacent Motif). Нажмите Next.
- Нажмите Copy the template и закажите созданный шаблон ssODN.
ПРИМЕЧАНИЕ: Последовательности ПЦР-праймеров, гРНК CRISPR-Cas9 и шаблонов ssODN, разработанных в Benchling для создания модели муковисцидоза у овец с нокаутной (KO) мутацией или мутацией F508del, представлены в таблице 1.
2. Приготовление сред
- Приготовьте среду для культивирования клеток, добавив в модифицированную Дульбекко среду Игла (DMEM) с высоким содержанием глюкозы 15% фетальной бычьей сыворотки (FBS) и 1% пенициллина-стрептомицина (Pen/Strep) (об/об). Перед использованием предварительно прогрейте среду на водяной бане при 37 °C.
- Приготовьте среду для замораживания, добавив в DMEM 45% FBS и 10% диметилсульфоксида (DMSO).
- Приготовьте среду для сбора ооцитов, добавив в среду M199 1% Pen/Strep, 0,3% бычьего сывороточного альбумина (BSA) фракции V, 1% FBS и 0,06% соли натрия гепарина.
- Закажите среды для созревания in vitro (IVM) и культивирования in vitro (IVC), которые представляют собой коммерчески доступные бессывороточные среды, предназначенные соответственно для созревания ооцитов крупного рогатого скота и культивирования эмбрионов.
ПРИМЕЧАНИЕ: Чашки для этапов после слияния и IVC подготавливают с семью каплями среды IVC по 40 µL каждая и покрывают минеральным маслом, протестированным на эмбрионах. - Приготовьте среду для голодания клеток, добавив в DMEM с высоким содержанием глюкозы 0,5% FBS и 1% Pen/Strep (об/об). Перед использованием предварительно прогрейте среду на водяной бане при 37 °C.
- Приготовьте синтетическую жидкость яйцевода с добавлением HEPES (HSOF) согласно ранее описанному методу35.
- Приготовьте среду для энуклеации, добавив в 500 µL среды HSOF 4,5 mM сахарозы и 10 µg/mL цитохалазина B (CB).
- Приготовьте среды для инъекции, добавив в 500 µL среды HSOF 10 µg/mL цитохалазина B (CB).
ПРИМЕЧАНИЕ: Среды для энуклеации и инъекции готовят свежими в день проведения SCNT. По одной капле (200 µL) каждой среды помещают в чашки диаметром 100 мм и покрывают минеральным маслом, протестированным на эмбрионах. - Приготовьте среду для слияния согласно ранее описанному методу35. Извлеките 5–10 mL среды для слияния из температуры 4 °C и выдержите при комнатной температуре до использования.
- Приготовьте среду с CB, добавив в среду IVC 10 µg/mL CB.
ПРИМЕЧАНИЕ: Чашку с CB подготавливают с семью каплями среды с CB по 40 µL каждая и покрывают минеральным маслом, протестированным на эмбрионах. - Приготовьте среду с иономицином, добавив в среду HSOF 5 µM соли кальция иономицина.
- Приготовьте среду для активации, добавив в среду IVC 2 mM 6-диметиламинопурина (DMAP) и 10 µg/mL циклогексимида (CHX).
ПРИМЕЧАНИЕ: Чашку для активации подготавливают с семью каплями среды для активации по 40 µL каждая и покрывают минеральным маслом, протестированным на эмбрионах.
3. Трансфекция CRISPR-Cas9 в SFF
- (Условия) Все процедуры по культивированию клеток следует проводить в боксе биологической безопасности или в ламинарном шкафу. Культивируйте SFF в T-25 флаконе в среде для культивирования клеток при 37 °C в атмосфере 5% CO2, 5% O2 и 90% N2 до достижения примерно 70%–80% конфлюэнтности перед трансфекцией.
- Удалите всю среду из флакона и один раз промойте клетки 5 mL фосфатно-солевого буфера Дулбекко (DPBS). Инкубируйте с 1 mL трипсин-подобного фермента диссоциации в течение 5–10 мин до диссоциации клеток.
- Разбавьте трипсин-подобный фермент диссоциации равным объемом среды для культивирования клеток и центрифугируйте клетки при 200 × g в течение 5 мин.
- (Время) Подготовьте комплекс рибонуклеопротеина (RNP) гРНК:Cas9, инкубируя 2.5 µL гРНК (100 µM) с 2.5 µL белка Cas9 (5 µg/µL) в течение 10 мин при комнатной температуре.
ПРИМЕЧАНИЕ: Соотношение Cas9 RNP:гРНК может потребовать оптимизации в зависимости от типа клеток, целевого гена и количества мишеней. - Приготовьте раствор для нуклеофекции, смешав 82 µL раствора для нуклеофекции с 18 µL дополнительного раствора (supplement solution).
- Смешайте раствор для нуклеофекции с комплексом RNP, и если используется ssODN, добавьте 2 µL ssODN (200 µM), затем аккуратно перемешайте путем пипетирования.
- После центрифугирования осторожно слейте супернатант и переверните пробирку на безворсовую салфетку, чтобы удалить остатки среды.
ПРИМЕЧАНИЕ: Остатки среды для культивирования могут повлиять на эффективность трансфекции и жизнеспособность клеток. Убедитесь, что избыток жидкости полностью удален перед ресуспендированием клеточного осадка в растворе для нуклеофекции. - (Важно) Ресуспендируйте фибробласты в растворе для нуклеофекции, затем перенесите смесь в нуклеокуветту объемом 100 µL, избегая образования пузырьков. Аккуратно постучите нуклеокуветтой по твердой поверхности, чтобы смесь осела на дно куветты.
ПРИМЕЧАНИЕ: Пузырьки воздуха внутри нуклеокуветты могут помешать электропорации. - (Соответствующая настройка) Проведите электропорацию клеток, используя программу EH-100 или согласно рекомендациям производителя. Дайте клеткам восстановиться в течение 10 мин при комнатной температуре.
- Перенесите электропорированные клетки с помощью переносной пипетки в 5 mL предварительно уравновешенной среды для культивирования клеток, дополненной HDR-энхансером до конечной концентрации 1–2 µM (для других типов клеток может потребоваться оптимизация).
- (Условия) Культивируйте клетки в среде для культивирования при 37 °C в атмосфере 5% CO2, 5% O2 и 90% N2 в течение 48 ч перед выделением геномной ДНК.
- Удалите среду из культуры, один раз промойте DPBS и добавьте 1 mL трипсин-подобного фермента диссоциации.
- После открепления клеток добавьте 1 mL среды для культивирования клеток, чтобы разбавить трипсин-подобный фермент диссоциации.
- Распределите примерно две трети клеточной суспензии для криоконсервации и одну треть для экстракции геномной ДНК в маркированные пробирки объемом 1.5 mL. Центрифугируйте все пробирки при 200 × g в течение 5 мин.
- Ресуспендируйте клеточный осадок, предназначенный для криоконсервации, в 500 µL среды для замораживания. Перенесите ресуспендированные клетки в криопробирки и поместите их в контейнер для замораживания с контролируемой скоростью при -80 °C, минимизируя время пребывания клеток в среде для замораживания перед переносом при -80 °C.
- Ресуспендируйте клеточный осадок, предназначенный для экстракции ДНК, в 200 µL DPBS. Выделите геномную ДНК с помощью набора для очистки геномной ДНК согласно инструкциям производителя.
4. Анализ эффективности редактирования генома
- Проведите амплификацию целевых локусов из выделенной ДНК с использованием высокоточной ДНК-полимеразы и предварительно разработанных ПЦР-праймеров.
- Подтвердите амплификацию ПЦР с помощью электрофореза в 1% агарозном геле с использованием маркера ДНК 1 kb.
- Очистите продукты ПЦР с помощью набора для очистки продуктов ПЦР и направьте их на секвенирование по Сэнгеру.
- Если был выполнен нокаут (KO), используйте программное обеспечение TIDE (https://apps.datacurators.nl/tide) для оценки эффективности редактирования36. Для точного анализа эффективности редактирования используйте высококачественные хроматограммы с минимальным фоновым сигналом.
- Откройте TIDE и укажите название образца в поле Title plot. В поле Guide sequence введите последовательность использованной гРНК.
- В разделе Control Sample Chromatogram нажмите Browse и загрузите хроматограмму нередактированного контрольного образца.
- В разделе Test Sample Chromatogram нажмите Browse и загрузите хроматограмму отредактированного тестового образца.
- Перейдите на вкладку Decomposition, чтобы просмотреть спектр инделей и эффективность мутации. Проверьте значение R2 в правом верхнем углу спектра инделей.
- Если значение R2 меньше 0,9, отметьте поле Advanced settings в разделе Parameters и отрегулируйте ползунки для окна выравнивания (alignment window), окна декомпозиции (decomposition window) и размера инделя (indel size) до тех пор, пока значение R2 не станет больше 0,9 и не будет достигнуто правильное выравнивание.
- Если был выполнен нокаин (KI), используйте программное обеспечение TIDER (https://apps.datacurators.nl/tider) для оценки эффективности редактирования37.
- Откройте TIDER. Укажите название образца в поле Title plot. В поле Guide sequence введите последовательность использованной гРНК.
- В разделе Control Sample Chromatogram нажмите Browse и загрузите хроматограмму нередактированного контрольного образца.
- В разделе Reference Chromatogram нажмите Browse и загрузите хроматограмму референсного образца с желаемым редактированием.
ПРИМЕЧАНИЕ: Если такая последовательность отсутствует, ее можно создать путем ПЦР-амплификации с использованием дополнительных праймеров, разработанных для внесения мутации в последовательность ДНК38. - В разделе Test Sample Chromatogram нажмите Browse и загрузите хроматограмму отредактированного тестового образца.
- Перейдите на вкладку Decomposition, чтобы просмотреть спектр инделей, эффективность мутации и эффективность HDR. Проверьте значение R2 в правом верхнем углу спектра инделей.
- Если значение R2 меньше 0,9, отметьте поле Advanced settings в разделе Parameters и отрегулируйте ползунки для окна выравнивания (alignment window), окна декомпозиции (decomposition window), расстояния выше сайта разрыва (distance upstream from break site) и размера инделя (indel size) до тех пор, пока значение R2 не станет больше 0,9 и не будет достигнуто правильное выравнивание.
ПРИМЕЧАНИЕ: (Критически важно) Если качество секвенирования в файле низкое, может потребоваться повторное секвенирование.
5. Изоляция и скрининг одноклеточных колоний
- (Условия) Разморозьте и культивируйте трансфицированные SFF в T-25 флаконе в течение ночи при 37 °C в атмосфере 5% CO2, 5% O2 и 90% N2 или до достижения клетками примерно 80% конфлюэнтности.
- Удалите среду, один раз промойте клетки 5 мл DPBS и диссоциируйте их с помощью 1 мл трипсиноподобного фермента для диссоциации.
- Добавьте питательную среду для разведения трипсиноподобного фермента и перенесите клеточную суспензию в коническую пробирку объемом 15 мл. Центрифугируйте клетки при 200 × g в течение 5 мин.
- Удалите супернатант и ресуспендируйте клеточный осадок в 1 мл питательной среды. Аккуратно, но тщательно перемешайте для получения гомогенной суспензии одиночных клеток.
- (Критический этап) Приготовьте разведение клеточной суспензии 1:10, затем подсчитайте количество клеток с помощью гемоцитометра и трипанового синего.
- Рассчитайте объем разведенной клеточной суспензии, необходимый для посева примерно одной клетки на лунку.
ПРИМЕЧАНИЕ: Для пяти 96-луночных планшетов подготовьте примерно 500 клеток. - Приготовьте по 10 мл питательной среды для каждого 96-луночного планшета в конической пробирке объемом 50 мл.
- Добавьте рассчитанный объем разведенной в 10 раз клеточной суспензии в питательную среду и хорошо перемешайте путем аккуратного пипетирования и инверсии.
- Перелейте разведенную клеточную суспензию в стерильный резервуар для реагентов.
- Раздайте по 100 µL клеточной суспензии в каждую лунку 96-луночного планшета.
- (Условия) Инкубируйте планшеты при 37 °C в атмосфере 5% CO2, 5% O2 и 90% N2 в течение 5 дней.
- Осмотрите каждую лунку под микроскопом и отметьте лунки, содержащие одну колонию. Исключите лунки, содержащие более одной колонии.
ПРИМЕЧАНИЕ: Колонии, произошедшие от одной клетки, обычно имеют округлую, компактную форму и морфологически однородны. - Верните планшеты в инкубатор и культивируйте еще 2 дня при тех же условиях.
- После общего периода культивирования в 96-луночных планшетах в течение 7 дней удалите среду из лунок, содержащих одну растущую колонию. Один раз промойте каждую выбранную лунку DPBS.
- Добавьте 100 µL трипсиноподобного фермента для диссоциации в каждую выбранную лунку и инкубируйте до открепления клеток. Добавьте 100 µL питательной среды в каждую лунку, чтобы развести трипсиноподобный фермент.
- Перенесите весь объем из каждой лунки в одну лунку 24-луночного планшета.
- Промойте исходный 96-луночный планшет дополнительной питательной средой и перенесите промывочный раствор в соответствующую лунку 24-луночного планшета для максимального восстановления клеток. Доведите конечный объем в каждой лунке 24-луночного планшета до 500 µL с помощью питательной среды.
- (Условия) Инкубируйте 24-луночные планшеты при 37 °C в атмосфере 5% CO2, 5% O2 и 90% N2 в течение 3 дней.
- Осмотрите лунки под микроскопом и выберите колонии, близкие к полной конфлюэнтности.
- Удалите среду из лунок, выбранных для сбора, один раз промойте DPBS и добавьте 500 µL трипсиноподобного фермента для диссоциации.
- После открепления клеток добавьте 1 мл питательной среды для разведения трипсиноподобного фермента.
- Заморозьте клетки и выделите геномную ДНК согласно этапам 3.14–3.16.
- Амплифицируйте целевые локусы методом ПЦР и подтвердите генотип с помощью секвенирования по Сэнгеру.
- Идентифицируйте колонии дикого типа, KO и KI на основании результатов секвенирования. Используйте анализ TIDE/TIDER, как описано на этапах 4.4 и 4.5, для оценки частоты HDR и спектра инделей с целью подтверждения правильного редактирования и выявления колоний, произошедших не от одной клетки.
ПРИМЕЧАНИЕ: На этом этапе также может быть проведен анализ нецелевого редактирования (Дополнительный файл 1). - Экспондируйте только те колонии, которые имеют желаемый генотип и нормальную морфологию клеток, для последующих экспериментов по SCNT.
6. Сбор ооцитов овец и их созревание in vitro
- Соберите яичники овец на местном скотобойном предприятии и доставьте их в лабораторию в 0,9% физиологическом растворе при 25 °C в течение 4 ч после сбора.
- Проведите созревание ооцитов in vitro.
- Выделите комплексы кумулюс-ооцит (КОК) из яичников, надрезая поверхность яичника лезвием скальпеля при его погружении в среду для сбора ооцитов.
- (Время) Для IVM отберите КОК, имеющие не менее 1–3 слоев компактных клеток кумулюса и однородную цитоплазму. Промойте КОК в свежей среде для сбора ооцитов и культивируйте в предварительно уравновешенной среде для IVM (до 40 КОК на лунку с 500 µL среды для IVM в 4-луночном планшете) при инкубации при 38,5 °C и 5% CO2 в течение 21–22 ч.
- Проверьте созревание ооцитов.
- Перенесите необходимое количество КОК с помощью пипетки на 200 µL в микроцентрифужную пробирку объемом 1,5 mL, добавив в пробирку такой же объем (1:1) гиалуронидазы в концентрации 0,6 mg/mL.
- Пропипетируйте смесь несколько раз до полного удаления клеток кумулюса. Перенесите ооциты в каплю среды HSOF объемом 1 mL и промойте их, последовательно перенося через три дополнительные капли HSOF.
- Используя рот-пипетку или пипетку на 10 µL с наконечником, перекатывайте ооциты и отбирайте под стереомикроскопом те, у которых наблюдается полярное тельце. Допустимый уровень экструзии полярного тельца составляет 50%–80%.
7. Перенос ядер соматических клеток
- Подготовка донорских клеток перед SCNT.
- Разморозить криоконсервированные клетки за 3–5 дней до SCNT на водяной бане при 37 °C в течение 1–2 мин до полного исчезновения льда в пробирке.
- Перенести клеточную суспензию в центрифужную пробирку объемом 15 мл, добавить равный объем среды для культивирования клеток и центрифугировать при 406 x g в течение 5 мин.
- Удалить супернатант и ресуспендировать клеточный осадок в 500 µL среды для культивирования клеток.
- (Условия) Рассеять клетки в различных концентрациях в 4-луночном планшете с конечным объемом 500 µL на лунку и культивировать при 37 °C в атмосфере 5% CO2, 5% O2 и 90% N2.
- Заменять среду для культивирования клеток каждые 48 ч. После достижения клетками полной конфлюэнтности заменить среду на среду для голодания клеток за 24–48 ч до SCNT.
ПРИМЕЧАНИЕ: Голодание клеток более 48 ч может увеличить долю апоптоза39,40.
- Подготовка донорских клеток (в день SCNT).
- Удалить среду для голодания из лунки и один раз промыть 500 µL DPBS (-).
- Добавить 250 µL трипсин-подобного фермента для диссоциации и инкубировать при 37 °C в течение 5 мин или до тех пор, пока клетки не открепятся от планшета.
- Добавить 500 µL среды для культивирования клеток для разведения трипсин-подобного фермента диссоциации.
- Перенести клетки в центрифужную пробирку объемом 15 мл и центрифугировать при 406 x g в течение 5 мин.
- Удалить супернатант и ресуспендировать клетки в 60–80 µL среды HSOF, хранить при 4 °C до использования.
- Энуклеация ооцитов.
- Подготовить удерживающие пипетки, вытянув тонкостенные стеклянные капилляры с помощью вытягивателя микропипеток и придав им форму с помощью микрофоржа для получения внутреннего диаметра 30 µm и внешнего диаметра 100 µm.
ПРИМЕЧАНИЕ: Обе пипетки также можно приобрести у коммерческих поставщиков. - Подготовить инъекционные пипетки, вытянув тонкостенные стеклянные капилляры с помощью вытягивателя микропипеток, создав скос под углом 45° с помощью микрошлифовального станка и придав им форму с помощью микрофоржа для получения внутреннего диаметра 20–25 µm. Параметры вытягивателя микропипеток, микрофоржа и микрошлифовального станка приведены в предыдущем отчете41.
- Перенести ооциты на стадии метафазы II (MII), имеющие полярное тело, в каплю среды для энуклеации. Иммобилизовать ооцит с помощью удерживающей пипетки так, чтобы полярное тело находилось в положении «4–5 часов».
ПРИМЕЧАНИЕ: Стандартные операционные процедуры микроманипуляции можно найти в предыдущем отчете41. - (Критический этап) С помощью скошенной инъекционной пипетки с острым кончиком проколоть zona pellucida и аспирировать полярное тело и 10%–20% цитоплазмы, расположенной под полярным телом.
- Вытолкнуть удаленную цитоплазму в каплю и освободить ооцит из удерживающей пипетки.
- Повторить шаги 7.3.2–7.3.4 для всех ооцитов до завершения энуклеации каждого из них. Вернуть энуклеированные ооциты в среду IVM и инкубировать при 38,5 °C и 5% CO2 в течение 30 мин.
- Подготовить удерживающие пипетки, вытянув тонкостенные стеклянные капилляры с помощью вытягивателя микропипеток и придав им форму с помощью микрофоржа для получения внутреннего диаметра 30 µm и внешнего диаметра 100 µm.
- Инъекция донорских клеток в энуклеированные ооциты.
- Добавить подготовленную клеточную суспензию на дно капли среды для инъекций и перенести энуклеированные ооциты в эту же каплю.
- Отобрать 1–10 округлых здоровых клеток и аспирировать их в инъекционную пипетку.
- Используя удерживающую пипетку, иммобилизовать ооцит, а затем с помощью инъекционной пипетки проколоть zona pellucida и поместить одну клетку между zona и ооплазмой.
- Повторить шаги 7.4.2–7.4.3 для всех энуклеированных ооцитов и перед слиянием клеток перенести их в 2–3 мл среды HSOF в чашку диаметром 35 мм.
- Слияние энуклеированных ооцитов и донорских клеток.
- Подключить кабели генератора импульсов электрофузии к проводам камеры микрослайда (0,5 мм) и установить камеру на предметный столик микроскопа.
- Добавить в камеру 600 µL среды для слияния.
- (Критический/Важный параметр) Выровнять 4–6 пар цитоплазма-клетка между двумя проволоками камеры так, чтобы донорская клетка находилась в положении «6 или 12 часов». Приложить два импульса электрофузии постоянного тока силой 2,0 kV/cm продолжительностью 40 µs.
- Извлечь пары цитоплазма-клетка из камеры слияния и поместить их в новую чашку диаметром 35 мм, содержащую 2–3 мл среды HSOF.
- (Условия) Повторять шаги 7.5.3–7.5.4 до тех пор, пока все инъецированные ооциты не пройдут процесс слияния. Промыть полученные пары в чашке для послефузионной обработки и инкубировать при 38,5 °C в атмосфере 5% CO2, 5% O2 и 90% N2 в течение 30 мин. Заменять среду для слияния в камере каждые 15–20 мин.
- Активация и культивирование эмбрионов.
- (Условия) Через 30 мин после слияния все слившиеся эмбрионы сначала инкубируют в среде CB при 38,5 °C в атмосфере 5% CO2, 5% O2 и 90% N2 в течение 45 мин.
- После этого пары активируют в 5 µM иономицина, разведенного в HSOF, в течение 5 мин, с последующей инкубацией в среде для активации в течение 4 ч.
ПРИМЕЧАНИЕ: Среду с иономицином готовят непосредственно перед использованием. Для улучшения полноценного развития рекомендуется активация через 24–26 ч после созревания. - (Условия) После активации реконструированные эмбрионы промывают и культивируют в среде IVC (максимум 40 эмбрионов на каплю 40 µL) при 38,5 °C в атмосфере 5% CO2, 5% O2 и 90% N2 в течение ночи или до переноса эмбрионов.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Результаты
Основные этапы протокола обобщены на Рисунке 1. Мы использовали CRISPR-Cas9 и SCNT для создания модели муковисцидоза (МВ) у овец, содержащей либо KO-индельную мутацию, полученную путем NHEJ, либо мутацию F508del, полученную путем HDR. Часть этих результатов была опубликована ранее42,43. Мы разработали gRNA и ПЦР-праймеры для обеих стратегий с целью воздействия на экзон 11 гена регулятора трансмембранной проводимости муковисцидоза (
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Обсуждение
В данной процедуре разработка эффективных праймеров, гРНК и ssODN имеет решающее значение для успешного редактирования генов. Плохое связывание этих молекул может затруднить редактирование генов и идентификацию подходящих колоний, что препятствует переходу к SCNT. Перед тем как приступить к изоляции колоний из единичных клеток, рекомендуется приобрести несколько вариантов каждой последовательности для тестирования и оптимизации. Трансфекция плазмид Cas9 для KO в фибробластах обычно приводит к субоптимальной эффективности...
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Раскрытие информации
Авторы использовали Grammarly (Grammarly Inc.) и ChatGPT (OpenAI) для улучшения языка и удобочитаемости рукописи в соответствии с правилами, принятыми в научных издательствах. Эти инструменты не использовались для создания оригинального текста, исследовательских концепций, данных, изображений или рисунков в данном предложении. После использования этих инструментов авторы проверили и при необходимости отредактировали содержимое и несут полную ответственность за данный контент.
Благодарности
Эта работа была частично поддержана Сельскохозяйственной экспериментальной станцией штата Юта (UTAO1328) и Фондом борьбы с муковисцидозом (грант POLEJA23PO).
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| Маркер молекулярной массы ДНК 1 kb | Thermo Fisher Scientific | SM0313 | Маркер размера ДНК |
| Центрифужная пробирка 15 mL | Thermo Fisher Scientific | 12-565-269 | |
| Микроцентрифужная пробирка 1,5 mL | Thermo Fisher Scientific | 05-408-129 | |
| 4D-Nucleofector Core Unit | Lonza | AAF-103B | |
| 4D-Nucleofector X Unit | Lonza | AAF-103X | |
| 4-луночный планшет (чашка) | Nunc | 144 | |
| Центрифужная пробирка 50 mL | Thermo Fisher Scientific | 12-565-270 | |
| 6-DMAP | Sigma-Aldrich | D2629 | |
| 24-луночный планшет | Corning | 3524 | Экспансия клеток |
| 96-луночный планшет | Corning | 3596 | Изоляция одноклеточных колоний |
| Агароза | Thermo Fisher Scientific | BP160-100 | Электрофорез в агарозном геле |
| Стакан (250 mL) | Kimble | 140-250 | |
| Программное обеспечение Benchling | Benchling | https://www.benchling.com/academic | Выравнивание и анализ последовательностей |
| Среда IVC | IVF Bioscience | 7105 | |
| Среда IVM | IVF Bioscience | 7101 | |
| BSA | Gold Bio | A-421-250 | |
| BTX ECM | BTX | ECM-20 | Оборудование (снято с производства) |
| Микрослайдовая камера BTX | BTX | 450103 | |
| Белок Cas9 | Integrated DNA Technologies | Custom | Редактирование генома CRISPR-Cas9 |
| Глюконат хлоргексидина (2%) | Aspen Vet | 11584915 | |
| CHX | Sigma-Aldrich | C7698 | |
| Программное обеспечение CRISPOR | CRISPOR | https://crispor.gi.ucsc.edu/ | ПО для прогнозирования нецелевых эффектов (off-target) |
| Криопробирка | Thermo Fisher Scientific | 12-565-163N | |
| Цитохалазин B | Sigma-Aldrich | C6762 | |
| Диметилсульфоксид | Fisher Scientific | BP231-10 | Реагент для криоконсервации |
| DMEM с высоким содержанием глюкозы | Cytiva | SH3002 | Среда для культивирования фибробластов |
| Набор для очистки ДНК | Thermo Fisher Scientific | K0781 | Очистка геномной ДНК из цельной крови |
| DPBS без Ca/Mg | Cytiva | SH30256 | Используется для промывки клеток и тканей |
| Этанол | Pharco | 1020CSGL | |
| Фетальная бычья сыворотка | Cytiva | SH30396 | Добавка для культивирования клеток |
| Пинцет | Skylar | 6-612 | |
| Набор для очистки геномной ДНК | Qiagen | 69504 | Экстракция геномной ДНК |
| Раствор гентамицина | Gibco | 15750-060 | Используется в промывочной среде |
| Гидовая РНК | Integrated DNA Technologies | Custom | Гидовая РНК для CRISPR |
| HDR enhancer | Integrated DNA Technologies | 107921 | Усилитель гомологичной рекомбинации (HDR) |
| Гемоцитометр | Hausser Scientific | 02-671-10 | Подсчет клеток |
| Гемостатический зажим | Roboz Surgical | RS-784 | |
| Гепарина натриевая соль | Sigma-Aldrich | H3149 | |
| Hot-Start ДНК-полимераза | Promega | M5123 | ПЦР-амплификация |
| Гиалуронидаза | Sigma-Aldrich | H3506 | |
| Иономицин | Sigma-Aldrich | I0634 | |
| Среда M19 | Cytiva | SH30253.01 | |
| Сетчатый экран (40 mesh) | Sigma-Aldrich | S-070 | Размер ячейки 380 μm |
| Microforge | Narishige | MF-9 | |
| Микроизмельчитель | Narishige | EG-4 | |
| Пуллер микропипеток | Sutter Instrument Co | P-87 | |
| Минеральное масло | Kitazato/Dibimed | 96014 | |
| Рот-пипетка | Thermo Fisher Scientific | 13-678-20D | Одноразовые пипетки Пастера |
| Контейнер для замораживания Mr. Frosty | Thermo Fisher Scientific | 15-350-50 | Контейнер для замораживания с контролируемой скоростью |
| Нуклеокувета | Lonza | V4XP-3032 | Кувета для электропорации |
| P3 Primary Cell 4D-Nucleofector X Kit L | Lonza | V4XP-3024 | Включает раствор для нуклеофекции, раствор-добавку, нуклеокуветы и переносочные пипетки |
| Набор для очистки продуктов ПЦР | Qiagen | 2806 | Очистка продуктов ПЦР |
| Пенициллин-стрептомицин | Gibco | 15070-063 | Антибиотическая добавка |
| Чашка Петри (10 mm) | Nunc | 172958 | |
| Чашка Петри (35 mm) | Nunc | 150460 | |
| Резервуар для реагентов | CELLTREAT | 3054-103 | |
| Скальпель | MedBlades | MB 2-2 | |
| Ножницы | Roboz Surgical | RS-6802 | |
| Одноцепочечный олигодезоксинуклеотидный донорский шаблон | Integrated DNA Technologies | Custom | Донорский шаблон для HDR |
| Хлорид натрия | Thermo Fisher Scientific | BP358-212 | Для приготовления физиологического раствора |
| Сахароза | Sigma-Aldrich | S18 | |
| Хирургический лоток | Approved Vendor | 74262 | |
| Краситель для ДНК-гелей SYBR Safe | Thermo Fisher Scientific | S3102 | Краситель для ДНК-гелей |
| Флаконы T-25 | Thermo Fisher Scientific | 156367 | Флакон для культивирования клеток |
| Флакон T-75 | Corning | 430641U | Флакон для культивирования клеток |
| Тонкостенный стеклянный капилляр | World Precision Instruments | TW10-6 | |
| Программное обеспечение TIDE/TIDER | TIDE/TIDER | https://tide.nki.nl/ | ПО для анализа редактирования генома |
| Трипановый синий | Cytiva | SV30084 | |
| TrypLE Express | Gibco | 12605-010 | Трипсиноподобный фермент для диссоциации |
Ссылки
- Chang MCJ, Grieder FB. The continued importance of animals in biomedical research. Lab Anim (NY). 2024;53(11):295-297.
- Bhaduri A, et al. Cell stress in cortical organoids impairs molecular subtype specification. Nature. 2020;578(7793):142-148.
- Lin Y, et al. Application of CRISPR/Cas9 system in establishing large animal models. Front Cell Dev Biol. 2022;10:919155.
- Seok J, et al. Genomic responses in mouse models poorly mimic human inflammatory diseases. Proc Natl Acad Sci U S A. 2013;110(9):3507-3512.
- Ineichen BV, et al. Analysis of animal-to-human translation shows that only 5% of animal-tested therapeutic interventions obtain regulatory approval for human applications. PLoS Biol. 2024;22(6):e3002667.
- Schuh JCL. Trials, tribulations, and trends in tumor modeling in mice. Toxicol Pathol. 2004;32(1):53-66.
- Mak IW, Evaniew N, Ghert M. Lost in translation: animal models and clinical trials in cancer treatment. Am J Transl Res. 2014;6(2):114-118.
- Domínguez-Oliva A, et al. The importance of animal models in biomedical research: current insights and applications. Animals (Basel). 2023;13(7):1223.
- Li XJ, Lai L. A booming field of large animal model research. Zool Res. 2024;45(2):311-313.
- Pinnapureddy AR, et al. Large animal models of rare genetic disorders: sheep as phenotypically relevant models of human genetic disease. Orphanet J Rare Dis. 2015;10(1):107.
- Polejaeva IA, Rutigliano HM, Wells KD. Livestock in biomedical research: history, current status and future prospective. Reprod Fertil Dev. 2015;28(2):112-124.
- Kelly OM, et al. Towards clinical translation of nanomedicines: formulation scale-up and model systems. Adv Drug Deliv Rev. 2026;234:115862.
- Jinek M, et al. A programmable dual-RNA-guided DNA endonuclease in adaptive bacterial immunity. Science. 2012;337(6096):816-821.
- Pfeiffer P, Vielmetter W. Joining of nonhomologous DNA double strand breaks in vitro. Nucleic Acids Res. 1988;16(3):907-924.
- Thomas KR, Capecchi MR. Site-directed mutagenesis by gene targeting in mouse embryo-derived stem cells. Cell. 1987;51:503-512.
- Takata M, et al. Homologous recombination and non-homologous end-joining pathways of DNA double-strand break repair have overlapping roles in the maintenance of chromosomal integrity in vertebrate cells. EMBO J. 1998;17(18):5497-5508.
- Jiang S, Shen QW. Principles of gene editing techniques and applications in animal husbandry. 3 Biotech. 2019;9(1):28.
- Javaid N, Choi S. CRISPR/Cas system and factors affecting its precision and efficiency. Front Cell Dev Biol. 2021;9:761709.
- Wang J, et al. Application of gene editing technology in livestock: progress, challenges, and future perspectives. Agriculture (Basel). 2025;15(20):2155.
- Saleh-Gohari N, Helleday T. Conservative homologous recombination preferentially repairs DNA double-strand breaks in the S phase of the cell cycle in human cells. Nucleic Acids Res. 2004;32(12):3683-3688.
- Miyaoka Y, et al. Systematic quantification of HDR and NHEJ reveals effects of locus, nuclease, and cell type on genome-editing. Sci Rep. 2016;6:23549.
- Wen W, Zhang XB. CRISPR-Cas9 gene editing induced complex on-target outcomes in human cells. Exp Hematol. 2022;110:13-19.
- Schnieke AE, et al. Human factor IX transgenic sheep produced by transfer of nuclei from transfected fetal fibroblasts. Science. 1997;278(5346):2130-2133.
- Tang L, González R, Dobrinski I. Germline modification of domestic animals. Anim Reprod. 2015;12(1):93-104.
- Perisse IV, et al. Improvements in gene editing technology boost its applications in livestock. Front Genet. 2021;11:614688.
- Kwon DH, Gim GM, Yum SY, Jang G. Current status and future of gene engineering in livestock. BMB Rep. 2024;57(1):50-59.
- Mehravar M, Shirazi A, Nazari M, Banan M. Mosaicism in CRISPR/Cas9-mediated genome editing. Dev Biol. 2019;445(2):156-162.
- Niu Y, et al. Generation of gene-modified cynomolgus monkey via Cas9/RNA-mediated gene targeting in one-cell embryos. Cell. 2014;156(4):836-843.
- Yen ST, et al. Somatic mosaicism and allele complexity induced by CRISPR/Cas9 RNA injections in mouse zygotes. Dev Biol. 2014;393(1):3-9.
- Ni W, et al. Efficient gene knockout in goats using CRISPR/Cas9 system. PLoS One. 2014;9(9):e106718.
- Polejaeva IA. 25th anniversary of cloning by somatic cell nuclear transfer: generation of genetically engineered livestock using somatic cell nuclear transfer. Reproduction. 2021;162(1):F11-F22.
- Hodges CA, Stice SL. Generation of bovine transgenics using somatic cell nuclear transfer. Reprod Biol Endocrinol. 2003;1:81.
- Galli C. Current techniques of gene editing in pigs for xenotransplantation. Transpl Int. 2025;38:13807.
- Concordet JP, Haeussler M. CRISPOR: intuitive guide selection for CRISPR/Cas9 genome editing experiments and screens. Nucleic Acids Res. 2018;46(W1):W242-W245.
- Liu Y, et al. A retrospective analysis of sheep generated by somatic cell nuclear transfer. Theriogenology. 2024;227:102-111.
- Brinkman EK, Chen T, Amendola M, van Steensel B. Easy quantitative assessment of genome editing by sequence trace decomposition. Nucleic Acids Res. 2014;42(22):e168.
- Brinkman EK, et al. Easy quantification of template-directed CRISPR/Cas9 editing. Nucleic Acids Res. 2018;46(10):e58.
- Brinkman EK, Van Steensel B. Rapid quantitative evaluation of CRISPR genome editing by TIDE and TIDER. Methods Mol Biol. 2019;1961:29-44.
- Dalman A, et al. Synchronizing cell cycle of goat fibroblasts by serum starvation causes apoptosis. Reprod Domest Anim. 2010;45(5):e46-e53.
- Sadeghian-Nodoushan F, et al. Mimosine as well as serum starvation can be used for cell cycle synchronization of sheep granulosa cells. Chin J Biol. 2014;2014(1):851736.
- Page RL, Malcuit CM. Micromanipulation techniques for cloning. In: Principles of Cloning. Elsevier; 2014. p. 39-51.
- Viotti Perisse I, et al. Sheep models of F508del and G542X cystic fibrosis mutations show cellular responses to human therapeutics. FASEB Bioadv. 2021;3(10):841-854.
- Fan Z, et al. A sheep model of cystic fibrosis generated by CRISPR/Cas9 disruption of the CFTR gene. JCI Insight. 2018;3(19).
- Berthault C, et al. Highly efficient ex vivo correction of COL7A1 through ribonucleoprotein-based CRISPR/Cas9 and homology-directed repair to treat recessive dystrophic epidermolysis bullosa. J Invest Dermatol. 2024;144(6):1322-1333.e13.
- Martufi M, et al. Single-step, high-efficiency CRISPR-Cas9 genome editing in primary human disease-derived fibroblasts. CRISPR J. 2019;2(1):31-40.
- Bloomer H, Khirallah J, Li Y, Xu Q. CRISPR/Cas9 ribonucleoprotein-mediated genome and epigenome editing in mammalian cells. Adv Drug Deliv Rev. 2022;181:114087.
- Blocher R, et al. Effect of laparoscopic ovum pick-up on ovine in vitro oocyte maturation and somatic cell nuclear transfer embryo development. Anim Reprod Sci. 2026;292:108251.
- Campbell KH, Loi P, Otaegui PJ, Wilmut I. Cell cycle co-ordination in embryo cloning by nuclear transfer. Rev Reprod. 1996;1(1):40-46.
- Chen Y, Niu Y, Ji W. Genome editing in nonhuman primates: approach to generating human disease models. J Intern Med. 2016;280(3):246-251.
- Liu D, Cao D, Han R. Recent advances in therapeutic gene-editing technologies. Mol Ther. 2025;33(6):2619-2644.
- Campbell K, Alberio R. Reprogramming the genome: role of the cell cycle. Biosci Proc. 2019.
- Chia G, et al. Genomic instability during reprogramming by nuclear transfer is DNA replication dependent. Nat Cell Biol. 2017;19(4):282-291.
- Wang X, et al. Epigenetic reprogramming during somatic cell nuclear transfer: recent progress and future directions. Front Genet. 2020;11:205.
- Loi P, Iuso D, Czernik M, Ogura A. A new, dynamic era for somatic cell nuclear transfer? Trends Biotechnol. 2016;34(10):791-797.
- Zhao J, et al. Histone deacetylase inhibitors improve in vitro and in vivo developmental competence of somatic cell nuclear transfer porcine embryos. Cell Reprogram. 2010;12(1):75-83.
- Huang J, et al. BIX-01294 increases pig cloning efficiency by improving epigenetic reprogramming of somatic cell nuclei. Reproduction. 2016;151(1):39-49.
- Han C, et al. Overexpression of TET3 in donor cells enhances goat somatic cell nuclear transfer efficiency. FEBS J. 2018;285(14):2708-2723.
- Wang S, et al. Application of gene editing technology in resistance breeding of livestock. Life (Basel). 2022;12(7):1070.
- Houdebine LM. Production of pharmaceutical proteins by transgenic animals. Comp Immunol Microbiol Infect Dis. 2009;32(2):107-121.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Перепечатки и разрешения
Эта статья была опубликована
Видео скоро будет доступно