Данный протокол устанавливает воспроизводимый метод получения высокожизнеспособных суспензий одиночных клеток из тканей молочной железы и опухолей молочной железы мыши, который позволяет сохранить эпитопы клеточной поверхности для последующего анализа, включая проточную цитометрию и секвенирование РНК одиночных клеток.
Методическая статья
Диссоциация тканей молочной железы и опухолей мыши для создания высокожизнеспособных суспензий одиночных клеток
В этой статье
Краткое содержание
Аннотация
Диссоциация тканей в суспензии одиночных клеток для анализа помогает понять процессы, происходящие на клеточном уровне в микроокружении опухоли. Одной из давних проблем в Получение и использование первичных клеток заключается в подготовке высококачественных клеточных суспензий, которые сохраняют характеристики клеток для последующего анализа, включая секвенирование РНК единичных клеток (scRNA-Seq) или иммунофенотипирование методом проточной цитометрии. Как правило, ткани диссоциируют с помощью комбинации механического разрушения, ферментативного переваривания и фильтрации, при этом на каждом этапе существует ряд факторов, вносящих вариабельность в конечный продукт. Следовательно, необходимо провести оптимизацию для поиска метода, который наилучшим образом подходит для конкретного типа ткани. Например, ткань жировой подушки молочной железы богата адипоцитами, что затрудняет получение чистой клеточной суспензии и сохранение жизнеспособных клеток. В результате получение сопоставимых клеточных суспензий из ткани жировой подушки молочной железы и эпителиоидных опухолей представляет собой сложную задачу. В данном протоколе описывается воспроизводимый и экономически эффективный метод получения высокожизнеспособных суспензий единичных клеток из тканей молочных желез и опухолей мышей, позволяющий сохранить эпитопы клеточной поверхности для дальнейшего анализа. Эта процедура применялась для создания высококачественных библиотек scRNA-Seq и проведения иммунофенотипирования с помощью многопараметрической проточной цитометрии.
Введение
Диссоциация тканей позволяет получать суспензии одиночных клеток и определять типы клеток внутри тканей. Это особенно важно при анализе ответа на иммунотерапию, так как инфильтрирующие иммунные клетки могут помочь выяснить лежащий в основе механизм тканеспецифических иммунологических ответов. Вакцинация дезоксирибонуклеиновой кислотой (ДНК), кодирующей онкоген HER2/neu, приводит к усилению защиты от спонтанных опухолей молочной железы, вызванных HER2/neu, в мышиных моделях1. Кроме того, было показано, что ДНК-вакцинация индуцирует системный ответ, характеризующийся выработкой антител и T-клетками, секретирующими интерферон-γ (IFN-γ)1,2,3. По этой причине мы сосредоточились на разработке протокола диссоциации опухолей молочной железы и богатых жиром тканей молочной железы для количественной оценки локального иммунитета. Диссоциация ткани до одиночных клеток требует применения ферментативных, механических или комбинированных ферментативно-механических методов. Одной из проблем, связанных с ферментативной диссоциацией, является то, что эти методы требуют воздействия ферментов в течение длительного периода, часто в течение ночи4. Избыточное воздействие приводит к деградации отдельных клеток и поверхностных маркеров, при этом наиболее пагубное влияние оказывается на иммунные клетки5,6. Механическое расщепление может быть хорошим вариантом для высвобождения таких иммунных клеток, как лимфоциты и макрофаги, хотя оно неэффективно разрушает строму для получения репрезентативной выборки эпителиальных и стромальных клеток. Недавно изучались возможности микрофлюидики для диссоциации тканей, которая впервые была применена для разрушения клеточных агрегатов в растворе7. Одна группа внедрила микрофлюидный подход для дальнейшего разрушения измельченной ткани с использованием сил сдвига в устройстве8. После 60 мин оптимизированной диссоциации этот метод обеспечил 2-кратное увеличение количества эпителиальных клеток и 4-кратное увеличение количества эндотелиальных клеток по сравнению с традиционным протоколом ферментативного расщепления в тканях молочной железы. Однако возникли сложности при измерении выхода гепатоцитов в образце печени: выход снижался со временем, вероятно, из-за размера и хрупкости гепатоцитов. Таким образом, первостепенное значение имеет поиск золотой середины, позволяющей получить чистую репрезентативную выборку нескольких типов клеток при сохранении целостности клеток и поверхностных эпитопов.
Ферменты, используемые в смесях для переваривания, обычно включают определенную комбинацию общих коллагеназ9,10, трипсина (Руководство по диссоциации твердых тканей)4,10,11, гиалуронидазы9,10,11 или диспазы4,9,10, и требуют разного количества времени для эффективного переваривания. В описанном здесь протоколе в качестве основных ферментов для переваривания используются два специфических типа коллагеназ — коллагеназа типа II и коллагеназа D, а этилендиаминтетрауксусная кислота (EDTA) используется в качестве вспомогательного средства для дальнейшего ослабления межклеточных связей путем хелатирования. Коллагеназа типа II является основным ферментом диссоциации, вырабатываемым Clostridium histolyticum, и способствует расщеплению небольших фрагментов коллагена в’ внеклеточном матриксе. Коллагеназа D также вырабатывается C. histolyticum и широко используется для диссоциации различных тканей, таких как ткани легких, сердца, мышц, костей, нервных и эндотелиальных тканей. Эта коллагеназа помогает сохранить функциональность и целостность белков клеточной поверхности, что является важным фактором для последующего иммунофенотипирования с помощью проточной цитометрии. Помимо коллагеназы, ткани переваривают в присутствии дезоксирибонуклеазы I (DNase I), которая расщепляет свободную ДНК, тем самым удаляя ее из resulting resulting клеточной суспензии.
Еще одной особенностью, характерной для диссоциации молочных желез, является присутствие адипоцитов в образце. По мере старения мыши в жировой подушке молочной железы накапливается значительное количество адипоцитов. Эти клетки более хрупкие и склонны к разрыву в процессе дальнейшей обработки, что может привести к высвобождению РНК и внутриклеточного дебриса в клеточную суспензию, увеличивая содержание фоновой РНК, нарушая подготовку библиотек scRNA-Seq и снижая качество образца. Внеклеточная ДНК может привести к образованию клеточных агрегатов; поэтому любые оставшиеся адипоциты после первичной ферментативной диссоциации должны быть удалены для сохранения целостности образца. К счастью, плавучесть адипоцитов можно использовать для их отделения от остальных клеток при центрифугировании. При использовании протокола центрифугирования адипоциты остаются на поверхности супернатанта. Это позволяет удалить их вместе с супернатантом, избегая их попадания в основной клеточный осадок. Хотя это не является обязательным, использование постепенного замедления снижает силы Кориолиса внутри пробирки, что помогает удерживать адипоциты в отдельном слое сверху, особенно при работе с тканями молочной железы, особенно богатыми адипоцитами, или когда адипоциты удаляются как основной объект исследования12,13.
Учитывая эти особенности конкретных тканей, мы стремились разработать протокол, который был бы экономически эффективным, не требовал бы специализированного оборудования и позволял бы получать репрезентативную пробу клеток из родительской ткани с неизменно высоким качеством и воспроизводимостью.
Протокол
Все процедуры в данном протоколе проводились в соответствии с Политикой Службы общественного здравоохранения США по использованию лабораторных животных и с одобрения Институционального комитета по уходу и использованию животных Университета штата Мичиган.
1. Получение суспензии единичных клеток из опухолевой и ткани молочной железы мыши:
Дигестия тканей
- Утилизируйте все излишки или неиспользованные ткани мышей как биологические отходы. Пластик, загрязненный тканями или клетками мышей, поместите в контейнер для биологических отходов. Соберите растворы, содержащие клетки, в контейнер для жидких биологических отходов и обработайте 10% раствором гипохлорита натрия перед утилизацией.
- Убедитесь, что свежий коктейль для переваривания тканей приготовлен непосредственно перед началом процедуры. Для каждого образца требуется 10 mL коктейля для переваривания (10 mL среды Roswell Park Memorial Institute (RPMI), 60 U ДНКазы I, 25 mg коллагеназы D, 50 mg коллагеназы типа II). Храните при комнатной температуре (RT) до использования.
- Эвтаназируйте мышей путем перелома шейных позвонков; в качестве вторичного метода эвтаназии используйте билатеральный пневмоторакс, с кровопусканием или без него.
- Положите мышь в положение на спине, вытянув и закрепив лапы булавками.
- Полностью обрызгайте мышь 70% этанолом, чтобы предотвратить загрязнение образца отделяющейся шерстью.
- Сделайте один разрез по срединной линии мыши от паховой жировой подушки до шеи, стараясь не проколоть брюшину, затем сделайте разрезы вдоль каждой конечности, чтобы придать разрезу форму перевернутой буквы «Y».
- Растяните кожу, используя методы тупого расслоения для отделения кожи от подлежащей брюшины, и закрепите кожу в расправленном виде на секционном столе.
- Удалите опухоли среднего размера или молочные железы/жировые подушки и поместите их в коническую пробирку объемом 50 mL с 5 mL среды для промывки клеток R10 (R10 — это RPMI) с добавлением 10% фетальной бычьей сыворотки (FBS).
- По возможности избегайте использования некротизированных или заполненных кровью опухолей (которые имеют очень темный цвет и мягкую консистенцию).
- В шкафу биологической безопасности перенесите только молочные жировые подушки и опухоли в чистую чашку Петри. Мелко измельчите ткань двумя лезвиями хирургического скальпеля до получения пастообразной консистенции, затем перенесите ее в чистую пробирку объемом 50 mL. Выполняйте этот шаг при RT.
- Добавьте 10 mL коктейля для переваривания на один образец.
- Инкубируйте в качающемся инкубаторе при 37 °C при 250 оборотах в минуту (rpm) в течение 30 min.
- Добавьте 0,5 M ЭДТА до конечной концентрации 10 mM (200 µL ЭДТА на 10 mL буфера для переваривания).
- Верните в качающийся инкубатор при 37 °C и 250 rpm еще на 5 min.
- Добавьте 40 mL среды для промывки клеток R10 для остановки реакции.
- Профильтруйте переваренные клетки через фильтр 70 µm в чистую пробирку объемом 50 mL для удаления крупных фрагментов.
- Центрифугируйте при 500 x g с настройкой ускорения 9 и торможения 6, при 4 °C в течение 10 min (если требуются только лимфоцитарные клетки, центрифужную силу можно снизить до 300 x g на 5 min)14 для осаждения клеток. Поскольку данный процесс включает диссоциацию ткани молочной железы, богатой адипоцитами, протокол с замедленным торможением помогает сохранить градиент, формирующийся из-за плавучести адипоцитов при центрифугировании13.
- Слейте супернатант в контейнер для биологических отходов, ресуспендируйте осадок и добавьте 40 mL среды для промывки клеток, затем центрифугируйте, как указано выше (шаг 1.15). Для последующих этапов можно вернуться к полному торможению. Отсутствие этого действия не окажет негативного влияния на образец.
- Промойте 40 mL среды для промывки клеток R10 и центрифугируйте, как в шаге 1.15, в общей сложности 3 раза.
- Разбейте осадок и ресуспендируйте клетки в 2 mL холодного 1 × PBS.
- Добавьте два объема 1× буфера для лизиса эритроцитов. Разведите концентрат 10× буфера для лизиса до 1 × с помощью воды (т. е. 2 x = 2 mL 1 × PBS + 4 mL буфера для лизиса). Выполняйте этот шаг при RT.
- Инкубируйте при комнатной температуре в течение 5 min, периодически осторожно перемешивая путем переворачивания пробирки.
- Нейтрализуйте буфер для лизиса эритроцитов, добавив равный объем среды для промывки клеток R10.
- Профильтруйте клеточную суспензию через фильтр 30 µm в пробирку объемом 15 mL для удаления клеточного дебриса.
- Доведите объем до 15 mL с помощью среды для промывки клеток R10.
- Центрифугируйте при 500 x g в течение 10 min при 4 °C.
- Полностью удалите супернатант и ресуспендируйте в среде для промывки клеток до конечного объема до 5 mL для подсчета и оценки жизнеспособности. Ресуспендируйте до нужного разведения. Перейдите к окрашиванию для проточной цитометрии или подготовке к scRNA-seq.
- Держите клетки на льду между этапами, если не указано иное.
2. Окрашивание суспензии единичных клеток для проточной цитометрии
- Перенесите необходимые клетки в полипропиленовую пробирку с круглым дном объемом 5 мл и храните на льду.
- Приготовьте раствор для окрашивания клеток, используя выбранные моноклональные антитела (mAb), конъюгированные с флуоресцентными метками, в общем объеме (n + 1) × 100 µL, используя PBS для проточной цитометрии (490 мл 1x PBS, 10 мл FBS, 0,5 г азида натрия). Подготовьте (n+1) × 100 µL раствора для окрашивания, где n = количество образцов (например, 6 × 100 µL = 600 µL для 5 образцов).
ПРИМЕЧАНИЕ: Азид натрия в форме порошка является канцерогеном. Используйте соответствующие средства индивидуальной защиты и промойте оборудование, чтобы убедиться, что азид находится в растворе, перед утилизацией в контейнер для химических отходов. - Центрифугируйте каждый образец, предназначенный для окрашивания, в течение 5 мин при 4 °C при 500 x g. Ресуспендируйте в 100 µL раствора для окрашивания. Ресуспендируйте неокрашенные контроли в 1000 µL PBS для проточной цитометрии.
- Закройте пробирки, чтобы защитить от света, и инкубируйте при 4 °C в течение 15 мин.
ПРИМЕЧАНИЕ: Антитела с флуоресцентными метками могут подвергаться деградации при длительном воздействии света, поэтому они должны оставаться закрытыми во время инкубации и последующего хранения образцов. - Добавьте 1 мл PBS для проточной цитометрии в каждую окрашенную пробирку и центрифугируйте при 500 x g, 4 °C, в течение 5 мин для промывки.
- Удалите супернатант, разбейте осадок и ресуспендируйте клетки в 1 мл PBS для проточной цитометрии. Центрифугируйте, как указано ранее (шаг 2.5).
- Повторите шаг 2.6 до достижения общего количества трех промывок. Удалите супернатант и разбейте осадки.
- Ресуспендируйте клетки в фиксирующем растворе или PBS для проточной цитометрии, в зависимости от необходимых последующих окрашиваний.
- Используйте, если требуется фиксация клеток или проведение внутриклеточного окрашивания. В противном случае перейдите к шагу 2.10:
- Добавьте 200 µL раствора для пермеабилизации/фиксации в каждый образец для обеспечения внутриядерного окрашивания.
- Накройте клетки алюминиевой фольгой и инкубируйте не менее 20 мин при 4 °C. Если планируется анализ образцов в другой день, на данном этапе их можно хранить в закрытом виде при 4 °C в течение ночи.
- После фиксации центрифугируйте образцы при 500 x g в течение 5 мин и ресуспендируйте в 1× буфере для пермеабилизации (разведенном в воде).
- Если готовится вторичное или внутриклеточное окрашивание, окрашивайте образцы в нужном разведении в 1x буфере для пермеабилизации. Поместите закрытые пробирки в инкубатор при 4 °C на 15–20 мин.
- Добавьте 1 мл 1x буфера для пермеабилизации в каждую окрашенную пробирку и центрифугируйте при 500 x g в течение 5 мин для промывки.
- Удалите супернатант, разбейте осадок и ресуспендируйте клетки в 1 мл 1x буфера для пермеабилизации. Центрифугируйте, как указано ранее (шаг 9.5).
- Повторите шаг 2.9.6 до достижения общего количества трех промывок. Удалите супернатант и разбейте осадки.
- Ресуспендируйте клетки в 200 µL 1x буфера для пермеабилизации и храните на льду до начала анализа на проточном цитометре.
- Если фиксация клеток не требуется, ресуспендируйте их в 200 µL PBS для проточной цитометрии и храните на льду до начала анализа на проточном цитометре.
- Для анализа scRNA-Seq следуйте протоколам удаления дебриса и погибших клеток, оценки качества РНК и создания библиотек.
3. Оценка качества библиотеки scRNA-Seq
- Убедитесь, что высокий процент прочтений уверенно сопоставлен с клетками. В идеале этот показатель должен превышать 90%.
- Сравните количество уникальных молекулярных идентификаторов (UMI) с количеством штрихкодов. Высококачественный образец будет характеризоваться резким падением количества UMI примерно при 10 000 штрихкодов («изгиб колена» на графике ранжирования штрихкодов).
- Изучите результаты равномерного аппроксимированного многообразия и проекции (UMAP). Высококачественный образец из сложных тканей, таких как молочные железы или спонтанные опухоли молочной железы, будет иметь отчетливые, хорошо разделенные клеточные кластеры.
- Определите количество экспрессируемых митохондриальных (mt-) генов; кластеры с большим количеством митохондриальных генов указывают на то, что клетки мертвы или погибают.
Результаты
HER2 представляет собой опухолевый онкоген, который способствует развитию агрессивных опухолей молочной железы у женщин; при этом до 70% женщин, получающих таргетную терапию моноклональными антителами против HER2, либо не отвечают на лечение, либо вырабатывают к нему резистентность.15,16,17,18Конечной целью является активация иммунного ответа против HER2/neu для усиления иммунитета к HER2 и увеличения выживаемости. Для изучения иммунитета к HER2/neu используются иммунокомпетентные мышиные модели, у которых развиваются спонтанные опухоли молочной железы, обусловленные экспрессией HER2/neu.2,19HER2 кодируется человеком Erbb2 и neu крысы Erbb2Мыши линии BALB NeuT несут трансформирующий ген крысы Нейронный трансген (NeuT) под управлением промотора MMTV19Neu экспрессируется в молочных железах половозрелых самок мышей линии BALB, что приводит к развитию протоковой карциномы (Рисунок 1A, вставка) у всех трансгенных самок в любой или всех молочных железах. Непрерывная экспрессия нейро- приводит к появлению пальпируемых опухолей в возрасте от 14 до 19 недель, которые прогрессивно увеличиваются в размере1Вакцинация трансгенных мышей плазмидной ДНК, кодирующей как аутологичный neu, так и гетерологичный HER2 (обозначенной как pNeuE2TM), может привести к нарушению иммунологической толерантности к neu, что вызывает увеличение количества системных поликлональных антител к neu и секретирующих IFN-γ Т-клеток селезенки.1Данный иммунный ответ привел к отторжению опухолевых клеток TUBO, экспрессирующих neu. Хотя системный ответ является информативным, он не позволяет понять механизм действия непосредственно в очаге опухоли. В связи с этим мы поставили задачу разработать протокол диссоциации тканей молочной железы и опухолей молочной железы, который позволит получить суспензию одиночных клеток с высокой жизнеспособностью при сохранении поверхностных клеточных маркеров. Рисунок 1 представлен обзор рабочего процесса. Вкратце, после сбора ткань мелко измельчают с помощью скальпелей (Рисунок 1B) и помещенный в буфер для переваривания тканей на основе среды RPMI, содержащий смесь коллагеназы II типа и коллагеназы D в соотношении 2:1, а также ДНказу I, на 30 минут в шейкер-инкубатор (Рисунок 1C–D), затем еще 5 мин с 0,5 M ЭДТА (Рисунок 1E). Переваривание останавливают добавлением промывочного буфера, содержащего FBS, после чего смесь фильтруют для удаления тканевого детрита (Рисунок 1F). После этапов промывки и лизиса эритроцитов (Рисунок 1G–H), клетки фильтруют через сито с ячейками 30 мкм и подсчитывают (Рисунок 1I–K и Рисунок 2). На данном этапе клетки можно распределить для последующих этапов анализа, таких как проточная цитометрия или scRNA-Seq.
Для прямого сравнения диссоциация проводилась параллельно с использованием коммерческого набора. Для опухолей типа «Tough» следовала опубликованная инструкция, а после нейтрализации ферментов образцы обрабатывались одинаково (т. е. проводили лизис эритроцитов и т. д.). При использовании коммерческого набора было получено 1,3 × 10⁶ клеток/мл с жизнеспособностью 76%, в то время как при использовании данного протокола было получено 4,5 × 10⁶ клеток/мл с жизнеспособностью 89% (Рисунок 2A,B). Количество клеточного детрита после лизиса эритроцитов было схожим для обоих протоколов. Для удаления погибших клеток 1 × 10⁷ клеток, полученных по каждому из протоколов, обрабатывали с помощью системы удаления мертвых клеток. Коммерческий набор позволил выделить 1,3 × 10⁶ клеток/мл с жизнеспособностью 96% по сравнению с 1,94 × 10⁶ клеток/мл и жизнеспособностью 98% для описанного здесь протокола (Рисунок 2C,D). Таким образом, описанный здесь протокол обеспечил более высокий выход жизнеспособных клеток для последующего анализа без необходимости использования специализированного оборудования.
Для конкретной оценки качества и воспроизводимости клеточных суспензий, полученных с помощью описанного здесь протокола, были собраны образцы молочных желез самок мышей линий BALB и BALB NeuT в возрасте 16–18 недель. Ткани BALB NeuT содержали как ткани молочной железы, так и опухолевые ткани. Были взяты ткани паховых жировых подушек молочных желез (4-я и 9-я молочные железы), включая опухолевую ткань у мышей BALB NeuT, которые затем были диссоциированы в гомогенный раствор для последующего анализа. Обратите внимание, что перед сбором молочных желез были удалены сторожевые лимфатические узлы.
После обработки образцы оценивали методом проточной цитометрии для подтверждения сохранения клеточных поверхностных маркеров и жизнеспособности клеток (Рисунок 3), а также с помощью анализа scRNA-Seq (Рисунок 4) для проверки качества клеточной подготовки перед созданием библиотеки. Жизнеспособность единичных клеток молочной железы или опухоли в среднем составляла ≥85% до удаления мертвых клеток. Для получения высокожизнеспособного исходного клеточного препарата для scRNA-Seq можно использовать имеющиеся в продаже наборы для удаления мертвых клеток и клеточного дебриса. При следовании этим протоколам жизнеспособность препаратов единичных клеток варьировала от 94% до 98% (Рисунок 2C,F). Клетки, полученные по данному протоколу, фиксировали и сравнивали с рекомендуемым методом фиксации для scRNA-Seq, называемым коммерческим протоколом «сначала фиксация, затем диссоциация», в котором использовался коммерческий термолизин (Рисунок 2E,F). Коммерческий протокол «сначала фиксация, затем диссоциация» обеспечил выход 1.5 × 10⁷ клеток/мл; жизнеспособность не измерялась, так как ткань фиксируется до диссоциации, в то время как данный протокол обеспечил выход 8.6 × 10⁶ клеток/мл при исходной жизнеспособности 94%. Таким образом, метод коммерческого протокола «сначала фиксация, затем диссоциация» дал сопоставимое или несколько большее количество клеток, чем протокол, описанный в данной работе.
Клетки окрашивали и оценивали по поверхностным маркерам с помощью проточной цитометрии. Эпителиальные клетки (Рисунок 3A) и фибробласты (Рисунок 3B) идентифицировали путем окрашивания с использованием мАТ к EpCAM и Pdgfrb/CD140a соответственно. Поскольку трехкратная вакцинация мышей BALB NeuT ДНК HER2/neu привела к значительной задержке появления опухоли и формированию системного иммунитета, особый интерес представляла оценка иммунных клеток в молочных железах и опухолях. Клетки иммунной линии CD45+ составили ~50% клеточной суспензии (Рисунок 3C). Наличие B- и T-лимфоцитов оценивали по маркерам B220/CD45R и CD3 (Рисунок 3D), а CD3+ T-клетки далее подразделяли на CD4 и CD8 (Рисунок 3E). Чтобы оценить способность метода сохранять редкие популяции клеток, образцы окрашивали на регуляторные T-клетки. Для этого образец клеток фиксировали и окрашивали на специфический для Treg-клеток транскрипционный фактор Foxp3. Регуляторные T-клетки обычно составляют небольшую долю от общей популяции иммунных клеток организма, однако их роль в модуляции иммунной системы представляет большой интерес в области исследований рака и аутоиммунных заболеваний. Таким образом, надежное выделение малочисленных, но функционально значимых популяций иммунных клеток, таких как регуляторные T-клетки, является критически важным при выборе протокола диссоциирования ткани. Foxp3+ регуляторные T-клетки идентифицировали путем предварительного субгейтинга CD3+CD4+ клеток по экспрессии CD25 (высокоаффинного рецептора IL-2) и Foxp3. При использовании этой стратегии гейтирования ~5% CD4+ клеток были положительными по обоим маркерам, в то время как ~25% были положительными по Foxp3, но имели низкую экспрессию или были отрицательными по CD25 (Рисунок 3F). Маркер CD64 оценивали на отдельном образце опухоли, чтобы убедиться, что CD64+ макрофаги могут быть успешно изолированы с помощью данного метода диссоциирования (Рисунок 3G). Для идентификации более широких миелоидных групп определяли F4/80+ макрофаги и F4/80- CD11c+ клетки, идентифицированные как дендритные клетки (Рисунок 3H). Дендритные клетки составили примерно 3% от общего числа клеток, в то время как CD11b+Ly6G+ нейтрофилы составили ~5% (Рисунок 3H,I). Таким образом, при использовании вышеописанного протокола диссоциирования тканей молочной железы и опухоли было достигнуто надежное восстановление и сохранение поверхностных эпитопов в CD45+ клетках.
Перед подачей образцов для генерации библиотек scRNA-Seq можно оценить целостность РНК. Свежие образцы, подготовленные с использованием коммерческого протокола или протокола, описанного здесь, дали соотношения A260/230 1,9 и 2,2 соответственно. Фиксированные образцы оценивают по определению процента ридов длиной более 200 нуклеотидов (nt). Описанный здесь протокол с последующей немедленной фиксацией и хранением при –80 °C привел к тому, что 83% образца содержали риды > 200 nt.
Качество образцов
После подготовки библиотек scRNA-Seq и секвенирования была проведена оценка качества образцов (Рисунок 4). Библиотеки образцов scRNA-Seq сначала оцениваются с использованием показателей определения клеток и качества картирования, графика ранжирования штрих-кодов, насыщения секвенирования и проекций UMAP. Диссоциация ткани молочной железы BALB с использованием описанного здесь протокола позволила получить 16 182 клетки, при этом 97% ридов были отнесены к клеткам, что свидетельствует о сохранности образца, так как лишь немногим ридам была присвоена категория внеклеточной РНК. Значительный процент ридов, зафиксированных вне клеток, указывает на повышенный уровень загрязнения окружающей среды мРНК от погибших или погибающих клеток. Качество картирования представляет собой процент зондов, которые картировались на набор зондов; оно составило 99,1%. Насыщение секвенирования выходило на плато, что указывает на репликацию уже идентифицированных генов, а не на уникальные. График ранжирования штрих-кодов показывает количество UMI в зависимости от штрих-кодов, и высококачественный образец характеризуется отчетливым спадом, или «изгибом колена», примерно при 10K UMI (Рисунок 4A). Наконец, проекция UMAP демонстрирует несколько отчетливых кластеров (Рисунок 4A). Все эти показатели свидетельствуют о высоком качестве библиотеки scRNA-Seq.
Для сравнения качества данного протокола с рекомендованным коммерческим протоколом диссоциации с предварительной фиксацией для химии Flex был проведен параллельный анализ с использованием коммерческого протокола и последующая оценка качества полученной библиотеки. В результате применения коммерческого протокола диссоциации с предварительной фиксацией для образцов молочной железы BALB было получено 720 клеток, при этом 68% прочтений пришлось на клетки, а качество картирования составило 89,3%. Аналогично, насыщение начало выходить на плато, однако количество генов на клетку было заметно ниже, чем при диссоциации живых клеток (4 500 генов/клетку для живых клеток против 1 000 генов/клетку при использовании коммерческого протокола диссоциации с предварительной фиксацией). График ранжирования штрихкодов не имеет выраженного перегиба (Рисунок 4B), и хотя наблюдаются отчетливые кластеры, их количество меньше (Рисунок 4B).
Также была проведена оценка качества библиотек из тканей молочной железы мышей BALB NeuT, содержащих опухоль (Рисунок 4C,D). При использовании описанного здесь метода живой диссоциации было секвенировано 18 077 клеток, при этом 97% ридов принадлежали клеткам, а 99,1% картировались на набор зондов. На графике был заметен перегиб («колено») (Рисунок 4C), а также четкое разделение между кластерами (Рисунок 4C). Коммерческий протокол диссоциации с предварительной фиксацией показал лучшие результаты при наличии опухоли: было секвенировано 7 119 клеток, 91% ридов принадлежали клеткам, а 98,6% ридов картировались на набор зондов. На графике ранжирования штрихкодов наблюдался более выраженный перегиб (Рисунок 4D), однако, несмотря на насыщение секвенирования, проекции UMAP содержали мало четко выраженных кластеров (Рисунок 4D).
Дополнительные показатели качества включают определение количества экспрессируемых митохондриальных генов в клеточных кластерах. Хорошее разделение клеток свидетельствует о качестве образца, при этом высокий процент «reads in cell» подтверждает жизнеспособность образца. Клетки с большим количеством митохондриальных генов (обозначаемых как «mt-») можно идентифицировать и удалить с помощью инструментов кластеризации с открытым исходным кодом или специализированного ПО от поставщиков. Прямое сравнение образцов можно выполнить путем объединения данных с помощью приложения Cell Ranger, которое позволяет проводить прямое биоинформатическое сравнение, или с использованием скрипта «integration» в инструментах кластеризации с открытым исходным кодом или ПО от поставщиков. Клеточные кластеры идентифицируются путем запроса известных маркеров клеточных линий (например, CD45/Ptprc для иммунных клеток, EpCAM для эпителиальных клеток, Fap или Pdgfra для фибробластов). Если клеточный кластер не может быть определен по известным маркерам линий, для получения информации о возможном типе клеток можно проанализировать 10–15 наиболее высокоэкспрессируемых генов с помощью инструментов анализа обогащения наборов генов. В качестве альтернативы, наиболее экспрессируемые гены можно проверить с помощью инструментов референсного атласа клеток для определения экспрессии в известных типах клеток.
Из каждого образца были удалены клетки с высоким содержанием митохондриальных генов, в результате чего в молочной железе BALB осталось 16 114 клеток (0,5% клеток с высоким содержанием митохондриальных генов), а в BALB NeuT — 18 024 клетки (0,3%). В образцах, обработанных согласно коммерческому протоколу с предварительной фиксацией, в молочной железе BALB сохранилось 627 клеток (13% клеток с высоким содержанием митохондриальных генов), а в BALB NeuT — 6 181 клетка (14%).
Для описанного здесь протокола диссоциации живых клеток была выполнена интеграция данных молочных желез мышей BALB и BALB NeuT, что показано на рисунке 4E,F. Сравнение образцов выявило сходные клеточные популяции между библиотеками (рисунок 4E, F и таблица 1). Клеточные кластеры были помечены с использованием известных маркеров клеточных линий, после чего было проведено сравнение образцов. Популяции иммунных клеток включали Т-клетки, В-клетки и кластеры макрофагов, в то время как популяции неиммунных клеток включали эпителиальные клетки, фибробласты и эндотелиальные клетки. Как и ожидалось, в образце BALB NeuT присутствовала дополнительная популяция опухолевых клеток (рисунок 4F). При анализе конкретных клеточных популяций было обнаружено, что в опухолевом образце BALB NeuT содержится больше макрофагов, но меньше Т-клеток и неопухолевых эпителиальных клеток. Анализ scRNA-Seq показал сопоставимую популяцию эпителиальных клеток, производных от молочной железы BALB, и значительную популяцию эпителиальных/опухолевых клеток в соответствующем образце NeuT. График снижения размерности демонстрирует четкое различие между популяцией нормальных резидентных эпителиальных клеток молочной железы и эпителиальными опухолевыми клетками, специфичными для образца BALB NeuT (рисунок 4E,F).
После определения популяций эпителиальных клеток была проведена оценка стромальных клеток в образцах BALB и BALB NeuT. Анализ экспрессии гена рецептора альфа-фактора роста, производного тромбоцитов (Pdgfrα), выявил отчетливую популяцию фибробластов как в образцах BALB, так и в BALB NeuT. В образце scRNA-Seq BALB фибробласты, экспрессирующие Pdgfrα, составили 15% клеток, что было несколько ниже данных анализа методом проточной цитометрии, при котором доля фибробластов составила 29% (Рисунок 3B). После гейтирования по жизнеспособности и статусу одиночных клеток фибробласты были идентифицированы методом проточной цитометрии с использованием маркера PDGFRα (CD140a). Результаты, полученные в разных образцах независимо от методов последующего анализа, подтверждают стабильность данного протокола диссоциации с течением времени и в ходе нескольких повторностей.
Белок CD45 кодируется геном Ptprc, и секвенирование РНК клеток, экспрессирующих Ptprc, выявило четко идентифицируемые лимфоцитарные кластеры в образце (Рисунок 4E). Для дальнейшей оценки популяций лимфоцитов проводился анализ популяций B- и T-клеток с использованием маркеров Cd3e+ или Cd79a+ (Рисунок 4E,F). При анализе данных секвенирования единичных клеток эти популяции оказались отчетливо различимыми, хотя scRNA-Seq дополнительно выявил несколько субкластеров T-клеток, экспрессирующих Cd3. Дополнительный подсчет иммунных клеток по результатам секвенирования показал увеличение количества макрофагов в образце BALB NeuT, на что указывает экспрессия Itgam и Adgre1 (F4/80) (Рисунок 4F). Для оценки возможности идентификации редких популяций клеток с помощью scRNA-Seq были определены регуляторные T-клетки по экспрессии Foxp3 (Рисунок 4F). Регуляторные T-клетки присутствуют в библиотеках scRNA-Seq, но их количество было недостаточно велико, чтобы выделить их в отдельный кластер. Вместо этого они сгруппировались с T-клетками и натуральными киллерами (NK-клетками).
Наконец, возможность идентификации нейтрофилов (PMN) в библиотеках scRNA-Seq была предметом затруднений и не была достигнута при использовании других коммерчески доступных протоколов диссоциации молочной железы20. С помощью проточной цитометрии ~5% иммунных клеток были идентифицированы как нейтрофилы, экспрессирующие Ly6G и CD11b (Рисунок 3H). Для идентификации нейтрофилов в библиотеках scRNA-Seq рекомендуется провести повторную кластеризацию с использованием конвейеров поставщика, чтобы выделить клетки ниже стандартного перегиба кривой («knee bend»). Эта процедура была выполнена как для библиотек молочной железы BALB, так и для BALB NeuT. Dot-плоты генов, обычно ассоциированных с макрофагами (Ptprc, Adgre1, Mrc1), сравнивали с генами, экспрессируемыми нейтрофилами (S100a8, Trem1, Clec4). Ни в библиотеках BALB, ни в библиотеках BALB NeuT не было обнаружено значительного количества нейтрофилов (Рисунок 5A,B). Однако это, по всей видимости, зависит от генетического фона модели, так как у мышей F1 NeuT на фоне BALB x PWK присутствовал клеточный кластер, экспрессирующий маркеры нейтрофилов (Рисунок 5C).
Таким образом, данный протокол диссоциации позволил выявить типы клеток в молочных железах мышей BALB и мышей BALB NeuT со спонтанными опухолями молочной железы. Поскольку эти клетки обладают высокой жизнеспособностью, данный метод может быть использован для оценки противоопухолевого иммунитета и анти-HER2/neu функциональности изолированных популяций иммунных клеток.
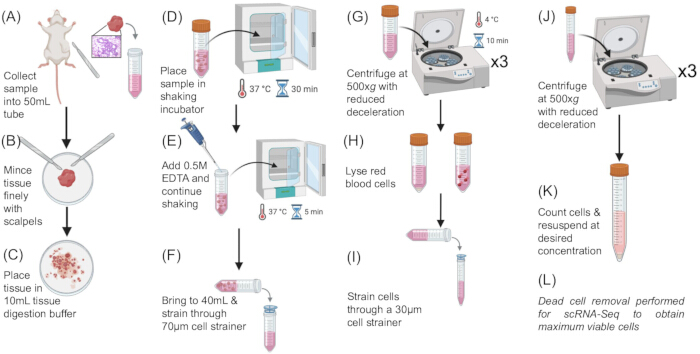
Рисунок 1: Схема протокола диссоциации тканей. (A) Молочные железы или опухоли были удалены (B,C), мелко измельчены (D) и подвергнуты перевариванию при 37 °C с перемешиванием в коктейле из коллагеназы типа II, коллагеназы D и DNase I (E). Добавляли EDTA, и переваривание продолжали еще в течение 5 min. (F) Переваривание останавливали доведением объема до 40 mL среды RPMI, содержащей 10% FBS (промывочная среда R10), после чего суспензию фильтровали через фильтры 70 µm. (G) Суспензии клеток центрифугировали при 4 °C и 500 × g в течение 10 min, затем промывали 3 раза промывочной средой RPMI. (H) Эритроциты (RBC) лизировали с использованием 10 × раствора для лизиса RBC на основе хлорида аммония. (I) Для остановки лизиса использовали промывочный буфер R10, после чего суспензии клеток фильтровали через фильтры 30 µm. (J,K) После лизиса эритроцитов клетки промывали еще три раза перед оценкой концентрации и жизнеспособности. (L) Если клетки используются для генерации библиотек scRNA-Seq, мертвые клетки и клеточный дебрис удаляли с помощью имеющихся в продаже наборов согласно их протоколам. Нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
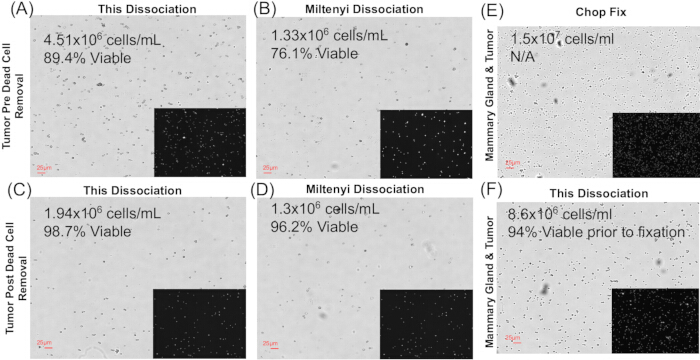
Рисунок 2: Сравнение методов диссоциации. Данные подсчета клеток и их жизнеспособности для сравнения протокола диссоциации, описанного в данной работе, с коммерчески доступным протоколом Miltenyi и коммерческим протоколом диссоциации с предварительной фиксацией, рекомендованным для scRNA-Seq. Подсчет клеток после диссоциации проводили с помощью автоматического счетчика клеток с окрашиванием мертвых клеток акридиновым оранжевым/пропидийиодидом (AO/PI). Подсчет клеток и запись жизнеспособности выполнялись после удаления мертвых клеток. (A–B) Количество клеток и их жизнеспособность непосредственно перед удалением мертвых клеток. (C–D) Количество клеток и их жизнеспособность после удаления мертвых клеток, что является репрезентативным для образца, поступающего в конвейер scRNA-Seq. (E–F) Количество клеток и их жизнеспособность при сравнении описанного здесь протокола с коммерческим протоколом диссоциации с предварительной фиксацией. Оценить жизнеспособность после диссоциации с использованием протокола, содержащего Liberase, было невозможно, так как образец ткани был зафиксирован перед диссоциацией. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
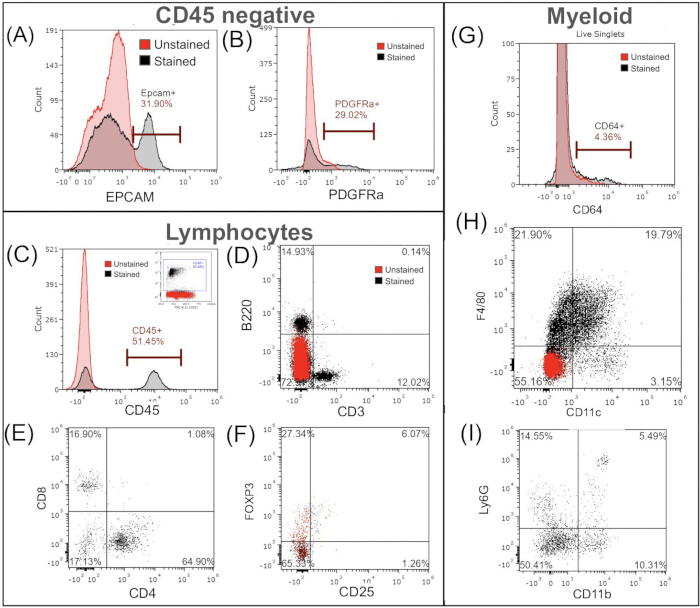
Рисунок 3: Проточный цитометрический анализ диссоциированных тканей. Для подтверждения наличия и жизнеспособности иммунных клеток были проанализированы репрезентативные образцы BALB и BALB NeuT. Сначала клетки отбирали по признаку жизнеспособности, затем, перед идентификацией подгрупп, выделяли синглеты. Для проверки восстановления клеток эпителиальной и стромальной линий сначала оценивали их наличие. EpCAM использовали для идентификации клеток эпителиального происхождения (A), а PDGFRa — для идентификации фибробластов (B). Для оценки иммунных популяций было установлено, что 51% от общего числа клеток в молочной железе были CD45-положительными (C). Популяции B-клеток (B220+) и T-клеток (CD3+) были получены из диссоциированной ткани молочной железы мыши (D), а популяции CD8+ и CD4+ были выделены из ткани опухоли (E). Чтобы определить, может ли данный протокол эффективно изолировать более редкие популяции клеток, (F) оценивали содержание Treg в ткани опухоли по экспрессии Foxp3+. Это было осуществлено путем предварительного гейтирования популяции CD3+ и CD4+, и внутри этой популяции — идентификации клеток, экспрессирующих Foxp3+ и CD25+ (примерно 6%). (G) Оценка CD64+ макрофагов из ткани опухоли. (H) Клетки CD11b+ дополнительно анализировали на экспрессию F4/80 и CD11c, при этом клетки F4/80− CD11c+ идентифицировали как дендритные клетки. (I) Нейтрофилы идентифицировали как клетки, экспрессирующие CD45+, Ly6G+ и CD11b+, но являющиеся F4/80−. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
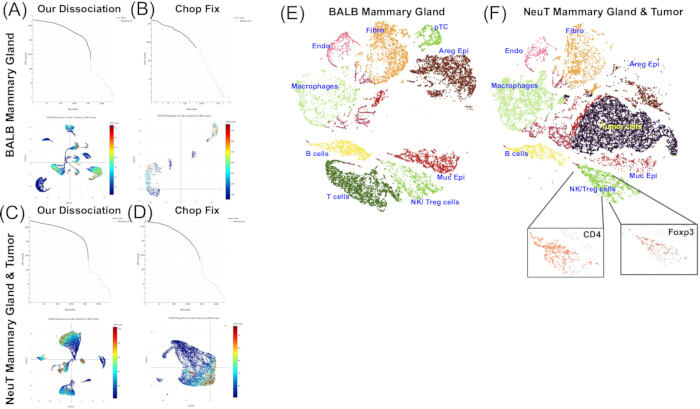
Рисунок 4Оценка библиотек scRNA-Seq. Для создания библиотек scRNA-Seq использовались фиксированные образцы; применялся либо описанный здесь протокол диссоциации живых клеток с последующей фиксацией, как указано в данной рукописи, либо рекомендованный коммерческий протокол диссоциации с предварительной фиксацией.A) Контроль качества библиотеки scRNA-Seq молочной железы мышей линии BALB, полученной путем диссоциации живых клеток. Было секвенировано 16 182 клетки, при этом 97,1% ридов были достоверно картированы внутри клеток и 98,8% — достоверно картированы на отфильтрованный набор зондов. Сверху представлены графики «излома колена» (knee bend plots), ниже — проекции UMAP. Резкий излом колена и четко выраженные клеточные кластеры свидетельствуют о высоком качестве библиотек.B) Оценка качества коммерческого протокола диссоциации с предварительной фиксацией библиотеки scRNA-Seq молочной железы мышей линии BALB демонстрирует отсутствие изгиба («колена») на графике и малое количество клеток (n = 720).CБиблиотека scRNA-Seq молочной железы мышей линии BALB NeuT была создана согласно описанному здесь протоколу. Было секвенировано 18 077 клеток, при этом 97% чтений были сопоставлены с клетками и 98,9% — с отфильтрованным набором зондов. Резкий изгиб кривой («колено») в сочетании с четко выраженными кластерами свидетельствует о высоком качестве, в то время как библиотека BALB NeuT, полученная с использованием коммерческого протокола диссоциации с предварительной фиксацией (D) демонстрирует слабый изгиб кривой (knee bend), однако клеточные кластеры среди 7 119 секвенированных клеток выражены нечетко. После подготовки библиотек программа Cell Ranger была использована для интеграции библиотек молочных желез мышей линий BALB и BALB NeuT, с последующей кластеризацией методом K-средних в Loupe Cell Browser для прямого сравнения. Десять уникальных кластеров определяют состав клеток молочной железы BALB/c, как показано на графиках T-SNE (Е,F). В трансгенной линии NeuT (F) в молочной железе наблюдалась дополнительная популяция опухолевых клеток. Внутри лимфоцитарного кластера CD4- и CD8aэкспрессирующие клетки распределены по всему объему. Cd4 выражение показано на вставке. Регуляторные Т-клетки, определяемые по экспрессии Foxp3, присутствовали в недостаточном количестве для формирования отдельного кластера и группировались с Т-клетками, что показано на выделенном графике признаков (feature plot). Пожалуйста, нажмите здесь, чтобы просмотреть эту фигуру в большем размере.
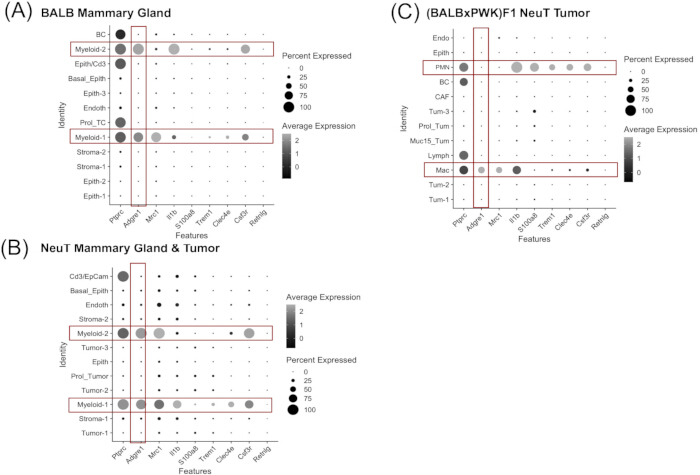
Рисунок 5: Идентификация нейтрофилов (PMN). Нейтрофилы (PMN) крайне трудно идентифицировать в библиотеках scRNA-Seq из-за низкого уровня РНК-транскриптов и слабой экспрессии Ly6g. PMN в библиотеках scRNA-Seq можно идентифицировать, используя команду «count» в Cell Ranger и добавляя опцию «force cell = 8000» в командной строке. Этот анализ был проведен как для библиотек молочной железы BALB (A) , так и BALB NeuT (B), но лишь немногие клетки экспрессировали специфические для PMN гены. Все кластеры миелоидных клеток у BALB и BALB NeuT также экспрессировали Adgre1 (F4/80) и Mrc1 (CD206). Очень немногие клетки в миелоидных популяциях экспрессируют специфические для PMN гены S100a8, Trem1 и Clec4e. Однако этот результат обусловлен генетическим фоном BALB данной модели, так как в библиотеках scRNA-Seq, подготовленных с использованием метода диссоциации самок мышей (BALBxPWK)F1 NeuT, описанного здесь (C), без команды force cell, наблюдался кластер клеток, экспрессирующих специфические для PMN гены, но не Adgre1. Это подчеркивает, что данный протокол диссоциации действительно позволяет выделять PMN наряду с другими миелоидными популяциями. Красными прямоугольниками выделены кластеры, экспрессирующие Adgre1. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
| Опухоль BALB NeuT | Проточная цитометрия | секвенирование РНК единичных клеток (scRNA-Seq) |
| CD3 / Лимфоциты | 6% от общего количества клеток (12% от CD45+ клеток) | 7% от общего количества клеток |
| CD4 / Cd4 | 3,9% от общего количества клеток (65% клеток CD45+CD3+) | 4% от общего количества клеток |
| CD8 / Cd8a | 1% от общего количества клеток (17% клеток CD45+CD3+) | 0,9% от общего числа клеток |
| Foxp3 / Foxp3 | 0,8% от общего объема продаж (33% клеток CD3+CD4+) | 0,7% от общего количества клеток |
| F4/80 / Adgre1 | 20% от общего количества клеток | 16% от общего количества клеток |
| CD64 / Fcgr1 | НТ | 14% от общего количества клеток |
| ПМЯ/нейтрофилы | 2% от общего количества клеток (5% CD45+ клеток) | 0,05% от общего количества клеток |
| PDGFRa (CD140a) / Строма | 29% от общего количества клеток | 10% от общего количества клеток |
| EpCAM / Эпителиальный | 32% от общего количества клеток | 54% от общего количества клеток |
| НТ, не тестировалось |
Таблица 1: Сравнение процентного содержания клеток, полученное с помощью данного протокола диссоциации с использованием последующих методов анализа, включая секвенирование РНК единичных клеток и проточную цитометрию.
Обсуждение
Данный протокол диссоциации позволяет стабильно получать суспензии одиночных клеток, состоящие из популяций, репрезентативных для исходной ткани. Для выделения репрезентативных типов клеток из тканей молочной железы, включая более крупные фибробласты и стволовые клетки адипоцитов, использовалась центрифужная сила 500 x g14,21,22. Жизнеспособность и эпитопы клеточной поверхности надежно сохраняются для множества типов клеток, включая иммунные, эпителиальные и стромальные популяции. Одним из логистических преимуществ данного протокола диссоциации является относительно короткое время, необходимое для перехода от первоначального сбора ткани к чистой клеточной суспензии, готовой к дальнейшей обработке, без использования специализированного оборудования. В целом, выполнение этого рабочего процесса занимает примерно три часа от начала до конца, что является преимуществом по сравнению с аналогичными протоколами ферментативной диссоциации, которые могут требовать воздействия фермента на образец в течение ночи. Этот протокол был разработан и используется в данной и других лабораториях в представленном формате с 2023 года. Только за последние 6 месяцев лаборатория выполнила данный протокол 37 раз с получением аналогичных результатов, и все уровни стажеров успешно освоили его. Помимо проточной цитометрии и генерации библиотек scRNA-Seq, протокол использовался для выделения опухоль-инфильтрирующих лимфоцитов (TIL) и опухоль-ассоциированных макрофагов (TAM) для функционального анализа ex vivo. Хотя результаты показывают, что протокол диссоциации позволяет идентифицировать основные клеточные популяции, важно отметить, что проточная цитометрия и scRNA-Seq принципиально различаются. Проточная цитометрия предназначена для изучения экспрессии множества маркеров на уровне одиночных клеток и для достижения этой цели использует гейтирование и подгейтирование. scRNA-Seq, с другой стороны, предназначена для идентификации изменений в экспрессии генов в кластере клеток без использования гейтирования и подгейтирования.
Устранение проблем при выполнении протокола включало следующее: 1) Неполное переваривание: На переваривание образцов тканей сильное влияние оказывает физическая диссоциация. Измельчайте ткань до состояния пасты, распределяя ее по поверхности для контроля размера фрагментов. Этот этап часто занимает больше времени, чем ожидается. Неполная диссоциация приводит к снижению количества стромальных и эпителиальных клеток по сравнению с иммунными клетками. 2) Низкая жизнеспособность: На жизнеспособность клеток влияют время переваривания и соблюдение соотношения коллагеназы II типа и коллагеназы D в пропорции 2:1. Дефицит коллагеназы II типа приведет к значительному снижению жизнеспособности клеток. Кроме того, если жизнеспособность образца составляет 70–85%, для ее повышения рекомендуется использовать коммерчески доступные системы удаления мертвых клеток перед передачей образцов для генерации библиотек scRNA-Seq. 3) Большое количество клеточного детрита: Клеточный детрит часто является побочным эффектом физической диссоциации и переваривания. Детрит наиболее эффективно удаляется с помощью среды с градиентом плотности или коммерчески доступного раствора для удаления детрита со значительно сниженной плотностью. 4) Плохое осаждение клеток: На низкий выход образца в первую очередь влияет объем исходной ткани. Данный протокол был оптимизирован для 2 молочных желез или опухолей среднего размера массой от 10 до 20 мг. Если исходный образец содержит менее одной молочной железы или опухоль размером менее ~200 мм3выход клеток будет низким. Если размер тканей мал, объемы можно уменьшить на 50%. Аналогично, при наличии крупных опухолей или нескольких молочных желез (более 4 молочных желез или опухолей размером более ~25 мг) объемы можно увеличить до 1,5 ×. Образцы массой более ~25 мг следует разделить для дальнейшей обработки. 5) Низкое качество scRNA-Seq: качество библиотек scRNA-Seq почти полностью зависит от качества исходного образца. При работе с опухолевыми тканями критически важными являются время формирования исходных капель-эмульсий (GEM) и синтеза кДНК. По этой причине использование протокола, предусматривающего непосредственный переход к фиксации РНК, например, системы химии для анализа отдельных клеток на основе зондов к фиксированной РНК, позволяет исключить фактор времени, влияющий на качество образца. Тем не менее, оценка качества РНК перед началом конвейера scRNA-Seq гарантирует получение информативных библиотек. 6) Меньшее чем ожидалось количество клеточных кластеров: если результаты scRNA-Seq демонстрируют низкие уровни экспрессии генов в нескольких уникальных кластерах, можно провести повторное секвенирование библиотек для увеличения количества ридов (глубины секвенирования). Кроме того, если целью исследования является поиск только иммунных клеток, очистка популяции CD45+ перед созданием библиотеки повысит чувствительность секвенирования.
Применение вышеупомянутого коммерческого протокола фиксации и диссоциации оказалось затруднительным при обработке жировой ткани. В первую очередь, фиксированная жировая ткань обладала положительной плавучестью, что затрудняло ее дальнейшую диссоциацию и эффективную фильтрацию. По этой причине жировая ткань не рекомендуется для использования с данным коммерческим протоколом фиксации и диссоциации. Фиксация ткани перед диссоциацией в суспензию одиночных клеток исключила этапы контроля качества, такие как измерение жизнеспособности после фиксации и оценка диссоциации. Это затруднило оценку качества образцов перед отправкой на последующий scRNA-seq, что является необходимым этапом процесса диссоциации тканей. Фиксация тканей для последующего scRNA-seq может привести к деградации РНК. Качество РНК можно оценить, проанализировав длину прочтения нуклеотидов (nt) в образцах фиксированных клеток. Чем выше процент прочтений длиной >200 nt в образце, тем выше его качество. Образцы с приемлемым показателем целостности РНК имеют >30% прочтений длиной >200 nt, и такие образцы могут с высокой степенью достоверности быть использованы для создания библиотек scRNA-seq. Фиксированные образцы тканей молочной железы и опухолей BALB NeuT мышей линии BALB, описанные здесь, показали 83% и 82% прочтений длиной >200 nt соответственно.
Ткани с высоким содержанием жира, такие как молочные железы, создают определенные трудности, так как адипоциты могут препятствовать получению высококачественных клеточных препаратов. Большинство адипоцитов остаются в верхней части конической пробирки, и их можно удалить с помощью вакуума или путем слива супернатанта. Мы обнаружили, что крайне жирные молочные железы, например, у самок на генетическом фоне New Zealand Obese (NZO), требуют дополнительного этапа: протирания верхней части пробирки чистой безворсовой лабораторной салфеткой для облегчения удаления адипоцитов с последующими дополнительными этапами промывки для полного удаления жировой ткани. Ткани молочных желез также характеризуются более низким выходом клеток. Чтобы решить эту проблему, образцы по возможности объединяют для увеличения общего количества полученных клеток. Для очень плотных опухолей крайне важно тщательное измельчение, так как это обеспечивает коллагеназам меньшую площадь поверхности для расщепления за время, необходимое для получения жизнеспособных одиночных клеток.
Тем не менее, данный протокол имеет свои ограничения. Полный переваривание эпителиальных клеток до состояния единичной суспензии затруднительно при получении гетерогенной смеси клеток. Опухоли молочной железы мышей BALB NeuT обычно плотные, с наличием опухолевой капсулы и выраженного стромального компонента. Напротив, для сбора инфильтрирующих иммунных клеток требуется минимальное воздействие фермента, так как избыточная экспозиция может изменить их фенотипическое состояние. Таким образом, для сбора опухолевых и стромальных клеток необходимо найти компромисс, чтобы сохранить качество этого разнообразного набора типов клеток, включая инфильтрирующие нейтрофилы. Вследствие этого пропорции эпителиальных и стромальных клеток, полученные по данному протоколу, могут быть ниже тех, что реально представлены в исходной ткани. Данный протокол был оптимизирован в ходе многочисленных испытаний по оценке соотношений коллагеназы и времени диссоциации для определения наилучших методов сбора высокожизнеспособной, но при этом гетерогенной выборки высококачественных клеток. Использование данного протокола открывает возможности для дальнейших исследований, включая функциональный анализ инфильтрирующих иммунных клеток ex vivo при возникновении и прогрессировании опухолей молочной железы для определения оптимальных временных окон для проведения терапии.
Раскрытие информации
Авторы заявляют о наличии конфликта интересов.
Благодарности
Данные, представленные в настоящей работе, были частично получены с использованием оборудования Центра геномики (Genomics Core, RRID: SCR_012406) при поддержке Управления исследований (Office of Research) Университета штата Мичиган. & Инновации.
Эта работа была профинансирована грантом CA278818.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| RPMI | Gibco | 11875-093 | |
| ДНКаза | Invitrogen | 18047019 | |
| Коллагеназа D | Sigma | 11088866001 | |
| Коллагеназа II | Worthington Biochemical | LS004177 | |
| Фетальная бычья сыворотка | VWR | 97068-085 | |
| 10-кратный ПСБ (фосфатно-солевой буфер) | Gibco | 70011-044 | |
| Азид натрия | VWR | 0639-250G | |
| фильтр MACS Smart Strainer, 70 мкм µм | Miltenyi Biotec | 130-110-916 | |
| MACS Smart Strainer, 30 мкм µм | Miltenyi Biotec | 130-110-915 | |
| ЭДТА | Millipore | 324506-100ML | |
| 10-кратный буфер для лизиса эритроцитов | eBioscience/Invitrogen | 00-4300-54 | |
| Набор для фиксации и пермеабилизации Foxp3/факторов транскрипции | eBioscience/Invitrogen | 00-5523-00 | |
| Буфер для окрашивания Brilliant | Invitrogen | 00-4409-42 | |
| Набор для удаления погибших клеток Mojosort | Biolegend | 580157 | |
| Буфер Mojosort (5x) | Biolegend | 480017 | |
| Набор Quick-RNA Miniprep Plus Kit | Zymo Research | R1057 | |
| Набор для диссоциации опухолей, мышиные | Miltenyi Biotec | 130-096-730 | |
| PDGFR (рецептор фактора роста тромбоцитов)α PerCP-eFluor710 | Invitrogen | 46-1401-80 | |
| Epcam eF450 | Invitrogen | 48-5791-82 | |
| CD11c APC | Biolegend | 117310 | |
| CD11b AF700 | Invitrogen | 56-0112-82 | |
| Краситель для определения жизнеспособности Fixable Viability Dye eF780 | Invitrogen | 65-0865-14 | |
| B220/CD45R AF488 | Biolegend | 103225 | |
| CD3 PE-Cy7 | Invitrogen | 25-0031-82 | |
| CD49b PerCP-eFluor710 | Invitrogen | 46-5971-82 | |
| CD8a BV480 | Invitrogen | 414-0081-80 | |
| CD4 SB600 | Invitrogen | 63-0041-82 | |
| CD45 BV711 | Invitrogen | 407-0451-80 | |
| APC для FOXP3 | Invitrogen | 17-5773-82 | |
| Ly6G APC | Invitrogen | 17-5931-82 | |
| Ly6C PECy7 | Invitrogen | 25-5932-82 | |
| CD64 PerCP-eFluor710 | 46-0641-80 | ||
| TruStain | BioLegend | 101320 | |
| Набор реагентов 10x Genomics GEM-X Flex Gene Expression Reagent Kit | 10x Genomics | (https://www.10xgenomics.com/blog/answering-your-questions-about-single-cell-analysis-in607 clinical-ffpe-samples);1000781 | |
| Проточный цитометр Attune NxT | Thermo Fisher Scientific | Используется для сбора данных проточной цитометрии с красным, синим и фиолетовым лазерными каналами. | |
| FCS Express | Программное обеспечение De Novo | Используется для анализа данных проточной цитометрии. | |
| Набор для диссоциации опухолей Miltenyi | коммерческий набор для диссоциации опухоли | ||
| набор Miltenyi / протокол Miltenyi | коммерческий набор" или "контрольный набор | ||
| Фермент Liberase | коммерческая смесь термолизина и коллагеназы | ||
| Фиксация методом измельчения | коммерческий протокол диссоциации с предварительной фиксацией | ||
| Система Flex chemistry / Система Flex chemistry | метод химического анализа отдельных клеток с использованием зондов на фиксированной РНК | ||
| Seurat | (https://satijalab.org/seurat/) | инструменты кластеризации с открытым исходным кодом и коммерческие инструменты | |
| Cell Ranger | инструменты кластеризации с открытым исходным кодом и коммерческие инструменты | ||
| Loupe Cell Browser | инструменты кластеризации с открытым исходным кодом и коммерческие инструменты | ||
| EnrichR | https://maayanlab.cloud/Enrichr/) | инструменты анализа обогащения наборов генов и референсных атласов клеток | |
| Tabula Muris | https://tabula400 muris.sf.czbiohub.org/визуализации | инструменты анализа обогащения наборов генов и инструменты работы с референсными атласами клеток | |
| Tabula Sapiens | https://tabula-sapiens.sf.czbiohub.org/ | инструменты анализа обогащения наборов генов и эталонные атласы клеток | |
| Cellometer K2" инструмент и "акридин оранжевый / пропидиййодид (AOPI)" | автоматический счетчик клеток с окрашиванием жизнеспособности акридином-оранжевым/пропидий-иодидом (AO/PI) | ||
| салфетки Kimwipe | безворсовая лабораторная салфетка | ||
| STEMCELL Technologies | среда с градиентом плотности (например, среда на основе Ficoll или Percoll) | ||
| Ficoll/Percoll | скальпели с лезвиями №10 | ||
| два скальпеля №10 | |||
| Cellometer K2 + реагент AOPI | автоматический счетчик клеток с окрашиванием на жизнеспособность акридиновым оранжевым/пропидия йодидом (AO/PI) | ||
| STEMCELL Technologies | СТВОЛОВАЯ КЛЕТКА Технологии, www.stemcell.com, 2018 | ||
| Фиколл/Перколл | среда с градиентом плотности | ||
| 10 скальпелей | лезвие хирургического скальпеля | ||
| Набор для фиксации и пермеабилизации Foxp3/фактора транскрипции | коммерчески доступный раствор, позволяющий проводить ядерное окрашивание |
Ссылки
- Jacob JB, et al. Identification of actionable targets for breast cancer intervention using a diversity outbred mouse model. iScience. 2023;26(4):106320. doi:10.1016/j.isci.2023.106320.
- Jacob J, et al. Activity of DNA vaccines encoding self or heterologous HER-2/neu in HER-2 or neu transgenic mice. Cell Immunol. 2006;240(2):96–106.
- Radkevich-Brown O, Jacob J, Kershaw M, Wei WZ. Genetic regulation of the response to HER-2 DNA vaccination in human HER-2 transgenic mice. Cancer Res. 2009;69(1):212–8.
- Lee SH, et al. Activation function 1 of progesterone receptor is required for mammary development and regulation of RANKL during pregnancy. Sci Rep. 2022;12(1):12286. doi:10.1038/s41598-022-16289-x.
- Autengruber A, et al. Impact of enzymatic tissue disintegration on the level of surface molecule expression and immune cell function. Eur J Microbiol Immunol (Bp). 2012;2(2):112–20.
- Bondonese A, et al. Impact of enzymatic digestion on single cell suspension yield from peripheral human lung tissue. Cytometry A. 2023;103(10):777–85.
- Jankelow A, et al. Recent advancements in tissue dissociation techniques for cell manufacturing single-cell analysis and downstream processing. Stem Cells Transl Med. 2025;14(11):szaf055. doi:10.1093/stcltm/szaf055.
- Lombardo JA, et al. Microfluidic platform accelerates tissue processing into single cells for molecular analysis and primary culture models. Nat Commun. 2021;12(1):2858. doi:10.1038/s41467-021-23238-1.
- Sun H, Xu X, Deng C. Preparation of single epithelial cells suspension from mouse mammary glands. Bio Protoc. 2020;10(4):e3530. doi:10.21769/BioProtoc.3530.
- Rodriguez de la Fuente L, Law AMK, Gallego-Ortega D, Valdes-Mora F. Tumor dissociation of highly viable cell suspensions for single-cell omic analyses in mouse models of breast cancer. STAR Protoc. 2021;2(4):100841. doi:10.1016/j.xpro.2021.100841.
- Prater M, Shehata M, Watson CJ, Stingl J. Enzymatic dissociation, flow cytometric analysis, and culture of normal mouse mammary tissue. Methods Mol Biol. 2013;946:395–409.
- Burl RB, et al. Deconstructing adipogenesis induced by β3-adrenergic receptor activation with single-cell expression profiling. Cell Metab. 2018;28(2):300–9.e4.
- Rondini EA, et al. Single cell functional genomics reveals plasticity of subcutaneous white adipose tissue during early postnatal development. Mol Metab. 2021;53:101307. doi:10.1016/j.molmet.2021.101307.
- Sharifian Gh M, Norouzi F. Guidelines for an optimized differential centrifugation of cells. Biochem Biophys Rep. 2023;36:101585. doi:10.1016/j.bbrep.2023.101585.
- Pohlmann PR, Mayer IA, Mernaugh R. Resistance to trastuzumab in breast cancer. Clin Cancer Res. 2009;15(24):7479–91.
- Gajria D, Chandarlapaty S. HER2-amplified breast cancer: mechanisms of trastuzumab resistance and novel targeted therapies. Expert Rev Anticancer Ther. 2011;11(2):263–75.
- Swain SM, et al. Pertuzumab, trastuzumab, and docetaxel for HER2-positive metastatic breast cancer (CLEOPATRA): end-of-study results from a double-blind, randomised, placebo-controlled, phase 3 study. Lancet Oncol. 2020;21(4):519–30.
- Swain SM, Shastry M, Hamilton E. Targeting HER2-positive breast cancer: advances and future directions. Nat Rev Drug Discov. 2023;22(2):101–26.
- Boggio K, et al. Interleukin 12-mediated prevention of spontaneous mammary adenocarcinomas in two lines of HER-2/neu transgenic mice. J Exp Med. 1998;188(3):589–96.
- Gsell L, et al. Multi-cellular phenotypic dynamics during the progression of an immunocompetent breast cancer model. iScience. 2025;28(11):113808. doi:10.1016/j.isci.2025.113808.
- Kilroy G, et al. Isolation of murine adipose-derived stromal/stem cells for adipogenic differentiation or flow cytometry-based analysis. Methods Mol Biol. 2018;1773:137–46.
- Orr JS, Kennedy AJ, Hasty AH. Isolation of adipose tissue immune cells. J Vis Exp. 2013;(75):e50707. doi:10.3791/50707.
Перепечатки и разрешения
Эта статья была опубликована
Видео скоро будет доступно