В данной работе представлен протокол получения клонированных эмбрионов исчезающего вида оленей с использованием энуклеированных ооцитов крупного рогатого скота. Здесь мы подробно описываем методологию межвидового переноса ядер соматических клеток и использование ооцитов без блестящей оболочки в качестве цитопластов. Кроме того, детально обсуждаются полученные результаты.
Методическая статья
Межвидовой перенос ядер соматических клеток с использованием ооцитов быка (Bos taurus) без блестящей оболочки и фибробластов оленя (Mazama americana)
В этой статье
Краткое содержание
Аннотация
Репродуктивные биотехнологии, применяемые для животных, позволяют увеличивать популяции видов с высокой генетической ценностью. Кроме того, эти технологии способствуют сохранению, консервации и распространению генетического материала особей с превосходными характеристиками. Генетическое спасение отдельных особей привело к многочисленным исследованиям на домашних видах с целью экстраполяции полученных данных на другие популяции животных или конкретных особей. Одним из таких подходов является перенос ядер соматических клеток (SCNT), или клонирование, которое используется для получения эмбрионов с генетическим материалом, идентичным материалу существующего экземпляра. Одним из ограничений данного метода является ограниченная доступность ооцитов диких животных. В качестве альтернативы возник метод межвидового переноса ядер соматических клеток (iSCNT), при котором в качестве донора ядра используется соматическая клетка (кариопласт) клонируемого вида, которая вводится в энуклеированный ооцит (цитопласт), полученный от вида, принадлежащего к другому отряду или таксону. Такой подход позволяет получать жизнеспособные клонированные эмбрионы. В Бразилии обитают девять видов оленей, многие из которых находятся под угрозой исчезновения из-за бесконтрольной охоты, утраты среды обитания и других причин. Рыжий брокет (Mazama americana) — один из видов, страдающих от этих факторов. Таким образом, в данной работе представлена методика получения клонированных эмбрионов рыжего брокета с использованием метода iSCNT с целью создания банка эмбрионов для последующего переноса реципиентным самкам, что поможет обеспечить выживание данного вида.
Введение
Семейство Cervidae в настоящее время включает 55 видов копытных млекопитающих с истинными рогами — костными структурами, расположенными в верхней части черепа самцов, за исключением северного оленя (Rangifer tarandus), у которого рога есть у обоих полов1, и китайского водяного оленя (Hydropotes inermis), у которого рога отсутствуют у обоих полов2. Олени относятся к отряду Cetartiodactyla, в который также входят семейства антилоп-вилорогов, полорогих, свиней, пекари, верблюдов, тапиров, жирафов и бегемотов. В целом, олени представляют собой травоядных жвачных животных, которые обитают в самых разнообразных средах по всему земному шару, за исключением Антарктиды3.
В настоящее время в Бразилии признаны девять видов семейства Cervidae: Odocoileus virginianus (белохвостый олень), Blastocerus dichotomus (болотный олень), Ozotoceros bezoarticus (олень пампас), Mazama americana, Mazama rufa, Mazama jucunda, Mazama nana, Subulo gouazoubira и Passalites nemorivagus4.
Данная таксономия отражает результаты недавних молекулярных исследований, показавших, что род Mazama является полифилетическим5, что привело к признанию Subulo6 и Passalites7 отдельными валидными родами. Многие из этих неотропических оленевых все чаще подвергаются воздействию антропогенных факторов, включая утрату мест обитания, фрагментацию ландшафта и последующее снижение генетического разнообразия, связанное с изоляцией популяций8.
За последние 100 лет вспомогательные репродуктивные технологии были успешно внедрены сначала у лабораторных млекопитающих, а затем постепенно начали переноситься на дикие виды, имеющие высокий приоритет сохранения9. Следовательно, подавляющее большинство репродуктивных биотехнологий развивалось с использованием модели млекопитающих, и поэтому данная группа животных получила основное внимание исследователей. Ряд репродуктивных технологий был успешно адаптирован для млекопитающих, включая искусственное осеменение, перенос эмбрионов, экстракорпоральное оплодотворение, определение пола гамет и эмбрионов, а также криоконсервацию генетических ресурсов10. Однако одна методика в частности — перенос ядер соматических клеток (SCNT) — выделилась среди остальных благодаря своим результатам и потенциальному эффекту при применении у исчезающих видов11.
Среди доступных репродуктивных биотехнологий клонирование позволяет получать особей, генетически идентичных животному-донору. Основной стратегией клонирования является перенос ядра соматической клетки (SCNT), при которой ядро соматической клетки вводится в энуклеированный ооцит. Однако в контексте диких видов применение этого метода часто ограничено нехваткой доноров ооцитов и техническими трудностями, связанными с их извлечением12. Эти ограничения привели к разработке межвидового переноса ядер соматических клеток (iSCNT) как дополнительного подхода в программах по сохранению видов, при котором ооциты домашних животных используются в качестве реципиентных цитопластов для ядер, полученных от вымирающих видов (Рисунок 1). Жизнеспособность этого подхода была подтверждена успешным получением живого потомства от нескольких диких видов с использованием iSCNT13,14,15.
Для получения клонированных эмбрионов были предложены различные стратегии, зависящие от способа манипулирования ооцитами и донорскими клетками. При традиционном подходе из ооцитов с сохранной блестящей оболочкой удаляют ядро, после чего донорская клетка вводится в перивителлиновое пространство и сливается с ооцитом с помощью электрофузии16. Другим вариантом является прямое введение соматического ядра в ооцит, окруженный блестящей оболочкой, с использованием методов микроманипуляции, таких как микроинъекция17. Напротив, системы без блестящей оболочки (ZP-free) упрощают процедуру клонирования за счет исключения нескольких этапов микроманипуляции, так как энуклеация может быть выполнена с помощью тупоконечной пипетки без необходимости использования сложного оборудования18. В данном методе мы предлагаем использовать ооциты без блестящей оболочки в качестве цитопластов при iSCNT для получения клонированных эмбрионов с использованием цитопласта быка и кариопласта оленя.
Протокол
Взрослая самка красного брокетового оленя была изъята природоохранными органами в Гуарамиранге, Сеара, Бразилия (4°13'53.0'' S, 38°56'42.6'' W). Животное поступило мертвым в Лабораторию по сохранению неотропических оленевых (LACCERNE) Государственного университета Сеары (UECE), Форталеза, Бразилия. Результаты некропсии показали, что смерть наступила в результате множественных травматических повреждений, вызванных огнестрельным снарядом, который проник через левую дорсолатеральную область живота. Использование данного образца было разрешено Комитетом по этике экспериментов на животных Государственного университета Сеары (CEUA-UECE, номер протокола 450620/2022) и Бразильским институтом окружающей среды и возобновляемых природных ресурсов (IBAMA, номер протокола 02027.014734/99-34). Кроме того, использование яичников крупного рогатого скота было одобрено CEUA/UECE (номер протокола 31032.004671/2024-81). Подробные сведения о всех использованных реагентах и оборудовании приведены в Таблице материалов. Данные, подтверждающие это исследование, доступны в Zenodo под DOI 10.5281/zenodo.22129414.
1. Растворы и питательные среды
ПРИМЕЧАНИЕ: Все операции по фильтрации следует проводить через стерильный фильтр 0.22 µm, а фильтрат хранить при 4 °C не более одной недели. Стоковый раствор хранить при -20 °C.
- Транспортирующая среда: добавьте 8,1 g NaCl и 0,045 g пентабиотика, затем доведите объем до 900 mL дистиллированной водой.
- Фосфатно-солевой буфер (PBS): добавьте 0,4 g NaCl, 0,01 g KCl, 0,077 g NaH2PO4 и 0,01 g KH2PO4, затем доведите объем до 50 mL ультрачистой водой.
- Среда для культивирования клеток: модифицированная среда Игла в модификации Дульбекко (DMEM) с добавлением 10% (v/v) эмбриональной бычьей сыворотки (FBS) и 1,0% (v/v) раствора пенициллина, стрептомицина и амфотерицина B (ATB).
- Раствор для криоконсервации фибробластов: DMEM с добавлением 10% (v/v) FBS, 10% (v/v) диметилсульфоксида (DMSO) и 2,0% (v/v) раствора ATB.
- Трипсин-ЭДТА (0,25%).
- Среда для манипуляций: среда Тайрода с HEPES-буфером, содержащая альбумин, лактат и пируват (H-TALP). Используйте эту среду для всех процедур, выполняемых вне инкубатора. Для приготовления 1 L добавьте 6,763 g NaCl, 0,239 g KCl, 0,294 g CaCl2·2H2O, 0,048 g MgCl2, 0,168 g NaHCO3 и 3,575 g HEPES в 981,86 mL стерильной воды, протестированной на эмбриотоксичность. Перемешайте и добавьте 10 mL антибиотика-антимикотика, 1 mL фенолового красного, 1,44 mL лактата натрия, 1 mL стокового раствора пирувата натрия (100 mM) и 3 g бычьего сывороточного альбумина (BSA). Доведите осмоляльность до 280 mOsm, а pH до диапазона 7,2–7,4. Разлейте по аликвотам по 50 mL и храните при 4 °C в течение одного месяца.
- Среда для созревания in vitro: среда 199 (TCM-199) с добавлением 10% (v/v) FBS, 10 ng/mL эпидермального фактора роста (EGF), 1 mM пирувата натрия, 100 µM цистеамина, 10 µg/mL фолликулостимулирующего гормона (FSH), 1 µg/mL эстрадиола и 1% (v/v) ATB. Доведите pH до 7,2–7,4.
- Раствор гиалуронидазы (конечная концентрация: 1 mg/mL): растворите 10 mg гиалуронидазы в 10 mL H-TALP. Подготовьте аликвоты по 200 µL в пробирках объемом 1,5 mL, готовые к использованию.
- Раствор проназы (конечная концентрация: 1,5 mg/mL): растворите 15 mg проназы в 10 mL H-TALP. Подготовьте аликвоты по 200 µL в пробирках объемом 1,5 mL, готовые к использованию.
- Демекольцин (конечная концентрация: 0,4 µg/mL): растворите 5 mg демекольцина (DMC) в 125 µL DMSO и подготовьте аликвоты по 5 µL (стоковый раствор). Заморозьте аликвоты до использования. Разведите их, смешав 2 µL стокового раствора с 1998 µL TCM для получения рабочего раствора. Перед использованием добавьте 5 µL рабочего раствора к 495 µL синтетической жидкости яйцевода (SOF).
- Hoechst (конечная концентрация: 10 µg/mL): растворите Hoechst 33342 в H-TALP до концентрации 1 mg/mL. Подготовьте аликвоты по 5 µL и разведения 1:100 в культуральной среде SOF.
ПРЕДОСТЕРЕЖЕНИЕ: Hoechst 33342, используемый для визуализации ядерной ДНК под УФ-светом, является интеркалирующим агентом и сильным мутагеном. Работайте с ним, используя соответствующие средства индивидуальной защиты. - Фитогемагглютинин (конечная концентрация: 1 mg/mL): растворите 5 mg фитогемагглютинина (PHA) в 500 µL H-TALP. Подготовьте аликвоты по 10 µL в пробирках объемом 200 µL. Перед использованием добавьте 90 µL H-TALP.
- Среды для слияния клеток: 0,3 M маннитола, 0,1 mM MgSO4, 0,05 mM CaCl2, 0,5 mM HEPES и 1 mg/mL поливинилового спирта (PVA) в ультрачистой воде. Используйте в день приготовления.
- Иономицин (конечная концентрация: 5 µM): добавьте 1 mL DMSO во флакон с иономицином (1 mg/флакон). Добавьте 1,67 mL TCM-199. Заморозьте аликвоты по 10 µL в пробирках объемом 1,5 mL при -20 °C. Перед использованием добавьте 990 µL H-TALP к содержимому каждой пробирки объемом 1,5 mL. Беречь от света.
- 6-диметиламинопурин (конечная концентрация: 2 mM): растворите 10 mg 6-диметиламинопурина (6-DMAP). Заморозьте аликвоты по 50 µL в пробирках объемом 1,5 mL при -20 °C. Перед использованием добавьте 950 µL SOF к содержимому каждой пробирки объемом 1,5 mL.
- Среда для культивирования эмбрионов: 0,2 mM L-глутамина, 0,2 mM пирувата натрия, 2% незаменимых аминокислот Basal Medium Eagle (BME), 1% незаменимых аминокислот MEM 100×, 1,0% (v/v) раствора ATB, 2,77 mM мио-инозитола, 2,5% (v/v) FBS, 10 µL/mL ITS (смесь инсулина, человеческого трансферрина и селенита натрия) и 3 g/L BSA.
2. Сбор и обработка образца ткани донора
- Вымойте и выбрейте поверхность ушной раковины самки-донора с помощью мыла и воды, затем продезинфицируйте эту область спиртом (70%).
- С помощью скальпеля удалите небольшой образец ткани уха (1 × 2 cm), поместите его в раствор PBS, содержащий 4% ATB, и транспортируйте в лабораторию при температуре 4 °C.
- Разрежьте биоптат на мелкие фрагменты скальпелем и поместите их в чашку Петри диаметром 35 mm, заполненную питательной средой. Культивируйте при 38.5 °C в условиях насыщенной влажности и 5% CO₂.
- Для предотвращения контаминации заменяйте питательную среду каждые 48 h до достижения клетками конфлюэнтности.
- Удалите питательную среду из конфлюэнтной чашки и добавьте в чашку Петри 35 mm 1 mL 0.25% трипсина-ЭДТА на 2 min.
- Для инактивации трипсина добавьте 2 mL питательной среды для культур клеток. Перенесите суспензию клеток в пробирку объемом 15 mL и центрифугируйте при 200 x g в течение 10 min при комнатной температуре (≈ 25 °C).
- Удалите супернатант и ресуспендируйте клеточный осадок в 10 mL питательной среды. Проводите пассаж культуры фибробластов каждые 5 days.
- Криоконсервируйте фибробласты, ресуспендировав клеточный осадок в 1 mL раствора для криоконсервации. Перенесите суспензию клеток в криопробирки, поместите их при -80 °C в контейнер для контролируемого замораживания на 18 h, а затем перенесите в резервуар с жидким азотом (-196 °C) до использования. После криоконсервации фибробластов манипуляции с клетками можно приостановить и возобновить только в момент синхронизации клеточного цикла.
- Разморозьте и культивируйте фибробласты за 1-2 weeks до их использования для iSCNT.
3. Синхронизация клеточного цикла
- Синхронизируйте клеточный цикл путем достижения конфлюэнтности в фазе G0/G1.
- Удалите культуральную среду из конфлюэнтной чашки и добавьте 1 mL 0,25% раствора trypsin-EDTA в чашку Петри диаметром 35 мм на 2 min в CO₂-инкубаторе при 38,5 °C. Добавьте 2 mL культуральной среды для инактивации трипсина.
- Перенесите клеточную суспензию в пробирку объемом 15 mL и центрифугируйте при 200 x g в течение 10 min.
- Удалите супернатант и ресуспендируйте клеточный осадок в 1-3 mL культуральной среды для iSCNT.
4. Сбор ооцитов
- Сразу после убоя соберите яичники телок или коров и транспортируйте их в лабораторию в термосе с транспортной средой, поддерживая температуру 25-30 °C.
- Дважды промойте яичники культуральной средой и поместите их в стакан с водой на водяной бане при температуре 38.5 °C.
- Аспирируйте фолликулярную жидкость из фолликулов диаметром 2-8 mm, используя иглу 18-го калибра, присоединенную к шприцу объемом 10 mL со средой H-TALP.
- Перенесите аспирированную фолликулярную жидкость в коническую пробирку объемом 50-mL и выдержите ее не менее 15 min на водяной бане при температуре 38.5 °C.
5. Созревание и денудация ооцитов
- Через 15 мин осторожно перенесите весь осадок с помощью пластической пипетки Пастера в чашку Петри (100 × 15 мм).
- С помощью стереомикроскопа отберите кумулюсно-ооцитарные комплексы (КОК), имеющие не менее трех компактных слоев кумулюсных клеток и соответствующие I–III степеням (Таблица 1)19.
- Промойте КОК трижды в половине объема среды H-TALP, а затем дважды в среде для созревания in vitro.
- Перенесите по 20–25 КОК в каждую каплю среды для созревания in vitro объемом 100 µL, покрытую минеральным маслом. Инкубируйте их при 38.5 °C в атмосфере с 5% CO₂ и при насыщенной влажности в течение 20–22 ч.
- Удалите клетки из кластера КОК путем аккуратного пипетирования в 200 µL раствора гиалуронидазы в течение 2 мин.
- Промойте ооциты от кумулюсных клеток в 2 mL среды H-TALP.
- Под стереомикроскопом отберите для последующих этапов ооциты с экструдированным первым полярным тельцем (метафаза II — MII).
6. Удаление блестящей оболочки, энуклеация и реконструкция ооцитов без блестящей оболочки
- Инкубируйте ооциты стадии MII в капле раствора проназы объемом 100 µL при 38.5 °C в течение 1-2 мин. Наблюдайте под стереомикроскопом до тех пор, пока zona pellucida не начнет истончаться.
- Немедленно извлеките ооциты и перенесите их в культуральную среду, дополненную 20% FBS, для инактивации проназы.
- Инкубируйте ооциты без zona pellucida в среде SOF, содержащей 0.4 µg/mL демеколцина, в течение 20 мин для индуцирования цитоплазматического выпячивания, содержащего ДНК, с последующей второй 20-минутной инкубацией в той же среде, дополненной 10 µg/mL Hoechst.
- Перенесите ооциты без zona pellucida в капли H-TALP и проведите энуклеацию с помощью микроманипуляторов, установленных на инвертированном микроскопе.
- Поместите ооцит рядом с удерживающей пипеткой.
- Поворачивайте ооцит до тех пор, пока выпячивание не окажется в положении «на 3 часа», и аспирируйте выпячивание вместе с 5-10% цитоплазмы, используя инъекционную пипетку с тупым концом диаметром 25 µm.
- Подтвердите успешную энуклеацию, осмотрев аспирированную цитоплазму под ультрафиолетовым светом (Рисунок 2).
ПРЕДОСТЕРЕЖЕНИЕ: Воздействие красителей для ДНК и ультрафиолетового излучения на ооциты повреждает генетический материал и вызывает окислительный стресс. Минимизируйте время воздействия.
7. Слияние клеток
- Соберите камеру для слияния под стереомикроскопом и заполните ее 2 mL среды для слияния при pH 7.
- В чашке Петри диаметром 60 mm prepared пять капель H-TALP по 100 µL и одну каплю 30 µL, затем добавьте 50 µL PHA.
- Добавьте 5 µL фибробластов в каплю H-TALP объемом 30 µL, выберите однородные рефрактерные клетки и перенесите их в каплю H-TALP объемом 100 µL.
- Перенесите энуклеированные ооциты в каплю H-TALP объемом 100 µL.
- Поместите ооцит в каплю PHA на 4 s, затем прижмите его к клетке и убедитесь, что они скрепились. После этого перенесите комплекс в чистую каплю TALP-H.
- После того как ооцит и клетка скрепились, перенесите их на планшет, содержащий 2 mL среды для слияния, чтобы они осели. Затем поместите комплекс в камеру для слияния между электродами, расположив клетку на «6 или 12 часов».
ПРЕДОСТЕРЕЖЕНИЕ: Буферы для активации, используемые при электрослиянии, содержат иономицин, который нарушает клеточный гомеостаз кальция. Электрические поля высокого напряжения представляют риск поражения электрическим током или возникновения дуги, если оборудование влажное или используется неправильно. - Проведите слияние с использованием микрокамеры для слияния с зазором между электродами 0.2 mm. С помощью электропоратора подайте одну серию импульсов, состоящую из двух однонаправленных импульсов постоянного тока при 0.72 kV/cm, длительностью 30 µs каждый, с интервалом 0.1 s между импульсами.
- После подачи импульса перенесите каждую пару «ооцит-клетка» индивидуально в микрокапли SOF объемом 5 µL с добавлением 2.5% FBS и культивируйте их при 38.5 °C в атмосфере 5% CO₂.
- Оцените слияние каждой пары через 30 min под стереомикроскопом.
- Структуры, которые не слились, подвергните второму раунду слияния.
- Рассматривайте слившиеся комплексы как реконструированные эмбрионы без блестящей оболочки и инкубируйте их в течение 2 h до активации (время репрограммирования).
8. Активация ооцитов и культивирование эмбрионов
- Инкубируйте реконструированные структуры в каплях по 100 µL среды H-TALP, содержащей 5 µM иономицина, в течение 4 мин.
- Промойте реконструированные структуры четырьмя каплями среды H-TALP по 100 µL.
- Инкубируйте реконструированные структуры в каплях по 100 µL среды SOF, содержащей 2 mM 6-DMAP, в течение 3 ч.
- Промойте реконструированные структуры четырьмя каплями среды SOF по 100 µL.
- Подготовьте микролуночные планшеты, используя нагретый стеклянный капилляр, слегка прижимая его к дну чашки Петри размером 35 × 10 mm. Сделайте от 20 до 25 микролунок диаметром 500 µm и глубиной 250 µm20.
- Поместите реконструированные эмбрионы по отдельности в лунки модифицированного микропланшета, залейте их 100 µL среды SOF и в конце покройте 3 mL минерального масла. Поместите микропланшеты в трехгазовый инкубатор с составом газа 5% CO₂, 5% O₂ и 90% N₂ на 7 дней.
Результаты
Результаты анализировали с помощью программного обеспечения R (v.4.5.2). Показатели расщепления и формирования бластоцист сравнивали между парами (олень/КРС против КРС/КРС) с использованием точного критерия Фишера. Было проведено десять повторностей: четыре для пары олень/КРС и шесть для пары КРС/КРС. Кроме того, для всех анализов уровень значимости был установлен на отметке 5%.
В ходе анализа в качестве реципиентов цитопластов были использованы 472 ооцита быка, полученные с местной бойни. Однако после созревания in vitro и последующего электрослияния 73 структуры не слились и были исключены из дальнейших этапов, в результате чего было получено 399 успешно слившихся структур кариопласт/цитопласт. Из этого общего количества были использованы следующие пары (кариопласт/цитопласт): четыре повторности олень/КРС (n = 175) и шесть повторностей КРС/КРС (n = 224) (Таблица 2).
Для оценки влияния iSCNT реконструированные эмбрионы без блестящей оболочки культивировали в микролунках до 7-го дня. Репрезентативные микрофотографии морулы и бластоцисты без блестящей оболочки представлены на Рисунке 3.
Таблица 2 представляет показатели дробления и частоту образования бластоцист, полученные в данном эксперименте. Частота дробления не имела значимых различий (P = 0.74) между группами (пары олень/КРС и КРС/КРС). С другой стороны, в отношении частоты образования бластоцист наблюдалось статистическое различие (P=0.02), при этом более высокий процент был отмечен в группе внутривидового клонирования. Однако важно отметить ограничение статистической мощности для этого типа экспериментов, в которых число межвидовых клонов обычно невелико.
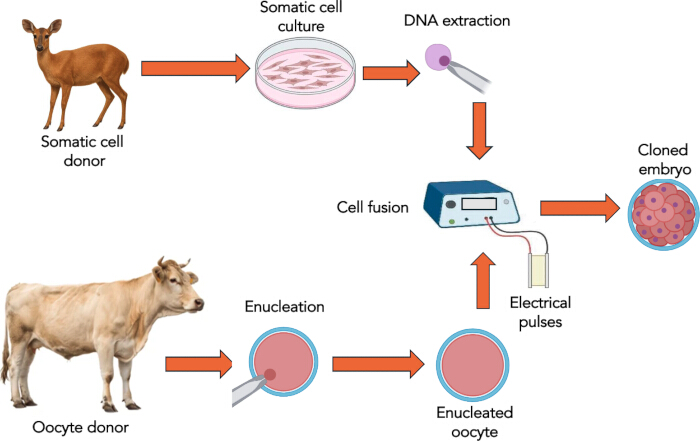
Рисунок 1: Схематические этапы межвидового переноса ядер соматических клеток. В качестве доноров цитопластов используются коровы, а в качестве доноров кариопластов — олени. После получения клонированного эмбриона его можно перенести реципиентам (самкам) или криоконсервировать для последующего переноса. Нажмите здесь, чтобы просмотреть этот рисунок в большем размере.
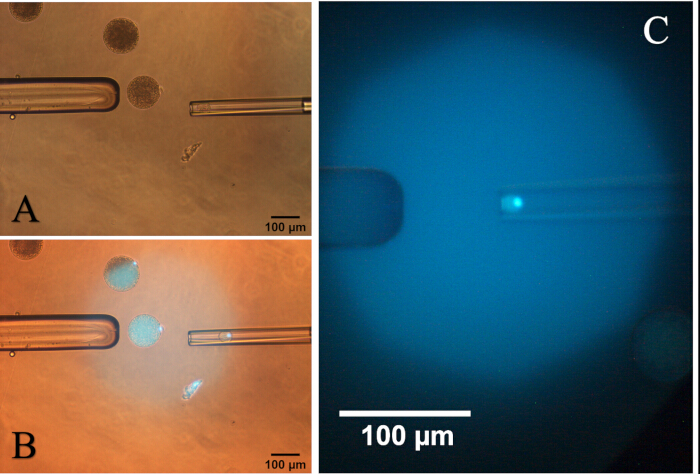
Рисунок 2: Фотомикрография активированного ооцита с выпячиванием цитоплазмы. (A) Поворот ооцита так, чтобы выпячивание находилось на положении «три часа». (B) Аспирация выпячивания с 5-10% цитоплазмы при воздействии ультрафиолетового излучения. (C) Цитоплазма и ее выпячивание в аспирационной пипетке под воздействием ультрафиолетового излучения. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
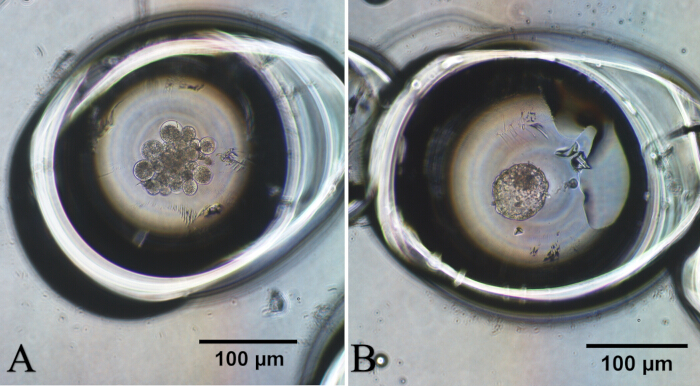
Рисунок 3: Фотомикрография эмбрионов оленя, полученных методом межвидового переноса ядер соматических клеток. (A) Клонированный эмбрион на стадии морулы. (B) Клонированный эмбрион на стадии бластоцисты. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
| Степень (или Класс) | Количество кумулюсных слоев | Экспансия кумулюса |
| I | > 3 | Сплошная кучевая облачность с несколькими компактными и слегка рыхлыми ячеистыми слоями |
| II | 2 - 3 | Незначительное расширение внешних клеточных слоев |
| III | 1 | Частичное покрытие кумулюсными клетками и рыхлые клеточные слои |
| внутривенно | 0 | Отсутствие кумулюсов |
Таблица 1: Классификация бычьих ооцитов, предназначенных для последующей энуклеации и использования в качестве цитопластов при межвидовом переносе ядер соматических клеток (адаптировано из Aguila et al.)19.
| Группы (кариопласты/цитопласты) | Количество повторностей | Количество реконструированных эмбрионов | Кол-во расщепленных (%) | Кол-во бластоцист (%) |
| Олени/крупный рогатый скот | 4 | 175 | 122 (69,7)a | 8 (4,6)a |
| Крупный рогатый скот | 6 | 224 | 160 (71,4)a | 24 (10,7)b |
| Разные буквы в одном и том же столбце указывают на статистически значимое различие. | ||||
| Скорость расщепления: P = 0,74 | ||||
| Доля бластоцист: P = 0,02 | ||||
Таблица 2: Развитие in vitro клонированных эмбрионов красного брокиневого оленя с использованием бычьих цитопластов. Было проведено десять повторностей: четыре пары олень/КРС и шесть пар КРС/КРС. Показатели дробления и образования бластоцист рассчитывались с использованием количества реконструированных эмбрионов в качестве знаменателя.
Обсуждение
Уже хорошо задокументировано, что геном исчезающих видов может быть перепрограммирован с использованием ооцитов сельскохозяйственных животных, особенно крупного рогатого скота и свиней, которые являются основным источником цитопластов21. Одним из величайших достижений в области iSCNT стало клонирование пиренейского козла (Capra pyrenaica pyrenaica) — подвида, который исчез после смерти последней известной особи. Реконструированные эмбрионы были получены путем слияния эпителиальных клеток козла с ооцитами домашней козы (Capra hircus). Авторам удалось добиться рождения самки без внешних морфологических аномалий. Однако у потомства наблюдалась тяжелая дыхательная недостаточность, и оно погибло через несколько минут после рождения22.
Одним из наиболее подходящих кандидатов для «воскрешения» является шерстистый мамонт (Mammuthus primigenius). Для возможности клонирования принципиально важно наличие жизнеспособной ткани с идентифицируемыми ядрами, что труднодостижимо для вида, исчезнувшего примерно 10 000 лет назад. Тем не менее, тела мамонтов, обнаруженные в слое мерзлой земли, отвечают минимальным требованиям для iSCNT23. Однако, возможно, более подходящими кандидатами для применения данной методики являются виды, находящиеся под угрозой исчезновения.
Скорость сегментации, наблюдавшаяся в нашем исследовании, показала, что на активацию и первое эмбриональное деление межвидовое сочетание ядра и цитоплазмы не повлияло. На этапе реконструкции манипуляции и слияние структур (кариопласт/цитопласт) проходили с одинаковой технической легкостью в обеих группах, что свидетельствует о структурной совместимости между видами. Что касается доли бластоцист, результаты позволяют предположить, что, хотя реконструкция и ранняя активация эмбриона при iSCNT не являются лимитирующими факторами, существует ядерно-цитоплазматическая несовместимость, которая проявляется на более поздних стадиях развития; вероятно, это связано с неполным эпигенетическим репрограммированием или материнско-зиготическим переходом, влияющим на способность гибридного эмбриона достичь стадии бластоцисты24. Эффективность iSCNT, как правило, выше, когда кариопласты и цитопласты получены от филогенетически близких видов, поскольку естественное появление жизнеспособного гибридного потомства указывает на определенную степень нуклеоцитоплазматической совместимости между двумя видами23. Таким образом, было уже показано, что SCNT между подвидами позволяет получить здоровое потомство. Авторы использовали цитопласт суки и фибробласт волка, перенесли эмбрионы 12 самкам, что привело к рождению одного потомка25.
Применение iSCNT сталкивается с серьезным «ограничением возможностей» в плане биологической и развивающей эффективности, которая резко снижается по мере увеличения эволюционной дистанции между донорским ядром и реципиентным ооцитом. В то время как метод оказывается успешным для близкородственных видов (например, домашнего крупного рогатого скота и гаура)26, он регулярно не позволяет получить жизнеспособное потомство или стабильные эмбриональные клеточные линии при попытках пересечь более отдаленные таксономические границы.
Клонирование является важным инструментом для программ селекции и сохранения животных, так как оно позволяет размножать генетически ценных особей, способствует созданию трансгенных животных и содействует долгосрочному сохранению ценных генетических ресурсов через генные банки. Тем не менее, внедрение клонирования в программы разведения сельскохозяйственных животных все еще ограничено низким числом родившихся живых животных по сравнению с количеством перенесенных эмбрионов18. Современные подходы к получению клонированных эмбрионов обычно разделяют на две категории: традиционное клонирование и клонирование без блестящей оболочки (ZP-free cloning). При традиционном подходе требуется использование микроманипулятора для удаления ядра ооцита и введения донорской соматической клетки в цитопласт реципиента26. В отличие от традиционного клонирования, метод ZP-free выполняется без микроманипуляций27. Результаты, полученные в нашем исследовании, были очень схожи с результатами, подтвержденными с использованием iSCNT, как по скорости дробления, так и по выходу бластоцист20,21.
Наконец, учитывая различные этапы данной процедуры, важно выделить критические моменты и практические способы решения возникающих проблем. Что касается удаления ZP, клонирование без ZP обладает несколькими преимуществами, включая простоту выполнения, экономическую эффективность и сравнительно более высокий процент живых рождений на один перенесенный эмбрион28. Подтверждение полного удаления ядра (энуклеации) без нанесения фатальных повреждений цитопласту определяет, сможет ли реконструированная структура успешно поддерживать развитие клонированного эмбриона. Хотя известно, что воздействие УФ-излучения оказывает вредный эффект29, оно регулярно используется в большинстве лабораторий по клонированию. Наконец, при культивировании эмбрионов без ZP отсутствует защитная внешняя гликопротеиновая оболочка, что приводит к серьезным проблемам, таким как высокая физическая хрупкость при манипуляциях и диссоциация бластомеров30.
В заключение следует отметить, что результаты, полученные в нашем исследовании, должны интерпретироваться как предварительное доказательство технической осуществимости протокола iSCNT для комбинации олень/крупный рогатый скот, а не как окончательное подтверждение его продуктивной эффективности. Таким образом, для подтверждения этих данных необходимы дополнительные исследования с большим количеством повторностей.
Раскрытие информации
Авторы заявляют об отсутствии конфликта интересов.
Благодарности
Данная работа была поддержана Фондом поддержки научно-технологического развития штата Сеара (FUNCAP, Форталеза, Бразилия, грант № 11212233/2022) и Национальными институтами науки и технологий (INCT/CNPq, грант № 406866/2022-8).
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| Игла для аспирации (18G) | ЛАБОРАТОРНЫЙ ИМПОРТ | 353601 | Одноразовая игла, короткая |
| 6-диметиламинопурин (6-DMAP) | Sigma-Aldrich | D2629 | |
| Антибиотик–антимикотическое средство | Gibco, Thermo Fisher Scientific | 15240062 | |
| Бычий сывороточный альбумин | Sigma-Aldrich | A9647 | |
| Дигидрат хлорида кальция (CaCl2·2H2O)·2H2O) | Sigma-Aldrich | C7902 | |
| Флакон для культивирования клеток T-25 | Corning | 430639 | |
| Микроинъектор CellTram | Eppendorf | 5196 000.021 | |
| Центрифугирование | Eppendorf | 5702 | Используется для центрифугирования клеток при 200 × центрифугируйте в течение 10 минут для осаждения и промывки образцов перед процедурами переноса ядер. |
| Центрифужные пробирки (50 мл) | Corning | CLS430291 | |
| Криопробирки (1,8 мл) | Nunc / Thermo Fisher | 368632 | |
| Цистеамин | Sigma-Aldrich | M9768 | |
| Демэколцин | Sigma-Aldrich | D1925 | |
| Дистиллированная вода. | _ | _ | |
| ДМСО (замораживание клеток) | Sigma-Aldrich | D2650 | 10%-ный криопротектор для криоконсервации донорских клеток |
| модифицированная среда Игла в модификации Дульбеко (DMEM) | Gibco / Thermo Fisher | 11995065 | |
| Пипетка для энуклеации (20–25 µm Идентификатор) | Narishige | GD-1 | |
| Эпидермальный фактор роста (EGF) | Sigma-Aldrich | E4127 | |
| Незаменимые аминокислоты BME | Sigma-Aldrich | M5550 | |
| Эстрадиол | Sigma-Aldrich | E8875 | |
| EVE Инкубатор (5% O2)2, 5% CO22, 90% N2) | медицинский WTA | REF. 23578 | |
| Фетальная бычья сыворотка (ФБС) | Bio Nutrientes, Induslab | FEN-500 | |
| ФСГ (фоллитропин-V) | Vetoquinol | Q-7090-124 | |
| Стеклянный капилляр с нитью | Narishige | GD-1 | Этот стеклянный капилляр используется для создания микролунок в чашке Петри |
| Нагревательная плитка | медицинское обслуживание WTA | 17656 | |
| HEPES | Sigma-Aldrich | H6147 | |
| Hoechst 33342 (краситель для ДНК) | Sigma-Aldrich | B2261 | |
| Удерживающая пипетка (120 μm ОП) | Narishige | GD-1 | |
| Гиалуронидаза | Sigma-Aldrich | H4272 | |
| Инвертированный микроскоп ECLIPSE | Nikon | TE2000-U | |
| Иономицин (ионофор кальция A23187) | Sigma-Aldrich | I0634 | |
| Внутренний транскрибируемый спейсер (ITS) | Sigma-Aldrich | I2771 | |
| KCl | Sigma-Aldrich | P5405 | |
| KH2PO4 | Sigma-Aldrich | P5655 | |
| Ламинарный шкаф Isocide | Esco | 2120765 | Ламинарный шкаф, обеспечивающий стерильные условия работы при проведении процедур по культивированию эмбрионов и клеток. |
| L-глутамин | Sigma-Aldrich | G8540 | |
| Сосуд Дьюара для хранения жидкого азота | Nitroagro | Различный | |
| Сульфат магния (MgSO4) | Sigma-Aldrich | M2643 | |
| Среда для слияния с маннитолом (0,3 М) | Sigma-Aldrich | M9546 | |
| MgCl2 | Sigma-Aldrich | M8266 | |
| Microforge MF-900 | Narishige | MF-900 | |
| Система микроманипулирования | Narishige | MM-89 / TransferMan 4r | |
| Вытягиватель микропипеток | Narishige | Narishige PC-100 | |
| Микропипетки (10 µL, 20 µL, 100 µL, 200 µL, 1000 µL) | Eppendorf | Серия Research Plus | |
| Камера для микрослияния | Eppendorf | 12816532 | специальный аксессуар с зазором 0,2 мм, предназначенный для электропорации |
| Минеральное масло (протестированное на эмбрионах) | Sigma-Aldrich | M8410 | |
| Мультипоратор | Eppendorf | 4308 000.015 | |
| Мио-инозитол | Sigma-Aldrich | I7508 | |
| NaCl | Sigma-Aldrich | S5886 | |
| NaH2PO4 | Sigma-Aldrich | S5011 | |
| NaHCO3 | Sigma-Aldrich | S4219 | |
| Незаменимые аминокислоты MEM | Sigma-Aldrich | M7145 | |
| Пентабиотик | Zoetis | 10005048 | флакон 2 400 000 МЕ. |
| Чашка Петри 35 мм (протестированная на эмбрионах) | Corning | 430165 | |
| Чашка Петри 60 мм (протестированная на эмбрионах) | Corning | 430196 | |
| Феноловый красный | Sigma-Aldrich | P0290 | |
| Наконечники для дозаторов 1000 µL | Eppendorf | 9401030 | |
| Наконечники для дозаторов 200 µL | Eppendorf | 94052300 | |
| Наконечники для дозатора без фильтра (0,5–10 µL) | Axygen | T-300 | |
| Поливиниловый спирт (ПВС) | Sigma-Aldrich | P8136 | |
| Проназа (протеаза из S. griseus) | Sigma-Aldrich | P8811 | |
| Лактат натрия | Sigma-Aldrich | L7900 | |
| Пируват натрия | Sigma-Aldrich | P4562 | |
| Стереомикроскоп | Nikon | SMZ800 | |
| Стерильная вода для тестирования эмбрионов | Sigma-Aldrich | W3500 | |
| Стерильный фильтр (0.22 μm) | Corning | 431154 | |
| TCM-199 | Sigma-Aldrich | M2154 | |
| Трехгазовый инкубатор (5% O2)2, 5% CO₂2, 90% N2) | медицинское обслуживание WTA | ССЫЛКА 23578 | |
| Трипсин-ЭДТА (0,25%) | Gibco / Thermo Fisher | 25200056 | |
| Сверхчистая вáter | Sigma-Aldrich | W3500 | |
| УФ-лампа / модуль флуоресценции | Leica / Olympus | Различно | Кратковременное УФ-облучение для проверки энуклеации; минимизация фототоксичности |
Ссылки
- Flagstad O, Roed KH. Refugial origins of reindeer (Rangifer tarandus.) inferred from mitochondrial DNA sequences. Evolution. 2003;57(3):658-70.
- Schilling AM, Rössner GE. The (sleeping) beauty in the beast—a review on the water deer, Hydropotes inermis. Hystrix It J Mamm. 2017;28(2):121-33.
- Newman BA, D’Angelo GJ. A review of cervidae visual ecology. Animals (Basel). 2024;14(3):420.
- Rola LD. Integrating cryobiology and conservation: the role of biobanks for neotropical deer in Latin America. Biopreserv Biobank. 2025;23(6):575-88.
- Duarte JMB, González S, Maldonado JE. The surprising evolutionary history of South American deer. Mol Phylogenet Evol. 2008;49:17-22.
- Bernegossi AM, et al. Resurrection of the genus Subulo. for the gray brocket deer, with designation of a neotype. J Mammal. 2023;104(3):619-33.
- Morales-Donoso JA, et al. Revalidation of Passalites Gloger, 1841 for the Amazon brown brocket deer P. nemorivagus. (Cuvier, 1817) (Mammalia, Artiodactyla, Cervidae). ZooKeys. 2023;1167:241-64.
- El Bizri HR. Exposing illegal hunting and wildlife depletion in the world's largest tropical country through social media data. Conserv Biol. 2024;38:e14334.
- Pasquariello R, et al. Use of assisted reproductive technologies (ARTs) to shorten the generational interval in ruminants: current status and perspectives. Theriogenology. 2024;225(1):16-32.
- Herrick JR. Assisted reproductive technologies for endangered species conservation: developing sophisticated protocols with limited access to animals with unique reproductive mechanisms. Biol Reprod. 2019;100:1158-70.
- Iqbal A, et al. Conservation of endangered species through somatic cell nuclear transfer (SCNT). Conserv Genet Resour. 2021;13:349-57.
- Hwang I. Successful cloning of coyotes through interspecies somatic cell nuclear transfer (iSCNT) using domestic dog oocytes. Biol Reprod. 2012;87(1):56.
- Loi P, et al. Genetic rescue of an endangered mammal by cross-species nuclear transfer using post-mortem somatic cells. Nat Biotechnol. 2001;19:962-4.
- Gómez MC, et al. Birth of African wildcat cloned kittens born from domestic cats. Cloning Stem Cells. 2004;6:247-58.
- Wani NA, Vettical BS, Hong SB. First cloned Bactrian camel (Camelus bactrianus.) calf produced by interspecies somatic cell nuclear transfer: a step towards preserving the critically endangered wild Bactrian camels. PLoS One. 2017;12:e0177800.
- Ross PJ, Cibelli JB. Bovine somatic cell nuclear transfer. Methods Mol Biol. 2010;636:155-77.
- Choi YH, Velez IC, Macias-Garcia B, Hinrichs K. Timing factors affecting blastocyst development in equine somatic cell nuclear transfer. Cell Reprogram. 2015;17:124-30.
- Herrid H, Van Eenennaam H. Application of zona-free cloning technologies to livestock breeding programmes. Anim Reprod Sci. 2026;287:108107.
- Aguila L, et al. Oocyte selection for in vitro embryo production in bovine species: noninvasive approaches for new challenges of oocyte competence. Animals. 2020;10:2196.
- Vajta G, et al. New method for culture of zona-included or zona-free embryos: the well of the well (WOW) system. Mol Reprod Dev. 2000;55(3):256-64.
- Lagutina I, Fulka H, Lazzari G, Galli C. Interspecies somatic cell nuclear transfer: advancements and problems. Cell Reprogram. 2013;15:374-84.
- Folch J, et al. First birth of an animal from an extinct subspecies (Capra pyrenaica pyrenaica.) by cloning. Theriogenology. 2009;71:1026-34.
- Loi P, Saragusty J, Ptak G. Cloning the mammoth: a complicated task or just a dream. Adv Exp Med Biol. 2014;753:489-502.
- Mastromonaco GF, et al. The influence of nuclear content on developmental competence of gaur cattle hybrid in vitro fertilized and somatic cell nuclear transfer embryos. Biol Reprod. 2007;76:514-23.
- Kim MK, et al. Endangered wolves cloned from adult somatic cells. Cloning Stem Cells. 2007;9:130-7.
- Lanza RP, et al. Cloning of an endangered species (Bos gaurus.) using interspecies nuclear transfer. Cloning. 2000;2(2):79-90.
- Hill J, et al. The effect of donor cell serum starvation and oocyte activation compounds on the development of somatic cell cloned embryos. Cloning. 1999;1:201-8.
- Verma G, et al. Handmade cloning: recent advances, potential and pitfalls. J Anim Sci Biotechnol. 2015;6:43.
- Takenaka M, Horiuchi T, Yanagimachi R. Effect of light on development of mammalian zygote. Proc Natl Acad Sci U S A. 2007;104:14289-93.
- Madani S, Machaty Z, Vajta G. An alternative way to improve mammalian embryo development in vitro: culture of zona pellucida-free embryos. Cell Reprogram. 2022;24(3):111-7.
Перепечатки и разрешения
Эта статья была опубликована
Видео скоро будет доступно