В данном исследовании используются методы сетевой фармакологии, подтвержденный молекулярный докинг и эксперименты in vitro для оценки потенциальных взаимодействий между компонентами Cordyceps sinensis и процессами, связанными с хроническим гломерулонефритом. Для подтверждения эффективности на уровне отдельных соединений был выбран β-Sitosterol, который, как было обнаружено, ослабляет воспалительную и профибротическую активацию в моделях мезангиальных клеток.
Методическая статья
Оценка воздействия β-ситостерола на воспалительные и профибротические модели мезангиальных клеток при хроническом гломерулонефрите с применением сетевого анализа
* These authors contributed equally
В этой статье
Краткое содержание
Аннотация
Хронический гломерулонефрит (ХГН) характеризуется стойким воспалительным повреждением и прогрессирующим фиброзным ремоделированием, однако взаимосвязи между соединениями и мишенями, лежащие в основе терапевтического воздействия натуральных продуктов, остаются определены не полностью. В данном исследовании были интегрированы сетевая фармакология, валидированный молекулярный докинг и эксперименты in vitro для оценки потенциальных компонентов Cordyceps sinensis (C. sinensis) в патологических процессах, связанных с ХГН. Был проведен скрининг потенциальных компонентов C. sinensis, а мишени, ассоциированные с соединениями и полученные с помощью платформы анализа и базы данных системной фармакологии традиционной китайской медицины (TCMSP), были сопоставлены с генами, связанными с ХГН. Функциональный обогатительный анализ и анализ белок-белковых взаимодействий использовались для определения приоритетных биологических процессов и ключевых мишеней. PTGS2 был идентифицирован как основная общая мишень. Молекулярный докинг выполнялся с использованием структуры COX-2 в комплексе с целекоксибом. Повторный докинг кокристаллизованного лиганда целекоксиба воспроизвел кристаллографическую позу с RMSD 0,876 Å, что подтверждает правильность протокола докинга. β-ситостерол и линолеил-ацетат продемонстрировали прогнозируемую совместимость с областью докинга COX-2 с энергией связывания −7,2 и −7,5 ккал/моль соответственно. β-ситостерол был выбран для валидации на уровне соединения в клетках мезангия почечных клубочков крыс линии HBZY-1. В концентрациях 0,5–10 µM β-ситостерол не вызывал значительного снижения жизнеспособности клеток. В клетках, стимулированных липополисахаридом (LPS), β-ситостерол снижал экспрессию Tnf, Il6 и Ptgs2, уменьшал выработку простагландина E2 (PGE2) и снижал содержание белка циклооксигеназы-2 (COX-2). В клетках, обработанных трансформирующим фактором роста β1 (TGF-β1), β-ситостерол снижал экспрессию Col1a1 и Acta2, а также уменьшал содержание белка альфа-гладкомышечного актина (α-SMA). Эти результаты предоставляют данные для формирования гипотезы о том, что β-ситостерол модулирует воспалительную и профибротическую активацию в моделях мезангиальных клеток, однако они не устанавливают прямого ингибирования ферментативной активности COX-2 или терапевтической эффективности при ХГН.
Введение
Хронический гломерулонефрит (ХГН) представляет собой гетерогенную группу гломерулярных нарушений, которые могут прогрессировать до хронической болезни почек и терминальной стадии почечной недостаточности1. Он характеризуется стойким повреждением клубочков, воспалительной активацией и прогрессирующим фиброзным ремоделированием2,3. Хотя кортикостероиды и иммуносупрессивные препараты применяются у отдельных пациентов, в многих случаях долгосрочный контроль заболевания остается затруднительным, а побочные эффекты, связанные с лечением, встречаются часто1,4,5. Прогрессирование ХГН включает взаимодействующие патологические процессы, в том числе иммунную активацию, эндотелиальную дисфункцию, окислительный стресс и накопление внеклеточного матрикса3,6,7. Следовательно, идентификация молекулярных узлов, связывающих воспалительные и профиброзные ответы, может помочь в формулировании проверяемых гипотез для стратегий терапевтического вмешательства при данном заболевании.
Cordyceps sinensis (C. sinensis) применялся в клинических и экспериментальных исследованиях заболеваний почек; сообщалось, что он оказывает противовоспалительное, антиапоптотическое и цитопротекторное действие в нескольких моделях заболеваний8,9,10. Однако молекулярные основы взаимодействия его потенциальных компонентов с мишенями, значимыми при гломерулонефрите, остаются недостаточно изученными11. Учитывая многокомпонентную природу C. sinensis и механическую гетерогенность CGN, сетевая фармакология предоставляет полезный инструментарий для приоритизации потенциальных связей «соединение — мишень — путь»12,13.
В данном исследовании для изучения потенциальных молекулярных связей между кандидатными компонентами C. sinensis и патологическими процессами, связанными с CGN, были интегрированы такие методы, как скрининг соединений, поиск мишеней, анализ пересечения «заболевание-ген», функциональное обогащение, анализ сети белок-белковых взаимодействий, молекулярный докинг и валидация in vitro. Простагландин-эндопероксидсинтаза 2 (PTGS2) была определена как ключевая мишень в сети «соединение-заболевание»; ее оценка проводилась с помощью молекулярного докинга с использованием структуры циклооксигеназы-2 (COX-2), связанной с целекоксибом, с последующей валидацией путем повторного докинга. На основании результатов сетевого анализа, анализа докинга и имеющихся данных о противовоспалительной и противофибротической активности в качестве репрезентативного кандидатного соединения для последующей валидации был выбран β-ситостерол14,15,16. Для оценки воспалительной активации и ответа, связанного с COX-2/простагландином E2 (PGE2), использовались мезангиальные клетки, стимулированные липополисахаридом (LPS), а для оценки экспрессии профибротических маркеров применялась модель, индуцированная трансформирующим ростом фактором β1 (TGF-β1).
Протокол
Сетевой фармакологический и биоинформатический анализы основывались на общедоступных базах данных и не предусматривали участия людей или животных. Эксперименты in vitro проводились с использованием установленной клеточной линии и, согласно институциональным требованиям, не требовали этического одобрения.
Скрининг потенциальных компонентов и поиск мишеней
Потенциальные компоненты и соответствующие им мишени были получены из базы данных и аналитической платформы системной фармакологии традиционной китайской медицины (TCMSP) по поисковому запросу «dongchongxiacao» 13 июля 2025 г. Были отобраны соединения с прогнозируемой пероральной биодоступностью не менее 30% и лекарственной пригодностью (drug-likeness) не менее 0,18. Оба критерия скрининга соответствовали семь потенциальных компонентов. Для описательного сравнения из TCMSP были записаны молекулярная масса, пероральная биодоступность, лекарственная пригодность и другие доступные фармакокинетические дескрипторы.
Информация о связях «соединение-мишень» для отобранных компонентов была загружена непосредственно из базы данных TCMSP. При формировании недублированного набора мишеней повторяющиеся записи удалялись вручную, в то время как исходные связи «соединение-мишень» сохранялись для последующего построения сети. Поскольку в TCMSP названия мишеней были представлены в полном виде, а не в форме стандартизированных символов генов, поиск каждой мишени проводился по базе данных UniProt (дата доступа: 14 июля 2025 г.). Выбиралась соответствующая запись для человека, и название мишени преобразовывалось в официальный символ гена. Стандартизированный набор данных «соединение-мишень» использовался для анализа пересечения «заболевание-мишень» и анализа сети «соединение-мишень».
Сбор генов, ассоциированных с гломерулонефритом, и поиск пересечений с мишенями
Гены, связанные с заболеванием, были получены из баз данных GeneCards, DisGeNET, PharmGKB и Therapeutic Target Database по поисковому запросу «glomerulonephritis» 14 июля 2025 года. Для GeneCards были отобраны записи с показателем релевантности выше медианного значения, равного 10. Подходящие записи из других баз данных включались в соответствии с их курируемыми аннотациями «болезнь-мишень». Названия генов были стандартизированы согласно официальным символам генов человека, а дубликаты удалены. В результате этой процедуры было выявлено 1 134 уникальных генов, связанных с гломерулонефритом. Поскольку при поиске использовался более широкий термин «glomerulonephritis», полученный набор данных был рассмотрен как релевантный молекулярным процессам, связанным с хроническим гломерулонефритом, а не специфичный для одного гистопатологического подтипа.
Мишени, связанные с соединениями, полученные из TCMSP, были пересечены с набором генов, связанных с заболеванием, с помощью программы R. Было выявлено двадцать три общих мишени. Диаграммы Венна были построены с использованием пакета R venn, а сеть перекрывающихся мишеней соединений была сконструирована и визуализирована с помощью Cytoscape. Взаимосвязи между потенциальными компонентами и общими мишенями обобщены в Таблице 1.
Анализ функционального обогащения и белок-белковых взаимодействий
Анализ обогащения по Gene Ontology (GO) и Kyoto Encyclopedia of Genes and Genomes (KEGG) проводили в среде R с использованием пакетов clusterProfiler и org.Hs.eg.db. Термины Gene Ontology анализировали по категориям биологических процессов, клеточных компонентов и молекулярных функций. Значения P корректировали для множественного тестирования по методу Бенджамини-Хохберга; были отобраны термины или пути со скорректированными значениями P ниже 0.05. Обогащенные термины и пути представляли в виде независимо построенных столбчатых и точечных диаграмм.
23 перекрывающихся мишени были внесены в базу данных STRING с выбором организма Homo sapiens и минимальным показателем взаимодействия более 0,4. Полученная сеть белок-белковых взаимодействий была импортирована в Cytoscape. Топология сети оценивалась с помощью CytoNCA на основе показателей степени, центральности по посредничеству, центральности по близости, центральности по собственному вектору, локальной средней связности и центральности сети. Узловые мишени определялись как узлы, для которых значения степени, центральности по посредничеству, центральности по близости, центральности по собственному вектору, локальной средней связности и центральности сети превышали соответствующие медианные значения сети. В результате данного анализа было выделено девять узловых мишеней для последующей интерпретации.
Молекулярный докинг и валидация путем редокинга
Молекулярный докинг проводили с использованием структуры циклооксигеназы-2 в комплексе с целекоксибом (PDB ID 3LN1). В качестве рецептора были оставлены цепь A и связанная с ней группа гема, при этом в процессе подготовки рецептора кристаллографические молекулы воды и сокристаллизованный лиганд целекоксиб были удалены. Нативная конформация целекоксиба была извлечена из цепи A отдельно для валидации путем повторного докинга. С помощью AutoDockTools были добавлены полярные атомы водорода и заряды Гастейгера, после чего рецептор был сохранен в формате PDBQT. PDB ID 3LN1 представляет собой структуру мышиной COX-2, связанной с целекоксибом, с разрешением 2.40 Å. Структуры β-ситостерола и линолеил ацетата были получены из PubChem и подготовлены с помощью Open Babel. Были добавлены атомы водорода и парциальные заряды Гастейгера, определены вращающиеся связи, и каждый лиганд был преобразован в формат PDBQT. Докинг целекоксиба, β-ситостерола и линолеил ацетата выполняли с помощью AutoDock Vina с использованием одного и того же рецептора и параметров поиска.
Бокс докинга был центрирован по нативному региону связывания целекоксиба с использованием следующих координат: center_x = 30.9886 center_y = -22.2836 center_z = -16.5072 size_x = 26 Å size_y = 26 Å size_z = 26 Å. Значение полноты поиска (exhaustiveness) было установлено на уровне 16, количество выходных мод — 10, а энергетический диапазон — 3 kcal/mol. Для визуализации была выбрана наиболее высокоранжированная поза с наименьшей расчетной энергией связывания. Для валидации протокола был проведен редокинг нативного целекоксиба при тех же условиях, а среднеквадратичное отклонение (RMSD) тяжелых атомов между кристаллографической и редокированной позами было рассчитано с помощью PyMOL. Значение RMSD ниже 2 Å считалось приемлемым воспроизведением референсной позы. Остатки, расположенные в пределах 4 Å от каждого задокированного лиганда, были определены в PyMOL. Показатели докинга и позы интерпретировались как оценки структурной совместимости, а не как прямое доказательство связывания с мишенью или ингибирования фермента.
Культивирование клеток и приготовление соединений
Гломерулярные мезангиальные клетки крысы HBZY-1 культивировали в модифицированной среде Игла в модификации Дульбекко с высоким содержанием глюкозы, дополненной 10% фетальной бычьей сыворотки и 1% пенициллина-стрептомицина, при 37 °C в увлажненных условиях с 5% CO₂. Для всех экспериментов использовали клетки в пассажах 2–7; перед использованием подтверждалось отсутствие микоплазмы. В качестве химически определенных соединений использовали β-ситостерин и целекоксиб. β-ситостерин растворяли в абсолютном этаноле для приготовления стокового раствора с концентрацией 10 mM (приблизительно 4,15 mg/mL). При необходимости для получения визуально прозрачного раствора проводили кратковременную соникацию и нагрев до 50–60 °C. Целекоксиб растворяли в диметилсульфоксиде для приготовления стокового раствора с концентрацией 10 mM (приблизительно 3,81 mg/mL). Стоковые растворы разделяли на аликвоты и хранили при −20 °C. Перед обработкой стоковые растворы разбавляли непосредственно в предварительно нагретой культуральной среде и немедленно перемешивали.
Концентрации растворителя были согласованы внутри каждого эксперимента. В анализе жизнеспособности клеток конечная концентрация этанола была доведена до 0.2% v/v во всех группах, так как максимальная протестированная концентрация β-sitosterol составила 20 µM. В эксперименте по индуцированию воспаления с помощью LPS конечные концентрации этанола и диметилсульфоксида во всех группах были доведены до 0.1% и 0.01% v/v соответственно. В эксперименте по индуцированию профибротического эффекта с помощью TGF-β1 конечная концентрация этанола была доведена до 0.1% v/v во всех группах. В группы Control, LPS и TGF-β1 добавляли эквивалентные объемы соответствующих растворителей.
Анализ жизнеспособности клеток
Клетки высевали в 96-луночные планшеты с плотностью 5 × 10³ клеток на лунку в 100 µL полной среды и оставляли для адгезии на 24 ч. Для оценки диапазона концентраций β-sitosterol клетки инкубировали с 0,5, 1, 5, 10 или 20 µM β-sitosterol в течение 24 ч. Для анализа жизнеспособности клеток при воздействии LPS клетки предварительно обрабатывали β-sitosterol в концентрациях 1, 5 или 10 µM в течение 2 ч, после чего подвергали воздействию 1 µg/mL липополисахарида в течение дополнительных 24 ч.
Группы обработки включали: контрольную группу, β-sitosterol в концентрации 0.5 µM, β-sitosterol в концентрации 1 µM, β-sitosterol в концентрации 5 µM, β-sitosterol в концентрации 10 µM, β-sitosterol в концентрации 20 µM, LPS, LPS с β-sitosterol в концентрации 1 µM, LPS с β-sitosterol в концентрации 5 µM и LPS с β-sitosterol в концентрации 10 µM. В каждую лунку добавляли по 10 µL реагента Cell Counting Kit-8, после чего планшеты инкубировали в течение 2 h. Затем измеряли оптическую плотность при 450 nm. Жизнеспособность клеток определяли путем вычитания значения холостой пробы без клеток и выражали относительно контрольной группы. Для каждого условия использовали шесть технических лунок в каждом из шести независимых биологических экспериментов. Значения технических лунок из каждого эксперимента усредняли для получения одного значения биологического повтора для статистического анализа.
Воспалительная активация, индуцированная LPS
Для экспериментов по воспалительной активации клетки HBZY-1 высевали в 6-луночные планшеты с плотностью 2 × 10⁵ клеток на лунку и подвергали воздействию после достижения примерно 70%–80% конфлюэнтности. Клетки содержали в среде с добавлением 1% фетальной бычьей сыворотки в течение 12 ч до начала обработки. β-Ситостерол или целекоксиб вводили за 2 ч до стимуляции LPS. Затем клетки подвергали воздействию 1 µg/mL LPS в течение 24 ч.
Экспериментальные группы включали контрольную группу, β$\beta$-ситостерол при 10 µM, ЛПС, ЛПС плюс β$\beta$-ситостерол при 1 µM, ЛПС плюс β$\beta$-ситостерол при 5 µM, ЛПС плюс β$\beta$-ситостерол при 10 µM, и LPS с целекоксибом при 1 µMЦелекоксиб был включен в качестве функционального положительного контроля для ингибирования COX-2-зависимого синтеза простагландинов. По завершении обработки собирали супернатанты культур для измерения уровня PGE2. Клетки собирали отдельно для анализа методом количественной ПЦР в реальном времени на Tnf, Il6и Ptgs2 и для вестерн-блот-анализа COX-2.
Профибротическая активация, индуцированная TGF-β1
Для оценки профибротической активации использовали отдельную модель, индуцированную TGF-β1. Клетки HBZY-1 высевали в 6-луночные планшеты с плотностью 2 × 10⁵ клеток на лунку и культивировали в среде с добавлением 1% эмбриональной бычьей сыворотки в течение 12 ч перед обработкой. Клетки предварительно обрабатывали β-ситостеролом в течение 2 ч, после чего стимулировали рекомбинантным TGF-β1 в концентрации 10 ng/mL в течение 48 ч.
Группы лечения включали контрольную группу, β-ситостерол (10 µM), TGF-β1, TGF-β1 + β-ситостерол (5 µM) и TGF-β1 + β-ситостерол (10 µM). По окончании периода обработки клетки собирали для проведения количественной ПЦР в реальном времени для анализа экспрессии Col1a1 и Acta2, а также для вестерн-блот-анализа альфа-гладкомышечного актина (α-SMA).
Количественная ПЦР в реальном времени
Общую РНК выделяли из обработанных клеток с использованием реагента для экстракции РНК на основе фенола и гуанидиния в соответствии с протоколом производителя. Концентрацию и чистоту РНК определяли с помощью спектрофотометра. Для обратной транскрипции использовали только образцы с соотношением A260/A280 от 1.8–2.0. Для каждого образца 1 µg общей РНК подвергали обратной транскрипции в комплементарную ДНК в конечном объеме реакции 20 µL. Полученную комплементарную ДНК перед количественной ПЦР разводили в пять раз водой, свободной от нуклеаз. Количественную ПЦР проводили в общем объеме 20 µL, содержащем 10 µL 2× SYBR Green master mix, по 0.4 µL прямых и обратных праймеров (10 µM), 2 µL разведенной комплементарной ДНК и 7.2 µL воды, свободной от нуклеаз. Условия амплификации включали этап начальной денатурации при 95 °C в течение 30 s, после чего следовали 40 циклов денатурации при 95 °C в течение 5 s и отжига-элонгации при 60 °C в течение 30 s. Затем проводили анализ кривых плавления в диапазоне от 65 °C до 95 °C для проверки специфичности амплификации.
Измерялись уровни экспрессии генов Tnf, Il6, Ptgs2, Col1a1, Acta2 и Gapdh. Ген Gapdh использовали в качестве внутреннего референсного гена. Относительную экспрессию генов определяли методом 2−ΔΔCt, используя группу Control в качестве калибратора. Последовательности праймеров приведены в Дополнительной таблице 1. Каждый образец анализировали в трех технических повторностях; было проведено шесть независимых биологических экспериментов. Значения, полученные в технических повторностях, усредняли перед проведением статистического анализа.
Измерение уровня PGE2 методом иммуноферментного анализа
Супернатанты культур собирали через 24 ч после стимуляции LPS и центрифугировали при 1,000 × g в течение 10 мин при 4 °C для удаления клеточного дебриса. Концентрации PGE2 определяли с помощью имеющегося в продаже набора для иммуноферментного анализа в соответствии с инструкциями производителя.
Стандарты и образцы наносили на планшет для анализа в дубликатах. После завершения этапов связывания антител и проявления цвета регистрировали оптическую плотность при 450 nm с помощью микропланшетного ридера. Концентрации PGE2 определяли по четырехпараметрической логистической стандартной кривой и выражали в pg/mL. Анализировали супернатанты из шести независимых экспериментов с клетками. Перед статистическим анализом значения дубликатов для каждого биологического образца усредняли.
Вестерн-блоттинг
Обработанные клетки лизировали в буфере для радиоиммунопреципитационного анализа с добавлением смеси ингибиторов протеаз. Лизаты инкубировали на льду в течение 30 min и центрифугировали при 12,000 × g в течение 15 min при 4 °C. Концентрацию белка в супернатантах определяли с помощью бицинхонинового метода анализа белков. Равные количества белка (30 µg на лунку) смешивали с буфером для нанесения и денатурировали при 95 °C в течение 5 min. Белки в экспериментах с LPS разделяли на 10% полиакриламидных гелях с додецилсульфатом натрия, тогда как в экспериментах с TGF-β1 использовали 12% гели. Разделенные белки затем переносили на поливинилиденфторидные мембраны.
Мембраны блокировали 5% раствором обезжиренного молока в трис-солевом буфере, содержащем 0.1% Tween 20, в течение 1 ч при комнатной температуре, после чего инкубировали в течение ночи при 4 °C с первичными антителами к COX-2 (1:1000), α-SMA (1:1000) и GAPDH (1:5000). Анализ COX-2 проводили в образцах из эксперимента с LPS, в то время как α-SMA анализировали в образцах из эксперимента с TGF-β1. После промывки мембраны инкубировали с вторичными антителами, конъюгированными с пероксидазой хрена (1:5000), в течение 1 ч при комнатной температуре. Полосы белков визуализировали с помощью усиленного хемилюминесцентного субстрата и фиксировали с использованием системы хемилюминесцентной визуализации. Время экспозиции составило примерно 10 s для COX-2, 10 s для α-SMA и 2 s для GAPDH.
Интенсивность полос количественно определяли с помощью ImageJ. Сигналы COX-2 и α-SMA были нормализованы по соответствующему сигналу GAPDH. Вестерн-блоттинг проводили с использованием образцов белка, полученных в шести независимых экспериментах по культивированию и обработке клеток.
Статистический анализ
Статистический анализ проводили с помощью программы GraphPad Prism. Данные представлены в виде среднего значения ± стандартного отклонения. Для каждого количественного анализа было проведено шесть независимых экспериментов по культивированию и обработке клеток, при этом каждый независимый эксперимент представлял собой одну биологическую повторность. Измерения технических повторов, полученные в рамках одного и того же биологического эксперимента, усреднялись перед статистическим анализом и не рассматривались как независимые наблюдения.
Для анализа жизнеспособности клеток в каждом биологическом эксперименте использовали по шесть технических лунок для каждого условия. Реакции количественной ПЦР проводили в трех технических повторностях для каждого биологического образца, а измерения уровня PGE2 — в двух повторностях. Количественный анализ вестерн-блоттинга основывался на шести независимо подготовленных образцах белка. Таким образом, каждый количественный столбец содержит значения шести индивидуальных биологических повторов.
Различия между несколькими группами анализировали с помощью однофакторного дисперсионного анализа с последующим использованием критерия множественных сравнений Тьюки. Двустороннее значение P < 0.05 считалось статистически значимым. Значения отдельных биологических повторностей представлены вместе со средним значением и стандартным отклонением.
Результаты
Скрининг потенциальных компонентов, поиск мишеней и определение пересечения мишеней
Рабочий процесс идентификации потенциальных общих мишеней «соединение–заболевание» обобщен на Рисунке 1A. Семь потенциальных соединений C. sinensis соответствовали установленным критериям скрининга (OB ≥30% и DL ≥0.18), в число которых вошли арахидоновая кислота, линолеил-ацетат, β-ситостерин, пероксиэргостерол, церевистерол, холестерилпальмитат и CLR (Таблица 2). Параллельно из баз данных GeneCards, DisGeNET, PharmGKB и TTD было извлечено 1134 гена, связанных с гломерулонефритом; их распределение по четырем базам данных показано на Рисунке 1B. Анализ пересечения набора мишеней, связанных с соединениями, и набора генов, связанных с заболеванием, позволил выявить 23 общие мишени (Таблица 1, Рисунок 1C). Соответствующая сеть «соединение–общие мишени» представлена на Рисунке 1D, где проиллюстрированы взаимосвязи между репрезентативными потенциальными соединениями, общими мишенями и CGN. Эти общие мишени включали несколько генов, связанных с регуляцией воспаления, апоптозом и сосудистой сигнализацией, таких как PTGS2, CASP3, MAPK1, PPARG, TNFRSF1A и NOS3.
Анализ функционального обогащения и белок-белковых взаимодействий
Для исследования биологической значимости 23 перекрывающихся мишеней был проведен анализ обогащения путей GO и KEGG. Результаты показали, что данные мишени значительно обогащены в многочисленных путях, связанных с воспалением и метаболизмом.
Анализ GO распределил мишени по категориям биологических процессов (BP), клеточных компонентов (CC) и молекулярных функций (MF). Наиболее значимо обогащенные термины BP включали ответ на липополисахарид, ответ на молекулы бактериального происхождения и регуляцию процессов мышечной системы. На клеточном уровне мишени были обогащены в мембранных рафтах, кавеолах и альфа-гранулах тромбоцитов, в то время как такие термины MF, как оксидоредуктазная активность и связывание с ядерными рецепторами, дополнительно указали на роль в окислительном стрессе и транскрипционной регуляции (Рисунок 2A).
Анализ KEGG показал, что наиболее значимо обогащенным был путь липидного обмена и атеросклероза (hsa05417) (q-значение <1 × 10⁻⁶), наряду с такими путями, как сигнализация AGE–RAGE при диабетических осложнениях, сигнализация TNF, сигнализация IL-17 и сигнализация HIF-1 (Рисунок 2B). Примечательно, что в пути липидного обмена и атеросклероза было задействовано 10 из 23 мишеней, включая CASP3, MAPK1, PPARG, NOS3 и TNFRSF1A.
В совокупности эти результаты обогащения указывают на то, что перекрывающиеся мишени функционально связаны с воспалительными процессами, ответом на стресс и эндотелиальными биологическими процессами, имеющими значение для CGN.
Анализ сети белок-белковых взаимодействий
С помощью STRING была построена сеть белок-белковых взаимодействий (PPI) для 23 перекрывающихся мишеней, в результате чего была получена сеть, содержащая 23 узла и 102 ребра (Рисунок 3A). Топологический анализ с использованием CytoNCA выявил девять высокосвязанных узловых мишеней: PTGS2, MAPK1, PPARG, CASP3, EGF, JUN, PECAM1, BCL2 и PRKCA (Рисунок 3B). Среди этих мишеней PTGS2 продемонстрировала выраженную центральность в сети и поэтому была выбрана для последующего анализа молекулярного докинга. Эти результаты выделяют подмножество приоритетных регуляторов сети, которые могут иметь значение для взаимодействия соединения и заболевания.
Молекулярный докинг и валидация путем редокинга
Для дальнейшей оценки структурной правдоподобности потенциальных связей, ассоциированных с PTGS2 и выявленных с помощью сетевого анализа, был проведен молекулярный докинг с использованием структуры COX-2, связанной с целекоксибом. Была выбрана кристаллическая структура PDB ID 3LN1, так как она содержит целекоксиб, связанный в активном центре COX-2, что обеспечивает экспериментально определенный карман связывания лиганда для валидации докинга. Сначала кокристаллизованный лиганд целекоксиб был извлечен и подвергнут повторному докингу в тот же карман связывания. Поза редокированного целекоксиба точно воспроизвела кристаллографическую позу со среднеквадратичным отклонением (RMSD) при редокинге 0,876 Å и прогнозируемой энергией связывания -12,3 kcal/mol (Рисунок 4A). Этот результат показал, что протокол докинга способен воспроизвести известную позу связывания лиганда при выбранных условиях докинга.
Используя тот же рецептор, сетку и параметры докинга, β-ситостерол был задокан в область связывания COX-2, определенную по целекоксибу. Прогнозируемая энергия связывания β-ситостерола составила -7.2 kcal/mol (Рисунок 4B). Поза докинга располагалась внутри заданной области докинга COX-2; остатками, окружающими позу докинга β-ситостерола, были ASN567, ASP333, GLN178, GLN336, GLY340, HIS337, HIS80, PRO500, THR79 и TYR341.
Линолеил-ацетат также был оценен в качестве вторичного вычислительного кандидата, поскольку он остался в списке потенциальных компонентов и был связан с PTGS2 в ходе сетевого анализа. При тех же условиях докинга линолеил-ацетат продемонстрировал прогнозируемую энергию связывания -7.5 kcal/mol, что было несколько более благоприятным показателем, чем у β-ситостерола (Рисунок 4C). Его прогнозируемая поза располагалась близко к референсному лиганду целекоксибу в области докинга. Остатки, окружающие линолеил-ацетат, включали ALA502, ALA513, ARG106, ARG499, GLN178, GLY512, HIS75, ILE503, LEU338, LEU345, LEU517, MET508, PHE504, SER339, SER516, TRP373, TYR371, VAL102, VAL335 и VAL509.
Жизнеспособность клеток, воспалительная активация и профибротическая активация
β-ситостерол был выбран для валидации на уровне отдельных соединений, так как в сетевом анализе он был определен как кандидат, связанный с PTGS2, и для него имелись предварительные экспериментальные данные о противовоспалительной и антифибротической активности. Сначала была проведена оценка жизнеспособности клеток для определения диапазона концентраций, подходящего для последующих экспериментов. Обработка β-ситостеролом в концентрациях 0.5, 1, 5 и 10 µM не привела к заметному снижению жизнеспособности клеток по сравнению с контрольной группой, в то время как β-ситостерол в концентрации 20 µM вызвал небольшое снижение. Воздействие LPS снизило жизнеспособность клеток, а совместное введение β-ситостерола частично улучшило жизнеспособность клеток при стимуляции LPS, при этом наиболее выраженный эффект наблюдался при 10 µM (Рисунок 5A). На основании этих результатов для последующих экспериментов по воспалительной активации, индуцированной LPS, использовали β-ситостерол в концентрациях 1, 5 и 10 µM.
Стимуляция LPS заметно увеличила экспрессию мРНК воспалительных генов в клетках HBZY-1. По сравнению с контрольной группой, в группе LPS наблюдались более высокие уровни экспрессии Tnf, Il6 и Ptgs2 (Рисунок 5B-D). Обработка β-ситостеролом снижала вызванную LPS повышенную экспрессию этих генов дозозависимым образом. Ингибирующая тенденция была наиболее выражена в группе LPS плюс 10 µM β-ситостерола. Целекоксиб, использованный в качестве функционального контроля ингибитора COX-2, также в определенной степени снижал экспрессию воспалительных генов, хотя его эффект был менее выраженным, чем эффект 10 µM β-ситостерола для нескольких транскрипционных маркеров (Рисунок 5B-D).
Поскольку ген Ptgs2 кодирует COX-2, а PGE2 является основным конечным продуктом простагландинового синтеза при активности COX-2, секрецию PGE2 измеряли методом ELISA. Обработка LPS увеличивала концентрацию PGE2 в супернатанте культуры по сравнению с контрольной группой. β-ситостерол снижал индуцированную LPS продукцию PGE2 дозозависимым образом. Целекоксиб также снижал продукцию PGE2 и служил положительным контролем функционального ингибирования оси COX-2/PGE2 (Рисунок 5E). Вестерн-блот-анализ дополнительно показал, что LPS увеличивал содержание белка COX-2. Обработка β-ситостеролом снижала уровни белка COX-2 при стимуляции LPS, причем более выраженное снижение наблюдалось при более высокой концентрации. Напротив, целекоксиб снижал продукцию PGE2, но оказывал более ограниченное влияние на содержание белка COX-2 (Рисунок 5F).
В дополнение к модели воспаления, индуцированной LPS, была использована модель профибротической активации, индуцированной TGF-β1, чтобы оценить влияние β-sitosterol на экспрессию маркеров фиброза в мезангиальных клетках. TGF-β1 заметно увеличил экспрессию мРНК Col1a1 и Acta2 по сравнению с контрольной группой (Рисунок 6A,B). β-sitosterol снизил вызванное TGF-β1 повышение уровня обоих маркеров, при этом снижение было более выраженным при концентрации 10 µM, чем при 5 µM (Рисунок 6A,B). Вестерн-блот анализ показал соответствующее увеличение экспрессии белка α-SMA после стимуляции TGF-β1, в то время как обработка β-sitosterol привела к снижению содержания белка α-SMA в клетках, обработанных TGF-β1 (Рисунок 6C).
ДОСТУПНОСТЬ ДАННЫХ:
Необработанные и обработанные данные, поддерживающие это исследование, были депонированы в Zenodo под DOI: https://zenodo.org/records/21649482. Полноразмерные изображения вестерн-блоттинга представлены в Дополнительном файле 1.
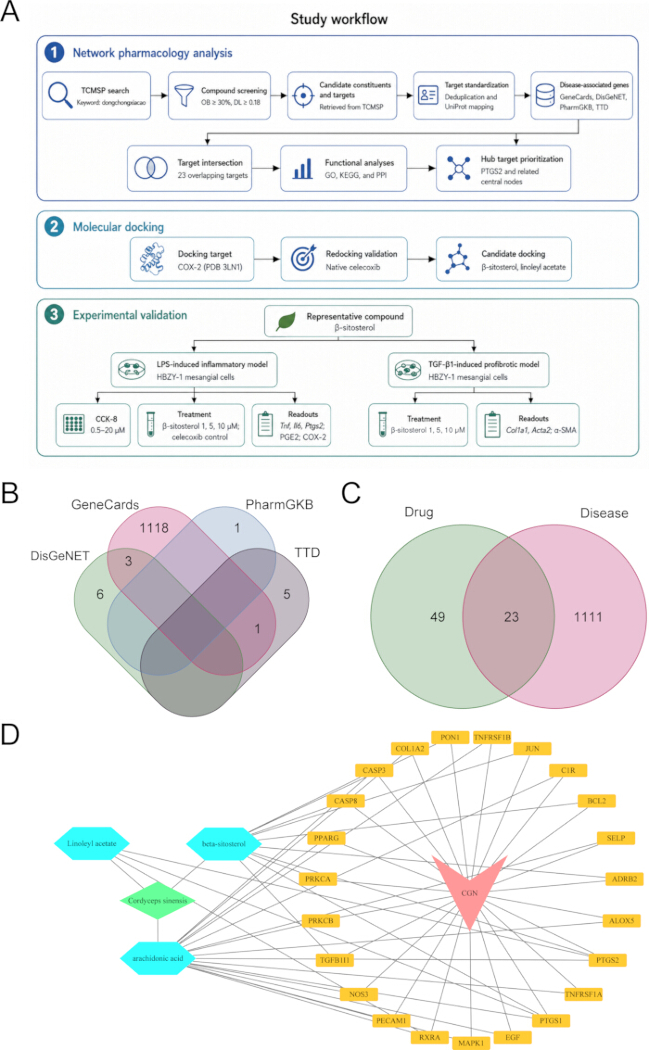
Рисунок 1Рабочий процесс и сетевой анализ для идентификации потенциальных общих мишеней взаимодействия «соединение — заболевание» для C. sinensis при гломерулонефрите. (A) Схематическая рабочая схема, демонстрирующая идентификацию соединений-кандидатов, поиск и стандартизацию связанных с соединениями мишеней, поиск генов, связанных с гломерулонефритом, анализ пересечений и построение сети соединений и общих мишеней. (B) Диаграмма Венна, иллюстрирующая распределение генов, связанных с гломерулонефритом, извлеченных из баз данных GeneCards, DisGeNET, PharmGKB и TTD. (C) Диаграмма Венна, показывающая пересечение мишеней, связанных с соединениями из базы данных TCMSP, и генов, связанных с заболеванием; выявлено 23 общих мишени. (D) Сеть перекрывающихся мишеней соединений. Зеленый ромб обозначает C. sinensisсиние шестиугольники обозначают соединения-кандидаты, желтые круги — перекрывающиеся мишени, а розовый треугольник — CGN. Ребра обозначают соответствующие связи «соединение — мишень» или «заболевание — мишень». Пожалуйста, нажмите здесь, чтобы просмотреть эту фигуру в более крупном размере.
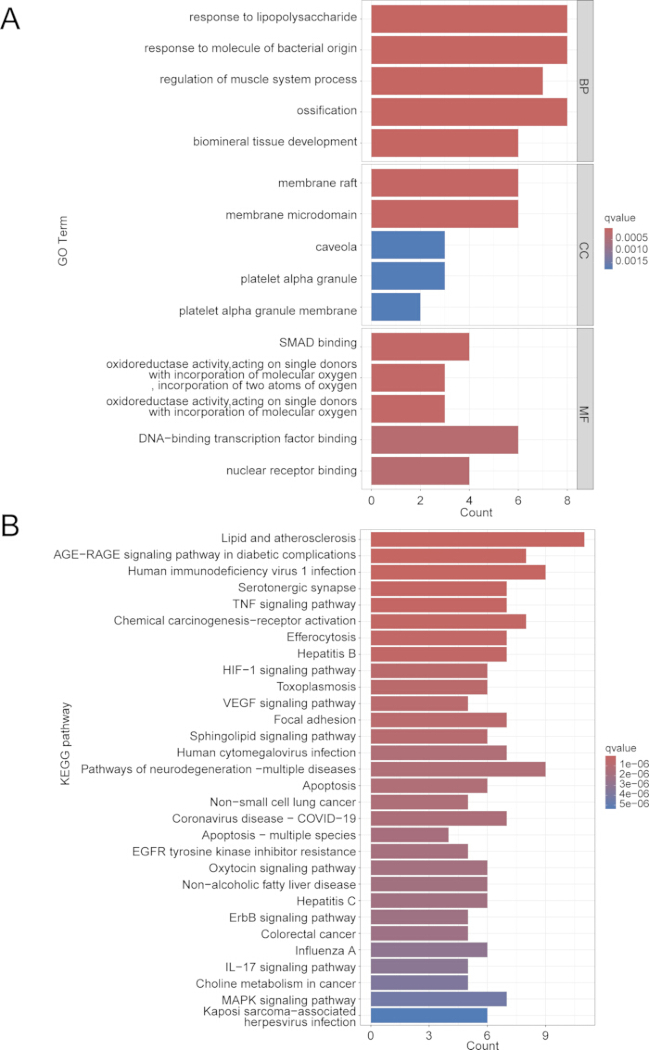
Рисунок 2. Функциональный анализ обогащения общих мишеней. (A) Анализ обогащения GO для 23 общих мишеней. Определены основные термины BP, CC и MF. Длина столбца указывает количество генов; цветовой градиент соответствует q-значению. (B) Анализ обогащения KEGG для 23 общих мишеней. Пути ранжированы по количеству генов и статистической значимости. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
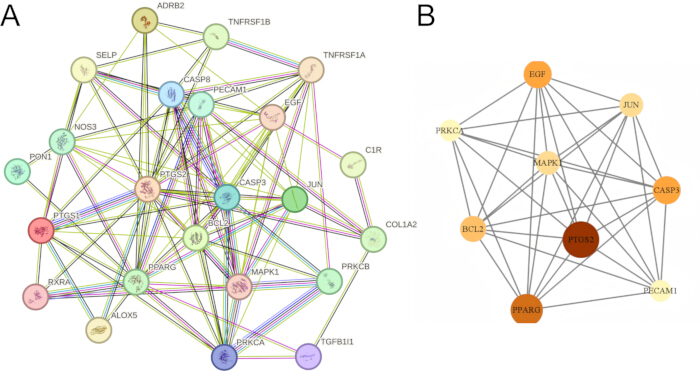
Рисунок 3. Сеть белок-белковых взаимодействий и приоритизация основных мишеней-хабов из перекрывающихся мишеней. (A) Сеть PPI, построенная на основе 23 перекрывающихся мишеней с помощью STRING с пороговым значением показателя взаимодействия >0.4. (B) Девять основных мишеней-хабов, приоритизированных с помощью анализа топологии сети на основе CytoNCA. PTGS2 продемонстрировал выраженную центральность в сети и был выбран для последующего анализа молекулярного докинга. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
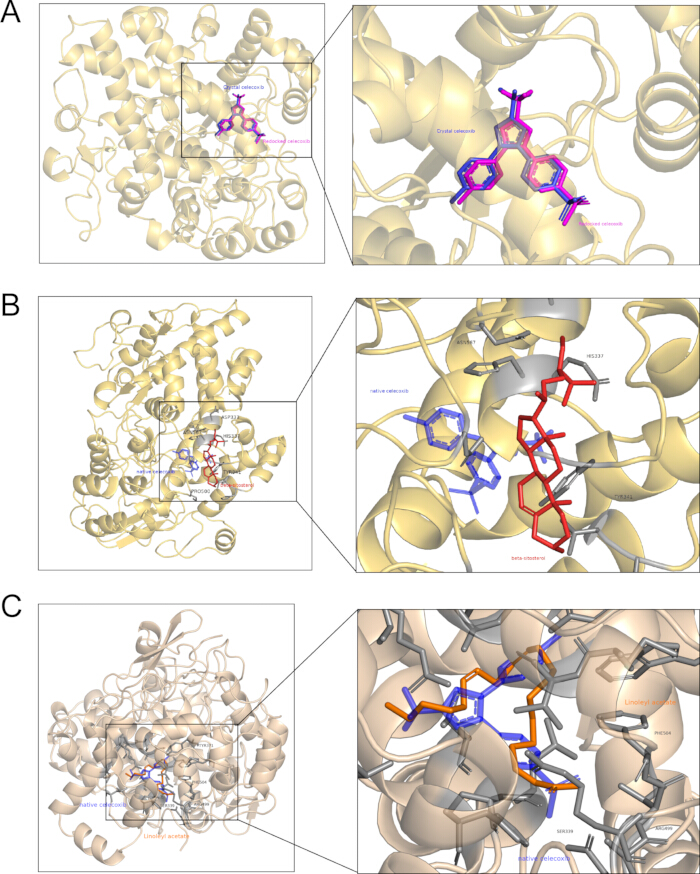
Рисунок 4. Молекулярный докинг и валидация путем редокинга отобранных соединений-кандидатов с COX-2. (A) Наложение кристаллографической позы целекоксиба и наиболее высокоранжированной позы при редокинге в структуре мышиной COX-2 с bound целекоксибом (PDB ID 3LN1). Редокинг воспроизвел экспериментальную ориентацию связывания. (B) Наиболее высокоранжированная поза докинга β-ситостерола в области докинга COX-2, определенной по целекоксибу. Кристаллографическая поза целекоксиба приведена в качестве пространственного ориентира. (C) Наиболее высокоранжированная поза докинга линолеил ацетата в той же области докинга. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
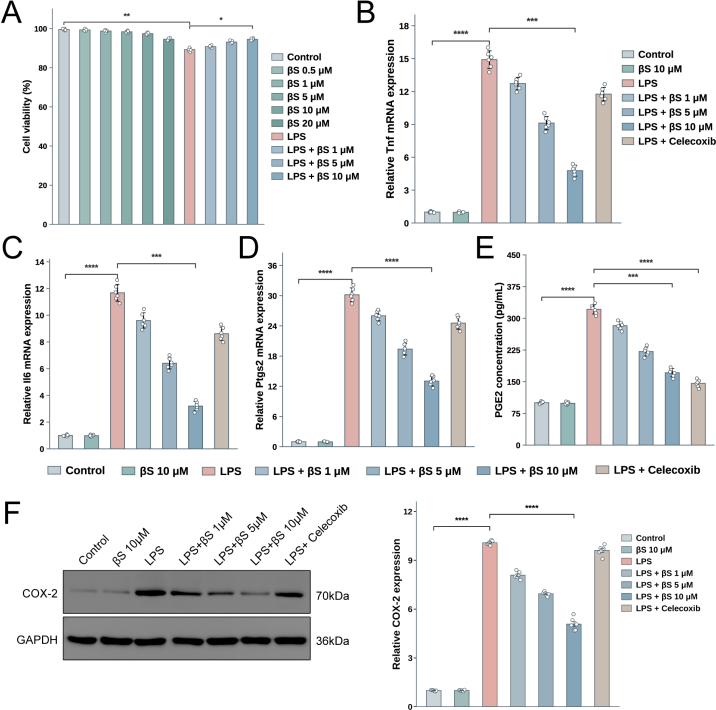
Рисунок 5. β-ситостерол ослабляет индуцированную LPS воспалительную активацию и продукцию PGE2 в мезангиальных клетках HBZY-1. (A) Жизнеспособность клеток измеряли с помощью анализа Cell Counting Kit-8. Клетки обрабатывали β-ситостеролом в концентрациях 0.5, 1, 5, 10 или 20 µM в течение 24 ч. В группах со стимуляцией LPS клетки подвергали предварительной обработке β-ситостеролом в концентрациях 1, 5 или 10 µM в течение 2 ч перед воздействием 1 µg/mL LPS в течение 24 ч. Жизнеспособность клеток выражена относительно контрольной группы. (B–D) Количественный анализ экспрессии мРНК Tnf (B), Il6 (C) и Ptgs2 (D) методом ПЦР в реальном времени. Экспрессия генов была нормализована по Gapdh и выражена относительно контрольной группы. (E) Концентрации PGE2 в супернатантах культур, измеренные с помощью иммуноферментного анализа. Целекоксиб был включен в качестве функционального положительного контроля подавления COX-2-зависимой продукции простагландинов. (F) Репрезентативные изображения вестерн-блоттинга COX-2 и GAPDH в указанных группах обработки. Данные представлены как среднее значение ± SD по шести независимым биологическим экспериментам, с указанием значений отдельных биологических повторностей. Значения технических повторностей усреднялись перед анализом. Сравнения проводились с использованием однофакторного ANOVA с последующим множественным тестом Тьюки. Значимость указана скобками на отдельных панелях: *P < 0.05, **P < 0.01, ***P < 0.001 и ****P < 0.0001. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
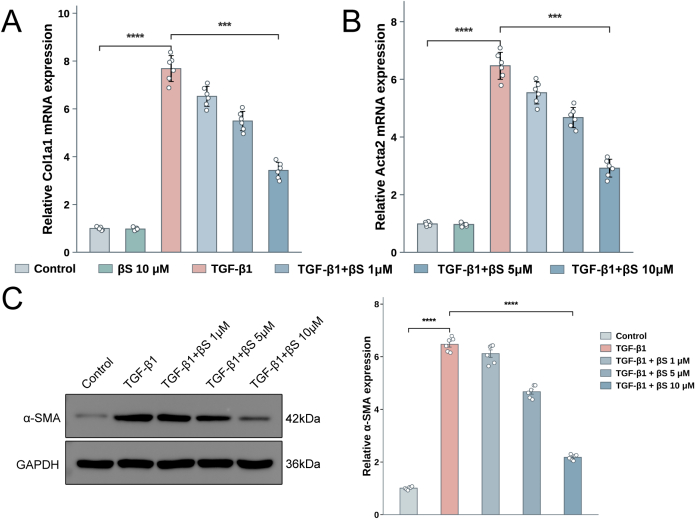
Рисунок 6. β-ситостерол снижает индуцированную TGF-β1 экспрессию профибротических маркеров в мезангиальных клетках HBZY-1. (A–B) Количественный анализ экспрессии мРНК Col1a1 (A) и Acta2 (B) методом ПЦР в реальном времени. Экспрессия генов была нормализована по Gapdh и выражена относительно контрольной группы. (C) Репрезентативные изображения вестерн-блоттинга α-SMA и GAPDH в указанных группах обработки. Данные представлены как среднее ± SD по шести независимым биологическим экспериментам; также показаны значения отдельных биологических повторов. Значения технических повторов были усреднены перед анализом. Сравнения проводились с использованием однофакторного ANOVA с последующим множественным сравнением по тесту Тьюки. Значимость indicated скобками на отдельных панелях: *P < 0.05, **P < 0.01, ***P < 0.001 и ****P < 0.0001. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
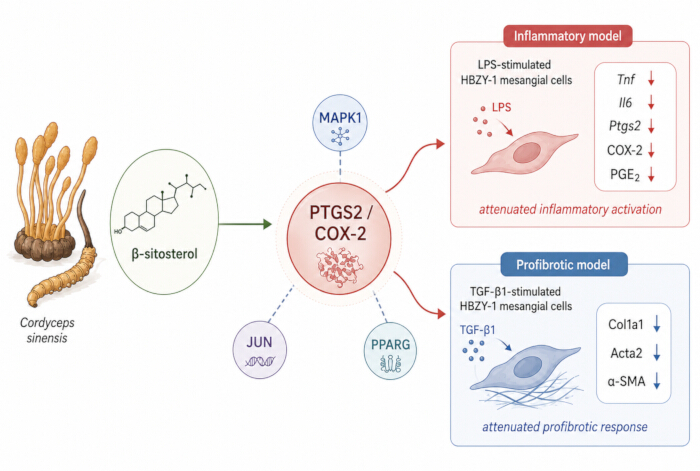
Рисунок 7. Комплексная интерпретация воспалительных и профибротических реакций в клетках HBZY-1, связанных с β-ситостеролом. Сетевой анализ и молекулярный докинг позволили выделить PTGS2/COX-2 в более широком контексте, включавшем MAPK1, JUN и PPARG. Обработка β-ситостеролом была связана со снижением индуцированной LPS экспрессии Tnf, Il6 и Ptgs2, снижением содержания белка COX-2 и продукции PGE2, а также снижением индуцированной TGF-β1 экспрессии Col1a1, Acta2 и α-SMA. Пожалуйста, нажмите здесь, чтобы просмотреть этот рисунок в большем размере.
| Нет. | Перекрывающаяся мишень | Соединение(я) — кандидат(ы), связанные с мишенью |
| 1 | PTGS1 | β$\beta$-ситостерол; линолеил-ацетат; арахидоновая кислота |
| 2 | PTGS2 | β$\beta$-ситостерол; линолеил ацетат; арахидоновая кислота |
| 3 | CASP3 | β$\beta$-ситостерол; арахидоновая кислота |
| 4 | CASP8 | βситостерол |
| 5 | BCL2 | β$\beta$-ситостерол |
| 6 | JUN | βситостерол |
| 7 | PON1 | β-ситостерол |
| 8 | PRKCA | β$\beta$-ситостерол |
| 9 | TGFB1I1 | β-ситостерол |
| 10 | ADRB2 | β$\beta$-ситостерол |
| 11 | RXRA | линолеилацетат; арахидоновая кислота |
| 12 | TNFRSF1A | арахидоновая кислота |
| 13 | TNFRSF1B | арахидоновая кислота |
| 14 | ALOX5 | арахидоновая кислота |
| 15 | SELP | арахидоновая кислота |
| 16 | C1R | арахидоновая кислота |
| 17 | COL1A2 | арахидоновая кислота |
| 18 | PPARG | арахидоновая кислота |
| 19 | PRKCB | арахидоновая кислота |
| 20 | NOS3 | арахидоновая кислота |
| 21 | PECAM1 | арахидоновая кислота |
| 22 | MAPK1 | арахидоновая кислота |
| 23 | ЭФР (эпидермальный фактор роста) | арахидоновая кислота |
Таблица 1: Пересекающиеся мишени между мишенями, связанными с соединениями по данным TCMSP, и генами, связанными с гломерулонефритом. Данные о связях соединение-мишень были получены из TCMSP, подвергнуты ручному удалению дубликатов и стандартизированы в соответствии с официальными символами генов человека с использованием UniProt.
| Название молекулы | ММ (молекулярная масса) | AlogP | ОБ (%) | Caco-2 | ГЭБ | Глубокое обучение | FASA | HL |
| Арахидоновая кислота | 304.52 | 6.41 | 45.57 | 1.2 | 0.58 | 0.2 | 0.28 | 4.39 |
| Линолеилацетат | 308.56 | 6.85 | 42.1 | 1.36 | 1.08 | 0.2 | 0.21 | 7.48 |
| β$\beta$-ситостерол | 414.79 | 8.08 | 36.91 | 1.32 | 0.99 | 0.75 | 0.23 | 5.36 |
| Пероксиэргостерол | 428.72 | 6.73 | 44.39 | 0.86 | 0.43 | 0.82 | 0.24 | 4.06 |
| Церевистерол | 432.76 | 5.26 | 39.52 | 0.35 | -0.29 | 0.77 | 0.22 | 5.08 |
| Холестерилпальмитат | 625.19 | 14.35 | 31.05 | 1.45 | 0.68 | 0.45 | 0.18 | 7.93 |
| Холестерин (CLR) | 386.73 | 7.38 | 37.87 | 1.43 | 1.13 | 0.68 | 0.2 | 4.52 |
Таблица 2: Потенциальные компоненты C. sinensis, отобранные из базы данных TCMSP с использованием критериев пероральной биодоступности и лекарственно-подобных свойств. Были отобраны соединения с пероральной биодоступностью не менее 30% и показателем лекарственно-подобных свойств не менее 0,18. MW — молекулярная масса; ALogP — расчетный коэффициент распределения октанол-вода; OB — пероральная биодоступность; Caco-2 — расчетная проницаемость через монослой клеток Caco-2; BBB — проницаемость через гематоэнцефалический барьер; DL — лекарственно-подобные свойства; FASA — доля отрицательной доступной площади поверхности; HL — период полувыведения.
Дополнительная таблица 1. Последовательности праймеров, использованных для количественной ПЦР в реальном времени в мезангиальных клетках клубочков крыс линии HBZY-1. Все последовательности представлены в направлении от 5′ к 3′.Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительный файл 1. Полноразмерные сканы иммуноблоттинга.Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Обсуждение
В данном исследовании были интегрированы методы сетевой фармакологии, молекулярного докинга с валидацией по референсным лигандам и эксперименты на уровне отдельных соединений для проверки гипотезы, связанной с PTGS2 и основанной на анализе потенциальных компонентов C. sinensis. Семь компонентов соответствовали заранее определенным критериям скрининга TCMSP, и 23 мишени совпали с набором генов, связанных с гломерулонефритом. Анализ белковых взаимодействий позволил выделить девять центральных мишеней, из которых PTGS2 была выбрана для докинга и экспериментальной оценки. Редокинг целекоксиба воспроизвел его кристаллографическую позу, в то время как β-ситостерол и линолеилацетат продемонстрировали умеренную прогнозируемую совместимость с областью докинга COX-2. В мезангиальных клетках HBZY-1 β-ситостерол снижал вызванную LPS экспрессию воспалительных генов, содержание COX-2 и выработку PGE2, а также снижал вызванную TGF-β1 экспрессию профибротических маркеров. Эти результаты связывают вычислительную приоритизацию с клеточными фенотипами, однако они подтверждают скорее предполагаемую регуляторную связь, чем определенный терапевтический механизм.
Результаты анализа обогащения отнесли перекрывающиеся мишени к биологическим процессам, связанным с воспалительной стимуляцией, клеточным стрессом, регуляцией липидов, сосудистой функцией и ремоделированием тканей. Обогащение ответов на липополисахарид и бактериальные продукты соответствовало воспалительной модели, использованной для экспериментальной валидации. Пути, связанные с TNF, IL-17, AGE-RAGE и HIF-1, также обеспечили правдоподобный функциональный контекст для гломерулярного воспаления и дезадаптивного ремоделирования6,17,18,19. Тем не менее, обогащение путей отражает статистическую концентрацию аннотированных генов и не устанавливает активацию или ингибирование пути под действием β-sitosterol12. Таким образом, выраженную аннотацию липидного обмена и атеросклероза следует интерпретировать как общность воспалительной, апоптотической и сосудистой биологии, а не как доказательство того, что атеросклероз представляет собой основной механизм заболевания при CGN. Аналогичным образом, данные TCMSP по пероральной биодоступности, лекарственному сходству (drug likeness) и записям о мишенях были использованы для приоритизации кандидатов.
PTGS2 оказался значимым узлом, поскольку он присутствовал в пересечении соединений и заболевания, демонстрировал высокую центральность в сети и был экспериментально связан с изменениями транскрипции Ptgs2, содержания белка COX-2 и продукции PGE2. Согласованность данных на вычислительном и клеточном уровнях подкрепляет обоснованность изучения ответа, ассоциированного с PTGS2. Однако это не означает, что PTGS2 однозначно патогенен в почках. Простаноиды, производные COX, участвуют в регуляции почечного кровотока, обмена солей и адаптивного гомеостаза и могут оказывать защитное или вредное воздействие в зависимости от типа клеток, распределения рецепторов, фазы заболевания и местной концентрации20,21. При экспериментальном нефрите целекоксиб снижал выработку PGE2, в то время как сам PGE2 влиял на экспрессию рецепторов простагландинов в мезангиальных клетках22. Эти наблюдения иллюстрируют, что биологические последствия воздействия COX-2 и PGE2 выходят за рамки простого линейного провоспалительного пути20,23. Сравнение с целекоксибом помогает разграничить экспрессию мишени и функцию фермента. Целекоксиб вызвал наиболее выраженное снижение уровня PGE2, что соответствует его роли функционального ингибитора COX-2, однако оказал более ограниченное влияние на экспрессию Ptgs2 и содержание белка COX-222. β-Ситостерол продемонстрировал более широкий спектр действия, который включал снижение уровней Tnf, Il6, Ptgs2, COX-2 и PGE2. Это различие не указывает на более высокую ингибирующую активность в отношении COX-2. Скорее, оно предполагает, что β-ситостерол может изменять воспалительное состояние, при котором индуцируется PTGS2, тогда как целекоксиб преимущественно ограничивает синтез простагландинов путем ингибирования каталитической активности. Для определения того, взаимодействует ли β-ситостерол с COX-2 функционально, потребуются прямые ферментативные анализы, исследования связывания с мишенью и пертурбация PTGS2.
Результаты сетевого анализа также позволяют предположить, что PTGS2 не следует рассматривать как изолированный молекулярный узел. MAPK1, JUNи PPARG были совместно приоритизированы в сети белковых взаимодействий, что позволило поместить синтез простаноидов в более широкий сигнальный и транскрипционный контекст. В мезангиальных клетках почек сфингозин-1-фосфат повышал экспрессию ЦОГ-2 и образование PGE2 посредством S1P-рецептор-2-зависимого сигналинга p42/p44 MAPK, что стало прямым доказательством того, что активность MAPK может предшествовать ответу ЦОГ-2/PGE2 в данном типе клеток.24Поскольку JUN является основным компонентом комплекса транскрипционного фактора AP-1; AP-1 может служить связующим звеном между активацией MAPK и PTGS2 транскрипцию. В соответствии с этой возможностью, 15-дезокси-Δ12,14-простагландин J2 подавлял экспрессию IL-1βиндуцированная экспрессия ЦОГ-2 совместно с активностью AP-1 в культивируемых мезангиальных клетках25В непочечных клеточных моделях ββ-ситостерол снижал активацию ERK и p38, а также NF-κСигналинг B, экспрессия ЦОГ-2 и выработка воспалительных цитокинов после воздействия ЛПС14,15Эти наблюдения обеспечивают правдоподобный контекст для скоординированного снижения показателей ФНО (фактор некроза опухоли), Il6, Ptgs2, COX-2 и PGE2, наблюдаемые в настоящем исследовании. Однако цитируемые βисследования $\beta$-ситостерола проводились на клетках микроглии или эндотелиальных клетках, а не на мезангиальных клетках почек, и MAPK1 фосфорилирование и JUN активность здесь не измерялась. Следовательно, полученные результаты не устанавливают MAPK1-зависимый или JUN-зависимый механизм PTGS2 регуляция посредством β$\beta$-ситостерол PPARG могут пересекаться с PTGS2центристская сеть посредством липид-чувствительной транскрипционной регуляции и модуляции профибротического фенотипа мезангиальных клеток, а не просто как линейный нижестоящий эффектор PTGS2В гломерулярных мезангиальных клетках природные и синтетические PPARγ лиганды ингибировали TGF-βиндуцированное 1 экспрессирование фибронектина, в то время как в отдельной работе было показано, что PPARγ агонисты снижали уровень TGF-βиндуцированная активация мезангиальных клеток, α—экспрессия SMA и накопление коллагена IV вследствие ослабления сигналинга PKA и CREB26,27Более поздние работы на мышах с диабетом и на стимулированных высокой концентрацией глюкозы гломерулярных мезангиальных клетках указали на то, что NF-κB/COX-2 и PPARγUCP2 в рамках параллельных регуляторных осей, связанных с воспалением и фиброзом почек, что указывает на возможную функциональную конвергенцию без демонстрации прямой PTGS2-PPARG сопряжение28Эти результаты обеспечивают биологически обоснованный контекст для снижения показателей Col1a1, Acta2и α-SMA, наблюдаемый в настоящем TGF-β1 модель. Однако, PPARG экспрессия, транскрипционная активность и взаимодействие с лигандом не оценивались. Следовательно, имеющиеся данные не позволяют attributed наблюдаемый профибротический ответ к PPARG активация или определение последовательности MAPK1-PTGS2-PPARG сигнальный путь. Важно отметить, что MAPK1 и PPARG были приоритизированы на уровне интегрированной сети «соединение — заболевание» и не должны интерпретироваться как прямые βмишени $\beta$-ситостерола на основе проведенного анализа.
Результаты докинг-анализа следует интерпретировать в рамках тех же доказательных границ. Значение RMSD при редокинге, составившее 0,876 Å, указывает на то, что выбранный протокол докинга позволяет воспроизвести известную ориентацию целекоксиба в структуре 3LN1. Значительно менее благоприятные прогнозируемые значения аффинности β-ситостерола и линолеил-ацетата по сравнению с целекоксибом подтверждают их пространственное соответствие заданной области, но не эквивалентную силу связывания или фармакологическое действие29,30. Разница в 0,3 kcal/mol между линолеил-ацетатом и β-ситостеролом слишком мала, чтобы на ее основании делать выводы о биологическом ранжировании. β-Ситостерол был выбран для последующего тестирования, так как его связь в сети сопровождалась более обширным массивом экспериментальных данных, касающихся воспаления и фиброза14,15,16. В предыдущих исследованиях сообщалось о снижении уровней TNF-α, IL-6 и COX-2 в микроглиальных и эндотелиальных клетках, подвергнутых воздействию LPS, наряду с изменениями в сигналинге MAPK и NF-κB14,15. Арахидоновая кислота требует иной интерпретации, поскольку она является эндогенным субстратом COX21. Ее присутствие в сети, полученной из TCMSP, не указывает на противовоспалительное ингибирующее действие и иллюстрирует тот факт, что связи между соединениями и мишенями, основанные на базах данных, не определяют направленность действия. Концентрационно-зависимое снижение маркеров воспаления, наблюдаемое в клетках HBZY-1, согласуется с этими более ранними клеточными данными, расширяя доказательную базу на контекст гломерулярного мезангиума14,15. Модель TGF-β1 была направлена на изучение отдельного аспекта патологического процесса31. β-Ситостерол снижал транскрипцию Col1a1 и Acta2, а также уменьшал содержание α-SMA после стимуляции TGF-β1. В предыдущей работе на альвеолярных эпителиальных клетках человека аналогично было обнаружено, что β-ситостерол снижает экспрессию коллагена, фибронектина и α-SMA, индуцированную TGF-β1, хотя в том исследовании изучались иная ткань и иной клеточный процесс16. Таким образом, настоящие результаты подтверждают активность против профибротического фенотипа в мезангиальных клетках, но не устанавливают ингибирование конкретного рецептора TGF-β или SMAD-зависимого механизма31.
Область интерпретации ограничена рядом факторов. Набор генов заболевания был сформирован с использованием общего термина «гломерулонефрит» и не является специфичным для какого-либо одного клинического или гистологического подтипа ХГН. Вычислительный анализ основывался на аннотациях человека, докинг проводился с использованием структуры COX-2 мыши, а эксперименты выполнялись на клетках HBZY-1 крысы. Ортологические связи позволяют проводить сравнение, однако сохраняется вероятность межвидовых различий в регуляции и распознавании лигандов. Одна иммортализованная линия мезангиальных клеток не может в полной мере отражать взаимодействия между мезангиальными клетками, подоцитами, эндотелиоцитами, инфильтрирующими иммунными клетками и тубулоинтерстициальным компартментом. В исследовании также не оценивались прямое связывание, ферментативная активность COX-2, зависимость от PTGS2, первичные клетки почек человека, эффективность in vivo, фармакокинетика или воздействие на почки. Наконец, тестирование определенного препарата β-ситостерола устраняет возникшее ранее противоречие между прогнозируемыми компонентами и нехарактеризованным экстрактом, но это не доказывает, что β-ситостерол обуславливает эффекты целого растения C. sinensis или что другие компоненты инертны.
В совокупности данные сетевого анализа, докинга и клеточных исследований позволяют рассматривать β-ситостерол в качестве репрезентативного кандидата, связанного со снижением воспалительной и профибротической активации в клетках HBZY-1. Результаты согласуются с модуляцией ответа, связанного с PTGS2/COX-2/PGE2, однако не устанавливают прямого связывания с COX-2, PTGS2-зависимой причинно-следственной связи или терапевтической эффективности при CGN. Требуются дальнейшие исследования по подтверждению взаимодействия с мишенью, генетические пертурбации, исследования на первичных клетках и исследования in vivo (Рисунок 7).
Раскрытие информации
Авторы заявляют об отсутствии конфликта интересов. Инструменты на базе искусственного интеллекта (ChatGPT, OpenAI) использовались для помощи в редактировании языка и предварительной разработке схематических рисунков. Генеративный искусственный интеллект применялся для подготовки предварительных графических эскизов к Рисункам 1A и 7, которые впоследствии были проверены и доработаны авторами для обеспечения соответствия описанным методам и результатам. Все результаты, полученные с помощью ИИ, были подвергнуты критической оценке и утверждены авторами. Авторы проверили окончательное содержание рисунков и приняли на себя полную ответственность за целостность и точность рукописи.
Благодарности
Данное исследование было поддержано Интегрированной специальностью по характеристикам нефропатии в традиционной китайской и западной медицине (ZYTSZK2-3) и Исследованием стратегии вмешательства ТКМ при хронической болезни почек с точки зрения управления хроническими заболеваниями (202240169).
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| Абсолютный этанол | Sigma-Aldrich/Merck | E7023 | 200 proof, неденатурированный этанол степени чистоты для молекулярной биологии; растворитель для стокового раствора β-ситостерола. |
| AutoDock Vina | Scripps Research | Version 1.1.2 | Моделирование молекулярного докинга |
| Бокс биологической безопасности | Thermo Fisher Scientific | 1300 Series A2 | Стерильные операции по культивированию клеток |
| Целекоксиб | MedChemExpress | HY-14398 | Селективный ингибитор COX-2, используемый в качестве положительного контроля; стоковый раствор 10 mM в DMSO. |
| Cell Counting Kit-8 | Dojindo Molecular Technologies, Inc. | CK04 | Колориметрический анализ WST-8 для определения жизнеспособности клеток; измерение абсорбции при 450 nm. |
| Система хемилюминесцентной визуализации | Bio-Rad Laboratories | ChemiDoc MP | Получение изображений вестерн-блоттинга |
| R-пакет clusterProfiler | Bioconductor | Version 4.10.0 | Анализ обогащения GO и KEGG |
| Инкубатор для культур клеток с CO2 | Thermo Fisher Scientific | Forma Series II 3111 | Инкубация культур клеток при 37 °C и 5% CO2 |
| Кроличьи моноклональные антитела к COX-2 (D5H5) | Cell Signaling Technology | 12282 | Валидированы для вестерн-блоттинга белков COX-2 человека, мыши и крысы; разведение 1:1,000. |
| Плагин CytoNCA | Cytoscape App Store | Version 2.1.6 | Топологический анализ хаб-мишеней |
| Программное обеспечение Cytoscape | Cytoscape Consortium | Version 3.8.0 | Визуализация и анализ сетей |
| Диметилсульфоксид | Sigma-Aldrich/Merck | D2650 | Стерильно фильтрованный BioReagent, ≥99.7%; растворитель для стокового раствора целекоксиба. |
| База данных DisGeNET | Integrative Biomedical Informatics Group | Not applicable | Поиск связей «заболевание-ген» для гломерулонефрита |
| Модифицированная среда Игла в модификации Дульбекко (DMEM) | Gibco/Thermo Fisher Scientific | C11995500BT | Базальная среда для культивирования клеток HBZY-1 |
| Субстрат для усиленной хемилюминесценции | Beyotime Biotechnology | P0018S | Визуализация полос вестерн-блоттинга |
| Фетальная бычья сыворотка | Gibco/Thermo Fisher Scientific | 10099-141C | Сывороточная добавка для культивирования клеток |
| Кроличьи моноклональные антитела к GAPDH (D16H11) | Cell Signaling Technology | 5174 | Контроль нагрузки для вестерн-блоттинга; реактивны с GAPDH человека, мыши и крысы; разведение 1:5,000 после внутренней оптимизации. |
| База данных GeneCards | Weizmann Institute of Science | NA | Поиск генов, ассоциированных с гломерулонефритом |
| GraphPad Prism | GraphPad Software | Version 9.0.0.121 | Статистический анализ данных экспериментов in vitro |
| Козьи антитела против IgG кролика, конъюгированные с HRP | Proteintech Group | SA00001-2 | Вторичные антитела для первичных кроличьих антител |
| Программное обеспечение ImageJ | National Institutes of Health | Version 1.54 | Денситометрический анализ вестерн-блоттинга |
| Инвертированный фазово-контрастный микроскоп | Olympus | CKX53 | Наблюдение за морфологией клеток |
| R-пакет org.Hs.eg.db | Bioconductor | Version 3.18.0 | Аннотация генов человека для анализа обогащения |
| Раствор пенициллина-стрептомицина | Gibco/Thermo Fisher Scientific | 15140122 | Антибиотическая добавка для культивирования клеток |
| Набор для определения параметров PGE2 | R&D Systems, a Bio-Techne brand | KGE004B | Многовидовой конкурентный ИФА для супернатантов культур клеток; диапазон анализа 39–2,500 pg/mL; колориметрическое детектирование при 450 nm. |
| База данных PharmGKB | Pharmacogenomics Knowledgebase | NA | Поиск мишеней, связанных с заболеванием |
| База данных PubChem | National Center for Biotechnology Information | NA | Поиск структур лигандов |
| Мембрана PVDF | Millipore/Merck | IPVH00010 | Мембрана для переноса белков при вестерн-блоттинге |
| Система молекулярной графики PyMOL | Schrödinger, LLC | Version 2.6.2 | Визуализация поз докинга |
| Программное обеспечение R | R Foundation for Statistical Computing | Version 4.3.2 | Анализ пересечения и обогащения мишеней |
| Линия гломерулярных мезангиальных клеток крысы (HBZY-1) | Procell Life Science & Technology Co., Ltd. | CL-0117 | Модель валидации мезангиальных клеток in vitro |
| Банк данных белков RCSB PDB | Research Collaboratory for Structural Bioinformatics | PDB ID: 3LN1 | Получение кристаллической структуры PTGS2/COX2 |
| Рекомбинантный белок TGF-β1 человека | PeproTech, a Thermo Fisher Scientific brand | 100-21-10UG | Рекомбинантный TGF-β1 человека, полученный из HEK293; профибротическая стимуляция при 10 ng/mL. |
| Система электрофореза SDS-PAGE | Bio-Rad Laboratories | Mini-PROTEAN Tetra | Разделение белков методом SDS-PAGE |
| База данных STRING | ELIXIR/STRING Consortium | Version 12.0 | Построение сети белок-белковых взаимодействий |
| База данных TCMSP | Traditional Chinese Medicine Systems Pharmacology Database | NA | Скрининг соединений-кандидатов из Cordyceps sinensis |
| База данных терапевтических мишеней (TTD) | Innovative Drug Research and Bioinformatics Group | NA | Поиск терапевтических мишеней |
| Первичные антитела к α-SMA | Proteintech Group | 14395-1-AP | Детекция экспрессии белка α-SMA |
| β-Ситостерол (чистота >98%) | MedChemExpress | HY-N0171A | CAS 83-46-5; определенное соединение, используемое для обработки клеток; стоковый раствор 10 mM в абсолютном этаноле. |
Ссылки
- Kidney Disease: Improving Global Outcomes Glomerular Diseases Work G. KDIGO 2021 Clinical Practice Guideline for the Management of Glomerular Diseases. Kidney Int. 2021;100(4S):S1–S276.
- Roccatello D. et al. From inflammation to renal fibrosis: A one-way road in autoimmunity? Autoimmun Rev. 2024;23(4):103466.
- Reiss AB. et al. Fibrosis in Chronic Kidney Disease: Pathophysiology and Therapeutic Targets. J Clin Med. 2024;13(7).
- Kant S, Kronbichler A, Geetha D. Principles of Immunosuppression in the Management of Kidney Disease: Core Curriculum 2022. Am J Kidney Dis. 2022;80(3):393–405.
- El Karoui K, Fervenza FC, De Vriese AS. Treatment of IgA Nephropathy: A Rapidly Evolving Field. J Am Soc Nephrol. 2024;35(1):103–16.
- Stenvinkel P. et al. Chronic Inflammation in Chronic Kidney Disease Progression: Role of Nrf2. Kidney Int Rep. 2021;6(7):1775–87.
- Tanaka S, Portilla D, Okusa MD. Role of perivascular cells in kidney homeostasis, inflammation, repair and fibrosis. Nat Rev Nephrol. 2023;19(11):721–32.
- Liu W. et al. Mechanism of Cordyceps sinensis and its Extracts in the Treatment of Diabetic Kidney Disease: A Review. Front Pharmacol. 2022;13:881835.
- Yan G. et al. The effects of Ophiocordyceps sinensis combined with ACEI/ARB on diabetic kidney disease: A systematic review and meta-analysis. Phytomedicine. 2023;108:154531.
- Li S, Pang W, Wang Y, Zhang Y. Cordyceps sinensis extract protects against acute kidney injury by inhibiting perforin expression in NK cells via the STING/IRF3 pathway. Aging (Albany NY). 2024;16(7):5887–904.
- Zhang Y, Li K, Zhang C, Liao H, Li R. Research Progress of Cordyceps sinensis and Its Fermented Mycelium Products on Ameliorating Renal Fibrosis by Reducing Epithelial-to-Mesenchymal Transition. J Inflamm Res. 2023;16:2817–30.
- Zhao L. et al. Network pharmacology, a promising approach to reveal the pharmacology mechanism of Chinese medicine formula. J Ethnopharmacol. 2023;309:116306.
- Ru J. et al. TCMSP: a database of systems pharmacology for drug discovery from herbal medicines. J Cheminform. 2014;6:13.
- Bi Y. et al. beta-Sitosterol Suppresses LPS-Induced Cytokine Production in Human Umbilical Vein Endothelial Cells via MAPKs and NF-kappaB Signaling Pathway. Evid Based Complement Alternat Med. 2023;2023:9241090.
- Sun Y, Gao L, Hou W, Wu J. beta-Sitosterol Alleviates Inflammatory Response via Inhibiting the Activation of ERK/p38 and NF-kappaB Pathways in LPS-Exposed BV2 Cells. Biomed Res Int. 2020;2020:7532306.
- Park YJ. et al. Effects of beta-Sitosterol from Corn Silk on TGF-beta1-Induced Epithelial-Mesenchymal Transition in Lung Alveolar Epithelial Cells. J Agric Food Chem. 2019;67(35):9789–95.
- Li DD. et al. RTEC-intrinsic IL-17-driven inflammatory circuit amplifies antibody-induced glomerulonephritis and is constrained by Regnase-1. JCI Insight. 2021;6(13).
- Martin-Carro B. et al. Role of Klotho and AGE/RAGE-Wnt/beta-Catenin Signalling Pathway on the Development of Cardiac and Renal Fibrosis in Diabetes. Int J Mol Sci. 2023;24(6).
- Naas S, Schiffer M, Schodel J. Hypoxia and renal fibrosis. Am J Physiol Cell Physiol. 2023;325(4):C999–C1016.
- Harris RC, Breyer MD. Physiological regulation of cyclooxygenase-2 in the kidney. Am J Physiol Renal Physiol. 2001;281(1):F1–11.
- Calder PC. Eicosanoids. Essays Biochem. 2020;64(3):423–41.
- Waldner C, Heise G, Schror K, Heering P. COX-2 inhibition and prostaglandin receptors in experimental nephritis. Eur J Clin Invest. 2003;33(11):969–75.
- Pan Y. et al. Myeloid cyclooxygenase-2/prostaglandin E2/E-type prostanoid receptor 4 promotes transcription factor MafB-dependent inflammatory resolution in acute kidney injury. Kidney Int. 2022;101(1):79–91.
- Volzke A, Koch A, Meyer Zu Heringdorf D, Huwiler A, Pfeilschifter J. Sphingosine 1-phosphate (S1P) induces COX-2 expression and PGE2 formation via S1P receptor 2 in renal mesangial cells. Biochim Biophys Acta. 2014;1841(1):11–21.
- Sawano H. et al. 15-Deoxy-Delta12,14-prostaglandin J2 inhibits IL-1beta-induced cyclooxygenase-2 expression in mesangial cells. Kidney Int. 2002;61(6):1957–67.
- Guo B. et al. Peroxisome proliferator-activated receptor-gamma ligands inhibit TGF-beta 1-induced fibronectin expression in glomerular mesangial cells. Diabetes. 2004;53(1):200–8.
- Zou R. et al. PPARgamma agonists inhibit TGF-beta-PKA signaling in glomerulosclerosis. Acta Pharmacol Sin. 2010;31(1):43–50.
- Wei J. et al. PP2 Ameliorates Renal Fibrosis by Regulating the NF-kappaB/COX-2 and PPARgamma/UCP2 Pathway in Diabetic Mice. Oxid Med Cell Longev. 2021;2021:7394344.
- Yang C, Chen EA, Zhang Y. Protein-Ligand Docking in the Machine-Learning Era. Molecules. 2022;27(14).
- Quiroga R, Villarreal MA. Developing Generalizable Scoring Functions for Molecular Docking: Challenges and Perspectives. Curr Med Chem. 2025;32(28):5960–72.
- Li J. et al. TGF-beta/Smad signaling in chronic kidney disease: Exploring post-translational regulatory perspectives (Review). Mol Med Rep. 2024;30(2).