Используя методы массового, одноклеточного и пространственного транскриптомного анализа в сочетании с моделированием выживаемости на основе машинного обучения и экспериментальной валидацией, в данном исследовании PPARG определен как потенциальный прогностический ген, связанный с клеточным старением при остеосаркоме, а снижение его экспрессии ассоциировано с неблагоприятным прогнозом выживаемости в когорте TARGET-OS, а также с определенными сосудистыми и микроокруженными характеристиками.
Исследовательская статья
Интегративный анализ общего, одноклеточного и пространственного транскриптомов позволяет определить PPARG как потенциальный прогностический ген, связанный с клеточным старением при остеосаркоме
* These authors contributed equally
В этой статье
Краткое содержание
Аннотация
Остеосаркома остается сложным заболеванием в случаях метастатического, рецидивирующего или резистентного к терапии течения. Данное исследование было направлено на выявление прогностических генов, связанных с клеточным старением, и характеристику их пространственного контекста. Парный анализ дифференциальной экспрессии был проведен в наборе данных GSE99671 с использованием DESeq2 с последующим пересечением с набором генов старения CellAge. Транскриптомные данные когорты TARGET-OS были получены из UCSC Xena. Кандидатные гены оценивались с помощью одномерной регрессии Кокса, анализа Каплана-Мейера, анализа временно-зависимых рабочих характеристик приемника (ROC-анализа), LASSO-регрессии Кокса, повторного LASSO-анализа и моделирования случайного леса выживаемости, при этом клинические ковариаты были включены в скорректированные модели Кокса. Для характеристики использовались функциональное обогащение, анализ иммунного микроокружения, одноклеточная транскриптомика, пространственная транскриптомика SP_BS3, валидация экспрессии в GSE36001, а также qRT-PCR и вестерн-блоттинг в клетках остеосаркомы 143B и остеобластах. В GSE99671 было выявлено 2 248 дифференциально экспрессируемых генов со скорректированным P < 0.05, и их пересечение с 866 генами CellAge дало 105 дифференциально экспрессируемых генов, связанных со старением. В TARGET-OS более низкая экспрессия PPARG была связана с более высоким риском смертности (одномерный HR = 0.603, 95% CI = 0.454–0.802, P = 0.000494; скорректированный HR = 0.224, 95% CI = 0.085–0.589, P = 0.00241). Добавление PPARG в клиническую модель увеличило C-индекс с 0.707 до 0.829. PPARG был понижен в экспрессии как в GSE99671, так и в GSE36001, а qRT-PCR и вестерн-блоттинг подтвердили более низкую экспрессию мРНК и белка PPARG в клетках остеосаркомы 143B по сравнению с остеобластами. Одноклеточный анализ локализовал PPARG в эндотелиальных клетках, перицитах, макрофагах/моноцитах и опухоль-ассоциированных стромальных клетках. Пространственный транскриптомный анализ показал слабую, но значимую положительную корреляцию между экспрессией PPARG и показателями старения CellAge, а также показателями, связанными с эндотелием и перицитами. Эти результаты позволяют рассматривать PPARG в качестве кандидатного прогностического биомаркера на основе CellAge, связанного с неблагоприятной выживаемостью и характеристиками сосудистого микроокружения при остеосаркоме, и обосновывают исследование его потенциальной значимости для стратификации риска и связанного со старением опухолевого микроокружения. Набор GSE36001 послужил только для внешней валидации экспрессии; независимая валидация выживаемости не проводилась.
Введение
Остеосаркома является наиболее распространенной первичной злокачественной опухолью костей у детей, подростков и молодых людей1. Хотя многокомпонентная химиотерапия в сочетании с хирургическим вмешательством улучшила результаты лечения при локализованных формах заболевания2,3, пациенты с метастатической, рецидивирующей или резистентной к терапии остеосаркомой по-прежнему имеют низкие показатели долгосрочной выживаемости3,4. Появляющиеся данные свидетельствуют о том, что индуцированное окислительным стрессом эпигенетическое ремоделирование может способствовать метастатической адаптации и прогрессированию опухоли, что подчеркивает сложную молекулярную пластичность, лежащую в основе агрессивных фенотипов рака5. Количество надежных биомаркеров, которые были бы одновременно клинически интерпретируемыми и биологически информативными, остается ограниченным. Следовательно, важной задачей остается выявление молекулярных характеристик, отражающих гетерогенность остеосаркомы и прогностический риск на нескольких уровнях данных.
Клеточное старение представляет собой программу стабильной остановки клеточного цикла, индуцируемую дисфункцией теломер, повреждением ДНК, окислительным стрессом, активацией онкогенов и терапевтическим воздействием6. Старение может ограничивать аберрантную пролиферацию; однако стареющие клетки также способны изменять микроокружение опухоли посредством программ воспаления, секреции хемокинов, факторов роста и ремоделирования внеклеточного матрикса7,8. При остеосаркоме гены, связанные со старением, могут отражать как внутренние состояния стресса опухолевых клеток, так и незлокачественные компоненты микроокружения, однако их прогностическая значимость и пространственная организация до сих пор не оценивались систематически.
PPARG кодирует гамма-рецептор, активируемый пролифератором пероксисом, который представляет собой лиганд-активируемый ядерный рецептор, участвующий в липидном обмене, регуляции воспаления, клеточной дифференцировке и иммунной модуляции9. Роль PPARG при раке зависит от контекста10. В одних случаях PPARG ассоциируется с дифференцировкой и противовоспалительными состояниями, тогда как в других он может поддерживать адаптивные программы опухоли или стромы. Тем не менее, характер его экспрессии, прогностическая значимость, а также клеточная и пространственная локализация при остеосаркоме остаются недостаточно изученными.
В настоящем исследовании были выявлены дифференциально экспрессируемые гены в наборе данных GSE99671, которые затем были пересечены с набором генов старения CellAge, что позволило определить 105 дифференциально экспрессируемых генов, связанных со старением. Далее для определения PPARG в качестве ключевого гена использовались данные о выживаемости TARGET-OS, несколько подходов машинного обучения и моделирования выживаемости, а также клиническая корректировка. Характеристики PPARG были дополнительно изучены с помощью общего функционального анализа и анализа иммунного микроокружения, одноядерной транскриптомики, пространственной транскриптомики, внешней валидации экспрессии по данным GSE36001, а также с помощью qRT-PCR и вестерн-блоттинга на линии клеток остеосаркомы 143B и человеческих остеобластах.
Протокол
В данном исследовании для анализа и валидации использовались общедоступные наборы данных и клеточные линии; участие людей или использование клинических образцов тканей не предусматривалось, в связи с чем одобрение комитета по этике не требовалось.
Анализ дифференциальной экспрессии в пересечении GSE99671 и CellAge
Данные необработанных подсчетов (raw counts) и информация о группировке образцов для GSE99671 были получены из GEO11,12. Были проанализированы восемнадцать пар образцов остеосаркомы и соответствующих им нормальных тканей. Парный анализ дифференциальной экспрессии проводили с помощью DESeq2 с использованием формулы дизайна ~ pair_id + condition, где pair_id учитывал эффекты парных индивидуальных различий, а condition позволял сравнить опухолевую ткань с нормальной13. Были отобраны гены, количество чтений которых составляло не менее 10 как минимум в трех образцах. Дифференциальная экспрессия определялась как скорректированный P < 0.05, а для визуализации применялся более строгий порог: скорректированный P < 0.05 и |log2FC| ≥ 1. Гены с дифференциальной экспрессией были пересечены с 866 генами старения из базы CellAge после преобразования символов генов в верхний регистр14. Анализ дифференциальной экспрессии выполняли в R (версия 4.3.2) с использованием DESeq2 (версия 1.40.2), а скорректированные значения P рассчитывали методом Бенджамини-Хохберга.
Когорта TARGET-OS и прогностическое моделирование
Транскриптомные и клинические данные TARGET-OS были получены из базы данных UCSC Xena15. Были извлечены значения экспрессии для 105 дифференциально экспрессируемых генов, связанных с клеточным старением. В анализ были включены восемьдесят пять пациентов с полными данными о времени выживания, статусе выживаемости и экспрессии генов-кандидатов, при этом было зафиксировано 27 случаев смерти. Стандартизированные значения экспрессии генов анализировали с помощью одномерной регрессии Кокса16, анализа выживаемости по методу Каплана-Мейера и анализа зависимых от времени рабочих характеристик приемника (ROC-анализа)17. Для оценки стабильности отбора и значимости переменных использовали LASSO-регрессию Кокса18, повторный анализ стабильности LASSO и моделирование случайного леса выживаемости19. Интегральный балл хаба и клинически-интегрированный ранжированный список рассчитывали с использованием четких бинарных критериев, подробно описанных ниже. Анализ выживаемости проводили в среде R с использованием пакетов survival (версия 3.5-7), timeROC (версия 0.4), glmnet (версия 4.1-8) и randomForestSRC (версия 3.2.2). Для одномерного скрининга 105 генов-кандидатов по методу Кокса применяли поправку Бенджамини-Хохберга на ложноположительные результаты (FDR); гены с FDR < 0.05 считались статистически значимыми.
Предварительная обработка модели, группировка по PPARG и зависимый от времени ROC-анализ
Из выборки 85 пациентов с 27 случаями летального исхода были исключены гены с нулевой дисперсией; пропущенные значения экспрессии генов-кандидатов были заполнены медианными значениями, а экспрессия каждого гена-кандидата была стандартизирована с помощью z-оценки. Для анализа Каплана-Мейера экспрессия была разделена дихотомически по медиане когорты: значения строго выше медианы относили к группе с высокой экспрессией, а значения на уровне медианы или ниже — к группе с низкой экспрессией (PPARG: n = 42 с высокой и n = 43 с низкой экспрессией). Лог-ранговые критерии были двусторонними. Для зависимого от времени ROC-анализа использовали пакет timeROC с параметром event cause = 1, маргинальным взвешиванием по обратной вероятности цензурирования, временем оценки 365, 1 095 и 1 825 дней и iid = FALSE. Чтобы более высокие значения маркера последовательно указывали на более высокий риск, для генов с положительными коэффициентами Кокса использовали стандартизированные значения экспрессии, а для защитных генов с отрицательными коэффициентами значения умножали на -1.
LASSO и повторный LASSO
Модель Cox LASSO была построена с помощью glmnet с параметрами family = "cox", alpha = 1, предварительной стандартизацией z-score (следовательно, standardize = FALSE), пятикратной перекрестной проверкой, type.measure = "deviance" и случайным числом seed 123. Для основного решения коэффициентов использовалось значение lambda.min. Анализ стабильности включал повторение той же пятикратной перекрестной проверки 300 раз; для повтора b использовалось число seed 1000 + b (b = 1,...,300). Для каждого гена частота отбора определялась как доля повторов с ненулевым коэффициентом при lambda.min; также фиксировался ненулевой отбор при lambda.1se.
Случайный лес выживаемости
Модель случайного леса выживаемости была построена для всех 105 стандартизированных генов-кандидатов с помощью randomForestSRC (версия 3.2.2), используя seed 123, ntree = 1,000, importance = TRUE и na.action = "na.impute". Для данных выживаемости были сохранены значения по умолчанию пакета: лог-ранговое разделение, mtry = 11 (округление до верхнего целого квадратного корня из 105 предикторов), минимальный размер терминального узла = 15, nsplit = 10 случайных точек разделения, выборка без возвращения с долей выборки 0.632 и оценка значимости переменных по методу anti-split.
Интегральный балл центрального узла
Каждому из 105 дифференциально экспрессируемых генов-кандидатов, связанных с CellAge, начислялся один балл за каждый из шести бинарных критериев: (1) принадлежность к пересечению дифференциально экспрессируемых генов и базы CellAge (все кандидаты получили этот балл, так как условием для оценки было скорректированное P < 0,05); (2) номинальное значение P < 0,05 при одномерном анализе Кокса; (3) значение P < 0,05 при логранговом критерии Каплана-Мейера; (4) среднее значение зависимости AUC от времени за 3 и 5 лет ≥ 0,65; (5) частота отбора в repeated-LASSO при lambda.min на уровне 70-го процентиля или выше среди кандидатов и > 0; и (6) значимость в random-survival-forest на уровне 70-го процентиля или выше среди кандидатов и > 0. Все критерии имели равный единичный вес, что позволило получить балл центрального узла от 0 до 6; гены с баллом ≥ 4 были отобраны для клинической корректировки (18 генов). Также были представлены значения FDR для одномерного анализа Кокса, и FDR < 0,05 использовалось для обозначения значимости при множественном тестировании, однако в качестве заранее определенного индикатора оценки использовалось номинальное значение P < 0,05.
Клинически-интегрированный рейтинг
После объединения данных об экспрессии и клинических записей скорректированный анализ включал 40 пациентов с полными данными по ковариатам и 13 случаев смерти. Итоговый балл представлял собой начальный балл центрального гена (hub score) плюс один балл за каждый из семи критериев: скорректированное P Кокса < 0,05, скорректированное P Кокса < 0,10, чувствительное к изменениям P Кокса < 0,05 после исключения радикальной хирургии, чувствительное к изменениям P Кокса < 0,10, среднее значение AUC за 3 и 5 лет ≥ 0,65, P критерия отношения правдоподобия < 0,10 для модели «клинические данные плюс ген» по сравнению с моделью «только клинические данные» и delta AIC < 0. Поскольку пороги 0,05 и 0,10 были вложенными, значение P < 0,05 приносило два балла, что придавало больший вес явно значимым скорректированным и чувствительным доказательствам по Коксу. Общий диапазон баллов составлял от 0 до 13; при равенстве баллов приоритет отдавался меньшему значению скорректированного P Кокса, а затем большему среднему значению AUC за 3/5 лет. PPARG получил все шесть начальных баллов и все семь баллов за клиническую интеграцию (13/13), заняв первое место. Улучшение C-индекса было представлено описательно и не оценивалось в баллах.
Клиническая корректировка
Кандидатные хаб-гены были интегрированы с клиническими переменными TARGET-OS, включая пол, возраст, статус заболевания при постановке диагноза, локализацию первичной опухоли, конкретный отдел опухоли и радикальное хирургическое вмешательство. В клинически скорректированный анализ были включены сорок пациентов с полными данными экспрессии и клиническими записями, в том числе 13 случаев смерти. Модели Кокса, содержащие только клинические переменные, сравнивались с моделями, включающими клинические переменные и экспрессию генов. Для оценки улучшения модели использовались C-индекс, информационный критерий Акаике (AIC) и значения P при тесте отношения правдоподобия. Анализ чувствительности проводился после исключения переменной хирургического вмешательства.
Функциональный анализ обогащения и анализ иммунного микроокружения
Образцы TARGET-OS были стратифицированы в зависимости от экспрессии PPARG. Дифференциальная экспрессия между группами с высокой и низкой экспрессией PPARG использовалась для создания ранжированных списков генов для анализа обогащения наборов генов (GSEA)20. Были представлены следующие пути: Nemeth Inflammatory Response LPS Up, Burton Adipogenesis 5, Burton Adipogenesis 6, Krieg KDM3A Targets Not Hypoxia, Reactome: Transcriptional Regulation By TP53, Fulcher Inflammatory Response Lectin Vs LPS Dn, Hollmann Apoptosis Via CD40 Dn, Zhou Inflammatory Response Live Dn, WP: Fatty Acids And Lipoproteins Transport In Hepatocytes, Sweet Lung Cancer KRAS Up, KEGG Medicus Pathogen HIV Tat To TLR2/4 NF-kB Signaling Pathway и Reactome: Fatty Acids. Был рассчитан совокупный показатель старения по базе CellAge, а для оценки взаимосвязей между PPARG и генами старения или сигнатурами иммунного микроокружения использовался корреляционный анализ Спирмена21. Различия в показателях микроокружения между группами с высокой и низкой экспрессией PPARG оценивались с помощью непараметрических тестов с поправкой на множественное тестирование.
Транскриптомный анализ единичных клеток
Опубликованный набор данных транскриптома единичных клеток остеосаркомы человека был проанализирован с использованием предварительно обработанного объекта, для которого уже были проведены контроль качества, снижение размерности, кластеризация и ручная аннотация22,23,24. Всего было включено 68 336 клеток и 32 297 генов. Для интерпретации в основном тексте аннотации были упрощены до 13 основных типов клеток: B-клетки, CAF, циклические клетки, эндотелиальные клетки, эритроидные клетки, макрофаги/моноциты, злокачественные клетки остеосаркомы, миогенные клетки, нейтрофилы, остеокластоподобные клетки, перициты, T/NK-клетки и опухолеассоциированные стромальные клетки. Для визуализации локализации PPARG использовались методы снижения размерности, графики экспрессии признаков, точечные диаграммы (dot plots) и скрипичные диаграммы (violin plots). PPARG-положительными считались клетки с уровнем экспрессии выше нуля. Различия между типами клеток оценивали с помощью критериев Краскела-Уоллиса и Вилкоксона с поправкой Бенджамини-Хохберга. Анализ единичных клеток выполняли в среде R с использованием пакета Seurat (версия 5.0.1).
Пространственный транскриптомный анализ
Образец для пространственной транскриптомики SP_BS3 был использован для построения объекта пространственной экспрессии25,26. Пороги контроля качества были установлены как nFeature_Spatial ≥ 200 и percent.mt ≤ 30, в результате чего для анализа осталось 4 572 спота. Данные были нормализованы, отобрано 3 000 высоковариабельных генов, а также выполнены масштабирование данных, анализ главных компонент, построение графа соседства, пространственная кластеризация спотов и снижение размерности. Показатель старения CellAge для пространственных данных был рассчитан после удаления PPARG из набора генов, чтобы избежать круговой корреляции. Были сконструированы и оценены сигнатуры эндотелиальных клеток, перицитов, макрофагов/моноцитов, опухоль-ассоциированной стромы, злокачественной остеосаркомы и остеокластоподобных клеток. Для оценки взаимосвязи между экспрессией PPARG и пространственными показателями использовался корреляционный анализ Спирмена. Перенос меток (label transfer) выполнялся с использованием набора данных секвенирования единичных клеток в качестве эталона и пространственного набора данных в качестве запроса для вывода прогнозируемых показателей типов клеток для каждого спота23,24. Пространственный транскриптомный анализ проводился в среде R с использованием пакета Seurat (версия 5.0.1), а ко всем значениям P пространственной корреляции была применена поправка Бенджамини-Хохберга для FDR.
Внешняя валидация экспрессии в GSE36001
Набор данных GEO GSE36001 использовался исключительно в качестве независимой когорты для валидации экспрессии; поскольку данные о выживаемости отсутствовали, он не использовался для прогностической валидации11,27. Набор данных включал 19 образцов остеосаркомы и шесть образцов нормального контроля. Для преобразования идентификаторов зондов в символы генов использовалась аннотация платформы GPL6102. В случаях, когда несколько зондов соответствовали одному гену, сохранялся зонд с самым высоким средним уровнем экспрессии. Дифференциальная экспрессия между опухолевой и нормальной группами оценивалась с помощью limma28. Анализы проводились в среде R с использованием limma (версия 3.56.2), а скорректированные значения P рассчитывались по методу Бенджамини-Хохберга.
Валидация с помощью qRT-PCR и вестерн-блоттинга
Экспериментальная валидация проводилась с использованием линии клеток остеосаркомы человека 143B и клеток остеобластов человека. Клетки остеосаркомы культивировали в модифицированной среде Игла в модификации Дульбекко, дополненной 10% фетальной бычьей сывороткой и 1% пенициллина-стрептомицина, при 37 °C в увлажненной атмосфере с содержанием 5% CO₂, и пересевали с использованием 0,25% трипсин-EDTA при достижении конфлюэнтности 80%–90%. Клетки остеобластов человека содержали в рекомендуемых условиях культивирования. Было подтверждено отсутствие микоплазменного заражения во всех клеточных линиях. Для qRT-PCR выделяли суммарную РНК с помощью реагента для экстракции РНК на основе фенол-гуанидиния, концентрацию и чистоту РНК оценивали спектрофотометрически. 1 µg суммарной РНК подвергали обратной транскрипции с использованием реагента для обратной транскрипции согласно рекомендуемому протоколу. qRT-PCR проводили с использованием химии на основе флуоресцентного ДНК-связывающего красителя при следующих условиях циклирования: начальная денатурация при 95 °C в течение 30 s, затем 40 циклов при 95 °C в течение 5 s и 60 °C в течение 30 s, с последующим анализом кривых плавления для подтверждения специфичности амплификации. Каждую реакцию проводили в трех технических повторностях, было выполнено три независимых биологических эксперимента. В качестве внутреннего контроля использовали GAPDH, а относительную экспрессию PPARG рассчитывали методом 2-ΔΔCt29. Прямой праймер для PPARG имел последовательность 5'-CGAAGACATTCCATTCACAAGAACAG-3', обратный праймер — 5'-AGATGCAGGCTCCACTTTGATTG-3'.
Для анализа экспрессии белка PPARG был выполнен вестерн-блоттинг. Лизис клеток проводили в буфере для радиоиммунопреципитационного анализа с добавлением ингибиторов протеаз, а концентрацию белка определяли с помощью метода бицинкининовой кислоты. Равные количества белка (30 µg (на дорожку) разделяли методом электрофореза в 10%-ном полиакриламидном геле с додецилсульфатом натрия и переносили на поливинилиденфторидные мембраны. После блокировки 5%-ным раствором обезжиренного молока в течение 1 часа при комнатной температуре мембраны инкубировали в течение ночи при 4 °C с первичными антителами к PPARG (1:1000) и GAPDH (1:5000), с последующей инкубацией с вторичными антителами, конъюгированными с пероксидазой хрена (1:5000), в течение 1 ч при комнатной температуре. Визуализацию белковых полос проводили методом хемилюминесценции; было выполнено три независимых эксперимента. Интенсивность полос количественно оценивали с помощью программного обеспечения для анализа изображений.30Межгрупповые различия анализировали с помощью двухстороннего непарного t-критерия Стьюдента т тесты. Данные представлены в виде среднего значения ± стандартное отклонение (SD) по результатам трех независимых экспериментов, и P < Значение 0,05 считалось статистически значимым. Статистический анализ экспериментальных данных проводили с помощью программного обеспечения для статистического анализа (версия 9.0).
Статистический анализ
Если не указано иное, весь биоинформатический анализ проводился в программе R (версия 4.3.2). Двусторонний P значения < 0,05 считались статистически значимыми. Корреляции оценивали с помощью коэффициента ранговой корреляции Спирмена (ρ). Коррекция на множественное тестирование проводилась с использованием метода контроля частоты ложноположительных результатов (FDR) Бенджамини-Хохберга, где это было применимо. Экспериментальные данные представлены в виде среднего значения ± SD, а сравнение проводили с помощью двухстороннего непарного t-критерия Стьюдента т тесты. Экспериментальный статистический анализ проводили с использованием программного обеспечения для статистического анализа (версия 9.0).
Результаты
В GSE99671 выявлено 105 дифференциально экспрессируемых генов, связанных с клеточным старением (база данных CellAge)
GSE99671 включал 36 образцов из 18 пар тканей. После фильтрации по низкому количеству прочтений было сохранено 16 683 гена. При скорректированном P < 0.05 дифференциально экспрессировались 2 248 генов. При более строгом пороге скорректированного P < 0.05 и |log2FC| ≥ 1 значимыми оказались 594 гена, включая 102 гена с повышенной экспрессией и 492 гена с пониженной экспрессией в опухолях (Figure 1A,B). Пересечение 2 248 дифференциально экспрессируемых генов с 866 генами из CellAge позволило выявить 105 дифференциально экспрессируемых генов, связанных со старением (Figure 1C). Экспрессия PPARG была снижена в GSE99671 (log2FC = -0.644, P = 0.00451, скорректированное значение P = 0.0309). В 13 из 18 пар экспрессия PPARG была выше в нормальной ткани, чем в опухолевой ткани, при значении P по парному критерию Вилкоксона = 0.0294 (Figure 1D).
Многомодельный прогностический скрининг определил PPARG в качестве основного гена-кандидата
В TARGET-OS были включены 85 пациентов с 27 случаями летального исхода. Интегрированный скрининг 105 дифференциально экспрессируемых генов, связанных со старением, с использованием одномерной регрессии Кокса, анализа Каплана-Мейера, ROC-анализа выживаемости, LASSO, повторного LASSO и моделирования случайного леса выживаемости позволил выявить 18 генов-кандидатов в хабы до проведения клинической корректировки (Рисунок 2A). В одномерном анализе Кокса PPARG был ассоциирован с общей выживаемостью (HR = 0.603, 95% CI = 0.454–0.802, P = 0.000494, FDR = 0.0447), что указывает на связь более высокой экспрессии PPARG с более низким риском смертности. Анализ Каплана-Мейера при сравнении групп с высокой и низкой экспрессией показал P = 0.00784 (Рисунок 2B). Зависимые от времени значения AUC через 1, 3 и 5 лет составили 0.603, 0.760 и 0.776 соответственно (Рисунок 2C). PPARG продемонстрировал частоту выбора при повторном LASSO 0.920 и показатель важности в случайном лесе выживаемости 0.0398 (Рисунок 2D–F). Начальный балл хаба для PPARG составил 6/6, так как он соответствовал всем шести предварительно определенным критериям скрининга.
Клиническая корректировка подтвердила прогностическую значимость PPARG
После включения клинических ковариат PPARG остался значимо связан с общей выживаемостью (скорректированный HR = 0.224, 95% CI = 0.085–0.589, P = 0.00241; Рисунок 2G). Модель, основанная только на клинических данных, имела C-индекс 0.707 и AIC 89.921 (Дополнительная таблица 1). Добавление PPARG увеличило C-индекс до 0.829, снизило AIC до 78.466 и значительно улучшило соответствие модели согласно критерию отношения правдоподобия (P = 0.000244; Дополнительная таблица 2, Рисунок 2H,I). Анализ чувствительности после исключения радикального хирургического вмешательства подтвердил протективную связь PPARG (HR = 0.249, P = 0.00185; Дополнительная таблица 3, Рисунок 2J). PPARG получил наивысший интегрированный клинический балл, равный 13 (начальный хабовый балл 6 плюс семь баллов за клиническую интеграцию), и показал итоговые значения AUC за 3 и 5 лет, равные 0.770 и 0.813 соответственно (Рисунок 2K).
Функциональные и иммунные характеристики микроокружения, связанные с PPARG
GSEA при сравнении групп с высоким и низким уровнем PPARG выявил Nemeth Inflammatory Response LPS Up, Burton Adipogenesis 5, Burton Adipogenesis 6, Krieg KDM3A Targets Not Hypoxia, Reactome: Transcriptional Regulation By TP53, Fulcher Inflammatory Response Lectin Vs LPS Dn, Hollmann Apoptosis Via CD40 Dn, Zhou Inflammatory Response Live Dn, WP: Fatty Acids And Lipoproteins Transport In Hepatocytes, Sweet Lung Cancer KRAS Up, KEGG Medicus Pathogen HIV Tat To TLR2/4 NF-kB Signaling Pathway и Reactome: Fatty Acids (Рисунок 3A). В данных bulk TARGET-OS PPARG не имел значимой корреляции с общим баллом старения CellAge (Spearman ρ = 0.022, P = 0.837; Рисунок 3B), однако он коррелировал с несколькими отдельными генами CellAge (Рисунок 3C). Анализ иммунного микроокружения показал положительные корреляции между PPARG и макрофагами (ρ = 0.485, FDR = 2.7 × 10⁻⁵), CD8 T-клетками (ρ = 0.410, FDR = 5.88 × 10⁻⁴), сигнатурой остеокластоподобных клеток (ρ = 0.383, FDR = 0.00120), нейтрофилами (ρ = 0.376, FDR = 0.00120) и дендритными клетками (ρ = 0.370, FDR = 0.00123). Опухоли с высоким уровнем PPARG характеризовались более выраженными сигнатурами остеокластоподобных клеток, макрофагов, CD8 T-клеток, дендритных клеток, моноцитов, нейтрофилов, NK-клеток и эндотелиальных клеток после коррекции FDR (Дополнительная таблица 4, Рисунок 3D,E).
Транскриптомика отдельных клеток локализовала PPARG в сосудистых и микроокружающих компартментах
Набор данных по отдельным клеткам содержал 68 336 клеток и 32 297 генов. Экспрессия PPARG значительно различалась между типами клеток (Рисунок 4A). Самая высокая средняя экспрессия наблюдалась в эндотелиальных клетках (средняя экспрессия = 0.540; доля положительных клеток = 44.33%), перицитах (средняя экспрессия = 0.439; доля положительных клеток = 41.61%), макрофагах/моноцитах (средняя экспрессия = 0.363; доля положительных клеток = 31.62%) и стромальных клетках, ассоциированных с опухолью (средняя экспрессия = 0.361; доля положительных клеток = 44.10%; Рисунок 4B–E). Подмножество злокачественных клеток остеосаркомы экспрессировало PPARG (средняя экспрессия = 0.163; доля положительных клеток = 16.70%), однако экспрессия в злокачественных клетках остеосаркомы не была значимо выше, чем в других клетках (FDR = 0.151). Эти результаты свидетельствуют о том, что экспрессия PPARG при остеосаркоме преимущественно отражает состояния сосудистого, миелоидного и стромального микроокружения, а не ограничена только злокачественными клетками (Рисунок 4F).
Пространственная транскриптомика связала PPARG с пространственными состояниями, связанными со старением, и сосудистыми нишами
После контроля качества было сохранено 4 572 пространственных спота SP_BS3, которые были разделены на семь пространственных кластеров (Рисунок 5A). На Рисунке 5B показано пространственное распределение nFeature_Spatial (количество обнаруженных генов на спот). Отдельно было установлено, что из 866 генов CellAge 845 были найдены в матрице пространственной экспрессии (97,58%). PPARG демонстрировал фокальную пространственную экспрессию (Рисунок 5C). Пространственная оценка старения по CellAge, рассчитанная после исключения PPARG, показала слабую, но статистически значимую положительную корреляцию с экспрессией PPARG (ρ = 0.0692, P = 3.0 × 10⁻⁶, FDR = 1.9 × 10⁻⁵; Рисунок 5D). Оценка пространственных ниш выявила положительную корреляцию между PPARG и показателем эндотелия (ρ = 0.0433, FDR = 0.00592) и показателем перицитов (ρ = 0.0367, FDR = 0.0181), в то время как PPARG отрицательно коррелировал с показателем злокачественной остеосаркомы (ρ = -0.0592, FDR = 0.000219) и показателем стромы опухоли (ρ = -0.0531, FDR = 0.000774; Дополнительная таблица 5, Рисунок 5E). Анализ переноса меток аналогичным образом показал положительную корреляцию с прогностическим показателем эндотелия (ρ = 0.0507, FDR = 0.00120) и прогностическим показателем перицитов (ρ = 0.0394, FDR = 0.0123), а также отрицательную корреляцию с прогностическим показателем клеток злокачественной остеосаркомы (ρ = -0.0699, FDR = 1.1 × 10⁻⁵; Рисунок 5F–H).
Внешний анализ экспрессии и экспериментальная валидация подтвердили снижение экспрессии PPARG
Набор данных GSE36001 включал 19 образцов остеосаркомы и шесть нормальных контрольных образцов. Экспрессия PPARG была значительно снижена при остеосаркоме (logFC = -1.429, P = 0.00730, скорректированное значение P = 0.0435; Рисунок 6A). При валидации на клеточных моделях методом qRT-PCR было установлено, что экспрессия мРНК PPARG в клетках остеосаркомы 143B была значительно ниже, чем в клетках остеобластов человека (P < 0.001; Рисунок 6B). С помощью вестерн-блоттинга также было выявлено значительное снижение экспрессии белка PPARG в клетках 143B (P < 0.01; Рисунок 6C,D). Результаты анализа внешней когорты, уровней мРНК и белка последовательно подтвердили снижение экспрессии PPARG при остеосаркоме. Данные GSE36001 не содержали сведений о выживаемости и, следовательно, обеспечивали только внешнюю валидацию экспрессии, а не независимую прогностическую валидацию.
ДОСТУПНОСТЬ ДАННЫХ:
Все наборы данных, использованные в данном исследовании, находятся в открытом доступе. Данные GSE99671 и GSE36001 были получены из базы данных Gene Expression Omnibus (https://www.ncbi.nlm.nih.gov/geo/query/acc.cgi/acc=GSE99671; https://www.ncbi.nlm.nih.gov/geo/query/acc.cgi/acc=GSE36001). Транскриптомные и клинические данные TARGET-OS были загружены из UCSC Xena (https://xena.ucsc.edu/). Гены, связанные со старением, были получены из CellAge: The Database of Cell Senescence Genes, входящей в состав Human Ageing Genomic Resources (https://genomics.senescence.info/cells/). Наборы данных одноклеточного и пространственного транскриптомного анализа остеосаркомы человека были получены из опубликованного атласа и соответствующего ему репозитория GitHub (https://github.com/zhengxj1/A-Single-Cell-and-Spatially-Resolved-Atlas-of-Human-Osteosarcomas). Наборы генов для анализа обогащения были получены из MSigDB (https://www.gsea-msigdb.org/gsea/msigdb/). Обработанные данные, полученные в ходе настоящего исследования, и скрипты анализа, использованные для воспроизведения представленных результатов, собраны и представлены в качестве Дополнительного файла 1.
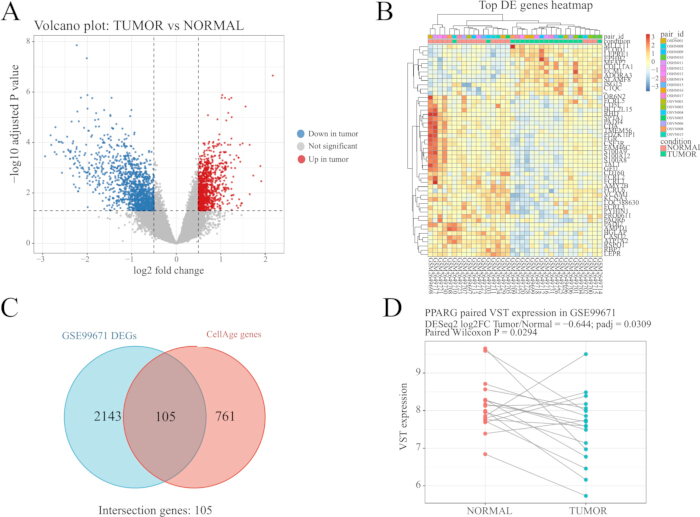
Рисунок 1: Идентификация дифференциально экспрессируемых генов и кандидатных генов, связанных со старением, из базы данных CellAge, при остеосаркоме. (A) График «вулкан» (volcano plot), демонстрирующий дифференциально экспрессируемые гены в тканях остеосаркомы и соответствующих парных нетуморных контрольных тканях в наборе данных GSE99671. Значимо активированные и подавленные гены выделены в соответствии с заранее определенными критериями отсечения. (B) Теплокарта, демонстрирующая профили экспрессии репрезентативных дифференциально экспрессируемых генов в образцах остеосаркомы и парных контрольных образцах из GSE99671. (C) Диаграмма Венна, показывающая пересечение дифференциально экспрессируемых генов из GSE99671 и генов, связанных со старением, из базы CellAge. (D) Сравнение парной экспрессии PPARG в тканях остеосаркомы и соответствующих нетуморных контрольных тканях в GSE99671. Пожалуйста, нажмите здесь, чтобы просмотреть этот рисунок в большем размере.
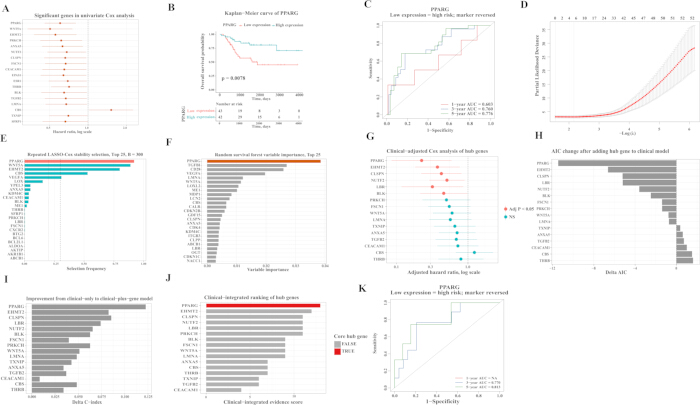
Рисунок 2: Анализ выживаемости с применением машинного обучения и клинической коррекции идентифицирует PPARG как ключевой прогностический хаб-ген, связанный с клеточным старением при остеосаркоме. (A) Форест-график с результатами однофакторной регрессии Кокса для потенциальных генов, связанных со старением, в когорте TARGET-OS. (B) Кривая выживаемости Каплана — Майера, сравнивающая общую выживаемость пациентов с высоким и низким уровнем экспрессии PPARG. (C) Зависимые от времени ROC-кривые, оценивающие прогностическую значимость PPARG для общей выживаемости. (D) Кривая кросс-валидации LASSO-регрессии Кокса для отбора прогностических генов-кандидатов. (E) Анализ стабильности повторного LASSO, показывающий частоту выбора lambda.min в течение 300 пятикратных повторений. (F) Анализ случайного леса выживаемости (Random survival forest), показывающий показатели важности переменных по 1 000 деревьям. (G) Форест-график с результатами клинически скорректированной регрессии Кокса для хаб-генов-кандидатов. (H) Изменения AIC после добавления отдельных хаб-генов в клиническую модель. (I) Улучшение C-индекса после добавления отдельных хаб-генов в клиническую модель. (J) Итоговый рейтинг клинически интегрированного балла (диапазон 0–13) для хаб-гена-кандидата. (K) Зависимые от времени ROC-кривые PPARG в подгруппе клинического анализа из 40 пациентов, показывающие AUC за 3 и 5 лет; AUC за 1 год не удалось оценить. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
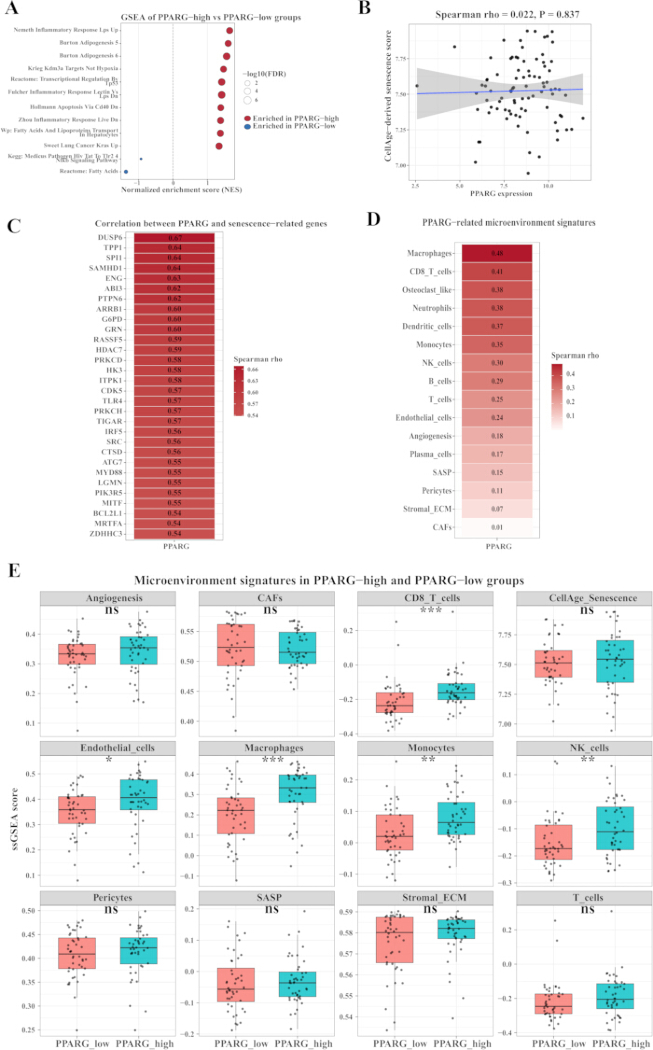
Рисунок 3: Анализ функционального обогащения, связанного с PPARG, и анализ иммунного микроокружения. (A) Пузырьковая диаграмма GSEA, сравнивающая группы с высоким и низким уровнем PPARG и отображающая Nemeth Inflammatory Response LPS Up, Burton Adipogenesis 5, Burton Adipogenesis 6, Krieg KDM3A Targets Not Hypoxia, Reactome: Transcriptional Regulation By TP53, Fulcher Inflammatory Response Lectin Vs LPS Dn, Hollmann Apoptosis Via CD40 Dn, Zhou Inflammatory Response Live Dn, WP: Fatty Acids And Lipoproteins Transport In Hepatocytes, Sweet Lung Cancer KRAS Up, KEGG Medicus Pathogen HIV Tat To TLR2/4 NF-kB Signaling Pathway и Reactome: Fatty Acids. (B) Корреляция между PPARG и общим показателем старения CellAge в данных bulk TARGET-OS. (C) Корреляции между PPARG и отдельными генами CellAge. (D) Корреляции между PPARG и сигнатурами иммунного микроокружения. (E) Различия в показателях микроокружения между группами с высоким и низким уровнем PPARG. Корреляции оценивали с использованием рангового коэффициента корреляции Спирмена (ρ), а скорректированные значения P рассчитывали методом Бенджамини-Хохберга. Сокращения: GSEA = анализ обогащения наборов генов; NF-κB = ядерный фактор каппа-B; JAK-STAT = янус-киназа — сигнальный трансдуктор и активатор транскрипции; IL-12 = интерлейкин-12; FDR = частота ложноположительных результатов. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
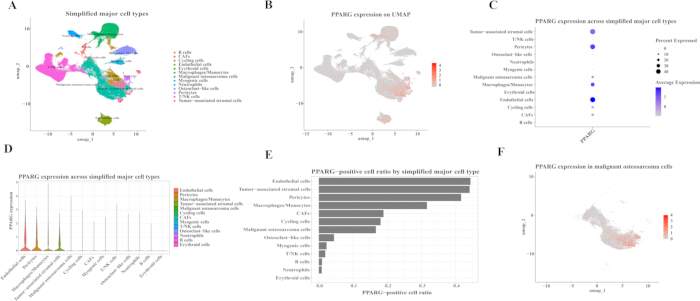
Рисунок 4: Локализация PPARG в клеточных компартментах по данным транскриптомики отдельных клеток остеосаркомы. (A) Визуализация UMAP основных типов клеток в наборе данных транскриптомики отдельных клеток остеосаркомы человека после упрощенной ручной аннотации. (B) FeaturePlot, демонстрирующий глобальное распределение экспрессии PPARG в отдельных клетках. (C) DotPlot, демонстрирующий экспрессию PPARG в основных типах клеток. (D) Скрипичный график (Violin plot), демонстрирующий уровни экспрессии PPARG в различных типах клеток. (E) Столбчатая диаграмма, демонстрирующая долю PPARG-положительных клеток в каждом основном типе клеток. (F) Визуализация UMAP, демонстрирующая экспрессию PPARG в злокачественных клетках остеосаркомы. Сокращение: UMAP = uniformly manifold approximation and projection (однообразное многомерное приближение и проекция). Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
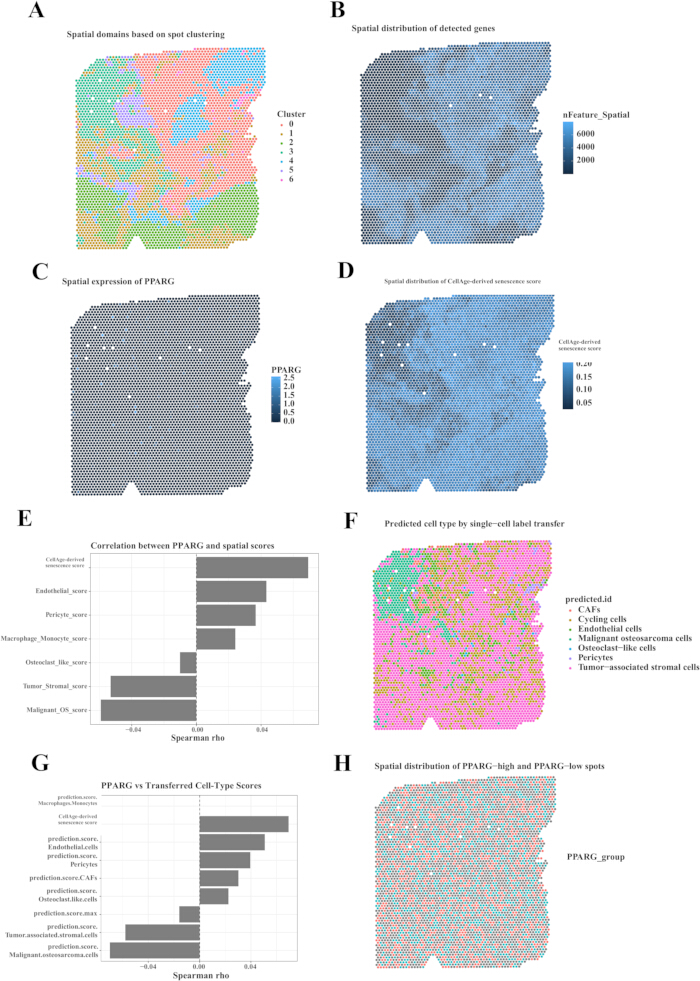
Рисунок 5: Пространственная транскриптомная локализация PPARG и пространственных признаков старения при остеосаркоме. (A) Пространственное распределение кластеров, определенных по транскриптому, в срезе для пространственной транскриптомики остеосаркомы SP_BS3. (B) Пространственное распределение количества обнаруженных генов на спот, показанное через nFeature_Spatial. (C) Пространственный паттерн экспрессии PPARG в спотах SP_BS3. (D) Пространственное распределение индекса старения, полученного на основе базы данных CellAge. (E) Корреляционный анализ между экспрессией PPARG и пространственным индексом старения по CellAge или показателями экологических ниш клеток. (F) Карта прогнозирования путем переноса меток, показывающая доминирующий тип клеток, определенный по данным секвенирования единичных клеток, для каждого пространственного спота. (G) Корреляционный анализ между экспрессией PPARG, индексом старения по CellAge и показателями прогнозирования типов клеток, полученными путем переноса меток. (H) Пространственное распределение спотов с высокой и низкой экспрессией PPARG. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
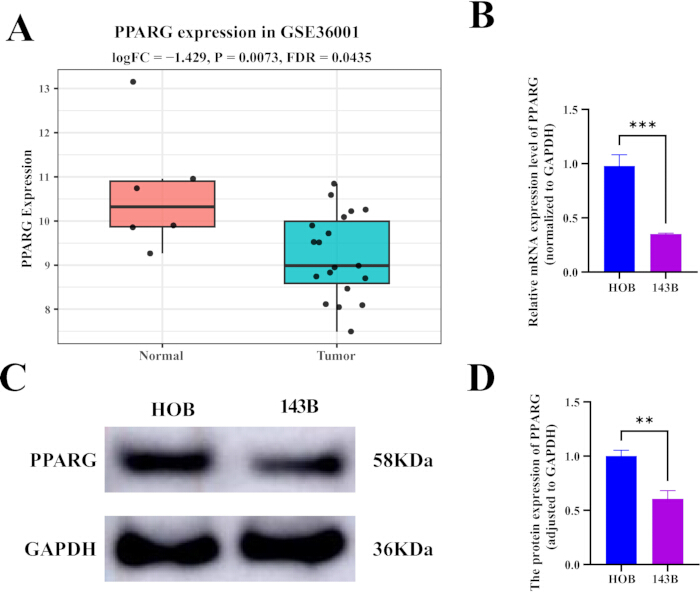
Рисунок 6: Внешняя экспрессия и экспериментальная валидация снижения экспрессии PPARG при остеосаркоме. (A) Диаграмма размаха, показывающая уровни экспрессии PPARG в образцах остеосаркомы (n = 19) и образцах нормального контроля (n = 6) в наборе данных GSE36001. (B) Анализ экспрессии мРНК PPARG методом qRT-PCR в клетках остеосаркомы человека 143B и контрольных клетках остеобластов человека. (C) Репрезентативный вестерн-блот, демонстрирующий экспрессию белков PPARG и GAPDH в контрольных клетках остеобластов человека и клетках остеосаркомы 143B. GAPDH использовался в качестве контроля нагрузки. (D) Денситометрический количественный анализ полос вестерн-блоттинга, показывающий относительные уровни белка PPARG, нормированные по GAPDH. В (B) и (D), данные представлены в виде среднего значения ± СО из трех независимых экспериментов. P < 0,01 и P < 0,001 по сравнению с контрольной группой остеобластов человека, что было определено с помощью двухстороннего непарного t-критерия Стьюдента т-тест. Сокращения: qRT-PCR = количественная полимеразная цепная реакция с обратной транскрипцией; GAPDH = глицеральдегид-3-фосфатдегидрогеназа; SD = стандартное отклонение. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
Дополнительная таблица 1: Эффективность модели Кокса, основанной только на клинических данных, в когорте TARGET-OS. C-индекс, AIC и резюме модели Кокса, построенной исключительно с использованием клинических переменных, включая пол, возраст, статус заболевания при постановке диагноза, локализацию первичной опухоли, конкретную область опухоли и статус радикальной операции. Сокращение: AIC = информационный критерий Акаике. Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительная таблица 2: Сравнение моделей Кокса, основанных только на клинических данных, и моделей, объединяющих клинические данные и генетические показатели. Результаты сравнения моделей после добавления отдельных потенциальных хаб-генов в клиническую модель, включая C-индекс, AIC, статистику критерия отношения правдоподобия и показатели улучшения модели. Сокращение: AIC = информационный критерий Акаике. Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительная таблица 3: Анализ чувствительности после удаления переменной радикального хирургического вмешательства. Результаты регрессии Кокса для анализа чувствительности, позволяющие оценить, оставались ли прогностические связи потенциальных хаб-генов, в частности PPARG, стабильными после исключения переменной радикального хирургического вмешательства из скорректированной клинической модели. Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительная таблица 4: Признаки иммунного и стромального микроокружения, связанные с PPARG, в TARGET-OS. Результаты корреляционного и группового анализа экспрессии PPARG и сигнатур ssGSEA, связанных с иммунными, стромальными, сосудистыми, воспалительными процессами и SASP, включая коэффициенты корреляции Спирмена, P значения, скорректированные P значения, а также сравнения групп с высоким и низким уровнем экспрессии PPARG. Сокращения: SASP = секреторный фенотип, ассоциированный со старением; ssGSEA = анализ обогащения наборов генов для одного образца. Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительная таблица 5: Пространственный транскриптомный корреляционный анализ PPARG в SP_BS3. Результаты корреляции между экспрессией PPARG и пространственным показателем старения, производным от CellAge, показателями экологических ниш клеток и показателями прогнозирования типов клеток, полученными с помощью переноса меток, в срезе для пространственной транскриптомики остеосаркомы SP_BS3. Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Обсуждение
В данном исследовании PPARG был определен в качестве потенциального прогностического гена, связанного со старением при остеосаркоме, путем интеграции анализа дифференциальной экспрессии, пересечения с базой данных генов CellAge, моделирования выживаемости TARGET-OS, клинической корректировки, мультиомиксной локализации и экспериментальной валидации. Данная аналитическая структура соответствует современному акценту на молекулярно-ориентированные исследования остеосаркомы и использование курируемых ресурсов генов старения для интерпретации биологии процессов старения14,31. Экспрессия PPARG в остеосаркоме была снижена по сравнению с нормальной тканью, и более низкий уровень экспрессии PPARG ассоциировался с худшей общей выживаемостью в TARGET-OS. Эти результаты свидетельствуют о том, что PPARG не только подвергается транскрипционным изменениям при остеосаркоме, но и может нести клинически значимую прогностическую информацию. Однако, поскольку отбор кандидатов и оценка модели проводились в одной и той же когорте TARGET-OS (85 пациентов, 27 случаев смерти), наблюдаемое улучшение показателей модели было подвержено влиянию оптимизма и переобучения; следовательно, прогностическую ценность PPARG следует рассматривать как гипотезу до ее подтверждения в независимой когорте выживаемости при остеосаркоме. Тем не менее, биологию PPARG следует интерпретировать с учетом контекста, так как в экспериментальных исследованиях остеосаркомы сообщалось как о противоопухолевых эффектах модуляции PPAR-гамма/ядерных рецепторов, так и о связанных с PPARG программах остеокластов, которые могут способствовать прогрессированию заболевания32,33,34.
Важным нюансом было то, что PPARG не следует интерпретировать как простой суррогатный показатель общего балла CellAge. В данных bulk TARGET-OS PPARG не имел значимой корреляции с глобальным показателем старения CellAge, тогда как при пространственной транскриптомике PPARG продемонстрировал слабую, но значимую корреляцию с баллом CellAge, рассчитанным после исключения PPARG. Это различие могло отражать эффекты клеточного состава в bulk-данных, многофункциональную природу наборов генов старения и локальное обогащение микроокружения в пространственных спотах. Консенсусные и транскриптомные исследования подчеркивают, что клеточное старение гетерогенно, динамично и зависит от типа клеток, стрессора и тканевого контекста, в то время как программы SASP могут оказывать противоположные эффекты в процессе прогрессирования рака25,35,36,37. Таким образом, PPARG был консервативно определен как связанный со старением прогностический ген, выведенный из CellAge, а не как доказанный драйвер старения. Соответственно, определение PPARG как связанного со старением отражало его принадлежность к набору генов CellAge, а не доказанное механистическое участие в старении, и PPARG не следует использовать в качестве количественного суррогата общей активности старения.
В более общем смысле эти результаты пространственного анализа проиллюстрировали различие между статистической значимостью и биологической релевантностью. При наличии 4 572 пространственных спотов даже очень слабые корреляции могли превышать общепринятые пороги значимости; например, корреляция между PPARG и пространственным показателем старения CellAge (ρ = 0.0692) объясняла лишь примерно 0,48% дисперсии, однако значение P составило 3.0 × 10⁻⁶, поскольку большое количество спотов обеспечило значительную статистическую мощность. Следовательно, такие ассоциации на уровне спотов следует рассматривать как статистически обнаруживаемые, но биологически скромные сигналы, служащие для генерации гипотез, и при биологической интерпретации следует руководствоваться величиной эффекта, а не только значениями P. Статистическую значимость в больших наборах данных на уровне спотов не следует приравнивать к сильным биологическим эффектам.
Одноклеточный и пространственный анализы позволили определить биологический контекст PPARG. PPARG был обогащен в эндотелиальных клетках, перицитах, макрофагах/моноцитах и стромальных клетках, ассоциированных с опухолью, а также проявлял пространственную связь с показателями эндотелия и перицитов. Эти результаты позволяют предположить, что прогностическая информация, которую несет PPARG, может быть связана с сосудистыми и микроокружающими компонентами при остеосаркоме. Данная интерпретация согласуется с недавними одноклеточными и пространственными атласами остеосаркомы, а также с более широкими данными о том, что иммунные, сосудистые и стромальные ниши определяют гетерогенность опухоли, ответ на лечение и прогрессирование25,38,39. Поскольку злокачественные клетки остеосаркомы экспрессировали PPARG лишь в части клеток и не демонстрировали значимо более высокого уровня экспрессии по сравнению с другими клетками, интерпретация, основанная только на опухолевых клетках, была бы неполной. И наоборот, снижение экспрессии PPARG на уровне всей популяции клеток (bulk-level), наблюдаемое в GSE99671 и GSE36001, могло частично отражать различия в составе стромальных, сосудистых клеток, клеток костного мозга, адипогенных или иммунных клеток между опухолевыми и нормальными тканями, а не истинное снижение экспрессии в злокачественных клетках остеосаркомы. Поскольку чистота опухоли и обилие типов клеток не были эксплицитно скорректированы в объемных анализах, эту возможность нельзя было исключить, что потребовало проведения направленного исследования.
Анализ функционального и иммунного микроокружения подтвердил данную интерпретацию. PPARG коррелировал с сигнатурами макрофагов, CD8 T-клеток, дендритных клеток, нейтрофилов, NK-клеток и эндотелия, а GSEA выявил пути, связанные с воспалением, NF-κB, сигналингом JAK-STAT/IL-12, регуляцией TP53 и контрольными точками повреждения ДНК. В совокупности эти результаты позволили предположить, что PPARG может служить маркером комплексного состояния микроокружения, включающего стресс, связанный с клеточным старением, иммунную инфильтрацию, а также сосудистый и стромальный компоненты. Такая интерпретация была биологически обоснованной, поскольку PPAR-gamma играет установленную роль в подавлении воспалительной активации макрофагов/моноцитов, включая влияние на транскрипционные программы, связанные с AP-1, STAT и NF-κB, а иммунное микроокружение остеосаркомы содержит миелоидные, лимфоидные и сосудистые элементы, обладающие как опухоле-стимулирующими, так и опухоле-супрессивными функциями38,40,41. Эти данные, полученные методами секвенирования единичных клеток и пространственного анализа, носили описательный характер и послужили основой для выдвижения гипотез; сами по себе они не устанавливали механизмы сосудистой ниши, программы старения или прогностические пути.
Необходимо признать ряд ограничений. Во-первых, основной прогностический анализ был основан на ретроспективной общедоступной когорте TARGET-OS с ограниченным размером выборки и количеством событий; следовательно, прогностическая значимость PPARG должна быть подтверждена в независимых когортах в соответствии с общепринятыми принципами отчетности и валидации опухолевых маркеров42. В частности, скрининг кандидатов проводился на 85 пациентах TARGET-OS с 27 случаями смерти, в то время как оценка клинически скорректированной модели использовала перекрывающуюся подгруппу из 40 пациентов с 13 случаями смерти. Поскольку оба анализа были получены из одной и той же исходной когорты, сообщаемое улучшение C-индекса (с 0,707 до 0,829) и снижение AIC, вероятно, являются оптимистичными. Для внешней валидации прогностической значимости PPARG независимая когорта выживаемости отсутствовала; GSE36001 использовалась только для валидации экспрессии в опухоли по сравнению с нормой. Кроме того, интегрированная оценка центральных узлов (hub score) была исследовательской внутренней эвристикой ранжирования, а не валидированным прогностическим инструментом. Во-вторых, анализ пространственной транскриптомики был основан на одном образце SP_BS3; хотя корреляции были статистически значимыми, величины эффекта были малы и требуют подтверждения на дополнительных пространственных образцах. В частности, увеличение количества образцов пространственной транскриптомики от независимых пациентов будет иметь решающее значение для получения более надежных оценок этих слабых ассоциаций, и оправдано проведение исследований на более крупных пространственных когортах. Пространственная транскриптомика обеспечивает ценный молекулярный контекст in situ, однако интерпретация по-прежнему зависит от разрешения платформы, стратегии отбора проб, качества ткани и выбора методов вычислительной интеграции43. Более того, пространственный анализ опирался на предварительно обработанный общедоступный объект одноклеточного секвенирования с упрощенными аннотациями, а также на вычислительный скоринг и перенос меток; учитывая минимальные величины эффектов, эти данные поддерживают описательные утверждения о локализации, а не механистические выводы о сосудистых нишах или программах старения. В-третьих, экспериментальная валидация была основана на клеточной линии остеосаркомы 143B и человеческих остеобластах; необходимы дополнительные клеточные линии остеосаркомы и клинические образцы, так как валидация на одной клеточной линии не может установить специфичность клеточного типа, клиническую прогностическую значимость или биологию старения. В-четвертых, данное исследование продемонстрировало ассоциацию, а не причинно-следственную связь. Понадобится функциональное воздействие на PPARG в клетках остеосаркомы и моделях микроокружения, чтобы определить, регулирует ли PPARG напрямую программы, связанные со старением, сосудистые ниши или прогрессирование опухоли. В-пятых, связь со старением определялась по перекрытию с набором генов CellAge, и PPARG не коррелировал с общим показателем старения CellAge в TARGET-OS. Кроме того, сравнения всей опухоли с нормой не были скорректированы по чистоте опухоли или клеточному составу, поэтому наблюдаемое снижение экспрессии может частично отражать различия в составе микроокружения, а не внутренние изменения в злокачественных клетках.
PPARG является геном, производным от базы данных CellAge, пониженная экспрессия которого ассоциирована с неблагоприятной общей выживаемостью в когорте TARGET-OS. Его пониженная экспрессия при сравнении общих образцов остеосаркомы, наряду с его обогащением в сосудистом, миелоидном и стромальном компартментах, позволяет предположить, что общие уровни PPARG могут частично отражать клеточный состав микроокружения, а не экспрессию, внутренне присущую злокачественным клеткам. Результаты одноклеточного и пространственного анализа носят описательный характер, а прогностическая связь с выживаемостью не была независимо подтверждена и требует валидации на внешней когорте с данными по выживаемости. Эти данные позволяют рассматривать PPARG в качестве потенциального биомаркера для прогностической оценки при остеосаркоме и для исследований микроокружения, связанного с клеточным старением, при условии внешней валидации и проведения функциональных исследований. В пространственной транскриптомике корреляции между PPARG и показателями ниш, связанных со старением или сосудами, имели малую величину эффекта, хотя и были статистически значимыми из-за большого количества пространственных спотов, и поэтому должны интерпретироваться с осторожностью.
Раскрытие информации
Авторы заявляют об отсутствии конфликта интересов.
ВКЛАД АВТОРОВ:
Yongwen Li и Wentao Qin разработали концепцию и дизайн исследования. Yongwen Li провел биоинформатический и вычислительный анализ. Tuo Liang выполнил экспериментальную проверку. Rubiao Qiu и Zide Zhang участвовали в подготовке рисунков. Rubiao Qiu и Zide Zhang курировали исследование и критически пересмотрели рукопись. Все авторы ознакомились с окончательным вариантом рукописи и утвердили его
Благодарности
Авторы выражают искреннюю благодарность исследователям и участникам проектов GEO, TARGET-OS, UCSC Xena, CellAge, MSigDB, а также проекта атласа одноклеточного и пространственного транскриптома остеосаркомы человека за предоставление общедоступных наборов данных и ресурсов, которые сделали возможным данное исследование. Работа была поддержана Фондом естественных наук Гуанси (№ 2023GXNSFAA026111).
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| Первичные антитела к GAPDH | Proteintech Group, Wuhan, China | 10494-1-AP | Первичные антитела, используемые для детекции GAPDH в качестве контроля нагрузки при вестерн-блоттинге; разведение 1:5,000. |
| Первичные антитела к PPARG | Proteintech Group, Wuhan, China | 16643-1-AP | Первичные антитела, используемые для детекции белка PPARG методом вестерн-блоттинга; разведение 1:1,000. |
| Набор для определения концентрации белка BCA | Beijing Solarbio Science & Technology Co., Ltd., Beijing, China | PC0020 | Колориметрический анализ, используемый для определения общей концентрации белка перед электрофорезом. |
| DESeq2 | Bioconductor | Version 1.40.2 | Пакет R, используемый для анализа дифференциальной экспрессии генов на основе количественных данных транскриптомики. |
| Модифицированная среда Игла в модификации Дульбекко (DMEM) | Beijing Solarbio Science & Technology Co., Ltd., Beijing, China | 11995 | Базальная культуральная среда, используемая для поддержания клеток остеосаркомы 143B. |
| Реагент для ECL-детекции | Beijing Solarbio Science & Technology Co., Ltd., Beijing, China | PE0010 | Хемилюминесцентный субстрат, используемый для детекции конъюгированных с HRP антител при вестерн-блоттинге. |
| Фетальная бычья сыворотка (FBS) | Zhejiang Tianhang Biotechnology Co., Ltd. (Sijiqing), Huzhou, Zhejiang, China | 11011-8611 | Сывороточная добавка, вносимая в культуральную среду для поддержания роста и жизнеспособности клеток. |
| glmnet | CRAN | Version 4.1-8 | Пакет R, используемый для проведения штрафного регрессионного анализа, включая моделирование LASSO и elastic-net. |
| GraphPad Prism | GraphPad Software, San Diego, CA, USA | Version 9.0 | Программное обеспечение, используемое для статистического анализа, построения графиков и визуализации экспериментальных данных. |
| Вторичные антитела, конъюгированные с HRP | Proteintech Group, Wuhan, China | SA00001-2 | Вторичные антитела, конъюгированные с пероксидазой хрена, используемые для детекции в вестерн-блоттинге; разведение 1:5,000. |
| Клетки остеобластов человека | Cell Applications, Inc., San Diego, CA, USA | 406-05A | Первичные клетки остеобластов человека, используемые в качестве незлокачественного сравнительного/контрольного типа клеток. |
| Линия клеток остеосаркомы человека 143B | American Type Culture Collection (ATCC), Manassas, VA, USA | CRL-8303 | Линия клеток остеосаркомы человека, используемая для экспериментов по валидации in vitro и молекулярного анализа. |
| ImageJ | National Institutes of Health (NIH), USA | Version 1.53 | Программное обеспечение для анализа изображений, используемое для количественного анализа экспериментальных снимков. |
| limma | Bioconductor | Version 3.56.2 | Пакет R, используемый для анализа дифференциальной экспрессии и статистического тестирования на основе линейных моделей. |
| Пенициллин-стрептомицин | Beijing Solarbio Science & Technology Co., Ltd., Beijing, China | P1400 | Антибиотическая добавка, используемая в культуральной среде для снижения бактериальной контаминации. |
| Праймеры к PPARG и GAPDH | Sangon Biotech (Shanghai) Co., Ltd., Shanghai, China | Custom synthesis; sequences provided in the Methods | Синтезированные олигонуклеотидные праймеры, используемые для qPCR-анализа экспрессии PPARG и GAPDH. |
| Мембраны PVDF, 0.45 µm | Beijing Solarbio Science & Technology Co., Ltd., Beijing, China | YA1701 | Мембраны, используемые для переноса белков при вестерн-блоттинге. |
| Статистическое ПО R | R Foundation for Statistical Computing, Vienna, Austria | Version 4.3.2 | Среда статистических вычислений, используемая для биоинформатического анализа, построения моделей и визуализации. |
| randomForestSRC | CRAN | Version 3.2.2 | Пакет R, используемый для моделирования случайного леса выживаемости и анализа значимости признаков. |
| Набор для обратной транскрипции | Beyotime Biotech Inc., Shanghai, China | D7168M | Используется для синтеза комплементарной ДНК (кДНК) из выделенной РНК перед проведением количественной ПЦР. |
| Лизирующий буфер RIPA | Beijing Solarbio Science & Technology Co., Ltd., Beijing, China | R0010 | Буфер для экстракции белков, используемый для лизиса клеток перед вестерн-блот анализом. |
| Seurat | Satija Laboratory | Version 5.0.1 | Пакет R, используемый для обработки, интеграции, кластеризации и визуализации данных секвенирования РНК единичных клеток. |
| survival | CRAN | Version 3.5-7 | Пакет R, используемый для анализа выживаемости, включая моделирование пропорциональных рисков Кокса. |
| Мастер-микс SYBR Green для qPCR | Beijing Solarbio Science & Technology Co., Ltd., Beijing, China | SR1110 | Флуоресцентный мастер-микс, используемый для количественной ПЦР в реальном времени. |
| timeROC | CRAN | Version 0.4 | Пакет R, используемый для построения зависящих от времени ROC-кривых и расчета прогностической эффективности с течением времени. |
| Реагент TRIzol | Invitrogen, Thermo Fisher Scientific, Waltham, MA, USA | 15596026CN | Реагент, используемый для экстракции общей РНК из культивируемых клеток. |
| Трипсин-ЭДТА, 0.25% | Beijing Solarbio Science & Technology Co., Ltd., Beijing, China | T1300 | Реагент для диссоциации клеток, используемый для пассирования и сбора адгезивных клеток. |
Ссылки
- Mirabello L, Troisi RJ, Savage SA. Osteosarcoma incidence and survival rates from 1973 to 2004: data from the Surveillance, Epidemiology, and End Results Program. Cancer. 2009;115:1531-1543.
- Bielack SS, et al. Prognostic factors in high-grade osteosarcoma of the extremities or trunk: an analysis of 1,702 patients treated on neoadjuvant cooperative osteosarcoma study group protocols. J Clin Oncol. 2002;20:776-790.
- Isakoff MS, Bielack SS, Meltzer P, Gorlick R. Osteosarcoma: Current Treatment and a Collaborative Pathway to Success. J Clin Oncol. 2015;33:3029-3035.
- Kansara M, Teng MW, Smyth MJ, Thomas DM. Translational biology of osteosarcoma. Nat Rev Cancer. 2014;14:722-735.
- Peng P, et al. Epigenetic remodeling under oxidative stress: Mechanisms driving tumor metastasis. MedComm - Oncology. 2024;3.
- Muñoz-Espín D, Serrano M. Cellular senescence: from physiology to pathology. Nat Rev Mol Cell Biol. 2014;15:482-496.
- Coppé JP, Desprez PY, Krtolica A, Campisi J. The senescence-associated secretory phenotype: the dark side of tumor suppression. Annu Rev Pathol. 2010;5:99-118.
- Collado M, Serrano M. Senescence in tumours: evidence from mice and humans. Nat Rev Cancer. 2010;10:51-57.
- Lehrke M, Lazar MA. The many faces of PPARgamma. Cell. 2005;123:993-999.
- Peters JM, Shah YM, Gonzalez FJ. The role of peroxisome proliferator-activated receptors in carcinogenesis and chemoprevention. Nat Rev Cancer. 2012;12:181-195.
- Barrett T, et al. NCBI GEO: archive for functional genomics data sets--update. Nucleic Acids Res. 2013;41.
- Ho XD, et al. Whole transcriptome analysis identifies differentially regulated networks between osteosarcoma and normal bone samples. Exp Biol Med (Maywood). 2017;242:1802-1811.
- Love MI, Huber W, Anders S. Moderated estimation of fold change and dispersion for RNA-seq data with DESeq2. Genome Biol. 2014;15:550.
- Avelar RA, et al. A multidimensional systems biology analysis of cellular senescence in aging and disease. Genome Biol. 2020;21:91.
- Goldman MJ, et al. Visualizing and interpreting cancer genomics data via the Xena platform. Nat Biotechnol. 2020;38:675-678.
- Prentice RL, Zhao S. Regression Models and Multivariate Life Tables. J Am Stat Assoc. 2021;116:1330-1345.
- Heagerty PJ, Lumley T, Pepe MS. Time-dependent ROC curves for censored survival data and a diagnostic marker. Biometrics. 2000;56:337-344.
- Tibshirani R. The lasso method for variable selection in the Cox model. Stat Med. 1997;16:385-395.
- Jaeger BC, et al. OBLIQUE RANDOM SURVIVAL FORESTS. Ann Appl Stat. 2019;13:1847-1883.
- Subramanian A, et al. Gene set enrichment analysis: a knowledge-based approach for interpreting genome-wide expression profiles. Proc Natl Acad Sci U S A. 2005;102:15545-15550.
- Newman AM, et al. Robust enumeration of cell subsets from tissue expression profiles. Nat Methods. 2015;12:453-457.
- Zhou Y, et al. Single-cell RNA landscape of intratumoral heterogeneity and immunosuppressive microenvironment in advanced osteosarcoma. Nat Commun. 2020;11:6322.
- Stuart T, et al. Comprehensive Integration of Single-Cell Data. Cell. 2019;177:1888-1902.e21.
- Hao Y, et al. Integrated analysis of multimodal single-cell data. Cell. 2021;184:3573-3587.e29.
- Zheng X, et al. A single-cell and spatially resolved atlas of human osteosarcomas. J Hematol Oncol. 2024;17:71.
- Ståhl PL, et al. Visualization and analysis of gene expression in tissue sections by spatial transcriptomics. Science. 2016;353:78-82.
- Kresse SH, et al. Integrative analysis reveals relationships of genetic and epigenetic alterations in osteosarcoma. PLoS One. 2012;7.
- Ritchie ME, et al. limma powers differential expression analyses for RNA-sequencing and microarray studies. Nucleic Acids Res. 2015;43.
- Livak KJ, Schmittgen TD. Analysis of relative gene expression data using real-time quantitative PCR and the 2(-Delta Delta C(T)) Method. Methods. 2001;25:402-408.
- Schneider CA, Rasband WS, Eliceiri KW. NIH Image to ImageJ: 25 years of image analysis. Nat Methods. 2012;9:671-675.
- Gill J, Gorlick R. Advancing therapy for osteosarcoma. Nat Rev Clin Oncol. 2021;18:609-624.
- Sun L, et al. Single-cell RNA sequencing revealed PPARG promoted osteosarcoma progression: based on osteoclast proliferation. Front Immunol. 2024;15:1506225.
- Yuan B, et al. Nuclear receptor modulators inhibit osteosarcoma cell proliferation and tumour growth by regulating the mTOR signaling pathway. Cell Death Dis. 2023;14:51.
- Lu Y, et al. Oridonin exerts anticancer effect on osteosarcoma by activating PPAR-γ and inhibiting Nrf2 pathway. Cell Death Dis. 2018;9:15.
- Gorgoulis V, et al. Cellular Senescence: Defining a Path Forward. Cell. 2019;179:813-827.
- Faget DV, Ren Q, Stewart SA. Unmasking senescence: context-dependent effects of SASP in cancer. Nat Rev Cancer. 2019;19:439-453.
- Hernandez-Segura A, et al. Unmasking Transcriptional Heterogeneity in Senescent Cells. Curr Biol. 2017;27:2652-2660.e4.
- Tian H, et al. Managing the immune microenvironment of osteosarcoma: the outlook for osteosarcoma treatment. Bone Res. 2023;11:11.
- Hanahan D. Hallmarks of Cancer: New Dimensions. Cancer Discov. 2022;12:31-46.
- Ricote M, Li AC, Willson TM, Kelly CJ, Glass CK. The peroxisome proliferator-activated receptor-gamma is a negative regulator of macrophage activation. Nature. 1998;391:79-82.
- Jiang C, Ting AT, Seed B. PPAR-gamma agonists inhibit production of monocyte inflammatory cytokines. Nature. 1998;391:82-86.
- McShane LM, et al. REporting recommendations for tumour MARKer prognostic studies (REMARK). Br J Cancer. 2005;93:387-391.
- Moses L, Pachter L. Publisher Correction: Museum of spatial transcriptomics. Nat Methods. 2022;19:628.