В данном исследовании оценивается защитный эффект капсул Янцзин при индуцированной циклофосфамидом сперматогенной дисфункции у мышей, а также изучается участие сигнального пути lncRNA NONMMUT031883.2/QKI-5/p38 MAPK.
Для просмотра этого контента требуется подписка на JoVE. Войдите или начните свой бесплатный пробный период.
Исследовательская статья
Капсулы Янцзин облегчают нарушение сперматогенеза у мышей путем ингибирования пути QKI-5/p38 MAPK посредством повышения экспрессии lncRNA NONMMUT031883.2
В этой статье
Краткое содержание
Аннотация
Нарушение сперматогенеза является важной причиной мужского бесплодия, и циклофосфамид (CP) может ухудшать сперматогенез, индуцируя аномальный апоптоз сперматогоний. Капсулы Янцзин (YC) используются для улучшения репродуктивной функции, однако лежащий в основе этого молекулярный механизм остается неясным. В данной работе исследовались защитные эффекты YC на мышиной модели сперматогенной дисфункции, индуцированной CP, а также на сперматогониальных клетках GC-1. Оценивались количество и подвижность сперматозоидов, фертильность самцов, уровни половых гормонов в сыворотке крови, а также гистопатологические изменения в семенниках и придатках семенников. В клетках GC-1 оценивались жизнеспособность, высвобождение лактатдегидрогеназы, апоптоз и экспрессия белков, связанных с апоптозом. Количественная обратная транскрипционная полимеразная цепная реакция, анализы RNA pull-down, иммунофлуоресценция и вестерн-блоттинг использовались для изучения lncRNA NONMMUT031883.2, Quaking-5 (QKI-5) и сигналинга p38 митоген-активируемой протеинкиназы (MAPK). YC дозозависимо улучшали качество спермы, уровни половых гормонов в сыворотке, морфологию репродуктивных органов, гистопатологию семенников и фертильность у мышей, получавших CP. В клетках GC-1 YC повышали жизнеспособность клеток, снижали повреждение клеток и уровень апоптоза. LncRNA NONMMUT031883.2 физически взаимодействовала с QKI-5, и лечение YC повышало экспрессию lncRNA NONMMUT031883.2, одновременно снижая экспрессию QKI-5 и фосфорилирование p38. Применение YC подавляло апоптоз, индуцированный нокдауном lncRNA NONMMUT031883.2 в клетках GC-1, тогда как гиперэкспрессия QKI-5 снижала антиапоптотический эффект YC. Эти результаты свидетельствуют о том, что YC облегчает индуцированную CP сперматогенную дисфункцию и что ее защитные эффекты опосредованы регуляцией пути lncRNA NONMMUT031883.2/QKI-5/p38 MAPK.
Введение
Сперматогенная дисфункция представляет собой нарушение репродуктивной функции, вызванное отклонениями в процессах продукции, созревания или функционирования сперматозоидов в мужской репродуктивной системе. Она характеризуется снижением количества и подвижности сперматозоидов, а также повышенной частотой их морфологических нарушений1,2. Патогенез сперматогенной дисфункции сложен и связан с генетическими факторами, аутоиммунными заболеваниями, воздействием токсинов окружающей среды, повреждениями, вызванными химиотерапией, и поражениями органов репродукции3-5. Химиотерапевтические препараты, такие как циклофосфамид (CP), могут напрямую повреждать семенные канальцы яичек и индуцировать апоптоз сперматогониев, способствуя тем самым развитию сперматогенной дисфункции у мужчин6,7. В настоящее время в качестве клинических методов лечения используются заместительная гормональная терапия, прием антиоксидантов и вспомогательные репродуктивные технологии. Однако данные подходы обладают нестабильной эффективностью и значительными побочными эффектами8,9,10. Следовательно, поиск безопасных и эффективных методов вмешательства и выяснение их молекулярных мишеней имеют важное клиническое значение для улучшения показателей фертильности у пациентов со сперматогенной дисфункцией.
Китайская лекарственная трава продемонстрировала потенциал в защите репродуктивной функции у самцов и лечении сперматогенной дисфункции благодаря своим многоцелевым свойствам и относительно низкой токсичности11,12. Капсула Янцзин (YC) представляет собой традиционное китайское запатентованное лекарственное средство, состоящее из Rehmannia glutinosa, Epimedium, плаценты, Polygonatum sibiricum, Angelica sinensis и других китайских лекарственных трав. Она используется для укрепления почек и эссенции, питания крови и костного мозга, а также для регуляции репродуктивной функции13. Предыдущие исследования показали, что YC может регулировать уровни половых гормонов у самцов животных, улучшать качество спермы, восстанавливать поврежденную ткань семенников и защищать от репродуктивных повреждений, вызванных химическими агентами14,15. Сперматогонии лежат в основе сперматогенеза, и аномальный апоптоз сперматогоний является центральным событием в развитии сперматогенной дисфункции16. Также сообщалось, что YC улучшает жизнеспособность сперматогоний, увеличивает долю клеток в S-фазе и ингибирует апоптоз17. Однако ее защитные эффекты и специфические молекулярные механизмы при сперматогенной дисфункции, индуцированной CP, остаются неясными.
Длинные некодирующие РНК (днКРНК) представляют собой молекулы РНК длиной более 200 нуклеотидов, которые не обладают способностью кодировать белки18. днКРНК могут регулировать экспрессию генов с помощью таких механизмов, как хромосомный сайленсинг, модификация хроматина, геномный импринтинг и транскрипционная активация19,20. РНК-связывающий белок Quaking-5 (QKI-5) участвует в физиологических и патологических процессах, включая пролиферацию и апоптоз клеток, регулируя альтернативный сплайсинг нижележащих генов21. Путь митоген-активируемой протеинкиназы p38 (MAPK) участвует в регуляции апоптоза, а также играет важную роль в мужской фертильности и развитии яичек22,23. Предыдущее исследование показало, что гиперэкспрессия QKI-5 активирует путь p38 MAPK в клетках гепатоцеллюлярной карциномы24. Кроме того, было показано, что днКРНК NONMMUT074098.2 связывается с QKI-5 в сперматогониях, тогда как нокдаун QKI-5 подавлял путь p38 MAPK и снижал апоптоз сперматогоний25. В данной работе использовалась мышиная модель сперматогенной дисфункции, индуцированной CP, чтобы исследовать, регулирует ли YC экспрессию днКРНК NONMMUT031883.2 и сигнальную ось QKI-5/p38 MAPK, тем самым снижая аномальный апоптоз сперматогоний и облегчая индуцированную CP сперматогенную дисфункцию (Рисунок 1). Целью работы было выяснение молекулярного механизма, лежащего в основе защитного действия YC на сперматогенез, и расширение понимания его фармакологической роли в защите репродуктивной функции самцов.
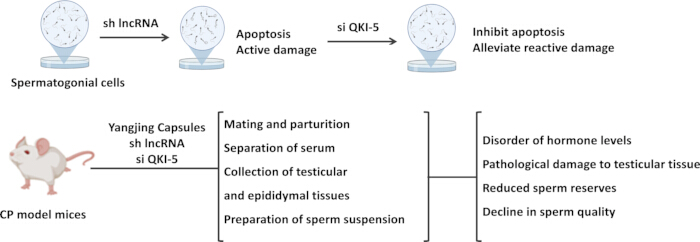
Рисунок 1: Схематическая диаграмма дизайна эксперимента.Верхняя панель обобщает эксперименты in vitro на сперматогониальных клетках GC-1. Нокдаун lncRNA NONMMUT031883.2 использовался для индукции апоптоза и повреждения клеток, после чего следовал нокдаун QKI-5 для оценки его влияния на апоптоз и повреждение клеток. Нижняя панель обобщает эксперименты in vivo на моделях мышей с дисфункцией сперматогенеза, индуцированной циклофосфамидом (CP). Мыши получали лечение капсулами Yangjing и/или интервенцию с lncRNA NONMMUT031883.2 или QKI-5. Впоследствии оценивались фертильность, уровни гормонов в сыворотке крови, ткани семенников и придатоков семенников, суспензия сперматозоидов, запасы сперматозоидов, качество спермы и гистопатологические повреждения семенников. Пожалуйста, нажмите здесь, чтобы просмотреть этот рисунок в большем размере.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Протокол
Все эксперименты на животных проводились в соответствии с руководящими принципами ARRIVE и Руководством Национальных институтов здравоохранения по уходу за лабораторными животными и работе с ними. Все экспериментальные протоколы были рассмотрены и одобрены Комитетом по этике в отношении животных Университета Сюйжэнь (номер одобрения 20230216022).
1. Подготовка сыворотки, содержащей YC
Две капсулы Янцзин (YC; 0,5 г/капсула) были вскрыты, и отвешено 0,8 г содержимого капсул. К нему добавили физиологический раствор до конечного объёма 10 мл и тщательно перемешали на вихревом шейкере для получения суспензии с концентрацией 80 мг/мл. Мужские мыши линии BALB/c, свободные от специфических патогенов, массой 22–25 г и в возрасте 8 недель содержались при 22 °С и 55%–60% влажности при 12-часовом световом/темновом цикле, с обеспечением пищи и воды ad libitumПосле 1 недели акклиматизации мышам однократно в день в течение 5 последовательных дней перорально вводили YC в дозе 800 мг/кг массы тела в объёме 10 мл/кг. Через 2 часа после последнего введения мышей анестезировали внутримышечно 1% пентобарбиталом натрия, после чего забирали образцы крови для получения сыворотки, содержащей YC. Сыворотку инактивировали при 56 °при 30 °С в течение 30 мин, фильтрация через 0,22 мкм µм мембране и хранить при −80 °до использования
2. Культура клеток и трансфекция
Клетки сперматогониев мыши GC-1 культивировали в среде DMEM, содержащей 1% пенициллин-стрептомицин и 10% фетальной бычьей сыворотки. Все культуры поддерживали при 37 °C в атмосфере, содержащей 5% CO₂₂ (об. / об.)
Специфичные для длинных некодирующих РНК короткие шпильковые РНК (sh-lncRNA), плазмида с оверэкспрессией QKI-5 (OE-QKI-5), малые интерферирующие РНК против QKI-5 (si-QKI-5) и соответствующие негативные контроли (sh-NC, OE-NC и si-NC) были синтезированы и сконструированы. Клетки GC-1 трансфицировали sh-lncRNA или sh-NC, si-QKI-5 или si-NC, либо OE-QKI-5 или OE-NC в соответствии с инструкциями по использованию реагента для трансфекции. Через 48 ч после инкубации эффективность трансфекции оценивали путем измерения экспрессии длинной некодирующей РНК NONMMUT031883.2 или QKI-5.
Для группы ш-нкРНК + si-QKI-5 + этопозид клетки GC-1 трансфицировали ш-нкРНК и si-QKI-5, а затем обрабатывали 100 µМетопропид для 12 ч26Для последующих анализов жизнеспособности клеток клетки GC-1 культивировали в среде, дополненной сывороткой, содержащей 5%, 10% или 20% YC, и обозначали как группу низкой дозы YC (L-YC), средней дозы YC (M-YC) и высокой дозы YC (H-YC) соответственно. Концентрации сыворотки, содержащей YC (5%, 10% и 20% YC), были определены на основании результатов предварительных экспериментов с градиентом концентраций. Для групп sh-lncRNA + H-YC + OE-NC и sh-lncRNA + H-YC + OE-QKI-5 клетки GC-1 трансфицировали sh-lncRNA вместе с OE-NC или sh-lncRNA вместе с OE-QKI-5 в течение 48 ч, а затем подвергали воздействию сыворотки, содержащей 20% YC, в течение 24 ч.
3. Анализ с использованием набора для подсчёта клеток Кит-8
Клетки GC-1 высевали в 96-луночные планшеты при плотности 5 × 10³ клеток/лунку и культивировали в течение 24 ч. После прикрепления клеток исходную среду заменили на 100 µл полной среды, дополненной сывороткой, содержащей YC, и инкубировали в течение 6, 12 или 24 ч. После инкубации 10 µв каждую лунку добавляли 10 мкл реагента набора для подсчета клеток Кит-8 и инкубировали клетки при 37 °С °инкубировать в темноте 2 ч. Измеряли поглощение при 450 нм с помощью микропланшетного спектрофотометра.
4. Определение активности лактатдегидрогеназы
Через 48 ч после трансфекции клеток GC-1 с помощью sh-NC или sh-lncRNA собирали культуральную среду и получали супернатант центрифугированием. Согласно инструкции к набору для определения лактатдегидрогеназы, супернатант аккуратно смешивали с рабочим раствором для детекции и переносили в 96-луночный планшет. Планшет инкубировали при 25 °С °инкубация в темноте в течение 30 мин. Поглощение при 490 нм измеряли с помощью микропланшетного ридера, и рассчитывали высвобождение лактатдегидрогеназы для оценки повреждения клеток.
5. Окрашивание кальцеином AM/пропидием йодидом
Через 48 ч после трансфекции клеток sh-NC или sh-lncRNA выживаемость клеток GC-1 оценивали с помощью окрашивания Calcein AM/пропидий йодидом (PI). Клетки высевали в 12-луночные планшеты при плотности 5 × 10⁴ клеток/лунку и культивировали до достижения 60% конфлюэнтности–70 % конфлюэнтности. Клетки аккуратно промыли фосфатно-солевым буфером и добавили 500 µЛ раствора окрашивания кальцеином AM/PI был добавлен в каждую лунку. Клетки инкубировали при 37 °инкубировали в темноте в течение 30 мин и наблюдали под флуоресцентным микроскопом. Количество живых и мертвых клеток подсчитывали с использованием программного обеспечения для анализа изображений, а долю выживших клеток рассчитывали
6. Проточная цитометрия
Клетки GC-1 собирали центрифугированием и осторожно промывали фосфатно-солевым буфером. Осадок клеток ресуспендировали в 500 µл буфера для связывания с плотностью 5 × 10⁵ клеток/мл. Затем добавляли Annexin V-APC и PI в концентрации 5 µпо 1 мл, суспензию тщательно перемешали и инкубировали при 25 °инкубировать в темноте 10 мин. Анализ апоптоза проводили с помощью проточной цитометрии, используя длины волн возбуждения/излучения 633/660 нм для APC и 488/630 нм для PI. Степень апоптоза оценивали с помощью программного обеспечения для анализа данных проточной цитометрии.
7. Определение активности каспазы-3
После указанных обработок примерно 1 × 10⁶ Клетки линии GC-1 собирали, промывали и ресуспендировали в фосфатном буфере, содержащем соли. Клетки смешивали с 100 µл реагента II из набора для анализа активности каспазы-3 и лизировали на льду в течение 15 мин. После центрифугирования 50 µл надосадочной жидкости лизата было отобрано и смешано с 40 µл реагента I и 10 µл реагента III. Смесь инкубировали при 37 °инкубировать при 37 °C в течение 2 ч. Поглощение при 405 нм измеряли с помощью микропланшетного ридера, и активность каспазы-3 оценивали в соответствии с инструкциями к набору.
8. Анализ выявления РНК
Смысловую и антисмысловую цепи длинной некодирующей РНК NONMMUT031883.2 синтезировали в соответствии с соответствующей последовательностью и мечены биотином. Клетки лизировали в буфере для лизиса клеток, используемом при иммунопреципитации, на льду в течение 30 мин, после чего супернатант, содержащий белки, собирали центрифугированием. Стрептавидиновые магнитные шарики промывали три раза буфером для связывания РНК и инкубировали в буфере для связывания, содержащем 1% бычий сывороточный альбумин, в течение 30 мин.
Предварительно обработанные шарики смешивали с биотин-меченными зондами и инкубировали при 25 °C в течение 30 мин. Несвязавшиеся зонды удаляли с помощью магнитного разделения. Затем добавляли надосадочную жидкость клеточного лизата и инкубировали смесь при 4 °при 4 °C в течение 4 ч для образования комплексов магнитные бусины–РНК–белок. Магнитные бусины промывали три раза буфером для промывки для удаления неспецифически связавшихся белков. Буфер для промывки удаляли с помощью магнитного разделения, и добавляли 2× Был добавлен буфер для загрузки образцов в SDS. Образцы нагревали при 95 °при 4 °C в течение 10 мин, после чего супернатант был собран с помощью магнитного разделения для последующего анализа методом вестерн-блоттинга.
9. Создание модели нарушения сперматогенеза у мышей
После 5 дней акклиматизации, бесспецифических патогенов самцов мышей линии BALB/c массой 22–25 г и в возрасте 8 недель получали циклофосфамид (CP) внутримышечно в дозе 50 мг/кг один раз в день в течение 7 дней для создания модели нарушения сперматогенеза14,27Успешно созданных модельных мышей случайным образом распределили с использованием таблицы случайных чисел на группы: СР, YC 200 мг/кг, YC 400 мг/кг, YC 800 мг/кг, YC 800 мг/кг + sh-NC и YC 800 мг/кг + sh-lncRNA, по шесть мышей в каждой группе.
Мышам в группах, получавших YC, соответствующую дозу YC вводили перорально один раз в день в течение 30 дней13Для групп 800 мг/кг YC + sh-NC и 800 мг/кг YC + sh-lncRNA после успешного создания модели мышей анестезировали путем ингаляции 2% изофлурана. После подтверждения отсутствия рефлекса отдергивания лапы и стабильной частоты дыхания хирургический участок брили и обрабатывали повидон-йодом. В асептических условиях выполняли срединный вентральный разрез кожи и брюшной стенки, расположенный кпереди от половых органов. Яичко выдвигали, аккуратно смещая жировое тело придатка яичка, при этом соблюдали осторожность, чтобы не повредить сосуды. С помощью микроманипулятора визуализировали извитые канальцы, после чего 1 µл суспензии аденовируса (1 × 10¹⁰ ТУ/мл) медленно вводили с помощью микроинъекционной иглы28Игла оставалась на месте в течение 5 мин после инъекции, затем медленно извлекалась, и гемостаз достигался с помощью стерильного ватного тампона. Затем аналогичную процедуру проводили на контрлатеральном яичке. Разрез ушивали, и мышей после операции помещали на подогреваемую подушку для восстановления. Контрольным мышам ежедневно вводили одинаковый объём физиологического раствора перорально и путём инъекции.
10. Оценка фертильности
После завершения введения препарата самцов мышей каждой группы спаривали с самками линии BALB/c в соотношении 1:2 в течение 7 дней. Ежедневно регистрировали наличие вагинальной пробки у самок. После подтверждения успешного спаривания самцов удаляли, а самок содержали индивидуально до естественных родов. В каждую группу для анализа включали по девять беременных самок. Записывали среднее количество детёнышей в помёте для оценки фертильности самцов в каждой группе.
В конце экспериментального периода мышей умерщвляли путем внутрибрюшинного введения натрия пентобарбитала в дозе 100 мг/кг. Данный метод эвтаназии был одобрен Этическим комитетом по работе с животными Университета Сюйжоу (номер одобрения 20230216022). Яички и придатки яичек аккуратно выделяли, фотографировали и взвешивали. Индексы яичка и придатка яичка рассчитывали как отношение массы органа к массе тела. От каждого животного забирали один придаток яичка, разрезали его на кусочки, помещали в 1 мл предварительно нагретого фосфатного буфера, содержащего соли (37 ° °C) и инкубировали в течение 20 мин, чтобы сперматозоиды могли выплыть29. Спермальную взвесь аккуратно перемешали и взяли 10 µл суспензии спермы помещали на предварительно нагретую камеру для подсчета клеток крови. Сперматозоиды подсчитывали вручную под световым микроскопом при увеличении 200× увеличение, и результаты были выражены как 106L. Кроме того, процент поступательно подвижных сперматозоидов относительно общего числа сперматозоидов рассчитывали как подвижность спермиев13.
11. Определение уровней половых гормонов
Кровь собирали из орбитальной вены мышей каждой группы и оставляли при 25 °при 30 мин. Сыворотку собирали центрифугированием при 3000 × г в течение 10 мин30Уровни тестостерона в сыворотке, лютеинизирующего гормона (ЛГ) и фолликулостимулирующего гормона (ФСГ) определяли с использованием соответствующих наборов для иммуноферментного анализа.
12. Анализ стабильности РНК
Клетки GC-1 высевали в 96-луночные планшеты для культивирования, трансфицировали si-QKI-5 или si-NC и культивировали в течение 48 ч. Затем добавляли актиномицин D в концентрации 5 µг/мл, и клетки собирали через 0, 3, 6 и 9 ч. Выделяли суммарную РНК, и относительный уровень экспрессии длинной некодирующей РНК NONMMUT031883.2 определяли методом количественной обратной транскрипции с последующей полимеразной цепной реакцией после обратной транскрипции. Относительный уровень РНК в каждый момент времени рассчитывали, приняв уровень экспрессии в 0 ч за 100%.
13. Количественная обратная транскрипция с полимеразной цепной реакцией
Клетки GC-1 и ткани яичек мыши промывали фосфатно-солевым буфером и лизировали для выделения суммарной РНК. Комплементарную ДНК получали путем обратной транскрипции с использованием обратной транскриптазы AMV. Амплификацию методом полимеразной цепной реакции проводили с помощью системы реального времени и набора для количественной ПЦР, используя комплементарную ДНК в качестве матрицы для амплификации. В качестве внутреннего стандарта для длинной некодирующей РНК NONMMUT031883.2 использовали U6, а в качестве внутреннего стандарта для внутренний контроль для QKI-5. Относительную экспрессию гена-мишени рассчитывали с использованием 2−ΔΔCt метод25РНК также выделяли отдельно из цитоплазматической и ядерной фракций для определения субклеточной локализации длинной некодирующей РНК NONMMUT031883.2. Последовательности праймеров приведены в Таблица 1.
| Ген | Прямой праймер (5′' до 3') | Обратный праймер (5' до 3') |
| QKI-5 | CTGTCATGCCAAACGGAAC | GATGGACACGCATATCGTG |
| GAPDH | AGGTCGGTGTGAACGGATTTG | TGTAGACCATGTAGTTGAGGTCA |
| lncRNA NONMMUT031883.2 | CCACTGTGGCACATTGAAGTA | TTAAGTTAATGGGTGCTGTGTT |
| РНК U6 | CTCGCTTCGGCAGCACA | AACGCTTCACGAATTTGCGT |
Таблица 1: Последовательности праймеров, использованных для количественной обратной транскрипции с полимеразной цепной реакцией. Последовательности прямых и обратных праймеров приведены в 5′–3′ направление для lncRNA NONMMUT031883.2, QKI-5, U6 и GAPDH
14. Окрашивание гематоксилином и эозином
Тестикулярные и придаточные семенники мышей погружали в 4% параформальдегид и фиксировали при 4 °при 24 ч. После промывания фосфатно-солевым буфером ткани обезвоживали в градуированном этанольном ряду, заливали в парафин и нарезали на срезы толщиной 5 µm. Срезы нагревали при 60 °при 60 °C в течение 60 мин и депарафинизировали в ксилоле в течение 30 мин
После гидратации в серии этанола повышающей концентрации срезы окрашивали гематоксилином в течение 5 мин, обрабатывали дифференцирующим раствором соляной кислоты в этаноле в течение 10 с, промывали водопроводной водой для посинения и окрашивали 1% эозином в течение 2 мин. Затем срезы обезвоживали в 95% и абсолютном этаноле и просветляли в ксилоле в течение 30 мин. После просушивания на воздухе срезы заключали в нейтральный бальзам. Морфологические изменения в яичках и придатках яичек наблюдали под микроскопом.
15. Иммунофлуоресценция
Срезы мышиных яичек в парафине депарафинизировали и гидратировали с помощью этанольного раствора постепенно уменьшающейся концентрации, после чего проводили извлечение антигенов с помощью микроволновой обработки в цитратном буфере при рН 6,0. После естественного охлаждения до комнатной температуры срезы инкубировали с 0,3% раствором Тритон Х-100 в течение 10 мин. Срезы блокировали 5% бычьим сывороточным альбумином при 25 °при 4 °C в течение 60 мин, промыли фосфатно-солевым буфером и инкубировали остаток при 4 °C в течение ночи °инкубировали с первичным антителом против Ki67. На следующий день наносили флуорохром-меченое вторичное антитело к иммуноглобулину G, и срезы инкубировали при 37 °инкубировать в темноте в течение 60 мин. После промывки фосфатно-солевым буфером срезы окрашивали контрастным красителем DAPI в течение 10 мин и наблюдали под флуоресцентным микроскопом. Интенсивность флуоресценции анализировали с использованием программного обеспечения для анализа изображений.
Для иммунофлюоресцентного окрашивания клеток GC-1 клетки высевали в 12-луночные планшеты при плотности 1 × 10⁵ клеток/лунку и инкубировали в течение 24 ч. Клетки фиксировали в течение 30 мин 4% параформальдегидом, пермеабилизировали в течение 10 мин 0,3% Тритоном X-100, блокировали 5% бычьим сывороточным альбумином и инкубировали овернайт при 4 °инкубировали с первичным антителом против QKI-5. Остальные этапы выполняли, как описано для срезов тестикулярной ткани.
16. Окрашивание по методу ТУНЕЛ
Парафиновые срезы мышиных яичек депарафинизировали, гидратировали с помощью этанола в нисходящей концентрационной серии и инкубировали с 0,1 % раствором Тритон Х-100 в течение 5 мин для повышения проницаемости клеточных мембран. Рабочий раствор протеиназы К при 20 µг/мл без ДНКазы равномерно наносили на срезы, после чего инкубировали при 37 °C в течение 15 мин. Добавляли раствор для детекции методом TUNEL и инкубировали срезы при 37 °инкубировать в темноте в течение 90 мин. После инкубации с DAPI в течение 10 мин наносили среду для монтажа с антифадом и исследовали тестикулярную ткань под флуоресцентным микроскопом.
Клетки GC-1 высевали в 12-луночные планшеты и фиксировали 4% параформальдегидом в течение 30 мин. После пермеабилизации 0,1% Triton X-100 в течение 5 мин на клетки наносили раствор для детекции TUNEL, после чего инкубировали в темноте в течение 60 мин. Затем клетки окрашивали ДАПИ в течение 10 мин и исследовали под флуоресцентным микроскопом.
17. Вестерн-блоттинг
Ткани яичек мышей и клетки GC-1 лизировали в буфере для иммунопреципитации на льду в течение 30 мин с последующей обработкой ультразвуком. После центрифугирования собирали белоксодержащий супернатант и определяли концентрацию белка с помощью набора для анализа с бицинхониновой кислотой. Белковый супернатант смешивали с SDS-буфером для загрузки и нагревали в кипящей воде в течение 10 мин. После разделения методом гель-электрофореза белки переносили на мембраны из поливинилиденфторида и блокировали 5% бычьим сывороточным альбумином в течение 2 ч31.
Мембраны инкубировали оверь ночь при 4 °инкубируйте с первичными антителами против расщепленного каспаза-3 (1:500), Bcl-2 (1:1000), каспаза-3 (1:2000), Bax (1:500), QKI-5 (1:1000), фосфорилированного p38 (1:1000) или p38 (1:500). На следующий день мембраны промывали трис-буферным раствором с Tween 20 и инкубировали с иммуноглобулином G козы против кролика в разведении 1:10000 в течение 2 ч при 25 °С °C. Рабочий раствор усиленной хемилюминесценции наносили на поверхность мембраны, а белковые полосы визуализировали с помощью системы для визуализации гелей. Интенсивность полос анализировали с использованием программного обеспечения для анализа изображений, а относительную экспрессию белка нормализовали по GAPDH (1:3000).
Циклогексимид при 50 µг/мл использовали для ингибирования синтеза белка. Для определения периода полужизни QKI-5 клетки собирали через 0, 3, 6 и 9 ч, после чего уровни белка QKI-5 определяли методом вестерн-блоттинга25.
18. Статистический анализ
Все данные были подвергнуты статистическому анализу и визуализированы с использованием статистического, графического и программного обеспечения для анализа изображений. Для оценки нормальности распределения данных использовался тест Шапиро–Уилка. Экспериментальные данные представлены как среднее значение ± стандартное отклонение. Для оценки различий между группами использовали однофакторный дисперсионный анализ. При однородности дисперсий для апостериорных парных сравнений применяли критерий t ЛСД, а при неоднородности — критерий Даннетта’Для случаев с неоднородными дисперсиями использовали t3-тест. Уровень значимости p < 0,05 считалось статистически значимым.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Результаты
Нокдаун lncRNA NONMMUT031883.2 индуцирует апоптоз сперматогоний
Клетки GC-1 были трансфицированы sh-lncRNA для подавления экспрессии lncRNA NONMMUT031883.2. По сравнению с клетками, трансфицированными sh-NC, уровень транскрипции lncRNA NONMMUT031883.2 заметно снизился после трансфекции sh-lncRNA, что подтверждает успешный нокдаун (Рисунок 2A). После нокдауна lncRNA NONMMUT031883.2 жизнеспособность клеток GC-1 значительно снизилась (Рисунок 2B
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Обсуждение
Приобретенная сперматогенная дисфункция, вызванная химиотерапией, является важной причиной мужского бесплодия32,33,34. Однако конкретные молекулярные механизмы этого процесса остаются изученными не полностью. Результаты данного исследования демонстрируют, что капсулы Янцзин (YC) дозозависимо улучшают показатели половых гормонов, уменьшают гистопатологические повреждения семенников и восстанавливают фертильность у самцов мышей пр...
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Раскрытие информации
Авторы заявляют об отсутствии финансовых или нефинансовых конфликтов интересов.
Благодарности
Данная работа была поддержана Национальным фондом естественных наук Китая (грант № 82374257), четвертой группой Программы подготовки ведущих академических талантов провинциальной больницы традиционной китайской медицины Цзянсу (грант № k2026yrc74) и научно-исследовательскими проектами в области традиционной китайской медицины и интегративной традиционной китайской и западной медицины провинции Цзянсу (грант № CYTF2026019).
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| Actinomycin D | MedChemExpress, Monmouth Junction, NJ, USA | HY-17559 | Ингибитор транскрипции, используемый в анализах стабильности РНК |
| Обратная транскриптаза AMV | Takara, Tokyo, Japan | 2621 | Фермент для синтеза комплементарной ДНК |
| Набор для детекции Annexin V-APC/PI | BioLab Technology, Beijing, China | KFS191 | Набор для проточного цитометрического анализа апоптоза |
| Среда для закрепления с антифейдинговым агентом | MedChemExpress, Monmouth Junction, NJ, USA | HY-K1042 | Закрепляющая среда для сохранения флуоресценции |
| Первичные антитела к Bax | Affinity Biosciences, OH, USA | AF0120 | Первичные антитела для детекции Bax |
| Набор BCA | Macklin, Shanghai, China | B917925 | Набор для определения концентрации белка |
| Первичные антитела к Bcl-2 | Affinity Biosciences, OH, USA | AF0769 | Первичные антитела для детекции Bcl-2 |
| Бычий сывороточный альбумин | BioLab Technology, Beijing, China | BTN131070 | Блокирующий реагент |
| Набор для детекции Calcein/PI | Beyotime, Shanghai, China | C2015M | Набор для окрашивания живых и мертвых клеток |
| Набор для анализа активности каспазы-3 | BioLab Technology, Beijing, China | QN2866 | Набор для измерения активности каспазы-3 |
| Первичные антитела к каспазе-3 | Abcam, MA, USA | ab184787 | Первичные антитела для детекции каспазы-3 |
| Реагент CCK-8 | MedChemExpress, Monmouth Junction, NJ, USA | HY-K0301 | Реагент для оценки жизнеспособности клеток |
| Первичные антитела к расщепленной каспазе-3 | Abcam, MA, USA | ab32042 | Первичные антитела для детекции расщепленной каспазы-3 |
| Циклогексимид | Macklin, Shanghai, China | H823111 | Ингибитор синтеза белка, используемый в анализах стабильности белка |
| Циклофосфамид | MedChemExpress, Monmouth Junction, NJ, USA | HY-17420 | Используется для индукции сперматогенной дисфункции |
| Реагент DAPI | Beyotime, Shanghai, China | C1006 | Контраст для ядер |
| Среда DMEM | Wuhan Sunncell Biotechnology, Hubei, China | SNLM-302 | Среда для культивирования клеток GC-1 |
| Рабочий раствор ECL | Solarbio, Beijing, China | SW2030 | Хемилюминесцентный субстрат для детекции белковых полос |
| Этопозид | MedChemExpress, Monmouth Junction, NJ, USA | HY-13629 | Агент, индуцирующий апоптоз |
| Проточный цитометр | BD Biosciences, CA, USA | BD FACSCalibur | Прибор для анализа апоптоза |
| Программное обеспечение FlowJo | BD Biosciences, CA, USA | v10.8 | ПО для анализа данных проточной цитометрии |
| Флуоресцентный микроскоп | Leica, Heidelberg, Germany | DM3000 | Прибор для флуоресцентной визуализации |
| Флуоресцентно-меченые вторичные антитела IgG | Servicebio, Wuhan, China | GB22303 | Вторичные антитела для иммунофлуоресцентной детекции |
| Набор ELISA для фолликулостимулирующего гормона | Huamei Biotech, Wuhan, China | CSB-E06871m | Набор для измерения уровня фолликулостимулирующего гормона в сыворотке |
| Первичные антитела к GAPDH | Affinity Biosciences, OH, USA | T0004 | Антитела для контроля нагрузки при вестерн-блоттинге |
| Клетки GC-1 | Wuhan Sunncell Biotechnology, Hubei, China | SNL-302 | Линия сперматогониальных клеток мыши |
| Система гель-визуализации | Jinpeng Analysis Instrument, Shanghai, China | JP-2880 | Система визуализации гелей и блотов |
| Система гель-визуализации | Invitrogen, Carlsbad, CA, USA | iBright CL1500 | Система хемилюминесцентной визуализации для вестерн-блотов |
| Козьи антитела против IgG кролика | Servicebio, Wuhan, China | GB23303 | Вторичные антитела для вестерн-блоттинга |
| Раствор гематоксилина | BioLab Technology, Beijing, China | YT165 | Краситель для ядер при гистологическом анализе |
| Дифференцирующий раствор этанол-соляная кислота | Beyotime, Shanghai, China | C0163S | Дифференцирующий реагент для окрашивания гематоксилином |
| Программное обеспечение ImageJ | National Institutes of Health, USA | 1.54h | ПО для количественного анализа изображений |
| Буфер для лизиса клеток при ИП | Beyotime, Shanghai, China | P0013 | Буфер для лизиса при иммунопреципитации и экстракции белков |
| Первичные антитела к Ki67 | Affinity Biosciences, OH, USA | AF0198 | Первичные антитела для детекции Ki67 |
| Набор для анализа цитотоксичности по LDH | Beyotime, Shanghai, China | C0016 | Набор для измерения высвобождения лактатдегидрогеназы и повреждения клеток |
| Световой микроскоп | Olympus, Tokyo, Japan | CKX53 | Используется для подсчета сперматозоидов и морфологического наблюдения |
| Lipofectamine 3000 | Invitrogen, Carlsbad, CA, USA | L3000001 | Реагент для трансфекции |
| Микропланшетный ридер | Molecular Devices, CA, USA | SpectraMax Mini | Прибор для измерения абсорбции |
| Набор ELISA для лютеинизирующего гормона мыши | Huamei Biotech, Wuhan, China | CSB-E12770m | Набор для измерения уровня лютеинизирующего гормона в сыворотке |
| Набор ELISA для тестостерона мыши | Huamei Biotech, Wuhan, China | CSB-E05101m | Набор для измерения уровня тестостерона в сыворотке |
| Нейтральный камедь | BioLab Technology, Beijing, China | QN1253 | Закрепляющая среда для гистологических срезов |
| Первичные антитела к p38 | Affinity Biosciences, OH, USA | AF6456 | Первичные антитела для детекции общего p38 |
| Параформальдегид | MedChemExpress, Monmouth Junction, NJ, USA | HY-Y0333 | Фиксатор для клеток и тканей |
| Набор PARIS | Invitrogen, Carlsbad, CA, USA | AM1921 | Набор для фракционирования ядерной и цитоплазматической РНК |
| ПЦР-система | ABI, CA, USA | ABI PRISM 7300 | Прибор для ПЦР в реальном времени |
| Первичные антитела к p-p38 | Affinity Biosciences, OH, USA | AF3455 | Первичные антитела для детекции фосфорилированного p38 |
| Раствор протеиназы K | Beyotime, Shanghai, China | ST532 | Реагент для пермеабилизации тканей перед окрашиванием TUNEL |
| Мембраны PVDF | Millipore, MA, USA | ISEQ00010 | Мембраны для переноса белков при вестерн-блоттинге |
| Первичные антитела к QKI-5 | Abcam, MA, USA | ab126742 | Первичные антитела для детекции QKI-5 |
| Буфер для связывания РНК | Invitrogen, Carlsbad, CA, USA | 65040D | Буфер для реакций связывания РНК с белками |
| Буфер для нанесения образцов SDS | Beyotime, Shanghai, China | P0286 | Буфер для нанесения образцов при SDS-PAGE |
| Магнитные бусины со стрептавидином | MedChemExpress, Monmouth Junction, NJ, USA | HY-K0208 | Магнитные бусины для захвата биотинилированных РНК-зондов |
| Набор TB Green FAST qPCR | Takara, Tokyo, Japan | CN830S | Набор реагентов для количественной ПЦР |
| Triton X-100 | Macklin, Shanghai, China | T824275 | Реагент для пермеабилизации |
| Реагент TRIzol | Invitrogen, Carlsbad, CA, USA | 15596018CN | Реагент для экстракции общей РНК |
| Раствор для детекции TUNEL | Beyotime, Shanghai, China | C1086 | Реагент для детекции фрагментации ДНК |
| Ксилол | Macklin, Shanghai, China | X821391 | Реагент для удаления парафина и просветления тканей |
Ссылки
- Bhattacharya I, Sharma SS, Majumdar SS. Etiology of male infertility: an update. Reprod Sci. 2024;31(4):942-965.
- Dong S, et al. Testicular aging, male fertility and beyond. Front Endocrinol (Lausanne). 2022;13:1012119.
- Wang X, et al. Decoding the pathogenesis of spermatogenic failure in cryptorchidism through single-cell transcriptomic profiling. Cell Rep Med. 2024;5(9):101709.
- Stallmeyer B, et al. Inherited defects of piRNA biogenesis cause transposon de-repression, impaired spermatogenesis, and human male infertility. Nat Commun. 2024;15(1):6637.
- Szlachcikowska D, Koszła O, Sołek P, Tabęcka-Łonczyńska A. Non-canonical apoptosis mediates oxaliplatin-induced disruption of spermatogenic cells: implications for male fertility. Chem Biol Interact. 2026;431:112009.
- Chi YN, et al. Geniposide attenuates spermatogenic dysfunction via .inhibition of endoplasmic reticulum stress in male mice. Chem Biol Interact. 2022;366:110144.
- Guo XB, et al. Protective effect of bone marrow mesenchymal stem cell-derived exosomes against the reproductive toxicity of cyclophosphamide is associated with the p38 MAPK/ERK and AKT signaling pathways. Asian J Androl. 2021;23(4):386-391.
- Lamb DJ. Chromosome defects and male factor infertility. Fertil Steril. 2025;123(6):933-942.
- Kathrins M, Niederberger C. Diagnosis and treatment of infertility-related male hormonal dysfunction. Nat Rev Urol. 2016;13(6):309-323.
- Piechka A, et al. Molecular mechanisms of cellular dysfunction in testes from men with non-obstructive azoospermia. Nat Rev Urol. 2024;21(2):67-90.
- Li Z, et al. The role of Cistanches Herba and its ingredients in improving reproductive outcomes: a comprehensive review. Phytomedicine. 2024;129:155681.
- Jiang X, et al. Shenling Baizhu San improves spermatogenic dysfunction in hyperuricemia mice by regulating Sirt3/Nrf2 to inhibit testicular ferroptosis. J Ethnopharmacol. 2025;340:119310.
- Deng W, Sun D, Cai B, Jin B. Yangjing capsule improves oligoasthenozoospermia by promoting nitric oxide production through the PLCγ1/AKT/eNOS pathway. Front Pharmacol. 2023;14:1056091.
- Zhao H, et al. Yangjing Capsule ameliorates spermatogenesis in male mice exposed to cyclophosphamide. Evid Based Complement Alternat Med. 2015;2015:980583.
- Jin B, et al. Yangjing Capsule improves testicular angiogenesis by activating the VEGFA/eNOS signaling pathway. Evid Based Complement Alternat Med. 2020;2020:1957267.
- Guo W, et al. Chlorocholine chloride exposure induced spermatogenic dysfunction via .iron overload caused by AhR/PERK axis-dependent ferritinophagy activation. Ecotoxicol Environ Saf. 2024;274:116193.
- Wang Z, et al. Yangjing Capsule extract promotes proliferation of GC-1 Spg cells. Evid Based Complement Alternat Med. 2014;2014:640857.
- Zhang P, et al. LncRNA-mediated adipogenesis in different adipocytes. Int J Mol Sci. 2022;23(13).
- Núñez-Martínez HN, Recillas-Targa F. Emerging functions of lncRNA loci beyond the transcript itself. Int J Mol Sci. 2022;23(11).
- Herman AB, Tsitsipatis D, Gorospe M. Integrated lncRNA function upon genomic and epigenomic regulation. Mol Cell. 2022;82(12):2252-2266.
- Wang JZ, et al. QKI-5 regulates the alternative splicing of the cytoskeletal gene ADD3 in lung cancer. J Mol Cell Biol. 2021;13(5):347-360.
- Zeng Y, et al. Nickel induces blood-testis barrier damage through ROS-mediated p38 MAPK pathways in mice. Redox Biol. 2023;67:102886.
- Luo D, He Z, Yu C, Guan Q. Role of p38 MAPK signaling in testis development and male fertility. Oxid Med Cell Longev. 2022;2022:6891897.
- Xia C, et al. LncRNA CCAT1 enhances chemoresistance in hepatocellular carcinoma by targeting QKI-5. Sci Rep. 2022;12(1):7826.
- Li K, et al. A long noncoding RNA binding to QKI-5 regulates germ cell apoptosis via .the p38 MAPK signaling pathway. Cell Death Dis. 2019;10(10):699.
- Zhou X, et al. ANKRD49 inhibits etoposide-induced intrinsic apoptosis of GC-1 cells by modulating NF-κB signaling. Mol Cell Biochem. 2019;457(1-2):21-29.
- Fang C, et al. Integrative proteomics and metabolomics approach to identify the key roles of icariin-mediated protective effects against cyclophosphamide-induced spermatogenesis dysfunction in mice. Front Pharmacol. 2022;13:1040544.
- Li K, et al. Adeno-associated-virus-mediated delivery of CRISPR-CasRx induces efficient RNA knockdown in the mouse testis. Theranostics. 2024;14(10):3827-3842.
- Yi H, et al. Retinoic acid mitigates NSC319726-induced spermatogenesis dysfunction through cuproptosis-independent mechanisms. Cell Biol Toxicol. 2024;40(1):26.
- Guo Y, Wang A, Liu X, Li E. Effects of resveratrol on reducing spermatogenic dysfunction caused by high-intensity exercise. Reprod Biol Endocrinol. 2019;17(1):42.
- Beeraka NM, et al. Ginsenoside Rh4 suppresses Notch3 and PI3K/Akt signaling to inhibit the growth and metastasis of gastric cancer cells. J Cancer Biomol Ther. 2025;2(1):145-156.
- Li P, et al. Proteomic analysis of cisplatin-induced spermatogenesis defects in mice. Ann Med. 2026;58(1):2612816.
- Wang Z, et al. Melatonin ameliorates paclitaxel-induced spermatogenesis and fertility defects in mice. J Cell Mol Med. 2022;26(4):1219-1228.
- Abdi M, et al. Cyclophosphamide-induced infertility and the impact of antioxidants. Am J Reprod Immunol. 2024;92(6):e70014.
- Özbilgin MK, Demirören S, Üçöz M, Oztatlici M. Cyclophosphamide suppresses spermatogenesis in the testes of mice through downregulation of miR-34b and miR-34c. Andrologia. 2021;53(7):e14071.
- Poojary KK, et al. Curcumin nanocrystals attenuate cyclophosphamide-induced testicular toxicity in mice. Toxicol Appl Pharmacol. 2021;433:115772.
- Cao J, et al. Single-cell map of human azoospermic testes caused by cyclophosphamide chemotherapy. Sci Data. 2024;11(1):163.
- Dong Y, et al. New insights into polycyclic aromatic hydrocarbons: Phenanthrene targets ribosomes to induce neuronal apoptosis. Aquat. Toxicol. 2026;298:107884.
- Wang Y, et al. Interplay between elemental imbalance-related PI3K/Akt/mTOR-regulated apoptosis and autophagy in arsenic (III)-induced jejunum toxicity of chicken. Environ. Sci. Pollut. Res. Int. 2018;25(19):18662-18672.
- Liu H, et al. Integrating network toxicology, transcriptomics and experimental validation to elucidate the potential mechanisms of fluoride-induced neurotoxicity in zebrafish. Comp. Biochem. Physiol. C Toxicol. Pharmacol. 2026;306:110549.
- Saleh DO, et al. Cyclophosphamide-induced testicular injury: the role of chrysin in mitigating iron overload and ferroptosis. Naunyn Schmiedebergs Arch Pharmacol. 2025;398(5):5475-5489.
- Dong S, et al. Loss of lncRNAs 1700101O22Rik and 1700027A15Rik causes sperm malformation and subfertility. Andrology. 2025;13(5):1223-1235.
- Liu W, et al. A novel meiosis-related lncRNA, Rbakdn, contributes to spermatogenesis by stabilizing Ptbp2. Front Genet. 2021;12:752495.
- Sun TC, et al. LncRNAs induce oxidative stress and spermatogenesis by regulating endoplasmic reticulum genes and pathways. Aging (Albany NY). 2021;13(10):13764-13787.
- Hua R, et al. DNM3OS enhances the apoptosis and senescence of spermatogonia associated with nonobstructive azoospermia by providing miR-214-5p and decreasing E2F2 expression. Anal Cell Pathol (Amst). 2023;2023:1477658.
- Wang S, et al. Quaking 5 suppresses TGF-β-induced epithelial-mesenchymal transition and cell invasion in lung adenocarcinoma. EMBO Rep. 2021;22(6):e52079.
- Chen X, et al. The emerging roles of the RNA-binding protein QKI in cardiovascular development and function. Front Cell Dev Biol. 2021;9:668659.
- Li J, et al. Qiangjing tablets repair blood-testis barrier dysfunction in rats by regulating oxidative stress and the p38 MAPK pathway. BMC Complement Med Ther. 2022;22(1):133.
- Tang Z, et al. MRE11 is essential for the long-term viability of undifferentiated spermatogonia. Cell Prolif. 2024;57(9):e13685.
- Jiao Y, Feng Z, Zhang T, Chen X. Impact of Vitamin D(3) Supplementation on Androgens and Semen Parameters in Infertile Men: A Systematic Review and Meta-Analysis Based on Prospective Randomised Controlled Trials. Arch. Esp. 2025;78(6):772-781.
Доступ ограничен. Войдите в систему или начните пробный период, чтобы просмотреть этот контент.