В данном протоколе описывается модель миопии у грызунов, не требующая использования защитных очков и наложения швов на веки, которая индуцируется субконъюнктивальными инъекциями TGF-β2. Данный метод активирует ось NLRP3/IL-1β-MMP2, что приводит к аксиальному удлинению глаза, в то время как раздельный режим биометрической записи минимизирует артефакты анестезии для получения высокоточных данных.
Методическая статья
Создание модели миопии у грызунов, индуцированной TGF-β, с помощью субконъюнктивальных инъекций
В этой статье
Краткое содержание
Аннотация
Миопия является серьезной глобальной проблемой общественного здравоохранения, характеризующейся чрезмерным осевым удлинением и ремоделированием внеклеточного матрикса (ВКМ) склеры. Хотя экспериментальные модели необходимы для исследования этих механизмов, традиционные методы оптического дефокуса у мелких грызунов имеют технические ограничения. В данной работе была создана и оценена стандартизируемая фармакологическая модель миопии посредством повторных субконъюнктивальных инъекций трансформирующего ростового фактора-бета (TGF-β). Для обеспечения направленной доставки была разработана техника хирургической стабилизации обеими руками для выворота верхнего века, что позволило вводить иглу калибра 33G в конъюнктиву верхнего века под малым углом 20°–30°. В ходе скрининга in vivo на крысах было установлено, что TGF-β2 (500 pg/eye) является основным стимулятором роста заднего сегмента глаза. Последующее титрование зависимости «доза-ответ» у мышей выявило перевернутый U-образный профиль. В основной валидационной когорте самая низкая доза (250 pg/eye) вызвала выраженное осевое удлинение (0.197 ± 0.012 mm) и миопический рефракционный сдвиг (−1.58 ± 0.63 D). На молекулярном уровне повторное введение TGF-β2 активировало каскад инфламмасомы NLRP3 (NOD-like receptor family pyrin domain-containing 3) / интерлейкина-1β (IL-1β) в сетчатке и повышало экспрессию матриксной металлопротеиназы 2 (MMP2) у обоих видов животных. В сочетании с двухдневным режимом раздельной биометрической записи, который сводит к минимуму артефакты, связанные с анестезией, данный протокол представляет собой надежную и масштабируемую платформу для оценки методов лечения миопии.
Введение
Миопия стала серьезной проблемой для мирового общественного здравоохранения, и, по прогнозам, к 2050 году она затронет почти 50% населения мира1,2. Основным патологическим фактором прогрессирующей миопии является избыточное осевое удлинение глаза, которое вызывает активное ремоделирование внеклеточного матрикса и дегенерацию тканей, что приводит к структурному истончению задних оболочек глаза3. Эти динамические изменения включают как структурное ремоделирование (характеризующееся деградацией ВКМ склеры, потерей коллагена и истончением заднего слоя), так и функциональное ремоделирование (отмеченное снижением биомеханической жесткости, изменением перфузии хориоидеи и аберрантной воспалительной сигнализацией в системе «сетчатка-РПЭ»), что в совокупности повышает пожизненный риск развития осложнений, угрожающих зрению, и необратимого нарушения зрения, включая миопическую макулопатию, отслойку сетчатки, глаукому и преждевременную катаракту4,5,6,7. Несмотря на значительное клиническое и социально-экономическое бремя данного заболевания, точные вышестоящие молекулярные механизмы, регулирующие аномальный рост глаза, остаются изученными не полностью. Следовательно, выяснение сигнальных путей, которые стимулируют осевое удлинение, и разработка воспроизводимых стандартизированных моделей на животных являются критически важными шагами на пути к поиску новых терапевтических мишеней и борьбе с глобальной эпидемией миопии.
Хотя миопия, вызванная депривацией формы (FDM), и миопия, индуцированная линзой (LIM), служат золотыми стандартами для исследования оптического дефокуса и эмметропизации8,9,10,11, внедрение этих моделей оптического дефокуса у мелких грызунов — в частности, у мышей — сопряжено со значительными техническими трудностями. Активное поведение мышей по уходу за собой часто приводит к отсоединению очков, что требует применения стрессовых мер противодействия, таких как защитные воротники12. Более того, механическое трение, наложение швов на веки и изменение микросреды под окклюдером регулярно вызывают вторичные осложнения роговицы, такие как помутнение или изъязвление роговицы13,14,15. Несмотря на то что FDM и LIM остаются основополагающими парадигмами исследования визуального дефокуса, вторичные осложнения поверхности глаза — такие как помутнение роговицы, механическое трение или раздражение от швов на веках — могут препятствовать проведению оптических биометрических измерений15. Эти процедурные артефакты нарушают стабильность слезной пленки и прозрачность роговицы, что ведет к более высокому проценту исключения животных из эксперимента и увеличению шума измерений13,16. Напротив, фармакологическая индукция позволяет избежать использования физических окклюдеров, сохраняя чистоту роговицы и обеспечивая надежную и воспроизводимую оптическую и ультразвуковую биометрию. При миопии чрезмерное удлинение глазного яблока обусловлено измененным ремоделированием внеклеточного матрикса (ECM) задней части склеры17, где изоформы трансформирующего ростового фактора-бета (TGF-β) выступают в качестве ключевых регуляторов синтеза коллагена и протеогликанов18,19. Новые данные свидетельствуют о том, что сигнализация TGF-β может пересекаться с вялотекущим воспалением глаза и деградацией матрикса, опосредованной матриксной металлопротеиназой 2 (MMP2)20, что потенциально способствует ремоделированию склеры и аксиальному удлинению21,22,23,24. Это подтверждается повышенными уровнями трансформирующего ростового фактора-бета 2 (TGF-β2), интерлейкина-6 (IL-6) и MMP2, зарегистрированными в водянистой влаге миопических глаз25,26,27, а также активацией оси TGF-β / ядерный фактор kappa B (NF-κB) / MMP2 в экспериментальных моделях20,21. Хотя эти результаты отражают динамическую внутриглазную молекулярную сигнализацию в процессе прогрессирования миопии, относительный анатомический вклад в появление маркеров в водянистой влаге — будь то местная передняя секреция, поток из субконъюнктивального депо или диффузия из заднего стекловидного тела — еще предстоит полностью выяснить. Тем не менее, необходимо признать область применения и присущие данной фармакологической модели ограничения. Поскольку субконъюнктивальное введение TGF-β обходит механизмы оптического дефокуса и пути визуальной обработки, эта модель наиболее подходяща для анализа нижележащих биохимических каскадов — в частности, ремоделирования ECM склеры, опосредованного путем TGF-β2 / NLRP3-подобный рецептор / интерлейкин-1β (IL-1β) / MMP2 — и скрининга потенциальных терапевтических агентов, воздействующих на пути воспаления или деградации матрикса. И наоборот, она не подходит для исследования вышестоящей трансдукции визуальных сигналов, оптической сигнализации от сетчатки к склере или механизмов эмметропизации, вызванных воздействием окружающего света, где традиционные модели FDM или LIM остаются незаменимыми.
Для устранения этих методологических пробелов была разработана и валидирована модель миопии с использованием повторных субконъюнктивальных инъекций TGF-β у крыс и мышей, предлагающая усовершенствованный подход, который сводит к минимуму механическую травму и раздражение поверхности глаза. Благодаря отказу от необходимости использования физических окклюдеров, данный протокол обеспечивает точный контроль фармакологических доз и временных рамок эксперимента, существенно снижая влияние потенциальных поведенческих искажающих факторов, связанных с закрепленным на голове оборудованием. В этом исследовании была оценена эффективность трех рекомбинантных изоформ человеческого TGF-β (которые обладают подтвержденной функциональной перекрестной реактивностью в тканях грызунов, что обосновано консервативностью последовательностей28) у крыс, а также изучена нелинейная кинетика зависимости «доза-эффект» TGF-β2 у мышей. Важно отметить, что этот стандартизированный режим эффективно индуцировал фенотипическую миопию — характеризующуюся одновременным осевым удлинением и миопическим сдвигом рефракции — и активировал ось ретинального инфламмасомы NLRP3 (NOD-like receptor family pyrin domain-containing 3) / IL-1β (interleukin-1β) и MMP2. В конечном итоге данный протокол предоставляет жизнеспособную, молекулярно определенную основу для воздействия на последующее ремоделирование склеры, подробно описывая его конкретные операционные границы.
Протокол
Все эксперименты с животными проводились в соответствии с руководящими принципами и нормативными требованиями Комитета по уходу за животными и их использованию в исследованиях (IACUC) Китайского медицинского университета (CMU). Все процедуры соответствовали положениям заявления Ассоциации по исследованиям в области зрения и офтальмологии (ARVO) об использовании животных в офтальмологических и визуальных исследованиях. Полное одобрение со стороны CMU-IACUC было получено до начала проведения всех экспериментов. Эвтаназия животных выполнялась в конечной точке эксперимента строго в соответствии с руководящими принципами Комитета по уходу за животными и их использованию в исследованиях (IACUC) Китайского медицинского университета (CMU) и местными нормативами по благополучию животных.
1. Животные и этическое одобрение
- Получите самцов крыс линии Браун-Норвег (BN) (3–4 недели возраста, 60–80 г) и самцов мышей линии C57BL/6 (B6) (3–4 недели возраста, 15–20 г) от соответствующего поставщика лабораторных животных.
- Содержите всех животных в контролируемых условиях (12-часовой цикл света/темноты, 22 °C ± 2 °С, 50% ± 10% относительной влажности) с неограниченным доступом к стандартному корму и воде.
- Перед началом любой экспериментальной процедуры обеспечьте не менее 3 дней адаптации.
- Распределяйте крыс или мышей случайным образом на группы лечения: группа контроля с применением растворителя и группа TGF-β2 группы инъекций. Используйте не менее N = 5 животных в каждой когорте для обеспечения достаточной статистической мощности.
ПРИМЕЧАНИЕ: Использовался межгрупповой дизайн. Оба глаза одного и того же животного получали идентичные воздействия (либо двусторонний контроль с применением вспомогательного вещества [1–2 µL BSS] или двусторонний активный rhTGF-β2).- Измерьте двусторонние офтальмологические параметры (длину глаза по оси и рефракцию) для каждого животного.
ПРИМЕЧАНИЕ: Убедитесь, что получено письменное разрешение CMU-IACUC, и что весь персонал, выполняющий процедуры, прошёл соответствующую подготовку и аттестацию.
- Измерьте двусторонние офтальмологические параметры (длину глаза по оси и рефракцию) для каждого животного.
2. Подготовка ТФР-ββ2 раствора
ПРИМЕЧАНИЕ: Все этапы восстановления и разведения проводите внутри сертифицированного бокса биологической безопасности, используя строгие асептические методы.
- Реконституируйте лиофилизированный рекомбинантный человеческий TGF-β2 в стерильном 50% глицерине, содержащем 0,1% бычий сывороточный альбумин (BSA), для приготовления 100 µг/мл маточный раствор
- Приготовьте рабочие растворы путем последовательных разведений маточного раствора в стерильном сбалансированном солевом растворе (BSS).
- Для групп крыс (доза 500 пг) разбавьте маточный раствор до конечной концентрации 250 нг/мл (250 пг/µл) для 2 µобъём инъекции 1 л на глаз
- Для когорт мышей в эксперименте по дозозависимому ответу приготовьте три независимых рабочих раствора с концентрациями 250 нг/мл, 375 нг/мл и 500 нг/мл (250, 375 и 500 пг/µл) для 1 µобъём инъекции на глаз
- Приготовьте одноразовые 15–20 µL аликвоты в стерильных микроцентрифужных пробирках, быстро заморозить в жидком азоте и хранить при -20 °C. Оттаивайте аликвоты на льду непосредственно перед использованием.
ОСТОРОЖНО: Жидкий азот может вызвать тяжелые обморожения и представляет опасность удушья. Используйте соответствующие средства индивидуальной защиты для работы с криогенными веществами и обращайтесь с ним в хорошо вентилируемом помещении в соответствии с правилами техники безопасности учреждения. - Параллельно приготовьте раствор контрольного средства с использованием стерильного BSS, дополненного эквивалентной матрицей, содержащей 50 % глицерина и 0,1 % БСА.
3. Процедура субконъюнктивальной инъекции
- Поместите животных в индукционную камеру с 3–4% изофлурана для индукции анестезии. Затем перенесите животное на маску-конус, подающую 1,5–2% изофлюран для поддержания анестезии.
ОСТОРОЖНО: Изофлюран является летучим анестетиком. Используйте соответствующую систему отсасывания и обращайтесь с ним в соответствии с установленными в учреждении правилами охраны труда и техники безопасности. - Проверьте достаточную глубину анестезии, убедившись в отсутствии рефлекса отдергивания лапы при ущипывании пальца.
- Поместите животное в положение лежа на животе под волоконно-оптическим прожектором. Аккуратно захватите, приподнимите и слегка выверните верхнее веко с помощью тонкозагнутых микрохирургических пинцетов, чтобы полностью обнажить пальпебральную конъюнктиву и конъюнктивальный свод (Рисунок 1B).
- Предварительно увлажните 10 µL-стеклянный микропипеточный шприц и игла 33-го калибра 2–3 раза рабочим раствором для устранения мертвого объема. Загрузите целевой объем (2 µл для крыс или 1 µL для мышей) и удалите все микропузырьки.
ОСТОРОЖНО: Работайте с иглами и другими острыми предметами осторожно и утилизируйте их в утвержденном контейнере для острых предметов в соответствии с институциональными правилами. - Ориентируйте иглу 33-G скошенной кромкой вверх (скошенной кромкой вверх) и направьте её в намеченное место введения на обнажённой конъюнктивальной поверхности векаРисунок 1B,С).
- Ввести кончик иглы через конъюнктивальный эпителий под небольшим углом 20°–30° угол (Рисунок 1C).
- Осторожно продвиньте иглу через узкое подслизистое пространство за конъюнктивальный свод в пальпебральную подконъюнктивальную область (Рисунок 1C).
КРИТИЧЕСКИЙ ЭТАП (структуры, которые необходимо избегать): строго избегайте проникновения в подлежащие мейбомиевы железы или случайного повреждения более глубоких структур глаза. Визуально подтверждайте правильное поверхностное расположение иглы под освещением, следя за тем, чтобы скос иглы оставался видимым под прозрачной конъюнктивальной поверхностью на всём протяжении её продвижения. - Медленно введите раствор в течение 5–10 с. Удерживайте иглу на месте дополнительно 5 с, прежде чем медленно извлечь ее, чтобы предотвратить обратный ток жидкости.
ПРИМЕЧАНИЕ: правильное субконъюнктивальное введение подтверждается немедленным локальным возвышением и побледнением конъюнктивы (образованием пузырька).- Если пузырек не образуется или наблюдается значительная утечка, выполните повторное введение препарата один раз в нижний конъюнктивальный мешок и зафиксируйте отклонение в экспериментальном журнале.
ПРИМЕЧАНИЕ: строго ограничьте повторные инъекции одной попыткой на глаз за сеанс; исключайте животных с неоднократными неудачами доставки из продольного анализа.
- Если пузырек не образуется или наблюдается значительная утечка, выполните повторное введение препарата один раз в нижний конъюнктивальный мешок и зафиксируйте отклонение в экспериментальном журнале.
- Обеззараживайте полость микросерологической шприца между инъекциями отдельным животным в одной группе, промывая её 3 раза стерильным 70% этанолом, а затем 5 раз стерильным физиологическим раствором.
- Каждые 3–5 инъекций и немедленно замените иглу, если произойдёт затупление или изгиб её кончика.
- Сначала введите препарат всем животным контрольной группы, прежде чем манипулировать или вводить лечение группам с вмешательством, чтобы исключить риск фармакологического перекрёстного загрязнения. Повторите цикл дезинфекции шприца перед переходом к группам с лечением.
- Промойте корпус шприца и поршень специальным раствором для очистки микропипеток, затем ультрачистой водой и абсолютным этанолом после каждой экспериментальной сессии и храните в сухом виде.
- Повторяйте подконъюнктивальные инъекции один раз в неделю в течение 3 последовательных недель (дни 0, 7 и 14). Проводите продольные биометрические оценки в исходном состоянии (дни −1 и 0) и на конечной точке (дни 20 и 21), как подробно описано в разделе 4.
- Поместите животное в тёплую клетку для реабилитации, застеленную бумажными полотенцами, после инъекции. Наблюдайте за животным непрерывно до тех пор, пока полностью не восстановится грудное лежание и нормальная двигательная активность.
- Проверьте глаза под стереомикроскопом после реабилитации, чтобы исключить внутриглазное кровоизлияние, помутнение роговицы или острое механическое повреждение. Ежедневно наблюдать за животными на предмет признаков беспокойства или локальной инфекции.
4. Методы проверки модели
- Оценка рефракции глаза
- Поместите грызунов на термостатически регулируемую грелку для поддержания физиологической температуры тела и предотвращения анестезионных катаракт. Содержите животных под лёгкой анестезией изофлураном (1–1,5%) через носовую маску для обеспечения стабильной глубины анестезии.
- Закапайте по 1 капле Мидрин-Р (0,5% тропикамида и 0,5% гидрохлорида фенилэфрина) в каждый глаз за 10–за 15 мин до измерения для индукции полной циклоплегии и расширения зрачка
- Поместите животное в грудное положение при тусклом рассеянном освещении. Непрерывно наносите стерильный BSS вплоть до момента оптического сканирования для сохранения прозрачности роговицы.
- Измеряйте рефракцию глаза с помощью автоматического инфракрасного фоторефрактометра в строгом диапазоне 5–10-минутное окно после индукции анестезии. У крыс линии BN аккуратно вручную оттяните веки, чтобы полностью обнажить расширенный зрачок во время регистрации.
- Получите три независимых оптических измерения для каждого глаза и усредните значения, чтобы определить рефракционную ошибку в исходном состоянии или на конечной точке.
КРИТИЧЕСКИЙ ЭТАП (время выполнения & Последовательность): Проведите фоторефракцию в первый день последовательности обследования (День –1 — до начала исследования; день 20 — конечная точка) в условиях приглушённого освещения до проведения любых контактных процедур. Проведение фоторефракции после ультразвукового исследования контактным методом или нанесения акустического геля серьёзно нарушает оптические свойства роговицы, рассеивает инфракрасный свет и делает невозможным получение корректных автоматизированных рефрактометрических показаний.
- Измерение осевой длины глаза с помощью ультразвуковой биомикроскопии высокой частоты
- На следующий день (день 0 для исходного уровня или день 21 для конечной точки) оцените осевую длину глаза под легкой анестезией изофлураном (1–1,5%) с использованием ручного линейного ультразвукового датчика 16 МГц, откалиброванного по скорости акустических волн в тканях грызунов (1532–1550 м/с).
- Для мышей линии B6 (прямой роговичный контакт): нанесите базовый защитный слой геля Ginpol карбомера (0,2%) непосредственно на роговицу, а затем слой стандартного акустического геля.
ПРИМЕЧАНИЕ: Убедитесь, что слой геля полностью покрывает поверхность роговицы, не образуя при этом пузырьков воздуха, которые вызывают акустическое затухание. - Для крыс линии BN (транспальпебральный интерфейс): расположите животное с закрытыми веками, нанесите ультразвуковой гель на наружную поверхность века и проводите измерения транспальпебрально.
ПРИМЕЧАНИЕ: Транспальпебральное измерение исключает прямой контакт с роговицей, значительно снижая риск её травмирования у грызунов с более крупными глазами.
- Для мышей линии B6 (прямой роговичный контакт): нанесите базовый защитный слой геля Ginpol карбомера (0,2%) непосредственно на роговицу, а затем слой стандартного акустического геля.
- Совместите ультразвуковой датчик и измерьте осевую длину вдоль центральной оптической оси от передней поверхности глаза до задней склеральной эхоструктуры.
- Получите десять независимых реплик B-сканов на глаз и рассчитайте среднюю аксиальную длину.
- Аккуратно промойте остатки акустического геля с глаза с помощью стерильного BSS сразу после завершения процедуры, чтобы предотвратить раздражение роговицы после вмешательства.
КРИТИЧЕСКИЙ ЭТАП (контакт без давления): Установите ультразвуковой датчик на гелевую поверхность, используя крайне легкое прикосновение без оказания давления. Любое физическое давление вниз на вершину роговицы искусственно сжимает глубину передней камеры и приводит к ложному укорочению осевой длины глаза. - Запишите усреднённые значения длины глаза по оси и рефракции для последующего анализа.
- На следующий день (день 0 для исходного уровня или день 21 для конечной точки) оцените осевую длину глаза под легкой анестезией изофлураном (1–1,5%) с использованием ручного линейного ультразвукового датчика 16 МГц, откалиброванного по скорости акустических волн в тканях грызунов (1532–1550 м/с).
Результаты
Создание и анатомическая валидация модели субконъюнктивального введения
Для устранения технической вариабельности, связанной с использованием оптических очков или наложением швов на веки, субконъюнктивальное пространство между пальпебральной и бульбарной конъюнктивой было валидировано в качестве целевого локализованного резервуара для препарата (Рисунок 1A). Анатомический доступ через верхний свод конъюнктивы обеспечил стабильную экспозицию целевой зоны при сохранении целостности поверхности глаза (Рисунок 1B). Успешное создание модели подтверждалось специфическими операционными и биометрическими критериями, включая немедленную верификацию методом трансмиллюминации локализованного, заполненного жидкостью субмукозального пузырька (хемоза) в целевой зоне пальпебрального субконъюнктивального пространства без перфорации склеры, кровоизлияния в ткани или повреждения мейбомиевых желез (Рисунок 1C), а также лонгитюдную биометрическую верификацию одновременного удлинения оси глаза (Δ AL > 0.15 mm у мышей; >0.40 mm у крыс), сопровождающегося миопическим рефракционным сдвигом (Δ Refraction < −1.0 D) на 21-й день относительно контрольной группы, получавшей плацебо. Напротив, неудачные или субоптимальные результаты определялись по специфическим техническим и физиологическим признакам сбоя. Технический сбой — такой как преждевременный рефлюкс жидкости при извлечении иглы или непреднамеренное глубокое проникновение в ткани века/орбиты — приводил к минимальному образованию пузырька или его отсутствию, что вело к недостаточному удержанию фармакологического агента и невозможности индуцировать миопический сдвиг; животные с постоянной утечкой фиксировались и исключались в соответствии с этапом протокола 3.8.1. Кроме того, осложнения поверхности глаза вследствие неправильного глубокого расположения иглы или чрезмерной механической тракции вызывали локальное субконъюнктивальное кровоизлияние или травму роговицы, провоцируя сопутствующие воспалительные реакции. Субоптимальные фенотипические результаты также наблюдались при оценке зависимости «доза-эффект», когда введение надпороговых концентраций (например, 500 pg/eye у мышей) приводило к ослабленному U-образному ответу с меньшим удлинением оси, что подчеркивает физиологическую необходимость строгой оптимизации дозы. Подтвержденное локальное удержание препарата согласно этим стандартизированным критериям обеспечило высокоточное воздействие на ткани для последующего биометрического и молекулярного анализа.
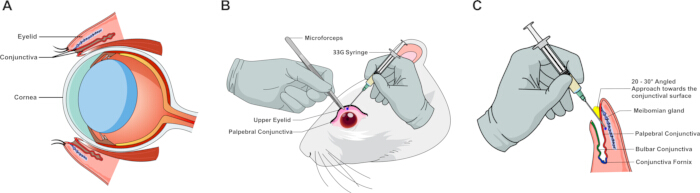
Рисунок 1: Анатомические ориентиры и схематическая иллюстрация процедуры субконъюнктивальной инъекции у грызунов. (A) Сагиттальный срез глаза грызуна с указанием основных анатомических ориентиров, включая веко, роговицу, конъюнктивальный мешок и целевое субконъюнктивальное пространство. (B) Хирургическая демонстрация стабилизации тканей и обнажения вековой конъюнктивы с помощью микропинцета; синяя точка указывает на целевое место введения иглы для микроинъекции с использованием шприца 33G. (C) Схема с большим увеличением, иллюстрирующая ориентацию иглы и траекторию ее введения относительно поверхности вековой конъюнктивы, свода конъюнктивы и подлежащих структур глаза. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
Скрининг TGF-β изоформы у крыс и титрование зависимости «доза-ответ» для TGF-β2 у мышей для осевого удлинения
Эксперименты проводились в последовательных независимых экспериментальных когортах, включавших когорты для подбора дозы (Рисунок 2) и основные валидационные когорты (Рисунок 3). Билатеральные параметры измерялись в разных когортах, при этом в качестве основного биологического повтора рассматривались отдельные животные (N). Зависимости между глазами (правый глаз против левого глаза одного и того же животного) учитывались с помощью двухфакторного дисперсионного анализа с повторными измерениями (ANOVA) или смешанных моделей, где это было применимо. Непрерывные данные представлены в виде среднего значения ± SD. Различия между контрольной и опытной группами оценивали с помощью двустороннего t-критерия Стьюдента т-тесты, однофакторный дисперсионный анализ (ANOVA) или двухфакторный дисперсионный анализ с повторными измерениями (ANOVA), в зависимости от ситуации. А pзначение p < Значение 0,05 считалось статистически значимым.
Для определения наиболее активной изоформы трансформирующего growth factor-β (TGF-β) и установления оптимального режима дозирования для индукции осевого удлинения оценивали эффекты повторных субконъюнктивальных инъекций в когортах крыс и мышей с исходного уровня (День 0) по 21-й день (Рисунок 2). Биометрические измерения проводили по двухдневному раздельному режиму, чтобы избежать артефактов, вызванных анестезией.
Три изоформы рекомбинантного TGF-β человека (TGF-β1, TGF-β2 и TGF-β3) были предварительно протестированы на группе крыс в стандартизированной концентрации 500 pg/eye (Рисунок 2A). Однофакторный дисперсионный анализ (ANOVA) с последующими апостериорными множественными сравнениями показал, что все три изоформы значительно стимулировали рост заднего отдела глаза по сравнению с контрольной группой, получавшей плацебо, в течение 21-дневного периода. В то время как TGF-β1 (0,444 ± 0,042 mm) и TGF-β3 (0,454 ± 0,049 mm) способствовали значимому осевому удлинению (p < 0,05 и p < 0,01 по сравнению с контролем 0,328 ± 0,071 mm соответственно), TGF-β2 вызвал наибольшее увеличение длины оси глаза (0,486 ± 0,074 mm) и продемонстрировал самую высокую статистическую значимость (p < 0,001), что позволило определить его как наиболее эффективный индуктор миопического фенотипа.
На основании результатов скрининга на крысах было проведено титрование доза-ответ TGF-β2 в когорте мышей с тестированием трех концентраций: 250, 375 и 500 pg/eye (Рисунок 2B). Субконъюнктивальное введение TGF-β2 привело к формированию перевернутого U-образного профиля доза-ответ. Самая низкая доза (250 pg/eye) вызвала наиболее значительное ускорение осевого удлинения по сравнению с контролем, получавшим плацебо (0.177 ± 0.038 mm против 0.044 ± 0.011 mm; p < 0.0001). При более высоких дозах (375 и 500 pg/eye) величина изменения осевой длины постепенно снижалась, хотя она оставалась значительно выше, чем в контрольной группе (0.123 ± 0.029 mm; p < 0.001 и 0.095 ± 0.024 mm; p < 0.01 соответственно).
В совокупности эти данные позволяют установить еженедельный режим субконъюнктивального введения в дозе 500 pg/eye для крыс и 250 pg/eye для мышей в качестве оптимальных параметров для последующих структурных и молекулярных исследований.
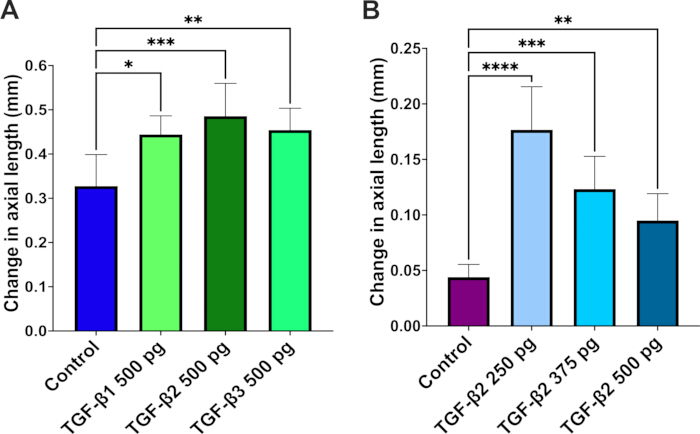
Рисунок 2: Скрининг для подбора дозы изоформ и концентраций трансформирующего ростового фактора-β (TGF-β) при воздействии на осевую длину глаз крыс и мышей. (A) Изменение осевой длины у крыс (начальная когорта скрининга), рассчитанное как разница между исходным уровнем (день 0, до первой инъекции) и конечной точкой (день 21) после трех последовательных субконъюнктивальных инъекций TGF-β1, TGF-β2 или TGF-β3 (по 500 pg/eye, введенных в дни 0, 7 и 14), по сравнению с контрольной группой, получавшей плацебо. (B) Изменение осевой длины у мышей (когорта скрининга доз), рассчитанное как разница между исходным уровнем (день 0) и 21-м днем после трех последовательных субконъюнктивальных инъекций TGF-β2 в трех различных концентрациях (250, 375 или 500 pg/eye, введенных в дни 0, 7 и 14), по сравнению с контрольной группой, получавшей плацебо. Данные представлены как среднее ± SD (N = 5 животных/группа, что соответствует 10 глазам на группу). Статистическая значимость оценивалась с помощью однофакторного ANOVA с последующими апостериорными множественными сравнениями; *p < 0.05, **p < 0.01, ***p < 0.001, ****p < 0.0001 по сравнению с контрольной группой плацебо. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
Повторные субконъюнктивальные инъекции TGF-β2 вызывают удлинение передне-задней оси глаза и миопический сдвиг у крыс и мышей
Для оценки биометрического эффекта повторного субконъюнктивального введения TGF-β2 (3 инъекции в неделю) проводился мониторинг продольных изменений длины оси глаза и рефракционной ошибки от исходного уровня до 3-й недели как на моделях крыс, так и на моделях мышей (Рисунок 3). Протокол с разделением процедур на два дня (определение рефракционного статуса на 20-й день, затем B-сканирующая ультрасонография на 21-й день) позволил минимизировать возможные артефакты, вызванные анестезией, и стресс для глаз. У обоих видов наблюдались фенотипические сдвиги, соответствующие развитию экспериментальной миопии после применения данной схемы многократного дозирования.
В когорте крыс у животных, получавших повторные субконъюнктивальные инъекции TGF-β2 в дозе 500 pg/eye, наблюдалось значительно большее увеличение осевой длины глаза за 21-дневный период по сравнению с контрольной группой, получавшей плацебо (0.466 ± 0.045 mm против 0.388 ± 0.032 mm; p < 0.01; Рисунок 3A). Это удлинение сопровождалось значимым миопическим сдвигом рефракции (p < 0.05; Рисунок 3B). В то время как в контрольных глазах наблюдался ожидаемый небольшой гипертрофический дрифт (+0.31 ± 0.93 D), в глазах, обработанных TGF-β2, развилось миопическое состояние рефракции (−1.38 ± 0.91 D).
Аналогично данным, полученным на крысах, у мышей, которым вводили 250 pg/eye TGF-β2, также наблюдались выраженные структурные и рефракционные изменения. Осевое удлинение было значительно более выраженным у мышей, получавших TGF-β2, по сравнению с контрольной группой, получавшей плацебо (0.197 ± 0.012 mm против 0.110 ± 0.014 mm; p < 0.0001; Рисунок 3C). Кроме того, это структурное удлинение привело к значимому миопическому сдвигу (p < 0.05; Рисунок 3D), что фактически изменило естественную гиперметропическую рефракцию, наблюдавшуюся у контрольных мышей (+2.25 ± 1.77 D), на миопический профиль (−1.58 ± 0.63 D).
Для проверки симметрии межглазного ответа и подтверждения того, что объединение двусторонних измерений глаз не вносит статистическую ошибку, динамика осевого удлинения оценивалась отдельно для левого (OS, n = 5) и правого (OD, n = 5) глаз в каждой группе (Supplementary Figure 1). Как у крыс (Supplementary Figure 1A), так и у мышей (Supplementary Figure 1B) не было обнаружено статистически значимых различий между глазами OS и OD ни в контрольной группе (плацебо), ни в когорте, получавшей TGF-β2, что подтверждает симметричную динамику ответа обоих глаз. Кроме того, в глазах OS и OD животных, получавших TGF-β2, наблюдалось стабильное и выраженное осевое удлинение по сравнению с соответствующими контрольными группами (p < 0.05 для крыс; p < 0.0001 для мышей), что подтверждает обоснованность учета двусторонних измерений в основном биометрическом анализе.
В совокупности эти результаты демонстрируют, что повторное субконъюнктивальное введение TGF-β2 эффективно стимулирует рост заднего сегмента глаза и соответствующий миопический рефракционный сдвиг в обеих моделях грызунов (Рисунок 3 и Дополнительный рисунок 1).
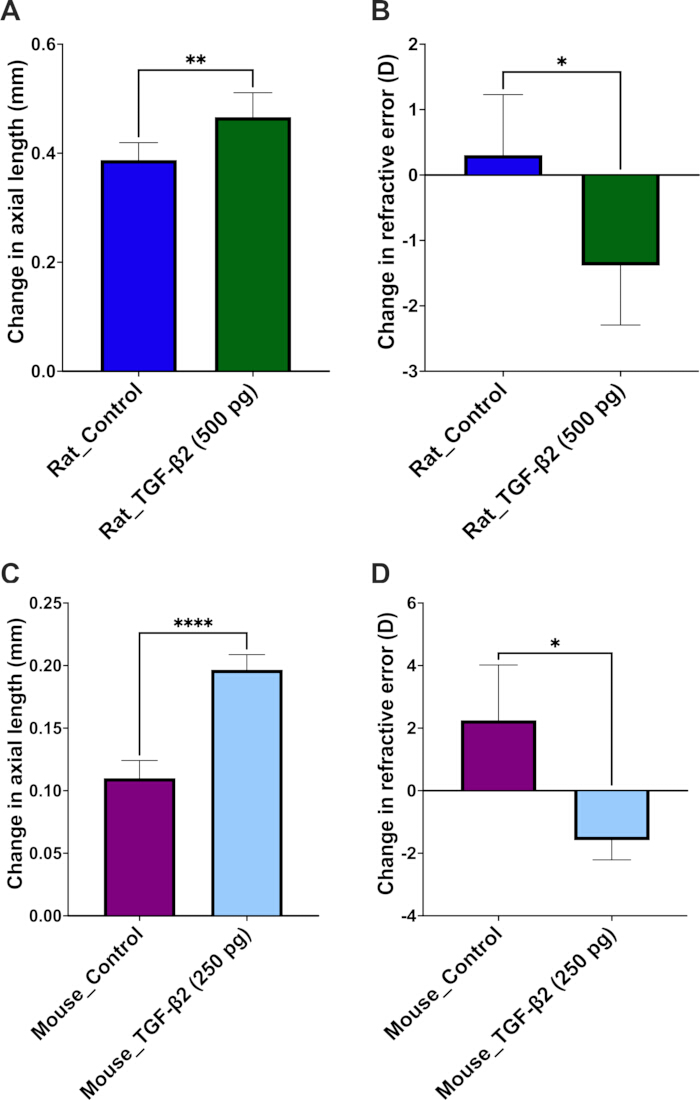
Рисунок 3: Первичная валидация эффектов TGF-β2 на осевое удлинение и рефракционную ошибку в независимых когортах крыс и мышей. (A) Изменение осевой длины у крыс, рассчитанное как разница между исходным уровнем и конечной точкой на 3-й неделе в глазах, получавших субконъюнктивальное введение TGF-β2 (500 pg/eye последовательно в дни 0, 7 и 14) или контрольный раствор. (B) Изменение рефракционной ошибки в тех же глазах крыс, демонстрирующее значительный миопический сдвиг в группе, получавшей TGF-β2, по сравнению с контрольной группой. (C) Изменение осевой длины у мышей (независимая когорта первичной валидации), рассчитанное как разница между исходным уровнем и конечной точкой на 3-й неделе в глазах, получавших субконъюнктивальное введение TGF-β2 (250 pg/eye в дни 0, 7 и 14) или контрольный раствор. (D) Изменение рефракционной ошибки в тех же глазах мышей, выявляющее соответствующий отрицательный диоптрийный сдвиг при оптимальной индукции TGF-β2. Данные представлены как среднее ± SD (N = 5 животных/группа, что соответствует 10 глазам на группу). Статистическая значимость была строго оценена с помощью непарных двухсторонних t-критериев; *p < 0.05, **p < 0.01, ****p < 0.0001 по сравнению с соответствующей контрольной группой. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
Субконъюнктивальное введение TGF-β2 повышает экспрессию MMP2 в склере при прогрессировании экспериментальной миопии
Для оценки последующего ремоделирования тканей вдоль ретиносклеральной оси была проанализирована экспрессия матриксной металлопротеиназы 2 (MMP2) в поперечных срезах склеры после субконъюнктивального введения TGF-β2 (Рисунок 4). Количественный иммунофлуоресцентный анализ срезов заднего отдела глаза на модели крыс показал значительное повышение уровней белка MMP2 в строме склеры глаз, обработанных TGF-β2 (500 pg/eye), на 21-й день по сравнению с контрольной группой, получавшей плацебо (p < 0.0001; Рисунок 4A, B).
Выраженный флуоресцентный сигнал MMP2 локализовался во всей склеральной матрице, расположенной под ретинальным пигментным эпителием (RPE) и слоями хориоидеи, что подтвердило локальное ремоделирование внеклеточного матрикса (ECM), связанное с MMP2, в наружной оболочке глаза в процессе развития экспериментальной миопии. Эти структурные изменения в склере послужили стимулом для дальнейшего изучения вышележащих молекулярных изменений в прилегающей сетчатке.
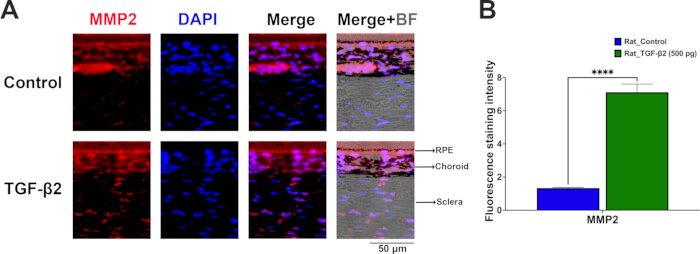
Рисунок 4: Субконъюнктивальное введение TGF-β2 повышает экспрессию MMP2 в склере крысы. (A) Репрезентативные изображения иммунофлуоресценции поперечных срезов заднего сегмента глаза, демонстрирующие экспрессию MMP2 в склере (красный цвет) у крыс группы плацебо-контроля и группы, получавшей TGF-β2 (500 pg/eye), на 21-й день. Ядра клеток были окрашены DAPI (синий цвет). Наложение изображения в светлом поле (Merge+BF) определяет анатомические границы RPE, хориоидеи и склеры. Масштабная линейка = 50 µm. (B) Количественный анализ интенсивности флуоресцентного окрашивания, подтверждающий значимое повышение экспрессии MMP2 в склере глаз крыс, получавших TGF-β2. Данные представлены как среднее ± SD (N = 3 независимых биологических повторности на группу, 1 глаз от животного). Статистическая значимость оценивалась с помощью непарного двухстороннего t-критерия; ****p < 0.0001 по сравнению с группой плацебо-контроля. Сокращения: RPE, ретинальный пигментный эпителий; BF, светлое поле. Пожалуйста, нажмите здесь, чтобы просмотреть этот рисунок в большем размере.
Индукция TGF-β2 повышает экспрессию MMP2 и белков, связанных с инфламмасомой, в сетчатке крыс и мышей
Для изучения нижележащих молекулярных изменений, вызванных повторными субконъюнктивальными инъекциями, было проведено иммунофлуоресцентное окрашивание срезов заднего отдела глаза крыс линии Brown Norway и мышей C57BL/6 на 21-й день (Рисунок 5A–D). Все исследования проводились на сагиттальных срезах сетчатки, строго ориентированных по диску зрительного нерва для обеспечения единообразной пространственной ориентации. Количественный анализ показал, что еженедельное введение TGF-β2 значительно изменило профили экспрессии специфических белков в слоях сетчатки у обоих видов по сравнению с контрольной группой, получавшей плацебо (Рисунок 5E,F).
На крысиной модели введение 500 pg/eye TGF-β2 привело к значимому повышению уровня TGF-β2 в сетчатке (p < 0.0001; Рисунок 5A,E). Эта активация сопровождалась повышенной экспрессией матриксной металлопротеиназы 2 (MMP2) (p < 0.0001; Рисунок 5B,E), что указывает на активное ремоделирование внеклеточного матрикса. Кроме того, воздействие TGF-β2 активировало воспалительный каскад в сетчатке, о чем свидетельствует повышение экспрессии сенсора инфламмасомы NLRP3 (p < 0.0001; Рисунок 5C,E) и провоспалительного цитокина IL-1β (p < 0.0001; Рисунок 5D,E).
Аналогичным образом, у мышей, получавших 250 pg/eye TGF-β2, наблюдались устойчивые тенденции к повышению уровней этих биомаркеров (Рисунок 5F). Экспрессия TGF-β2 (p < 0.01; Рисунок 5A,F) и MMP2 (p < 0.001; Рисунок 5B,F) в сетчатке была значительно повышена. В сетчатке мыши также был активирован путь инфламмасомы, что выражалось в значительном увеличении экспрессии NLRP3 (p < 0.01; Рисунок 5C,F) и выраженном повышении уровня IL-1β (p < 0.0001; Рисунок 5D,F) по сравнению с почти неопределяемыми базовыми уровнями в контрольной группе.
В совокупности эти результаты демонстрируют, что субконъюнктивальное введение TGF-β2 стимулирует факторы ремоделирования матрикса в сетчатке, опосредованные MMP2, и активирует путь инфламмасомы NLRP3/IL-1β в заднем отделе сетчатки у обоих видов грызунов.
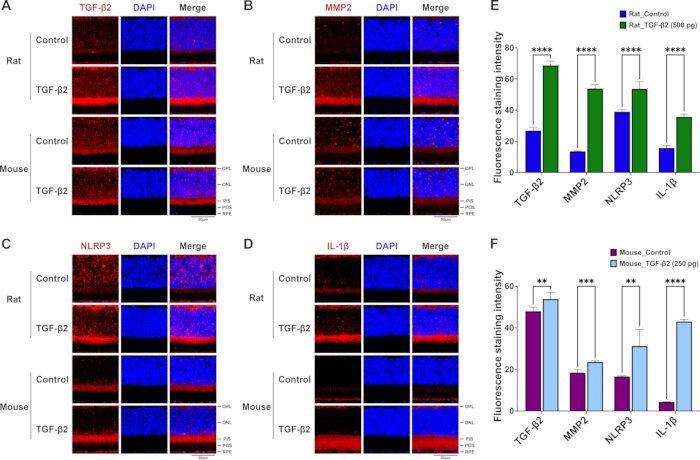
Рисунок 5: Повторное субконъюнктивальное введение TGF-β2 повышает экспрессию MMP2 и белков, связанных с инфламмасомой, в задних отделах сетчатки крыс и мышей. (A–D) Репрезентативные изображения иммунофлуоресценции сагиттальных срезов сетчатки контрольных групп и групп, получавших TGF-β2, у крыс (верхние панели) и мышей (нижние панели), окрашенных на (A) TGF-β2, (B) MMP2, (C) NLRP3 и (D) IL-1β (красный), с контр-окрашиванием ядер DAPI (синий). Масштабный отрезок = 50 µm. Выбранные репрезентативные поля демонстрируют изменения во внешних слоях сетчатки, подчеркивая выраженную экспрессию белков, простирающуюся от наружного сплетения (OPL) до базального комплекса ретинального пигментного эпителия (RPE). (E) Количественная оценка интенсивности флуоресцентного окрашивания TGF-β2, MMP2, NLRP3 и IL-1β в сетчатках крыс контрольной группы и группы, получавшей TGF-β2 (500 pg). (F) Количественная оценка интенсивности флуоресцентного окрашивания TGF-β2, MMP2, NLRP3 и IL-1β в сетчатках мышей контрольной группы и группы, получавшей TGF-β2 (250 pg). Данные представлены как среднее ± SD (N = 3 независимых биологических повтора на группу, 1 глаз на животное). Статистическая значимость была строго оценена с использованием непарных двухсторонних t-критериев; **p < 0.01, ***p < 0.001, ****p < 0.0001 по сравнению с соответствующей контрольной группой, получавшей плацебо. Сокращения: OPL, наружное сплетение; ONL, наружный ядерный слой; PIS, внутренние сегменты фоторецепторов; POS, наружные сегменты фоторецепторов; RPE, ретинальный пигментный эпителий. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
Дополнительный рисунок 1: Межглазная симметрия и оценка объединения билатеральных данных после субконъюнктивального введения TGF-β2. (A) Сравнительный анализ изменений осевой длины между левыми глазами (OS, n = 5) и правыми глазами (OD, n = 5) у крыс, получавших контрольный плацебо-раствор или билатеральное субконъюнктивальное введение TGF-β2 (500 pg/eye). (B) Соответствующее межглазное сравнение между OS (n = 5) и OD (n = 5) глазами у мышей при контроле плацебо-раствором или билатеральном лечении TGF-β2 (250 pg/eye). Статистическое тестирование подтвердило отсутствие значимых различий между глазами OS и OD внутри одной когорты лечения, что доказывает, что объединение билатеральных измерений не вносит межглазного систематического отклонения. Одновременно с этим, и в глазах OS, и в глазах OD у животных, получавших TGF-β2, наблюдалось значительное осевое удлинение по сравнению с соответствующими контрольными группами. Данные представлены как среднее ± SD (N = 5 животных на группу, что соответствует 5 OS и 5 OD глазам на группу). Статистическая значимость оценивалась с помощью двухфакторного дисперсионного анализа с повторными измерениями (two-way repeated-measures ANOVA) с последующим апостериорным тестом Сидака; *p < 0.05, ****p < 0.0001 по сравнению с соответствующим контролем плацебо. Сокращения: OS, oculus sinister (левый глаз); OD, oculus dexter (правый глаз). Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительный рисунок 2: Оценка безопасности структурной целостности сетчатки и электрофизиологической функции после субконъюнктивального введения TGF-β2 введение. (A) Репрезентативные изображения окрашивания гематоксилином и эозином (H&Сагиттальные поперечные срезы сетчатки, окрашенные на (E)-стат, от контрольной группы и группы с воздействием TGF-ββмыши, получавшие препарат 2 (250 пг/глаз), и крысы (500 пг/глаз) на 21-й день, демонстрирующие сохранность архитектуры слоев сетчатки у обоих видов (N = 3 независимых биологических повторности на группу). Масштабные отрезки = 20 µm. (B) Репрезентативные кривые скотопической электроретинографии (ЭРГ), записанные у мышей на 21-й день; сравнение глаз группы контроля (серая линия) и TGF-βглаза, подвергнутые воздействию 2 (красная линия). Схожая динамика ответов а-волны и b-волны подтверждает сохранение светочувствительности сетчатки и электрофизиологическую безопасность (N = 3 мыши в группе, что соответствует 6 глазам на группу). Сокращения: GCL — ганглионарный слой; INL — внутренний ядерный слой; ONL — наружный ядерный слой. Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Обсуждение
Заметным результатом исследования является нелинейный дозозависимый профиль с перевернутой U-образной формой, вызываемый TGF-β2 в когорте мышей, где наименьшая введенная доза (250 пг/глаз) вызвала наиболее выраженную аксиальную элонгацию (Рисунок 2B). Эта двухфазная реакция характерна для многих мощных путей сигнализации цитокинов, включая TGF-β суперсемейство29,30. Чрезмерно высокие концентрации экзогенного TGF-β2 может привести к насыщению рецепторов или запуску внутриклеточных негативных обратных связей—такие как усиление экспрессии ингибиторного члена семейства SMAD — белка 7 (Smad7) или рецептор-опосредованного эндоцитоза—тем самым ослабляя последующие биологические ответы31,32Иммунофлюоресцентные данные дополнительно подтверждают наличие этого фармакологического окна; в то время как доза 250 пг у мышей (и 500 пг у крыс) привела к умеренному повышению уровня TGF-β в сетчаткеβ2 задержка, одновременно вызывала мощную воспалительную каскадную реакцию вниз по потоку (Рисунок 5F). Это предполагает, что оптимизированный порог низкой дозы находится внутри высокочувствительного физиологического диапазона, максимизируя эффективность воздействия на целевые ткани и избегая десенсибилизации, индуцированной лигандом, или локального подавления33Таким образом, эти результаты подчеркивают необходимость тщательной титрации дозы при создании воспроизводимых моделей химически индуцированной миопии у грызунов.
В сравнении с традиционными моделями миопии, вызванной депривацией формы (FDM), или миопии, индуцированной линзой с гиперопическим дефокусом (LIM)—которые требуют специализированного оборудования и подвержены смещению линз, отсоединению из-за умывания и осложнениям роговицы—протокол субконъюнктивального введения обеспечивает прямой фармакологический контроль и минимальные затраты на оборудование13,34. Согласно предыдущим исследованиям, при которых показано, что периокулярная доставка модулирует склеральную и ретинальную ТРР-ββ сигнализация35, эти данные демонстрируют биологические реакции заднего отрезка глаза после передней субконъюнктивальной инъекции TGF-β2 введения (Рисунок 4 и Рисунок 5). Такое эффективное воздействие на задний отрезок глаза объясняется уникальными особенностями строения глазных оболочек и динамики жидкостей у мелких грызунов. Учитывая небольшую аксиальную длину глаза грызунов (~3 мм у мышей и ~6 мм у крыс), субконъюнктивальное введение омывает сравнительно большую часть эписклеральной поверхности. Под действием высокой транссклеральной проницаемости и анатомической непрерывности пространства под теноновой капсулой введённая лекарственная форма может диффундировать через склеру и хориоидею в направлении заднего полюса глаза. Что особенно важно, данный путь введения обеспечивает биологический эффект в тканях заднего отрезка глаза, избегая серьёзных рисков, связанных с проникновением в глазное яблоко и повреждением зрительного нерва, которые неизбежны при глубоких инъекциях в пространство под теноновой капсулой или внутрь стекловидного тела у мелких грызунов. Данный подход позволяет избежать механических и поведенческих артефактов, связанных с использованием головных линз13,36, а также хорошо документированные риски отслойки сетчатки и эндофтальмита, связанные с внутривитреальным введением37,38Кроме того, разделение биометрических измерений на две короткие сессии улучшает традиционные односессионные парадигмы. Продолжительное воздействие анестетика часто вызывает нарушения органа зрения—такие как анестетические катаракты у мышей и спонтанное закрытие век у крыс—что снижает точность рефракционных и аксиальных измерений39,40. Разделяя рефракционный дефект (дни –1 и 20) и оценки осевой длины (дни 0 и 21), протокол разработан таким образом, чтобы минимизировать потенциальный кумулятивный окularный стресс и поддерживать постоянные условия визуализации, что может помочь уменьшить внутриэкспериментальную изменчивость. Для дальнейшего устранения потенциальных смешивающих переменных, возникающих из системного перекрёстного загрязнения—такие как системное сосудистое всасывание или лимфатический транспорт, влияющие на нетаргетные ткани—а также контралатеральные симпатические реакции, был применён строго межсубъектный дизайн. Путём введения билиатерального плацебо-контроля или билиатерального активного rhTGF-β2 у отдельных животных, эта парадигма предотвращает межглазное загрязнение, обеспечивая при этом надежную фармакологическую оценку. Последовательные отдельные биометрические анализы парных левого и правого глаз подтвердили высокую межглазную симметрию, что подтверждает, что объединение данных из обоих глаз не вносило статистической или физиологической погрешности в когорты с различными вариантами леченияДополнительный рисунок 1).
Эта модель на грызунах эффективно воспроизводит TGF-β2–воспалительная и матрикс-ремоделирующая ось, индуцированная ранее установленными в исследованиях авторов у древесных сурков и крыс линии Браун-Норвегия21,41Предыдущие исследования авторов показали, что экзогенный TGF-β или TGF-βусиленное внутриглазное воспаление—специфически через NF-κB и IL-1β активация—повышая экспрессию MMP2, истощая коллаген I в склере и стимулируя осевое удлинение42,43Напротив, подавление активности комплемента и инфламасомы с помощью фактора ускоренного распада комплемента (CD55) привело к угнетению как локального воспаления, так и прогрессирования миопии41,44Схожие признаки хронического воспаления, характеризующиеся повышенной активацией ММР2 и последующей потерей коллагена I типа, также наблюдаются в классических моделях депривации формы, а также у пациентов с патологической высокой миопией42,43,45,46Важно отметить, что, в отличие от изолированного или универсального первичного индуктора, действующего единообразно во всех тканях, TGF-β (в частности, TGF-β2-изоформа) действует как сигнальный мост, зависящий от контекста. Он связывает сигнализацию воспаления на ранних стадиях в сетчатке/пигментном эпителии сетчатки—в частности, через инфламасому NLRP3 и активацию комплемента—к выполнению внеклеточного матрикса склеры на нижележащем уровне (ECM)21,41. Учет этого пространственно-временного перехода устраняет очевидные противоречия в литературе, касающиеся TGF-β экспрессии, поскольку её динамика изменяется от раннего локального усиления воспалительной реакции в сетчатке/пигментном эпителии сетчатки до позднего разрушения матрикса, опосредованного ММП, в склере47,48. В частности, хотя структурное разрушение внеклеточного матрикса склеры в конечном итоге определяет физическое удлинение глаза (Рисунок 4), молекулярные данные указывают на наружную сетчатку и пигментный эпителий сетчатки как основные первичные источники сигнализацииРисунок 5). В настоящем исследовании для картирования пространственного распределения in situ и слоевого повышения экспрессии этих маркеров использовалась исключительно количественная иммунофлуоресценция (IF), тогда как общая динамика генов и белков (с помощью ОТ-ПЦР в реальном времени и вестерн-блоттинга, соответственно) фосфорилированного ядерного фактора каппа B (p-NF-κБ)/ИЛ-1βфактор некроза опухоли-альфа (TNF-α)/NLRP3 каскад при идентичном TGF-βБыли независимо установлены 2 индукционных парадигмы в предыдущих исследованиях авторов46,49. Субконъюнктивальное введение TGF-β2 активирует NLRP3/IL-1β–каскад ММП2 в сетчатке/ПЭС, который распространяется вдоль ретино-хорио-склеральной оси, вызывая экспрессию ММП2 в склере и ремоделирование матрикса. Эти параллели убедительно подтверждают центральную роль слабовыраженного воспаления и опосредованного ММП ремоделирования внеклеточного матрикса (ВКМ) склеры в ускоренном росте глаза.
Несмотря на эти процедурные преимущества, следует учитывать несколько ограничений настоящего протокола. Во-первых, поскольку данный подход представляет собой чисто фармакологическую модель, основанную на введении экзогенных цитокинов, он обходит пути оптического дефокуса и трансдукции светового сигнала от сетчатки к склере, характерные для традиционных моделей миопии, вызванной ограничением формы (FDM), или миопии, индуцированной линзой (LIM)16,50Следовательно, хотя и весьма подходящий для направленного воздействия на биохимические каскады, протекающие ниже по ходу сигнального пути—конкретно ось воспалительного ремоделирования MMP2—он дополняет, а не заменяет модели, исследующие восходящую зрительную обработку или оптические манипуляции51Во-вторых, хотя субконъюнктивальная инъекция позволяет избежать системной токсичности и рисков, связанных с внутривитреальным введением, необходимость многократных микрокапельных инъекций (один раз в неделю в течение 3 недель) вызывает кратковременные локализованные механические нарушения и кратковременное воздействие анестезии, что может незначительно повлиять на гомеостаз поверхности глаза, если процедуры выполняются недостаточно тщательно38,52. Воспроизводимая индукция экспериментальной миопии данным методом в значительной степени зависит от точного технического исполнения при субконъюнктивальном введении. Основным техническим фактором успеха является правильное поверхностное введение иглы с наклоном под конъюнктиву век, с целью формирования локализованного, чётко ограниченного субмукозного пузырька (хемоза). Немедленная трансиллюминация позволяет подтвердить, что жидкость остаётся в пределах тканевого слоя, предотвращая случайное проникновение через склеру, экстравазацию в глубокие орбитальные ткани или повреждение микрососудов. Для предотвращения рефлюкса жидкости после инъекции или активной утечки—распространённый режим отказа, который нарушает эффективную фармакологическую дозировку—микроиглу следует удерживать на месте в течение 5 с после введения, после чего медленно и плавно извлекать под визуальным контролем. В случаях немедленного рефлюкса, недостаточной высоты буллы или непреднамеренного кровоизлияния в ткани при извлечении животных следует документировать и исключать в соответствии с заранее установленными критериями, чтобы избежать внесения изменчивости. Соблюдение этих строгих технических параметров обеспечивает высокоточное и целенаправленное удержание препарата в заднем отделе глаза при одновременном минимизации травмы поверхности глаза. Кроме того, хотя абсолютные значения рефракции (например, -1,58 дптр у мышей и -1,38 дптр у крыс) в моделях грызунов могут казаться умеренными по сравнению с их высокой базовой оптической силой, чистые миопические сдвиги относительно контрольных животных, получавших растворитель, являются существенными (+3,83 дптр у мышей и +1,69 дптр у крыс; оба p < 0,05) и строго согласуются с осевым структурным удлинением и последующим повышением экспрессии ММП2 в склере у обоих видов. Важно, что оценки безопасности и физиологической переносимости подтвердили отсутствие цитотоксического действия при данном режиме субконъюнктивального введения в низкой дозе. Гистологические поперечные срезы (H&E) показал хорошо сохранившуюся архитектуру слоёв сетчатки у мышей и крыс, тогда как скотопическая электроретинография (ЭРГ) на 21-й день продемонстрировала сохранные ответы a- и b-волн без задержки скрытого времени или снижения амплитуды (Дополнительный рисунок 2), подтверждая, что локализованный TGF-β2-я доставка вызывает направленное удлинение оси глаза без развития структурной ретинопатии или нарушения электропhизиологических функций. Во-третьих, оценка показателей на 3-й неделе позволяет зафиксировать острые и подострые воспалительные реакции и ремоделирование матрикса; для определения того, сохраняются ли эти фенотипические изменения после лечения или проявляется динамика восстановления после отмены препарата, необходимы долгосрочные исследования41,53Наконец, хотя прямые анализы фармакокинетики и проникновения в глазные ткани экзогенного TGF-β2 вышли за рамки данного исследования по валидации модели, однако устойчивые и согласованные биометрические изменения (удлинение передне-задней оси глаза и изменение рефракции), наряду со специфической молекулярной активацией сетчатки и пигментного эпителия сетчатки, установленной в предыдущих исследованиях авторов46,49, поддерживают эффективное биологическое действие в задних структурах глаза. В будущих исследованиях следует использовать дополнительное профилирование экспрессии белков (например, вестерн-блоттинг), ОТ-ПЦР в режиме реального времени или флуоресцентную маркировку TGF-β2 позволит дополнительно уточнить его точное распределение в тканях и кинетику выведения. Понимание этих ограничений поможет исследователям в выборе данной модели для соответствующего скрининга терапевтических средств и подтверждения механизмов действия.
Показав, что субконъюнктивальное введение TGF-β2 активирует NLRP3/IL-1β–ось MMP2 во внешней сетчатке и пигментном эпителии сетчатки (ПЭС) как крыс линии Браун-Норвегия, так и мышей линии C57BL/6, протокол предоставляет фармакологически обоснованную основу, подтверждающую наличие этих воспалительных путей и путей ремоделирования матрикса у грызунов различных видов. Следовательно, TGF-β2–индуцированная модель служит надежной платформой для стандартизации индукции аксиального удлинения, изучения сигнальных каскадов «сетчатка—склера» и скрининга доклинических вмешательств, направленных на TGF-β2, компоненты комплемента, инфламасома или MMP2.
Раскрытие информации
Авторы не имеют раскрываемых сведений или конфликтов интересов, имеющих отношение к данному исследованию. Инструменты редактирования языка на базе ИИ использовались исключительно для исправления грамматики и уточнения английского синтаксиса при подготовке рукописи. Инструменты генеративного ИИ не использовались при сборе данных, обработке изображений, количественном анализе или построении графиков.
Благодарности
Эксперименты и анализ данных частично выполнены с использованием Медицинских исследовательских базовых установок, Управление исследований & Разработка — Китайский медицинский университет, Тайчжун, Тайвань, Китайская Республика. Авторы искренне благодарят Национальный центр биомоделей (NCB, NIAR, Тайвань) и компанию BioLASCO Taiwan Co., Ltd. за исключительную техническую поддержку в рамках контрактного разведения и поставки животных. Кроме того, схематическая архитектура и микрохирургические процедуры, проиллюстрированные на рисунке 1, были разработаны и адаптированы с использованием векторных материалов высокого разрешения от Mind the Graph (mindthegraph.com, лицензия Premium) и профессионально оформлены и доработаны с помощью Affinity Designer (Serif Europe Ltd.). Исследование частично финансировалось Национальным советом по науке и технологиям, Тайвань, Китайская Республика (NSTC-112-2314-B-039-029; 115-2320-B-039-056), Больницей Китайского медицинского университета, Тайчжун, Тайвань (DMR-114-091; DMR-115-117) и Китайским медицинским университетом, Тайчжун, Тайвань (CMU114-MF-78; CMU-114-ASIA-10). Финансирующие организации не участвовали в разработке исследования, сборе и анализе данных, принятии решения о публикации или подготовке рукописи. Спонсор или организация, предоставившая финансирование, не имел никакого влияния на разработку или проведение данного исследования.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| Автоматический инфракрасный фоторефрактометр | StriaTech GmbH (TüБинген, Германия) | ST-PR.01 | с предустановками, специфичными для видов мыши/крысы |
| Сбалансированный солевой раствор (BSS) | Alcon Laboratories, Inc. (Форт-Уэрт, США) | Нет данных | Стерильный раствор для интраокулярной ирригации |
| Бычий сывороточный альбумин (БСА) | Sigma-Aldrich (Сент-Луис, США) | A3059 | Лиофилизированный порошок, 0,1% объемная доля |
| крысы линии Brown Norway (BN) | BioLASCO Taiwan Co., Ltd. и/или Национальный центр биомоделей (National Center for Biomodels) | Крысы линии Brown Norway | |
| мыши линии C57BL/6 (B6) | BioLASCO Taiwan Co., Ltd. и/или Национальный центр биомоделей | Центр национального биоресурса (NCB) — Животные ресурсы 1. Линия крыс с гипертензией, индуцированной солью (Salt-induced hypertension rat) Описание: Данная линия крыс характеризуется развитием выраженной артериальной гипертензии при потреблении диеты с высоким содержанием соли. В отличие от спонтанно гипертензивных крыс, у этой линии гипертензия развивается в ответ на внешние стимулы (соль), что делает ее ценной моделью для изучения механизмов регуляции кровяного давления, роли почек и сердечно-сосудистой системы в патогенезе гипертонии. Характеристики: - Фенотип: Солезависимая гипертензия. - Применение: Исследование сердечно-сосудистых заболеваний, почечной недостаточности и механизмов контроля артериального давления. Доступность и заказ: Для получения данной линии, пожалуйста, свяжитесь с Центром национального биоресурса в соответствии с установленными правилами передачи материалов (MTA).&nid=3&страница=0&тип=1 | |
| Раствор DAPI (1 мг/мл) | Thermo Scientific (Thermo Fisher Scientific, Уолтем, США) | 62248 | Использовать в рабочем разведении 1:500 для иммунофлуоресценции. |
| Абсолютный этанол (≥99.5%) | J.T.Baker (Avantor Performance Materials, Раднор, США) | Поскольку исходный текст не был предоставлен, пожалуйста, отправьте текст, который необходимо перевести. | Чистый (реактивный), 75% для промывки, 20%–100% для дегидратации |
| Осветитель Fiber-Lite (150 Вт, с двойным гибким держателем) | Stoelting Co. (Вуд-Дейл, США) | Нет данных | Источник света высокой интенсивности |
| Микропинцеты с тонкими кончиками | Stephens Instruments (Лексингтон, США) | S5-1375 | Прямой, зазубренный, с направляющим штифтом |
| Офтальмологический гель Ginpol | Winston Medical Supply Co., Ltd. (Тайнань, Тайвань) | Данные отсутствуют | Карбомер 0,2%, защита роговицы |
| Глицерин (молекулярная биология, ≥99.0%) | Sigma-Aldrich (Сент-Луис, США) | G5516 | Реактивная чистота, 50% рабочий матрикс |
| Вторичные антитела, козьи антитела к IgG (H+L) кролика, Alexa Fluor Plus 555 | Invitrogen (Thermo Fisher Scientific, Уолтем, США) | A32732 | Использовать в рабочем разведении 1:800 для иммунофлуоресцентного анализа. |
| Портативная система электроретинографии для различных видов животных (HMSERG) | OcuScience (Хендерсон, США) | Модель 2000 (HMsERG-2000), система полнопольной вспышечной электроретинографии для грызунов с программным обеспечением ERGView. | |
| Хартман′Фиксатор Дэвидсона (Davidson's Fixative) | Sigma-Aldrich (Сент-Луис, США) | H0290 | Коктейль для быстрой фиксации геометрии глаза |
| Высокочастотный ультразвуковой датчик | ASUSTeK Computer Inc. (Тайбэй, Тайвань) | LU710LH | Ручной, частота 16 МГц |
| Игла для микроинъекций (33-G) | Компания Hamilton (Рино, США) | 7803-05 | Форма кончика 4, малый угол скоса |
| Шприц для микроинъекций (10 µL) | компания Hamilton (Рино, США) | 80014 (#1701) | Герметичный микролитровый шприц |
| Офтальмологический раствор Mydrin-P | Santen Pharmaceutical Co., Ltd. (Осака, Япония) | Поскольку исходный текст не был предоставлен, пожалуйста, введите текст, который необходимо перевести. | 0,5% тропикамид / 0,5% фенилэфрин |
| Нормальная сыворотка козы | Jackson ImmunoResearch Laboratories, Inc. (Уэст-Гроув, США) | 005-000-121 | Используется в качестве 10% блокирующего раствора для иммунофлуоресценции. |
| Программное обеспечение для сбора данных фоторефрактометра | StriaTech GmbH (TüБинген, Германия) | Данные отсутствуют | Автоматизированная обработка среднего сферического эквивалента |
| Кроличьи моноклональные антитела к ИЛ-1 бета (HL1421) | GeneTex, Inc. (Ирвин, США) | GTX636887 | Используется в рабочем разведении 1:500 для иммунофлуоресцентного анализа. |
| Кроличьи поликлональные антитела к MMP2 | GeneTex, Inc. (Ирвайн, США) | GTX104577 | Использовать в рабочем разведении 1:500 для иммунофлуоресценции. |
| Поликлональные антитела к NLRP3 кролика | Abcam (Кембридж, Великобритания) | ab214185 | Используется в рабочем разведении 1:400 для иммунофлуоресцентного анализа. |
| Поликлональные антитела к TGF-beta 2, кроличьи | AbboMax, Inc. (Сан-Хосе, США) | 500-3784 | Использовать в рабочем разведении 1:250 для иммунофлуоресцентного анализа. |
| Рекомбинантный TGF- человекаβ1 | PeproTech (Thermo Fisher Scientific, Крэнбери, США) | 100-21 | Лиофилизированный порошок, высокая степень очистки |
| Рекомбинантный TGF-$\beta$ человекаβ2 | PeproTech (Thermo Fisher Scientific, Крэнбери, США) | 100-35 | Лиофилизированный порошок, высокой степени очистки |
| Рекомбинантный TGF- человекаβ3 | PeproTech (Thermo Fisher Scientific, Крэнбери, США) | 100-36 | Лиофилизированный порошок, высокой степени очистки |
| Стерильный ультразвуковой гель Aquasonic 100 | Parker Laboratories, Inc. (Фэрфилд, США) | Данные отсутствуют | Стандартная акустическая связующая матрица |
| Программное обеспечение для ультразвуковой визуализации | ASUSTeK Computer Inc. (Тайбэй, Тайвань) | Нет данных | Для визуализации B-скана в реальном времени и использования измерительных инструментов |
Ссылки
- Holden BA, et al. Myopia: a growing global problem with sight-threatening complications. Community eye health. 2015;28(90):35.
- Holden BA, et al. Global prevalence of myopia and high myopia and temporal trends from 2000 through 2050. Ophthalmology. 2016;123(5):1036-42.
- McMonnies CW. An examination of the relation between intraocular pressure, fundal stretching, and myopic pathology. Clinical and Experimental Optometry. 2016;99(2):113-9.
- Fledelius HC. Myopia and significant visual impairment: global aspects [Presentation]. Presented at: 7th International Conference on Myopia; Taipei, Taiwan; 1998.
- Park SC, Liebmann JM, Ritch R. Glaucoma in myopia. Pathologic Myopia: Springer; 2013. p. 283-92.
- Gale J, Ikuno Y. Ii. B. Myopic Vitreopathy. Vitreous: In Health and Disease: Springer; 2014. p. 113-29.
- Saw SM, Gazzard G, Shih-Yen EC, Chua WH. Myopia and associated pathological complications. Ophthalmic and Physiological Optics. 2005;25(5):381-91.
- Tkatchenko TV, Shen Y, Tkatchenko AV. Mouse Experimental Myopia Has Features of Primate Myopia. Investigative Ophthalmology & Visual Science. 2010;51(3):1297-303.
- Morgan IG, Ashby RS, Nickla DL. Form deprivation and lens-induced myopia: are they different? Ophthalmic Physiol Opt. 2013;33(3):355-61.
- Barathi VA, Boopathi VG, Yap EP, Beuerman RW. Two models of experimental myopia in the mouse. Vision Res. 2008;48(7):904-16.
- Zhao HL, Wang RQ, Wu MQ, Jiang J. Dynamic changes of ocular biometric parameters: a modified form-deprivation myopia model of young guinea pigs. Int J Ophthalmol. 2011;4(5):484-8.
- Wu XH, et al. Unaltered retinal dopamine levels in a C57BL/6 mouse model of form-deprivation myopia. Invest Ophthalmol Vis Sci. 2015;56(2):967-77.
- Faulkner AE, Kim MK, Iuvone PM, Pardue MT. Head-mounted goggles for murine form deprivation myopia. J Neurosci Methods. 2007;161(1):96-100.
- Wang Y, Zhang Y, Tian N. Cause and Management of Suture-related Ocular Complications after Buried-suture Double-eyelid Blepharoplasty. J Plast Reconstr Aesthet Surg. 2021;74(12):3431-6.
- Pang K, Lennikov A, Yang M. Hypoxia adaptation in the cornea: Current animal models and underlying mechanisms. Animal Model Exp Med. 2021;4(4):300-10.
- Schaeffel F, Feldkaemper M. Animal models in myopia research. Clinical and Experimental Optometry. 2015;98(6):507-17.
- Harper AR, Summers JA. The dynamic sclera: extracellular matrix remodeling in normal ocular growth and myopia development. Exp Eye Res. 2015;133:100-11.
- Jobling AI, Nguyen M, Gentle A, McBrien NA. Isoform-specific changes in scleral transforming growth factor-beta expression and the regulation of collagen synthesis during myopia progression. J Biol Chem. 2004;279(18):18121-6.
- Vranka JA, Kelley MJ, Acott TS, Keller KE. Extracellular matrix in the trabecular meshwork: intraocular pressure regulation and dysregulation in glaucoma. Exp Eye Res. 2015;133:112-25.
- Tien P-T, et al. Diacerein inhibits myopia progression through lowering inflammation in retinal pigment epithelial cell. Mediators of Inflammation. 2021;2021(1):6660640.
- Ku H, et al. The role of transforming growth factor beta in myopia development. Molecular immunology. 2024;167:34-42.
- Yin X, Ge J. The role of scleral changes in the progression of myopia: a review and future directions. Clinical Ophthalmology. 2025:1699-707.
- Schippert R, Brand C, Schaeffel F, Feldkaemper MP. Changes in scleral MMP-2, TIMP-2 and TGFβ-2 mRNA expression after imposed myopic and hyperopic defocus in chickens. Experimental eye research. 2006;82(4):710-9.
- Xin J, et al. Crosstalk between myopia and inflammation: a mini review. International journal of medical sciences. 2024;21(9):1589.
- Zhang K, et al. Elevated Transforming Growth Factor-β2 in the Aqueous Humor: A Possible Explanation for High Rate of Capsular Contraction Syndrome in High Myopia. Journal of Ophthalmology. 2016;2016(1):5438676.
- Zhang M, et al. Complement and local ocular inflammatory response: Chronic immune factors in myopia. Science Progress. 2025;108(3):00368504251383046.
- Meng L, et al. Aqueous Humour Cytokines as Predictors of Axial Elongation in High Myopia: A 2-Year Longitudinal Cohort Study. Clinical & Experimental Ophthalmology. 2026;54(6):756-768.
- Miller DA, et al. Murine transforming growth factor-β2 cDNA sequence and expression in adult tissues and embryos. Molecular Endocrinology. 1989;3(7):1108-14.
- Langer JC, Henckaerts E, Orenstein J, Snoeck HW. Quantitative trait analysis reveals transforming growth factor-beta2 as a positive regulator of early hematopoietic progenitor and stem cell function. J Exp Med. 2004;199(1):5-14.
- Shinar DM, Rodan GA. Biphasic effects of transforming growth factor-beta on the production of osteoclast-like cells in mouse bone marrow cultures: the role of prostaglandins in the generation of these cells. Endocrinology. 1990;126(6):3153-8.
- Heldin CH, Moustakas A. Signaling Receptors for TGF-β Family Members. Cold Spring Harb Perspect Biol. 2016;8(8).
- Zhao B, Chen YG. Regulation of TGF-β Signal Transduction. Scientifica (Cairo). 2014;2014:874065.
- Akhurst RJ. Targeting TGF-β Signaling for Therapeutic Gain. Cold Spring Harb Perspect Biol. 2017;9(10).
- Pardue MT, Stone RA, Iuvone PM. Investigating mechanisms of myopia in mice. Exp Eye Res. 2013;114:96-105.
- Cordeiro MF, Gay JA, Khaw PT. Human Anti-Transforming Growth Factor-β2 Antibody: A New Glaucoma Anti-Scarring Agent. Investigative Ophthalmology & Visual Science. 1999;40(10):2225-34.
- Guo ZV, et al. Procedures for Behavioral Experiments in Head-Fixed Mice. PLOS ONE. 2014;9(2):e88678.
- Jager RD, Aiello LP, Patel SC, Cunningham ET, Jr. Risks of intravitreous injection: a comprehensive review. Retina. 2004;24(5):676-98.
- Lommatzsch AP, et al. Endophthalmitis als schwere Komplikation der intravitrealen Medikamentengabe. Klin Monbl Augenheilkd. 2013;230(11):1130-4.
- Li XT, Qin Y, Zhao JY, Zhang JS. Acute lens opacity induced by different kinds of anesthetic drugs in mice. Int J Ophthalmol. 2019;12(6):904-8.
- Tkatchenko TV, Tkatchenko AV. Ketamine-xylazine anesthesia causes hyperopic refractive shift in mice. J Neurosci Methods. 2010;193(1):67-71.
- Lin S-C, et al. The Function of Transforming Growth Factor 2 in Facilitating Inflammas ome Activation to Enhance the Development of Myopia via Complement Sys tem. Cells. 2025;14(16):1295.
- Wei CC, et al. Allergic Conjunctivitis-induced Retinal Inflammation Promotes Myopia Progression. EBioMedicine. 2018;28:274-86.
- Wei CC, et al. Corrigendum to "Allergic Conjunctivitis-induced Retinal Inflammation Promotes Myopia Progression" [EBioMedicine 28 (2018) 274-286]. EBioMedicine. 2019;41:717-8.
- Lin HJ, et al. Role of Chronic Inflammation in Myopia Progression: Clinical Evidence and Experimental Validation. EBioMedicine. 2016;10:269-81.
- Lin HJ, et al. Sclera-related gene polymorphisms in high myopia. Mol Vis. 2009;15:1655-63.
- Lin CF, et al. Harnessing Lactiplantibacillus plantarum EP21 and its membrane vesicles to inhibit myopia development. Gut Microbes. 2025;17(1):2534677.
- Chou Y-L, et al. Complement decay-accelerating factor inhibits inflammation-induced myopia development. Molecular Immunology. 2024;171:47-55.
- Ku H, et al. Myopia development in tree shrew is associated with chronic inflammatory reactions. Current Issues in Molecular Biology. 2022;44(9):4303-13.
- Chou Y-L, et al. Vitamin D3 Reshapes Gut Microbiota and Metabolite Profiles in a Rat Model of Inflammation-Induced Myopia. Biomolecules. 2026;16(7):939.
- Wallman J, Winawer J. Homeostasis of eye growth and the question of myopia. Neuron. 2004;43(4):447-68.
- Morgan IG, et al. IMI Risk Factors for Myopia. Investigative Ophthalmology & Visual Science. 2021;62(5).
- Wildsoet C, et al. IMI-interventions for controlling myopia onset and progression report. Investigative Ophthalmology and Visual Science. 2019;60(3):M106-M31.
- Rada JAS, Shelton S, Norton TT. The sclera and myopia. Experimental eye research. 2006;82(2):185-200.
Перепечатки и разрешения
Эта статья была опубликована
Видео скоро будет доступно