Данное исследование демонстрирует, что miR-1298 тесно связана с инвазией и миграцией при колоректальном раке (КРР) и может функционировать как опухолевый супрессор, подавляя прогрессирование КРР, что подчеркивает ее потенциал в качестве новой терапевтической мишени для лечения КРР.
Исследовательская статья
Роль оси miR-1298/костный морфогенетический белок 7 в колоректальном раке
* These authors contributed equally
В этой статье
Краткое содержание
Аннотация
За последние годы наблюдается рост заболеваемости колоректальным раком (КРР). Мы исследовали клиническую значимость и молекулярные механизмы miR-1298 при КРР. В исследование было включено в общей сложности 85 пациентов с КРР. Все уровни экспрессии генов оценивали с помощью RT-qPCR. В клетках КРР уровни miR-1298 и костного морфогенетического белка 7 (BMP7) регулировали с помощью трансфекции клеток. Мишень miR-1298 предсказывали с использованием биоинформатического анализа и идентифицировали с помощью двухлюциферазной репортерной системы. Функции клеток КРР оценивали с помощью анализа CCK-8, теста Transwell и проточной цитометрии. Корреляцию между miR-1298 и BMP7 в тканях КРР анализировали с помощью корреляционного анализа Пирсона. Экспрессия miR-1298 была существенно снижена при КРР и ассоциировалась со злокачественными клинико-патологическими характеристиками. В клетках КРР miR-1298 подавляла пролиферацию, миграцию и инвазию, а также усиливала апоптоз. BMP7 оказалась нижестоящей мишенью miR-1298 и отрицательно коррелировала с miR-1298. Оверэкспрессия BMP7 частично обратила ингибирующий эффект miR-1298 на пролиферацию, миграцию и инвазию в клетках КРР, а также ее стимулирующее влияние на апоптоз. miR-1298 была связана с инвазией и миграцией и может подавлять прогрессирование КРР. BMP7 может выступать в качестве потенциального функционального посредника miR-1298 при КРР.
Введение
Колоректальный рак (КРР) представляет собой значительную проблему для здравоохранения во всем мире, являясь одним из основных факторов смертности от онкологических заболеваний в глобальном масштабе1. КРР развивается из эпителиальных клеток толстой кишки и прямой кишки, обычно постепенно, посредством многоэтапного процесса, известного как переход от аденомы к раку, который занимает несколько лет2. Последствия КРР обширны и многогранны. Помимо риска летального исхода, КРР может оказывать существенное влияние на повседневную жизнь пациентов. Лечение обычно требует проведения обширных хирургических вмешательств, которые могут привести к таким осложнениям, как постоянная колостомия, нарушение функции кишечника, а также сексуальная и мочевыделительная дисфункция3. Кроме того, финансовое бремя химиотерапии, таргетной терапии и долгосрочного мониторинга ложится тяжелым грузом как на пациентов, так и на систему здравоохранения. Таким образом, исследование молекулярных механизмов, лежащих в основе КРР, остается приоритетной задачей в области общественного здравоохранения.
При колоректальном раке (КРР) дисрегуляция специфических микроРНК (миРНК) является выраженной особенностью туморогенеза и влияет на ключевые процессы4. Идентификация этих дифференциально экспрессируемых миРНК не только углубляет наше понимание патогенеза КРР, но и открывает потенциальные возможности для поиска новых диагностических биомаркеров и терапевтических мишеней. Среди множества ассоциированных с раком миРНК в качестве ключевого объекта исследований выделилась miR-1298. Имеющиеся данные свидетельствуют о том, что miR-1298 часто выступает в роли супрессора опухоли при различных видах рака. Например, при немелкоклеточном раке легкого (НМРЛ) она подавляет рост и инвазию клеток, воздействуя на ключевые онкогенные пути5. Аналогично, при опухолях головного мозга ее пониженная экспрессия связана с развитием опухоли, в то время как ее восстановление тормозит прогрессирование заболевания6. Учитывая установленную роль miR-1298 как супрессора опухолей при других видах рака, специфическая роль этой миРНК в колоректальном канцерогенезе — в частности, ее нижестоящие мишени и функциональные последствия при КРР — остается в значительной степени неизученной. Этот пробел в знаниях является существенным, учитывая особый молекулярный ландшафт КРР по сравнению с другими злокачественными новообразованиями.
BMP7 представляет собой секретируемый, функционально универсальный цитокин, принадлежащий к суперсемейству трансформирующего ростового фактора-β (TGF-β)7. При колоректальном раке (КРР) BMP7 играет преимущественно опухоле-стимулирующую роль. Экспрессия BMP7 обычно повышена в тканях и клетках при КРР8. BMP7 усиливает инвазивность, миграцию и стволовые свойства раковых клеток, вероятно, путем активации проинвазивных сигнальных каскадов и модуляции микроокружения опухоли для стимуляции миграции9. При различных типах рака специфические мРНК были идентифицированы как прямые посттранскрипционные репрессоры BMP7. Например, miR-137 воздействует на BMP7 при немелкоклеточном раке легкого (НМРЛ) для ингибирования роста клеток10. С учетом этих данных мы предполагаем, что BMP7 может быть задействован при КРР. Однако вопрос о том, воздействует ли miR-1298 напрямую на BMP7 при КРР, не был подтвержден экспериментально. Кроме того, ни в одном исследовании не была проведена комплексная характеристика оси miR-1298/BMP7 при КРР путем объединения механической валидации, функционального фенотипирования и клинической корреляции.
Таким образом, мы поставили перед собой следующие цели: (1) исследовать паттерн регуляции miR-1298 при колоректальном раке (КРР) и его связь с клинико-патологическими характеристиками; (2) функционально охарактеризовать влияние miR-1298 на пролиферацию, апоптоз, инвазию и миграцию клеток КРР; (3) экспериментально подтвердить, что BMP7 является мишенью miR-1298 при КРР; и (4) оценить диагностическую и прогностическую значимость miR-1298 у пациентов с КРР. Интегрируя эти взаимодополняющие подходы, мы стремились получить комплексное понимание оси miR-1298/BMP7 при КРР и выявить перспективные биомаркеры и терапевтические мишени для лечения этого заболевания.
Протокол
Данное исследование было одобрено комитетом по этике госпиталя по заболеваниям головного мозга Уханя (номер одобрения: 20220826). Все участники предоставили письменное информированное согласие перед включением в исследование. Исследование проводилось в соответствии с Хельсинкской декларацией. Согласие на публикацию было получено от всех участников, чьи данные были включены в работу. Подробная информация о реагентах, наборах, антителах, клеточных линиях, плазмидах и оборудовании, использованных в данном исследовании, включая сведения о производителях и каталожные номера, представлена в Таблице материалов.
Пациенты и образцы
С мая 2022 года по август 2024 года мы собрали парные образцы опухолевой и прилегающей неопухолевой ткани у 85 пациентов с колоректальным раком (CRC). Ни один из участников не имел в анамнезе онкологических заболеваний, химиотерапии или лучевой терапии. Кроме того, в данное исследование было включено 71 здоровый доброволец, проходивший физикальный осмотр.
Прогноз
Критические значения для групп с высокой и низкой экспрессией miR-1298 были определены на основе медианного уровня экспрессии в образцах тканей CRC. Период последующего наблюдения составил 12 месяцев; наблюдение проводилось по телефону или путем повторного обследования. Конечной точкой было наступление смерти. Среди 85 пациентов за период наблюдения было зарегистрировано 14 случаев смерти, цензурированных данных по пациентам не было.
Культивирование и трансфекция клеток
Были получены линия нормальных клеток толстой кишки человека FHC, а также линии клеток колоректального рака (КРР) человека SW480 и HCT-116. Клетки культивировали в модифицированной Дульбекко среде Игла (DMEM) с добавлением 10% фетальной бычьей сыворотки (FBS). Мимик или ингибитор miR-1298 трансфецировали в клетки SW480 и HCT-116 с использованием Lipofectamine 3000. Затем мимик miR-1298 совместно с pcDNA3.1-BMP7 (OE-BMP7) или вектором pcDNA3.1 (OE-NC) ко-трансфецировали в клетки SW480 и HCT-116. Конкретные этапы были следующими: клетки культивировали при 37 °C в атмосфере с 5% CO₂ до достижения 70%–80% конфлюэнтности. Клетки высевали в 24-луночный планшет из расчета 5 x 10⁴ клеток на лунку и инкубировали в течение ночи. Готовили смесь для трансфекции, содержащую 250 µL Opti-MEM, 1.25 µL Lipofectamine 3000, 1.5 µL P3000, 50 nM miRNA и 1 µg плазмиды, и инкубировали ее в течение 15 мин перед добавлением к клеткам. Через 6 ч среду заменяли на полную DMEM, а образцы собирали через 48 ч.
Биоинформационный анализ
Мишень miR-1298 была предсказана с использованием базы данных TargetScan 8.0 (https://www.targetscan.org/vert_80/). Затем был определен предсказанный сайт связывания между miR-1298 и BMP7.
Двойной люциферазный репортерный анализ
Дикий тип и мутант 3′Последовательности 3'-UTR BMP7, содержащие прогнозируемый сайт связывания miR-1298, были клонированы в двухлюциферазный репортерный вектор pmirGLO для создания репортерных плазмид BMP7 Wt и BMP7 Mut соответственно. Для проведения люциферазного анализа клетки SW480 и HCT-116 подвергали котрансфекции плазмидой BMP7 Wt или BMP7 Mut совместно с имитатором miR-1298, ингибитором или соответствующими отрицательными контролями. Конкретные этапы были следующие: клетки высевали в 24-луночные планшеты в количестве 4 x 10⁴ клеток на лунку. В каждую лунку проводили котрансфекцию 0.8 µg репортерной плазмиды, мимика miR-1298 в концентрации 50 нМ, ингибитора или соответствующего отрицательного контроля, а также Lipofectamine 3000. Через 8 ч культуральную среду аспирировали, а клетки лизировали путем добавления 100 µL буфером для пассивного лизиса (PLB) в течение 15 мин. А 20 µL аликвот лизата переносили в белый планшет для анализа, 50 µL добавили LAR II, после чего измерили активность люциферазы светлячка. Дополнительный 50 µL Остановка&Добавили реагент Glo для измерения активности ренилла. В завершение была выполнена нормализация данных.
RT-qPCR
РНК экстрагировали из культивируемых клеток, сыворотки и замороженных тканей КРР с использованием реагента TRIzol. Вкратце, клетки лизировали непосредственно в 1 mL TRIzol на чашку 10 cm; фрагменты тканей гомогенизировали в TRIzol на льду. После разделения фаз хлороформом и осаждения изопропанолом осадки РНК промывали 75% этанолом, высушивали на воздухе и растворяли в воде, свободной от РНКаз. Чистоту и концентрацию РНК определяли с помощью микрообъемного спектрофотометра (A260/A280 = 1.8–2.1, A260/A230 > 2.0). Для анализа мРНК остаточную геномную ДНК удаляли с помощью gDNA Eraser, и 500 ng РНК подвергали обратной транскрипции с использованием PrimeScript RT Reagent Kit с олиго(dT) и случайными гексамерами (37 °C в течение 15 min и 85 °C в течение 5 s). Для анализа миРНК 100 ng РНК подвергали обратной транскрипции со специфичным для miR-1298-5p или U6 стем-петлевым праймером с использованием Mir-X miRNA First-Strand Synthesis Kit (16 °C в течение 30 min, 42 °C в течение 30 min и 85 °C в течение 5 s). В каждый запуск включали контроли без обратной транскрипции (no-RT) и без матрицы (no-template). кДНК разбавляли соответствующим образом и хранили при −80 °C до проведения qPCR. Уровни miR-1298 и BMP7 определяли с помощью химии SYBR Green. U6 и GAPDH использовали в качестве эндогенных контролей для нормализации миРНК и мРНК соответственно. Относительную экспрессию рассчитывали с использованием сравнительного метода 2−ΔΔCt. Последовательности праймеров (5′–3′) были следующими: miR-1298-прямой: TCGGCAGGTTCATTCGGCTGTC, обратный: CTCAACTGGTGTCGTGGA; U6-прямой: CTCGCTTCGGCAGCACA, обратный: AACGCTTCACGAATTTGCGT; BMP7-прямой: CAAGAACCAGGAAGCCCTGC, обратный: TTCTTACAGGCCTGCCTCTGG; и GAPDH-прямой: GACATGCCGCCTGGAGAAAC, обратный: AGCCCAGGATGCCCTTTAGT. Условия реакции qPCR были следующими: 95 °C в течение 2 min, 35 циклов: 95 °C в течение 30 s, 60 °C в течение 30 s и 72 °C в течение 60 s. Матрицы кДНК подвергали серийному разведению (в 5 раз) для построения стандартных кривых. Эффективность амплификации E рассчитывали по формуле: E = (10-1/slope-1) x 100%. Эффективность амплификации праймеров была следующей: EmiR-1298 = 102.1%, EBMP7 = 96.3%, EGAPDH = 100.3%, EU6 = 99.8%. Все праймеры соответствовали приемлемому диапазону эффективности 90–110%. Все эксперименты по RT-qPCR включали три независимых биологических повторности, каждая из которых содержала 3 технических повтора. Стабильность U6 и GAPDH оценивали с помощью алгоритма geNorm. Значения M для обоих генов были ниже рекомендуемого порога 1.5, что подтверждало их пригодность.
Анализ с использованием набора для подсчета клеток-8 (CCK-8)
Клетки линий SW480 и HCT-116 высевали в 96-луночные планшеты в концентрации 2 x 10³ клеток на лунку в 100 µL полной среды DMEM и инкубировали в течение 24 ч. Через 48 ч после трансфекции планшеты инкубировали в течение 1 ч при 37 °CОптическую плотность при 450 нм измеряли с помощью микропланшетного ридера. Для каждой группы использовали шесть повторностей; из полученных значений вычитали показатель холостой пробы, содержащей среду и реагент CCK-8 без клеток.
Проточная цитометрия
Апоптоз оценивали методом проточной цитометрии с использованием набора для детекции апоптоза Annexin V-FITC/PI Apoptosis Detection Kit. Через 48 ч после трансфекции клетки SW480 и HCT-116 собирали путем трипсинизации, дважды промывали холодным PBS и ресуспендировали в 1x связывающем буфере до концентрации 1 x 10⁶ клеток/мл. Аликвоты, содержащие 1 x 10⁵ клеток, переносили в пробирки для FACS, окрашивали 5 µL Annexin V-FITC и 5 µL PI в течение 15 мин при комнатной температуре в темноте, затем разбавляли 400 µL связывающего буфера перед сбором данных. Для компенсации и настройки гейтов использовали неокрашенные, однократно окрашенные и положительные контроли, обработанные стауроспорином. Анализ данных проводили с помощью программного обеспечения FlowJo (FlowJo 10.2).
Миграция и инвазия клеток
Миграцию и инвазию клеток оценивали с использованием 24-луночных камер Transwell с ПЭТ-мембранами с размером пор 8 µm. Для анализа инвазии верхнюю мембрану предварительно покрывали 50 µL Matrigel при 37 °C в течение 2 h и регидратировали безсывороточной средой DMEM в течение 30 min перед посевом; при анализе миграции этот этап покрытия пропускали. Трансфецированные клетки SW480 и HCT-116 подвергали голоданию в безсывороточной среде DMEM в течение 12 h, после чего в верхнюю камеру высевали 2 x 10⁴ клеток в 100 µL безсывороточной среды DMEM, содержащей 0,1% BSA. Нижнюю камеру заполняли 600 µL среды DMEM, содержащей 10% FBS, в качестве хемоаттрактанта. Через 24 h (миграция) или 48 h (инвазия) при 37 °C немигрировавшие клетки с верхней поверхности удаляли ватным тампоном. Клетки на нижней поверхности фиксировали 4% параформальдегидом в течение 15 min, окрашивали 0,1% кристаллическим фиолетовым в течение 20 min, промывали и высушивали на воздухе. Пять случайных полей каждой мембраны фотографировали при 200-кратном увеличении с помощью инвертированного микроскопа, после чего два независимых наблюдателя провели ручной подсчет клеток.
Вестерн-блоттинг
Общие клеточные белки экстрагировали путем гомогенизации клеток в лизирующем буфере RIPA с добавлением коктейля ингибиторов протеаз. Концентрацию белка определяли с помощью набора BCA Protein Assay Kit. Эквивалентные количества белковых лизатов (50 µg) разделяли методом 10% SDS-PAGE с последующим переносом на ПВДФ-мембраны. После блокирования неспецифических мест связывания 2% BSA мембраны инкубировали с первичными антителами к BMP7 (1:1,000) и GAPDH (1:2,000) в течение 90 min при 37 °C. После трехкратной промывки буфером PBST мембраны инкубировали со вторичными антителами, конъюгированными с пероксидазой хрена (HRP). Визуализацию белковых полос проводили с использованием реагента для ЭХЛ-хемилюминесценции.
Статистический анализ
Анализ данных проводили с помощью SPSS 27.0. Все значения представлены как среднее ± стандартное отклонение (SD), если не указано иное. Для проверки нормальности распределения применяли критерий Шапиро-Уилка. Межгрупповые различия между двумя группами определяли с помощью двухстороннего t-критерия Стьюдента для независимых выборок. Сравнение экспрессии miR-1298 в тканях опухолей CRC и прилегающих неканцерогенных тканях проводили с помощью парного t-критерия Стьюдента. Перед проведением параметрического теста для оценки однородности дисперсий использовали критерий Ливена. Для сравнения нескольких групп параметрические данные анализировали с помощью однофакторного ANOVA, а для последующих попарных сравнений использовали критерий Тьюки (HSD). Корреляцию между miR-1298 и BMP7 в тканях CRC оценивали с помощью корреляционного анализа Пирсона. Значение p < 0.05 считалось статистически значимым.
Результаты
Уровень miR-1298 существенно снижен при КРР
В тканях КРР уровни miR-1298 были ниже, чем в прилегающих нетрансформированных тканях (Рисунок 1A). Анализ метастазов в лимфатических узлах показал, что уровни miR-1298 были ниже у пациентов с метастазами в лимфоузлы, чем у пациентов без них (Рисунок 1B). У пациентов с КРР, размер опухоли у которых составлял > 5 cm, уровень miR-1298 был значительно ниже, чем у пациентов с размером опухоли ≤ 5 cm (p = 0.017; Рисунок 1C). Уровень miR-1298 снижался по мере прогрессирования стадии опухоли, при этом значимые различия наблюдались между 1-й и 3-й стадиями (p = 0.047), а также между 1-й и 4-й стадиями (p = 0.009; Рисунок 1D). В сыворотке крови пациентов с КРР уровень miR-1298 был существенно снижен (Рисунок 1E), а анализ ROC-кривой показал AUC = 0.889 с чувствительностью 78.82% и специфичностью 83.10% (Рисунок 1F).
На основании медианного уровня экспрессии miR-1298 пациенты с КРР были разделены на группы с низким и высоким уровнем экспрессии. У пациентов с КРР экспрессия miR-1298 была тесно связана со стадией по системе TNM (p < 0,001), размер опухоли (p = 0,003), метастазы в лимфатические узлы (p = 0,003) и дифференцировка опухоли (p = 0,035). Однако miR-1298 не была связана с возрастом (p = 0,832) или пол (p = 0.165) (Таблица 1). Анализ по методу Каплана — Майера показал, что пациенты с колоректальным раком и низким уровнем экспрессии miR-1298 имели более короткую общую выживаемость, чем пациенты с высокой экспрессией miR-1298 (лог-ранговый p = 0.039; Рисунок 1G). Регрессионный анализ Кокса показал, что снижение экспрессии miR-1298 может быть потенциальным прогностическим индикатором у пациентов с КРР. (p = 0.035, Таблица 2).
miR-1298 подавляла пролиферацию и стимулировала апоптоз в клетках CRC
В клетках SW480 трансфекция миметиком или ингибитором miR-1298 эффективно изменяла экспрессию miR-1298, при этом наблюдалась значимая разница между группами с отрицательным контролем ингибитора (inhibitor NC) и ингибитором miR-1298 (p = 0.005; Рисунок 2A). Оверэкспрессия miR-1298 снижала жизнеспособность клеток и стимулировала апоптоз, тогда как супрессия miR-1298 повышала жизнеспособность клеток и снижала уровень апоптоза; показатели апоптоза значимо различались между группами с отрицательным контролем ингибитора и ингибитором miR-1298 (p = 0.008; Рисунок 2B,C). В клетках HCT-116 трансфекция аналогичным образом изменяла экспрессию miR-1298 (p = 0.002; Рисунок 2D), и значимые различия между группами с отрицательным контролем ингибитора и ингибитором miR-1298 наблюдались для жизнеспособности клеток (p = 0.007; Рисунок 2E) и апоптоза (p = 0.005; Рисунок 2F).
miR-1298 подавлял миграцию и инвазию клеток КРР
Оверэкспрессия miR-1298 приводила к уменьшению количества мигрировавших и инвазивных клеток SW480 и HCT-116, в то время как ингибирование miR-1298 усиливало миграцию и инвазию клеток (Рисунок 3A–D). В клетках SW480 количество инвазивных клеток было существенно ниже в группе с мимиком miR-1298, чем в группе с контрольным мимиком (mimic NC) (p = 0.004; Рисунок 3B).
BMP7 является мишенью miR-1298 в КРР
Согласно данным TargetScan, BMP7 может быть мишенью miR-1298 (Рисунок 4A). Анализ с использованием двухлюциферазного репортерного метода в клетках SW480 и HCT-116 показал, что гиперэкспрессия или ингибирование miR-1298 изменяли люциферазную активность репортера BMP7 Wt, но не репортера BMP7 Mut (Рисунок 4B,C). В клетках HCT-116 люциферазная активность репортера BMP7 Wt была значительно ниже в группе с мимиком miR-1298, чем в группе мимика NC (p = 0.002; Рисунок 4C). В тканях КРР уровень BMP7 был существенно повышен (Рисунок 4D). Кроме того, BMP7 и miR-1298 демонстрировали отрицательную корреляцию (Рисунок 4E). В клетках SW480 и HCT-116 гиперэкспрессия miR-1298 подавляла экспрессию BMP7 как на уровне РНК, так и на уровне белка, тогда как ингибирование miR-1298 приводило к повышению уровня BMP7 (Рисунок 4F,G).
miR-1298 может оказывать опухолесупрессирующий эффект при КРР посредством регуляции BMP7
В клетках SW480 была подтверждена успешная модуляция экспрессии BMP7 (Рисунок 5A). Оверэкспрессия BMP7 частично нивелировала снижение жизнеспособности клеток и увеличение апоптоза, вызванные оверэкспрессией miR-1298, тогда как нокдаун BMP7 дополнительно снизил жизнеспособность клеток и увеличил апоптоз (Рисунок 5B,C). В клетках HCT-116 также была подтверждена успешная модуляция экспрессии BMP7 (Рисунок 5D) с соответствующим влиянием на жизнеспособность клеток и апоптоз (Рисунок 5E,F). В клетках SW480 экспрессия BMP7 и жизнеспособность клеток были значительно ниже в группе имитатора miR-1298 + si-BMP7, чем в группе имитатора miR-1298 + si-NC (p = 0.002 и p = 0.005 соответственно; Рисунок 5A,B). Уровень апоптоза существенно различался между группами имитатора miR-1298 + OE-BMP7 и имитатора miR-1298 + OE-NC (p = 0.001; Рисунок 5C). В клетках HCT-116 жизнеспособность клеток была значительно ниже в группе имитатора miR-1298 + si-BMP7, чем в группе имитатора miR-1298 + si-NC (p = 0.002; Рисунок 5E). Высокая экспрессия BMP7 частично нивелировала супрессивное воздействие miR-1298 на миграцию и инвазию клеток КРР, в то время как нокдаун BMP7 усиливал эти ингибирующие эффекты (Рисунок 6A–D). В клетках SW480 нокдаун BMP7 значительно снизил количество мигрировавших и инвазивных клеток по сравнению с группой si-NC (p = 0.003 и p = 0.020 соответственно; Рисунок 6A,B). В клетках HCT-116 оверэкспрессия BMP7 значительно изменила количество мигрировавших клеток по сравнению с группой OE-NC (p = 0.030; Рисунок 6C), тогда как нокдаун BMP7 значительно снизил количество инвазивных клеток по сравнению с группой si-NC (p = 0.007; Рисунок 6D).
ДОСТУПНОСТЬ ДАННЫХ:
Данные, подтверждающие результаты этого исследования, представлены в виде дополнительного файла.
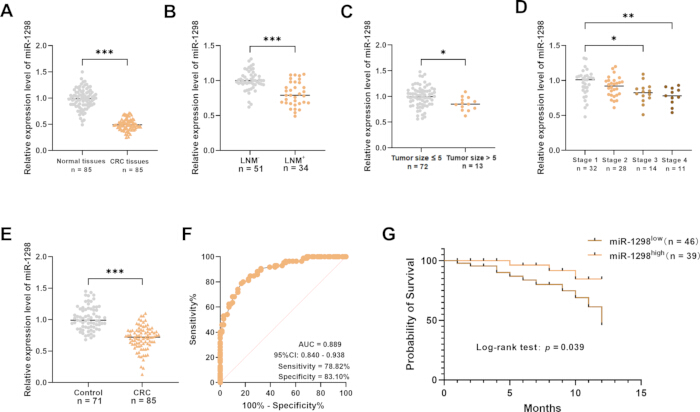
Рисунок 1: Экспрессия miR-1298 в тканях КРР. (A) Относительная экспрессия miR-1298 в тканях КРР и прилегающих нераковых тканях. (B) Относительная экспрессия miR-1298 в тканях КРР пациентов с метастазами в лимфатические узлы (LNM+) и без них (LNM−). (C) Относительная экспрессия miR-1298 в тканях КРР в зависимости от размера опухоли. (D) Относительная экспрессия miR-1298 в тканях КРР в зависимости от стадии опухоли. (E) Относительная экспрессия miR-1298 в сыворотке крови пациентов с КРР и здоровых добровольцев. (F) ROC-кривая (кривая рабочих характеристик приемника) для miR-1298 в сыворотке крови при дифференциации пациентов с КРР от здоровых добровольцев. (G) Кривые общей выживаемости Каплана — Мейера для пациентов с КРР в зависимости от низкого и высокого уровней экспрессии miR-1298. *p < 0.05; **p < 0.01; ***p < 0.001. Нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
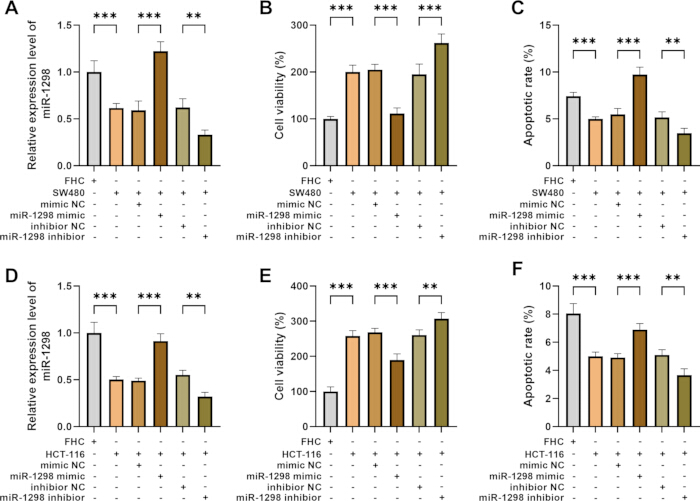
Рисунок 2: Влияние miR-1298 на пролиферацию и апоптоз клеток CRC. (A) Относительная экспрессия miR-1298 в клетках FHC и SW480 после трансфекции имитатором miR-1298, негативным контролем имитатора (mimic NC), ингибитором miR-1298 или негативным контролем ингибитора (inhibitor NC). (B) Жизнеспособность клеток SW480 после гиперэкспрессии или ингибирования miR-1298. (C) Апоптоз клеток SW480 после гиперэкспрессии или ингибирования miR-1298. (D) Относительная экспрессия miR-1298 в клетках FHC и HCT-116 после трансфекции имитатором miR-1298, негативным контролем имитатора, ингибитором miR-1298 или негативным контролем ингибитора. (E) Жизнеспособность клеток HCT-116 после гиперэкспрессии или ингибирования miR-1298. (F) Апоптоз клеток HCT-116 после гиперэкспрессии или ингибирования miR-1298. Данные представлены как среднее ± SD. Погрешности указаны как SD. **p < 0.01; ***p < 0.001. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
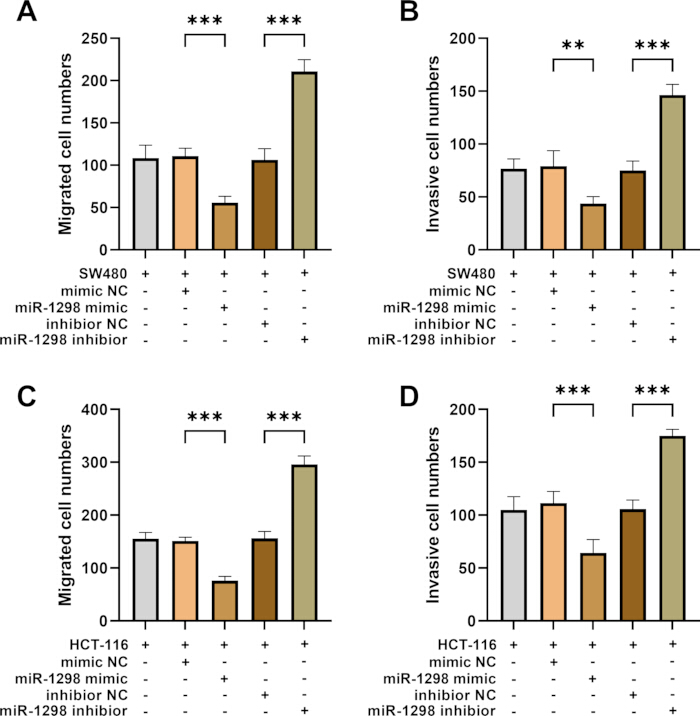
Рисунок 3: Влияние miR-1298 на миграцию и инвазию клеток CRC. (A) Количество мигрировавших клеток SW480 после трансфекции миметиком miR-1298, отрицательным контролем миметика (mimic NC), ингибитором miR-1298 или отрицательным контролем ингибитора (inhibitor NC). (B) Количество инвазивных клеток SW480 после трансфекции миметиком miR-1298, mimic NC, ингибитором miR-1298 или inhibitor NC. (C) Количество мигрировавших клеток HCT-116 после трансфекции миметиком miR-1298, mimic NC, ингибитором miR-1298 или inhibitor NC. (D) Количество инвазивных клеток HCT-116 после трансфекции миметиком miR-1298, mimic NC, ингибитором miR-1298 или inhibitor NC. Данные представлены как среднее значение ± SD. Планки погрешностей соответствуют SD. **p < 0.01; ***p < 0.001. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
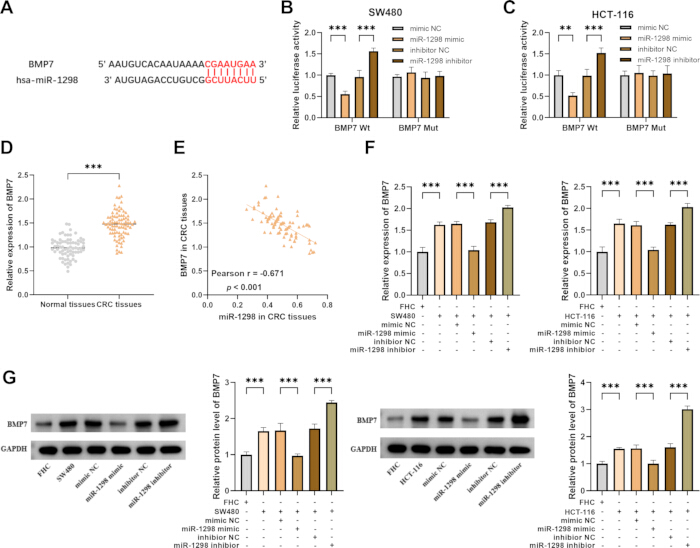
Рисунок 4: Целевые взаимоотношения между miR-1298 и BMP7. (A) Предсказанный сайт связывания между miR-1298 и 3′ UTR BMP7. (B) Относительная люциферазная активность репортеров BMP7 Wt и BMP7 Mut после гиперэкспрессии или ингибирования miR-1298 в клетках SW480. (C) Относительная люциферазная активность репортеров BMP7 Wt и BMP7 Mut после гиперэкспрессии или ингибирования miR-1298 в клетках HCT-116. (D) Относительная экспрессия BMP7 в тканях КРР и прилегающих нераковых тканях. (E) Корреляция между экспрессией miR-1298 и BMP7 в тканях КРР. (F) Относительная экспрессия BMP7 в клетках SW480 и HCT-116 после трансфекции мимиком miR-1298, mimic NC, ингибитором miR-1298 или inhibitor NC. (G) Относительные уровни белка BMP7 в клетках SW480 и HCT-116 после трансфекции мимиком miR-1298, mimic NC, ингибитором miR-1298 или inhibitor NC. **p < 0.01; ***p < 0.001. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
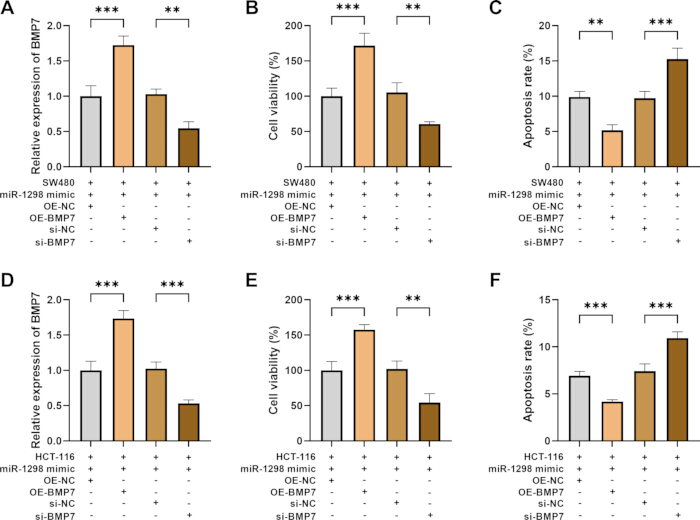
Рисунок 5: Корегуляция miR-1298 и BMP7 в процессах пролиферации и апоптоза клеток КРР. Клетки SW480 и HCT-116 подвергли ко-трансфекции миметиком miR-1298 и OE-NC, OE-BMP7, si-NC или si-BMP7. (A) Относительная экспрессия BMP7 в клетках SW480. (B) Жизнеспособность клеток SW480. (C) Апоптоз в клетках SW480. (D) Относительная экспрессия BMP7 в клетках HCT-116. (E) Жизнеспособность клеток HCT-116. (F) Апоптоз в клетках HCT-116. Данные представлены как среднее значение ± SD. Столбцы погрешностей соответствуют SD. **p < 0.01; ***p < 0.001. Сокращения: OE-NC = отрицательный контроль гиперэкспрессии; OE-BMP7 = гиперэкспрессия BMP7; si-NC = отрицательный контроль малой интерферирующей РНК; si-BMP7 = малая интерферирующая РНК, нацеленная на BMP7. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
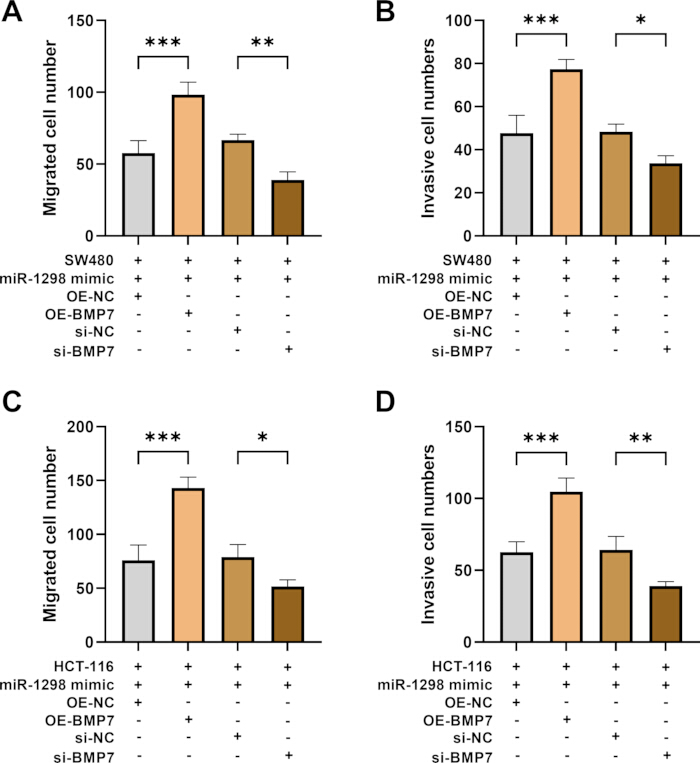
Рисунок 6: Корегуляция miR-1298 и BMP7 в процессах миграции и инвазии клеток CRC. Клетки SW480 и HCT-116 были котрансфицированы мимиком miR-1298 и OE-NC, OE-BMP7, si-NC или si-BMP7. (A) Количество мигрировавших клеток SW480. (B) Количество инвазивных клеток SW480. (C) Количество мигрировавших клеток HCT-116. (D) Количество инвазивных клеток HCT-116. Данные представлены как среднее значение ± SD. Планки погрешностей соответствуют SD. *p < 0.05; **p < 0.01; ***p < 0.001. Сокращения: OE-NC = отрицательный контроль гиперэкспрессии; OE-BMP7 = гиперэкспрессия BMP7; si-NC = отрицательный контроль малой интерферирующей РНК; si-BMP7 = малая интерферирующая РНК, нацеленная на BMP7. Нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
| Переменная | Всего | miR-1298 | значение p | |
| (n = 85) | Низкое (n = 46) | Высокое (n = 39) | ||
| Возраст (лет) | ||||
| ≤50 | 49 | 27 | 22 | 0.832 |
| >50 | 36 | 19 | 17 | |
| Пол (муж/жен) | ||||
| Мужской | 44 | 27 | 17 | 0.165 |
| Женский | 41 | 19 | 22 | |
| Стадия TNM | ||||
| 1–2 | 60 | 41 | 19 | <0.001*** |
| 3–4 | 25 | 5 | 20 | |
| Размер опухоли (cm) | ||||
| ≤5 | 72 | 34 | 38 | 0.003** |
| >5 | 13 | 12 | 1 | |
| Метастазы в лимфоузлы | ||||
| Да | 34 | 25 | 9 | 0.003** |
| Нет | 51 | 21 | 30 | |
| Дифференцировка опухоли | ||||
| Низкая степень | 53 | 24 | 29 | 0.035* |
| Высокая степень | 32 | 22 | 10 | |
Таблица 1: Связь между клинико-патологическими характеристиками и уровнями экспрессии miR-1298 у пациентов с CRC. Пациенты были разделены на группы с низкой (n = 46) и высокой (n = 39) экспрессией miR-1298, после чего оценивалась связь между экспрессией miR-1298 и клинико-патологическими характеристиками. *p < 0.05; **p < 0.01; ***p < 0.001. Сокращения: CRC = колоректальный рак; TNM = классификация опухоли, регионарных лимфатических узлов и отдаленных метастазов.
| Переменная | Отношение рисков | 95% ДИ | p-значение | |
| Нижняя граница | Верхняя граница | |||
| Возраст | 0.776 | 0.186 | 3.242 | 0.728 |
| Пол | 0.614 | 0.152 | 2.474 | 0.492 |
| Стадия по системе TNM | 4.62 | 1.181 | 18.078 | 0.028* |
| Размер опухоли | 8.078 | 1.833 | 35.587 | 0.006** |
| Метастазы в лимфоузлы | 6.584 | 1.134 | 38.245 | 0.036* |
| Дифференцировка опухоли | 6.392 | 1.748 | 23.377 | 0.005** |
| miR-1298 | 0.145 | 0.024 | 0.87 | 0.035* |
Таблица 2: Регрессионный анализ Кокса для прогностических факторов у пациентов с CRC. Регрессионный анализ Кокса был проведен для оценки связи между клинико-патологическими характеристиками, экспрессией miR-1298 и прогнозом у пациентов с CRC. *p < 0,05; **p< 0,01. Сокращения: CI = доверительный интервал; CRC = колоректальный рак; TNM = классификация по размеру опухоли, поражению лимфоузлов и метастазам.
Дополнительный файл. Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Обсуждение
Рак толстой кишки (РТК) накладывает значительное бремя на людей и общество из-за высокой заболеваемости и высокого уровня смертности. Несмотря на программы скрининга, такие как колоноскопия, у большого числа пациентов с РТК диагноз по-прежнему ставится на поздней стадии, что подчеркивает острую необходимость в более эффективных неинвазивных биомаркерах для раннего выявления11. Кроме того, прогноз при метастатическом РТК остается неблагоприятным, при этом лекарственная устойчивость и рецидив заболевания встречаются относительно часто12. Следовательно, детальное понимание молекулярных механизмов, лежащих в основе возникновения, прогрессирования и метастазирования РТК, имеет важное значение для разработки новых методов таргетной терапии и преодоления резистентности к лечению. РТК характеризуется высокой гетерогенностью, что означает, что опухоли, выглядящие схожими, могут проявлять значительные различия в поведении13. Таким образом, текущие исследования важны для совершенствования ранней диагностики, развития персонализированного лечения и, в конечном итоге, повышения выживаемости пациентов с РТК.
Нарушения в экспрессии miRNA участвуют в развитии, определении стадии и прогнозе колоректального рака (КРР)14. Благодаря своей стабильности в биологических жидкостях, miRNA также обладают большим потенциалом в качестве неинвазивных диагностических и прогностических биомаркеров15. В данном исследовании было установлено снижение экспрессии miR-1298 в тканях КРР, при этом уровень ее экспрессии коррелировал со стадией по системе TNM и метастазированием в лимфатические узлы, что указывает на потенциальную роль этой микроРНК в прогрессировании КРР. Примечательно, что наше исследование является первым, в котором была проведена комплексная характеристика экспрессии miR-1298 в клинической когорте пациентов с КРР и продемонстрирована ее связь с ключевыми клинико-патологическими параметрами, включая стадию по TNM, метастазирование в лимфоузлы и дифференцировку опухоли.
Нарушение регуляции основных клеточных процессов, включая пролиферацию, апоптоз, миграцию и инвазию, является фундаментальным фактором развития рака и смертности16. Неконтролируемая пролиферация позволяет опухолевым клеткам проходить начальную клональную экспансию. В то же время уклонение от апоптоза позволяет этим клеткам выживать и накапливаться, несмотря на внутренние повреждения или внешние стрессоры. Сочетание этих факторов приводит к росту первичной опухоли17,18. Следовательно, таргетная терапия, направленная на молекулярные драйверы этих характеристик, имеет ключевое значение для разработки эффективных методов лечения колоректального рака (КРР). миРНК способствуют развитию опухоли, регулируя злокачественный фенотип раковых клеток19. Одной из таких миРНК является miR-1298. Например, снижение экспрессии miR-1298-5p способствует прогрессированию рака желудка20. Повышенная экспрессия miR-1298 подавляет пролиферацию клеток рака молочной железы, индуцирует апоптоз и вызывает остановку клеточного цикла21. Кроме того, miR-1298-5p также действует как супрессор опухоли при раке мочевого пузыря22. Результаты данного исследования показали, что гиперэкспрессия miR-1298 подавляла пролиферацию, миграцию и инвазию, а также повышала уровень апоптоза, что позволяет предположить ее способность подавлять злокачественный фенотип КРР. Важно отметить, что наше исследование расширило данные предыдущих отчетов за счет систематической оценки основных злокачественных фенотипов в клетках КРР, обеспечив более полную функциональную характеристику miR-1298 для данного конкретного типа рака.
Что касается эффектов, способствующих развитию опухоли, BMP7 может стимулировать пролиферацию раковых клеток, регулируя такие сигнальные пути, как PI3K/AKT23. Модулируя уровень антиапоптотических факторов, таких как Bcl‑2, BMP7 обеспечивает устойчивость раковых клеток к апоптозу24. Кроме того, BMP7 преимущественно усиливает миграцию и инвазию раковых клеток, индуцируя эпителиально-мезенхимальный переход (ЭМП)25. Участие BMP7 в развитии рака согласуется с нашим открытием о повышенном уровне BMP7 в тканях колоректального рака (КРР). Биоинформатический анализ показал, что BMP7 может быть мишенью для miR-1298, и выявил предполагаемый сайт связывания между miR-1298 и BMP7. Более того, эксперименты по рекуперации (rescue experiments) указали на то, что BMP7, вероятно, выступает в роли функционального медиатора miR-1298 при КРР. Учитывая сигнальные пути, связанные с BMP7 в раковых клетках, мы дополнительно выдвинули гипотезу о том, что ось miR-1298/BMP7 регулирует нижележащие сигнальные пути (SMAD, PI3K/AKT, ЭМП), которые контролируют поведение клеток КРР. Важно отметить, что мы экспериментально подтвердили этот прогноз с помощью анализа с люциферазным репортером, доказав прямое связывание miR-1298 с 3′-UTR BMP7. Кроме того, эксперименты по рекуперации продемонстрировали, что восстановление экспрессии BMP7 частично обращает опухолесупрессивные эффекты гиперэкспрессии miR-1298, что служит функциональным доказательством того, что BMP7 является нижележащим медиатором miR-1298 при КРР. Насколько нам известно, это первое исследование, установившее регуляторную ось miR-1298/BMP7 при колоректальном раке.
Помимо понимания механизмов, наше исследование предоставило трансляционные доказательства, подтверждающие клиническую значимость miR-1298. Анализ ROC-кривых показал, что miR-1298 может иметь диагностическую ценность при колоректальном раке (КРР). Анализ выживаемости дополнительно выявил, что низкий уровень экспрессии miR-1298 связан с более неблагоприятным прогнозом, а регрессионный анализ Кокса показал, что снижение уровня miR-1298 может быть прогностическим фактором КРР, что подтверждает потенциальную ценность miR-1298 в качестве диагностического и прогностического биомаркера КРР.
Данное исследование имеет ряд ограничений. Что касается клинических образцов, поскольку в данной работе преимущественно использовались данные одного центра, необходимы будущие многоцентровые валидационные исследования для более надежного подтверждения опухоле-супрессивной роли miR-1298 при CRC. В исследовании основной акцент был сделан на клеточных экспериментах in vitro, которые не в полной мере отражают сложность опухолевого микроокружения in vivo. Отсутствие моделей ксенотрансплантатов опухолей стало одним из ограничений данной работы. Будущие исследования должны включать валидацию in vivo для дальнейшего выяснения роли оси miR-1298/BMP7 в опухолевом микроокружении. Кроме того, в последующих экспериментах можно будет дополнительно подтвердить выше- и нижележащие пути оси miR-1298/BMP7 с помощью биоинформатических прогнозов, а также экспериментов in vitro и in vivo. Период наблюдения был относительно коротким, что ограничило точность оценки долгосрочной выживаемости. Хотя были проведены анализ Каплана — Майера и регрессионный анализ Кокса, на результаты мог повлиять относительно короткий период наблюдения. В настоящее время проводится расширенное наблюдение для проверки прогностической значимости miR-1298 при CRC. Более того, нижележащие сигнальные пути (SMAD, PI3K/AKT, EMT), регулируемые осью miR-1298/BMP7 при контроле поведения клеток CRC, не были экспериментально подтверждены в данном исследовании и требуют дальнейшего изучения. В данной работе не проводились эксперименты по обратному спасению (ингибитор miR-1298 + siRNA к BMP7). Такие эксперименты предоставили бы дополнительные доказательства того, может ли нокдаун BMP7 обратить эффекты стимуляции опухолевого роста, вызванные ингибированием miR-1298. Отсутствие экспериментов по спасению такого типа ослабляет наши выводы о механизмах действия. Для полного установления функции оси miR-1298/BMP7 при CRC необходимы будущие исследования, включающие дизайн экспериментов по обратному спасению и валидацию in vivo.
Таким образом, miR-1298 может быть связана с прогрессированием колоректального рака (КРР). Функционально miR-1298 может подавлять пролиферацию, инвазию и миграцию клеток КРР. BMP7 может выступать в роли потенциального функционального медиатора miR-1298 при КРР.
Раскрытие информации
Авторы не имеют соответствующих финансовых или нефинансовых интересов, подлежащих раскрытию.
Благодарности
Авторы заявляют, что при подготовке данной рукописи никаких средств, грантов или иной поддержки получено не было.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| 0,1% раствор кристаллического фиолетового | Sigma-Aldrich | C0775 | |
| Набор для 10% SDS-PAGE | Epizyme | PG112 | |
| 4% параформальдегид | Sigma-Aldrich | P6148 | |
| 6-луночный планшет для культивирования клеток | Corning | 3516 | |
| 96-луночный планшет для культивирования клеток | Corning | 3599 | |
| Набор для детекции апоптоза Annexin V-FITC/PI | Различные (например, Elabscience, BD Biosciences) | E-CK-A211 (Elabscience) или 556547 (BD) | |
| Анти-BMP7 | Abcam | ab176707 | |
| антитела к GAPDH | Abcam | ab181602 | |
| Набор для BCA-анализа | Sangon | C503021 | |
| Мутант 3 BMP7‘репортерная плазмида с 5'-UTR | Специально сконструированный (клонирован в pmirGLO) | Индивидуальный заказ | |
| праймеры к BMP7 | Sangon Biotech (Шанхай, Китай) | Синтез на заказ | |
| BMP7 дикого типа 3‘репортерная плазмида с 5'-UTR | Сконструированный специально (клонирован в pmirGLO) | Индивидуальный заказ | |
| Набор для подсчета клеток-8 (CCK-8) | Dojindo (Япония) | CK04 | |
| Флакон для культивирования клеток (T-25) | Corning | 430639 | |
| DMEM (среда нежного культивирования по Дульбекко)‘модифицированная среда Игла (Modified Eagle Medium) | Invitrogen (Thermo Fisher Scientific) | 11995065 | |
| Фетальная бычья сыворотка (FBS) | Invitrogen (Thermo Fisher Scientific) | 16140071 | |
| линия клеток FHC (нормальный эпителий толстой кишки человека) | ATCC | CRL-1831 | |
| Проточный цитометр | BD Biosciences | FACSCanto™ II | |
| Программное обеспечение FlowJo V10 | FlowJo, LLC | — | |
| Праймеры к GAPDH (эндогенный контроль для мРНК) | Sangon Biotech (Шанхай, Китай) | Спецсинтез | |
| линия клеток HCT-116 (колоректальная карцинома человека) | ATCC | CCL-247 | |
| вторичные антитела, конъюгированные с HRP | Beyotime | A0208 | |
| Инвертированный микроскоп | Nikon (или эквивалент) | Eclipse Ts2 | |
| Реагент для трансфекции Lipofectamine 3000 | Invitrogen (Thermo Fisher Scientific) | L3000015 | |
| Система люциферазного анализа | Promega | E1500 | |
| Матригель, матрикс базиментальной мембраны | Corning | 354230 | |
| Микропланшетный ридер | BioTek (Agilent) | Синергия H1 | |
| ингибитор miR-1298 | GenePharma (Шанхай, Китай) | Индивидуальный синтез (по заказу) | |
| мимик miR-1298 | GenePharma (Шанхай, Китай) | Индивидуальный заказ (синтезируется по запросу) | |
| праймеры к miR-1298 | Sangon Biotech (Шанхай, Китай) | Синтез на заказ | |
| Набор для синтеза первой цепи мкРНК Mir-X | Takara Bio | 638313 | |
| ОЕ-НК (отрицательный контроль сверхэкспрессии) | GenePharma (Шанхай, Китай) | Индивидуальный синтез (по заказу) | |
| Opti-MEM | Gibco | 31985070 | |
| Буфер для пассивного лизиса | Promega | E194A | |
| вектор pcDNA3.1 (пустой векторный контроль) | Invitrogen (Thermo Fisher Scientific) | V79020 | |
| pcDNA3.1-BMP7 (плазмида для сверхэкспрессии OE-BMP7) | GenePharma (Шанхай, Китай) | Индивидуальный синтез (по заказу) | |
| Вектор экспрессии мишеней микроРНК pmirGLO с двойным люциферазным репортером | Promega | E1330 | |
| ПМСФ | Beyotime | ST506 | |
| Набор реагентов PrimeScript RT (Perfect Real Time) | Takara (Япония) | RR037A | |
| Набор реагентов PrimeScript RT с gDNA Eraser | Takara Bio | RR047A | |
| Коктейль ингибиторов протеаз | Thermo | 78429 | |
| ПВДФ | Абсин | abs935 | |
| RIPA | Abcam | ab156034 | |
| Микроцентрифужные пробирки (1,5 мл), свободные от РНказ | Axygen (Corning) | MCT-150-C | |
| Наконечники для дозаторов, свободные от РНаз | Axygen (Corning) | T-300 (10 µL), T-200-Y (200 µL), T-1000-B (1000 µL) | |
| si-BMP7 | GenePharma (Шанхай, Китай) | Индивидуальный синтез (изготавливается по заказу) | |
| si-NC | GenePharma (Шанхай, Китай) | Индивидуальный синтез (по заказу) | |
| Стауроспорин (положительный контроль апоптоза) | Sigma-Aldrich | S5921 | |
| Клеточная линия SW480 (аденокарцинома толстой кишки человека) | ATCC | CCL-228 | |
| Мастер-микс для qPCR с SYBR Green | Takara (Япония) | RR036A | |
| Камера Transwell (на 24 лунки, 8.0 µm размер пор) | Corning (Costar) | 3422 | |
| Реагент TRIzol | Invitrogen (Thermo Fisher Scientific) | 15596026 | |
| Праймеры к U6 (эндогенный контроль для миРНК) | Sangon Biotech (Шанхай, Китай) | Синтез на заказ |
Ссылки
- Ali EAM, Altaie AM, Talaat IM, Hamoudi R. Putative role of Tie2-expressing monocytes/macrophages in colorectal cancer progression through enhancement of angiogenesis and metastasis. Cancers (Basel). 2025;17(17):2856.
- Golfinopoulou R, Hatziagapiou K, Mavrikou S, Kintzios S. Unveiling colorectal cancer biomarkers: harnessing biosensor technology for volatile organic compound detection. Sensors (Basel). 2024;24(14):4712.
- Islind AS, et al. Individualized blended care for patients with colorectal cancer: the patient's view on informational support. Support Care Cancer. 2021;29(6):3061-67.
- Sun Y, et al. IGF2BP3 enhances ferroptosis resistance in colon cancer by stabilizing SLC7A11 and is regulated by miR-98-5p. Front Oncol. 2025;15:1576895.
- Du Z, et al. MicroRNA-1298 is downregulated in non-small cell lung cancer and suppresses tumor progression in tumor cells. Diagn Pathol. 2019;14(1):132.
- Qi Y, et al. The dual role of glioma exosomal microRNAs: glioma eliminates tumor suppressor miR-1298-5p via exosomes to promote immunosuppressive effects of MDSCs. Cell Death Dis. 2022;13(5):426.
- Vasan R, et al. High BMP7 expression is associated with poor prognosis in ovarian cancer. J Cell Mol Med. 2023;27(21):3378-87.
- Motoyama K, et al. Clinical significance of BMP7 in human colorectal cancer. Ann Surg Oncol. 2008;15(5):1530-37.
- Shi Q, et al. Analysis of the role of the BMP7-Smad4-Id2 signaling pathway in SW480 colorectal carcinoma cells. Mol Med Rep. 2011;4(4):627-31.
- Yang YR, et al. MicroRNA-137 inhibits cell migration and invasion by targeting bone morphogenetic protein-7 (BMP7) in non-small cell lung cancer cells. Int J Clin Exp Pathol. 2015;8(9):10847-53.
- Yan T, et al. Oxidative stress gene expression in ulcerative colitis: implications for colon cancer biomarker discovery. Sci Rep. 2025;15(1):22641.
- Zhou Y, et al. Interleukin-17F suppressed colon cancer by enhancing caspase 4 mediated pyroptosis of endothelial cells. Sci Rep. 2024;14(1):18363.
- Ku X, et al. In-depth characterization of mass spectrometry-based proteomic profiles revealed novel signature proteins associated with liver metastatic colorectal cancers. Anal Cell Pathol (Amst). 2019;2019:7653230.
- Wang Y, et al. Overexpression of microRNA-216a inhibits autophagy by targeting regulated MAP1S in colorectal cancer. Onco Targets Ther. 2019;12:4621-29.
- Correa-Gallego C, et al. Circulating plasma levels of microRNA-21 and microRNA-221 are potential diagnostic markers for primary intrahepatic cholangiocarcinoma. PLoS One. 2016;11(9):e0163699.
- Qin Y, Zhou Y. Heterogeneous nuclear ribonucleoprotein K in cancer biology and its therapeutic applications (review). Mol Med Rep. 2026;33(5):144.
- Louis L, Chee BS, McAfee M, Nugent M. Electrospun drug-loaded and gene-loaded nanofibres: the holy grail of glioblastoma therapy? Pharmaceutics. 2023;15(6):1649.
- Termini D, Den Hartogh DJ, Jaglanian A, Tsiani E. Curcumin against prostate cancer: current evidence. Biomolecules. 2020;10(11):1536.
- Wu SR, Wu Q, Shi YQ. Recent advances of miRNAs in the development and clinical application of gastric cancer. Chin Med J (Engl). 2020;133(15):1856-67.
- Li X, et al. MiR-1298-5p level downregulation induced by Helicobacter pylori infection inhibits autophagy and promotes gastric cancer development by targeting MAP2K6. Cell Signal. 2022;93:110286.
- Chen W, et al. microRNA-1298 inhibits the malignant behaviors of breast cancer cells via targeting ADAM9. Biosci Rep. 2020;40(12):BSR20201215.
- Zhang X, et al. Circular RNA TAF4B promotes bladder cancer progression by sponging miR-1298-5p and regulating TGFA expression. Front Oncol. 2021;11:643362.
- Leinhauser I, et al. Oncogenic features of the bone morphogenic protein 7 (BMP7) in pheochromocytoma. Oncotarget. 2015;6(36):39111-26.
- Guan J, et al. Bone morphogenetic protein-7 (BMP-7) mediates ischemic preconditioning-induced ischemic tolerance via attenuating apoptosis in rat brain. Biochem Biophys Res Commun. 2013;441(3):560-66.
- Lim M, Chuong CM, Roy-Burman P. PI3K, Erk signaling in BMP7-induced epithelial-mesenchymal transition (EMT) of PC-3 prostate cancer cells in 2- and 3-dimensional cultures. Horm Cancer. 2011;2(5):298-309.