В данном протоколе визуализируется отложение компонентов клеточной стенки — лигнина и пектина — в поперечных срезах стеблей люцерны (Medicago sativa L.). Цель состоит в том, чтобы идентифицировать специфические ткани стебля, на которые можно воздействовать при создании новых линий люцерны с желаемыми характеристиками перевариваемости стеблей.
Методическая статья
In vitro инкубация с рубцовой жидкостью и гистологическое окрашивание отдельных компонентов клеточных стенок стеблей люцерны (Medicago sativa L.)
В этой статье
Краткое содержание
Аннотация
Накопление компонентов клеточной стенки по мере роста растений ограничивает питательную ценность корма для жвачных животных. В частности, отложение лигнина в тканях растений препятствует расщеплению углеводов клеточной стенки — целлюлозы и гемицеллюлозы, тем самым снижая количество энергии, доступной из корма. Однако легкоперевариваемый пектиновый компонент клеточной стенки readily доступен для деградации. Информация об отложении лигнина и пектина в различных типах клеток стебля может дать понимание механизмов, лежащих в основе различий в перевариваемости стеблей у разных линий люцерны. Инкубация поперечных срезов стебля в рубцовой жидкости in vitro имитирует процессы, которые ткани стебля претерпевают в рубце. В сочетании с гистологическим окрашиванием и микроскопией этот метод позволяет визуализировать изменения в деградации тканей с течением времени, а также определить локализацию лигнина и пектина в стебле. Окраска по Виснеру дает реакцию с гваяцильными (G) альдегидными единицами лигнина, окрашивая их в фуксиновый цвет. Аналогично, рутений красный взаимодействует с карбоксильными группами пектина, окрашивая пектин в стебле в оттенках от розового до оранжевого и коричневого. В данном протоколе описывается переваривание поперечных срезов стебля люцерны после воздействия микробов рубца с последующим окрашиванием для визуализации распределения лигнина и пектина в клеточных стенках. Этот метод может быть использован для идентификации тканей стебля, в которых присутствуют или отсутствуют лигнин и пектин, что облегчает сравнение различных линий люцерны.
Введение
Каждая растительная клетка окружена клеточной стенкой. Целлюлоза, гемицеллюлоза, лигнин и пектин являются компонентами клеточной стенки и формируют растительную клетчатку, которая является необходимым элементом рациона жвачных животных. В то время как пектины представляют собой легкоперевариваемые (растворимые) полисахариды1, лигнин является неперевариваемым полимером, который ограничивает расщепление клетчатки2. Таким образом, лигнин снижает перевариваемость растений и, в конечном счете, уменьшает количество энергии, доступной жвачным животным из корма. Однако лигнин поддерживает важные физиологические функции растений, такие как транспорт воды по всему растению за счет укрепления элементов трахеид3. Предыдущие исследования показали, что изменения в составе клетчатки стебля, приводящие к снижению содержания лигнина или увеличению содержания пектина, могут повысить перевариваемость стебля и питательную ценность корма4. Таким образом, данный протокол сосредоточен на этих двух компонентах клеточной стенки. Общие концентрации лигнина и пектина в клеточных стенках стебля не дают достаточной информации для объяснения механизмов, лежащих в основе перевариваемости клетчатки стебля5. Инкубация in vitro с рубцовой жидкостью и гистологическое окрашивание позволяют получить представление на клеточном уровне, визуализируя различия в компонентах клеточных стенок у растений с разной степенью перевариваемости клетчатки стебля4,6. В настоящем протоколе в качестве модельного вида для иллюстрации распределения лигнина и пектина в тканях стебля, которые содержат больше лигнина, но меньше пектина, чем листья, используется люцерна (Medicago sativa L.), распространенная многолетняя кормовая бобовая культура.
In vitro инкубация с рубцовой жидкостью имитирует переваривание корма в желудке жвачных животных, что позволяет наблюдать влияние анатомии корма на перевариваемость. Благодаря созданию в пробирке условий, аналогичных условиям в рубце, поперечные срезы стеблей, закрепленные на предметных стеклах, можно извлекать в разные моменты времени для оценки степени деградации тканей после воздействия рубцовой жидкости6. Этот метод представляет собой относительно простой, быстрый и недорогой способ визуализации анатомических структур стеблей люцерны7 и изучения того, как меняются типы клеток с различными компонентами клеточной стенки по мере переваривания стебля.
Гистологическое окрашивание поперечных срезов стебля позволяет визуализировать компоненты клеточной стенки. Флорглюцинол и соляная кислота (HCl) в сочетании образуют окраску по Виснеру, которая выявляет ткани стебля, содержащие богатые гваяцилом единицы лигнина8, путем реакции с мономерами G C6C3 альдегида (кониферильдегида)9. Лигнин состоит из множества мономерных субъединиц; однако в данной статье термин «лигнин» относится исключительно к G-мономеру, так как именно этот мономер реагирует с окраской по Виснеру10 и, следовательно, визуализируется с помощью данного протокола. Некоторые ткани, такие как сосуды ксилемы, всегда лигнифицированы6. В остальных случаях отложение лигнина в тканях стебля люцерны начинается после инициации вторичного (камбиального) роста и совпадает с прекращением удлинения межузлий стебля6. Рутений красный связывается с пектиновыми веществами, которые содержат карбоксильные группы, иногда этерифицированные и имеющие общие боковые цепи11. Карбоксильные группы пектинов, присутствующие в срединной пластинке и первичных клеточных стенках, взаимодействуют с рутением красным11. Пектин участвует в растяжении клеток и, следовательно, присутствует в клетках во время первичного роста. В данном тексте термин «пектин» в целом относится к совокупности пектинов, которые могут присутствовать. Сочетание гистологического окрашивания с инкубацией in vitro в условиях рубца облегчает наблюдение за локализацией компонентов клеточной стенки в стебле и позволяет проследить, как различные типы клеток изменяются в процессе переваривания в рубце. В конечном счете, данный протокол может быть использован для идентификации содержащих лигнин и пектин клеток стебля, а также для характеристики закономерностей распределения этих веществ в различных линиях люцерны и при разном времени инкубации.
Протокол
Данное исследование было проведено в соответствии с институциональными правилами работы с животными (IACUC 2301-40689B).
1. Маркировка пробирок с образцами
- Подготовка и маркировка пробирок с образцами для инкубации, хранения и окрашивания
- Заранее промаркируйте пять отдельных наборов одноразовых конических центрифужных пробирок объемом 50 mL с завинчивающимися крышками для каждого образца. На каждой пробирке укажите идентификатор образца и время инкубации в соответствии с описанными ниже целями использования.
- Промаркируйте пробирки для хранения перед инкубацией и добавьте 35 mL ультрачистой воды.
- Промаркируйте пробирки для инкубации, которые будут использоваться в разделах 3 и 4. Распределите пробирки по отдельным штативам в зависимости от времени инкубации (0, 4, 8, 24, 48 или 96 h).
ПРИМЕЧАНИЕ: Используйте промышленный перманентный маркер, чтобы надписи не стерлись в водяной бане. - Промаркируйте пробирки для хранения после инкубации и добавьте 35 mL смеси 100% глицерина и ультрачистой воды в соотношении 50:50. Используйте эти пробирки для хранения переваренных поперечных срезов на предметных стеклах до момента окрашивания.
- Промаркируйте пробирки для подготовки к окрашиванию и добавьте 35 mL смеси абсолютного этанола и ультрачистой воды в соотношении 50:50. Используйте эти пробирки для вымывания глицерина из поперечных срезов перед окрашиванием.
- Промаркируйте пробирки для гидратации и добавьте 35 mL ультрачистой воды.
2. Изготовление поперечных срезов стебля и их закрепление на предметных стеклах
- С помощью пинцета поочередно выбирайте сегменты стеблей из образцов и вырезайте центральную часть сегмента.
ПРИМЕЧАНИЕ: Используйте четыре стебля на образец в качестве технических повторов для каждого биологического повтора. Выбирайте четыре стебля случайным образом из всех доступных стеблей в образце. Используйте дополнительный набор стандартных стеблей в качестве контроля для всех серий инкубации. - Вырежьте два прямоугольника из экструдированного пенополистирола толщиной примерно 0,6 cm и длиной 2,5 cm. Вырежьте небольшой клин вдоль всей длины каждого кусочка, чтобы междоузлие стебля плотно прилегало к двум кускам пенопласта.
- Закрепите стебель в таком «сэндвиче» на предметном столике скользящего микротома, способного делать срезы толщиной 100 μm. С помощью тонкой кисти нанесите каплю воды на стебель и лезвие микротома для обеспечения чистого среза.
- Сделайте поперечные срезы стебля толщиной 100 μm. С помощью кисти перенесите каждый срез в предварительно промаркированную чашку Петри с ультрачистой водой для временного хранения и удалите из чашки остатки пенопласта.
ПРИМЕЧАНИЕ: Замените лезвие микротома, если пенопласт рвется, так как это может указывать на затупление лезвия. - Вручную промаркируйте два стандартных предметных стекла размером 25 mm × 75 mm для каждого образца для каждого времени инкубации (2 окрашивания × 6 временных точек = 12 стекол на образец для каждого из биологических повторов). Укажите на каждой этикетке идентификатор образца, время инкубации и тип окрашивания.
- Отрежьте кусок двустороннего скотча шириной 2 mm и длиной 2,5 cm. Расположите короткую сторону скотча на расстоянии 0,5 cm от нижнего края стекла клейкой стороной вниз и, используя перчатки, плотно прижмите сторону с вощеной бумагой для обеспечения адгезии.
ПРИМЕЧАНИЕ: Выполняйте этот шаг на плоской поверхности, чтобы избежать поломки предметных стекол. - Используя диссекционный микроскоп, ориентируйте все поперечные срезы в одном направлении. Снимите вощеную бумагу с двустороннего скотча и, сохраняя ориентацию срезов, перенесите их на скотч на промаркированном предметном стекле с помощью смоченной тонкой кисти. Поддерживайте срезы слегка увлажненными.
- Накройте поперечные срезы вощеной бумагой и слегка прокатите по ней кистью, чтобы плотно зафиксировать срезы на двустороннем скотче. Снимите вощеную бумагу и поместите закрепленное стекло с четырьмя поперечными срезами в предварительно промаркированную пробирку для хранения, описанную в шаге 1.1.2, убедившись, что ультрачистая вода полностью покрывает закрепленные срезы.
- Для окрашивания рутением красным и по Виснеру поместите по два стекла спина к спине в каждую пробирку так, чтобы двусторонний скотч был обращен наружу.
ПРИМЕЧАНИЕ: После закрепления всех срезов и помещения стекол в пробирки с ультрачистой водой, при необходимости храните стекла в течение ночи при комнатной температуре.
3. Подготовка поперечных срезов стебля к инкубации in vitro
- Используйте одноразовые центрифужные пробирки объемом 50 mL с завинчивающимися крышками, подготовленные для инкубации (см. 1.1.3). Сгруппируйте все пробирки с образцами для каждого интервала инкубации на одном пластиковом штативе.
- С помощью аналитических весов с точностью до четвертого знака после запятой отвесьте 0,2 g стандартного образца стеблей кукурузы с размером частиц 1 mm на весовую бумагу и аккуратно перенесите материал в каждую инкубационную пробирку, за исключением пробирок для 0 h, которые служат неинкубированным контролем. Закройте пробирки крышками и отставьте их до использования.
ПРИМЕЧАНИЕ: стандартный образец стеблей кукурузы обеспечивает энергию для поддержания жизнедеятельности микробов рубца во время инкубации, поскольку биомассы поперечных срезов стебля недостаточно для поддержания микробной активности. - Наполните циркуляционный водяной термостат достаточным количеством воды и доведите его температуру до 39 °C перед началом инкубации. Отрегулируйте уровень воды так, чтобы она доходила до отметки 35 mL на пробирках объемом 50 mL; при необходимости используйте аэратор для поддержания равномерной циркуляции воды и температуры.
- Приготовление буфера Макдугалла (McDougall’s buffer) для инокуляционного раствора
- Приготовьте буфер Макдугалла не ранее чем за 2 дня до начала инкубации.
ПРИМЕЧАНИЕ: Смешайте буфер Макдугалла с жидкостью из рубца в соотношении 4:1 для приготовления инокуляционного раствора. Отрегулируйте объем буфера в соответствии с количеством образцов и приготовьте достаточное количество инокуляционного раствора, чтобы обеспечить 30 mL на пробирку. - Отмерьте 1 600 mL ультрачистой воды. Перенесите 1 L в плоскую колбу Эрленмейера объемом 3 L, а 600 mL оставьте для переноса и промывки реагентов.
- Поместите магнитный перемешиватель в колбу Эрленмейера и установите колбу на магнитную мешалку.
- Установите пластиковую воронку в колбу Эрленмейера. Добавьте 15,7 g бикарбоната натрия (NaHCO₃), 5,9 g безводного дигидрофосфата натрия (Na₂HPO₄), 0,91 g хлорида калия (KCl), 0,75 g хлорида натрия (NaCl), 0,19 g семигидрата сульфата магния (MgSO₄·7H₂O) и 0,06 g дигидрата хлорида кальция (CaCl₂), добавляя реагенты по одному и дожидаясь полного растворения каждого перед добавлением следующего. Используйте часть зарезервированных 600 mL ультрачистой воды для промывки воронки после каждого добавления.
- После добавления дигидрата хлорида кальция установите диффузор CO₂ для облегчения растворения и проведите продувку раствора. После того как раствор станет прозрачным, продолжайте продувку еще в течение 10–15 min.
- Плотно закройте колбу пробкой и закрепите пробку малярным скотчем, так как при нагревании буфера в контейнере может повыситься давление.
- Храните раствор при 20 °C до 2 дней. Поместите раствор в водяную баню с температурой 39 °C за день до использования или непосредственно в водяную баню с температурой 39 °C, если он будет использован на следующий день.
- Приготовьте буфер Макдугалла не ранее чем за 2 дня до начала инкубации.
4. Инкубация срезов стебля in vitro
- В день инкубации в вытяжном шкафу поместите 47 mL воды и 4 mL 1 N NaOH в стакан объемом 100 mL и добавьте 0,625 g цистеин-HCl. Во второй стакан объемом 100 mL добавьте 0,625 g сульфида натрия в 47 mL воды; храните эти два раствора раздельно до приготовления инокуляционного раствора.
- Заполните изолированный термос горячей водой, чтобы создать теплую среду для транспортировки микроорганизмов рубца от коровы в лабораторию. Подготовьте пятигаллонное ведро для переноса горячей воды из термоса.
- Отправьтесь в коровник для сбора жидкости из рубца канюлированной коровы, назначенной для эксперимента руководством коровника.
ПРИМЕЧАНИЕ: Для минимизации вариабельности собирайте жидкость из рубца примерно в одно и то же время суток и от одной и той же коровы на протяжении всего эксперимента. Согласуйте с руководством коровника время вашего визита для сбора жидкости. - Найдите нужную корову и наденьте соответствующие средства индивидуальной защиты, включая лабораторный халат, средства защиты глаз, бахилы и перчатки по плечо.
ПРИМЕЧАНИЕ: Процедуры в шагах 4.4–4.8 должны выполняться только персоналом, уполномоченным в соответствии с применимым протоколом IACUC. - Перелейте теплую воду из термоса в пятигаллонное ведро. Подготовьте два слоя марли (grade 50) для фильтрования содержимого рубца.
- Сбор жидкости из рубца канюлированной коровы
- Осторожно откройте канюлю и поместите пробку в пятигаллонное ведро с теплой водой, чтобы избежать загрязнения пробки. С помощью руки в перчатке удалите достаточное количество материала из рубца, чтобы получить доступ к границе раздела твердой и жидкой фаз.
- Достигнув границы раздела фаз, соберите несколько горстей материала и отожмите его через два слоя марли (grade 50), размером примерно 45 cm квадрат, в предварительно нагретый термос с завинчивающейся крышкой. Отработанный материал после отжима жидкости через марлю утилизируйте.
- Повторяйте шаг 4.6.2 до тех пор, пока в термосе не соберется 1 L жидкости из рубца на каждую серию из 60 инокуляционных пробирок, корректируя объем в зависимости от количества образцов для инкубации.
ПРИМЕЧАНИЕ: Для канюлированных коров существуют определенные лимиты на объем жидкости из рубца, которую можно извлекать в неделю. Свяжитесь с управляющим коровником, чтобы убедиться, что объем извлеченной жидкости не превышает установленный лимит для данной коровы.
- После сбора достаточного количества жидкости из рубца плотно закройте термос для сохранения температуры. Установите канюлю на место и используйте теплую воду в пятигаллонном ведре для очистки.
- При выходе из коровника выбросьте использованные бахилы, перчатки и марлю в соответствующий контейнер для утилизации. Как можно быстрее вернитесь в лабораторию, чтобы сохранить температуру жидкости из рубца и аноксические условия.
- По возвращении в лабораторию соедините два раствора восстановителей (см. шаг 4.1) в вытяжном шкафу и перемешайте их для приготовления восстановительного раствора.
- Поместите стеклянный стакан объемом не менее 2 L с большим магнитным перемешивателем на нагревательную магнитную мешалку, установленную на температуру <30 °C, и расположите диффузор CO₂ над жидкостью. Добавьте 1 600 mL буфера Макдугалла и медленно перемешивайте, следя за тем, чтобы диффузор CO₂ не касался жидкости.
ПРИМЕЧАНИЕ: При такой низкой температуре можно использовать полипропиленовый стакан. Используйте CO₂ для вытеснения O₂ и поддержания аноксических условий. - Застелите большую воронку двумя слоями марли (grade 50) и поместите ее над мерным цилиндром объемом 2 L. Отфильтруйте 400 mL жидкости из рубца и добавьте ее к буферу Макдугалла (см. шаг 3.4.7) для приготовления инокуляционного раствора.
- Добавьте 80 mL восстановительного раствора (см. шаг 4.9) в инокуляционный раствор и медленно перемешайте. Не допускайте контакта диффузора CO₂ с жидкостью.
- В вытяжном шкафу снимите крышки с инкубационных пробирок и распределите их по отдельным штативам в соответствии с временем инкубации. Откройте пробирки для предварительной инкубации, чтобы подготовить их к переносу предметных стекол (см. шаг 1.1.2).
- Поочередно выбирайте по одной пробирке для предварительной инкубации и с помощью пинцета переносите закрепленные стеклянные предметные стекла в соответствующую инкубационную пробирку (см. шаг 1.1.3). Поместите каждую инкубационную пробирку с закрепленными стеклами в небольшой штатив для образцов, а пробирку для предварительной инкубации отставьте в сторону.
ПРИМЕЧАНИЕ: Шаги 4.14–4.15 следует выполнять вдвоем. По возможности минимизируйте охлаждение смеси жидкости из рубца с буфером. - Наберите 30 mL инокуляционного раствора в шприц объемом 60 mL, оснащенный тупой иглой с большим просветом. Медленно введите раствор по стенке инкубационной пробирки, продуйте пробирку CO₂ в течение примерно 20 s, закройте крышкой и верните в штатив.
- Поместите штативы с инокулированными пробирками в водяную баню при 39 °C. Осторожно перемешивайте пробирки круговыми движениями не реже одного раза в день и ежедневно меняйте положение штативов, чтобы избежать неравномерного нагрева.
ПРИМЕЧАНИЕ: Образование пузырьков газа в пробирках указывает на активную ферментацию. - По окончании каждого периода инкубации извлеките соответствующий штатив из водяной бани. Открывайте пробирки по одной, извлекайте каждое стекло и осторожно промойте его ультрачистой водой, чтобы удалить твердые частицы и остатки инокуляционного раствора.
- Поместите промытые стекла в пробирки для хранения после инкубации, содержащие смесь глицерина с водой, описанную в шаге 1.1.4.
5. Окрашивание поперечного среза на лигнин
- Если предметные стекла хранились в смеси глицерина и воды (50:50), перенесите оба стекла с закрепленными поперечными срезами в пробирки для промывки перед окрашиванием, содержащие раствор этанола и сверхчистой воды (см. 1.1.5). Храните пробирки в холодильнике в течение ночи для удаления глицерина перед окрашиванием.
- Приготовьте 3% раствор флороглюцинола (PG), растворив 0,3 g PG в 10 mL абсолютного этанола в конической колбе Эрленмейера объемом 25 mL, обернутой алюминиевой фольгой для защиты светочувствительного реагента от света. Закройте колбу пробкой, подпишите её (название раствора, дата приготовления и имя составителя) и храните при 20 °C.
- Извлеките стекла из охлажденных пробирок и временно перенесите их в пробирки для гидратации, описанные в шаге 1.1.6, содержащие 100% сверхчистую воду.
ПРИМЕЧАНИЕ: Поддерживайте поперечные срезы в гидратированном состоянии во время манипуляций, чтобы минимизировать окисление, которое может повредить срезы и повлиять на последующую визуализацию. - Приготовьте краситель Виснера в вытяжном шкафу с помощью дозатора, смешав в стакане объемом 50 mL 50 μL 3% PG в этаноле (см. 5.2) и 25 μL соляной кислоты (HCl).
ПРИМЕЧАНИЕ: Скорректируйте количество реагентов в соответствии с числом предметных стекол, сохраняя соотношение PG к HCl как 2:1.
ПРЕДОСТЕРЕЖЕНИЕ: Работайте с соляной кислотой в вытяжном шкафу, так как она вызывает коррозию металлов, тяжелые ожоги кожи и повреждения глаз, а также может вызвать раздражение дыхательных путей. Избегайте вдыхания паров или аэрозолей, используйте соответствующие защитные перчатки, одежду, средства защиты глаз и лица, а после работы тщательно промойте открытые участки кожи. - Извлеките одно стекло из пробирки и осторожно промокните стекло вокруг двустороннего скотча салфеткой с низким ворсом, чтобы краситель не стекал с ленты. Поместите стекло на небольшой пластиковый лоток и с помощью пипетки нанесите несколько капель красителя Виснера на поперечные срезы.
- Установите таймер на 12 min и накройте стекла алюминиевой фольгой для защиты от света. В процессе окрашивания проверяйте поперечные срезы и при необходимости снова наносите краситель, чтобы предотвратить высыхание.
ПРИМЕЧАНИЕ: Не допускайте высыхания поперечных срезов, так как окисление может повредить ткань и повлиять на последующую визуализацию. - Через 12 min осторожно удалите излишки красителя Виснера салфеткой с низким ворсом. Промойте ткань перед закреплением, чтобы минимизировать воздействие коррозионных паров HCl на объектив микроскопа.
- Нанесите 1–2 капли 50% смеси глицерина и сверхчистой воды на каждый поперечный срез и накройте покровным стеклом размером 24 mm × 30 mm (толщина № 1,5). Немедленно приступите к микроскопическому анализу и визуализации.
ПРИМЕЧАНИЕ: Получите изображения в течение 6–8 h, так как окрашивание по Виснеру чувствительно ко времени; со временем окраска может стать желтой и диффундировать из поперечного среза.
6. Окрашивание поперечных срезов на пектин
- Следуйте шагу 5.1, чтобы удалить смесь глицерина и ультрачистой воды с хранимых предметных стекол перед окрашиванием.
- Приготовьте 0,02% раствор рутенического красного, растворив 0,02 g рутенического красного в 100 mL ультрачистой воды в колбе Эрленмейера объемом 125 mL, обернутой алюминиевой фольгой для защиты светочувствительного реагента от света. Закройте колбу пробкой, подпишите ее, указав название раствора, дату приготовления и имя подготовившего, и храните при 20 °C.
- Извлеките предметные стекла из пробирок с этанолом и ультрачистой водой, находившихся в холодильнике, и перенесите правильно промаркированные стекла с закрепленными срезами в пробирки со 100% ультрачистой водой (см. 1.1.6) для временного хранения.
ПРИМЕЧАНИЕ: Соблюдайте меры предосторожности при гидратации, описанные в шаге 5.3. - С помощью пинцета извлеките одно предметное стекло из ультрачистой воды и промокните воду вокруг фиксирующей ленты безворсовой салфеткой, чтобы предотвратить растекание красителя по стеклу. Поместите стекло на небольшой пластиковый лоток.
- Нанесите несколько капель раствора рутенического красного (см. 6.2), чтобы равномерно покрыть поперечные срезы. Накройте стекла алюминиевой фольгой на 10 min для защиты от света, затем осторожно промойте стекло ультрачистой водой в течение 2 min для удаления красителя.
- Удалите излишки воды с предметного стекла и нанесите 1–2 капли 50% смеси глицерина и ультрачистой воды на каждый поперечный срез. Накройте поперечные срезы покровным стеклом размером 24 mm × 30 mm (толщина № 1.5) и переходите к микроскопическому анализу и визуализации.
ПРИМЕЧАНИЕ: Для получения оптимальных результатов проведите микроскопический анализ в тот же день.
7. Визуализация в светлом поле
- Изучите поперечные срезы при светлом поле с помощью микроскопа с 10-кратным увеличением×, 20×и 40× увеличение. См. Таблица 1 для параметров и настроек сбора изображений.
Результаты
Использование центрифужных пробирок для имитации условий в рубце позволило относительно быстро и недорого in vitro переваривание (расщепление) Medicago sativa поперечные срезы стебля. С помощью скользящего микротома, 100 μmтолстые поперечные срезы *M. sativa* стебли подготавливали (Рисунок 1A). Поперечные срезы стеблей закрепляли на предметных стеклах с помощью двусторонней клейкой ленты (Рисунок 1B) и погружали в раствор инокулята рубцовой жидкости для инкубации в течение периодов от 4 до 96 ч (Рисунок 1C). Для in vitro инкубация; в качестве инкубационных сосудов использовали одноразовые центрифужные пробирки объемом 50 мл с крышками, в которые добавляли 0,2 г измельченного до 1 мм субстрата из стеблей кукурузы для поддержания жизнедеятельности микроорганизмов рубца в течение всего периода инкубации. Пробирки инкубировали на водяной бане при температуре 39 °C (Рисунок 1D). Активное брожение, вызванное микроорганизмами рубца, было подтверждено визуально по образованию пузырьков газа в инокуляционном растворе. Материалы, необходимые для данного протокола, обычно имеются в лабораториях по неорганической и аналитической химии. Двусторонняя клейкая лента не препятствовала деградации тканей при воздействии жидкости из рубца, но удерживала фрагменты стебля, сохранившиеся после переваривания, что позволило провести последующее окрашивание и микроскопическую визуализацию.
Поперечные срезы стебля, которые не подвергались инкубации in vitro (0 ч), позволили визуализировать исходные компоненты клеточных стенок в различных тканях стебля. На поперечных срезах, окрашенных по методу Виснера, были определены ткани с лигнин-ассоциированным окрашиванием (Рисунок 2A–E), в то время как на срезах, окрашенных рутевым красным, были выделены ткани с пектин-ассоциированным окрашиванием (Рисунок 3A–E). В срезах, окрашенных по Виснеру, зрелые волокна первичного флоэмы имели фуксиновое окрашивание (Рисунок 2B–E). Сосуды ксилемы и интерфасцикулярная ксилема также имели фуксиновое окрашивание (Рисунок 2B–D). Окрашивание рутевым красным наблюдалось в эпидермисе, колленхиме, хлоренхиме, вторичном флоэме (Рисунок 3B–E) и сердцевине (Рисунок 3B–D). Некоторые волокна интерфасцикулярной ксилемы и первичного флоэмы также окрашивались рутевым красным (Рисунок 3B–E). Поперечные срезы всего стебля были визуализированы путем сшивания сетки изображений 5 × 5, полученных при 10-кратном увеличении (Рисунок 2A и Рисунок 3A). Дополнительные изображения одного участка поперечного среза стебля были получены при 10-кратном (Рисунок 2B и Рисунок 3B), 20-кратном (Рисунок 2C и Рисунок 3C) и 40-кратном увеличении выше (Рисунок 2D и Рисунок 3D) и ниже (Рисунок 2E и Рисунок 3E) сосудистого камбия.
Окрашенные по методу Виснера ткани поперечных срезов стебля M. sativa отчетливо наблюдались во всех вариантах инкубации in vitro в интервале от 0 ч до 96 ч (Рисунок 4A–F). Через 0 ч все клетки имеют четкие границы (Рисунок 4A). Спустя 8 ч признаки деградации тканей стали заметны по размытию границ клеток с тонкими неодревесневшими (т. е. неокрашенными) клеточными стенками (например, колленхимы) и исчезновению клеток (например, вторичной флоэмы). Через 24 ч спиралевидная трехмерная структура сосудов ксилемы стала более выраженной по мере деградации окружающих тканей (Рисунок 4D). После 24 ч неокрашенные клетки постепенно подвергались деградации и исчезали (Рисунок 4D–F). По мере деградации этих тканей потеря анатомической поддержки приводила к латеральному спадению неокрашенного эпидермиса, что создавало вид ленты из тонких прозрачных клеток через 24, 48 и 96 ч (Рисунок 4D–F).
In vitro инкубация поперечных срезов стебля M. sativa с последующим окрашиванием рутением красным позволила визуализировать окрашивание пектин-ассоциированных структур в тканях стебля после 0–96 ч воздействия рубцовой жидкости (Рисунок 5A–F). В интервале от 0 до 4 ч четкие границы всех клеток указывают на то, что они оставались неповрежденными (Рисунок 5A,B)). По мере увеличения времени инкубации до 8 ч ткани с тонкими нелигнифицированными клеточными стенками в коре, включая колленхиму, хлоренхиму и вторичную флоэму, постепенно теряли структурную целостность, что привело к размытию границ клеток (Рисунок 5C). Через 24, 48 и 96 ч большая часть окружающей корковой ткани отсутствовала, в то время как фрагменты эпидермиса, интерфасцикулярной ксилемы, сердцевины и сосудистых тканей оставались видимыми (Рисунок 5D–F). Потеря окружающей анатомической структуры сопровождалась латеральным коллапсом эпидермального слоя. К 96 ч количество тканей, окрашенных рутением красным, стало существенно меньше, чем при более ранних сроках инкубации (Рисунок 5F). В целом, прогрессирующая потеря тканей стебля во время инкубации сопровождалась сокращением числа клеток, дающих положительное окрашивание рутением красным. Деградация и исчезновение тонких нелигнифицированных пектин-ассоциированных клеток были ожидаемы, так как пектин легко разлагается со временем.
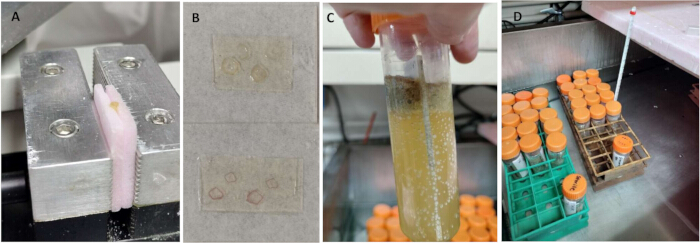
Рисунок 1: In vitro инкубация поперечных срезов стебля люцерны. (AСегменты стебля люцерны зажимали между двумя кусками экструдированного пенополистирольного жесткого утеплителя и закрепляли на скользящем столике микротома для изготовления поперечных срезов.B) четыре поперечных среза, каждый 100 μm толстые, были закреплены на предметном стекле с помощью двустороннего скотча для in vitro инкубация и гистологическое окрашивание. (CДва предметных стекла поместили в пробирку объемом 50 мл, содержащую 30 мл инокуляционного раствора из жидкости рубца с буфером и 0,2 г измельченных кукурузных стеблей (размер частиц 1 мм), расположив стекла спинками друг к другу так, чтобы двусторонняя клейкая лента была обращена наружу. Пробирку продули CO₂ и закрыли крышкой для инкубации. Появление пузырьков газа вдоль стенки пробирки в процессе инкубации свидетельствовало об активной ферментации микроорганизмами рубца.Dштативы с пробирками объемом 50 мл находились в 39 °C водяная баня на протяжении всего периода инкубации. Уровень воды покрывал инокуляционный раствор, но оставался ниже отверстий пробирок, чтобы предотвратить попадание воды внутрь. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
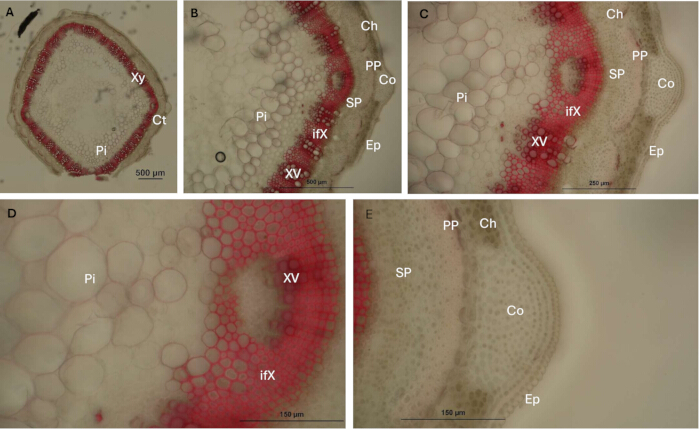
Рисунок 2Окрашивание по Виснеру тканей стебля люцерны позволяет определить распределение лигнифицированных компонентов клеточных стенок. (A–E) Поперечные срезы непереваренных стеблей люцерны (время инкубации = 0 ч) служили исходным эталоном для идентификации тканей стебля, окрашивающихся по Визнеру. Сосуды ксилемы (XV), интерфасцикулярная ксилема (ifX) и зрелые волокна первичного флоэмы (PP) окрашены в фуксиновый цвет. Увеличение и масштабные отрезки: (A) сетка 5 × 5 из сшитых изображений, полученных при 10-кратном увеличении, масштабная линейка = 500 μm; (B) 10×, масштабная линейка = 500 μm; (C) 20×, масштабный отрезок = 250 μm; (D, E) 40×, масштабные отрезки = 150 μmУсловные обозначения: Xy = ксилема; Ct = кора; Pi = сердцевина; Ep = эпидермис; Co = колленхима; Ch = хлоренхима; SP = вторичный флоэм; XV = сосуды ксилемы; ifX = интерфасцикулярная ксилема; PP = зрелые волокна первичного флоэмы. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
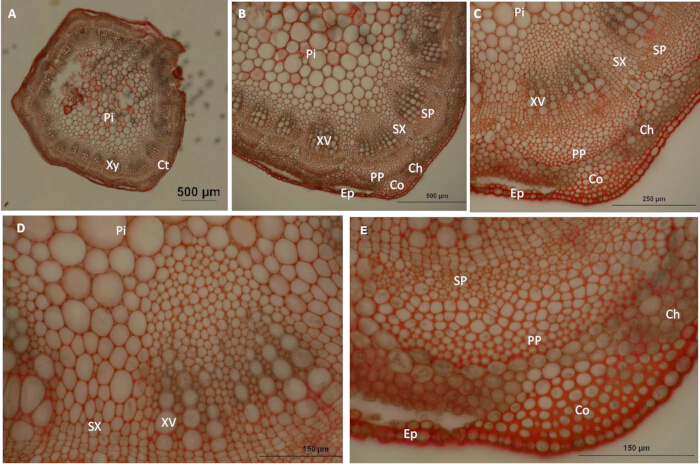
Рисунок 3Окрашивание тканей стебля люцерны рутенилиевым красным позволяет определить распределение пектиновых полисахаридов в клеточных стенках. (A–E) Поперечные срезы непереваренных стеблей люцерны (время инкубации = 0 ч) служили исходным эталоном для идентификации тканей стебля, окрашивающихся рутениевым красным. Окрашивание красным наблюдалось в эпидермисе (Ep), колленхиме (Co), хлоренхиме (Ch), вторичном флоэме (SP) и сердцевине (Pi). Также окрашивание наблюдалось во вторичном ксилеме (SX) и зрелом первичном флоэме (PP), в то время как сосуды ксилемы (XV) оставались сравнительно неокрашенными. Увеличение и масштабные отрезки: (AСетка 5 × 5 из склеенных изображений, полученных при 10-кратном увеличении, масштабная линейка = 500 μm; (B) 10×, масштабная линейка = 500 μm; (C) 20×, масштабная линейка = 250 μm; (D, Е) 40×, масштабные отрезки = 150 μmУсловные обозначения: Xy = ксилема; Ct = кора; Pi = сердцевина; Ep = эпидермис; Co = колленхима; Ch = хлоренхима; SP = вторичный флоэм; XV = сосуды ксилемы; SX = вторичный ксилема; PP = зрелый первичный флоэм. Пожалуйста, нажмите здесь, чтобы просмотреть этот рисунок в увеличенном виде.
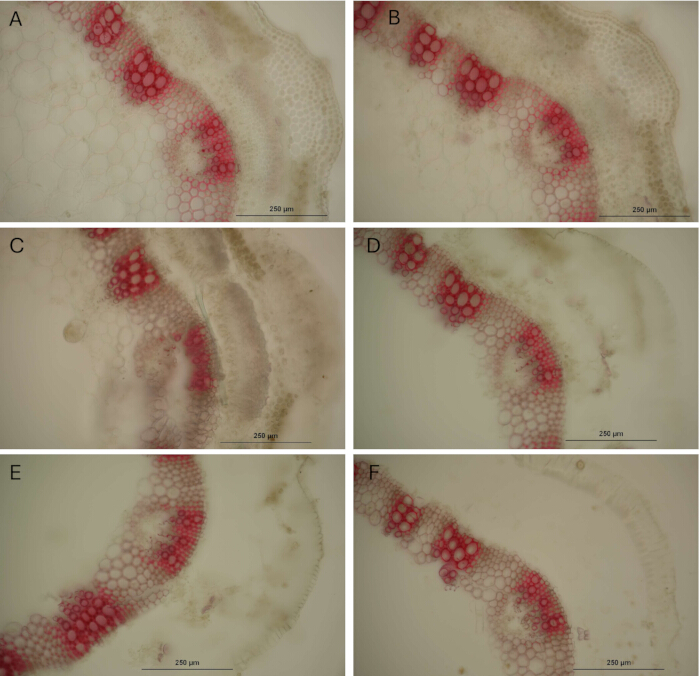
Рисунок 4Изменения в тканях стебля люцерны после in vitro инкубация и окрашивание по Виснеру. Поперечные срезы стеблей люцерны, взятые из одних и тех же междоузлий, подвергали in vitro инкубация с рубцовой жидкостью в течение (A) 0 ч, (B) 4 ч, (С) 8 ч, (D) 24 ч, (Е) 48 ч, и (F) 96 ч. Сосуды ксилемы (XV), интерфасцикулярная ксилема (ifX) и зрелые волокна первичного флоэмы (PP) сохраняли окрашивание по Виснеру на протяжении всех периодов инкубации. В незрелых тканях стебля наблюдалось слабое окрашивание ifX. По мере увеличения времени инкубации окружающие ткани постепенно теряли структурную целостность, вследствие чего оставшиеся окрашенные сосудистые структуры становились более выраженными. Масштабные отрезки = 250 μm. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
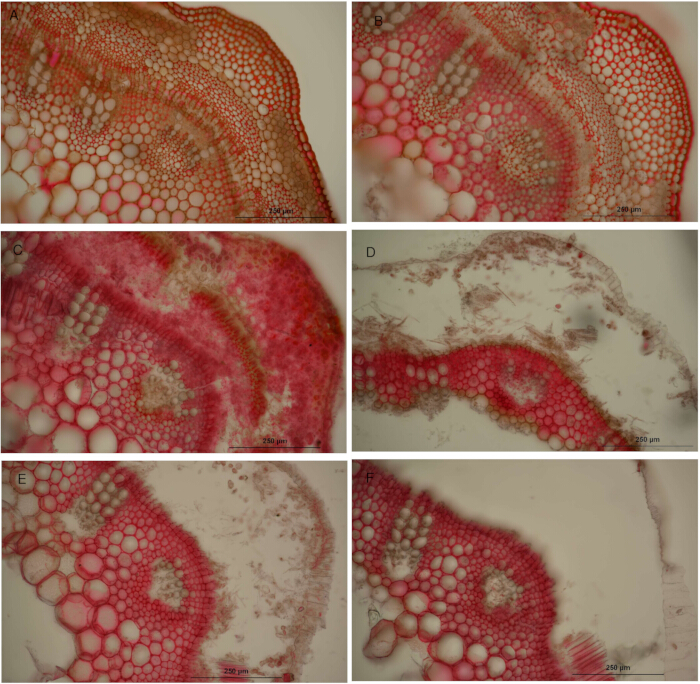
Рисунок 5Изменения в тканях стебля люцерны после in vitro инкубация и окрашивание рутением красным. Поперечные срезы стебля люцерны, взятые из одних и тех же междоузлий, подвергали in vitro инкубация с рубцовой жидкостью в течение (A) 0 ч, (B) 4 ч, (C) 8 ч, (D) 24 ч, (Е) 48 ч, и (F) 96 ч. Окрашивание рутеним красным наблюдалось в различных стеблевых тканях, в то время как сосуды ксилемы (XV) оставались сравнительно неокрашенными. По мере увеличения времени инкубации наблюдалась прогрессирующая потеря структуры тканей и интенсивности окрашивания рутеним красным. На более поздних этапах инкубации оставались видимыми участки сосудов ксилемы, интерфасцикулярной ксилемы (ifX) и эпидермального слоя (Ep). Масштабные отрезки = 250 μm. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
| Параметр | Условия проведения эксперимента |
| Быстрый (фокусирующий) | 2000 × 1328 |
| Качество (захват изображения) | 2000 × 1328 |
| Цветовой режим | Цветовая модель RGB |
| Глубина цвета | 8 бит на канал |
| Эффективная глубина цвета | 24-битный RGB (8 бит R + 8 бит G + 8 бит B) |
| Коэффициент усиления | 2 |
| время экспозиции при 10-кратном увеличении (мс) | 30 |
| время экспозиции при 20-кратном увеличении (мс) | 50 |
| время экспозиции при 150-кратном увеличении (мс) | 150 |
Таблица 1: Настройки микроскопа и камеры для получения изображений. Настройки микроскопа, камеры и сбора данных, использованные для получения изображений в светлом поле с помощью вертикального микроскопа, оснащенного цифровой цветной камерой и программным обеспечением для визуализации.
Обсуждение
Материал люцерны, использованный в данном исследовании, состоял из клонов пяти линий люцерны. Две экспериментальные линии были отобраны после двух циклов дивергентного отбора по перевариваемости нейтрально-детергентной клетчатки in vitro (IVNDFD) от материнских растений с либо низкой IVNDFD через 16 ч и низкой IVNDFD через 96 ч, либо с высокой IVNDFD через 16 ч и высокой IVNDFD через 96 ч12. В исследование также были включены три коммерческие линии с неизвестным генетическим фоном; материнские растения отбирались на основе анализа методом ближней инфракрасной спектроскопии для выявления особей с (а) самым высоким содержанием лигнина, (б) самым низким содержанием лигнина и (в) самым низким содержанием нейтрально-детергентной и кислотно-детергентной клетчатки. Пять линий люцерны были пересажены из теплицы в мае 2021 года на повторные полевые опыты в двух локациях в штате Миннесота, США. Для первого и второго укосов каждого вегетационного периода 10 стеблей каждой линии люцерны собирали на стадиях вегетативного роста, раннего бутонизирования, раннего цветения, цветения и зеленых бобов. Седьмой междоузлие от основания каждого стебля вырезали и помещали в пробирку объемом 50 mL, содержащую смесь 200-градусного этанола и ультрачистой воды в соотношении 50:50, для хранения до инкубации поперечных срезов. Этот метод был разработан на основе работ, ранее проведенных лабораторной группой в 1990-х годах, в которых в качестве единицы исследования был выбран седьмой междоузлие4,6.
In vitro инкубация с жидкостью из рубца и гистологическое окрашивание стеблей люцерны использовались для изучения закономерностей отложения компонентов клеточной стенки в деградировавших тканях стебля. Инкубация in vitro имитировала степень деградации, которой подвергается стебель люцерны в рубце, а последующее гистологическое окрашивание позволило выявить лигнин и пектин в клетках, где эти компоненты клеточной стенки оставались обнаруживаемыми после микробного переваривания в течение заданного времени. Использование скользящего микротома обеспечило стандартизированную толщину поперечного среза для минимизации артефактов сечения, которые могли бы повлиять на результаты13. Хотя в данном протоколе изучались только лигнин и пектин, для гистологического окрашивания этих и других компонентов клеточной стенки также могут быть использованы альтернативные красители, такие как толуидиновый синий, Astra blue и Direct Red 2314,15,16. Кроме того, для обнаружения целлюлозы в клеточных стенках можно использовать поляризованный свет, а флуоресцентные реагенты, такие как сафранин O, позволяют визуализировать лигнин17 и полисахариды клеточной стенки. Более того, для маркировки специфических пектинов могут быть использованы антитела18. Помимо люцерны, данный протокол может быть применен и к другим видам. Однако реакция на окрашивание может варьироваться в зависимости от вида, генотипа, стадии развития и условий окружающей среды19.
Использование недорогой двусторонней ленты для прикрепления поперечных срезов стеблей к предметным стеклам было описано ранее6,20. Перед началом данного протокола инкубации in vitro было необходимо подобрать двустороннюю ленту, которая была бы легкодоступна и способна выдерживать погружение в жидкость в течение нескольких дней. Было протестировано несколько типов лент, различающихся по толщине и предполагаемому промышленному применению. Кратко: фрагменты двусторонней ленты длиной 1 дюйм и поперечные срезы стеблей фиксировали на предметных стеклах и погружали в воду на разное время в течение одной недели, чтобы определить, сохраняются ли они на стеклах. Некоторые виды двусторонней ленты отклеивались от предметных стекол, в то время как другие становились непрозрачными после длительного воздействия жидкости. Потеря прозрачности ленты затрудняла микроскопию и препятствовала получению высококачественных изображений поперечных срезов стеблей. Среди протестированных адгезивов наилучшие результаты показала виниловая двусторонняя лента. Лента, использовавшаяся в оригинальных экспериментах, была приобретена в 1990-х годах и оставалась эффективной; однако тот же продукт не удалось найти для последующих экспериментов. Поэтому выбранную ленту следует протестировать перед использованием, чтобы убедиться, что и лента, и срезы остаются закрепленными на протяжении всего периода инкубации. Лента также должна оставаться прозрачной для обеспечения получения высококачественных изображений.
Этап инкубации in vitro в данном протоколе включал несколько критичных по времени стадий, которые требовали тщательного планирования и координации. Общее время, необходимое для процедуры инкубации in vitro, может варьироваться в зависимости от масштаба эксперимента. Например, для формирования надежного набора данных поперечных срезов стеблей на каждый предметное стекло для каждой комбинации «образец × интервал инкубации in vitro × краситель» было нанесено по четыре уникальных стебля люцерны. При использовании 16 образцов, шести интервалов инкубации и двух красителей для одного цикла инкубации in vitro потребовалось в общей сложности 768 поперечных срезов стеблей. На подготовку 768 срезов потребовалось около 8 ч; после этого их можно было хранить в течение ночи в чашках Петри с ультрачистой водой, а затем закрепить на стеклах на следующий день. Перед закреплением потребовалось промаркировать 192 предметных стекла и 96 центрифужных пробирок (50 mL). Закрепление срезов заняло еще 8 ч, так как срезы ориентировали единообразно для всех интервалов инкубации и красителей, чтобы облегчить сравнение тканей стебля. Такой подход потребовал больше времени, чем случайное закрепление срезов. Закрепленные стекла хранились в ультрачистой воде в течение ночи перед началом инкубации in vitro на следующий день. Параллельно с подготовкой и закреплением поперечных срезов стеблей люцерны необходимо было приготовить буфер Макдугалла. Буфер можно было приготовить не ранее чем за 2 дня до начала инкубации in vitro; перед инокуляцией закрепленных срезов его требовалось нагреть до 39 °C. Таким образом, для успешного выполнения протокола было необходимо тщательное планирование и подготовка.
Окрашивание по Виснеру обычно используется для визуализации структур, связанных с лигнином в растительных тканях. Хотя этот метод окрашивания относительно прост21 и достаточно специфичен22, он окрашивает концевые группы циннамальдегида, связанные с гваяцил-единицами (G) лигнина13. У двудольных покрытосеменных растений, таких как люцерна, G- и сирингил-единицы (S) являются основными компонентами полимера лигнина, хотя также присутствуют субъединицы с H-кольцом. Таким образом, окрашивание по Виснеру может привести к недооценке общего содержания лигнина в стебле, так как оно не реагирует с S-лигнином. И G-, и S-единицы могут присутствовать в межпучковом ксилеме и волокнах первичного флоэмы (т. е. в тканях склеренхимы); следовательно, хотя S-единицы могут не реагировать с красителем по Виснеру, окрашивание G-единиц может указывать на наличие связанных с лигнином структур в этих тканях. Для визуализации S-единиц и получения более полного представления о единицах лигнина в стебле может быть использовано окрашивание по Мяуле13. Вариации интенсивности окрашивания пектина рутением красным также могут возникать в зависимости от состояния этерификации или деэтерификации пектиновой кислоты23. Окрашивание может варьироваться от желто-оранжевого тона до ярко-красного оттенка. Поскольку рутений красный может взаимодействовать с несколькими углеводами, использование этого красителя может привести к завышению содержания пектина в тканях11. Поскольку пропорция лигнина увеличивается по мере созревания стебля люцерны, лигнин также может препятствовать окрашиванию пектина в более старых стеблях. Различия между оттенками одного и того же красителя может быть трудно различить визуально; однако технологии анализа изображений могут помочь преодолеть это ограничение.
После инкубации in vitro с рубцовой жидкостью и гистологического окрашивания поперечные срезы стеблей можно визуализировать под микроскопом и получить изображения для последующего анализа. Поскольку окраска по Виснеру бледнеет в течение 24 ч9, микроскопический анализ стеблей, окрашенных на лигнин, в светлом поле следует проводить в тот же день, что и окрашивание, в идеале в течение 6–8 ч, чтобы обеспечить однородность окраски на всех изображениях. Окрашивание рутениевым красным сохраняет свою интенсивность с течением времени, поэтому съемка в тот же день менее критична. Тем не менее, для обеспечения единообразия изображения образцов, окрашенных рутениевым красным, также были получены в течение 6–8 ч. Изображения регистрировали с помощью цифровой цветной микроскопической камеры высокого разрешения и четкости, оснащенной широкоформатным CMOS-датчиком. Для обеспечения сопоставимости изображений и минимизации вариативности, вызванной различиями в настройках съемки, использовались одинаковые параметры экспозиции, аналогового усиления, разрядности, качества изображения и фокусировки. Время экспозиции корректировалось в зависимости от увеличения (10×, 20× и 40×), чтобы предотвратить пере- или недоэкспонирование и получить высококачественные изображения. Таким образом, сравнение следует проводить между изображениями, полученными при одном и том же увеличении, чтобы минимизировать отклонения, связанные с различными настройками экспозиции. Параметры съемки могут потребовать корректировки в зависимости от используемого микроскопа и камеры (Таблица 1). Для визуализации компонентов клеточных стенок также применялись другие методы микроскопии, включая сканирующую электронную микроскопию 6,20 и флуоресцентную микроскопию14,15,17, хотя в данном протоколе использовалась микроскопия в светлом поле.
В результате применения данного протокола был получен большой набор данных из изображений поперечных срезов стеблей (>15 000), которые могут быть использованы для расширения качественной информации, полученной в ходе данного протокола с помощью гистологического окрашивания, в сторону количественного анализа с применением технологий машинного обучения. Эффективные конвейеры анализа изображений позволяют автоматизировать и ускорить извлечение количественных данных из снимков. Сотрудничество со специалистами в области компьютерных наук может способствовать разработке инструментов для предварительной обработки изображений, удаления постороннего шума и извлечения интересующих признаков для проверки нескольких гипотез. Подходы на основе машинного обучения требуют наличия соответствующих обучающих и тестовых наборов данных достаточного объема для обеспечения стабильной работы модели. Меньшие наборы данных могут быть проанализированы с использованием более простых подходов к анализу изображений, таких как ручное измерение интересующих признаков с помощью программного обеспечения для анализа изображений, например ImageJ24 , или с помощью программного обеспечения для анализа изображений, входящего в комплект микроскопа25. Таким образом, учет предполагаемого дальнейшего использования изображений может повысить эффективность определения типа и количества снимков, которые необходимо получить, а также последующего аналитического подхода.
Раскрытие информации
Авторы заявляют, что исследование проводилось без каких-либо коммерческих или финансовых отношений, которые могли бы быть истолкованы как потенциальный конфликт интересов. Упоминание торговых марок или коммерческих продуктов в данной публикации служит исключительно целью предоставления конкретной информации и не подразумевает рекомендации или одобрения со стороны Министерства сельского хозяйства США (USDA). USDA является работодателем и поставщиком услуг, обеспечивающим равные возможности. Все эксперименты были проведены в соответствии с действующим законодательством Соединенных Штатов, страны, в которой они осуществлялись.
Благодарности
Авторы выражают благодарность Р. Теду Джео за его ценные замечания относительно предыдущих смежных работ. Благодарим Центр визуализации Университета Миннесоты — Твин-Ситиз за предоставление доступа к программному обеспечению для получения и анализа микроскопических изображений, использованному при подготовке иллюстраций к публикации. Данная работа была поддержана Министерством сельского хозяйства США — Службой сельскохозяйственных исследований [062-21500-001-000D] и соглашением о неоказании помощи в рамках сотрудничества (№ 58-5062-2-016).
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| Алюминиевая фольга | Набережная | 7106BW | 18 дюймов × 1000 футов; используется для защиты светочувствительных окрашивающих растворов от света |
| Дигидрат хлорида кальция, мин. 99% | Sigma Life Science | C7902-500G | CAS № 10035-04-8; реагент для метода Макдугалла’буфер S |
| Программное обеспечение камеры | Nikon | NIS-Elements AR 5.42.04 | 64-битное программное обеспечение для визуализации, используемое для получения и анализа изображений |
| Газ диоксид углерода | Matheson | UN1013 | Технический класс; используется для поддержания аноксических условий во время подготовки и инкубации |
| Циркуляционный водяной термостат | Точность | — | Циркуляционный водяной термостат с регулируемой температурой, используемый для поддержания образцов при 39 °C |
| Стандарт стебля кукурузы | Университет Миннесоты | НД | Собрано осенью 2023 года в Сент-Поле, штат Миннесота, США; измельчено до 1 мм и использовано в качестве микробного субстрата |
| Покрывное стекло | Thermo Scientific | 3419 | 24 мм × 30 мм, толщина № 1.5, 1 унция |
| Цветовая микроскопная камера Digital Sight 10 с полнокадровым CMOS-сенсором FX | Nikon | MQA20000 | Цифровая цветная камера, используемая для получения микроскопических изображений в светлом поле |
| Диссекционный микроскоп | Nikon | SMZ18 | Стереомикроскоп, используемый для ориентации и позиционирования поперечных срезов стебля |
| Двусторонняя клейкая лента | Двусторонняя виниловая офисная лента SelloTape | 4270 | 2 мм × 53 м; используется для закрепления поперечных срезов стебля на предметных стеклах |
| Электронные весы | И | GH-202 | Аналитические весы с дискретностью четыре десятичных знака |
| Колба Эрленмейера (125 мл) | Kimax | 25600 | колба объемом 125 мл; совместима с пробкой № 5 |
| Коническая колба Эрленмейера (25 мл) | Pyrex | 4980 | колба объемом 25 мл; совместима с пробкой № 0 |
| Этанол (200 proof) | Fisher Scientific | 04-355-720 | Абсолютный этанол, используемый для приготовления окрашивающих растворов и промывки перед окрашиванием |
| Жесткая теплоизоляция из экструдированного пенополистирола | Owens Corning | 1407788 | 1 дюйм × 2 фута × пенопластовая плита толщиной 2 фута, R-5, 15 PSI; используется для поддержки междоузлий стебля во время секционирования |
| Пинцет | Fisher Scientific | 10-316A | Лабораторный пинцет, используемый для работы с сегментами стебля, предметными стеклами и закрепленными срезами |
| Предметные стекла | FisherBrand | 125503 | 25 мм × 75 мм × 1 мм; используется для закрепления поперечных срезов стебля |
| Круглодонная колба (6 л) | Pyrex | CLS43205L-4EA | стеклянная колба объемом 6 л, используемая для приготовления или работы с большими объемами растворов |
| Глицерин, жидкий, лабораторной чистоты | Fisher Science Education | 525342C | CAS № 56-81-5; глицерин, используемый в смолах для заключения препаратов и растворах для хранения |
| Двуслойная марля 50-й плотности | Магазин JINIOHEE | B0FL27KXRN | 100% хлопок, отбеленный белый; используется для фильтрации содержимого и жидкости рубца |
| Мерный цилиндр (10 мл) | Pyrex | 700024 | мерный цилиндр на 10 мл, используемый для измерения объемов жидкостей |
| Соляная кислота | Fisher | A1445-500 | CAS № 7647-01-0; используется совместно с флорглюцинолом для приготовления реактива Виснера |
| Промышленный суперперманентный маркер | маркер Sharpie | 13601 | Тонкий наконечник; используется для маркировки пробирок для инкубации водостойкими знаками |
| Гидрат гидрохлорида L-цистеина | Sigma-Aldrich | C121800-10G | CAS № 345909-32-2; восстановитель, используемый при приготовлении инкубационного раствора |
| Безворсовые салфетки | Kimberly-Clark | 34155 | 4,5 дюйма × 8,5 дюймов; используется для удаления излишков жидкости с предметных стекол без оставления ворсинок |
| Низкопрофильный нож микротома | Leica 819 | 63065-LP | Сменное низкопрофильное лезвие, используемое для подготовки однородных поперечных срезов стеблей |
| Сульфат магния гептагидрат | Fisher Chemical | M80-500 | CAS № 10034-99-8; реагент для метода Макдугалла’буфер s |
| Магнитный перемешиватель (якорь) | Fisher Scientific | 03-411-783 | 76 мм × 12 мм; используется для перемешивания буфера и инокуляционных растворов |
| Адресные этикетки для рассылки | Эвери | 5167 | 1/2 дюйма × 1 3/4 дюйма; используется для идентификации образцов и предметных стекол |
| Кисть для рисования | Лоу-Корнелл | — | Серия 7000, круглая кисть № 3; тонкая кисть используется для переноса и манипулирования поперечными срезами стебля |
| Чашки Петри с крышками | Лабораторная посуда Becton Dickinson | 81731119 | 60 мм × 15 мм; используется для временного хранения поперечных срезов стебля в ультрачистой воде |
| Флорглюцинол, 1,3,5-тригидроксибензол | Sigma-Aldrich | P3502-25G | CAS № 108-73-6; реагент, используемый для приготовления реактива Виснера |
| Пипетка (100 μL) | Gilson | P 1000; 767547M | Дозирующая пипетка с регулируемым объемом, используемая для внесения окрашивающих растворов |
| Пластиковая универсальная воронка | Nalgene | 10-437-23E | 150 мм; используется для переноса реагентов и фильтрации |
| Полипропиленовый стакан (4 л) | Nalgene | 1201-4000 | Химически стойкий стакан объемом 4 л, используемый для приготовления и перемешивания инокуляционных растворов |
| Хлорид калия | Fisher Chemical | P217-500 | CAS № 7447-40-7; реагент для метода Макдугалла’буфер S |
| Лезвия | Персона | 66-0089 | толщиной 0,009 дюйма; используется для ручной обрезки материала стебля |
| Рутениевый красный, аммониат рутения оксихлорида | Sigma | R-2751 | CAS № 11103-72-3; гистологический краситель, используемый для визуализации пектиновых веществ |
| Ножницы | Fiskars | 1063071 | Ножницы общего назначения, используемые для разрезания ленты, пенопласта и других расходных материалов |
| Конические центрифужные пробирки с завинчивающимися крышками (50 мл) | Corning | 430828 | Полипропилен, непирогенный; используется для размещения образцов, инкубации, промывки и хранения |
| Слайсер-микротом (Sledge microtome) | Leica | 2000R | Скользящий микротом (микротом-салазки), используемый для подготовки 100 μm—толстые поперечные срезы стебля |
| Бикарбонат натрия, квалификации ACS | Fisher Chemical | S233-3 | CAS № 144-55-8; реагент для метода Макдугалла’буфер S |
| Хлорид натрия | Fisher Chemical | — | CAS № 7647-14-5; реагент для метода Макдугалла’буфер S |
| Гидроксид натрия | Fisher Chemical | S318-500 | CAS № 1310-73-2; используется при приготовлении восстановителя |
| безводный дигидрофосфат натрия (Na2HPO4) | Sigma Aldrich | S-9763 | CAS 7558-79-4 |
| Сульфид натрия безводный, ACS, мин. 98,0% | Oakwood Chemicals | 245960 | CAS № 1313-84-4; восстановитель, используемый при приготовлении инкубационного раствора |
| Лабораторная ложка-шпатель Spoonula | Fisher Scientific | 14-375-10 | Лабораторный шпатель, используемый для переноса порошкообразных реагентов |
| Магнитная мешалка | Thermolyne от Sybron | 7200 | Магнитная мешалка, используемая для перемешивания буферных и инокуляционных растворов |
| Шприц (60 мл) с иглой широкого сечения | Monoject | 935401028 | шприц объемом 60 мл с иглой большого диаметра, используемый для внесения инокуляционного раствора |
| Штативы для пробирок | Thermo Scientific | 14-809-44 | Штативы, используемые для организации и поддержки инкубационных пробирок объемом 50 мл |
| Термометр | FisherBrand | 13201663 | Лабораторный термометр, используемый для проверки температуры раствора и водяной бани |
| Вертикальный микроскоп | Nikon | Eclipse Ni | Вертикальный светлопольный микроскоп, используемый для визуализации и получения изображений окрашенных поперечных срезов стебля |
| Вспомогательный насос | Little Giant Pump Co. | 502203 | Модель 2E-38N; 115 В перем. тока, 60 Гц, 1,7 А; используется для циркуляции воды и поддержания равномерной температуры в ванне |
| Взвешивающая бумага | Научные продукты VWR | 12578-165 | Одноразовая весовая бумага, используемая для взвешивания и переноса твердых реагентов и субстрата из стеблей кукурузы |
Ссылки
- Cosgrove DJ. Growth of the plant cell wall. Nature Reviews Molecular Cell Biology. 2005;6(11):850-861.
- Moore KJ, Jung H-JG. Lignin and fiber digestion. Journal of Range Management. 2001;54(4):420-430.
- Barros J, Serk H, Granlund I, Pesquet E. The cell biology of lignification in higher plants. Annals of Botany. 2015;115(7):1053-1074.
- Jung HG, Engels FM. Alfalfa stem tissues: cell wall deposition, composition, and degradability. Crop Science. 2002;42(2):524-534.
- Jung HG, Lamb JFS. Stem morphological and cell wall traits associated with divergent in vitro neutral detergent fiber digestibility in alfalfa clones. Crop Science. 2006;46(5):2054-2061.
- Engels FM, Jung HG. Alfalfa stem tissues: cell-wall development and lignification. Annals of Botany. 1998;82(5):561-568.
- Akin DE. Section to slide technique for study of forage anatomy and digestion. Crop Science. 1982;22(2):444-446.
- Jung HG, Deetz DA. Cell wall lignification and degradability. In: Jung HG, Buxton DR, Hatfield RD, Ralph J, eds. Forage Cell Wall Structure and Digestibility. American Society of Agronomy, Crop Science Society of America, Soil Science Society of America; Madison, WI; 1993:315-346.
- Blaschek L, et al. Cellular and genetic regulation of coniferaldehyde incorporation in lignin of herbaceous and woody plants by quantitative Wiesner staining. Frontiers in Plant Science. 2020;11:109.
- Blaschek L, et al. Different combinations of laccase paralogs nonredundantly control the amount and composition of lignin in specific cell types and cell wall layers in Arabidopsis. The Plant Cell. 2023;35(2):889-909.
- Nevins DJ. Analysis of forage cell wall polysaccharides. In: Jung HG, Buxton DR, Hatfield RD, Ralph J, eds. Forage Cell Wall Structure and Digestibility. American Society of Agronomy, Crop Science Society of America, Soil Science Society of America; Madison, WI; 1993:105-132.
- Xu Z, Heuschele DJ, Lamb JFS, Jung H-JG, Samac DA. Improved forage quality in alfalfa (Medicago sativa L.) via selection for increased stem fiber digestibility. Agronomy. 2023;13(3):770.
- Pradhan Mitra P, Loqué D. Histochemical staining of Arabidopsis thaliana secondary cell wall elements. Journal of Visualized Experiments. 2014;(87):51381.
- De Micco V, Aronne G. Combined histochemistry and autofluorescence for identifying lignin distribution in cell walls. Biotechnic & Histochemistry. 2007;82(4–5):209-216.
- Kraus JE, et al. Astra Blue and Basic Fuchsin double staining of plant materials. Biotechnic & Histochemistry. 1998;73(5):235-243.
- Ursache R, Andersen TG, Marhavý P, Geldner N. A protocol for combining fluorescent proteins with histological stains for diverse cell wall components. The Plant Journal. 2018;93(2):399-412.
- Baldacci-Cresp F, et al. A rapid and quantitative safranin-based fluorescent microscopy method to evaluate cell wall lignification. The Plant Journal. 2020;102(5):1074-1089.
- Casero PJ, Knox JP. The monoclonal antibody JIM5 indicates patterns of pectin deposition in relation to pit fields at the plasma-membrane-face of tomato pericarp cell walls. Protoplasma. 1995;188(1-2):133-137.
- Pesquet E, Cesarino I, Kajita S, Pawlowski K. Physiological roles of lignins – tuning cell wall hygroscopy and biomechanics. New Phytologist. 2025;248(6):2674-2706.
- Jung HG, Engels FM. Alfalfa stem tissues: rate and extent of cell-wall thinning during ruminal degradation. NJAS: Wageningen Journal of Life Sciences. 2001;49(1):3-13.
- Yeung EC. A beginner’s guide to the study of plant structure. Tested Studies for Laboratory Teaching. 1998;19:125-142.
- Jensen, W.A. Botanical Histochemistry: Principles and Practice. Freeman W.H. & Co. San Francisco, CA. (1962).
- Ruzin, SE. Plant Microtechnique and Microscopy. Oxford University Press; New York, NY; 1999.
- Gronwald JW, Bucciarelli B. Comparison of stem morphology and anatomy of two alfalfa clonal lines exhibiting divergent cell wall composition. Journal of the Science of Food and Agriculture. 2013;93(11):2858-2863.
- Dai R, et al. Overexpression MsJAR1 gene increased lateral branches and plant height in alfalfa (Medicago sativa L.). Scientific Reports. 2025;15(1):16956.
Перепечатки и разрешения
Эта статья была опубликована
Видео скоро будет доступно