В данном протоколе описан воспроизводимый метод выделения и культивирования первичных гладкомышечных клеток аорты мыши из грудного и брюшного отделов. Этот метод позволяет получить жизнеспособные клетки, пригодные для исследований сосудистого ремоделирования и биологии аневризм in vitro.
Методическая статья
Выделение и культивирование первичных гладкомышечных клеток аорты мыши для In vitro Исследования, имеющие отношение к ремоделированию сосудов и биологии аневризмы аорты
В этой статье
Краткое содержание
Аннотация
Выделение и культивирование первичных гладкомышечных клеток (ГМК) аорты представляют собой ценный подход к изучению клеточных механизмов, лежащих в основе сосудистых заболеваний, включая аневризмы аорты. В данной статье описывается подробный и оптимизированный протокол выделения и культивирования ГМК аорты мышей из сегментов грудной и брюшной аорты. Текущая процедура включает тщательную диссекцию аорты, удаление окружающих тканей и двухэтапное ферментативное переваривание с использованием коллагеназы, эластазы и соевого ингибитора трипсина с последующей механической диссоциацией и экспансией клеток в определенных условиях культивирования. Особое внимание уделяется этапам, повышающим выход, чистоту и воспроизводимость получения клеток, включая удаление адвентиции и контролируемое время переваривания. С помощью этого подхода можно успешно выделить и экспансировать первичные ГМК, демонстрирующие характерную морфологию и особенности роста. Данный протокол обеспечивает воспроизводимый и адаптируемый метод получения первичных ГМК аорты и служит платформой для исследований in vitro, имеющих значение для изучения ремоделирования сосудов и биологии аневризмы аорты.
Введение
Гладкие мышечные клетки (ГМК) аорты являются важнейшими компонентами сосудистой стенки, обеспечивающими как структурную целостность, так и функциональную регуляцию аорты. В здоровых сосудах ГМК сохраняют сократительный фенотип, характеризующийся экспрессией сократительных белков, таких как α-гладкомышечный актин (α-SMA) и тяжелая цепь миозина гладких мышц (MYH11)1,2,3. Этот фенотип поддерживает сосудистый тонус и сохраняет организацию внеклеточного матрикса. Однако при таких патологических состояниях, как аневризма брюшной аорты (АБА), ГМК подвергаются фенотипической модуляции, переходя в синтетическое и провоспалительное состояние1,2,3. Этот переход сопровождается усилением пролиферации, секрецией цитокинов и выработкой матрикс-деградирующих ферментов, что в конечном итоге способствует ослаблению стенки аорты4,5.
Модели на животных, включая формирование аневризмы аорты, индуцированной ангиотензином II (Ang II), значительно расширили понимание патогенеза ААА1,6,7,8,9,10,11. Тем не менее, эти модели не позволяют точно манипулировать клеточными путями или напрямую наблюдать за специфическими механизмами ГМК. Системы in vitro с использованием первичных ГМК обеспечивают дополнительный подход, позволяя детально исследовать сигнальные пути, регуляцию генов и клеточные ответы в контролируемых условиях12.
Несмотря на их полезность, выделение первичных гладкомышечных клеток (ГМК) аорты мыши является технически сложной задачей. Малый размер аорты мыши, наличие окружающей жировой и соединительной ткани, а также возможность загрязнения фибробластами адвентиции могут снизить чистоту популяции клеток. Кроме того, необходимо тщательно контролировать ферментативное переваривание, чтобы сбалансировать диссоциацию тканей с сохранением жизнеспособности клеток. Вариативность этих этапов часто приводит к противоречивым результатам в различных экспериментах и лабораториях.
Было опубликовано несколько протоколов, описывающих выделение и культивирование первичных гладкомышечных клеток аорты мыши, большинство из которых основаны на полном механическом удалении адвентиции перед ферментативным перевариванием и ориентированы преимущественно на целые аорты или сегменты грудной аорты13,14. Настоящий протокол основывается на этих методах, включая несколько технических усовершенствований, таких как краткий этап ферментативного предварительного переваривания для облегчения разделения адвентициального и медиального слоев перед полной диссоциацией ткани, стандартизированные условия переваривания с периодической бережной механической диссоциацией, а также рабочий процесс для раздельного выделения и культивирования гладкомышечных клеток грудного (THX) и брюшного (ABD) отделов аорты. В совокупности эти улучшения направлены на повышение стабильности и воспроизводимости обработки тканей, облегчая проведение региональных исследований сосудистого ремоделирования и биологии аневризм. Полученные культуры ГМК подходят для широкого спектра последующих применений, включая сайленсинг генов, фармакологические исследования и изучение механизмов, имеющих значение для сосудистого ремоделирования и биологии аневризм. Хотя первичные ГМК, выделенные из здоровых аорт, сами по себе не воспроизводят фенотипы аневризмы, они представляют собой контролируемую систему in vitro для изучения клеточных путей, вовлеченных в развитие аневризмы после направленного экспериментального воздействия.
Протокол
Для процедуры, описанной ниже, использовали взрослых самок мышей линии C57BL/6J в возрасте 8–10 недель с массой тела 18–20 g. На одну изоляцию использовали двух мышей. Все процедуры с животными проводились в соответствии с руководством Институционального комитета по уходу и использованию животных (IACUC) Университета Кентукки и были одобрены согласно протоколу № 2022-4153. Подробные сведения обо всех использованных реагентах и оборудовании приведены в Таблице материалов. Схематический обзор полного процесса изоляции и культивирования представлен на Рисунке 1.
ПРЕДОСТЕРЕЖЕНИЕ: Кетамин и ксилазин являются контролируемыми веществами; их использование, хранение и утилизация должны осуществляться в соответствии с правилами учреждения и действующими нормативными актами. Коллагеназа II типа и эластаза представляют собой протеолитические ферменты, которые могут вызвать раздражение кожи, глаз и дыхательных путей. Трипановый синий является опасным красителем; при работе с ним следует использовать соответствующие средства индивидуальной защиты, избегая контакта с кожей и глазами. Все опасные реагенты следует использовать и утилизировать в соответствии с правилами техники безопасности учреждения и инструкциями производителей.
1. Приготовление реагентов и питательных сред
- В день выделения свежеприготовьте 10 mL раствора для ферментативного переваривания в стерильной конической пробирке объемом 15 mL:
- Добавьте 10 mg коллагеназы II типа (конечная концентрация 1 mg/mL) (см. таблицу материалов).
- Добавьте 10 mg ингибитора трипсина сои (конечная концентрация 1 mg/mL) (см. таблицу материалов).
- Добавьте 71 µL суспензии эластазы (конечная концентрация 0,744 U/mL) (см. таблицу материалов).
- Приготовьте раствор на основе HBSS с кальцием и магнием без фенолового красного (см. таблицу материалов).
- Добавьте 100 µL пенициллина/стрептомицина (1% от конечного объема) (см. таблицу материалов).
- Тщательно перемешайте раствор и подвергните стерилизующей фильтрации через нейлоновый шприцевой фильтр с размером пор 0,2 µm (см. таблицу материалов).
- Приготовьте полную культуральную среду для ГМК (500 mL):
- В качестве базовой среды возьмите 385 mL модифицированной среды Игла в модификации Дульбекко/питательной смеси F-12 (DMEM/F12) без фенолового красного (см. таблицу материалов).
- Добавьте 100 mL сыворотки плода говячьего, очищенной активированным углем/декстраном (20% от конечного объема) (см. таблицу материалов).
- Добавьте 10 mL пенициллина/стрептомицина (2% от конечного объема) (см. таблицу материалов).
- Добавьте 5 mL амфотерицина B (1% от конечного объема) (см. таблицу материалов).
- Профильтруйте среду для стерилизации и храните при 4 °C.
- Перед использованием прогрейте все реагенты до 37 °C.
2. Подготовка к обработке тканей
- Разлейте раствор для ферментативного переваривания равными порциями по 4 лункам (по 2,5 mL в каждой) 6-луночного культурального планшета и предварительно прогрейте в инкубаторе при 37 °C с 5% CO₂ перед обработкой ткани. Две лунки должны быть помечены как «THX» и две как «ABD» для сегментов аорты. Несколько сегментов из одного анатомического региона могут быть обработаны в одной лунке.
- Подготовьте 2 отдельные чашки для культивирования (см. Таблицу материалов), содержащие полную среду для культивирования SMC, и пометьте их THX и ABD.
- Предварительно прогрейте чашки для культивирования со средой в увлажненном инкубаторе.
- Заранее подготовьте 20 mL стерильного HBSS для перфузии сосудов и работы с тканью.
- Подготовьте 2 дополнительные чашки для культивирования, содержащие по 3 mL HBSS в каждой, для последовательной промывки изолированных аорт.
- Подготовьте промаркированные конические пробирки объемом 15 mL (см. Таблицу материалов), содержащие по 5 mL HBSS в каждой, для временного хранения и разделения сегментов аорты THX и ABD.
- Стерилизуйте хирургические инструменты между животными, используя моющее средство, промывая дистиллированной водой, дезинфицируя 70% этанолом и стерилизуя с помощью бисерного стерилизатора (см. Таблицу материалов).
3. Подготовка животных и диссекция аорты
- Проведите анестезию мышей путем внутрибрюшинного (IP) введения кетамина (300 mg/kg) и ксилазина (30 mg/kg) (см. таблицу материалов) в соответствии с протоколом IACUC Университета Кентукки 2022-4153 для терминальных процедур.
- Подтвердите достаточную глубину анестезии по отсутствию рефлекторного ответа на защемление пальца лапы.
- Стерилизуйте операционное поле 70% этанолом.
- При глубокой хирургической анестезии проведите эвтаназию мышей путем обескровливания через пункцию сердца с последующей транскардиальной перфузией HBSS в соответствии с институциональными рекомендациями и рекомендациями AVMA.
- Вскройте грудную полость и выполните пункцию сердца для забора крови.
- Проведите перфузию сосудов через левый желудочек, используя шприц объемом 10 mL с иглой 25G, для медленного введения 10 mL стерильного HBSS. Для эффективного удаления остаточной крови рекомендуется скорость перфузии примерно 0.5 mL/s.
- Осторожно удалите окружающие органы (печень, легкие, селезенку, желудочно-кишечный тракт, почки). Оставьте фрагмент диафрагмы, прикрепленный к аорте.
- Изолируйте аорту от корня аорты до подвздошной бифуркации вместе с сохранной диафрагмой. Диафрагма служит анатомической границей между торакальным (THX) и абдоминальным (ABD) участками (Рисунок 2B).
- Немедленно перенесите аорту в стерильный HBSS (Рисунок 2A).
4. Очистка и сегментация аорты
- Поместите стерильную чашку с культурой, содержащую аорту, под диссекцирующий микроскоп (см. таблицу материалов).
- Осторожно удалите жировую и соединительную ткани с помощью тонкого пинцета (см. таблицу материалов).
- Разделите аорту на сегменты THX и ABD.
ПРИМЕЧАНИЕ: Сегмент THX простирается от области аорты непосредственно над диафрагмой до корня аорты, в то время как сегмент ABD простирается от области аорты непосредственно под диафрагмой до подвздошной бифуркации (Рисунок 2B). - Перенесите очищенные сегменты в отдельные конические пробирки объемом 15 mL со свежим HBSS для дальнейшей обработки.
5. Ферментативное расщепление и изоляция клеток
- Инкубируйте сегменты аорты в ферментативном растворе при 37 °C в течение 8–10 мин.
- Извлеките сегменты аорты из ферментативного раствора.
- Перенесите сегменты в отдельные чашки для культивирования с полной средой для SMC, предназначенные для образцов THX и ABD.
- Удалите адвентициальный слой аорты с помощью грубого и тонкого пинцетов. Полное удаление адвентиции подтверждается тем, что внешняя поверхность аорты становится гладкой и полупрозрачной, без видимых остатков соединительной или жировой ткани (Рисунок 2C).
- Перенесите сегменты аорты в свежий ферментативный раствор и измельчите медиальный слой на мелкие фрагменты непосредственно в растворе (Рисунок 3A).
- Инкубируйте фрагменты ткани при 37 °C в увлажненном инкубаторе с 5% CO₂ в течение 1 ч.
- Проведите осторожную механическую диссоциацию путем пипетирования вверх-вниз примерно 10–15 раз для облегчения высвобождения клеток (Рисунок 3B).
- Повторяйте этап механической диссоциации с интервалом 30–60 мин в течение дальнейшей инкубации до достижения общего времени переваривания 2–3 ч или до получения гомогенной клеточной суспензии.
6. Сбор, промывка, посев и первичное культивирование клеток
- Перенесите раствор для ферментативного переваривания, содержащий диссоциированные клетки, в отдельные конические пробирки объемом 15 mL (см. Таблицу материалов), предназначенные для образцов THX и ABD.
- Промойте каждую лунку для переваривания 5 mL культуральной среды и объедините полученный раствор с соответствующими пробирками.
- Центрифугируйте клеточную суспензию при 400 × g в течение 5 min при комнатной температуре.
- Повторите центрифугирование, если образование осадка недостаточно.
- Удалите супернатант, не задевая клеточный осадок (Рисунок 3C).
- Ресуспендируйте клетки в 5 mL свежей культуральной среды и выполните дополнительный этап промывки с последующим центрифугированием при тех же условиях.
- Удалите супернатант и ресуспендируйте конечный клеточный осадок в соответствующем объеме (обычно 6 mL) полной культуральной среды для SMC.
- Высейте всю клеточную суспензию, полученную из сегмента грудной или брюшной аорты, в две лунки 6-луночного культурального планшета (по 3 mL суспензии на лунку) и инкубируйте при 37 °C в атмосфере 5.0% CO₂. Клетки высевают сразу после изоляции без предварительного подсчета; следовательно, на этом этапе целевая плотность посева не используется.
- Поддерживайте культуры в покое в течение 5–7 дней для обеспечения прикрепления и начальной экспансии клеток.
ТОЧКА ОСТАНОВКИ: После посева культуры можно содержать в инкубаторе в течение 5–7 дней перед переходом к этапам поддержания и экспансии клеток, описанным в Разделе 7.
7. Поддержание и экспансия клеток
- Заменяйте культуральную среду каждые 3–4 дня.
- Регулярно контролируйте морфологию и конфлюэнтность клеток.
- Проводите пассирование клеток при достижении конфлюэнтности примерно 80–90%.
- Аспирируйте культуральную среду и промойте клетки предварительно нагретым фосфатно-солевым буферным раствором (PBS) (см. таблицу материалов).
- Добавьте 0,05% трипсин-ЭДТА и инкубируйте при 37 °C в течение 5–10 мин.
- Приступайте к следующему этапу, когда 80%–90% клеток открепятся.
- Осторожно постучите по культуральной чашке для облегчения открепления клеток.
- Добавьте равный объем полной культуральной среды для нейтрализации трипсина.
- Осторожно доведите суспензию пипеткой, чтобы открепить оставшиеся клетки.
- Перенесите клеточную суспензию в конические пробирки и центрифугируйте при 400 × g в течение 5 мин.
- Удалите супернатант и ресуспендируйте клеточный осадок в свежей культуральной среде.
- Рассейте клетки с коэффициентом расщепления 1:2 (или с требуемой для эксперимента плотностью) и инкубируйте при 37 °C в атмосфере 5% CO₂. Оставьте клетки для прикрепления без воздействия на 24–48 ч.
ПРИМЕЧАНИЕ: Для последующих экспериментов используйте клетки с 3-го по 7-й пассаж (P3–P7), чтобы минимизировать фенотипический дрейф, вызванный культивированием. Клетки после 7-го пассажа более склонны к фенотипическому дрейфу и могут иметь измененную морфологию и функции.
8. Валидация с помощью иммунофлуоресцентного окрашивания на α-SMA
- Культивирование клеток на материале, подходящем для флуоресцентной микроскопии.
- Высейте клетки в 96-луночный планшет с оптическим дном из расчета 15 000 клеток на лунку. Дождитесь достижения желаемой степени конфлюэнтности.
- Подготовка клеток к фиксации
- Аспирируйте культуральную среду из адгезивных клеток. Промойте клетки 3 раза, используя по 200 µL на лунку трис-буферного солевого раствора с 0,1% Tween 20 (TBS-T) в течение 5 мин за каждую промывку, затем удалите раствор с помощью вакуумного аспиратора в биологическом боксе.
- Фиксация клеток
- Добавьте по 200 µL на лунку 4% параформальдегида (PFA) в 1x PBS. Инкубируйте в течение 10–20 мин при комнатной температуре, затем аспирируйте.
- Пермеабилизация
- Добавьте по 200 µL на лунку 0,1% Triton X-100 в 1x PBS. Инкубируйте в течение 10–15 мин при комнатной температуре, затем аспирируйте.
- Блокирование неспецифического связывания
- Промойте клетки 3 раза, используя по 200 µL на лунку TBS-T в течение 5 мин за каждую промывку. Добавьте по 200 µL на лунку 5% бычьего сывороточного альбумина (BSA) в TBS-T.
- Поместите планшет на орбитальный шейкер при скорости примерно 200 об/мин на 1 ч при комнатной температуре.
- Окрашивание первичными антителами
- Приготовьте раствор первичных антител к α-SMA в разведении 1:1 000 в 5% BSA в TBS-T.
- Снимите планшет с орбитального шейкера и аспирируйте блокирующий раствор из лунок, предназначенных для окрашивания на α-SMA. Для контроля только со вторичными антителами пропустите стадию добавления первичных антител и оставьте в лунках 5% BSA в TBS-T.
- Добавьте по 200 µL разведенных первичных антител к α-SMA в экспериментальные лунки. Инкубируйте экспериментальные лунки и лунки контроля только со вторичными антителами в течение ночи при 4 °C на орбитальном шейкере в режиме мягкого перемешивания.
- Окрашивание вторичными антителами
- Приготовьте раствор флуоресцентных вторичных антител в разведении 1:2 500 в TBS-T, содержащем 0,1% Tween 20.
- Снимите планшет с орбитального шейкера и аспирируйте содержимое всех лунок.
- Промойте все лунки 3 раза, используя по 200 µL на лунку TBS-T в течение 5 мин за каждую промывку, затем аспирируйте.
- Добавьте по 200 µL разведенных флуоресцентных вторичных антител во все лунки, включая контроль только со вторичными антителами.
- Защитите планшет от света и инкубируйте на орбитальном шейкере при скорости примерно 200 об/мин в течение 1 ч при комнатной температуре.
- Окрашивание ядер и флуоресцентная визуализация
- Приготовьте раствор Hoechst 33342 в концентрации 2 µg/mL.
- Промойте клетки 3 раза, используя по 200 µL на лунку TBS-T в течение 5 мин за каждую промывку. Добавьте достаточное количество окрашивающего раствора Hoechst 33342, чтобы покрыть клетки, и инкубируйте в течение 10 мин при комнатной температуре в защищенном от света месте.
- Получите флуоресцентные изображения с помощью инвертированного флуоресцентного микроскопа при 20-кратном увеличении для культур THX и ABD, окрашенных на α-SMA, и при 10-кратном увеличении для контролей только со вторичными антителами, используя возбуждение 385 nm для Hoechst 33342 и возбуждение 475 nm для вторичных антител, конъюгированных с флуорофором. Контроли только со вторичными антителами снимали при 10-кратном увеличении, чтобы в поле зрения попало достаточное количество ядер.
- Количественная оценка α-SMA-положительных клеток.
- Определите α-SMA-положительные клетки путем подсчета Hoechst-положительных ядер, ассоциированных с клетками с четким α-SMA-положительным веретеновидным окрашиванием цитоплазмы. Клетки с неоднозначным или неопределенным флуоресцентным сигналом консервативно оценивайте как α-SMA-отрицательные.
- Вычислите процент α-SMA-положительных клеток как отношение количества α-SMA-положительных клеток к общему количеству подсчитанных Hoechst-положительных ядер во всех исследованных микроскопических полях, умноженное на 100.
Результаты
В течение 24–48 ч после изоляции часть клеток начинает прикрепляться к поверхности культуры и распластываться, первоначально имея округлую морфологию. Прикрепление клеток на ранних этапах может быть вариабельным, а культуры могут выглядеть разреженными из-за ограниченного количества жизнеспособных клеток, полученных при первичной изоляции. К 3–5 дню адгезивные клетки постепенно приобретают характерную веретенообразную, вытянутую морфологию, типичную для гладкомышечных клеток (ГМК) сосудов, и начинают пролиферировать, образуя небольшие кластеры. Схематический обзор хода эксперимента, включающий изоляцию аорты, сегментацию, ферментативное переваривание, механическую диссоциацию и посев клеток, представлен на Рисунке 1.
Репрезентативные изображения выделения аорты, анатомического разделения на области THX и ABD, а также удаления адвентициального слоя представлены на рисунке 2. Области THX и ABD аорты различали на основании анатомического расположения относительно диафрагмы, как показано на рисунке 2B. Репрезентативные изображения ферментативного переваривания, механической диссоциации и образования видимого клеточного осадка после центрифугирования представлены на рисунке 3.
Количество и жизнеспособность клеток оценивали на 3-м пассаже с помощью метода исключения трипанового синего (1:1) и автоматического счетчика клеток Countess. Данные были получены из 3 независимых изоляций с использованием в общей сложности 6 мышей (по 2 мыши на изоляцию). В культурах THX среднее количество клеток составляло 5.10 × 10⁵ ± 7.81 × 10⁴ клеток (диапазон 4.20 × 10⁵–5.60 × 10⁵), а жизнеспособность — 66.33 ± 18.18% (диапазон 46–81%). В культурах ABD среднее количество клеток составляло 4.63 × 10⁵ ± 2.31 × 10⁴ клеток (диапазон 4.50 × 10⁵–4.90 × 10⁵), а жизнеспособность — 61.66% ± 12.01% (диапазон 50%–74%) (Таблица 1).
К 5–7 дням культуры обычно достигают примерно 70%–90% конфлюэнтности, образуя плотный и относительно однородный монослой. Клетки обычно ориентируются параллельно друг другу, что отражает их сократительную линию. Между ГМК из сегментов THX и ABD могут наблюдаться различия в скорости пролиферации и плотности клеток, что согласуется с известной региональной гетерогенностью аорты. Репрезентативные изображения морфологии первичных ГМК из сегментов THX и ABD аорты, полученные с помощью фазово-контрастной микроскопии при малом (10x) и большем (20x) увеличении, представлены на Рисунке 4.
ГМК имели характерную удлиненную веретеновидную морфологию, организованное параллельное расположение при слиянии и однородный характер роста, тогда как фибробластоподобные клетки обычно имеют более плоскую, неправильную морфологию с менее организованной ориентацией и гетерогенным распластыванием. Эти морфологические характеристики и особенности роста обеспечивают практический и воспроизводимый подход к идентификации популяций ГМК в первичной культуре при отсутствии молекулярного подтверждения. Об успешном выделении свидетельствуют раннее прикрепление клеток в течение 24–48 h, постепенное приобретение веретеновидной морфологии и формирование слитного монослоя к 5–7 дням. При более высокой степени слияния клетки обычно выстраиваются в параллельные ряды, что соответствует фенотипу гладких мышц. Субоптимальные результаты могут включать плохое прикрепление клеток, низкий выход клеток или наличие плоских клеток неправильной формы, что может указывать на неполное переваривание, чрезмерное воздействие ферментов или контаминацию популяциями клеток, не относящимися к гладким мышцам.
Стабильная жизнеспособность клеток и минимальное загрязнение фибробластоподобными клетками дополнительно подтверждают успешное выделение. Для дальнейшей валидации идентичности ГМК репрезентативные первичные культуры подвергли иммуноокрашиванию на α-SMA (Рисунок 5) с использованием процедуры, описанной в разделе 8. В культурах THX и ABD наблюдался характерный филаментозный паттерн окрашивания α-SMA, ожидаемый для сосудистых ГМК. Количественный анализ четырех микроскопических полей выявил 69 α-SMA-положительных клеток среди 72 оцененных Hoechst-положительных клеток, что соответствует общей положительной экспрессии α-SMA 95.8% (95% ДИ, 88.5%–98.9%). В частности, α-SMA-положительными оказались 20/20 клеток THX и 49/52 клеток ABD. На Рисунке 5 представлены репрезентативные поля из числа оцененных.
На ранних пассажах клетки сохраняют стабильную морфологию и пролиферативную способность. Однако при длительном культивировании в клетках может постепенно проявляться фенотипическая модуляция, выражающаяся в усиленном распластывании, нарушении ориентации и изменении характера роста.
В этих условиях первичные культуры ГМК пригодны для последующего применения, включая нокдаун генов, фармакологическую обработку и изучение механизмов путей, участвующих в сосудистом ремоделировании и развитии аневризмы аорты.
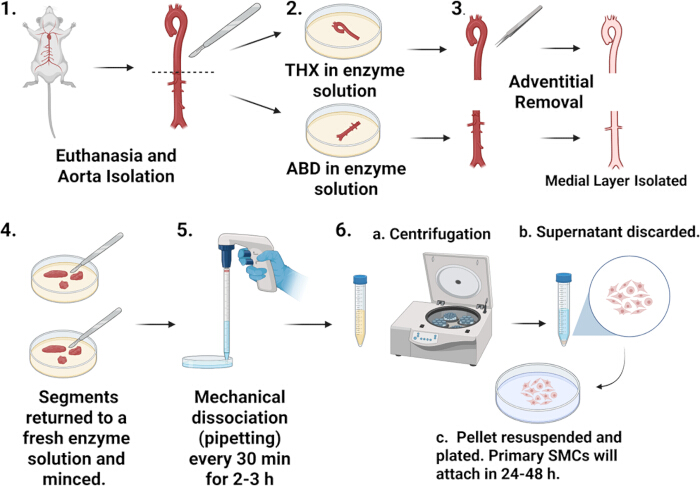
Рисунок 1: Схематический обзор рабочего процесса. Схематическое представление основного процесса изоляции гладкомышечных клеток аорты мыши. Панель 1 демонстрирует эвтаназию и изоляцию аорты. Панель 2 демонстрирует разделение сегментов аорты THX и ABD и их помещение в раствор для ферментативного переваривания. Панель 3 демонстрирует удаление адвентиции и изоляцию медиального слоя. Панель 4 демонстрирует перенос сегментов ткани в свежий раствор фермента и измельчение. Панель 5 демонстрирует механическую диссоциацию путем пипетирования каждые 30 min в течение 2–3 h. Панель 6 демонстрирует сбор и посев клеток, включая 6a центрифугирование, 6b удаление супернатанта и 6c ресуспендирование осадка и посев. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
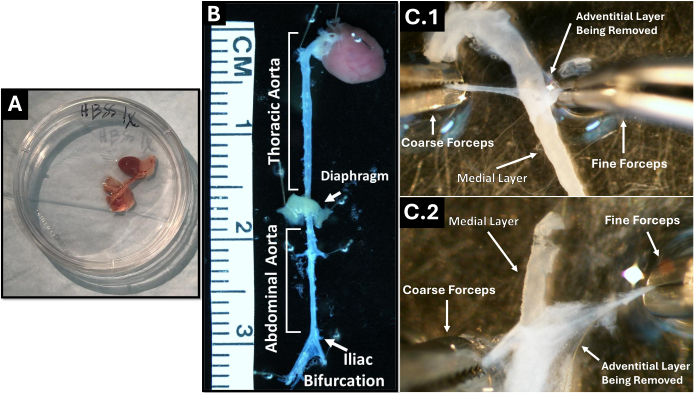
Рисунок 2: Изоляция и подготовка сегментов аорты мыши. (A) Изолированная аорта целиком, помещенная в культуральную чашку. (B) Очищенная аорта с анатомическими ориентирами, указывающими на области THX и ABD, включая диафрагму и подвздошную бифуркацию. (C) Репрезентативные изображения удаления адвентиции из сегментов THX (сверху) и ABD (снизу) с помощью тонкого и грубого пинцетов, что обнажает нижележащий медиальный слой, критически важный для изоляции гладкомышечных клеток. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
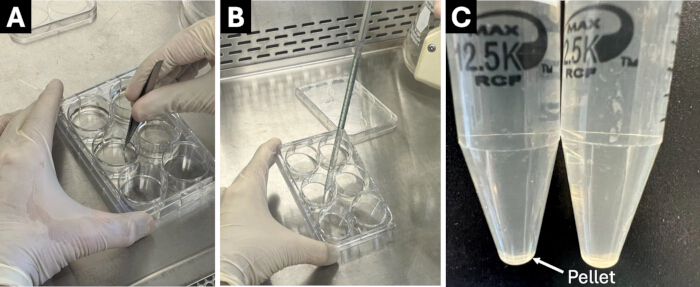
Рисунок 3: Ферментативное переваривание и механическая диссоциация ткани аорты. (A) После удаления адвентициального слоя медиальный слой переносят в свежий раствор фермента и измельчают маленькими ножницами. (B) Пример механической диссоциации фрагментов аорты путем осторожного пипетирования. (C) После ферментативного переваривания и центрифугирования наблюдается видимый клеточный осадок. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
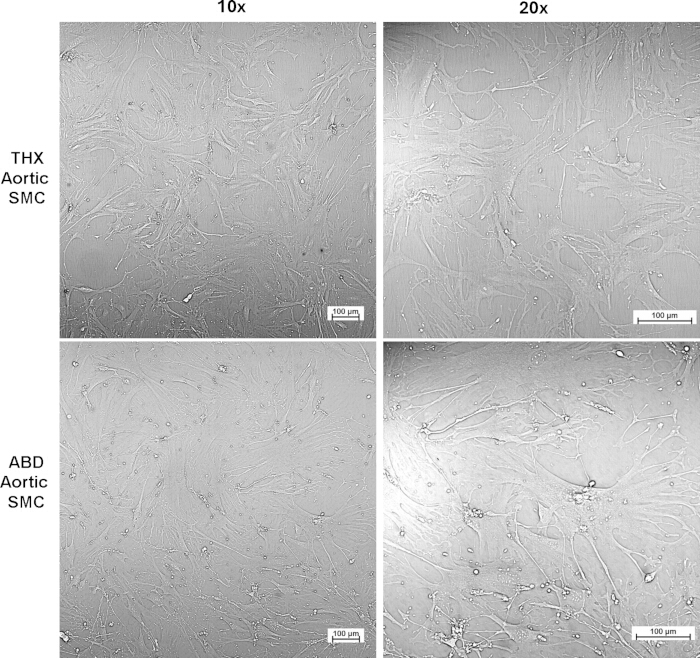
Рисунок 4: Репрезентативная морфология первичных гладкомышечных клеток (ГМК) аорты мыши. Первичные ГМК, выделенные из сегментов грудной и брюшной аорты, культивировали в стандартных условиях; изображения получены на 4-м пассаже. Представлены репрезентативные фазово-контрастные изображения при малом (10x) и большем (20x) увеличении. Клетки демонстрируют характерную веретеновидную, вытянутую морфологию и ориентацию, соответствующую сократительному фенотипу ГМК. Между ГМК, полученными из грудной (THX) и брюшной (ABD) аорты, могут наблюдаться различия в плотности и организации клеток, что отражает региональную гетерогенность. Масштабные отрезки = 100 µm. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
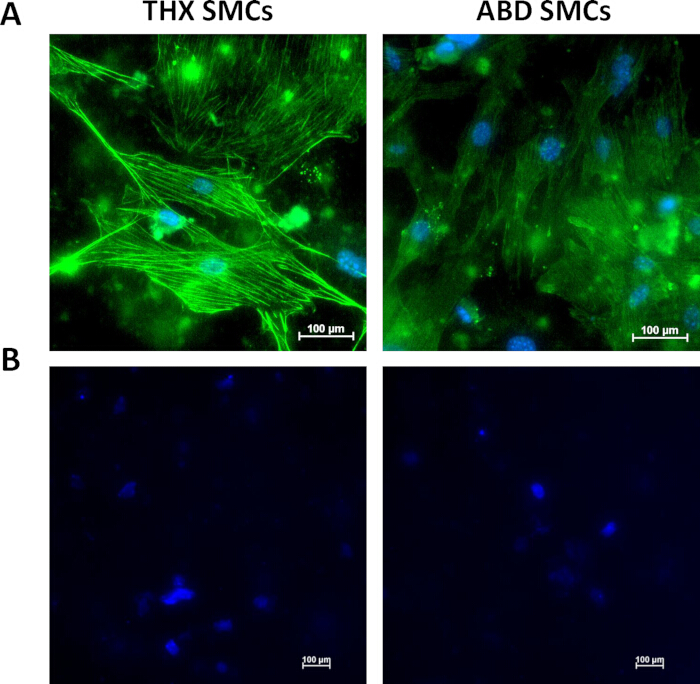
Рисунок 5: Валидация первичных гладкомышечных клеток (ГМК) аорты мыши методом иммунофлуоресценции. (A) Репрезентативные изображения иммунофлуоресценции первичных ГМК, выделенных из грудной аорты (THX, слева) и брюшной аорты (ABD, справа) и окрашенных на α-SMA (зеленый). Ядра были контрастированы красителем Hoechst 33342 (синий). Изображения получены при 20-кратном увеличении. (B) Репрезентативные контрольные изображения первичных ГМК из THX (слева) и ABD (справа), обработанных только вторичными антителами без использования первичных антител к α-SMA и контрастированных красителем Hoechst 33342 (синий). Изображения получены при 10-кратном увеличении. Количественный анализ четырех микроскопических полей показал, что 69/72 клетки являются α-SMA-положительными (95,8%). Масштабный отрезок = 100 µm. Нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
| Подсчет количества и определение жизнеспособности первичных культур гладкомышечных клеток аорты мыши | |||
| Сегмент аорты | Независимые изоляции, n | Количество клеток (среднее значение) ± СО)* | Жизнеспособность клеток (среднее значение ± СО)† |
| THX | 3 | 5,10 x 10⁵ ± 7,81 x 10⁴ клетки | 66.33 ± 18.18 % |
| АБД | 3 | 4,63 x 10⁵ ± 2,31 x 10⁴ клетки | 61.66 ± 12.01 % |
| Подсчет количества клеток проводили на 3-м пассаже с использованием 3 независимых изоляций. | |||
| †Количество и жизнеспособность клеток определяли методом исключения трипанового синего в соотношении 1:1 с помощью автоматического счетчика клеток Countess. | |||
Таблица 1: Количество и жизнеспособность первичных культур гладкомышечных клеток аорты мыши
| Этап | Проблема | Возможная причина | Рекомендуемое решение |
| Препарирование аорты | Низкий выход клеток | Неполное извлечение аорты или повреждение ткани при препарировании | Обеспечьте полную изоляцию от корня аорты до бифуркации подвздошных артерий; работайте с тканью осторожно, чтобы избежать повреждений |
| Очистка аорты | Контаминация фибробластами | Неполное удаление адвентиции | Тщательно удалите адвентицию после первичного переваривания; это критически важно для чистоты популяции гладкомышечных клеток (СМК) |
| Первичное переваривание | Трудности с удалением адвентиции | Недостаточное ферментативное размягчение | Обеспечьте надлежащую инкубацию (8-10 min) перед попыткой механического удаления |
| Ферментативное переваривание | Низкий выход клеток | Недостаточное переваривание ткани | Немного увеличьте время переваривания или частоту механической диссоциации |
| Ферментативное переваривание | Низкая жизнеспособность клеток | Избыточное переваривание или слишком длительное воздействие фермента | Сократите время переваривания и избегайте длительной инкубации |
| Механическая диссоциация | Плохое высвобождение клеток | Недостаточное пипетирование | Проводите осторожное, но многократное пипетирование каждые 30-60 min |
| Адгезия клеток | Плохое прикрепление к планшету | Повреждение клеток или холодная среда | Используйте предварительно подогретую среду и минимизируйте стресс при манипуляциях |
| Ранний этап культивирования | Отсутствие роста клеток | Низкая жизнеспособность или контаминация | Проверьте условия переваривания и стерильность; при необходимости повторите изоляцию |
| Морфология клеток | Отсутствие веретеновидной формы (сохраняются округлые/плоские клетки) | Контаминация или фенотипический дрифт | Проверьте полноту удаления адвентиции; избегайте избыточного разрастания и длительного культивирования |
| Рост клеток | Медленная пролиферация | Субоптимальная концентрация сыворотки | Используйте 20% FBS на раннем этапе экспансии |
| Конфлюэнтность | Переросшие клетки трудно пассировать | Запоздалое разделение (сплиттинг) | Проводите пассирование клеток при 80-90% конфлюэнтности |
| Пассирование | Плохое открепление | Слишком высокая конфлюэнтность или недостаточная трипсинизация | Немного увеличьте время воздействия трипсина и помогите откреплению механически |
| Длительное культивирование | Потеря фенотипа СМК | Высокий номер пассажа или длительное культивирование | Используйте клетки в диапазоне 3-7 пассажей |
| Воспроизводимость | Вариабельность между изоляциями | Различия в технике или биологическая вариабельность | Стандартизируйте приготовление фермента, временные интервалы и методы работы во всех экспериментах |
Таблица 2: Руководство по устранению неполадок при выделении и культивировании первичных гладкомышечных клеток аорты мыши. Обзор распространенных технических проблем, возникающих при выделении, переваривании и культивировании первичных гладкомышечных клеток аорты мыши, включая возможные причины и рекомендуемые способы их решения для повышения воспроизводимости.
Обсуждение
В данном протоколе представлен надежный и воспроизводимый метод выделения и культивирования первичных гладкомышечных клеток (ГМК) аорты мыши для исследований in vitro. Помимо технической ценности, этот подход крайне актуален для изучения механизмов, лежащих в основе сосудистого ремоделирования и развития аневризмы аорты. Учитывая установленную роль ренин-ангиотензиновой системы (РАС) и Ang II в воспалении сосудов и формировании аневризмы15,16, выделение первичных ГМК аорты представляет собой ценный подход для изучения этих путей на клеточном уровне.
Ключевым фактором успеха является тщательное удаление адвентициальной ткани. Адвентиция содержит фибробласты и другие непопуляции гладкомышечных клеток (ГМК), которые могут опередить ГМК в культуре при недостаточном удалении. Короткий начальный этап ферментативного переваривания облегчает механическое отделение адвентиции от медиального слоя, что позволяет провести более точную диссекцию. Неэффективное выполнение этого этапа является одной из наиболее частых причин контаминации и вариабельности в протоколах выделения ГМК.
Условия ферментативного переваривания также должны быть тщательно оптимизированы. Комбинация коллагеназы II типа, эластазы и соевого ингибитора трипсина обеспечивает эффективный распад компонентов внеклеточного матрикса при сохранении жизнеспособности клеток. Однако процесс переваривания требует строгого контроля. Недостаточное переваривание приводит к неполной диссоциации ткани и снижению выхода клеток, в то время как чрезмерное переваривание может повредить клетки, нарушить их адгезию и снизить жизнеспособность. Поэтому механическая диссоциация путем осторожного многократного пипетирования является важным дополнительным этапом, способствующим высвобождению клеток при минимизации избыточного воздействия ферментов. Совокупно эти этапы подчеркивают важность баланса между ферментативной и механической обработкой для оптимизации как выхода, так и жизнеспособности клеток. Соблюдение единообразного времени переваривания, способов обращения с тканью и методов механической диссоциации на протяжении всей процедуры также имеет важное значение для повышения воспроизводимости результатов между отдельными изоляциями.
Условия культивирования играют центральную роль в поддержании фенотипа и функции гладкомышечных клеток (ГМК). Среды с высоким содержанием сыворотки (20% фетальной бычьей сыворотки) способствуют первоначальному прикреплению и экспансии первичных клеток после выделения. Для снижения вариабельности, вызванной гормонами и липидными компонентами, присутствующими в стандартных препаратах сыворотки, использовали сыворотку, обработанную активированным углем и декстраном. Однако длительное воздействие высокого содержания сыворотки или продолжительное культивирование могут способствовать фенотипическому дрейфу в сторону синтетического или фибробластоподобного состояния. Чтобы минимизировать эти эффекты, рекомендуется использовать клетки на ранних или средних пассажах (P3–P7) и избегать условий избыточного слияния (оверконфлюэнтности), которые могут изменить морфологию и снизить пролиферативную способность.
Морфология изолированных клеток служит важным первичным показателем качества культуры. Здоровые гладкомышечные клетки (ГМК) характеризуются типичной веретеновидной вытянутой морфологией и при более высокой плотности выстраиваются в параллельные ряды. Отклонения от этой морфологии, включая уплощенные клетки или клетки неправильной формы, могут указывать на контаминацию, субоптимальные условия культивирования или фенотипический дрейф. Морфологические признаки, свидетельствующие о фенотипическом переключении из сократительного в синтетического состояние, включают повышенное распластывание клеток, уменьшение количества веретеновидных клеток, потерю параллельного расположения и более гетерогенный характер роста.
Хотя морфологическая оценка является информативной, ее недостаточно для окончательного определения фенотипа ГМК, и ее следует дополнить молекулярной валидацией с использованием таких маркеров, как α-SMA и MYH11, в зависимости от целей исследования. В настоящем исследовании иммунофлуоресцентное окрашивание на α-SMA подтвердило идентичность изолированных клеток и продемонстрировало высокую долю α-SMA-положительных клеток как в культурах THX, так и в культурах ABD (Рисунок 5). Ключевым преимуществом данного протокола является возможность выделения ГМК из различных отделов аорты, включая сегменты THX и ABD. Эти области обладают внутренними биологическими различиями, включая вариации в составе внеклеточного матрикса, эмбриологическое происхождение и предрасположенность к заболеваниям. Выделение регион-специфических ГМК позволяет исследовать пространственную гетерогенность в биологии сосудов и может дать представление о специфической для каждого региона уязвимости к формированию аневризмы16,17,18. Существующие методы выделения VSMC аорты мыши используют либо ночное переваривание коллагеназой13, либо ферментативное переваривание в течение 4–6 ч (при этом сообщалось, что 5–6 ч обеспечивают лучший выход клеток14), по сравнению с 2–3 ч переваривания после 8–10 мин предварительного переваривания, используемых в настоящем протоколе, при общем времени обработки примерно 4 ч от эвтаназии до посева клеток. Adhikari et al. сообщили о получении 25–35 × 103 жизнеспособных клеток/мл после 5 дней культивирования и 97%–99% положительных результатов на sm22α и Acta2, в то время как настоящий протокол позволил получить количество клеток на 3-м пассаже 5.10 × 10⁵ ± 7.81 × 10⁴ клеток для THX и 4.63 × 10⁵ ± 2.31 × 10⁴ клеток для ABD, при общей положительности по α-SMA 95.8%. Hubert et al. использовали ночное переваривание, но не сообщили количественный выход клеток или процент чистоты13,14. Напротив, метод эксплантации McMurray et al. потребовал среднего лаг-периода примерно 7.6 дней до начала роста ГМК из нормальных эксплантатов аорты, при этом >90% эксплантатов показали рост к 10-му дню и >95% к 12-му дню, тогда как настоящий ферментативный метод позволяет проводить прямой посев изолированных клеток в день выделения18. Настоящий протокол сочетает в себе краткий этап предварительного переваривания, облегчающий удаление адвентиции, со стандартизированными условиями переваривания и механической диссоциации для обеспечения стабильной обработки тканей и восстановления клеток. В сочетании с регион-специфическим выделением ГМК из THX и ABD, сокращенное время обработки и количественная характеристика восстановления клеток и положительности по α-SMA обеспечивают практические преимущества для воспроизводимых исследований in vitro.
Данный метод хорошо подходит для механистических исследований, включающих генетические и фармакологические манипуляции. Первичные культуры ГМК могут быть использованы для подходов по сайленсингу генов, включая нокдаун с помощью siRNA, а также для исследований оверэкспрессии и воздействия лекарственных препаратов. Эти подходы позволяют напрямую изучать сигнальные пути, участвующие в фенотипическом переключении ГМК, воспалении и ремоделировании внеклеточного матрикса — процессах, имеющих центральное значение для развития и прогрессирования аневризмы аорты1,5.
Важно учитывать ограничения данного протокола в контексте моделирования заболеваний. Гладкие мышцы в этом протоколе изолируются из здоровых аорт мышей и, следовательно, изначально не проявляют фенотипов, связанных с аневризмой. Таким образом, для воспроизведения процессов, имеющих значение при заболевании, таких как воспалительная активация, ремоделирование внеклеточного матрикса и фенотипическое переключение, требуются дополнительные экспериментальные подходы, включая фармакологическую стимуляцию, генетические манипуляции или интеграцию с моделями in vivo. Помимо описанных выше соображений, данный протокол имеет несколько ограничений. Из-за биологических различий между животными или незначительных отклонений в технике выполнения между отдельными изоляциями может наблюдаться вариабельность выхода клеток и кинетики их роста. Кроме того, изоляция на основе ферментативного переваривания может влиять на экспрессию рецепторов клеточной поверхности или сигнальные пути, что следует учитывать при интерпретации последующих функциональных исследований. Первичные SMC также постепенно теряют свой сократительный фенотип с увеличением номера пассажа, что может повлиять на результаты экспериментов. Тщательная стандартизация процедур и использование клеток ранних пассажей помогают минимизировать эти ограничения. Общие технические трудности и рекомендуемые способы их решения для данного протокола обобщены в Таблице 2.
Таким образом, данный протокол представляет собой надежную и адаптируемую основу для выделения и культивирования первичных гладкомышечных клеток (ГМК) аорты мыши. В сочетании с моделями in vivo этот подход позволяет проводить всестороннее исследование клеточных и молекулярных механизмов, лежащих в основе сосудистого ремоделирования и патогенеза аневризмы аорты.
Раскрытие информации
Авторы заявляют, что у них нет конфликта интересов. Для редактирования языка и исправления грамматики использовался сервис Grammarly; все научное содержание и интерпретация были подготовлены авторами.
Благодарности
Финансовая поддержка была частично предоставлена медицинским колледжем Университета Кентукки. Графический абстракт (Рисунок 1) был создан с помощью BioRender.com в соответствии с лицензией на академические публикации, номер соглашения о публикации GI2A3W9TY8.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| Нейлоновые шприцевые фильтры 0.2 μm | VWR | 76439-080 | Стерильная фильтрация |
| Конические пробирки 15 mL | VWR | — | Для переноса аорты после очистки и для сбора клеток |
| Культуральные планшеты на 6 / 12 лунок (необработанные) | Corning | — | Культивирование клеток |
| Конические пробирки 50 mL | VWR | — | Сбор клеток |
| Микропланшет с оптическим дном на 96 лунок | Thermo Fisher Scientific | 165305 | Для валидации ГМК |
| Антитела к α-гладкомышечному актину (моноклональные) | Cell Signaling Technology | 19245S | Для валидации ГМК; рабочий разведение 1:1000 |
| Вторичные антитела Alexa Fluor 488 IgG (поликлональные) | Invitrogen | A-11008 | Для валидации ГМК; рабочий разведение 1:2500 |
| Амфотерицин B | Thermo Fisher Scientific | 15290018 | Противогрибковое средство |
| Бычий сывороточный альбумин | Sigma-Aldrich | A7906 | Для валидации ГМК |
| Инкубатор CO2 (37 °C) | Различные | — | Условия культивирования клеток |
| Коллагеназа II типа | Worthington Biochemical | LS004174 | Для ферментативного переваривания; использовано 260 U/mg |
| Автоматический счетчик клеток Countess | Invitrogen | C10281 | Для подсчета клеток |
| Диссекционный микроскоп | Различные | — | Очистка тканей |
| Среда DMEM/F12 | Thermo Fisher Scientific | 21041-025 | Базовая культуральная среда |
| Эластаза | Worthington Biochemical | LS002279 | Для разрушения матрикса; использовано 4.17 U/mg белка |
| Фетальная бычья сыворотка (обработанная активированным углем/декстраном) | Cytiva (Hyclone) | SH30068.03 | Используется в концентрации 20% для культивирования |
| HBSS с Ca2+ и Mg2+ | Thermo Fisher Scientific | 14025-092 | Используется для буфера переваривания |
| Раствор Hoechst 33342 | BD Pharmingen | 561908 | Для валидации ГМК |
| Стерилизатор для петель (нагревательный) | Fine Science Tools | 18000-45 | Для извлечения аорты |
| Кетамин | Dechra | — | Для анестезии мышей |
| Пенициллин/Стрептомицин | Thermo Fisher Scientific | 15140122 | Антибиотик |
| Фосфатно-солевой буфер (PBS) | Thermo Fisher Scientific | 20012-027 | Промывочный буфер |
| Хлорид натрия | Fisher Scientific | BDH9286 | Для валидации ГМК; рабочая концентрация 150 mM (8.8 g на 1 L) |
| Соевый ингибитор трипсина | Worthington Biochemical | LS003570 | Предотвращает избыточное переваривание |
| Tris-основание | Fisher Scientific | BP152 | Для валидации ГМК; рабочая концентрация 20 mM (2.4 g на 1 L) |
| Triton X-100 | Fisher Scientific | BP151 | Для валидации ГМК; рабочая концентрация 0.1% |
| Краситель трипановый синий | Thermo Fisher Scientific | T10282 | Для подсчета клеток |
| Трипсин-ЭДТА (0.05%) | Thermo Fisher Scientific | 15400054 | Для пассирования |
| Tween 20 | Fisher Scientific | BP337 | Для валидации ГМК; рабочая концентрация 0.1% |
| Ксилазин | Covetrus | 61035 | Для анестезии мышей |
| Дополнительные материалы (при использовании) | |||
| Культуральные флаконы (T25/T75) | Corning | — | Экспансия клеток |
Ссылки
- Ensor M, et al. Nicotine promotes Ang II-induced abdominal aortic aortopathies in female and male mice: role of sex hormones. Clin Sci (Lond). 2025;139(8):411-429.
- Ailawadi G, et al. Smooth muscle phenotypic modulation is an early event in aortic aneurysms. J Thorac Cardiovasc Surg. 2009;138(6):1392-1399.
- Frismantiene A, Philippova M, Erne P, Resink TJ. Smooth muscle cell-driven vascular diseases and molecular mechanisms of VSMC plasticity. Cell Signal. 2018;52:48-64.
- Alsiraj Y, et al. Female mice with an XY sex chromosome complement develop severe angiotensin II-induced abdominal aortic aneurysms. Circulation. 2017;135(4):379-391.
- Thatcher SE, et al. Exogenous 17-β estradiol administration blunts progression of established angiotensin II-induced abdominal aortic aneurysms in female ovariectomized mice. Biol Sex Differ. 2015;6:12.
- Daugherty A, Manning MW, Cassis LA. Angiotensin II promotes atherosclerotic lesions and aneurysms in apolipoprotein E-deficient mice. J Clin Invest. 2000;105(11):1605-1612.
- AlSiraj Y, et al. Monosomy X in female mice influences the regional formation and augments the severity of angiotensin II-induced aortopathies. Arterioscler Thromb Vasc Biol. 2021;41(1):269-283.
- Alsiraj Y, et al. Sex chromosome complement defines diffuse versus focal angiotensin II-induced aortic pathology. Arterioscler Thromb Vasc Biol. 2018;38(1):143-153.
- Alsiraj Y, et al. Therapeutic assessment of combination therapy with a neprilysin inhibitor and angiotensin type 1 receptor antagonist on angiotensin II-induced atherosclerosis, abdominal aortic aneurysms, and hypertension. J Pharmacol Exp Ther. 2021;377(3):326-335.
- AlSiraj Y, et al. Serotonin 3 receptor antagonism reduces angiotensin II-induced abdominal aortic aneurysms: contribution of periaortic fat-derived serotonin. J Pharmacol Exp Ther. 2025;392(2):100533.
- AlSiraj Y et al. Role of adipocyte angiotensinogen or angiotensin type 1A receptors in the development of diet-induced atherosclerosis or angiotensin II-induced abdominal aortic aneurysms. JVS Vasc Sci. 2025;7:100397.
- Alexander MR, Owens GK. Epigenetic control of smooth muscle cell differentiation and phenotypic switching in vascular development and disease. Annu Rev Physiol. 2012;74:13-40.
- Hubert MO, Rodriguez-Vita J, Wiedmann L, Fischer A. Isolation of murine primary aortic smooth muscle cells. Bio Protoc. 2021;11(3):e3907.
- Adhikari N, et al. Guidelines for the isolation and characterization of murine vascular smooth muscle cells. A report from the International Society of Cardiovascular Translational Research. J Cardiovasc Transl Res. 2015;8(3):158-163.
- AlSiraj Y, Woolley C, Thatcher SE, Cassis LA. Sex differences and the role of the renin-angiotensin system in atherosclerosis and abdominal aortic aneurysms. In: Sex Differences in Cardiovascular Physiology and Pathophysiology. Academic Press; 2019:167-184.
- Boese AC, et al. Sex differences in vascular physiology and pathophysiology: estrogen and androgen signaling in health and disease. Am J Physiol Heart Circ Physiol. 2017;313(3):H524-H545.
- Majesky MW. Developmental basis of vascular smooth muscle diversity. Arterioscler Thromb Vasc Biol. 2007;27(6):1248-1258.
- McMurray HF, Parrott DP, Bowyer DE. A standardised method of culturing aortic explants, suitable for the study of factors affecting the phenotypic modulation, migration and proliferation of aortic smooth muscle cells. Atherosclerosis. 1991;86(2-3):227-237.
Перепечатки и разрешения
Эта статья была опубликована
Видео скоро будет доступно