В данном исследовании изучались уровни экспрессии miR-3619-5p в сыворотке крови пациентов с сахарным диабетом 2 типа, а также изучалась регуляторная роль этой молекулы в функции β-клеток поджелудочной железы. Уровень miR-3619-5p снижен при СД2 и она может быть вовлечена в регуляцию функции β-клеток поджелудочной железы путем воздействия на MTA3.
Исследовательская статья
Клиническое значение экспрессии miR-3619-5p у пациентов с сахарным диабетом 2 типа и ее роль в регуляции пролиферации β-клеток поджелудочной железы
В этой статье
Краткое содержание
Аннотация
Основным патологическим признаком сахарного диабета 2 типа (СД2) является дисфункция β-клеток поджелудочной железы; следовательно, идентификация эффективных циркулирующих биомаркеров и молекулярных мишеней, регулирующих гомеостаз β-клеток поджелудочной железы, имеет важное практическое значение. Будучи ключевыми регуляторными молекулами экспрессии генов, микроРНК (miRNAs) играют важную роль в пролиферации, апоптозе и секреции инсулина β-клетками поджелудочной железы. Целью данного исследования является изучение профилей экспрессии и клинической значимости miR-3619-5p в сыворотке крови при СД2, а также выяснение ее регуляторной роли в пролиферации β-клеток поджелудочной железы. Для определения экспрессии miR-3619-5p и MTA3 использовался метод RT-qPCR. Для оценки диагностической эффективности применялись ROC-кривые. Для подтверждения связи «мишень-лиганд» использовались биоинформатический анализ и двухлюциферазовый тест. Пролиферацию клеток измеряли с помощью теста CCK-8, а апоптоз исследовали методом проточной цитометрии. Уровни секреции инсулина измеряли с помощью ELISA. Результаты показали, что экспрессия miR-3619-5p и MTA3 была снижена у пациентов с СД2 и в β-клетках поджелудочной железы. miR-3619-5p может служить биомаркером для диагностики СД2; ее гиперэкспрессия стимулирует пролиферацию клеток, подавляет апоптоз и усиливает секрецию инсулина. miR-3619-5p нацелена на MTA3 и регулирует его, при этом между ними наблюдается значительная положительная корреляция. Миметик miR-3619-5p может нивелировать повреждение функции β-клеток поджелудочной железы, вызванное si-MTA3. Таким образом, экспрессия miR-3619-5p снижена при СД2, и она обладает диагностической ценностью. miR-3619-5p может участвовать в регуляции функции β-клеток поджелудочной железы, воздействуя на MTA3.
Введение
Хроническое метаболическое расстройство — сахарный диабет 2 типа (СД2) — проявляется главным образом инсулинорезистентностью, сопровождающейся прогрессирующей потерей секреторной функции инсулина, и составляет более 80% всех случаев диабета1. Его патогенез сложен и включает сочетание генетических и средовых факторов, а также нарушения клеточной и молекулярной регуляции2,3. Поскольку β-клетки поджелудочной железы являются основными клетками, отвечающими за секрецию инсулина, аномальное снижение их пролиферативной способности является ключевой причиной недостаточной секреции инсулина при СД24. В настоящее время клиническая диагностика СД2 опирается преимущественно на традиционные показатели, такие как уровень глюкозы в крови и гликированный гемоглобин (HbA1c); однако их чувствительность для раннего скрининга и прогнозирования прогрессирования заболевания ограничена5. Существует острая необходимость в выявлении чувствительных, специфических биомаркеров и ключевых регуляторных мишеней для разработки новых стратегий точной диагностики и лечения СД2.
Под воздействием глюкозотоксичности, вызванной длительной гипергликемией, пролиферация β-клеток поджелудочной железы ограничивается, а апоптоз усиливается, что приводит к постепенной утрате глюкозозависимой секреции инсулина; этот процесс является ключевым фактором, определяющим дальнейшее прогрессирование заболевания6,7. МикроРНК (мРНК) участвуют в различных физиологических процессах в клетках8 и оказывают решающее регуляторное воздействие на физиологические процессы, включая пролиферацию клеток островков поджелудочной железы, апоптоз и секрецию инсулина9,10. Многочисленные исследования показали, что различные мРНК аномально экспрессируются при СД2 и тесно связаны с патогенезом заболевания11,12,13. miR-3619-5p участвует в биологических процессах, включая пролиферацию и апоптоз клеток, и текущие исследования этой мРНК сосредоточены преимущественно в области онкологии14,15. Аномальная экспрессия miR-3619-5p наблюдалась в злокачественных опухолях, включая плоскоклеточный рак кожи, рак легких, колоректальный рак и рак желудка, где она регулирует гены-мишени, влияя на пролиферацию, метастазирование и апоптоз опухолевых клеток16,17,18,19. Однако сохраняется явный пробел в исследованиях клинических характеристик экспрессии, клинической значимости и механизмов регуляции функции поджелудочной железы под воздействием miR-3619-5p при СД2.
Являясь основным представителем семейства MTA, MTA3 опосредует белок-белковые взаимодействия и регуляцию транскрипции генов, а также принимает активное участие в ключевых физиологических процессах, включая пролиферацию клеток, апоптоз и метаболизм20. Современные исследования MTA3 сосредоточены преимущественно на онкологии21,22,23, в то время как его роль в метаболических заболеваниях, в частности при СД2, изучена ограниченно. В некоторых работах было обнаружено, что MTA3, как ген, ассоциированный с диабетом, участвует в регуляции фиброза печени, индуцированного гипергликемией24. Это позволяет предположить, что MTA3 может быть вовлечен в прогрессирование СД2; однако вопрос о том, регулируется ли он miR-3619-5p в контексте СД2, еще требует подтверждения.
Резюмируя, существующие исследования miR-3619-5p в основном ограничивались моделями опухолей и воспалительных процессов; профиль его клинической экспрессии при СД2, а также его роль в гомеостазе β-клеток поджелудочной железы и нарушениях метаболизма глюкозы остаются недостаточно изученными. Таким образом, данное исследование направлено на подтверждение целевой связи между miR-3619-5p и MTA3 путем оценки экспрессии и клинической значимости miR-3619-5p в сыворотке крови пациентов с СД2, а также на изучение его регуляторной роли в пролиферации β-клеток поджелудочной железы, что позволит создать новую теоретическую базу для исследования патогенеза СД2, а также для клинической диагностики и лечения.
Протокол
Данное исследование было одобрено Комитетом по медицинской этике Народной больницы Тунчжоубэй (номер одобрения 2024122001). Процедуры, использованные в этом исследовании, соответствуют принципам Хельсинкской декларации. От всех индивидуальных участников, включенных в исследование, было получено информированное согласие. Согласие на публикацию было получено для данных каждого отдельного человека, включенного в исследование.
Объекты исследования
В данной работе ретроспективно были отобраны 102 пациента с СД2, диагноз которым был поставлен в нашей больнице в период с января 2022 г. по июнь 2023 г. Соответствующими критериям включения были участники, у которых диагностировали СД2 (включая уровень глюкозы в крови натощак ≥7.0 mmol/L и уровень глюкозы в крови через 2 ч после еды ≥11.1 mmol/L), которые не получали лечение инсулином или противодиабетическими препаратами нового поколения в течение последних 3 месяцев, не имели тяжелых осложнений со стороны сердца, печени, почек или других органов, не имели в анамнезе злокачественных новообразований, аутоиммунных или инфекционных заболеваний, а также имели полные клинические записи. Из исследования исключались пациенты с сахарным диабетом 1 типа или другими специфическими типами диабета, лица в состоянии стресса вследствие тяжелой инфекции, травмы, хирургического вмешательства или по другим причинам, лица, принимавшие глюкокортикоиды, иммунодепрессанты или аналогичные препараты в течение последних 3 месяцев, а также беременные и кормящие женщины. Также была включена контрольная группа из 80 человек, проходивших плановые медицинские осмотры в нашей больнице в тот же период.
Сбор образцов
Все участники исследования находились натощак в течение минимум 8–12 ч; первым делом с утра было собрано 5 mL венозной крови, которая была распределена по пробиркам EP, не содержащим РНказы, центрифугирована (3000 × g, 10 мин) для отделения сыворотки и сохранена при -80 °C для дальнейшего использования.
Культивирование и обработка клеток
Линию β-клеток островков поджелудочной железы крысы INS-1 культивировали в среде RPMI 1640, содержащей 10% FBS и 1% пенициллина-стрептомицина. Клетки INS-1 культивировали в среде, содержащей 25 mM глюкозы, для создания модели клеточного повреждения, индуцированного высокой концентрацией глюкозы (HG)25. В контрольной группе клетки INS-1 культивировали в среде RPMI 1640 (содержащей 11.1 mM глюкозы).
Трансфекцию проводили с использованием набора для трансфекции с мимиками miR-3619-5p, пустым контролем miRNA (miR-NC), si-MTA3 и пустым контролем (si-NC). Мимик miR-3619-5p, ингибитор miR-3619-5p, siRNA и соответствующие отрицательные контроли были приобретены в компании RiboBio. Концентрация мимика miRNA: 50 nM; концентрация ингибитора miRNA: 100 nM; концентрация siRNA: 50 nM. Последующие эксперименты проводились через 48 h после трансфекции. Соответствующие последовательности представлены в Дополнительной таблице 1.
Количественная полимеразная цепная реакция с обратной транскрипцией (ОТ-кПЦР)
Для экстракции суммарной РНК из сыворотки использовали реагент TRIzol, а для экстракции суммарной РНК из клеток — набор miRNeasy Mini Kit. Для детекции miR-3619-5p проводили обратную транскрипцию с использованием набора для обратной транскрипции; после синтеза кДНК применяли набор для количественного определения миРНК, используя U6 в качестве внутреннего контроля. Для детекции MTA3 проводили обратную транскрипцию в кДНК с помощью набора для обратной транскрипции мРНК, а ОТ-кПЦР выполняли с использованием набора для количественного определения мРНК, используя GAPDH в качестве внутреннего контроля. Изменения экспрессии miR-3619-5p и MTA3 анализировали методом 2-ΔΔCt. Последовательности праймеров представлены в Дополнительной таблице 1.
Двойной люциферазный репортерный анализ (DLR)
Дикий тип (WT) и мутантные (MUT) 3'-UTR MTA3, содержащие сайт связывания miR-3619-5p, были клонированы в вектор pmirGLO. Данный вектор совместно с миметиком miR-3619-5p и ингибитором miR-3619-5p трансфецировали в клетки 293T с использованием реагентов для трансфекции. Контрольные группы трансфекции включали: группу с пустой репортерной плазмидой (Control) и группу с негативным контролем трансфекции miRNA (miR-NC). Через 48 ч измеряли относительную люциферазную активность с помощью двойной люциферазной репортерной системы, используя активность Renilla люциферазы в качестве внутреннего контроля. Каждая группа включала три независимых биологических повтора, каждый из которых состоял из трех технических повторов.
Анализ пролиферации клеток
Рассейте трансфецированные клетки в 96-луночный планшет. После культивирования в течение 0 ч, 24 ч, 48 ч и 72 ч соответственно добавьте в каждую лунку по 10 μL реагента CCK-8, инкубируйте при 37 °C в течение 2 ч и измерьте оптическую плотность при 450 nm с помощью микропланшетного ридера.
Анализ апоптоза
Промойте клетки трижды с использованием PBS, затем ресуспендируйте их в 200 μL связывающего буфера, содержащего 10 μL Annexin V-FITC и 5 μL PI. Инкубируйте в течение 15 min при комнатной температуре в темном месте. Добавьте 300 μL связывающего буфера, после чего немедленно проанализируйте клетки с помощью проточного цитометра для расчета уровня апоптоза.
Иммуноферментный анализ (ELISA)
Трансфицированные клетки высевали в 96-луночный планшет и подвергали голоданию в течение ночи при 37 °C. Культуральную среду заменили раствором, содержащим 25 mM глюкозы, и культивировали клетки в течение 1 h; затем собирали культуральную среду из обработанных клеток INS-1 для измерения секреции инсулина. Клетки INS-1 ресуспендировали в кислотном метаноле, подвергли соникации и собирали супернатант для определения общего содержания инсулина. Использовали набор Rat Insulin ELISA Kit, анализ проводили согласно инструкциям производителя. В анализе используются стандартные образцы, входящие в состав набора, для построения калибровочной кривой; абсолютная концентрация инсулина рассчитывается на основе значений оптической плотности образцов, при этом единицей абсолютной концентрации является μIU/mL. В завершение оценивали секреторную способность инсулина путем нормализации уровней инсулина, измеренных в культуральной среде, относительно общего внутриклеточного содержания инсулина. Данные на статистических графиках представлены как кратность изменения, рассчитанная относительно контрольной группы.
Вестерн-блоттинг
Трансфецированные клетки из каждой группы собирали и обрабатывали лизирующим буфером RIPA. Общую концентрацию белка определяли методом BCA. 50 μg общего белка смешивали с 5× буфером для нанесения проб и кипятили в течение 10 min. После электрофореза в 10% SDS-полиакриламидном геле белки переносили на поливинилиденфторидную мембрану. Мембрану блокировали 5% обезжиренным молоком в течение 1 h; затем добавляли первичные антитела к MTA3 (1:1000) и GAPDH (1:1000) и инкубировали в течение ночи при 4 °C; мембрану промывали буфером TBST, после чего добавляли вторичные антитела (козьи антитела против кроличьих IgG), меченные HRP (1:1000), и инкубировали при комнатной температуре в течение 1 h; визуализацию проводили методом ECL-хемилюминесценции.
Статистический анализ
Количественные данные представлены как среднее значение ± стандартное отклонение. Перед проведением статистического анализа использовали критерий Шапиро–Уилка для проверки нормальности распределения данных и критерий Ливена для оценки гомогенности дисперсий, чтобы определить применимость параметрических тестов. Результаты этих тестов показали, что все количественные данные в данном исследовании имели нормальное распределение и удовлетворяли условию гомогенности дисперсий; следовательно, для статистического анализа применялись параметрические тесты. Для анализа данных двух групп использовали t-критерий для независимых выборок, а для сравнения нескольких групп — однофакторный дисперсионный анализ (ANOVA) с последующим апостериорным тестом Тьюки. Для оценки линейных зависимостей между переменными использовали диаграммы рассеяния. Корреляционный анализ Пирсона применялся в случаях, когда соблюдались условия нормальности и линейности. В корреляционном анализе Пирсона участвовали все 102 добровольца; выбросы не исключались. Скопление точек, наблюдаемое на диаграмме рассеяния, обусловлено перекрытием наблюдений образцов. Все эксперименты включали три повторности, и каждый эксперимент повторяли трижды. Значение p < 0,05 считалось статистически значимым.
Результаты
Сравнение демографических характеристик и клинических метаболических параметров участников исследования
Результаты сравнения показали, что уровни FBG и HbA1c были заметно повышены у пациентов с T2DM (P < 0.001), в то время как по другим параметрам значимых различий выявлено не было (P > 0.05) (Таблица 1).
Экспрессия и клиническое значение miR-3619-5p
Анализ RT-qPCR показал, что экспрессия miR-3619-5p в сыворотке крови пациентов с СД2 была значительно снижена (P < 0.001; Рисунок 1A). Анализ ROC-кривой показал, что AUC для miR-3619-5p при диагностике СД2 составила 0.871 (95% CI: 0.820–0.922) (Рисунок 1B). Кроме того, результаты корреляционного анализа Пирсона, проведенного у 102 пациентов с СД2, продемонстрировали выраженную обратную зависимость экспрессии miR‑3619‑5p от уровней FBG (Рисунок 1C) и HbA1c (Рисунок 1D).
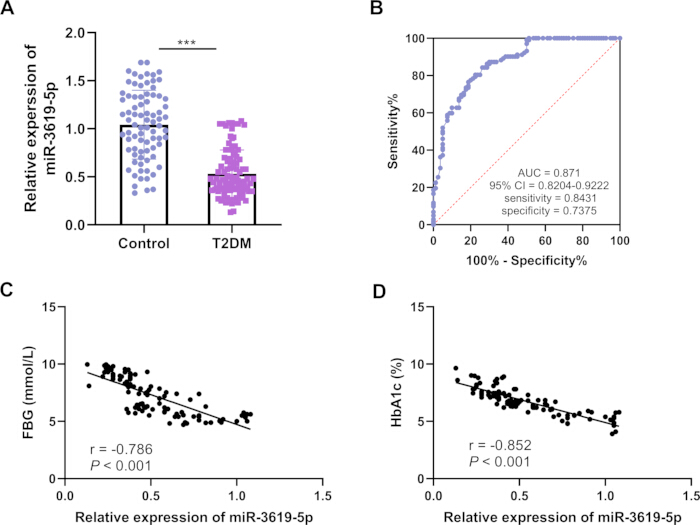
Рисунок 1: Экспрессия и клиническая значимость miR-3619-5p. (A) Анализ экспрессии miR-3619-5p в сыворотке крови пациентов с СД2 методом RT-qPCR. (B) ROC-кривая для диагностики СД2 с использованием miR-3619-5p. (C) Корреляционный анализ Пирсона между относительной экспрессией miR-3619-5p и уровнем глюкозы в крови натощак (FBG). (D) Корреляционный анализ Пирсона между относительной экспрессией miR-3619-5p и HbA1c. Планки погрешностей представляют стандартное отклонение (SD); Контроль, n = 80; СД2, n = 102. ***P < 0.001 Нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
Влияние miR-3619-5p на функцию β-клеток поджелудочной железы
Мы провели анализы клеточных функций на β-клетках поджелудочной железы линии INS-1, обработанных HG для имитации прогрессирования СД2. Результаты показали, что экспрессия miR-3619-5p значительно снизилась после обработки HG (P < 0,001), в то время как трансфекция миметиком miR-3619-5p заметно повысила ее экспрессию (P < 0,01; Рисунок 2A). Что касается пролиферации и апоптоза клеток, обработка HG значительно подавляла пролиферацию клеток и стимулировала апоптоз (P < 0,001), тогда как миметик miR-3619-5p стимулировал пролиферацию и подавлял апоптоз после обработки HG (P < 0,01; Рисунок 2B,C). Результаты ELISA показали, что секреция инсулина значительно снизилась после обработки HG (P < 0,001), тогда как миметик miR-3619-5p увеличил секрецию инсулина после обработки HG (P < 0,01; Рисунок 2D).
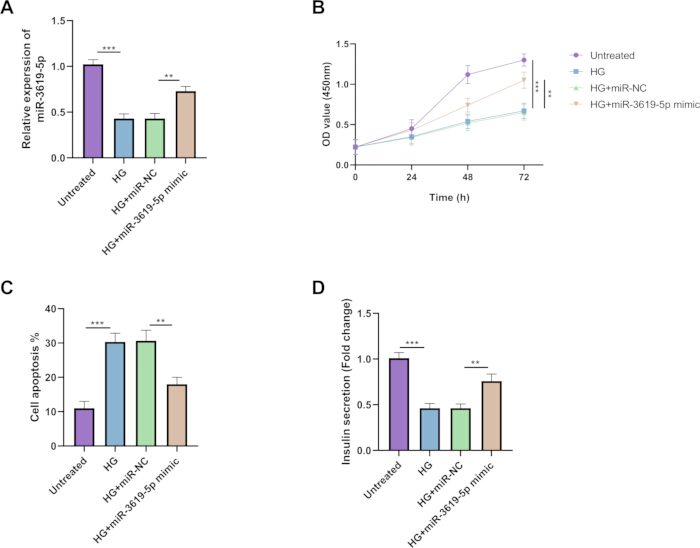
Рисунок 2: Влияние miR-3619-5p на функцию β-клеток поджелудочной железы. β-клетки поджелудочной железы линии INS-1 подвергали воздействию HG для имитации прогрессирования СД2. (A) Для определения экспрессии miR-3619-5p в клетках использовали RT-qPCR. (B) Пролиферацию клеток оценивали с помощью анализа CCK-8. (C) Апоптоз клеток оценивали методом проточной цитометрии. (D) Уровни секреции инсулина (нормированные по общему содержанию внутриклеточного инсулина) измеряли с помощью ELISA. Планки погрешностей соответствуют стандартному отклонению (SD), n = 3. ***P < 0.001; **P < 0.01 Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
Валидация мишеней miR-3619-5p
Биоинформатический анализ выявил в общей сложности 174 гена-мишени в четырех базах данных (Рисунок 3A), при этом сайт связывания MTA3 характеризуется высокой степенью консервативности (показатель Context++: -0,31; процентиль Context++: 98). Был идентифицирован комплементарный сайт связывания между miR-3619-5p и областью 3'-UTR MTA3 (Рисунок 3B). Результаты люциферазного репортерного анализа (DLR) показали, что относительная люциферазная активность MTA3 WT была значительно повышена в группе с мимиком miR-3619-5p, что указывает на способность miR-3619-5p связываться с MTA3 (Рисунок 3C).
Экспрессия MTA3 была заметно снижена в сыворотке крови пациентов с СД2 (Рисунок 3D); ее экспрессия также была значительно снижена в клетках INS-1, подвергнутых воздействию HG, в то время как мимик miR-3619-5p повышал экспрессию MTA3 (Рисунок 3E). Результаты вестерн-блоттинга показали, что мимик miR-3619-5p повышал уровни белка MTA3, тогда как ингибитор miR-3619-5p значительно снижал его экспрессию (Дополнительный рисунок 1). Корреляционный анализ Пирсона выявил значимую положительную корреляцию между уровнями miR-3619-5p и MTA3 в сыворотке крови 102 пациентов с СД2 (Рисунок 3F). Эти результаты дополнительно подтверждают положительную регуляторную роль miR-3619-5p в отношении MTA3.
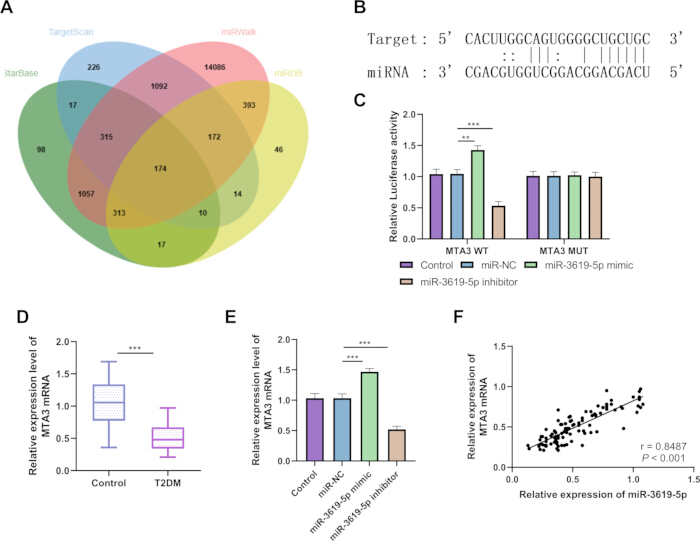
Рисунок 3Валидация мишеней miR-3619-5p. (A) Общие гены-мишени miR-3619-5p, выявленные в четырех базах данных: TargetScan, miRWalk, StarBase и miRDB. (B) Сайт связывания miR-3619-5p с 3’-UTR MTA3. (C) анализ DLR (n = 3). (D) Анализ экспрессии MTA3 в сыворотке крови пациентов с СД2 методом ОТ-ПЦР в реальном времени (Контроль, n = 80; СД2, n = 102). (Е) Анализ экспрессии MTA3 в клетках методом RT-qPCR (n = 3). (F) Корреляционный анализ Пирсона экспрессии miR-3619-5p и MTA3 в сыворотке крови пациентов с СД2 (контроль, n = 80; СД2, n = 102). Планки погрешностей соответствуют стандартному отклонению (SD). ***P < 0.001; **P < 0.01 Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
Влияние MTA3 на функцию β-клеток поджелудочной железы
Результаты показали, что si-MTA3 дополнительно снижала экспрессию MTA3 после обработки HG, в то время как ко-трансфекция мимиком miR-3619-5p обратимо влияла на этот эффект (Рисунок 4A). si-MTA3 дополнительно подавляла пролиферацию клеток, подвергнутых воздействию HG, стимулировала апоптоз и усиливала нарушение секреции инсулина; в то же время ко-трансфекция мимиком miR-3619-5p обращала вышеупомянутые клеточные фенотипы, опосредованные si-MTA3, восстанавливая пролиферацию клеток, снижая уровень апоптоза и ослабляя подавление секреции инсулина (Рисунок 4B–D).
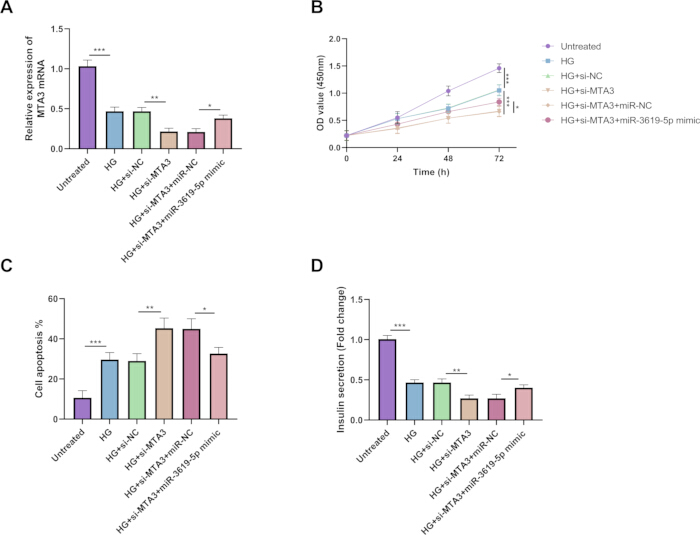
Рисунок 4: Влияние MTA3 на функцию β-клеток поджелудочной железы. Для дальнейшего изучения влияния MTA3 на функцию β-клеток поджелудочной железы в клетки вводили si-MTA3 и миметик miR-3619-5p. (A) Анализ экспрессии MTA3 в клетках методом RT-qPCR. (B) Пролиферацию клеток оценивали с помощью теста CCK-8. (C) Уровень апоптоза определяли методом проточной цитометрии. (D) Уровни секреции инсулина измеряли методом ELISA (нормализованные по общему внутриклеточному содержанию инсулина). Планки погрешностей соответствуют стандартному отклонению (SD), n = 3. ***P < 0.001; **P < 0.01; *P < 0.05 Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
Таким образом, результаты анализа клинических образцов показывают, что экспрессия miR-3619-5p в сыворотке крови значительно снижена у пациентов с СД2, и что уровень miR-3619-5p существенно коррелирует с показателями FBG и HbA1c; эксперименты на клеточных моделях подтвердили, что miR-3619-5p может специфически регулировать MTA3, влияя тем самым на жизнеспособность и секреторную функцию инсулина β-клеток поджелудочной железы крысы линии INS-1. В совокупности эти результаты свидетельствуют о том, что miR-3619-5p участвует в регуляции функции β-клеток поджелудочной железы, что предварительно обеспечивает достижение цели данного исследования по изучению роли miR-3619-5p при сахарном диабете 2 типа и ее потенциальных регуляторных механизмов.
ДОСТУПНОСТЬ ДАННЫХ:
Все необработанные и обработанные наборы данных, подтверждающие выводы данного исследования, загружены в качестве Дополнительного файла 1.
| Показатели | Контрольная группа (n = 80) | Группа СД2 (n = 102) | Значение P |
| Возраст (лет) | 51.41 ± 9.70 | 52.29 ± 7.03 | 0.478 |
| Пол (мужчины/женщины) | 43/37 | 54/48 | 0.914 |
| ИМТ (kg/m2) | 24.04 ± 3.10 | 24.81 ± 3.04 | 0.093 |
| ОХС (mmol/L) | 4.60 ± 0.64 | 4.78 ± 0.65 | 0.068 |
| ТГ (mmol/L) | 1.61 ± 0.18 | 1.67 ± 0.26 | 0.093 |
| ЛПВП-ХС (mmol/L) | 1.43 ± 0.13 | 1.38 ± 0.18 | 0.085 |
| ЛПНП-ХС (mmol/L) | 2.55 ± 0.29 | 2.63 ± 0.31 | 0.067 |
| ГГС (mmol/L) | 4.96 ± 0.97 | 7.16 ± 1.64 | <0.001 |
| HbA1c (%) | 4.42 ± 0.49 | 6.77 ± 1.16 | <0.001 |
Таблица 1: Сравнение клинических параметров среди субъектов. T2DM, сахарный диабет 2-го типа; BMI, индекс массы тела; TC, общий холестерин; TG, триглицериды; HDL, липопротеины высокой плотности; LDL, липопротеины низкой плотности; FBG, глюкоза крови натощак; HbA1c, гликированный гемоглобин.
Дополнительная таблица 1: Последовательности праймеров и реагентов, использованных в данном исследовании.Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительный рисунок 1: Экспрессия белка MTA3.Вестерн-блот анализ уровней белка MTA3. (A) Уровни белка MTA3. (B) Исходные изображения вестерн-блота для MTA3. (C) Исходные изображения вестерн-блота для GAPDH. Столбцы погрешностей представляют стандартное отклонение (SD), n = 3. ***P < 0.001; **P < 0.01Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительный файл 1: Исходные данные.Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Обсуждение
Основными патологическими особенностями СД2 являются инсулинорезистентность и дисфункция β-клеток поджелудочной железы, при этом снижение пролиферативной способности и уменьшение количества β-клеток поджелудочной железы выступают в качестве ключевых факторов нарушения секреции инсулина и основных причин прогрессирования заболевания26. Идентификация ключевых молекул, способных регулировать пролиферацию β-клеток поджелудочной железы и улучшать их функцию, имеет большое значение для точной диагностики и лечения СД2.
Являясь ключевыми регуляторными молекулами экспрессии генов, микроРНК (miRNAs) выполняют критическую функцию в пролиферации, апоптозе и секреции инсулина β-клетками поджелудочной железы. Многочисленные микроРНК тесно связаны с патогенезом СД227,28,29. Song и др. обнаружили, что нокдаун miR-3619-5p подавляет миграцию клеток при колоректальном раке30. Другие исследования показали, что экспрессия miR-3619-5p снижена у пациентов с диабетом, находящихся на перитонеальном диализе31. Однако роль и механизмы действия miR-3619-5p при СД2 до сих пор не были описаны. В данной работе было установлено, что экспрессия miR-3619-5p в сыворотке крови пациентов с СД2 была значительно ниже, чем в группе здорового контроля, что согласуется с данными Costa и др.31 и указывает на то, что снижение экспрессии miR‑3619‑5p может быть тесно связано с инициацией и развитием СД2. Корреляционный анализ показал, что экспрессия miR-3619-5p отрицательно коррелирует с FBG и HbA1c, что свидетельствует о связи более низкой экспрессии miR-3619-5p с худшим гликемическим контролем у пациентов. Это дополнительно подтверждает, что miR-3619-5p может быть вовлечена в процесс метаболической дисрегуляции при СД2, а уровень ее экспрессии может отражать тяжесть заболевания; это согласуется с выводами Chen и др., сообщивших, что дифференциально экспрессируемые РНК могут участвовать в липидном обмене, секреции инсулина и регуляции глюкозы32. Результаты анализа ROC-кривой позволяют предположить, что данный показатель может служить биомаркером для диагностики СД2, компенсируя недостаточную чувствительность традиционных показателей глюкозы в крови при ранней диагностике.
Аномальное снижение пролиферативной способности β-клеток поджелудочной железы является центральным компонентом недостаточности островков поджелудочной железы при СД2; стимулирование пролиферации β-клеток поджелудочной железы и увеличение количества клеток являются ключевыми факторами улучшения функции секреции инсулина33,34. В данном исследовании с помощью клеточных экспериментов было продемонстрировано, что miR-3619-5p значительно стимулирует пролиферацию клеток INS-1 и подавляет апоптоз, тем самым увеличивая секрецию инсулина. Это позволяет предположить, что miR-3619-5p может улучшать функцию секреции инсулина, стимулируя пролиферацию β-клеток поджелудочной железы и подавляя апоптоз, тем самым участвуя в патогенезе СД2. Это согласуется с регуляторными механизмами микроРНК при пролиферации β-клеток поджелудочной железы, описанными в предыдущих исследованиях, такими как miR-26a-5p и miR-765, которые стимулируют пролиферацию и дифференцировку β-клеток поджелудочной железы путем регуляции экспрессии целевых генов35,36.
В данном исследовании использовались биоинформатический прогноз и анализы DLR для подтверждения того, что MTA3 является геном-мишенью для miR-3619-5p. Будучи белком, ассоциированным с метастазированием, MTA3 широко участвует в таких ключевых физиологических процессах, как пролиферация, апоптоз и метаболизм клеток20. Исследования показали, что MTA3 участвует в регуляции фиброза печени, индуцированного высокой концентрацией глюкозы24. Подавление экспрессии MTA3, опосредованное СД2, связано с усилением окислительного стресса в семенниках37. В данном исследовании в клетках, обработанных HG, наблюдалась пониженная экспрессия MTA3. Совместно с результатами анализов пролиферации клеток выдвигается гипотеза, что si-MTA3 может способствовать патогенезу СД2, подавляя пролиферацию β-клеток поджелудочной железы, тогда как miR-3619-5p может ослабить это подавление, регулируя экспрессию MTA3, тем самым улучшая функцию β-клеток поджелудочной железы. Выяснение этого механизма дополнительно уточняет молекулярную сеть регуляции пролиферации β-клеток поджелудочной железы с помощью микроРНК и открывает новые перспективы для изучения патогенеза СД2.
Результаты данного исследования имеют потенциальную клиническую и трансляционную значимость. Сывороточный miR-3619-5p может быть обнаружен в периферической венозной крови; в случае подтверждения в последующих крупномасштабных когортных исследованиях он может стать перспективным вспомогательным биологическим маркером, помогающим клиницистам выявлять лиц с риском дисфункции β-клеток поджелудочной железы, что обеспечит более раннюю стратификацию рисков. miR-3619-5p может смягчать повреждения β-клеток поджелудочной железы, вызванные гипергликемией, путем таргетирования и регуляции пути MTA3 для поддержания выживаемости β-клеток и секреции инсулина. Это позволяет предположить, что ось miR-3619-5p/MTA3 может служить новой мишенью для защиты островков при диабете, предоставляя фундаментальные экспериментальные данные для последующей разработки препаратов на основе нуклеиновых кислот или низкомолекулярных ингибиторов для защиты функции островков.
В настоящем исследовании следует отметить несколько ограничений: во-первых, работа проводилась в одном центре, что могло привести к систематической ошибке отбора, а межиндивидуальная вариабельность среди участников была относительно ограниченной. В будущих исследованиях следует увеличить размер выборки и провести многоцентровые исследования для подтверждения профиля экспрессии и клинической значимости miR‑3619‑5p. Во-вторых, в данной работе регуляторная функция miR-3619-5p в пролиферации β-клеток поджелудочной железы была подтверждена только на клеточном уровне, и дальнейшая валидация с помощью экспериментов на животных не проводилась. В будущих работах необходимо создать животную модель СД2 для более детального изучения механизмов действия in vivo. В-третьих, микроРНК обычно обладают многофункциональными характеристиками, и miR-3619-5p может регулировать множество родственных генов. В то же время системы трансфекции in vitro с использованием миметиков или ингибиторов микроРНК подвержены потенциальным нецелевым эффектам; искусственное вмешательство в высоких дозах может неспецифически активировать или ингибировать несколько сигнальных путей, что затрудняет полное воспроизведение режима действия, наблюдаемого в физиологических условиях. Будущие исследования требуют более комплексного скрининга мишеней по всему транскриптому, чтобы разграничить специфическую таргетную регуляцию и неспецифические биологические эффекты, вызванные нецелевым воздействием. В-четвертых, хотя в данной работе в модели высокого содержания глюкозы in vitro использовалось воздействие 25 mM глюкозы, группа осмотического контроля с маннитом не была создана; следовательно, не удалось полностью разграничить специфические метаболические эффекты глюкозы и эффекты, вызванные осмотическим стрессом. В будущих экспериментах следует включить осмотический контроль для дальнейшего выяснения механизма влияния высокого уровня глюкозы на клетки INS-1. Наконец, существует межвидовое несоответствие между клиническими образцами и клеточными моделями in vitro; хотя клетки INS-1 являются классической моделью in vitro для изучения функционального созревания β-клеток поджелудочной железы, регуляторные механизмы, наблюдаемые в клетках крысы, не могут быть напрямую приравнены к реальным биологическим процессам у человека. Таким образом, следует проявлять осторожность при интерпретации выявленной в данном исследовании регуляторной связи miR-3619-5p/MTA3 на клеточном уровне in vitro для клинического применения. В будущих исследованиях потребуется использовать модели β-клеток поджелудочной железы человека или первичные островковые клетки человека для дальнейшего подтверждения видовой консервативности этого пути.
Экспрессия miR-3619-5p снижена в сыворотке крови и β-клетках поджелудочной железы пациентов с СД2; воздействуя на MTA3, miR-3619-5p может облегчать дисфункцию β-клеток поджелудочной железы, вызванную гипергликемией, стимулировать пролиферацию β-клеток поджелудочной железы, ингибировать апоптоз и улучшать секрецию инсулина. Данное исследование позволяет предположить, что miR-3619-5p может быть полезна при стратификации риска развития диабета, а ось miR-3619-5p/MTA3 является потенциальной мишенью для защиты островков. В будущем мы планируем провести когортное исследование большего масштаба для подтверждения ее клинической значимости и выполнить функциональную валидацию in vivo с использованием животных моделей диабета; одновременно с этим будет проведен углубленный анализ сигнальных путей ниже MTA3, которые опосредуют изменения функций островков, и дополнительно оцениваться трансляционный потенциал данной мишени для терапии по защите островков.
Раскрытие информации
Авторы не имеют соответствующих финансовых или нефинансовых интересов, подлежащих раскрытию.
Благодарности
Данное исследование было поддержано программой «Стратегии профилактики для пациентов с сахарным диабетом и инфекциями мочевыводящих путей» (№ MSZ2025119).
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| Annexin V-FITC/PI Apoptosis Detection Kit | Roche, Switzerland | 11684795910 | Окрашивание Annexin V-FITC (10 µL) и PI (5 µL); инкубация в темноте в течение 15 мин |
| Cell Counting Kit-8 (CCK-8) | Dojindo, Japan | CK04 | Колориметрический анализ жизнеспособности клеток; 10 µL на лунку, инкубация 2 ч, измерение OD450 |
| D-Glucose | Sigma-Aldrich | G7021 | Добавляется в культуральную среду в концентрации 25 mM для создания модели клеточного повреждения, индуцированного высокой концентрацией глюкозы (HG) |
| Dual-Luciferase Reporter Assay System | Promega, USA | E1910 | Последовательное измерение активности люциферазы светлячка и Renilla |
| Fetal bovine serum (FBS) | Gibco, USA | 10437028 | Добавка до конечной концентрации 10% |
| Flow cytometer | Beckman Coulter, USA | CytoFLEX | Проточный цитофлуориметрический анализ для расчета уровня апоптоза |
| GAPDH antibody | Abcam, UK | ab181602 | Вестерн-блоттинг |
| GAPDH primers | Sangon Biotech, China | Custom synthesis | Ген домашнего хозяйства для нормализации мРНК |
| Goat Anti-Rabbit IgG H&L (HRP) | Abcam, UK | ab6721 | Вестерн-блоттинг |
| HEK293T cell line | ATCC, USA | CRL-3216 | Клетки эмбриональной почки человека; высокая эффективность трансфекции для люциферазных анализов |
| INS-1 cell line | Sunncell, China | SNL-332 | Линия клеток инсулиномы крысы; культивирование в среде RPMI 1640 с 10% FBS и 1% пенициллина-стрептомицина |
| LightCycler 480 II Real-Time PCR System | Roche, Switzerland | 5015278001 | ПЦР-амплификация в реальном времени; формат планшета на 96 или 384 лунки |
| Lipofectamine 3000 | Invitrogen, USA | L3000001 | Липидный реагент для трансфекции |
| Microplate reader | BioTek, Agilent | Synergy H1 | Измерение оптической плотности; концентрации образцов интерполируются по стандартным кривым |
| miR-3619-5p inhibitors | RiboBio, China | miR20017999-1-5 | Химически синтезированная одноцепочечная РНК для ингибирования функции miR-3619-5p |
| miR-3619-5p mimics | RiboBio, China | miR10017999-1-5 | Химически синтезированная двухцепочечная РНК для оверэкспрессии miR-3619-5p |
| miR-3619-5p primers | Sangon Biotech, China | Custom synthesis | Специфические праймеры для детекции miR-3619-5p |
| miR-NC (miRNA blank control) | RiboBio, China | miR2N0000001-1-5 | Нетаргетный отрицательный контроль для экспериментов с мимиками/ингибиторами miRNA |
| miRNeasy Mini Kit | Qiagen, Germany | 217004 | Экстракция тотальной РНК из клеточных образцов |
| miScript II RT Kit | Qiagen, Germany | 218160 | Обратная транскрипция для miRNA; используется полиаденилирование и прайминг олиго-dT |
| miScript SYBR Green PCR Kit | Qiagen, Germany | 218073 | кПЦР на основе SYBR Green для детекции miRNA |
| MTA3 antibody | Invitrogen, USA | PA5-100022 | Вестерн-блоттинг |
| MTA3 primers | Sangon Biotech, China | Custom synthesis | Специфические праймеры для детекции мРНК MTA3 |
| NanoDrop 2000 spectrophotometer | Thermo Fisher Scientific, USA | ND-2000 | Оценка концентрации и чистоты РНК |
| Penicillin-Streptomycin | Gibco, USA | 15140122 | Раствор антибиотиков в концентрации 1% для предотвращения бактериальной контаминации |
| pmirGLO Dual-Luciferase miRNA Target Expression Vector | Promega, USA | E1330 | Двойной люциферазный репортерный вектор для валидации мишеней miRNA; содержит гены люциферазы светлячка и Renilla |
| PrimeScript RT Reagent Kit with gDNA Eraser | TaKaRa, Japan | RR047A | Обратная транскрипция с этапом удаления геномной ДНК |
| Rat Insulin ELISA Kit | Invitrogen, USA | ERINS | Количественное определение инсулина, секретируемого клетками INS-1 в культуральную среду |
| RPMI 1640 medium | Gibco, USA | 11875093 | Базовая культуральная среда; с добавлением 10% FBS и 1% пенициллина-стрептомицина |
| si-MTA3 | RiboBio, China | siB170209084646-1-5 | Малая интерферирующая РНК, нацеленная на MTA3, для нокдауна гена |
| si-NC (blank control for siRNA) | RiboBio, China | siB06525141922-1-5 | Нетаргетный контроль siRNA |
| SYBR Green Master PCR Mix | TaKaRa, Japan | RR820A | кПЦР-амплификация на основе SYBR Green |
| TRIzol Reagent | Invitrogen, USA | 15596026 | Экстракция тотальной РНК из образцов сыворотки |
| U6 primers | Sangon Biotech, China | Custom synthesis | Эндогенный референс для нормализации miRNA |
Ссылки
- Wang L, et al. Associated factors and principal pathophysiological mechanisms of type 2 diabetes mellitus. Front Endocrinol (Lausanne). 2025;16:1499565.
- Wan Z, et al. The role of systemic inflammation in the association between serum 25-hydroxyvitamin D and type 2 diabetes mellitus. Clin Nutr. 2021;40(6):3661–7.
- Okamoto A, et al. Efficacy and safety of semaglutide in glycemic control, body weight management, lipid profiles and other biomarkers among obese type 2 diabetes patients initiated or switched to semaglutide from other GLP-1 receptor agonists. J Diabetes Metab Disord. 2021;20(2):2121–8.
- Aguayo-Mazzucato C, et al. β Cell Aging Markers Have Heterogeneous Distribution and Are Induced by Insulin Resistance. Cell Metab. 2017;25(4):898–910.e5.
- Goshrani A, Lin R, O'Neal D, Ekinci EI. Time in range-A new gold standard in type 2 diabetes research Diabetes Obes Metab. 2025;27(5):2342–62.
- Niu F, et al. β-cell neogenesis: A rising star to rescue diabetes mellitus. J Adv Res. 2024;62:71–89.
- Zhang Y, et al. THADA inhibition in mice protects against type 2 diabetes mellitus by improving pancreatic β-cell function and preserving β-cell mass. Nat Commun. 2023;14(1):1020.
- Ho PTB, Clark IM, Le LTT. MicroRNA-Based Diagnosis and Therapy. Int J Mol Sci. 2022;23(13).
- Poy MN, et al. A pancreatic islet-specific microRNA regulates insulin secretion. Nature. 2004;432(7014):226–30.
- Karagiannopoulos A, Cowan E, Eliasson L. miRNAs in the Beta Cell-Friends or Foes Endocrinology. 2023;164(5).
- Hu H, et al. Plasma miR-193b-3p Is Elevated in Type 2 Diabetes and Could Impair Glucose Metabolism. Front Endocrinol (Lausanne). 2022;13:814347.
- Benko J, et al. MiR-126 and miR-146a as markers of type 2 diabetes mellitus: a pilot study. Bratisl Lek Listy. 2023;124(7):527–33.
- Liu C, Gao Y, Wu J, Zou J. Exosomal miR-23a and miR-192, Potential Diagnostic Biomarkers for Type 2 Diabetes. Clin Lab. 2021;67(2).
- Liu Y, Li J, Wang S, Song H, Yu T. STAT4-mediated down-regulation of miR-3619-5p facilitates stomach adenocarcinoma by modulating TBC1D10B. Cancer Biol Ther. 2020;21(7):656–64.
- Ma J, et al. M2 macrophage facilitated angiogenesis in cutaneous squamous cell carcinoma via circ_TNFRSF21/miR-3619-5p/ROCK axis. Kaohsiung J Med Sci. 2022;38(8):761–71.
- Zhang M, Luo H, Hui L. MiR-3619-5p hampers proliferation and cisplatin resistance in cutaneous squamous-cell carcinoma via KPNA4. Biochem Biophys Res Commun. 2019;513(2):419–25.
- Ge L, Tan W, Li G, Gong N, Zhou L. Circ_0026134 promotes NSCLC progression by the miR-3619-5p/CHAF1B axis. Thorac Cancer. 2022;13(4):582–92.
- Sun Z, Li X, Shi Y, Yao Y. LncRNA PVT1 facilitates the growth and metastasis of colorectal cancer by sponging with miR-3619-5p to regulate TRIM29 expression. Cancer Rep (Hoboken). 2024;7(6):e2085.
- Wu C, et al. Long Noncoding RNA Plasmacytoma Variant Translocation 1 Regulates Cisplatin Resistance via miR-3619-5p/TBL1XR1 Axis in Gastric Cancer. Cancer Biother Radiopharm. 2020;35(10):741–52.
- Tang Y, et al. Mechanisms of MTA3 in cancer and related diseases and its clinical applications. Front Oncol. 2025;15:1731799.
- Lau P, et al. Sphingosine kinase 1 promotes tumor immune evasion by regulating the MTA3-PD-L1 axis. Cell Mol Immunol. 2022;19(10):1153–67.
- Du L, et al. MTA3 Represses Cancer Stemness by Targeting the SOX2OT/SOX2 Axis. iScience. 2019;22:353–68.
- Liu Y, et al. Discovery of Jaspamycin from marine-derived natural product based on MTA3 to inhibit hepatocellular carcinoma progression. Sci Rep. 2024;14(1):25294.
- Li Q, et al. High glucose promotes hepatic fibrosis via miR‑32/MTA3‑mediated epithelial‑to‑mesenchymal transition. Mol Med Rep. 2019;19(4):3190–200.
- Pu M, Kong L, Li J, Su L, Chen Y. LncRNA NBR2 affects pancreatic β-cell function in type 2 diabetes mellitus by targeting miR-646. Diabetol Metab Syndr. 2025;17(1):454.
- Galicia-Garcia U, et al. Pathophysiology of Type 2 Diabetes Mellitus. Int J Mol Sci. 2020;21(17).
- Wang J, et al. Extracellular vesicles mediate the communication of adipose tissue with brain and promote cognitive impairment associated with insulin resistance. Cell Metab. 2022;34(9):1264–79.e8.
- Rosado JA, Diez-Bello R, Salido GM, Jardin I. Fine-tuning of microRNAs in Type 2 Diabetes Mellitus. Curr Med Chem. 2019;26(22):4102–18.
- Taheri M, Eghtedarian R, Ghafouri-Fard S, Omrani MD. Non-coding RNAs and type 2 diabetes mellitus. Arch Physiol Biochem. 2023;129(2):526–35.
- Song B, et al. LINC00882 Plays a Tumor-promoter Role in Colorectal Cancer by Targeting miR-3619-5p to Up-regulate CTNNB1. Arch Med Res. 2022;53(1):29–36.
- Costa NA, et al. Peritoneal dialysis influences microRNA expression and pro-inflammatory response: results from a cross-sectional study. J Bras Nefrol. 2026;48(1):e20240218.
- Chen J, et al. Identification of the LncRNA PRNCR1/miR-642a-5p/SSTR3 CeRNA network and its diagnostic value in type 2 diabetes mellitus. Diabetol Metab Syndr. 2025;18(1):39.
- Elizabeth MM, et al. Pancreatic β-Cells and Type 2 Diabetes Development. Curr Diabetes Rev. 2017;13(2):108–21.
- Kerper N, Ashe S, Hebrok M. Pancreatic β-Cell Development and Regeneration. Cold Spring Harb Perspect Biol. 2022;14(5).
- Yang F, Zhao S, Zhang X, Ding S, Xu Y. RNF6 Targeted by miR-26a-5p Protects Pancreatic β-Cell Function Against Type 2 Diabetes. Diabetes Metab Syndr Obes. 2022;15:93–102.
- Zheng L, et al. miR-765 targeting PDX1 impairs pancreatic β-cell function to induce type 2 diabetes. Arch Physiol Biochem. 2023;129(6):1279–88.
- Liu F, et al. T2DM-elicited oxidative stress represses MTA3 expression in mouse Leydig cells. Reproduction. 2022;163(5):267–80.