В данном исследовании используются парные образцы тканей человека, две клеточные линии плоскоклеточного рака легкого, анализы стабильности РНК и белков, эксперименты по генетическому спасению (rescue experiments), а также ксенотрансплантационная модель с нокдауном FOXD1 для изучения регуляции FOXD1, связанной с METTL3, и создания воспроизводимой основы для исследования посттранскрипционных онкогенных механизмов.
Исследовательская статья
Регуляция FOXD1, связанная с METTL3, способствует прогрессированию плоскоклеточного рака легкого: мультимодельный экспериментальный подход
* These authors contributed equally
В этой статье
Краткое содержание
Аннотация
Варианты лечения плоскоклеточного рака легкого (LUSC) ограничены, что стимулирует исследование молекулярных путей, поддерживающих рост опухолевых клеток. Экспрессию Forkhead box D1 (FOXD1) оценивали с помощью интерактивного анализа профилей экспрессии генов (GEPIA), количественной полимеразной цепной реакции с обратной транскрипцией (qRT-PCR), вестерн-блоттинга и иммуногистохимии в парных тканях и клеточных линиях. В клетках LUSC проводили истощение FOXD1 или метилтрансферазоподобного белка 3 (METTL3), после чего оценивали жизнеспособность клеток, апоптоз, миграцию, общий уровень N6-метиладенозина (m6A), стабильность транскриптов и стабильность белков. С помощью ксенотрансплантационной модели с нокдауном FOXD1 изучали роль FOXD1 in vivo; манипуляции с METTL3 на животных не проводились.
Экспрессия FOXD1 была выше в тканях и клетках LUSC, чем в соответствующих контрольных образцах. Нокдаун FOXD1 снижал жизнеспособность и миграцию, увеличивал апоптоз и подавлял рост ксенографтов. Экспрессия METTL3 коррелировала с экспрессией FOXD1 в парных образцах тканей LUSC. В культивируемых клетках нокдаун METTL3 приводил к снижению общего уровня m6A и содержания FOXD1, в то время как повторная экспрессия FOXD1 частично восстанавливала связанные с этим фенотипы. Результаты анализов с использованием актиномицина D, циклогексимида и MG132 подтвердили изменения стабильности РНК и белка FOXD1, связанные с METTL3.
Эти данные подтверждают наличие функциональной связи между METTL3 и FOXD1 в клетках LUSC. In vivo нокдаун FOXD1 подавлял рост ксенографта и снижал интенсивность окрашивания на Ki-67, что характеризует FOXD1 как промотор роста ксенографта. Прямое связывание METTL3–FOXD1, сайт-специфическая модификация m6A, зависимость от ридера и валидация полного пути METTL3–FOXD1 in vivo еще предстоят к изучению.
Введение
Рак легких остается одной из основных причин смертности от онкологических заболеваний во всем мире1,2. Плоскоклеточный рак легкого (LUSC), основной гистологический подтип немелкоклеточного рака легкого (NSCLC), часто диагностируется на стадиях, когда радикальное местное лечение уже невозможно3,4. Несмотря на совершенствование методов системной терапии, многие пациенты по-прежнему имеют неблагоприятный прогноз5. Таким образом, определение молекулярных программ, поддерживающих рост LUSC, может помочь выявить потенциальные биомаркеры и терапевтические гипотезы.
Forkhead box D1 (FOXD1) представляет собой транскрипционный фактор, участвующий в развитии колоректального рака, рака головы и шеи, рака желудка, плоскоклеточного рака полости рта и рака молочной железы6,7,8,9,10. При НМРЛ экспрессия FOXD1 была связана с неблагоприятным исходом, а также с экспериментальным ростом клеток и метастазированием11,12. MicroRNA-30a-5p также подавляет пролиферацию и миграцию клеток LUSC, воздействуя на FOXD113. Эти наблюдения позволяют рассматривать FOXD1 как вероятный регулятор LUSC, однако они не объясняют, каким образом поддерживается его экспрессия при данном заболевании.
N6-метиладенозин (m6A) представляет собой обратимую модификацию РНК, которая устанавливается, удаляется и интерпретируется белками-«писателями», «стирателями» и «ридерами». Эта регуляторная система может влиять на процессинг, трансляцию и распад РНК, а ее нарушение связывают с возникновением злокачественных фенотипов и ответом на терапию14,15,16,17. Метилтрансферазоподобный белок 3 (METTL3) является каталитическим компонентом комплекса «писателя» m6A; однако одна лишь корреляция между METTL3 и FOXD1 не может доказать наличие прямого метилирования или регуляции, опосредованной «ридером».
Мы выдвинули гипотезу о том, что METTL3 способствует прогрессированию LUSC, поддерживая экспрессию FOXD1 посредством m6A-зависимой посттранскрипционной регуляции. Путем интеграции данных парных клинических образцов, двух линий опухолевых клеток, анализов с потерей функции и восстановлением функции, анализа стабильности транскриптов и белков, а также ксенографтной модели с нокдауном FOXD1, данное исследование создает функциональную основу для изучения взаимосвязи METTL3–FOXD1, позволяя отличить общую ассоциацию от прямого сайт-специфического метилирования.
Протокол
Сбор тканей человека проводился в соответствии с Хельсинкской декларацией и был одобрен Институциональным наблюдательным советом Первой больницы университета Цзилиня (номер одобрения 2022-339; 22 июля 2022 г.); от всех участников было получено письменное информированное согласие. Протокол работы с животными был одобрен Комитетом по управлению животными Первой больницы университета Цзилиня (номер одобрения 2022-0015; 25 января 2022 г.) и выполнялся в соответствии с институциональными правилами по уходу за животными и их использованию.
Объекты исследования
Архивные образцы включали 12 пар первичной плоскоклеточной карциномы легкого (LUSC) и прилегающих нетрансформированных тканей, полученных от пациентов, перенесших хирургическое вмешательство в период с января 2019 по декабрь 2020 года. Критериями отбора пациентов были патологически подтвержденная первичная LUSC, отсутствие документально подтвержденных метастазов и отсутствие специфического лечения LUSC в течение предшествующих 6 месяцев. Случаи отбирались с помощью таблицы случайных чисел; в исследование были включены семь мужчин и пять женщин в возрасте 30–65 лет. От всех участников было получено письменное информированное согласие.
Клеточные линии
Клетки эпителия бронхов человека BEAS-2B (RRID: CVCL_0168), LUSC SK-MES-1 (RRID: CVCL_0630) и NCI-H226 (RRID: CVCL_1544) были получены из банка клеток Китайской академии наук. Клетки культивировали в модифицированной Дульбекко среде Игла с добавлением 10% фетальной бычьей сыворотки и 1% пенициллина-стрептомицина при 37 °C в атмосфере 5% CO2. Коммерческие идентификаторы обобщены в прилагаемой Таблице материалов.
Скрининг и реверсия фенотипа с помощью малых интерферирующих РНК
Три индивидуальные малые интерферирующие РНК, нацеленные на FOXD1 или METTL3, были протестированы в клетках SK-MES-1 и NCI-H226. Нокдаун оценивали через 48 ч после трансфекции с помощью количественной обратной транскрипции с последующей ПЦР (qRT-PCR) и вестерн-блоттинга. Для последующих функциональных анализов FOXD1 использовали FOXD1 siRNA-1, так как она обеспечила наибольшее снижение экспрессии в обеих клеточных линиях. В последующих экспериментах с METTL3 использовали выбранный по результатам скрининга реагент si-METTL3. В архивной записи не указан SmartPool, а также не сохранены последовательность или идентификатор поставщика, которые можно было бы определить с уверенностью. Для экспериментов по рескью (восстановлению функции) клетки подвергали воздействию выбранного реагента si-METTL3, конструкции для оверэкспрессии FOXD1 или и того, и другого; экспрессию и клеточные фенотипы оценивали через 48 ч после трансфекции.
Выделение РНК и qRT-PCR
Общую РНК выделяли из тканей или клеток с помощью фенол-гуанидиниевого реагента и подвергали обратной транскрипции с использованием коммерческого набора для обратной транскрипции. qRT-PCR проводили с использованием мастер-микса TB Green на системе ПЦР в реальном времени (RRID: SCR_018051). Последовательности праймеров приведены в Таблице 1. Относительная экспрессия была нормализована по глицеральдегид-3-фосфатдегидрогеназе (GAPDH). Сборка реакций и температурный циклирование проводились в соответствии с протоколом производителя для указанного мастер-микса.
Вестерн-блоттинг
Ткани или клетки лизировали в буфере для радиоиммунопреципитационного анализа (RIPA), содержащем ингибиторы протеаз. Эквивалентные количества белка разделяли с помощью электрофореза в полиакриламидном геле с додецилсульфатом натрия (SDS-PAGE) и переносили на поливинилиденфторидные (PVDF) мембраны. Мембраны инкубировали в течение ночи при 4 °C с антителами к FOXD1 (1:1,000), METTL3 (1:1,000; RRID: AB_2142033) или GAPDH (1:2,000; RRID: AB_10622025), после чего в течение 1 ч при комнатной температуре инкубировали с конъюгатом антител к кроличьему иммуноглобулину G с пероксидазой хрена. Сигналы визуализировали с помощью улучшенной хемилюминесценции, используя GAPDH в качестве контроля нагрузки. В Таблице материалов указаны коммерческие первичные антитела и вторичный реагент, который представляет собой детектирующее антитело к кроличьему иммуноглобулину G.
Жизнеспособность клеток и апоптоз
Для измерения жизнеспособности контрольные и трансфицированные клетки LUSC высевали в 96-луночные планшеты из расчета 2 000 клеток на лунку. С интервалом в 12 ч в каждую лунку добавляли по 10 µL реагента набора для подсчета клеток Cell Counting Kit-8, планшеты инкубировали в течение 1 ч при 37 °C, и регистрировали оптическую плотность при 450 nm. Для анализа апоптоза клетки высевали в 6-луночные планшеты из расчета 1 × 10⁵ клеток на лунку и анализировали через 48 ч после трансфекции. Собранные клетки обрабатывали в соответствии с инструкцией к набору Annexin V–флуоресцеинизотиоцианат (FITC)/пропидий иодид (PI), ресуспендировали в 100 µL связывающего буфера, окрашивали по 5 µL каждого реагента в течение 30 min при комнатной температуре в темноте и анализировали методом проточной цитометрии в течение 4 ч.
Миграция в системе Transwell
Трансфицированные клетки LUSC помещали в бессывороточную среду в верхнюю камеру трансвелла; нижняя камера содержала 500 µL среды с добавлением 10% эмбриональной бычьей сыворотки. Через 24 ч мигрировавшие клетки фиксировали 4% параформальдегидом и окрашивали кристаллическим фиолетовым в течение 10 мин. Клетки, не мигрировавшие на верхнюю поверхность мембраны, удаляли ватным тампоном. Получали изображения мигрировавших клеток с помощью микроскопа при идентичных настройках съемки и проводили количественный анализ в ImageJ (RRID: SCR_003070).
метилирование m6A
Общий уровень m6A измеряли с помощью колориметрического анализа метилирования РНК. После экстракции РНК и оценки ее качества в каждую лунку для анализа вносили 200 ng РНК. Добавляли захватывающие антитела (50 µL) и выдерживали в течение 60 min при комнатной температуре. Лунки промывали трижды, затем инкубировали с 50 µL детектирующих антител в течение 30 min, промывали четырежды и инкубировали с раствором для усиления сигнала в течение 30 min. Оптическую плотность измеряли при 450 nm. Все этапы проводили в соответствии с прилагаемой инструкцией к набору.
Определение стабильности мРНК
Клетки LUSC высеяли в 6-луночные планшеты и трансфецировали малым интерферирующим РНК-контролем (si-NC) или малой интерферирующей РНК, нацеленной на METTL3 (si-METTL3). Через 48 ч добавили актиномицин D в концентрации 5 µg/mL для остановки транскрипции. Клетки собирали через 0 ч, 2 ч, 4 ч и 6 ч, выделяли общую РНК и измеряли количество транскриптов FOXD1 методом qRT-PCR.
Анализы с использованием циклогексимида (CHX) и MG132
Для каждого анализа конечной точки с использованием ингибиторов сравнивали необработанные клетки векторного контроля, клетки векторного контроля, обработанные ингибитором, и клетки с гиперэкспрессией METTL3, обработанные ингибитором. MG132 использовали в концентрации 10 µM, а CHX — в концентрации 20 µM; лизаты собирали через 12 h для вестерн-блоттинга. Для анализа временной зависимости CHX клетки, трансфицированные si-NC или si-METTL3, обрабатывали 20 µM CHX и собирали через 0 h, 3 h, 6 h и 9 h. Содержание белка FOXD1 определяли методом вестерн-блоттинга.
In vivo эксперименты
Атимических мышей линии BALB/c nude в возрасте пяти недель распределили по группам отрицательного контроля и группе с нокдауном FOXD1 в клетках SK-MES-1 (n = 8 мышей в группе). Каждой мыши подкожно ввели примерно 8 × 10⁶ клеток. Мониторинг опухолей начали через 1 неделю после имплантации; размер опухолей регистрировали каждые 4 дня в течение 20 дней подряд. Мышей усыпили в соответствии с утвержденными институциональными протоколами на 27-й день после инокуляции, сразу после последнего измерения; опухоли иссекли, взвесили и сфотографировали. Для имплантации использовали популяции клеток SK-MES-1 со стабильным нокдауном FOXD1 и соответствующий отрицательный контроль.
Иммунохимия
Иссеченные опухоли заливали в парафин и разрезали на срезы толщиной 4–5 µm. Срезы депарафинизировали, регидратировали, инкубировали в течение ночи при 4 °C с первичными антителами, а затем инкубировали с соответствующими вторичными антителами в течение 30 min. Антиген-положительные клетки визуализировали с помощью субстрата диаминобензидина. В ксенографтах оценивали экспрессию FOXD1 и Ki-67, при этом парные срезы обрабатывали в одной партии окрашивания и подвергали визуализации при идентичных настройках получения изображений.
Статистический анализ
Анализ данных проводили с использованием GraphPad Prism версии 8 (RRID: SCR_002798) и R (RRID: SCR_001905). Для сравнения двух групп использовали t-критерий Стьюдента, для сравнения более чем двух групп — дисперсионный анализ. При анализе пар образцов тканей человека использовали 12 пар пациентов; обобщенные данные экспериментов in vitro представляют результаты трех независимых биологических экспериментов; при анализе ксенографтов использовали восемь мышей в группе. Технические повторности не рассматривались как независимые наблюдения. Данные представлены в виде среднего значения ± стандартное отклонение. Двустороннее значение P < 0.05 считалось статистически значимым.
Результаты
Экспрессия FOXD1 повышена в тканях LUSC человека
Запрос в базе данных интерактивного анализа профилей экспрессии генов (GEPIA) показал более высокое содержание транскриптов FOXD1 в образцах LUSC, чем в образцах нормальной ткани легкого, в то время как при сравнении с аденокарциномой легкого значимых различий выявлено не было (Рисунок 1A). Анализ 12 пар образцов LUSC и прилегающих нетрансформированных тканей с помощью qRT-PCR и вестерн-блоттинга показал изменение в том же направлении (Рисунок 1B,C). Иммуногистохимическое окрашивание также продемонстрировало более интенсивный сигнал FOXD1 в срезах опухоли, чем в соответствующих образцах прилегающей ткани (Рисунок 1D).
Нокдаун FOXD1 снижает жизнеспособность и миграцию, а также увеличивает апоптоз в клетках LUSC
Уровень экспрессии транскрипта FOXD1 был выше в клетках SK-MES-1 и NCI-H226, чем в клетках BEAS-2B (Рисунок 2A). Был проведен скрининг трех малых интерферирующих РНК, нацеленных на FOXD1; siRNA-1 обеспечила наибольшее снижение экспрессии, выявленное с помощью qRT-PCR и вестерн-блоттинга, и была выбрана для последующих анализов (Рисунок 2B,C). По сравнению с отрицательным контролем, нокдаун FOXD1 привел к снижению сигнала Cell Counting Kit-8 (Рисунок 2D), увеличению количества Annexin V-положительных клеток (Рисунок 2E) и снижению миграции в системе Transwell (Рисунок 2F) в обеих клеточных линиях LUSC. Для дальнейших исследований был использован один выбранный реагент, поэтому функциональные результаты не являются доказательством исключения нецелевых эффектов, независимым от последовательности.
Экспрессия METTL3 коррелирует с FOXD1 в образцах LUSC
Метилирование m6A представляет собой динамическую и обратимую химическую модификацию, широко распространенную у эукариот, которая регулируется метилтрансферазами и деметилазами, а также распознается и обрабатывается m6A-связывающими белками18. Общий сигнал m6A был выше в 12 образцах тканей LUSC, чем в соответствующих прилежащих тканях, а также выше в обеих клеточных линиях LUSC, чем в клетках BEAS-2B (Рисунок 3A). Экспрессия транскриптов, кодирующих METTL3, METTL14, WTAP и RBM15, была повышена в парных образцах опухолей (Рисунок 3B). Согласно данным GEPIA и анализу набора из 12 опухолей, FOXD1 продемонстрировал наиболее выраженную положительную корреляцию с METTL3; связь с RBM15 была слабее (Рисунок 3C,D). Вестерн-блоттинг дополнительно подтвердил более высокое содержание METTL3 в опухолевых тканях (Рисунок 3E). Данные анализы устанавливают ковариацию, а не прямую регуляцию.
Нокдаун METTL3 изменяет уровень экспрессии FOXD1 и фенотип клеток LUSC
Три малые интерферирующие РНК, нацеленные на METTL3, были протестированы в клетках SK-MES-1 и NCI-H226 с помощью qRT-PCR и вестерн-блоттинга (Рисунок 4A,B). Нокдаун METTL3 привел к снижению общего уровня сигнала m6A (Рисунок 4C). Оверэкспрессия FOXD1 повысила уровень FOXD1 без увеличения количества METTL3 (Рисунок 4D), а эксперимент по рескью с четырьмя группами подтвердил снижение содержания FOXD1 после нокдауна METTL3 и его восстановление с помощью конструкта FOXD1 (Рисунок 4E,F). Нокдаун METTL3 снизил жизнеспособность и миграцию клеток, а также увеличил апоптоз; реэкспрессия FOXD1 частично противодействовала этим изменениям (Рисунок 4G–I). Таким образом, данные по рескью согласуются с тем, что FOXD1 действует ниже METTL3 в культивируемых клетках.
Нарушение функции METTL3 связано со стабильностью РНК и белка FOXD1
Растущее число данных свидетельствует о том, что модификация мРНК m6A модулирует различные аспекты цикла мРНК, включая сплайсинг пре-мРНК, трансляцию, нуклеоцитоплазматический экспорт, деградацию и сплайсинг19,20. С помощью SRAMP были выявлены потенциальные мотивы m6A в РНК FOXD1, а в базе m6A2Target белок METTL3 был указан как предсказанный writer, связанный с FOXD1 в клетках H1299 (Рисунок 5A,B). Результаты этих баз данных позволяют формулировать гипотезы, но не демонстрируют связывание или сайт-специфическое метилирование в клетках LUSC. После блокады транскрипции актиномицином D уровень РНК FOXD1 снижался быстрее после нокдауна METTL3, чем в контрольных клетках (Рисунок 5C). Содержание FOXD1 было выше в клетках с гиперэкспрессией METTL3, обработанных MG132, чем в контрольных клетках с вектором, обработанных MG132, в то время как такая закономерность не наблюдалась после обработки CHX (Рисунок 5D,E). Временной ход обработки CHX показал более быструю потерю белка FOXD1 после нокдауна METTL3 (Рисунок 5F). В совокупности эти анализы согласуются с изменениями стабильности РНК и белка FOXD1, связанными с METTL3, однако они не идентифицируют модифицированный аденозин, не демонстрируют прямого связывания и не определяют reader m6A.
Нокдаун FOXD1 подавляет рост ксенографтов LUSC
Для проверки функции FOXD1 in vivo контрольные клетки SK-MES-1 и клетки SK-MES-1 с нокдауном FOXD1 имплантировали подкожно голым мышам (n = 8 в группе). Начиная с первой недели после имплантации, размеры опухолей измеряли каждые 4 дня в течение 20 дней; сбор опухолей проводили на 27-й день после инокуляции. Удаленные опухоли в группе с нокдауном FOXD1 были меньше (Рисунок 6A), кривые их роста поднимались медленнее (Рисунок 6B), а их конечная масса была ниже (Рисунок 6C). Окрашивание на FOXD1 и Ki-67 в опухолях с нокдауном также было снижено (Рисунок 6D). Данные эксперименты оценивают только нокдаун FOXD1; они не проверяют ингибирование METTL3 in vivo.
В совокупности было установлено, что FOXD1 гиперэкспрессируется в тканях и клетках плоскоклеточного рака легкого и способствует пролиферации, миграции и росту ксенографтов. Нокдаун METTL3 приводил к снижению общего уровня m6A, уменьшению экспрессии FOXD1 и подавлению злокачественного фенотипа клеток, в то время как повторная экспрессия FOXD1 частично обращала эти эффекты. Анализы стабильности подтверждают посттранскрипционную регуляцию FOXD1, связанную с METTL3, но не устанавливают прямое сайт-специфическое метилирование или восстановление всего пути in vivo. Дизайн исследования обобщен на Рисунке 7.
ДОСТУПНОСТЬ ДАННЫХ:
Все данные, проанализированные в этом исследовании, представлены в статье и на ее рисунках. Обезличенные числовые данные, лежащие в основе представленных сводных показателей, могут быть предоставлены автором, ответственным за переписку, по обоснованному запросу при условии соблюдения требований институционального управления и защиты участников. Файлы моделирования или специализированный код для анализа не использовались.
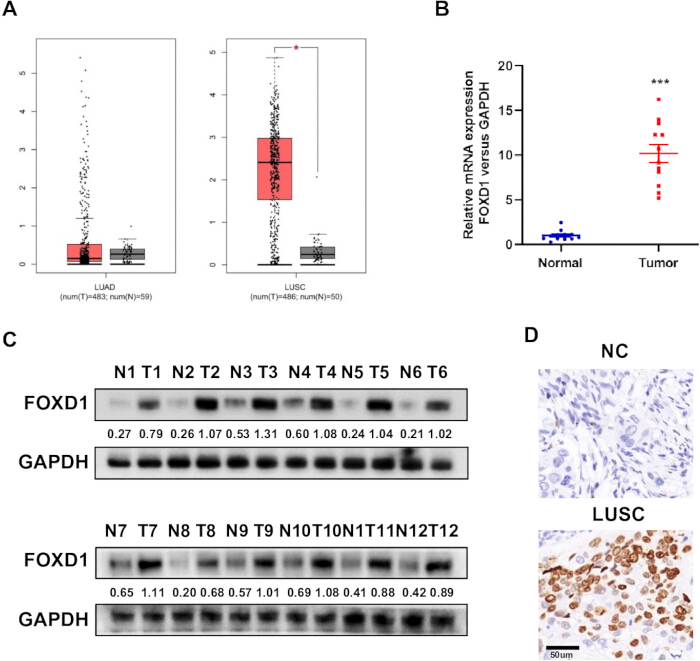
Рисунок 1: Экспрессия FOXD1 в образцах рака легкого человека. (A) Сравнение уровней транскриптов FOXD1 с помощью GEPIA при аденокарциноме легкого (LUAD) и плоскоклеточном раке легкого (LUSC) по сравнению с образцами нормальной ткани легкого. (B) Уровень транскриптов FOXD1 в 12 парах образцов LUSC и прилегающих нетуморных тканей. (C) Уровень белка FOXD1 в тех же парах тканей. (D) Репрезентативные изображения иммуногистохимического окрашивания на FOXD1. Ткани человека n = 12 пар; технические повторы в стиле in vitro не изменяют значение n на уровне пациентов. Масштабная линейка на панели D = 50 µm. ***P < 0.001. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
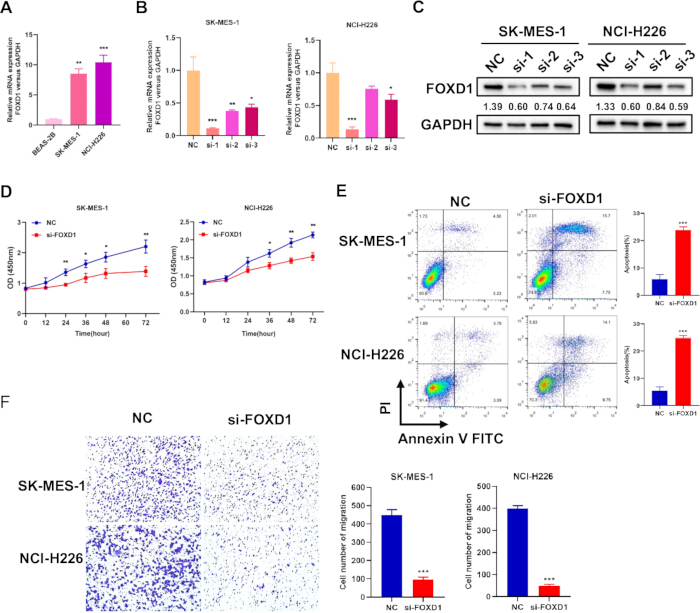
Рисунок 2: Эффекты нокдауна FOXD1 в клетках SK-MES-1 и NCI-H226. (A) Относительное количество транскриптов FOXD1 в клетках BEAS-2B, SK-MES-1 и NCI-H226. (B) Скрининг трех малых интерферирующих РНК, нацеленных на FOXD1, методом qRT-PCR через 48 ч после трансфекции. (C) Скрининг тех же трех малых интерферирующих РНК, нацеленных на FOXD1, методом вестерн-блоттинга. (D) Анализ с использованием набора для подсчета клеток Cell counting kit-8 после нокдауна FOXD1. (E) Анализ апоптоза с помощью аннексина V, меченного флуоресцеинизотиоцианатом, и пропидия иодида через 48 ч. (F) Миграция в системе Transwell, измеренная через 24 ч после посева трансфецированных клеток; архивные изображения полей зрения представлены без ретроспективного масштабного отрезка, так как метаданные калибровки были недоступны. Проведено три независимых биологических эксперимента. *P < 0.05; **P < 0.01; ***P < 0.001. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
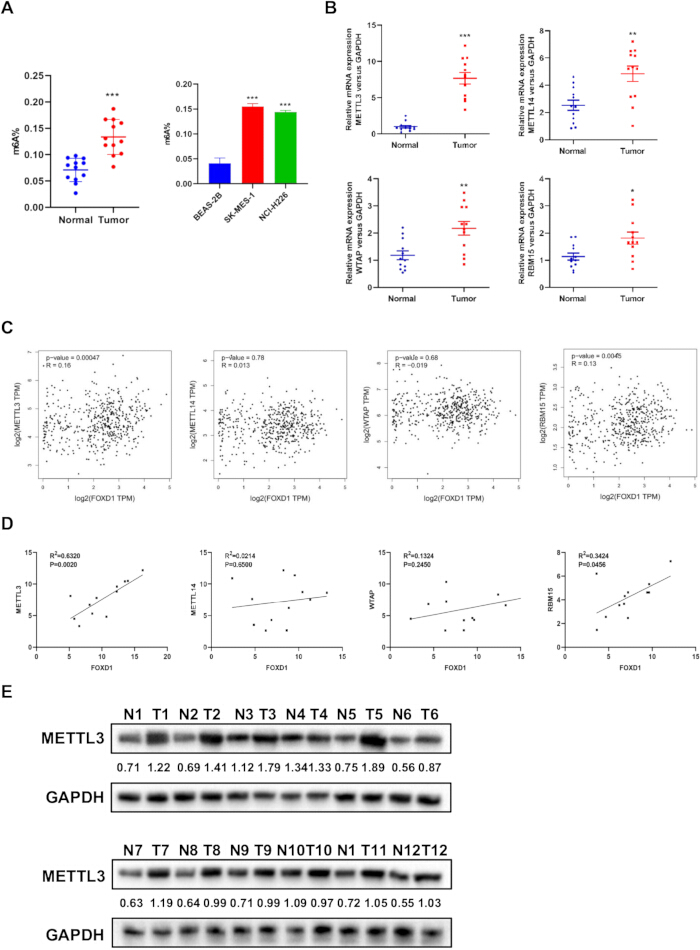
Рисунок 3: Общий уровень N6-метиладенозина и связь между METTL3 и FOXD1. (A) Общий сигнал m6A в парных тканях, а также в клетках BEAS-2B, SK-MES-1 и NCI-H226. (B) Транскрипты METTL3, METTL14, WTAP и RBM15 в 12 парах тканей LUSC и прилежащих тканей. (C) Корреляции GEPIA между FOXD1 и каждым из белков-райтеров. (D) Корреляции между FOXD1 и транскриптами райтеров в 12 опухолях LUSC. (E) Белок METTL3 в парных тканях LUSC и прилежащих тканях. Ткани человека n = 12 пар; клеточные анализы представляют три независимых биологических эксперимента. *P < 0.05; **P < 0.01; ***P < 0.001. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
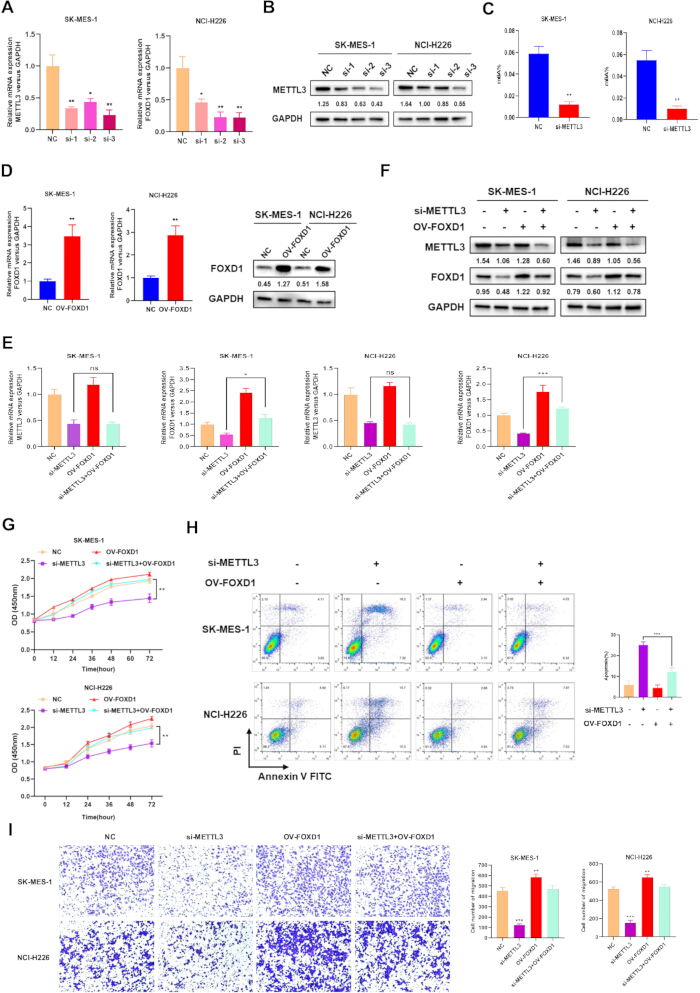
Рисунок 4: Нокдаун METTL3, спасение экспрессии FOXD1 и фенотипы клеток LUSC. (A) Скрининг трех малых интерферирующих РНК, нацеленных на METTL3, методом qRT-PCR через 48 ч после трансфекции. (B) Скрининг тех же трех малых интерферирующих РНК, нацеленных на METTL3, методом вестерн-блоттинга. (C) Общий сигнал m6A после нокдауна METTL3. (D) Содержание транскрипта и белка FOXD1 после гиперэкспрессии FOXD1. (E) Содержание транскриптов METTL3 и FOXD1 в контрольных условиях, при si-METTL3, ov-FOXD1 и комбинированном воздействии si-METTL3 + ov-FOXD1, измеренное методом qRT-PCR. (F) Содержание белков METTL3 и FOXD1 в тех же группах спасения, измеренное методом вестерн-блоттинга. (G) Анализ с использованием набора Cell Counting Kit-8. (H) Апоптоз, определенный методом проточной цитометрии. (I) Миграция в системе Transwell. Было проведено три независимых биологических эксперимента. Числа под полосами вестерн-блоттинга указывают на нормированные соотношения целевого белка/GAPDH. ns — статистически не значимо; *P < 0.05; **P < 0.01; ***P < 0.001. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
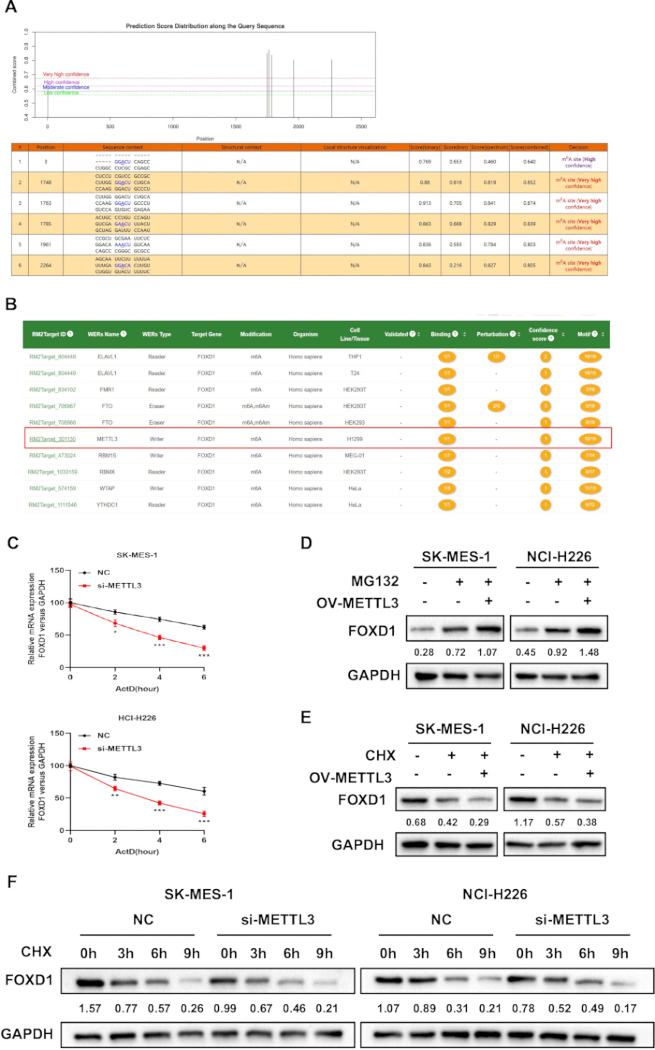
Рисунок 5: METTL3 связан с регуляцией транскрипта и белка FOXD1. (A) Сайты N6-метиладенозина в транскрипте FOXD1, предсказанные с помощью SRAMP. (B) Прогноз m6A2Target, идентифицирующий METTL3 как потенциальный белок-райтер, связанный с FOXD1. (C) Относительное содержание мРНК FOXD1 после обработки актиномицином D в концентрации 5 µg/mL в клетках отрицательного контроля и клетках с нокдауном METTL3 через 0 h, 2 h, 4 h и 6 h. (D) Содержание белка FOXD1 в необработанных клетках с векторным контролем, клетках с векторным контролем, обработанных MG132, и клетках с гиперэкспрессией METTL3, обработанных MG132 (10 µM MG132). (E) Содержание белка FOXD1 в необработанных клетках с векторным контролем, клетках с векторным контролем, обработанных CHX, и клетках с гиперэкспрессией METTL3, обработанных CHX (20 µM CHX). (F) Экспрессия белка FOXD1 после обработки CHX в концентрации 20 µM в течение 0 h, 3 h, 6 h и 9 h в клетках отрицательного контроля и клетках с нокдауном METTL3. GAPDH использовался в качестве контроля нагрузки. Эксперименты на клетках проводились в трех независимых биологических повторностях. Представленные блоты являются репрезентативными; числа под полосами указывают на нормализованные соотношения FOXD1/GAPDH. *P < 0.05; **P < 0.01; ***P < 0.001. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
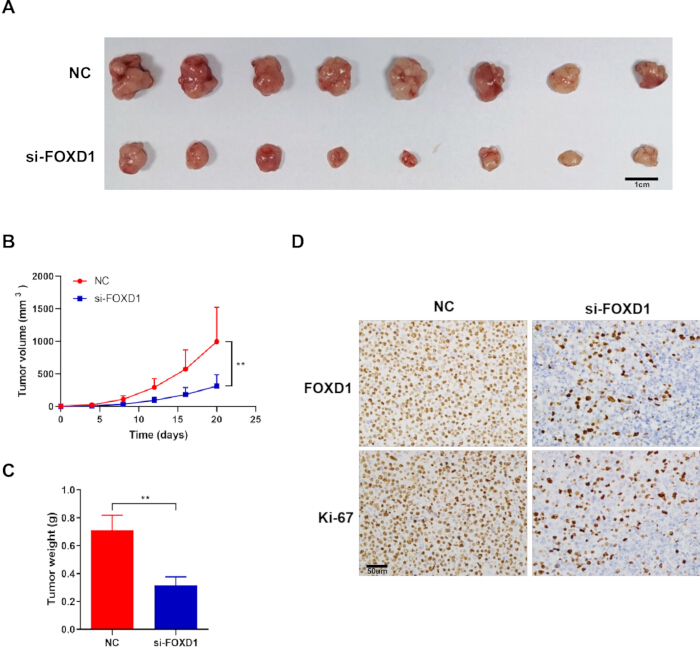
Рисунок 6: Нокдаун FOXD1 подавляет рост ксенографтов SK-MES-1. (A) Извлеченные опухоли из групп отрицательного контроля и нокдауна FOXD1; масштабная линейка = 1 cm. (B) Рост опухоли, измеряемый каждые 4 дня в течение 20 дней, начиная через 1 неделю после имплантации; сбор материала на 27-й день после инокуляции. (C) Вес опухоли при сборе. (D) Репрезентативные результаты иммуногистохимического окрашивания на FOXD1 и Ki-67 в ткани ксенографта; масштабная линейка = 50 µm. n = 8 мышей в группе; **P < 0.01. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
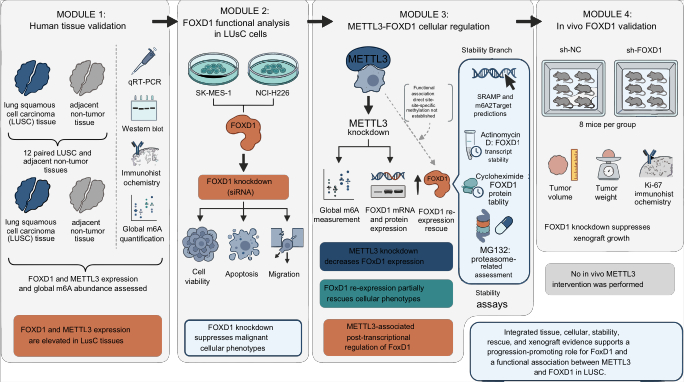
Рисунок 7: Общая схема исследования и границы доказательной базы. Пары тканей LUSC (n = 12 пар) и клеточные линии использовались для профилирования FOXD1, METTL3 и глобального m6A; за генетическим воздействием и восстановлением экспрессии следовали анализы жизнеспособности, апоптоза, миграции и стабильности. Модель ксенотрансплантата с нокдауном FOXD1 (n = 8 мышей в группе) наблюдалась в течение 20 дней. На диаграмме разграничены данные по METTL3, полученные на клеточных моделях, и специфические для FOXD1 данные in vivo, а также указаны неисследованные аспекты: прямое связывание, сайт-специфический m6A, идентификация ридера и активность METTL3 in vivo. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
| Ген | Направление | Последовательность (5′–3′) |
| FOXD1 | Прямой | TCTGAGTAACGCGTTATGCTT |
| FOXD1 | Обратный | CGGAATCGGACGCAAGTCTT |
| GAPDH | Прямой | GGAGCGAGATCCCTCCAAAAT |
| GAPDH | Обратный | GGCTGTTGTCATACTTCTCATGG |
| METTL14 | Прямой | CTGAAAGTGCCGACAGCATTGG |
| METTL14 | Обратный | CTCTCCTTCATCCAGATACTTACG |
| METTL3 | Прямой | CCAGCACAGCTTCAGCAGTTCC |
| METTL3 | Обратный | GCGTGGAGATGGCAAGACAGATG |
| RBM15 | Прямой | GTTGTGGCTTATGTGGAGTTTAC |
| RBM15 | Обратный | CACTTAAAACACCGGCATTGG |
| WTAP | Прямой | GCAACAACAGCAGGAGTCTGCA |
| WTAP | Обратный | CTGCTGGACTTGCTTGAGGTAC |
Таблица 1: Последовательности праймеров для количественной полимеразной цепной реакции с обратной транскрипцией. Последовательности указаны в направлении 5′–3′.
Обсуждение
Данный рабочий процесс подтверждает роль FOXD1 в развитии плоскоклеточного рака легкого (LUSC) на примере парных тканей, двух клеточных линий и модели ксенотрансплантата. Уровень FOXD1 был повышен в образцах опухолей и клетках LUSC, а его делеция приводила к снижению жизнеспособности и миграции клеток при одновременном увеличении апоптоза. Эти результаты согласуются с данными, связывающими FOXD1 с ростом, инвазией, резистентностью к терапии и неблагоприятными исходами при нескольких видах рака 10,11,12,13,21,22,23,24,25,26,27,28. Кроме того, они дополняют предыдущие наблюдения при LUSC, связывая клеточные фенотипы с экспериментом по ксенотрансплантации с нокдауном FOXD1.
Анализы парных тканей и клеток дополнительно связали содержание FOXD1 с METTL3 и общим уровнем m6A. Экспрессия четырех генов-«райтеров» была повышена в 12 парах опухолей, однако METTL3 продемонстрировал наиболее сильную положительную связь с FOXD1. В культивируемых клетках истощение METTL3 приводило к снижению общего уровня m6A и содержания FOXD1, а реэкспрессия FOXD1 частично восстанавливала связанные с этим фенотипы жизнеспособности, апоптоза и миграции. Эти данные подтверждают функциональную взаимосвязь METTL3-FOXD1 в исследованных клетках, что согласуется с широким влиянием регуляции m6A на злокачественные фенотипы29,30,31,32,33,34,35,36.
Для обеспечения воспроизводимости важны несколько пунктов протокола. Эффективность нокдауна должна быть подтверждена для каждой клеточной линии перед проведением функциональных анализов, а условия рескью должны верифицировать восстановление FOXD1, чтобы избежать ошибочной интерпретации конструкции как гиперэкспрессии METTL3. При обработке актиномицином D, CHX и MG132 необходимо использовать концентрации и время отбора проб, указанные в протоколе. В анализах с использованием вставок Transwell следует контролировать плотность клеток, градиент сыворотки и единообразие поля визуализации. Если исследователь адаптирует рабочий процесс, для длительных экспериментов in vivo может быть предпочтительным использование стабильных коротких шпилечных РНК или редактирование генома, однако эти альтернативы требуют независимой валидации.
Данное исследование имеет несколько ограничений. Человеческая когорта состояла из 12 парных образцов и не была предназначена для моделирования исходов. Для функциональных анализов была использована только одна выбранная малая интерферирующая РНК, поэтому валидация отсутствия нецелевых эффектов, не зависящая от последовательности, не была проведена. Интерпретация результатов вестерн-блоттинга ограничена нормализованными значениями, представленными на рисунках; апостериорное инференциальное тестирование не проводилось. Прогнозы SRAMP и m6A2Target, глобальные измерения m6A и анализы стабильности не заменяют иммунопреципитацию РНК, иммунопреципитацию метилированной РНК, сайт-направленный мутагенез или специфическое спасение функции ридера. METTL3 не подвергался воздействию in vivo, поэтому данные по ксенографтам не могут служить подтверждением утверждений о действии METTL3 in vivo.
В будущих исследованиях следует протестировать фармакологическое ингибирование METTL3, картировать сайты m6A, связанные с FOXD1, и их прямое связывание, идентифицировать соответствующий белок-ридер, а также повторить стратегию восстановления in vivo. Для оценки клинических исходов также потребуется более крупная, независимо аннотированная когорта. В рамках настоящего исследования подтверждается роль FOXD1 как функционального регулятора LUSC и приводятся клеточные доказательства влияния METTL3 на содержание FOXD1; однако полный путь METTL3-m6A-ридер-FOXD1 не установлен.
Раскрытие информации
Авторы заявляют об отсутствии конфликта интересов.
Вклад авторов:
D.A. и Q.D. участвовали в сборе данных и получении клинической информации. K.W. и S.F. проводили эксперименты по молекулярной биологии и анализ данных. L.G. участвовал в разработке дизайна исследования и интерпретации данных. H.Z. провел статистический анализ и оказал помощь в валидации данных. Y.S. проводил эксперименты на животных и иммуногистохимический анализ. Q.P. внес вклад в проведение тестов на миграцию и предоставление экспериментальных ресурсов. G.L. разработал концепцию и руководил исследованием, а также подготовил черновик рукописи. Все авторы ознакомились с рукописью, отредактировали и утвердили ее.
Благодарности
Авторы благодарят Zhe Tang и Yan Zhang за техническую помощь в проведении количественной полимеразной цепной реакции и вестерн-блоттинга соответственно, а также Yang Li за помощь в проведении анализов жизнеспособности клеток и апоптоза. Данное исследование было профинансировано Фондом естественных наук Тибетского автономного региона (№ XZ202001ZR0040G).
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| Система для быстрой ПЦР в реальном времени 7500 | Applied Biosystems | 7500 Fast | ОТ-ПЦР в реальном времени (RRID: SCR_018051) |
| Актиномицин D | Sigma-Aldrich | SBR00013 | анализ стабильности РНК, 5 µg/mL |
| Набор для анализа апоптоза Annexin V-FITC/PI | BD Biosciences | 556547 | Проточная цитометрия апоптоза |
| атимические голые мыши BALB/c | Данный текст отсутствует. | Данные отсутствуют | Подкожный ксенотрансплантат |
| BEAS-2B | Банк клеток Академии наук Китая | https://www.cellosaurus.org/CVCL_0168 | Референсная линия нетрансформированных эпителиальных клеток бронхов; RRID: CVCL_0168 |
| Набор для подсчета клеток Cell Counting Kit-8 | Beyotime | C0037 | Жизнеспособность клеток |
| Кристаллический фиолетовый | Нет данных | Данные отсутствуют | Окрашивание в системе Transwell, 10 мин |
| Циклогексимид | MedChemExpress | HY-12320 | Анализы стабильности белков, 20 µM |
| Набор субстрата DAB | Данных нет | Данные отсутствуют | Визуализация при иммуногистохимическом анализе |
| модифицированная среда Игла-Далбеко | Gibco | 11995065 | Культура клеток |
| Реагент для усиленной хемилюминесценции | Thermo Fisher Scientific | A38556 | Детекция методом вестерн-блоттинга |
| Фетальная бычья сыворотка | Gibco | 10091148 | Клеточная культура, 10% |
| Проточный цитометр | Поскольку исходный текст не был предоставлен, пожалуйста, введите текст, который необходимо перевести. | Данные отсутствуют | Измерение апоптоза |
| антитела к FOXD1 | Thermo Fisher Scientific | PA5-27142 | Вестерн-блоттинг, 1:1000; иммуногистохимия |
| Конструкт для гиперэкспрессии FOXD1 | Нет данных | Нет данных | Восстановление экспрессии FOXD1 |
| антитело к GAPDH | Технологии клеточной сигнализации | 5174 | Контроль загрузки для вестерн-блоттинга, 1:2 000 (RRID: AB_10622025) |
| GEPIA | Пекинский университет | http://gepia.cancer-pku.cn/ | Запросы на экспрессию и корреляцию; RRID: SCR_018294 |
| GraphPad Prism | Программное обеспечение GraphPad | Версия 8 | Статистический анализ; RRID: SCR_002798 |
| Конъюгат антител к кроличьему иммуноглобулину G с пероксидазой хрена | Данные отсутствуют | Поскольку исходный текст не был предоставлен, пожалуйста, введите текст, который необходимо перевести. | Вестерн-блоттинг, 1 ч при комнатной температуре |
| ImageJ | Национальные институты здравоохранения | https://imagej.nih.gov/ij/ | Количественный анализ изображений миграции; RRID: SCR_003070 |
| антитело к Ki-67 | Данные отсутствуют | Поскольку исходный текст не был предоставлен, пожалуйста, отправьте текст для перевода. | Иммуногистохимия ксенотрансплантатов |
| m6A2Target | Веб-ресурс | http://m6a2target.canceromics.org/ | Предполагаемая ассоциация регулятора m6A с мишенью |
| Антитело к метилтрансферазоподобному белку 3 | Proteintech | 15073-1-AP | Вестерн-блоттинг, 1:1000; RRID: AB_2142033 |
| MG132 | MedChemExpress | HY-13259 | Анализ ингибирования протеасомы, 10 µM |
| Колориметрический анализ N6-метиладенозина | Epigentek | P-9005-96 | Измерение общего уровня m6A |
| NCI-H226 | Банк клеток Китайской академии наук | https://www.cellosaurus.org/CVCL_1544 | Клеточная модель LUSC; RRID: CVCL_1544 |
| микроскоп Olympus | Olympus | Модель не записана | Визуализация в системе Transwell |
| Пенициллин-стрептомицин | Gibco | 10378016 | Культура клеток, 1% |
| Поливинилиденфторидная мембрана | Merck | IPVH00010 | Перенос при вестерн-блоттинге |
| Набор реагентов для обратной транскрипции PrimeScript | Takara | RR037A | Синтез комплементарной ДНК |
| Проект R для статистических вычислений | R Foundation | https://www.r-project.org/ | Статистический анализ; RRID: SCR_001905 |
| Лизирующий буфер для радиоиммунопреципитационного анализа | Beyotime | P0013B | Экстракция белков |
| RNAiso Plus | Takara | 9108 | Экстракция РНК |
| реагенты siRNA | Поскольку исходный текст не был предоставлен, пожалуйста, отправьте содержимое, которое необходимо перевести. Я готов приступить к профессиональному переводу ваших научных и образовательных материалов JoVE на русский язык, строго следуя всем указанным инструкциям по терминологии, стилю и точности. | Поскольку исходный текст не был предоставлен, пожалуйста, введите текст, который необходимо перевести. | Нокдаун FOXD1 и METTL3; выбрана siRNA-1 |
| SK-MES-1 | Банк клеток Академии наук Китая | https://www.cellosaurus.org/CVCL_0630 | Клеточная модель и модель ксенографта LUSC; RRID: CVCL_0630 |
| SRAMP | Веб-ресурс | http://www.cuilab.cn/sramp | Прогнозирование потенциальных сайтов m6A в гене FOXD1 |
| мастер-микс для ПЦР с TB Green | Takara | RR820A | ОТ-ПЦР в реальном времени |
| Реагент для трансфекции | Поскольку исходный текст не был предоставлен, пожалуйста, отправьте контент, который необходимо перевести. | Данные отсутствуют | доставка siRNA и плазмид |
| Вставки Transwell | Поскольку исходный текст не был предоставлен, пожалуйста, введите текст для перевода. | Поскольку исходный текст не был предоставлен, пожалуйста, введите текст, который необходимо перевести. | Анализ миграции |
Ссылки
- Li MY, Liu LZ, Dong M. Progress on pivotal role and application of exosome in lung cancer carcinogenesis, diagnosis, therapy and prognosis. Mol Cancer. 2021;20(1):22.
- Hirsch FR, et al. Lung cancer: current therapies and new targeted treatments. Lancet. 2017;389(10066):299-311.
- Li Y, et al. Transcriptomic and functional network features of lung squamous cell carcinoma through integrative analysis of GEO and TCGA data. Sci Rep. 2018;8(1):15834.
- Fu L, et al. The value of CEP55 gene as a diagnostic biomarker and independent prognostic factor in LUAD and LUSC. PLoS One. 2020;15(5):e0233283.
- Chen TJ, et al. MicroRNA-665 facilitates cell proliferation and represses apoptosis through modulating Wnt5a/β-catenin and Caspase-3 signaling pathways by targeting TRIM8 in LUSC. Cancer Cell Int. 2021;21(1):215.
- Chen C, et al. CXCL5 induces tumor angiogenesis via enhancing the expression of FOXD1 mediated by the AKT/NF-κB pathway in colorectal cancer. Cell Death Dis. 2019;10(3):178.
- Wu Q, et al. FOXD1-AS1 regulates FOXD1 translation and promotes gastric cancer progression and chemoresistance by activating the PI3K/AKT/mTOR pathway. Mol Oncol. 2021;15(1):299-316.
- Chen Y, Liang W, Liu K, Shang Z. FOXD1 promotes EMT and cell stemness of oral squamous cell carcinoma by transcriptional activation of SNAI2. Cell Biosci. 2021;11(1):154.
- Liang H, et al. FOXD1 is a prognostic biomarker and correlated with macrophages infiltration in head and neck squamous cell carcinoma. Biosci Rep. 2021;41(7):BSR20202929.
- Zhao YF, et al. FOXD1 promotes breast cancer proliferation and chemotherapeutic drug resistance by targeting p27. Biochem Biophys Res Commun. 2015;456(1):232-7.
- Nakayama S, et al. FOXD1 expression is associated with poor prognosis in non-small cell lung cancer. Anticancer Res. 2015;35(1):261-8.
- Li D, et al. FOXD1 promotes cell growth and metastasis by activation of vimentin in NSCLC. Cell Physiol Biochem. 2018;51(6):2716-2731.
- Chen C, et al. miR-30a-5p inhibits proliferation and migration of lung squamous cell carcinoma cells by targeting FOXD1. Biomed Res Int. 2020;2020:2547902.
- Chen XY, Zhang J, Zhu JS. The role of m(6)A RNA methylation in human cancer. Mol Cancer. 2019;18(1):103.
- Jiang X, et al. The role of m6A modification in the biological functions and diseases. Signal Transduct Target Ther. 2021;6(1):74.
- Ma Z, Ji J. N6-methyladenosine (m6A) RNA modification in cancer stem cells. Stem Cells. 2020;38(12):1511-1519.
- Gao R, et al. m6A modification: a double-edged sword in tumor development. Front Oncol. 2021;11:679367.
- He L, et al. Functions of N6-methyladenosine and its role in cancer. Mol Cancer. 2019;18(1):176.
- Sun T, Wu R, Ming L. The role of m6A RNA methylation in cancer. Biomed Pharmacother. 2019;112:108613.
- An Y, Duan H. The role of m6A RNA methylation in cancer metabolism. Mol Cancer. 2022;21(1):14.
- Sack LM, et al. Profound tissue specificity in proliferation control underlies cancer drivers and aneuploidy patterns. Cell. 2018;173(2):499-514.e23.
- Vazquez A, et al. Cancer metabolism at a glance. J Cell Sci. 2016;129(18):3367-73.
- Cai K, et al. FOXD1 facilitates pancreatic cancer cell proliferation, invasion, and metastasis by regulating GLUT1-mediated aerobic glycolysis. Cell Death Dis. 2022;13(9):765.
- Zhou L, et al. Down-regulation of miR-30a-5p is associated with poor prognosis and promotes chemoresistance of gemcitabine in pancreatic ductal adenocarcinoma. J Cancer. 2019;10(21):5031-5040.
- Pan F, Li M, Chen W. FOXD1 predicts prognosis of colorectal cancer patients and promotes colorectal cancer progression via the ERK 1/2 pathway. Am J Transl Res. 2018;10(5):1522-1530.
- Qiu S, et al. Diagnostic and prognostic value of FOXD1 expression in head and neck squamous cell carcinoma. J Cancer. 2021;12(3):693-702.
- Wu T, et al. miR-30e-5p-mediated FOXD1 promotes cell proliferation by blocking cellular senescence and apoptosis through p21/CDK2/Rb signaling in head and neck carcinoma. Cell Death Discov. 2023;9(1):295.
- Sun Q, et al. FOXD1 promotes dedifferentiation and targeted therapy resistance in melanoma by regulating the expression of connective tissue growth factor. Int J Cancer. 2021;149(3):657-674.
- Wang T, Kong S, Tao M, Ju S. The potential role of RNA N6-methyladenosine in cancer progression. Mol Cancer. 2020;19(1):88.
- Zeng C, Huang W, Li Y, Weng H. Roles of METTL3 in cancer: mechanisms and therapeutic targeting. J Hematol Oncol. 2020;13(1):117.
- Haussmann IU, et al. m6A potentiates Sxl alternative pre-mRNA splicing for robust Drosophila sex determination. Nature. 2016;540(7632):301-304.
- Liu N, et al. N(6)-methyladenosine-dependent RNA structural switches regulate RNA-protein interactions. Nature. 2015;518(7540):560-4.
- Kennedy EM, et al. Posttranscriptional m6A editing of HIV-1 mRNAs enhances viral gene expression. Cell Host Microbe. 2016;19(5):675-685.
- Lin S, et al. The m(6)A methyltransferase METTL3 promotes translation in human cancer cells. Mol Cell. 2016;62(3):335-345.
- Han J, et al. METTL3 promote tumor proliferation of bladder cancer by accelerating pri-miR221/222 maturation in m6A-dependent manner. Mol Cancer. 2019;18(1):110.
- Li A, et al. Cytoplasmic m(6)A reader YTHDF3 promotes mRNA translation. Cell Res. 2017;27(3):444-447.