В данном исследовании представлена упрощенная многоклеточная модель гемато-опухолевого барьера (ГОБ) in vitro, сочетающая совместное культивирование в системе Transwell и 3D-сфероиды опухоли, что создает физиологически релевантную платформу для изучения метастазирования рака молочной железы в головной мозг и скрининга таргетной терапии.
Методическая статья
Протокол с использованием вставок для культур клеток для создания упрощенной многоклеточной модели гемато-опухолевого барьера метастазов рака молочной железы в головной мозг in vitro
* These authors contributed equally
В этой статье
Краткое содержание
Аннотация
Эффективные методы лечения метастазов рака молочной железы в головном мозге (BCBM) остаются ограниченными, главным образом из-за того, что кровяно-опухолевый барьер (BTB) препятствует проникновению многих химиотерапевтических и таргетных препаратов в метастатические очаги в центральной нервной системе. Для моделирования отдельных особенностей этой сложной микросреды in vitro в данном исследовании представлен стандартизированный протокол создания упрощенной многоклеточной трехмерной модели BTB. Метод состоит из трех основных этапов. Во-первых, создается компартмент гематоэнцефалического барьера (ГЭБ) с использованием культуральных вставок с размером пор 0,4 μm. Эндотелиальные клетки микрососудов головного мозга человека (HBMECs) высевают на базальную сторону пористой мембраны, а через 1 день на апикальную сторону высевают астроциты человека (HA) и клетки микроглии человека HMC3 (HMC3). На примере клеток SK-BR-3 клетки рака молочной железы культивируют методом «висячей капли» для формирования однородных, правильной формы 3D-сфероидов опухоли после 3 дней культивирования. Затем сфероиды переносят на апикальную сторону пористой мембраны, покрытой матриксом базальной мембраны, что обеспечивает физическое разделение при сохранении химического взаимодействия между клетками барьера и опухолевыми сфероидами в процессе совместного культивирования. Данная платформа позволяет осуществлять точный контроль временной шкалы эксперимента и вызывает морфологические и маркерные изменения астроцитов, соответствующие перитуморальному реактивному ответу, позволяя при этом оценивать целостность эндотелиального барьера и парацеллюлярную проницаемость.
Введение
Метастазы в головной мозг являются распространенным осложнением на поздних стадиях различных злокачественных солидных опухолей, включая рак молочной железы и рак легкого1,2. Прогноз при таком состоянии крайне неблагоприятный, а варианты лечения ограничены1,2. В здоровой центральной нервной системе гематоэнцефалический барьер (ГЭБ) представляет собой узкоспециализированный и динамичный интерфейс, сформированный преимущественно плотно соединенными микрососудистыми эндотелиальными клетками мозга, при этом его целостность и функция поддерживаются базальной мембраной сосудов и скоординированным взаимодействием с перицитами, астроцитами, нейронами, микроглией, клетками олигодендроцитарного ряда и другими компонентами нейроваскулярного модуля3. Благодаря плотным контактам между эндотелиальными клетками и поддержке периферических глиальных клеток ГЭБ строго ограничивает проникновение экзогенных веществ в центральную нервную систему4. После распространения и закрепления клеток рака молочной железы в мозге метастатические очаги разрастаются, усиливается локальная гипоксия, активизируются воспалительные сигналы и происходит ремоделирование нейроваскулярного модуля (NVU), в результате чего постепенно формируется гемато-опухолевый барьер (ГОБ)5. Несмотря на то, что локальная проницаемость ГОБ выше, чем проницаемость ГЭБ, различия в проницаемости для молекул разного размера в сочетании с неравномерной перфузией крови приводят к низкому накоплению лекарственных средств в опухолях мозга6. Таким образом, изучение биологии ГОБ и разработка стратегий доставки, способных преодолеть этот барьер, стали важными приоритетами в нейроонкологии.
На сегодняшний день характеристики и механизмы трансформации ГЭМ описаны лишь частично, а эффективные варианты лекарственной терапии метастазов рака молочной железы в головной мозг (МРМГМ) в клинической практике остаются ограниченными. Одной из проблем является ограниченная доступность клинических образцов, полученных из метастазов в головном мозге, наряду с недостаточным количеством и неполной функциональной характеристикой существующих моделей ГЭМ. Животные модели in vivo, в частности мышиные модели7,8, по-прежнему широко используются в исследованиях ГЭМ. Однако эти модели имеют свои недостатки, включая межвидовые различия, низкую пропускную способность, а также сложности в стандартизации и воспроизводимости, что может препятствовать изучению механизмов и разработке лекарственных препаратов9,10. Кроме того, в современных моделях ГЭМ in vitro обычно используются кокультуры опухолевых клеток и клеток барьера в системах с вставками для культивирования клеток или в микрофлюидных чипах.
Существующие модели часто не обладают трехмерной структурой опухолей и, следовательно, ограничены в воспроизведении пространственных особенностей, характерных для метастазов в головном мозге, включая градиенты плотности клеток, гипоксические/некротические области, ограниченную диффузию молекул и гетерогенное распределение клеток11,12. Для введения определенного трехмерного опухолевого компонента мы использовали модель сфероидов, которая является простой, воспроизводимой и совместимой с applications для скрининга. На этой основе мы разработали упрощенный многоклеточный отдел ГЭБ человека in vitro и интегрировали его со сфероидами опухоли для создания упрощенной модели ГЭБ-опухолевого барьера (BTB) (Рисунок 1A), которая отражает отдельные структурные и клеточные особенности микроокружения метастазов в головном мозге. Данная модель удобна в использовании, поддерживает количественные измерения проницаемости барьера и позволяет визуализировать пространственные изменения в популяциях ассоциированных с опухолью астроцитов и микроглии.
В данном протоколе подробно описаны критические этапы: от подготовки и посева клеток до создания опухолевых сфероидов, наложения слоя матрикса базиментальной мембраны, подготовки соответствующего контроля и переноса сфероидов, что обеспечивает стандартизированный рабочий процесс для построения этой упрощенной модели ГЭБ.
Протокол
Данное исследование было проведено в соответствии с принципами Хельсинкской декларации и одобрено Комитетом по этике Второй больницы Даляньского медицинского университета (номер одобрения JW2026-019-01). Все данные пациентов были анонимизированы перед проведением анализа. Инструменты исследования, использованные в данном протоколе, перечислены в Таблице материалов.
1. Подготовка модели гематоэнцефалического барьера (ГЭБ)
- Общие требования
- Все операции выполняйте в стерильном ламинарном шкафу, строго соблюдая правила асептики.
- Используйте 12-луночные вставки для культивирования клеток с ПЭТ-мембранами с размером пор 0.4 µm и эффективной площадью мембраны 1.12 cm2.
- Покрытие коллагеном I типа
- Добавьте 1–2 mL раствора для покрытия коллагеном I типа в каждый культуральный флакон или чашку и равномерно распределите его по нижней поверхности.
- Добавьте по 200 µL и 800 µL раствора для покрытия на апикальную и базальную стороны каждой вставки для культивирования клеток соответственно. Осторожно встряхните планшет, чтобы обеспечить полный контакт с мембраной, избегая образования пузырьков воздуха под мембраной.
- Инкубируйте покрытые сосуды и вставки при 37 °C в атмосфере 5% CO₂ в течение 1 ч. Удалите раствор для покрытия и дважды промойте PBS.
- Храните покрытые флаконы, чашки и вставки для культивирования клеток при 37 °C в атмосфере 5% CO₂ и используйте их в течение 3 дней. Непосредственно перед использованием один раз промойте PBS.
- Перед культивированием клеток обработайте сосуды для HBMEC и HA коллагеном I типа. Клетки HMC3-RFP не требуют покрытия коллагеном I типа.
- Приготовление раствора для покрытия коллагеном I типа
- Растворите 60 µL ледяной уксусной кислоты в 50 mL ультрачистой воды и охладите раствор при 4 °C.
ОСТОРОЖНО: Ледяная уксусная кислота вызывает химические ожоги. Работайте в вытяжном шкафу, используя соответствующие средства индивидуальной защиты, включая перчатки, лабораторный халат и средства защиты глаз. Утилизируйте отходы уксусной кислоты в соответствии с правилами учреждения по обращению с химическими отходами. - Профильтруйте раствор через шприцевой фильтр 0.22 µm, добавьте 500 µL коллагена I типа (9.45 mg/mL), тщательно перемешайте и храните при 4 °C до использования.
- Растворите 60 µL ледяной уксусной кислоты в 50 mL ультрачистой воды и охладите раствор при 4 °C.
- Подготовка клеток
- Культивируйте клетки HBMEC, HA и HMC3-RFP до достижения 80%–90% конфлюэнтности перед использованием.
ОСТОРОЖНО: С клеточными линиями человеческого происхождения и материалами, связанными с тканями человека, следует обращаться как с потенциально биоопасными. Соблюдайте правила биологической безопасности учреждения и используйте соответствующие средства индивидуальной защиты. Утилизируйте загрязненные культуральные материалы как биоопасные отходы.
- Культивируйте клетки HBMEC, HA и HMC3-RFP до достижения 80%–90% конфлюэнтности перед использованием.
- Посев HBMEC в день 0
- Отделите HBMEC с помощью рекомбинантной трипсин-подобной протеазы (1×), центрифугируйте клетки и ресуспендируйте осадок для получения суспензии одиночных клеток.
- Определите плотность клеток и доведите суспензию до такой концентрации, чтобы 120 µL содержали 1.5 × 10⁵ HBMEC для каждой вставки для культивирования клеток.
- Переверните планшет и внесите 120 µL суспензии HBMEC на базальную сторону пористой мембраны. Избегайте образования пузырьков воздуха при посеве (Рисунок 1B).
- Закройте лунки, оставьте 12-луночный планшет в перевернутом положении и инкубируйте в течение 6 ч.
- Верните планшет в прямое положение, добавьте по 200 µL и 800 µL полной среды для культивирования ECM в верхнюю и нижнюю камеры соответственно и продолжайте инкубацию.
- Посев клеток HA и HMC3-RFP в день 1
- Отделите клетки HA с помощью рекомбинантной трипсин-подобной протеазы (1×), а клетки HMC3-RFP — с помощью 0.25% трипсин-ЭДТА. Центрифугируйте и ресуспендируйте два типа клеток раздельно.
- Определите плотность клеток и объедините 2.0 × 10⁵ клеток HA с 4.0 × 10³ клеток HMC3-RFP для каждой вставки для культивирования клеток.
- Центрифугируйте смесь клеток, удалите супернатант и ресуспендируйте осадок в 200 µL смешанной полной среды (полная среда AM : полная среда MEM = 5:1). Равномерно внесите 200 µL суспензии в верхнюю камеру, избегая образования пузырьков воздуха (Рисунок 1B).
- Добавьте 800 µL полной среды для культивирования ECM в нижнюю камеру, держите планшет в вертикальном положении в инкубаторе и ежедневно меняйте среду.
2. Подготовка трехмерных опухолевых сфероидов
- Подготовка клеток SK-BR-3
- Культивируйте клетки SK-BR-3 до достижения 80%–90% конфлюэнтности перед началом формирования сфероидов.
- Отделите клетки SK-BR-3 с помощью 0,25% трипсина-ЭДТА, центрифугируйте клетки и ресуспендируйте осадок для получения суспензии из отдельных клеток.
- Определите плотность клеток и доведите концентрацию суспензии таким образом, чтобы каждая капля объемом 30 µL содержала 2 × 10⁴ клеток.
- Формирование висячих капель
- Переверните чашку для культивирования клеток диаметром 10 см и нанесите капли суспензии клеток объемом 30 µL на крышку чашки. Разместите примерно по 20 капель на каждой крышке.
- Установите дно чашки и быстро переверните собранную чашку (Рисунок 1B). Подготовьте капли заново, если они стекают с крышки или теряют форму.
- Культивирование сфероидов
- Добавьте в чашку 5 mL PBS и поместите ее в инкубатор. Не тревожьте чашку в течение первых 2 дней культивирования.
- Для длительного культивирования каждые 2 дня добавляйте по 10 µL полной питательной среды в каждую каплю.
- Добавляйте среду с края каждой капли с помощью наконечника пипетки, избегая контакта с опухолевыми сфероидами.
3. Подготовка упрощенной модели гематоопухолевого барьера (ГОБ)
- Подготовка материалов
- Покрыть необходимые сосуды для культивирования клеток и вставки для культивирования клеток (ПЭТ-мембрана, размер пор 0.4 µm) коллагеном I типа и хранить их в инкубаторе до использования.
- Отрезать концы наконечников дозатора на 200 µL ножницами и стерилизовать модифицированные наконечники путем автоклавирования.
- Создание модели
- День 0–1: Создать модель ГЭБ и подготовить опухолевые сфероиды, как описано выше.
- День 2: Разморозить матрикс базиментальной мембраны на льду. Удалить культуральную среду из обеих камер и промыть обе камеры раствором PBS.
- Добавить 800 µL полной среды ECM в нижнюю камеру и 30 µL размороженного матрикса базиментальной мембраны в верхнюю камеру. Равномерно распределить матрикс базиментальной мембраны по пористой мембране.
- Инкубировать планшет при 37 °C в течение 20 мин, затем медленно добавить 200 µL смешанной полной среды (AM:MEM = 5:1) вдоль боковой стенки верхней камеры. Вернуть планшет в инкубатор (Рисунок 1B).
- Держать матрикс базиментальной мембраны на льду и работать быстро. Для аспирации матрикса базиментальной мембраны использовать предварительно охлажденный наконечник дозатора.
- Сопоставимый контроль без сфероидов/с матриксом базиментальной мембраны
- Подготовить контрольные вставки, используя тот же объем матрикса базиментальной мембраны (30 µL), состав среды, этапы промывки, время инкубации и график ежедневной смены среды, что и в условии BTB, но пропустить перенос опухолевых сфероидов на 3-й день. Таким образом, сопоставимый контроль отличается от условия BTB только наличием или отсутствием опухолевых сфероидов, а не воздействием матрикса базиментальной мембраны или способом обращения с ним.
- Перенос опухолевых сфероидов на 3-й день
- Осмотреть опухолевые сфероиды под вертикальным микроскопом и убедиться, что они имеют правильную форму и образовали компактные сфероиды.
- Аспирировать опухолевые сфероиды в микроцентрифужные пробирки объемом 1.5 mL с помощью наконечника с обрезанным концом и дважды промыть их раствором PBS. Обращаться со сфероидами осторожно, чтобы избежать их разрушения.
- Заменить среду в нижней камере и удалить культуральную среду из верхней камеры.
- Перенести по пять опухолевых сфероидов в каждую верхнюю камеру с помощью наконечника с обрезанным концом.
- Добавить 200 µL смешанной полной культуральной среды (AM:MEM = 5:1) в верхнюю камеру и осторожно встряхнуть планшет, чтобы предотвратить контакт или слияние сфероидов (Рисунок 1B).
- Выдерживать планшет в инкубаторе и ежедневно менять среду.
- Сбор образцов
- Собрать образцы на 7-й день для последующих экспериментов или скорректировать время сбора в соответствии с требованиями эксперимента.
4. Измерение трансэндотелиального электрического сопротивления (TEER)
- Подготовка электродов
- Полностью зарядите измеритель TEER и погрузите палочковидные электроды в 75% этанол на 15 мин.
ПРЕДОСТЕРЕЖЕНИЕ: Этанол легко воспламеняется. Держите 75% этанол вдали от открытого огня, искр и других источников возгорания; работайте с ним в соответствии с правилами техники безопасности при работе с химическими веществами, принятыми в вашем учреждении. - Стерилизуйте бокс биологической безопасности ультрафиолетовым излучением в течение 30 мин. Не подвергайте электроды прямому воздействию ультрафиолетового излучения.
- Извлеките электроды из этанола, выдержите их в PBS в течение 15 мин для уравновешивания и высушите в стерильных условиях.
- Полностью зарядите измеритель TEER и погрузите палочковидные электроды в 75% этанол на 15 мин.
- Уравновешивание вставок для клеточных культур
- Достаньте из инкубатора 12-луночный планшет с вставками для клеточных культур и выдержите его при комнатной температуре в течение 15 мин перед началом измерений.
- Измерение сопротивления
- Подготовьте контрольную вставку без клеток, наполнив верхнюю и нижнюю камеры одной и той же полной питательной средой в объемах 200 µL и 800 µL соответственно.
- Осторожно введите палочковидные электроды вдоль края вставки для клеточной культуры, не касаясь пористой мембраны или дна лунки.
- Промойте электроды в PBS и высушите их. Измерьте каждую вставку с клетками, используя ту же процедуру, и запишите значение сопротивления как R₍measured₎.
- Расчет TEER
- Рассчитайте значение трансэндотелиального электрического сопротивления (TEER) по следующей формуле13:
TEER (Ω·cm²) = (R(measured) − R(blank) × S (1.1) - R(measured) — сопротивление пористой мембраны с клеточным слоем (Ω); R(blank) — сопротивление пористой мембраны без клеток (Ω); S — эффективная площадь мембраны (cm2). Эффективная площадь мембраны, использованная в данном исследовании, составляет 1.12 cm2.
- Рассчитайте значение трансэндотелиального электрического сопротивления (TEER) по следующей формуле13:
5. Анализ парацеллюлярной проницаемости с использованием FITC-декстрана (в направлении от апикальной к базальной стороне)
- Приготовление FITC-декстрана
- Перед началом эксперимента приготовьте рабочий раствор FITC-декстрана (4 kDa) с концентрацией 2 mg/mL и защитите его от света.
- Интерпретация направления анализа
- Рассматривайте данный анализ как определение целостности парацеллюлярного барьера в направлении от апикальной к базальной стороне, поскольку HBMEC прикреплены к базальной поверхности мембраны, в то время как астроциты, микроглия и опухолевые сфероиды находятся в апикальной камере.
ПРИМЕЧАНИЕ: Для исследований, имитирующих системное воздействие, вводите FITC-декстран или исследуемое соединение в нижнюю/базальную камеру со стороны эндотелия и собирайте образцы из верхней/апикальной камеры, используя отдельно валидированную схему отбора проб и расчет Papp.
- Рассматривайте данный анализ как определение целостности парацеллюлярного барьера в направлении от апикальной к базальной стороне, поскольку HBMEC прикреплены к базальной поверхности мембраны, в то время как астроциты, микроглия и опухолевые сфероиды находятся в апикальной камере.
- Промывка и уравновешивание
- Удалите всю культуральную среду из обеих камер. Добавьте 400 µL и 1 mL предварительно подогретой базальной среды DMEM без глюкозы в верхнюю и нижнюю камеры соответственно, аккуратно промойте один раз и удалите среду.
- Добавьте 400 µL и 1 mL свежей предварительно подогретой базальной среды DMEM без глюкозы в верхнюю и нижнюю камеры соответственно. Инкубируйте при 37 °C и 5% CO₂ в течение 15 мин, затем аспирируйте всю жидкость.
- Измерение проницаемости
- Добавьте 200 µL рабочего раствора FITC-декстрана (2 mg/mL) на апикальную сторону и 800 µL базальной среды DMEM без глюкозы в нижнюю камеру. Инкубируйте при 37 °C и 5% CO₂ в течение 30 мин в темноте.
- Через 30 мин соберите по 100 µL среды из нижней камеры каждого экспериментального вкладыша. Перенесите три аликвоты из каждого вкладыша в черный 96-луночный планшет и защитите их от света.
- Построение стандартной кривой FITC-декстрана
- Приготовьте стандартные растворы FITC-декстрана с концентрациями 0, 0,5, 1,0 и 1,5 mg/mL. Добавьте по 100 µL каждого стандарта в черный 96-луночный планшет в трех повторностях и защитите планшет от света.
- Измерение флуоресценции и расчет Papp
- Измерьте интенсивность флуоресценции с помощью многофункционального микропланшетного ридера при длине волны возбуждения 492 nm и длине волны испускания 520 nm. Запишите данные и рассчитайте коэффициент кажущейся проницаемости (Papp), используя следующие уравнения14.
- Сначала проведите линейную аппроксимацию концентраций стандартных растворов FITC-декстрана (C) относительно соответствующих значений интенсивности флуоресценции (A) для построения стандартной кривой:
A = kC + b (1.2) - Здесь k — наклон стандартной кривой, а b — точка пересечения с осью ординат.
- Далее подставьте значение интенсивности флуоресценции образца (At), измеренное в момент времени t, в уравнение стандартной кривой, чтобы получить концентрацию FITC-декстрана (Ca) на базолатеральной стороне в момент времени t. Затем подставьте Ca в следующую формулу для расчета Papp (cm/s):
- Papp = (Ca × Va)/(t × S × C0) (1.3)
- Здесь Va — общий базолатеральный объем (mL); t — время проницаемости (s); S — эффективная площадь пористой мембраны (cm2); C₀ — начальная концентрация на апикальной стороне.
6. Иммунофлуоресцентное окрашивание
- Фиксация, промывка и пермеабилизация
- Удалите всю культуральную среду из вставок для культивирования клеток, промойте дважды PBS и аспирируйте всю остаточную жидкость.
- Добавьте 200 µL и 800 µL 4% параформальдегида в верхнюю и нижнюю камеры соответственно и фиксируйте клетки в течение ночи при 4 °C.
ПРЕДОСТЕРЕЖЕНИЕ: Параформальдегид опасен; работа с ним должна проводиться в сертифицированном химическом вытяжном шкафу с использованием перчаток, лабораторного халата и средств защиты глаз. Собирайте отходы параформальдегида отдельно и утилизируйте их в соответствии с внутренними правилами учреждения по обращению с опасными отходами. - Удалите параформальдегид и добавьте 200 µL и 800 µL PBS в верхнюю и нижнюю камеры соответственно. Промойте на шейкере трижды по 5 мин.
- Добавьте 200 µL и 800 µL 0,5% неионогенного ПАВ в верхнюю и нижнюю камеры соответственно и проведите пермеабилизацию в течение 10 мин при комнатной температуре.
- Удалите раствор неионогенного ПАВ и промойте PBS трижды по 5 мин.
- Вырезание и блокировка мембраны
- Переверните вставки для культивирования клеток на крышку чашки для культивирования, осторожно вырежьте по краю пористые мембраны скальпелем и перенесите их в 24-луночный планшет.
- Добавьте 200 µL 3% BSA в PBS, чтобы покрыть каждую мембрану, и инкубируйте для блокировки в течение 90 мин при комнатной температуре. При необходимости разрежьте мембраны на более мелкие фрагменты для раздельного окрашивания.
- Инкубация с первичными антителами
- Разведите первичные антитела стандартным разбавителем для антител и добавьте достаточное количество раствора, чтобы полностью покрыть каждую мембрану.
- Добавьте ультрачистую воду в окружающие пустые лунки для уменьшения испарения и инкубируйте образцы в течение ночи при 4 °C. В качестве отрицательного контроля используйте образцы без специфических первичных антител.
- На следующий день удалите раствор первичных антител и промойте мембраны 1 mL PBS на шейкере трижды по 10 мин.
- Окрашивание вторичными антителами и DAPI
- Разведите вторичные антитела разбавителем для флуоресцентных антител в условиях защиты от света, полностью покройте мембраны и инкубируйте в течение 90 мин при комнатной температуре. Промойте PBS трижды по 10 мин в защищенном от света месте.
- Добавьте готовый раствор для окрашивания DAPI, чтобы покрыть мембраны, и инкубируйте в течение 15 мин при комнатной температуре. Промойте PBS трижды по 10 мин в защищенном от света месте.
- Прояснение, монтирование и визуализация
- Добавьте соответствующий объем реагента для 3D-прояснения культур клеток, чтобы покрыть мембраны, и инкубируйте в течение 15 мин при комнатной температуре в условиях защиты от света.
- Перенесите мембраны на предметные стекла с помощью офтальмологического пинцета, добавьте среду для монтирования с антифейдингом и смонтируйте образцы в условиях защиты от света. Проведите наблюдение и получение изображений образцов с помощью конфокального лазерного сканирующего микроскопа.
7. Статистическая отчетность
- Для функционального сравнения n = 3 означает три независимых биологических повторности для каждого условия, при этом каждая биологическая повторность рассматривалась как экспериментальная единица. Представлены индивидуальные данные для всех трех биологических повторностей. Данные приведены в виде среднего значения ± SD. Сравнения проводились с помощью двухсторонних unpaired Student’s t-tests с указанием точных значений t и p.
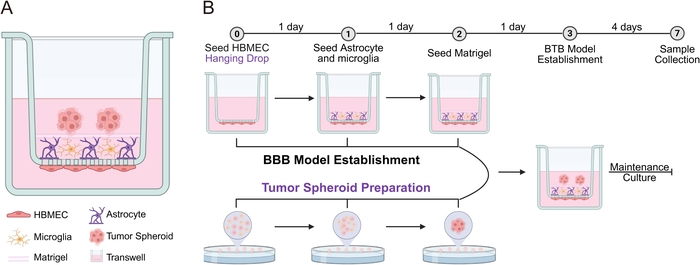
Рисунок 1: Схематическая иллюстрация и рабочий процесс создания модели ГЭМ-О. (A) HBMECs высевали на базальную сторону пористой мембраны вставки для культивирования клеток, в то время как клетки HA и HMC3-RFP распределяли на апикальной стороне. Слой матрикса базовой мембраны использовался для отделения опухолевых сфероидов от компартмента с барьерными клетками. Для соответствующего контроля без сфероидов использовали тот же слой матрикса базовой мембраны и те же условия обработки, но без добавления опухолевых сфероидов. (B) Цифры в кружках в верхней части указывают соответствующие дни культивирования. Создание ГЭБ и подготовка опухолевых сфероидов проводились одновременно. После добавления слоя матрикса базовой мембраны на верхнюю поверхность вставки для культивирования клеток опухолевые сфероиды переносили в верхнюю камеру с помощью наконечника пипетки с обрезанным кончиком. Затем модель ГЭМ-О поддерживали в культуре до 1 недели перед сбором образцов. Образцы обычно собирают на 7-й день для последующих экспериментов. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
Результаты
В контрольной модели БГЭ без сфероидов, совмещенной с таким же количеством матрикса базальной мембраны, сигналы HMC3-RFP были относительно широко распределены по апикальному слою клетокРисунок 2). В условии BTB конечные изображения показали сигналы HMC3-RFP в основном в областях, не покрытых опухолевыми сфероидами, с ослаблением сигнала под сфероидами и в непосредственно прилегающих регионах (Рисунок 2). Эти данные демонстрируют пространственную ассоциацию между наличием опухолевых сфероидов и конечным распределением клеток HMC3-RFP. Поскольку базовое распределение клеток HMC3-RFP до введения сфероидов, а также продольное отслеживание клеток не оценивались, представленные данные не позволяют подтвердить активную миграцию микроглии, отталкивание или опухолевую эксклюзию.
Астроциты также показали различия в сигнале маркеров и морфологии в условиях ГГЭ (Рисунок 2). По сравнению с контрольными образцами, не содержащими сфероидов и матрикса базальной мембраны, на представительных изображениях наблюдалась более интенсивная флуоресценция GFAP как в пери-сфероидной, так и в дистальных областях. Астроциты на границе сфероида демонстрировали увеличенные тела клеток, более толстые и удлинённые отростки, ориентированные в сторону края сфероида (Рисунок 2). Эти конечные признаки соответствуют фенотипу, напоминающему реактивные астроциты, однако сами по себе они не позволяют установить конкретную программу реактивного астроцитоза или её молекулярный механизм. Морфологически схожие перитуморальные астроцитарные структуры наблюдались в гистологических срезах ткани метастазов рака молочной железы в головном мозге у человека, где иммунофлуоресцентное окрашивание выявило признаки, характерные для перитуморального реактивного астроцитоза (Рисунок 3A). Для дальнейшей характеристики астроцитарных признаков, связанных с AQP4, было проведено иммунофлуоресцентное окрашивание AQP4 в соответствующей модели ГЭБ без сфероидов, а также в дистальных и пери-сфероидных областях модели ГЭБ-опухолиРисунок 3B). Представительные изображения модели ГЭБ, дистальной области модели ГТБ и перисфероидной области, прилегающей к опухолевым сфероидам, показаны соответственно в первой, второй и третьей строках (Рисунок 3B). В модели ГЭБ пери-сфероидные астроциты демонстрировали морфологические отличия по сравнению с дистальными астроцитами. В совокупности данные по GFAP/AQP4 и морфологические наблюдения подтверждают ремоделирование астроцитов, ассоциированных с опухолевыми сфероидами, в данной модели; сходство с тканью пациента следует интерпретировать как фенотипическую аналогию, а не как доказательство полного воспроизведения моделию человеческой перитуморальной астроглиозной реакции.
Для оценки изменений, связанных с опухолевыми сфероидами, в организации эндотелиальных межклеточных контактов мы провели иммунофлюоресцентное окрашивание белка плотных контактов ZO-1 в базальном слое HBMEC в упрощённых моделях ГЭБ и ГГБ, используя парные условия без сфероидов и с их наличием, накрытые одинаковым количеством матрикса базальной мембраны. Конфокальную визуализацию выполняли в области, соответствующей опухолевым сфероидам (Рисунок 4A). В контрольных образцах без сфероидов сигналы ZO-1 между ГЭКБЧГ показывали относительно непрерывное линейное распределение с чётко выраженными межклеточными границами. В условиях ГЭБ сигнал флуоресценции ZO-1 в областях, соответствующих опухолевым сфероидам, был более разреженным, с очаговыми нарушениями и разрывами (Рисунок 4A). Эти конечные изображения соответствуют локальной потере организации плотных контактов. Однако без дополнительных молекулярных маркеров, специфичных для ГЭБ, или экспериментов с механистическими нарушениями, представленные данные не позволяют различить специфическое ремоделирование ГЭБ и неспецифическое опухолеассоциированное повреждение эндотелия или нарушение барьера.
На функциональном уровне измерение сопротивления трансэпителиального электрического поля (TEER) и анализы проницаемости FITC-декстрана проводили одновременно на 7-й день в контрольных образцах без сфераидов в матрице базальной мембраны и в условиях гематоэнцефалического барьера (BTB) с содержанием сфераидовРисунок 4B). Отдельные значения из всех трех независимых биологических повторов представлены в виде точек на диаграмме рассеяния Рисунок 4B, причем сводные данные представлены как среднее значение ± SD. Значение ТЭП в условиях ГЭБ (106,0 ± 9.5255 Ω·см2, n = 3 независимые биологические повторности) было ниже, чем у соответствующего контроля (168,0 ± 5.1325 Ω·см2, n = 3 независимые биологические повторности). Согласно полученным данным, коэффициент кажущейся проницаемости (Papp), измеренный в анализе проникновения FITC-декстрана в направлении апикальной к базолатеральной стороне, был выше в условиях ГГЭ (5,851 ± 1.2080 × 10⁻3 см/с, n = 3 независимые биологические повторности), чем в соответствующем контроле (2,656) ± 1.0937 × 10⁻3 см/с, n = 3 независимые биологические повторности). Двусторонний непарный критерий Стьюдента’t-тесты показали статистически значимые различия [TEER: t(4) = 9,920, p = 0,0006; Papp: t(4) = 3,395, p = 0.0274] (Рисунок 4B). В рамках данной экспериментальной конфигурации параллельное снижение электрического сопротивления и повышение проницаемости для FITC-декстрана свидетельствуют о снижении целостности барьера в присутствии опухолевых сфероидов. Одних лишь этих измерений недостаточно для установления конкретного механизма перестройки гематоэнцефалического барьера в барьер опухоли, а анализ проницаемости FITC-декстрана в направлении от апикальной к базолатеральной стороне не следует интерпретировать как физиологический эксперимент по доставке лекарств из крови в опухоль.
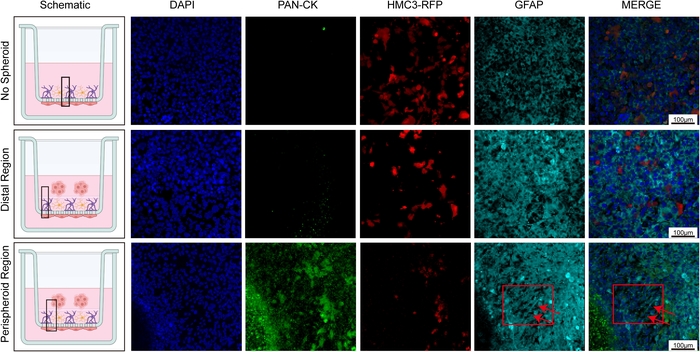
Рисунок 2Иммунофлюоресцентное окрашивание в модели ГЭБ. Представительные изображения иммунофлюоресценции окрашивания Pan-CK и GFAP в апикальных клеточных слоях контрольной модели ГЭБ без сфероидов и модели ГГБ, обе с нанесенным в равных количествах матриксом базальной мембраны, с отображением сигнала HMC3-RFP. В первом столбце представлены схематические иллюстрации, а черный квадрат указывает область визуализации при конфокальной микроскопии. Первый ряд демонстрирует контрольную модель без сфероида (без сфероида); второй ряд — области, удаленные от опухолевых сфероидов в модели ГГБ (дистальная область); третий ряд — области, прилегающие к опухолевым сфероидам в модели ГГБ (пери-сфероидная область). Стрелки указывают участки, демонстрирующие морфологические признаки астроцитов, соответствующие реактивному фенотипу. Ядра клеток окрашены ДАПИ (синий цвет), опухолевые клетки маркированы пан-цитокератином (Pan-CK; зеленый цвет), микроглия, экспрессирующая RFP, показана красным цветом, окрашивание GFAP — голубым. Масштабная линейка = 100 µм. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
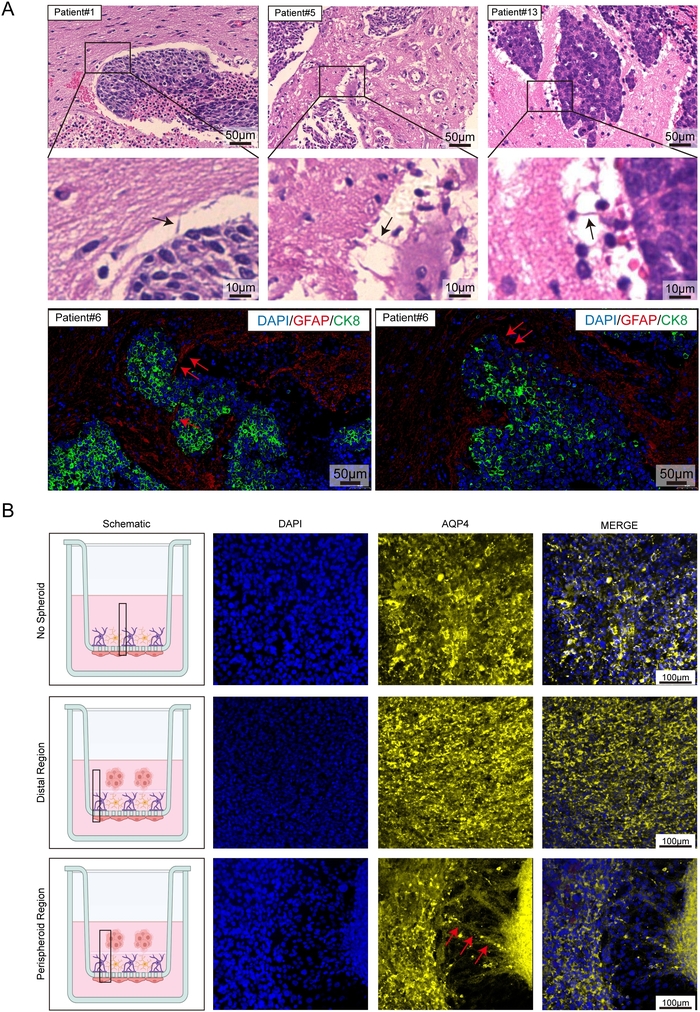
Рисунок 3: Иммунофлюоресцентное окрашивание выявляет морфологические признаки, соответствующие перитуморальной реактивной астроцитоме, в модели ГЭБ. (A) Срезы тканей мозга от пациентов с метастазами рака молочной железы в мозг подвергали H&окрашивание E. Астроцитарные структуры на границе между опухолевой тканью и паренхимой мозга или кровеносными сосудами демонстрировали морфологические признаки, соответствующие перитуморальной реактивной астроглиозе. Чёрные стрелки указывают типичные участки. Иммунофлуоресцентное окрашивание дополнительно выявило морфологические признаки астроцитов, характерные для реактивного фенотипа; красная стрелка выделяет типичный участок. Масштабные бары: 50 µм для H&окрашенные эозином изображения в первой строке, 10 µм для H&окрашенные изображения во второй строке и 50 µм для изображений иммунофлуоресценции в третьем ряду. (Б) Иммунофлуоресцентное окрашивание AQP4 проводили в соответствующей модели ГЭБ без сфероидов, а также в дистальных и пери-сфероидных областях модели ГГЭ. В первой строке показаны типичные изображения модели ГЭБ, во второй строке — типичные изображения дистальной области модели ГГЭ, в третьей строке — типичные изображения пери-сфероидной области, прилегающей к опухолевым сфероидам. Стрелки указывают на морфологические изменения астроцитов в пери-сфероидной области. Ядра окрашены ДАПИ и показаны синим цветом, AQP4 показан желтым цветом. Масштабная линейка = 100 µм. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
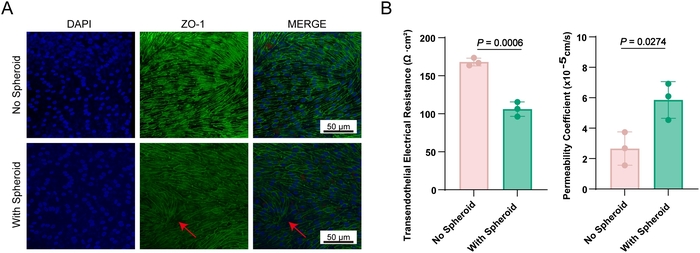
Рисунок 4Функциональная характеристика модели BTB. (A) Иммунофлуоресцентное окрашивание ZO-1 в базальном эндотелиальном слое моделей ГЭБ и ГГБ, покрытых одинаковым количеством матрикса базальной мембраны. В первом столбце показаны схематические диаграммы, чёрные рамки указывают области, выбранные для конфокальной визуализации. Первый ряд демонстрирует типичные изображения базального слоя клеток в модели ГЭБ без опухолевых сфероидов (Без сфероидов), второй ряд — типичные изображения базального слоя клеток в модели ГГБ с опухолевыми сфероидами (Со сфероидами). Красная стрелка указывает на область со слабой флуоресценцией ZO-1 и очаговыми разрывами. Ядра окрашены ДАПИ и показаны синим цветом, ZO-1 — зелёным. Масштабная линейка = 50 µм. (Б) Значения ТЭП и коэффициенты видимой проницаемости (Papp) для FITC-декстрана (4 кДа) в контрольных образцах ГЭБ без сфероидов (No Spheroid) и в условиях ГГБ (With Spheroid), оба типа покрыты одинаковым количеством матрикса базальной мембраны. n = 3 независимые биологические повторности на условие. Показаны отдельные точки данных для всех трёх биологических повторностей, а сводные данные представлены как средние значения ± Значения Papp SD по FITC-декстрану были получены в направлении от верхушки к базальной стороне. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
Обсуждение
Для введения трехмерного опухолевого компонента, обеспечивающего пространственную организацию и ограничения диффузии, которые не учитываются при традиционном двухмерном культивировании опухолевых клеток, была использована модель сфероида. Ее простота и воспроизводимость также делают ее совместимой с рабочими процессами, ориентированными на скрининг. Сфероиды были объединены с трехклеточным барьерным компартментом человека, содержащим микрососудистые эндотелиальные клетки мозга, астроциты и микроглию, для создания упрощенной многоклеточной модели гематоэнцефалического барьера (ГЭБ) человека in vitro. Система проста в эксплуатации, совместима с многолуночным культивированием и количественным измерением проницаемости барьера (Рисунок 1), а также позволяет визуализировать морфологию клеток и их пространственное распределение с помощью иммунофлуоресцентного окрашивания. Наблюдаемые изменения астроцитов, связанные с GFAP/AQP4, и их морфологическое сходство с перитуморальными астроцитами в тканях метастазов рака молочной железы в головной мозг подтверждают значимость данной модели для изучения определенных опухолево-глиальных и эндотелиальных взаимодействий5, хотя эти результаты не устанавливают полную эквивалентность полноценному ГЭБ человека.
Для создания опухолевых сфероидов использовали метод «висячей капли»; полученные сфероиды культивировали совместно с микрососудистыми эндотелиальными клетками головного мозга человека, астроцитами и микроглией человека для создания упрощенной многоклеточной модели человека in vitro платформа BTB. В протестированных условиях опухолевые сфероиды были ассоциированы со снижением значений TEER, повышенной проницаемостью FITC-декстрана в апикально-базальном направлении, нарушением организации ZO-1, а также изменениями морфологии и экспрессии астроцитарных маркеров. Измерения TEER и проницаемости являются общепринятыми методами оценки целостности барьера в in vitro барьерные системы13,14Эти результаты демонстрируют нарушение барьерной функции, связанное с опухолевыми сфероидами, и глиальное ремоделирование в данной определенной системе. Однако эта платформа ГЭБ-опухоли (BTB) не обеспечивает полного превращения ГЭБ в ГЭБ-опухоли, активную миграцию микроглии или специфический молекулярный механизм ремоделирования ГЭБ-опухоли. Таким образом, данную платформу лучше рассматривать как доступную экспериментальную модель для выдвижения гипотез и контролируемого изучения взаимодействий между опухолью, глией и эндотелием, при этом при моделировании системной доставки лекарственных средств требуется проведение анализов транспорта с соответствующим направлением.
Данная упрощенная модель имеет несколько важных ограничений. Во-первых, она не включает в себя полный нейроваскулярный юнит или микроокружение опухоли головного мозга. В модели отсутствуют перициты, нейроны, физиологически полноценная базальная мембрана/внеклеточный матрикс и циркулирующие иммунные клетки. Перициты являются важными регуляторами нейроваскулярной и барьерной функций15,16,17, однако их включение в стандартизированную человеческую модель in vitro остается сложной задачей из-за ограниченной доступности и вариабельности первичных перицитов человека от партии к партии. Таким образом, эту модель следует описывать не как полноценный ГЭБ человека, а как упрощенную экспериментальную платформу. Во-вторых, в настоящем исследовании в качестве единственной линии клеток рака молочной железы использовались SK-BR-3. Следовательно, наблюдаемые фенотипы не могут быть обобщены на биологию метастазов рака молочной железы в головной мозг (BCBM) в целом. Валидация с использованием дополнительных подтипов рака молочной железы, церебротропных моделей, а также полученных от пациентов сфероидов или органоидов BCBM будет иметь важное значение для установления общей применимости и клинической значимости для пациентов. В-третьих, текущие данные по HMC3-RFP представляют собой конечные наблюдения и не позволяют определить, является ли пространственный паттерн результатом активной миграции, дифференциального выживания или существовавшего ранее распределения. Для разграничения этих возможностей потребовалась бы продольная визуализация живых клеток. В-четвертых, данные по ZO-1, TEER и FITC-декстрану подтверждают нарушение барьерной функции, но не позволяют отличить специфическое ремоделирование ГЭБ от неспецифического повреждения эндотелия; необходимы дополнительные молекулярные характеристики и механистический контроль. В-пятых, поскольку в данной конфигурации HBMEC высеваются на базальную сторону мембраны, описанный анализ транспорта FITC-декстрана с апикальной стороны на базальную является показателем целостности барьера, а не физиологическим анализом транспорта из крови в опухоль. Исследования системной доставки должны предполагать введение маркера или препарата в нижний/базальный отдел, обращенный к эндотелию, и подтверждение транспорта в сторону верхнего/апикального опухолевого отдела. Наконец, текущие функциональные измерения были основаны на трех независимых биологических повторностях для каждого условия. Хотя такой дизайн позволяет отличить биологические повторности от технических, увеличение количества независимых биологических повторностей еще больше укрепило бы оценку воспроизводимости. Внедрение этих улучшений, включая перициты и материал, полученный от пациентов, могло бы постепенно повысить физиологическую и трансляционную значимость платформы.
Раскрытие информации
Авторы заявляют об отсутствии конфликта интересов.
Благодарности
Настоящая работа была поддержана Проектом образовательных реформ провинции Ляонин (JG24DB110), Проектом руководящего плана по вопросам жизни и здоровья Даляня (2025ZDJH01PT101), Программой 1+X Второй больницы Даляньского медицинского университета (2024LCJSYL07) и Объединённым фондом Института физико-химических исследований Даляня, Китайской академии наук, и Даляньского медицинского университета (DMU-2)&DICP UN202509)
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| 0,25% Trypsin-EDTA (1×) (открепление клеток HMC3-RFP) | NCM Biotech | C100C1 | Используется для открепления клеток HMC3-RFP при подготовке клеток. |
| Центрифужные пробирки 1,5 mL | Jet Biofil | CFT001015 | Используются для сбора, промывки и манипуляций с опухолевыми сфероидами. |
| Клеточная культуральная пластина на 12 лунок | Jet Biofil | TCP011012 | Используется для размещения вкладышей для культивирования клеток на 12 лунок при создании модели ГЭБ/ГООБ. |
| Реагент для просветления 3D-культур клеток | Thermo Fisher | V11326 | Используется для просветления окрашенных мембран клеточных культур перед монтированием и конфокальной визуализацией. |
| Вторичные антитела к кроличьим антителам, меченные Alexa Fluor 488 | Proteintech | RGAR002 | Флуоресцентные вторичные антитела, используемые для иммунофлуоресцентного детектирования первичных кроличьих антител. |
| Вторичные антитела к мышиным антителам, меченные Alexa Fluor 647 | Proteintech | RGAM005 | Флуоресцентные вторичные антитела, используемые для иммунофлуоресцентного детектирования первичных мышиных антител. |
| Разбавитель для антител | Solarbio | A1800 | Используется для разведения первичных антител при иммунофлуоресцентном окрашивании. |
| Средство для монтирования Anti-fade | Solarbio | S2100 | Используется для монтирования окрашенных мембран и уменьшения выцветания флуоресценции при визуализации. |
| Добавка для роста астроцитов (AGS) | ScienCell | 1852 | Добавка, используемая для культивирования астроцитов человека. |
| Среда для астроцитов (AM) | ScienCell | 1801 | Культуральная среда, используемая для астроцитов человека и в качестве компонента смешанной среды для верхней камеры. |
| Чашка для культивирования клеток | Servicebio | CCD-100 | Используется для рутинного культивирования клеток и приготовления опухолевых сфероидов методом «висячей капли». |
| Коллаген I типа | Corning | 354249 | Используется для покрытия культуральных сосудов и вкладышей для культивирования клеток перед посевом клеток. |
| Покрывные стекла | Citotest | 10212450C | Используются для монтирования и подготовки к микроскопии. |
| Раствор для окрашивания DAPI | Servicebio | G1012-10ML | Используется для контрастирования ядер при иммунофлуоресцентном окрашивании. |
| Базальная среда DMEM (1×) | Gibco | C11995500BT | Используется в качестве базальной среды в анализе проницаемости FITC-декстрана. |
| Добавка для роста эндотелиальных клеток (ECGS) | ScienCell | 1052 | Добавка, используемая для культивирования эндотелиальных клеток микрососудов головного мозга человека. |
| Среда для эндотелиальных клеток (ECM) | ScienCell | 1001 | Культуральная среда, используемая для HBMEC и в нижней камере модели ГЭБ/ГООБ. |
| Фетальная бычья сыворотка (FBS) | Gibco | A5669701 | Сывороточная добавка, используемая в полных средах для культивирования клеток. |
| Декстран, меченный FITC (ММ 4 000) | Beyotime | ST2930-50mg | Флуоресцентный трейсер, используемый для оценки парацеллюлярной проницаемости и расчета Papp. |
| Флуоресцентный разбавитель для антител | Solarbio | A1840 | Используется для разведения флуоресцентных вторичных антител при иммунофлуоресцентном окрашивании. |
| Ледяная уксусная кислота | Sigma | 27225 | Используется для приготовления раствора для покрытия коллагеном I типа. |
| HA | Human astrocyte | NA | Астроцитарный компонент для оценки морфологических ответов и экспрессии маркеров, связанных с опухолью |
| HBMEC | Human brain microvascular endothelial cells | NA | Эндотелиальный компонент барьера ГЭБ/ГООБ |
| HMC3-RFP | RFP-labeled human microglial cell line HMC3 | NA | Микроглиальный компонент для флуоресцентного отслеживания |
| Matrigel | Corning | 354230 | Матрикс базальной мембраны, используемый в качестве наслоения для отделения опухолевых сфероидов от компартмента барьерных клеток. |
| Полная среда MEM (с NEAA) (10) | Procell System | PM150410B | Среда, используемая в качестве компонента смешанной культуральной среды для верхней камеры. |
| Предметные стекла для микроскопа | Citotest | 188105 | Используются для монтирования вырезанных окрашенных мембран для конфокальной визуализации. |
| Мышиные антитела против человеческого GFAP | EMD Millipore | MAB360-25μL | Первичные антитела, используемые для детекции GFAP в астроцитах методом иммунофлуоресценции. |
| Параформальдегид | Servicebio | G1101-500ML | Используется для фиксации клеток перед иммунофлуоресцентным окрашиванием. |
| Порошок PBS, фосфатно-солевой буфер | Servicebio | G0002-2L | Используется для промывки, уравновешивания и этапов подготовки на протяжении всего протокола. |
| Раствор пенициллина-стрептомицина (P/S) | Servicebio | G4003-100ML | Антибиотическая добавка, используемая в полных средах для культивирования клеток. |
| Пипетка | Eppendorf | 3123000250 | Используется для работы с жидкостями при культивировании клеток и в ходе анализа. |
| Наконечники для пипеток | MWM Bio | 800201 | Используются для рутинных манипуляций с жидкостями; наконечники с обрезанным кончиком используются для переноса опухолевых сфероидов. |
| Кроличьи поликлональные антитела против человеческого PAN-CK | MedChemExpress | HY-P81164 | Первичные антитела, используемые для идентификации опухолевых клеток методом иммунофлуоресценции. |
| Кроличьи антитела против человеческого ZO-1 | Proteintech | 21773-1-AP | Первичные антитела, используемые для оценки организации плотных контактов эндотелия методом иммунофлуоресценции. |
| SK-BR-3 | Human breast cancer cell line | NA | Компонент опухолевого сфероида для создания ГООБ |
| Вкладыш для пластин для культивирования тканей (0,4 μm, ПЭТ-мембрана), пластины на 12 лунок | Jet Biofil | TCS016012 | Пористый вкладыш для культивирования клеток, используемый для создания модели совместного культивирования ГЭБ/ГООБ. |
| Измеритель трансэпителиального электрического сопротивления (TEER) | Millicell | ERS-2 | Используется для измерения электрического сопротивления через вкладыш для культивирования клеток в качестве показателя целостности барьера. |
| TrypLE Express (1×) (открепление клеток HBMEC и HA) | Gibco | 12605-010 | Используется для открепления клеток HBMEC и HA при подготовке клеток. |
Ссылки
- Park M, et al. Breast cancer metastasis: mechanisms and therapeutic implications. Int J Mol Sci. 2022;23(12):6806. doi:10.3390/ijms23126806.
- Wang R, et al. The clinicopathological features and survival outcomes of patients with different metastatic sites in stage IV breast cancer. BMC Cancer. 2019;19(1):1091. doi:10.1186/s12885-019-6311-z.
- McConnell HL, Mishra A. Cells of the blood-brain barrier: an overview of the neurovascular unit in health and disease. Methods Mol Biol. 2022;2492:3–24.
- Dong X. Current strategies for brain drug delivery. Theranostics. 2018;8(6):1481–1493.
- Gril B, et al. Reactive astrocytic S1P3 signaling modulates the blood-tumor barrier in brain metastases. Nat Commun. 2018;9(1):2705. doi:10.1038/s41467-018-05030-w.
- Pitz MW, Desai A, Grossman SA, Blakeley JO. Tissue concentration of systemically administered antineoplastic agents in human brain tumors. J Neurooncol. 2011;104(3):629–638.
- Adkins CE, et al. Characterization of passive permeability at the blood-tumor barrier in five preclinical models of brain metastases of breast cancer. Clin Exp Metastasis. 2016;33(4):373–383.
- Lockman PR, et al. Heterogeneous blood-tumor barrier permeability determines drug efficacy in experimental brain metastases of breast cancer. Clin Cancer Res. 2010;16(23):5664–5678.
- Song H-T, et al. Rat model of metastatic breast cancer monitored by MRI at 3 tesla and bioluminescence imaging with histological correlation. J Transl Med. 2009;7:88. doi:10.1186/1479-5876-7-88.
- Miarka L, Valiente M. Animal models of brain metastasis. Neurooncol Adv. 2021;3(Suppl 5):v144–v156.
- Kim J-H, et al. Inflammatory mammary carcinoma with metastasis to the brain and distant organs in a spayed Shih Tzu dog. J Vet Diagn Invest. 2011;23(5):1079–1082.
- Wiese DA, Thaiwong T, Yuzbasiyan-Gurkan V, Kiupel M. Feline mammary basal-like adenocarcinomas: a potential model for human triple-negative breast cancer (TNBC) with basal-like subtype. BMC Cancer. 2013;13:403. doi:10.1186/1471-2407-13-403.
- Srinivasan B, et al. TEER measurement techniques for in vitro barrier model systems. J Lab Autom. 2015;20(2):107–126.
- Harding IC, et al. Developing a transwell millifluidic device for studying blood-brain barrier endothelium. Lab Chip. 2022;22(23):4603–4620.
- Liu X, et al. The role of neurovascular unit damage in the occurrence and development of Alzheimer’s disease. Rev Neurosci. 2019;30(5):477–484.
- Nikolakopoulou AM, et al. Pericyte loss leads to circulatory failure and pleiotrophin depletion causing neuron loss. Nat Neurosci. 2019;22(7):1089–1098.
- Bell RD, et al. Pericytes control key neurovascular functions and neuronal phenotype in the adult brain and during brain aging. Neuron. 2010;68(3):409–427.
Перепечатки и разрешения
Эта статья была опубликована
Видео скоро будет доступно