Данное исследование направлено на изучение потенциальных молекулярных механизмов, лежащих в основе антиоксидантного и противовоспалительного действия амигдалина на модели гнездной алопеции у мышей линии C3H/HeJ и модели повреждения первичных эпидермальных меланоцитов человека, индуцированного H2O2.
Исследовательская статья
Амигдалин регулирует сигнализацию FOXO3a для ингибирования окислительного стресса и облегчения симптомов очагового облысения у мышей
* These authors contributed equally
В этой статье
Краткое содержание
Аннотация
Целью данной работы является изучение механизма терапевтического действия амигдалина (AMG) при гнездной алопеции (AA). Для исследования гепаторенальной токсичности AMG использовали окрашивание гематоксилином и эозином. После создания модели AA у мышей линии C3H/HeJ и H2О2—поврежденные первичные эпидермальные меланоциты человека (HPEMs), и после воздействия AMG контролировали содержание активных форм кислорода (АФК), а также уровни белка и экспрессию гена forkhead box O3A (FOXO3a). Биохимические наборы или иммуноферментный анализ были использованы для определения содержания супероксиддисмутазы (SOD), каталазы (CAT), глутатионпероксидазы 4 (GPX-4), малонового диальдегида (MDA), интерлейкина-15 (IL-15), интерферона-гамма (IFN-γ), и интерлейкин-6 (IL-6). Был проведен вестерн-блоттинг для оценки уровней MHC I, IL-15, FOXO3a, SOD, CAT, GPX-4, IFN-γ, ИЛ-6 и ИЛ-15. Метод ChIP-PCR был использован для оценки обогащения AMG на промоторах SOD, CAT и GPX-4 в FOXO3a. Одновременно с этим в ЭПМК (HPEMs) с низкой экспрессией FOXO3a исследовались уровни АФК, апоптоза, а также уровни белков и экспрессии генов FOXO3a, SOD, CAT и GPX-4. AMG не обладает потенциальной гепато- или нефротоксичностью и может снижать экспрессию белков MHC I и IL-15 в коже, а также уровень IL-15 в сыворотке крови. AMG может усиливать экспрессию белка и гена FOXO3a в коже, а также повышать уровни SOD, CAT и GPX-4, одновременно снижая уровни АФК и МДА. AMG может ингибировать MHC I, IFN-γ, IL-6 и IL-15, МДА, апоптоз и продукцию АФК в клетках HPEM, а также повышать содержание SOD, CAT и GPX-4. Важно отметить, что AMG может усиливать экспрессию генов и белков FOXO3a, SOD, CAT и GPX-4, а также способствовать обогащению FOXO3a на промоторах SOD, CAT и GPX-4. Эти данные свидетельствуют о том, что AMG может стимулировать экспрессию FOXO3a, а также подавлять окислительный стресс и воспалительные реакции, тем самым улучшая показатели AA у мышей линии C3H/HeJ.
Введение
Гнездная алопеция (ГА) представляет собой аутоиммунное заболевание, характеризующееся внезапной потерей волос без образования рубцов; ее глобальная распространенность составляет примерно 2–3%, а в Китае насчитывается более 30 миллионов пациентов1. Эпидемиологические данные свидетельствуют о том, что заболевание может поражать людей всех возрастных групп, однако оно чаще встречается у молодых людей: примерно у 60% пациентов первые симптомы проявляются в возрасте до 20 лет при почти равном соотношении мужчин и женщин1,2. В мировом масштабе ежегодная заболеваемость ГА составляет примерно 0,2–0,3%, при этом в 40% случаев наблюдается одноочаговая ГА, в 35% — многоочаговая ГА, в 5% — полная алопеция и в 2% — универсальная алопеция3,4,5. Что касается осложнений, примерно у 30% пациентов наблюдаются вдавления ногтевых пластин, продольные бороздки и другие повреждения, а частота коморбидности с такими аутоиммунными заболеваниями, как патологии щитовидной железы и витилиго, превышает показатели, наблюдаемые в общей популяции6,7. С точки зрения негативного воздействия, ГА не только влияет на внешний вид, но и склонна вызывать психологические проблемы, такие как депрессия и тревожность; при этом около 70% пациентов с впервые выявленным заболеванием сталкиваются с серьезными стрессовыми событиями в течение 3 месяцев до начала проявлений8,9. При отсутствии длительного лечения заболевание может прогрессировать до полной или универсальной алопеции, что серьезно сказывается на социальной функции и качестве жизни пациентов10.
В настоящее время западная медицина при лечении AA в основном использует сочетание местных препаратов, пероральных лекарственных средств, физиотерапии и трансплантации волос11,12. Местное лечение в основном включает раствор миноксидила и кортикостероиды (например, крем с пропионатом флутиказона), которые стимулируют волосяные фолликулы и подавляют местные иммунные реакции для стимуляции роста волос, однако длительное применение может привести к таким побочным эффектам, как атрофия кожи13,14. Для пациентов с прогрессирующим течением заболевания пероральные иммунодепрессанты (такие как преднизолон и циклоспорин) могут эффективно регулировать системный иммунный ответ, но требуют регулярного мониторинга функций печени и почек12,15. В рамках физиотерапии узкополосное средневолновое ультрафиолетовое облучение и низкоинтенсивная лазерная терапия улучшают микроциркуляцию для стимуляции роста волос, однако требуется многократное проведение процедур, а эффект варьируется в зависимости от индивидуальных особенностей пациента16,17. В сложных случаях хирургическая трансплантация волос позволяет пересадить здоровые волосяные фолликулы в зону облысения, но существует риск неудачи трансплантации, и процедура требует поддерживающей медикаментозной терапии18. Преимущества лечения методами западной медицины заключаются в быстром начале действия и высокой стандартизации, особенно при ранних локализованных формах AA19. Однако к недостаткам относятся склонность к рецидивам при применении гормональных препаратов, значительные побочные эффекты иммунодепрессантов, а также их ограниченная эффективность у пациентов с полной алопецией/универсальной алопецией20,21. Кроме того, цикл лечения длителен (обычно 3–6 месяцев), а стоимость высока (например, годовая стоимость ингибиторов JAK и биологических препаратов превышает 100 000 юаней), что также ограничивает их широкое применение19,22. По всем вышеперечисленным причинам авторы испытывают острую необходимость в поиске новых таргетных препаратов.
Окислительный стресс вносит существенный вклад в патогенез AA. В процессе синтеза пигмента меланоцитами вырабатывается большое количество перекиси водорода (H2O2)23,24. В нормальных условиях она нейтрализуется антиоксидантными ферментами (такими как супероксиддисмутаза (SOD) и каталаза (CAT))25. Тем не менее, у лиц с AA активность антиоксидантных ферментов часто снижена, что приводит к накоплению продуктов окисления, вызывая повреждение ДНК и апоптоз клеток26,27. Состояние окислительного стресса далее активирует воспалительный ответ с высвобождением провоспалительных медиаторов (таких как TNF-α и IFN-γ), формируя порочный круг окислительного стресса и воспаления28. Воспалительный ответ атакует волосяные фолликулы посредством T-лимфоцитов, заставляя фолликулы переходить в фазу покоя и выпадать29. В ходе клинических исследований было обнаружено, что у пациентов с AA часто наблюдаются другие аутоиммунные заболевания (например, заболевания щитовидной железы)30, что указывает на роль системной иммунной дисрегуляции как критического провоцирующего фактора. Кроме того, окислительный стресс и воспаление совместно стимулируют апоптоз клеток волосяного фолликула, а нарушение апоптотических сигналов дополнительно повреждает регенеративную способность фолликула, препятствуя повторному росту волос31. Следовательно, лечение AA должно включать антиоксидантную и противовоспалительную терапию, а также регуляцию путей апоптоза для разрыва этого порочного круга.
Амигдалин (AMG) представляет собой природное цианогенное гликозидное соединение, содержащееся преимущественно в семенах растений семейства Rosaceae (таких как косточки абрикоса, миндаля, персика и локвата)32,33,34. Предыдущие исследования показали, что AMG может улучшать состояние при псориазе, усиливая барьерную функцию кожи35. В то же время антиапоптотический и антиоксидантный эффекты AMG позволяют использовать его при лечении AA36,37. Ранее полученные данные также подтвердили, что AMG способен подавлять воспалительную реакцию, облегчая симптомы AA у мышей линии C3H/HeJ38. Однако молекулярный механизм, посредством которого AMG подавляет воспаление и снижает окислительный стресс для облегчения AA, недостаточно изучен. В данной работе в основном демонстрируются события окислительного стресса, опосредованные сигнализацией forkhead box O3A (FOXO3a), при воздействии AMG в модели AA на мышах C3H/HeJ и в модели повреждения первичных эпидермальных меланоцитов человека (HPEMs), индуцированного H2O2.
Протокол
Одобренние этического комитета и информированное согласие на участие
Экспериментальные протоколы, включающие животных, были одобрены Этическим комитетом компании Scientist Biotechnology Co., Ltd. (Номер этического одобрения: SYST-2024-014) в соответствии с требованиями ARRIVE 2.0 и Руководством NIH по уходу за лабораторными животными и их использованию. Этический комитет провинциальной больницы Сычуаня выдал разрешение на этическое использование клинических образцов человека в in vitro экспериментах (Номер этического одобрения: 2024103). От всех доноров тканей было получено информированное согласие. Все коммерческие сведения о реагентах и оборудовании, использованных в данном исследовании, приведены в Таблице материалов.
Построение модели АА у мышей C3H/HeJ и введение AMG
На основании предыдущих литературных данных модель АА у мышей C3H/HeJ была индуцирована и подвергнута лечению AMG38,39. Вкратце, тридцать самок мышей C3H/HeJ (возрастом 6–8 недель) прошли однинедельный период акклиматизации, после чего были случайным образом распределены на пять различных групп: контрольную, АА, AMG-L, AMG-M и AMG-H. За исключением контрольной группы, модель АА в остальных четырёх группах была создана путём нанесения 0,05 г крема имиквимода на кожу спины мышей. Нанесение проводили три раза в неделю, в общей сложности девять доз. Область нанесения составляла 1,5 см × 1,5 см. Мыши в контрольной и АА-группах ежедневно получали 0,02 мл/г физиологического раствора перорально. В то время как мышам в группах AMG ежедневно вводили 60, 90 и 120 мг/кг соответственно внутрь. Продолжительность введения составила 21 день. Для общего наблюдения и оценки модели АА требуется хорошо выраженный круглый очаг алопеции диаметром ≥ 1 см, без рубцевания или выраженного воспаления и с повреждёнными волосяными стержнями. Исключение составляют мыши с диффузным выпадением волос по всему телу, тяжёлой язвой кожи или спонтанным быстрым восстановлением роста волос.
HEM
Следуя предыдущему методу40, здоровые образцы кожи от пациентов, перенесших обрезание в больнице, были отобраны и погружены в 75 % спирт на 5 мин. Затем кожные образцы многократно промывали PBS, содержащим ампициллин (100 Ед/мл) и сульфат стрептомицина (100 мг/мл), и инкубировали в растворе диспазы II при 4 °С в течение ночи для переваривания. Отделённые и выделенные эпидермальные слои мелко нарезали и фильтровали через стерильную мембрану для получения суспензии клеток. После центрифугирования осадок клеток из нижнего слоя собирали, ресуспендировали в среде для меланоцитов 254 без сыворотки и высевали с плотностью около 5 × 10⁵ в культуральные колбы, которые помещали в инкубатор с СО2. После трёх пассажей чистые меланоциты использовали для последующих экспериментов.
Создание H2О2индуцированная модель повреждения человеческих меланоцитов при окислительном стрессе и вмешательство АМГ
Человеческие меланоциты со степенью слияния 60–80% были разделены на контрольную группу и группы с различными концентрациями H2О2 (200, 400, 600, 800 и 1000 µM). После 24-часовой инкубации жизнеспособность клеток была оцененный методом CCK-8. Впоследствии оптимальная концентрация H2О2 использовали для создания модели окислительного стресса меланоцитов, после чего добавляли различные концентрации AMG (0,1, 0,25, 0,5, 1, 2,5, 5 и 10 мг/мл) и культивировали в течение 24 часов. Затем жизнеспособность клеток использовали для оценки и отбора концентрации AMG.
Гистологическое исследование
Ткани печени и почек мыши фиксировали в 4% параформальдегиде в течение 24 ч и заливали в парафин после обезвоживания по следующей схеме: 70% этанол — 4 ч, 80% этанол — 2 ч, 90% этанол — 2 ч, 95% этанол — 2 ч, абсолютный этанол — дважды, по 1 ч каждый раз; ксилол — дважды, по 30 мин каждый раз38,39,41. Затем 4-µm парафиновые срезы подвергали окрашиванию гематоксилином и эозином&окрашенные по методу #38;E, были обезвожены, прозрачнированы и заключены в канадский бальзам. Для оцифровки гистологических срезов использовали сканер 3D HISTECH, получая изображения с увеличением 20× и 40× были получены увеличения.
Иммуноферментный анализ (ИФА) и биохимическое определение
Образцы кожи гомогенизировали в буферном растворе в соотношении 1:9 (масса/объем), затем центрифугировали при 1006–1789 × g в течение 10 мин. После количественного определения белка в сыворотке, экстрактах тканей кожи и надосадочных жидкостях клеток с помощью анализа по методу Бицинхониновой кислоты (BCA) уровни МДА, ИЛ-6, ИЛ-15 и ИФН-γ определяли с использованием соответствующих наборов для ИФА. Активность ферментов СОД, КАТ и GPX-4 определяли в соответствии с инструкциями к соответствующим биохимическим наборам.
Проточная цитометрия для определения реактивных форм кислорода (ROS)
Для разбавления использовали питательную среду без сыворотки 10µM DCFH-DA в соотношении 1:1000. Затем ткани кожи мыши или человеческие меланоциты были приготовлены в виде клеточных суспензий 1–20×106 клеток/мл с использованием 10µM DCFH-DA. Клетки инкубировали при 37°C в течение 20 мин. В этот период клетки перемешивали каждые 3–5 мин. После трехкратной промывки средой, не содержащей сыворотку, уровень внутриклеточных АФК определяли с помощью проточной цитометрии, устанавливая длины волн возбуждения и эмиссии на 488 нм и 525 нм соответственно42,43.
Измерение иммунофлюоресценции
Первичным антителом FOXO3a (1:1000) инкубировали с 4-µm срезы кожной ткани или фиксированные HPEM в течение ночи при 4°CЗатем образцы обрабатывали вторичными антителами, меченными флуорофорами Alexa Fluor, и окрашивали контрпрепаратом с помощью раствора ДАПИ. В заключение срезы исследовали и фотографировали с использованием флуоресцентной микроскопии. Для флуоресцентной визуализации с ROS, 4-µm замороженный срез кожной ткани или слайды с HPEM размораживали при комнатной температуре и высушивали. Вокруг ткани проводили круг гистохимическим маркером. Слайды обрабатывали средством для подавления аутофлуоресценции в течение 5 мин, затем промывали под проточной водой в течение 10 мин. На срез наносили раствор для окрашивания АФК и инкубировали в темноте при 37°C в течение 30 мин. Срезы трижды промывали в PBS по 5 мин на деколоризационном шейкере. Затем добавляли раствор окрашивающего реагента ДАПИ и инкубировали в течение 10 мин в темноте при комнатной температуре. Срезы были залиты средой, подавляющей флуоресценцию. Затем образцы наблюдали и получали изображения с помощью флуоресцентного микроскопа. Профили возбуждения/излучения составляют 330–380/420 нм для DAPI и 510–560/590 нм для Cy3.
Вестерн-блоттирование
Для ткани кожи мыши или человеческих меланоцитов 50 мг ткани кожи или 2 × 10⁵ клетки и 1 мл лизирующего буфера РИПА, обогащенного ингибиторами протеаз, помещали в микропробирку объемом 1,5 мл. После инкубации на льду в течение 30 мин проводили центрифугирование в течение 5 мин при 12 000 g для сбора надосадочной фракции. После определения концентрации белка методом БЦА к раствору белка и 5× Буфер для загрузки в SDS смешивали в объемном соотношении 4:1, а затем кипятили в металлической бане при 95 °C в течение 5 мин. После того как образец подвергали электрофорезу в 10% ПААГ с 10% SDS при 80 В или 120 В, белки электрофоретически переносили на мембрану 0,22-µm PVDF-мембрана при постоянном токе 200 мА в течение 1 ч44,45Затем мембраны блокировали при комнатной температуре на шейкере центрифуги в течение 1 ч с использованием 5% обезжиренного молока (приготовленного на буфере TBST). После этого мембраны инкубировали с первичными антителами, специфичными к главный комплекс гистосовместимости класса I (MHC I) (1:1000), ИФН-γ (1:1000), ИЛ-6 (1:1000), ИЛ-15 (1:1000), β-актин (1:1000), СОД (1:1000), КАТ (1:1000), глутатионпероксидаза 4 (GPX-4) (1:1000) и FOXO3a (1:1000) при 4 °C инкубировали в течение ночи. Затем мембраны инкубировали с вторичными антителами (1:10000) в течение 1 ч при комнатной температуре. Для развития и получения изображений использовали хемилюминесцентный реагент ECL с применением устройства ChemiScope 6100.
Количественная обратная транскрипция — полимеразная цепная реакция (qRT-PCR)
Во-первых, образцы РНК из ткани кожи мыши или человеческих меланоцитов были получены в соответствии с инструкциями производителя набора для выделения суммарной РНК. Согласно инструкциям по использованию набора для обратной транскрипции, параметры ПЦР-аппарата были установлены как 25°C в течение 10 мин, 42°C в течение 15 мин и 85°C в течение 5 мин для получения образцов кДНК. Аналогично, параметры настройки ПЦР-прибора были следующими для получения достаточного количества копий ДНК: предварительная денатурация: 95°C в течение 5 мин, 1 цикл; Денатурация: 95°C в течение 10 с, 40 циклов; Отжиг и удлинение: 60°C в течение 30 с, 40 циклов. Нормализованное выражение интересующего гена рассчитывается по следующей формуле: 2‑ΔΔCq (ΔΔCq = Cqмишень‑Cqβ‑Актин)46,47Информация о последовательностях праймеров для генов в qRT-PCR приведена в Таблица 1.
Анализ ЧИП-ПЦР
Анализ ChIP-PCR был проведен в соответствии с предыдущим протоколом48Сначала клетки сшивали 1 % формальдегидом в течение 10 мин, после чего добавляли раствор глицина для остановки реакции сшивки. После промывки предварительно охлажденным PBS, содержащим PMSF, клетки лизировали в буфере для лизиса с SDS, содержащем PMSF. Затем хроматиновую ДНК фрагментировали с помощью ультразвукового дисруптора клеток на фрагменты в основном размером от 200 до 1000 пар оснований, а размер фрагментов подтверждали с помощью электрофореза в агарозном геле. Образцы фрагментированного хроматина ресуспендировали в разбавляющем буфере для ChIP, содержащем PMSF, и 20µL в качестве входного контрольного образца. Остальные образцы были предварительно обработаны белком A+G агарозой/ДНК спермы лосося. Затем, 0.5µg первичного антитела, за которым следовало инкубирование в течение ночи при 4°C при медленном перемешивании. Группу отрицательного контроля обрабатывали равным объемом кроличьего IgG. На следующий день добавляли агарозные шарики Protein A+G для захвата антиген-антитело комплексов, после чего комплексы последовательно промывали буфером для промывки иммунных комплексов с низкой солевой концентрацией, буфером для промывки иммунных комплексов с высокой солевой концентрацией, буфером для промывки иммунных комплексов с LiCl и буфером TE. Иммунопреципитированные комплексы элюировали с помощью буфера для элюции, после чего образцы из групп элюата и входного контроля подвергали тепловой обработке 65°C в течение 4 ч для разрушения кросс-связей. После протеолиза белков с помощью протеиназы K ДНК выделяли методом фенол-хлороформной экстракции с последующей осадкой этанолом. Очищенную ДНК растворяли в буфере TE и использовали для последующего анализа методом количественной ОТ-ПЦР. Информация о последовательности генов для ЧИП-ПЦР приведена в Таблица 2.
Геномные участки-кандидаты для ПЦР после иммунопреципитации хроматина были выбраны с помощью in silico-прогнозирования с использованием базы данных JASPAR (https://jaspar.elixir.no/). В частности, исследователи получили последовательности промоторов, охватывающие 2000 пар оснований вверх по течению от сайта инициации транскрипции (TSS) гена CAT, СОДи GPX4 генов. Эти последовательности были проанализированы на наличие мотивов связывания FOXO3a с использованием соответствующей матрицы весов позиций. Чтобы обеспечить баланс между чувствительностью и специфичностью, авторы установили пороговое значение относительного профильного балла >80%. Среди всех предсказанных мотивов, удовлетворяющих этому критерию, авторы выбрали два сайта с наивысшими баллами для каждого гена в качестве кандидатных регионов для подтверждения с помощью ChIP-PCR. Например, в CAT ген выбранные сайты находились на -733 п.н. и -1259 п.н. относительно сайта инициации транскрипции (TSS). Антитело против FOXO3a, использованное в данном исследовании, представляет собой коммерчески доступное антитело, пригодное для иммунопреципитации хроматина (ChIP). Для обеспечения специфичности авторы использовали два независимых отрицательных контроля в каждом анализе ChIP-ПЦР: изотипический контроль с IgG и отрицательный геномный локус. Контроль с изотипическим IgG проводили параллельно с иммунопреципитацией, используя неспецифические IgG того же вида животных. В качестве отрицательного геномного локуса авторы разработали специфическую пару праймеров, нацеленную на участок, не связывающийся с белком, в котором отсутствуют предсказанные консенсусные мотивы для FOXO3a. Данный контрольный участок позволил исключить обогащение, обусловленное случайным фрагментированием хроматина или неспецифической амплификацией в ПЦР. Уровень обогащения рассчитывали с использованием стратегии нормализации в три этапа.
Шаг 1: Введите нормализованный ΔCt, ΔCt [нормализованный IP] = Ct[IP]-(Ct[Input]-log₂(DF)) (1)
ΔCt [нормализованный IgG] = Ct[IgG] - (Ct[Input] - log₂(DF)). (2)
DF = коэффициент разведения входного образца; в эксперименте DF = 10, поскольку использовали 10 % входного материала.
Шаг 2: ΔΔCt между ИП и IgG:
ΔΔCt [IP/IgG] =ΔCt [нормированный IP]-ΔCt [нормированный IgG] (3)
Шаг 3: Коэффициент обогащения = 2(-ΔΔCt [IP/IgG]). (4)
Статистический анализ
Данные представлены как среднее значение ± стандартное отклонение на основе не менее чем трех независимых экспериментов. Статистический анализ проводили с использованием программного обеспечения GraphPad Prism (версия 6.0). Сравнение данных между несколькими группами с нормальным распределением и однородностью дисперсии оценивали с помощью однофакторного дисперсионного анализа (ANOVA) с последующим тестом Тьюки. Статистическую значимость устанавливали при p < 0,05.
Результаты
AMG не вызывает гепаторенальной токсичности у здоровых мышей линии C3H/HeJ
Чтобы с экспериментальной точки зрения четко определить потенциальную токсичность AMG для печени и почек, исследователи вводили трем группам здоровых мышей C3H/HeJ три ранее изученные дозы (60, 90 и 120 мг/кг) посредством зондового введения 38. Как показано на рисунке 1, после внутрижелудочного введения AMG в трех дозах в течение 21 дня архитектура печеночных долек оставалась отчетливой, а гепатоциты располагались упорядоченно. Ткани коркового и мозгового вещества почек были в норме, повреждений или поражений в клубочках или почечных канальцах не наблюдалось. В период введения AMG ни у одной из мышей не было выявлено отклонений в поведении. Действительно, в данной работе не тестировались биохимические показатели токсичности и данные по массе тела, что может повлиять на обоснованность вывода об отсутствии у AMG токсичности для печени и почек. Тем не менее, на основании результатов гистопатологического исследования печени и почек эти данные частично подтверждают, что применение AMG для лечения AA в дозах, установленных авторами, является обоснованным.
AMG ингибирует возникновение и развитие AA, а также генерацию АФК
Сначала они измерили показатели MHC I и IL-15, которые являются неразрывно связаны с началом и прогрессированием из АА. Как показано в Рисунок 2A–Cв условиях моделирования AA количество белков MHC I и IL-15 в тканях кожи мышей C3H/HeJ значительно увеличилось (p < 0,001). В то время как обработка AMG-M и AMG-H значительно снижала уровни экспрессии этих двух белков (p < 0,01 или p < 0.001). Аналогичным образом, три дозы терапии AMG значительно снижали уровень ИЛ-15 в сыворотке крови (p < 0.001, Рисунок 2D). Кроме того, результаты иммунофлуоресцентного анализа показали наличие большого количества АФК в коже мышей группы AA, в то время как вмешательство с применением AMG значительно снизило экспрессию АФК по сравнению с группой AA (p < 0.001, Рисунок 2E и F). При этом результаты проточной цитометрии показали, что уровни АФК в тканях кожи группы AA были значительно повышены по сравнению с контрольной группе. Однако по сравнению с группой AA вмешательство с применением AMG обратило вспять увеличение уровня АФК (p < 0.001, Рисунок 2G и H).
AMG стимулировал экспрессию белка и гена FOXO3a
Для изучения влияния AMG на FOXO3a авторы исследовали уровни его экспрессии как на белковом, так и на генетическом уровнях. Результаты иммунофлуоресцентного анализа показали, что в группе AA наблюдалось заметное снижение экспрессии белка FOXO3a, в то время как AMG стимулировал уровень белка FOXO3a в тканях кожи мышей C3H/HeJ (p < 0.001, Рисунок 3A и B). Дополнительные данные qRT-PCR указывают на то, что AMG значительно повышал экспрессию гена FOXO3a (p < 0.001; Рисунок 3C). Аналогичным образом, эксперимент с использованием вестерн-блоттинга показал, что AMG существенно возросший экспрессия белка FOXO3a (p < 0,05 или p < 0.001, Рисунок 3D и Е).
AMG подавлял процессы окислительного стресса в тканях кожи мышей с АА
Патологическое прогрессирование АА, стимулируемое окислительным стрессом, ведет к ухудшению состояния. Результаты биохимического анализа на рисунке 4 показывают, что по сравнению с контрольной группой показатели антиоксидантной защиты SOD, CAT и GPX-4 в тканях кожи мышей в группе АА были значительно снижены (p < 0,001, рисунок 4A и B), в то время как прооксидантный показатель MDA существенно увеличился (p < 0,001, рисунок 4C). Как и ожидалось, исследователи обнаружили, что после лечения AMG показатели антиоксидантной защиты значительно увеличились, в то время как прооксидантные показатели значительно снизились (p < 0,001; рисунок 4A–C). Аналогично, данные вестерн-блоттинга также показали, что применение AMG значительно повысило уровни экспрессии белков антиоксидантных маркеров SOD, CAT и GPX-4 (p < 0,001; рисунки 4D и 4E).
AMG снижал уровень апоптоза и воспалительных процессов в HPEM, индуцированных H2O2
Результаты, представленные на рисунке 5A, указывают на то, что повышение концентрации H2O2 (200–1000 µM) приводило к прогрессивному снижению жизнеспособности HPEM (p < 0.001). Наиболее подходящей концентрацией для снижения жизнеспособности HPEM оказалась доза 600 µM H2O2 (p < 0.001). Кроме того, авторы обнаружили, что при стимуляции клеток HPEM концентрацией 600 µM H2O2 применение AMG в диапазоне 0,1–10 mg/mL могло значительно повысить жизнеспособность клеток (p < 0.05 или p < 0.001, рисунок 5B). В соответствии с результатами экспериментов на животных, авторы также установили, что AMG значительно подавлял индуцированный H2O2 апоптоз в HPEM, что было показано методом проточной цитометрии для детекции апоптоза на рисунке 5C и D (p < 0.001). Что касается показателя MHC I, вестерн-блот анализ дополнительно продемонстрировал, что AMG заметно подавлял экспрессию белков в HPEM, подвергнутых повреждению, индуцированному H2O2 (p < 0.05 или p < 0.01; рисунки 5E и 5F). При определении воспалительных факторов результаты ELISA показали, что AMG значительно снижал количество провоспалительных цитокинов, включая IFN-γ, IL-6 и IL-15, в HPEM, индуцированных H2O2 (p < 0.001; рисунок 5G). Кроме того, ингибирование этих трех провоспалительных белков под действием AMG было дополнительно подтверждено вестерн-блот анализом, представленным на рисунке 5H и I (p < 0.01 или p < 0.001).
AMG снижал уровни АФК в HPEM, индуцированные H2O2
По сравнению с клетками HPEM, которые не подвергались воздействию H2O2 и AMG, стимуляция 600 µM H2O2 значительно усиливала продукцию АФК, что подтверждается результатами иммунофлуоресценции (p < 0.001, Рисунок 6A и B) и экспериментов с проточной цитометрией (p < 0.001, Рисунок 6C и D) соответственно. Примечательно, что AMG значительно снижал количество АФК (p < 0.001, Рисунок 6).
AMG ограничивал окислительный стресс в HPEM, вызванный H2O22О2
Аналогичным образом авторы оценили влияние AMG на окислительный стресс в HPEM, индуцированный H2O22О2По сравнению с контрольной группой, H2О2 стимуляция привела к снижению активности СОД, КАТ и GPX-4 (p < 0.001, Рисунок 7A и B), при этом значительно повышая уровни МДА (p < 0.001, Рисунок 7C). Как ни странно, вмешательство с применением AMG значительно повысило активность СОД, КАТ и GPX-4 (p < 0.001, Рисунок 7A и B), при этом снижая уровень МДА (p < 0.001, Рисунок 7C). Результаты последующего вестерн-блоттинга также подтвердили, что воздействие AMG привело к значительному увеличению экспрессии белков SOD, CAT и GPX-4 (p < 0,05 или p < 0.01, Рисунок 7D и Е).
AMG повышает уровень FOXO3a и регулируемые FOXO3a уровни SOD, CAT и GPX-4 в HPEMs, индуцированные H2O2
По сравнению с контрольной группой, стимуляция H2O2 привела к заметному снижению экспрессии гена FOXO3a (p < 0,001, Рисунок 8A), в то время как воздействие AMG значительно ослабляло этот эффект (p < 0,05, Рисунок 8A). Результаты последующего вестерн-блоттинга (p < 0,05, Рисунок 8B и C) и иммунофлуоресцентного анализа (p < 0,05, Рисунок 8D и E) также подтвердили, что применение AMG существенно увеличивает экспрессию белка FOXO3a. Эксперимент ChIP-PCR подтвердил, что AMG может повышать уровни экспрессии SOD (p < 0,001), CAT (p < 0,01) и GPX-4 (p < 0,01), как показано на Рисунке 8F–I, а также уровень обогащения FOXO3a на промоторах SOD (p < 0,001), CAT (p < 0,001) и GPX-4 (p < 0,001) (Рисунок 8J–L).
AMG подавлял окислительный стресс и апоптотические явления в HPEM, индуцированные H2O2 и регулируемые FOXO3a
Сначала исследователи создали линию HPEM с низким уровнем экспрессии FOXO3a, которая характеризовалась существенным снижением уровней экспрессии белка (p < 0.001, Рисунок 9A и B) и гена (p < 0.001, Рисунок 9C) FOXO3a. Результаты проточной цитометрии дополнительно показали, что по сравнению с группой H2O2, AMG заметно снижал уровни АФК и апоптоз клеток в HPEM с низкой экспрессией FOXO3a (p < 0.001, Рисунок 9D–G). В то же время AMG значительно повышал экспрессию белка и гена FOXO3a (p < 0.01, Рисунок 9H–J), а также уровни экспрессии регулируемых FOXO3a белков SOD, CAT и GPX-4 (p < 0.05, p < 0.01 или p < 0.001, Рисунок 9H, K–O) и соответствующих генов в HPEM с низкой экспрессией FOXO3a.
ДОСТУПНОСТЬ ДАННЫХ:
Все необработанные данные доступны в общедоступном репозитории данных по следующему адресу https://doi.org/10.5281/zenodo.22090466.
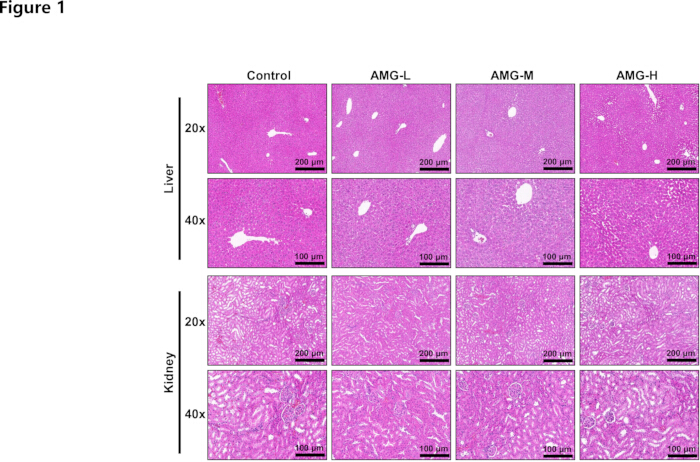
Рисунок 1: Окрашивание гематоксилином и эозином (Г&Э). Окрашивание Г&Э использовали для оценки дозозависимой токсичности AMG (60, 90 и 120 mg/kg) в отношении печени и почек здоровых мышей линии C3H/HeJ. При увеличении 20× (200 µm) и 40× (100 µm) специфических патологических повреждений печени и почек не наблюдалось. n = 6. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
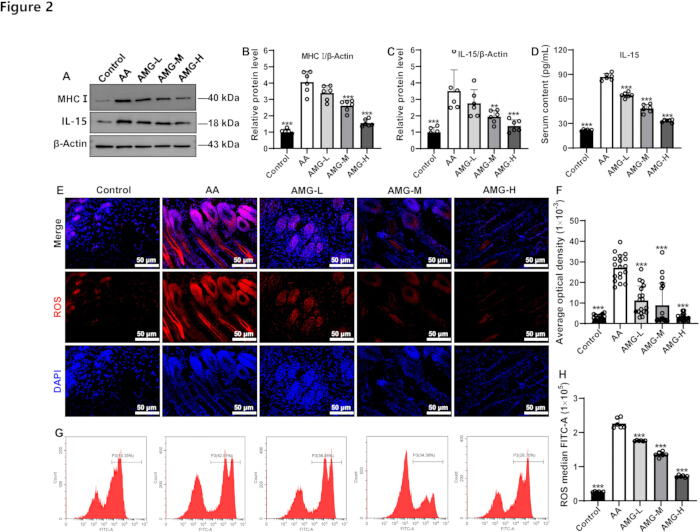
Рисунок 2Влияние AMG на MHC I, IL-15 и АФК в образцах кожи мышей с AA. (А–С), AMG снизил уровни экспрессии белков MHC I и IL-15, что было подтверждено методом вестерн-блоттинга. (D), снижение уровня AMG Уровни IL-15 в сыворотке крови мышей.Е и F), AMG снижал уровни АФК в образцах кожи мышей, что было выявлено с помощью метода иммунофлуоресцентного анализа. (G и H), AMG снижал уровень АФК в образцах кожи мышей, что было определено методом проточной цитометрии. Экспериментальные результаты представлены в виде среднего значения ± СО (стандартное отклонение). **p < 0,01 и ***p < 0,001 по сравнению с группой AA; n = 6. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
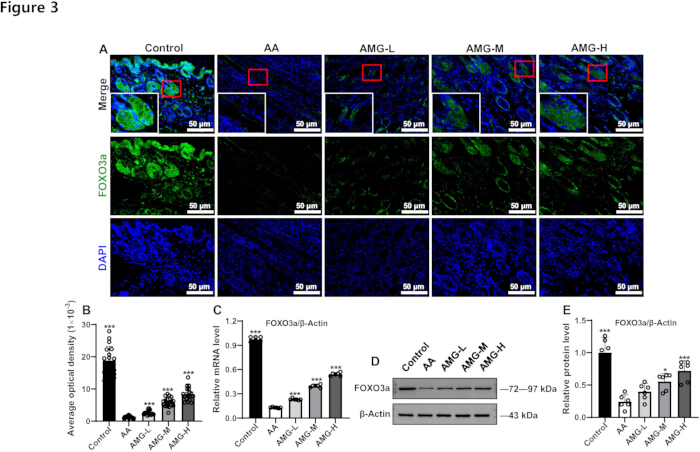
Рисунок 3: Влияние AMG на уровни белка и экспрессию гена FOXO3a в образцах кожи мышей с AA. (A) AMG повысил уровни белка FOXO3a, определенные методом ИФ. (B) Количественные результаты ИФ. (C) AMG повысил экспрессию гена FOXO3a. (D) AMG повысил экспрессию белка FOXO3a, выявленную методом вестерн-блоттинга. (E) Количественные результаты вестерн-блоттинга. Экспериментальные результаты представлены в виде среднего значения ± SD. *p < 0,05 и ***p < 0,001 по сравнению с группой AA; n = 6. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
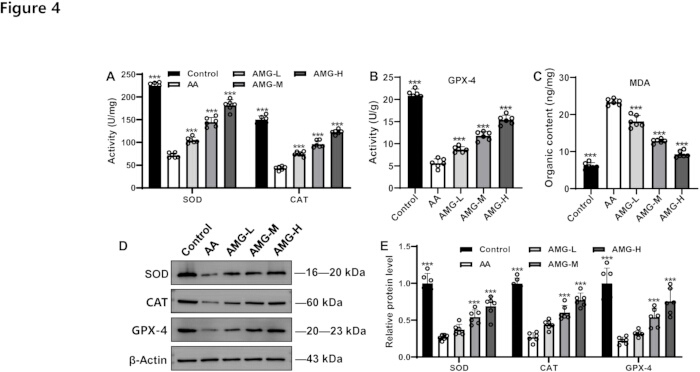
Рисунок 4: Влияние AMG на показатели окислительного стресса в образцах кожи мышей AA. (A) AMG стимулировал уровни SOD и CAT, определенные с помощью биохимического тест-набора. На графиках (B) и (C) показано, что AMG повышал уровни GPX-4 и снижал уровни MDA. (D) Репрезентативные белковые полосы SOD, CAT и GPX-4. (E) Количественные результаты экспрессии белков SOD, CAT и GPX-4. Экспериментальные результаты представлены в виде среднего значения ± SD. ***p < 0.001 по сравнению с группой AA; n = 6. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
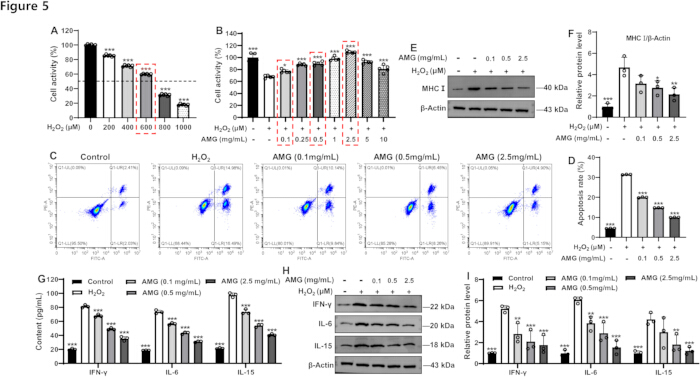
Рисунок 5: Влияние AMG на показатели апоптоза и воспаления в HPEM, индуцированных H2O2. (A) влияние различных концентраций H2O2 на жизнеспособность HPEM (n = 6). (B) Влияние различных концентраций AMG на выживаемость HPEM, индуцированных воздействием H2O2 (n = 6). (C) Проточная цитометрия для оценки апоптоза в HPEM, индуцированных воздействием H2O2, под влиянием AMG. (D) Статистические результаты апоптоза клеток. (E) Полосы вестерн-блоттинга для MHC I. (F) Количественный результат относительной экспрессии белка MHC I. (G) влияние AMG на уровни IFN-γ, IL-6 и IL-15 в HPEM, индуцированных воздействием H2O2. (H) Полосы вестерн-блоттинга для IFN-γ, IL-6 и IL-15. (I) Количественный результат относительного уровня белков IFN-γ, IL-6 и IL-15. Результаты экспериментов представлены в виде среднего значения ± SD. *p < 0.05, **p < 0.01 и ***p < 0.001 по сравнению с группой H2O2; n = 3. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
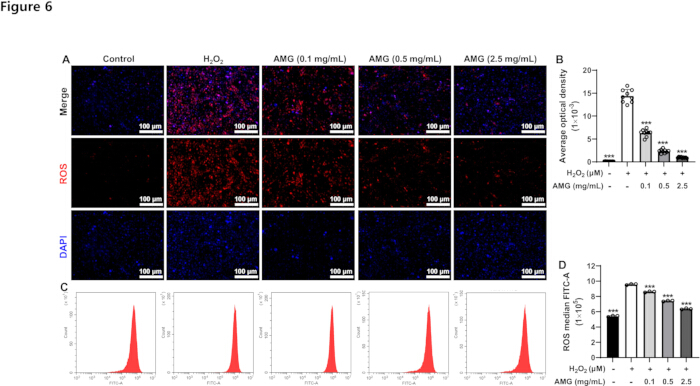
Рисунок 6Влияние AMG на АФК в HPEM, индуцированных H2O22О2. (А) Флуоресцентное изображение АФК. (B) Результаты количественного статистического анализа флуоресценции АФК. (C) Изображение проточной цитометрии АФК. (D) Количественные статистические результаты содержания АФК по данным проточной цитометрии. Экспериментальные результаты представлены в виде среднего значения ± СО (стандартное отклонение) ***p < 0,001 против H₀2О2 группа; n = 3. Нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
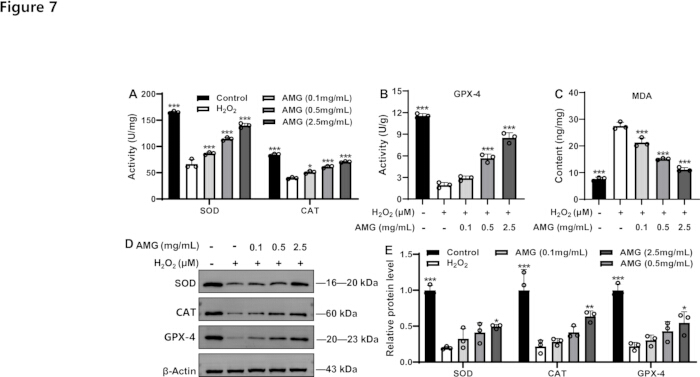
Рисунок 7: Влияние AMG на показатели окислительного стресса в HPEMs, индуцированного H2O2. Уровни SOD (A), CAT (B), GPX-4 (C) и MDA в HPEMs определяли с помощью биохимических наборов или наборов для ИФА. Полосы вестерн-блоттинга для SOD, CAT и GPX-4 (D) и результаты их количественного анализа (E). Экспериментальные результаты представлены как среднее значение ± SD. *p < 0.05, **p < 0.01 и ***p < 0.001 по сравнению с группой H2O2; n = 3. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
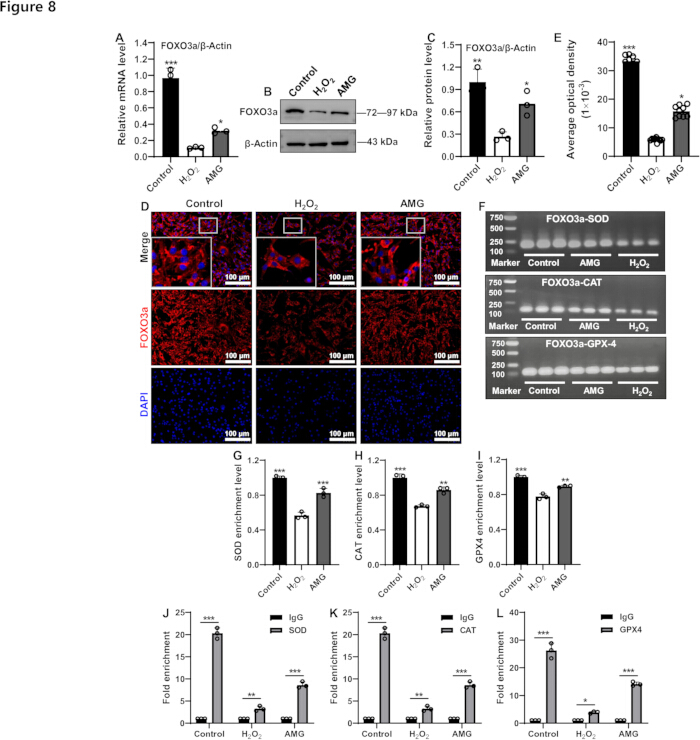
Рисунок 8: Влияние AMG на FOXO3a в HPEMs, индуцированных H2O2. (A) уровень экспрессии гена FOXO3a. Полосы вестерн-блоттинга FOXO3a (B) и количественные результаты (C). Флуоресцентное изображение FOXO3a (D) и количественные статистические результаты флуоресценции (E). (F) репрезентативные электрофореграммы ChIP-PCR для FOXO3a-SOD, FOXO3a-CAT и FOXO3a-GPX-4. Количественный анализ значений серости полос ChIP-PCR для SOD (G), CAT (H) и GPX-4 (I). Уровни обогащения FOXO3a в промоторах SOD (J), CAT (K) и GPX-4 (L) были определены с помощью ChIP-PCR. Экспериментальные результаты представлены в виде среднего значения ± SD. *p < 0.05, **p < 0.01 и ***p < 0.001 по сравнению с группой H2O2 или указанными группами; n = 3. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
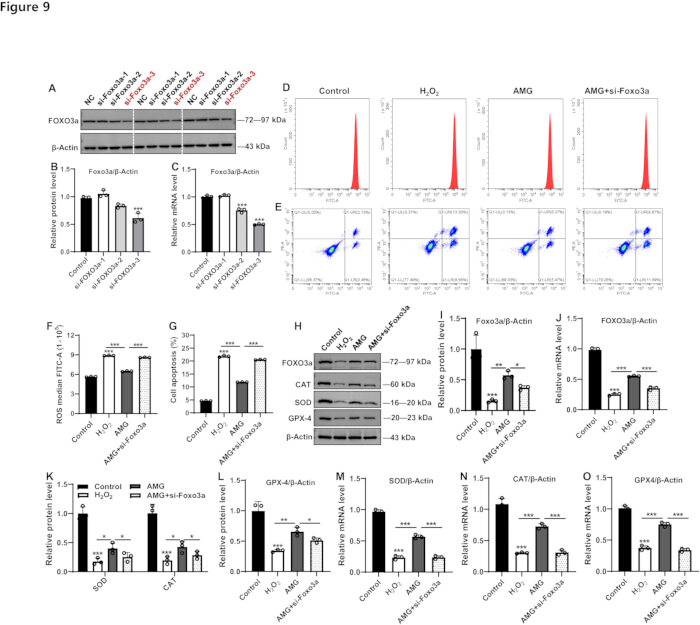
Рисунок 9: Влияние AMG на окислительный стресс и апоптоз в клетках HPEM с низкой экспрессией FOXO3a и стимуляцией H2O2. (A) Полосы вестерн-блоттинга FOXO3a и количественный результат (B). (C) Количественный результат экспрессии мРНК FOXO3a. (D) График проточной цитометрии ROS и апоптоза клеток (E). Соответствующие статистические данные (F и G). (H) Полосы вестерн-блоттинга FOXO3a, SOD, CAT и GPX-4. (I) Количественный результат экспрессии белка FOXO3a. (J) Количественный результат экспрессии мРНК FOXO3a. (K и L) Количественные результаты экспрессии белков SOD, CAT и GPX-4. Количественные результаты экспрессии генов SOD (M), CAT (N) и GPX-4 (O). Экспериментальные результаты представлены в виде среднего значения ± SD. *p < 0.05, **p < 0.01 и ***p < 0.001 по сравнению с контрольной группой или по сравнению с указанными группами; n = 3. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
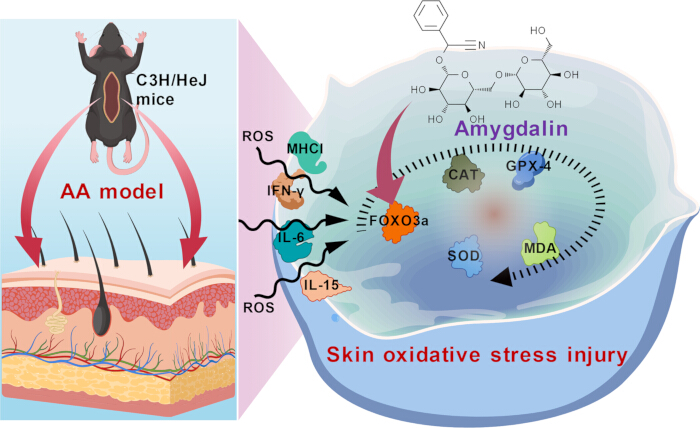
Рисунок 10: Схематическая диаграмма. На данной схеме представлен механизм, посредством которого AMG стимулирует экспрессию FOXO3a, подавляя тем самым окислительный стресс и воспаление, что приводит к улучшению состояния AA. Диаграмма создана авторами с помощью BioGDP.com; авторские права не нарушены. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
| Гены | Виды | Последовательности (5' - 3') | Длина (п.н.) |
| FOXO3a | Мышь | Прямой: GCAAGCCGTGTACTGTGGA | 116 |
| Обратный: CGGGAGCGCGATGTTATCC | |||
| FOXO3a | Человек | Прямой: CGGACAAACGGCTCACTCT | 150 |
| Обратный: GGACCCGCATGAATCGACTAT | |||
| SOD | Человек | Прямой: AAAGATGGTGTGGCCGATGT | 167 |
| Обратный: CAAGCCAAACGACTTCCAGC | |||
| CAT | Человек | Прямой: CTATCCTGACACTCACCGCC | 129 |
| Обратный: CCACCCTGATTGTCCTGCAT | |||
| GPX-4 | Человек | Прямой: GCAAGGGCATCCTGGGAAAT | 84 |
| Обратный: GTTCTTGTCGATGAGGAACTGTG | |||
| β-Actin | Человек | Прямой: AATCTGGCACCACACCTTCTACAA | 172 |
| Обратный: GGATAGCACAGCCTGGATAGCAA | |||
| β-Actin | Мышь | Прямой: GTGCTATGTTGCTCTAGACTTCG | 174 |
| Обратный: ATGCCACAGGATTCCATACC |
Таблица 1: Информация о последовательностях генов для qRT-PCR.Праймеры, использованные для qRT-PCR.
| Гены | Виды | Последовательности (5' - 3') | Длина (п.н.) |
| СОД | Человек | Прямой праймер: TGCCAGAAGAGGGACAGAACAGG | 173 |
| Обратная последовательность: ATCCGCCCACAGACACGAGAG | |||
| КТ (компьютерная томография) | Человек | Прямой праймер: GGGAAGCAGATTTCTCCAGTG | 141 |
| Обратная последовательность: GGGTGTTGATTTCCTCCTTTACC | |||
| GPX-4 | Человек | Прямой праймер: TGGCACATTTTGGGGTTGGAAC | 103 |
| Обратная последовательность: TGAACGCTCCTCCTCCTTAAACG |
Таблица 2: Информация о последовательностях генов для ChIP-ПЦР.Праймеры, использованные для ChIP-ПЦР.
Обсуждение
Сам по себе AMG не обладает прямой токсичностью. Он гидролизуется ферментами кишечных микроорганизмов или желудочной кислотой, в результате чего образуется и высвобождается высокотоксичный цианистый водород49. Затем цианистый водород быстро всасывается через пищеварительный тракт в кровоток и распространяется по тканям организма, вызывая гипоксию тканей нервной, сердечно-сосудистой и дыхательной систем50. С точки зрения механизма, цианистый водород связывается с ионами железа в цитохромоксидазе, блокируя клеточную дыхательную цепь, что приводит к гипоксии тканей и нарушениям клеточного метаболизма, вызывая острое отравление51. Симптомы токсичности включают головную боль, тошноту, рвоту и затрудненное дыхание49,52. В тяжелых случаях это может привести к дыхательной недостаточности и смерти49,52. Следовательно, обеспечение безопасного диапазона дозирования AMG является необходимым условием для изучения его фармакологических эффектов. В данном исследовании авторы сначала подтвердили с помощью патологоанатомического исследования, что использованные ими дозы (60, 90 и 120 mg/kg) не вызывали токсичности в печени или почках у нормальных мышей C3H/HeJ, что послужило основой для дальнейшего изучения лечения гнездовой алопеции с помощью AMG.
IFN-γ служит важнейшим фактором воспаления при развитии AA, секретируясь преимущественно активированными T-клетками CD4+/CD8+53,54,55. Он нарушает иммунную привилегированность волосяных фолликулов (например, путем ингибирования низкой экспрессии MHC I), что побуждает аутореактивные T-клетки атаковать меланоциты волосяных фолликулов, приводя к вакуолизации материнских клеток волоса и аномальной кератинизации волосяной луковицы56,57. Эксперименты на животных показали, что мыши с делецией гена IFN-γ проявляют устойчивость к AA58. IL-6 и IL-15 могут усиливать иммунный ответ по типу Th1, активируя каскад передачи сигнала JAK/STAT и стимулируя высвобождение IFN-γ 59. Кроме того, IL-15 способен стимулировать пролиферацию NK-клеток и T-клеток, усиливая воспалительную инфильтрацию вокруг структур волосяного фолликула60. Нормальные волосяные луковицы избегают иммунного надзора за счет низкой экспрессии MHC I, тогда как у пациентов с AA экспрессия MHC I аномально повышена, что делает меланоциты волосяных фолликулов мишенью для атаки T-клеток61. В данном исследовании авторы отметили, что терапия AMG значительно снижала уровни белков MHC I и IL-15 в коже мышей C3H/HeJ. Предыдущие эксперименты на животных также подтвердили, что AMG может подавлять уровни IFN-γ и IL-6 у мышей с AA38. При повреждении HPEMs, индуцированном H2O2, экспрессия MHC I, а также провоспалительных цитокинов, включая IFN-γ, IL-6 и IL-15, была значительно ограничена после лечения AMG. Эти данные позволяют предположить, что потенциал AMG в лечении AA может быть связан с поддержанием баланса между иммунитетом и воспалением.
Дисбаланс между системой антиоксидантных ферментов (SOD, CAT и GPX-4) и маркерами перекисного окисления липидов MDA и ROS играет решающую роль в патогенезе AA62. SOD снижает окислительный стресс, катализируя превращение O2·⁻ в H2O2, в то время как CAT и GPX-4 далее разлагают H2O2 до H2O, предотвращая накопление ROS. Данные свидетельствуют о том, что избыток ROS может инициировать перекисное окисление липидов, что приводит к повышению уровней MDA и прямому повреждению клеток волосяного фолликула63. У пациентов с AA способность волосяных фолликулов к элиминации ROS снижается, а накопление MDA усиливает апоптотическую гибель клеток волосяного сосочка, в результате чего волосяные фолликулы преждевременно переходят в фазу покоя63. Более того, окислительный стресс может стимулировать высвобождение провоспалительного фактора IFN-γ, что дополнительно усугубляет иммунную атаку и дегенерацию волосяного фолликула64. В данном исследовании ученые установили, что вмешательство с использованием AMG снижало гиперэкспрессию ROS в коже мышей с AA и уменьшало повреждение клеток HPEM, индуцированное H2O2. В то же время эксперименты in vivo и ex vivo показали, что лечение AMG значительно повышало показатели антиоксидантной защиты (SOD, CAT и GPX-4), ослабляя при этом прооксидантный показатель MDA. Эти данные указывают на то, что поддержание баланса окислительного стресса является механизмом действия AMG при AA. Учитывая, что снижение активности GPX-4 может привести к неконтролируемой генерации MDA, это может запустить процесс ферроптоза. Эти молекулярные процессы также могут способствовать обострению AA и служить потенциальным механизмом действия терапии AMG. Все вышеперечисленное требует дальнейшего экспериментального подтверждения в будущем.
Являясь ключевым фактором транскрипции, FOXO3a может быть вовлечен в патогенез AA как через пути окислительного стресса, так и через пути иммунной регуляции65При окислительном стрессе данный белок может транслоцироваться в ядро, тем самым повышая экспрессию ключевых антиоксидантных ферментов, таких как СОД и КАТ, для удаления избыточных АФК и снижения окислительного повреждения тканей кожи головы. Смягчая локальную окислительную нагрузку, FOXO3a может стабилизировать иммунную привилегированность волосяных фолликулов и сдерживать аутоиммунную атаку, которая вызывает не рубцующуюся потерю волос. Что касается регуляции окислительного стресса, активация FOXO3a может повышать экспрессию таких антиоксидантных ферментов, как СОД и КАТ, и подавлять накопление АФК.65Однако нарушение функции FOXO3a может привести к повышенной генерации МДА, ключевого продукта перекисного окисления липидов, что, в свою очередь, усиливает апоптоз клеток 66. На уровне иммунорегуляции FOXO3a провоцирует аутоиммунные атаки, регулируя антигены, ограниченные MHC I.67В данном исследовании сообщается, что AMG значительно повышает уровни белка и экспрессию гена FOXO3a в тканях кожи мышей линии C3H/HeJ и в клетках HPEM, подвергнутых воздействию H2O2. Кроме того, AMG снижал уровни АФК и уровень апоптоза клеток, одновременно повышая экспрессию FOXO3a и уровни регулируемых FOXO3a ферментов SOD, CAT и GPX-4 в клетках HPEM с низким уровнем экспрессии FOXO3a. В совокупности эти результаты указывают на то, что терапевтический эффект AMG при AA тесно связан с опосредованным FOXO3a регуляторным балансом между окислительным стрессом и клеточным апоптозом. Учитывая причинно-следственную связь между воздействием AMG на FOXO3a и улучшением состояния при AA, в будущих исследованиях необходимо провести гиперэкспрессию FOXO3a или его фармакологическое ингибирование на фоне применения AMG. Кроме того, предстоит выяснить, способен ли опосредованный AMG путь FOXO3a снижать окислительный стресс и модулировать воспалительные реакции, чтобы защитить стволовые клетки волосяного фолликула от повреждений, вызванных АФК, и иммуноопосредованного разрушения. Еще один важный момент заключается в том, оказывает ли AMG свой антиоксидантный эффект путем прямого противодействия токсичности H₂О₂ или путем регулирования внутриклеточной передачи сигналов остается нерешенным вопросом в данном исследовании.
В заключение, в ходе данного исследования было подтверждено, что AMG не обладает потенциальной токсичностью для печени и почек при протестированных дозировках. Кроме того, на молекулярном уровне было продемонстрировано, что AMG может стимулировать экспрессию FOXO3a, тем самым транскрипционно активируя экспрессию SOD, CAT и GPx-4, а также подавляя воспалительные реакции и апоптотические процессы при лечении AA (Рисунок 10). Тем не менее, некоторые существующие ограничения данного исследования требуют дальнейшего изучения и уточнения в последующих работах. Во-первых, выяснение долгосрочной токсичности и фармакокинетических свойств AMG у животных с AA служит основой и предпосылкой для углубленного изучения его фармакологических эффектов и молекулярных механизмов. Во-вторых, фармакологическое действие AMG при лечении AA все еще требует подтверждения в ходе крупномасштабных исследований на нескольких моделях животных и в клинических испытаниях. Что касается молекулярного механизма, необходимо провести эксперименты по «спасению» (rescue experiments), чтобы дополнительно подтвердить, опосредован ли фармакологический эффект AMG именно белком FOXO3a. Также требует дальнейшего изучения вопрос о том, обусловлен ли эффект прямой антиоксидантной активностью AMG или антиоксидантным действием, реализуемым через опосредованный AMG путь FOXO3a.
Раскрытие информации
Авторы заявляют об отсутствии конфликта интересов.
ВКЛАД АВТОРОВ:
Сюнь Хэ: исследование, методология, написание первоначального варианта. Цзиньсун Лоу, Цзявэй Ван и Чже Дай: обработка данных. Юйгань Гун, Вэй Лу и Сяовэй Ша: программное обеспечение, визуализация и проверка достоверности. Сюнь Хэ: концептуализация, написание — рецензирование &редактирование, получение финансирования и научное руководство
Благодарности
Данная работа была поддержана Комитетом по здравоохранению кадров провинции Сычуань (2024-221).
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| 5×Универсальный мастер-микс All-In-One (с набором AccuRT для удаления геномной ДНК) | Applied Biological Materials Inc., Цзянсу, Китай | G492 | |
| β-антитело к актину | Affinity Biosciences Co., Ltd., Ухань, Китай | AF7018 | |
| Амигдалин | Chengdu Herbpurify Co., Ltd., Чэнду, Китай | K-001-181216 | |
| Антитела к каталазе | Proteintech, Ухань, Китай | 66765-1-Ig | |
| Набор для определения каталазы | Elabscience, Ухань, Китай | E-BC-K031-M | |
| мыши линии C3H/HeJ | Chengdu Yaokang Biotechnology Co., Ltd., Чэнду, Китай | N000190 | |
| Набор для проведения иммунопреципитации хроматина (ChIP) | Beyotime Biotechnology, Шанхай, Китай | P2078 | |
| культуральная среда 254 | Gibco, Thermo Fisher Scientific, США | M-254-500 | |
| реагент для окрашивания DAPI | Servicebio, Ухань, Китай | G1012 | |
| Диспаза II | Shanghai Yuanye Bio-Technology Co., Ltd., Шанхай, Китай | S25046 | |
| EvaGreen Express 2×Мастер-микс для кПЦР без красителя | Applied Biological Materials Inc., Цзянсу, Китай | MasterMix-ES | |
| Быстрый черный HB | Sangon Biotech Co., Ltd., Шанхай, Китай | A602008-0025 | |
| Фетальная бычья сыворотка | Все зеленое | 13011-8611 | |
| Флуоресцентный микроскоп | SOPTOP | CX40 | |
| антитело к FOXO3a | Proteintech, Ухань, Китай | 10849-1-AP | |
| Криостат (микротом для заморозки) | Thermo | Криотом E | |
| Антитело к глутатионпероксидазе 4 | Proteintech, Ухань, Китай | 67763-1-Ig | |
| Набор для определения глутатионпероксидазы 4 | Elabscience, Ухань, Китай | E-BC-K883-M | |
| Image-pro plus 6.0 | Media Cybernetics, Inc., Роквилл, Мэриленд, США | —— | |
| Крем с имиквимодом | Sichuan Mingxin Pharmaceutical Co. Ltd., Чэнду, Китай | H20030129 | |
| Антитела к интерферону гамма | Proteintech, Ухань, Китай | 15365-1-AP | |
| Набор для определения интерферона гамма | Elabscience, Ухань, Китай | E-EL-H0108 и E-EL-M0048 | |
| Антитела к интерлейкину-6 | Proteintech, Ухань, Китай | 21865-1-AP | |
| Набор для определения интерлейкина 6 | Elabscience, Ухань, Китай | E-EL-H6156 и E-EL-M0044 | |
| Антитела к интерлейкину 15 | Affinity Biosciences Ltd., Ухань, Китай | DF2521 | |
| Набор для определения интерлейкина 15 | Elabscience, Ухань, Китай | E-EL-H0222 и E-EL-M0728 | |
| Набор для определения малонового диальдегида | Elabscience, Ухань, Китай | E-EL-0060 | |
| антитела к ГКГ (главному комплексу гистосовместимости) | Affinity Biosciences Ltd., Ухань, Китай | DF8558 | |
| Оптический микроскоп | ZEISS | Primo Star | |
| Парафиновый микротом | Thermo Scientific | HM325 | |
| Программное обеспечение для патоморфологического сканирования | 3DHISTECH (Венгрия) | Просмотр слайдов 2.5.0 | |
| Раствор пенициллина и синтройда | Biosharp, Пекин, Китай | BL505A | |
| IgG кролика | Beyotime Biotechnology, Шанхай, Китай | A7016 | |
| Набор для анализа АФК | Beyotime Biotechnology, Шанхай, Китай | S0033M | |
| Антитела к супероксиддисмутазе 1 | Proteintech, Ухань, Китай | 10269-1-AP | |
| Система для заливки тканей | Wuhan Junjie Electronics Co., Ltd., Ухань, Китай | JB-P5 | |
| Гидроэкстрактор для тканей | Thermo Scientific | STP420 ES | |
| Набор для выделения общей РНК | Foregene, Чэнду, Китай | RE-03014 | |
| Набор для определения общей супероксиддисмутазы | Elabscience, Ухань, Китай | E-BC-K020-M | |
| Белый вазелин | Shanghai Aladdin Biochemical Technology Co., Ltd., Шанхай, Китай | P434227 |
Ссылки
- Li XQ, et al. Burden of alopecia areata in China, 1990-2021: Global Burden of Disease Study 2021. Chin Med J (Engl). 2025;138:318-324.
- Rodríguez-Tamez G, Maskan-Bermudez N, Tosti A. Alopecia areata incognita: Current evidence. Dermatol Ther (Heidelb). 2025;15:635-645.
- Zhou J, et al. Global burden of alopecia areata and associated diseases: A trend analysis from 1990 to 2021. J Cosmet Dermatol. 2025;24:e70076.
- Jeon JJ, Lee S, Kim MS, Kim YS, Hong SH, Yon DK, et al. The burden of alopecia areata among United States, 2000-2021: A systematic analysis for the global burden of disease study 2021. J Am Acad Dermatol. 2025;S0190-9622(25)02673-8.
- Todorova L, Kluger N. Alopecia: A Google trends analysis of the past 5 years (2018-2023). Skin Appendage Disord. 2025;11:282-286.
- Pratt CH, King LEJr, Messenger AG, Christiano AM, Sundberg JP. Alopecia areata. Nat Rev Dis Primers. 2017;3:17011.
- Mistry J, Sibbald C. Clinical presentations and comorbidities of pediatric alopecia areata. Pediatr Dermatol. 2025;42 Suppl 1:5-11.
- Kuty-Pachecka M. Psychological and psychopathological factors in alopecia areata. Psychiatr Pol. 2015;49:955-964.
- Marahatta S, Agrawal S, Adhikari BR. Psychological impact of alopecia areata. Dermatol Res Pract. 2020;2020:8879343.
- Dainichi T, Iwata M, Kaku Y. Alopecia areata: What's new in the epidemiology, comorbidities, and pathogenesis J Dermatol Sci. 2023;112:120-127.
- Lintzeri DA, Constantinou A, Hillmann K, Ghoreschi K, Vogt A, Blume-Peytavi U. Alopecia areata - Current understanding and management. J Dtsch Dermatol Ges. 2022;20:59-90.
- Singh R, Kumar P, Kumar D, Aggarwal N, Chopra H, Kumar V. Alopecia areata: Review of epidemiology, pathophysiology, current treatments and nanoparticulate delivery system. Ther Deliv. 2024;15:193-210.
- Rizzetto G, De Simoni E, Gioacchini H, Molinelli E, Offidani A, Simonetti O. Fractionated CO2 laser in combination with topical tacrolimus for chronic alopecia areata: A case series study. Life (Basel). 2024;14:1128.
- Gasques L, de Brito FF, Zobiole R, Bortolini L, Assumpção VCC, Carvalho CL. Corticosteroid atrophy plaque on the scalp treated with 5-fluourouracil and bleomycin infusion in the MMP technique. Skin Appendage Disord. 2024;10:425-428.
- Lee D, et al. Serum levels of IL-18 and sIL-2R in patients with alopecia areata receiving combined therapy with oral cyclosporine and steroids. Exp Dermatol. 2010;19:145-147.
- Mlacker S, et al. A review on laser and light-based therapies for alopecia areata. J Cosmet Laser Ther. 2017;19:93-99.
- Jafari MA, Bazgir G, Hosseini-Baharanchi FS, Jafarzadeh A, Goodarzi A. Efficacy and safety of laser therapy and phototherapy in cicatricial and noncicatricial alopecia: A systematic review study. Health Sci Rep. 2024;7:e70180.
- Civaş E, Aksoy B, Aksoy HM, Eski M, Yucel K. Hair transplantation for therapy-resistant alopecia areata of the eyebrows: is it the right choice J Dermatol. 2010;37:823-826.
- King BA, Craiglow BG. Janus kinase inhibitors for alopecia areata. J Am Acad Dermatol. 2023;89:S29-S32.
- Chim I, Ghiya R, Sinclair RD, Eisman S. Novel investigational drugs for alopecia areata and future perspectives. Expert Opin Investig Drugs. 2024;33:441-449.
- Valdez-Zertuche JA, Ramírez-Marín HA, Tosti A. Efficacy, safety and tolerability of drugs for alopecia: A comprehensive review. Expert Opin Drug Metab Toxicol. 2025;21:347-371.
- Liu M, et al. Janus kinase inhibitors for alopecia areata: A systematic review and meta-analysis. JAMA Netw Open. 2023;6:e2320351.
- Sohn KC, et al. Effect of thioredoxin reductase 1 on glucocorticoid receptor activity in human outer root sheath cells. Biochem Biophys Res Commun. 2007;356:810-815.
- Sun C, Ding HH, Zhang L, Wang JL, Su MY. Co-regulatory mechanisms and potential markers of oxidative stress-related genes in vitiligo and alopecia areata. Skin Res Technol. 2024;30:e70001.
- Perlmutter J, et al. The role of reactive oxygen species in the pathogenesis of alopecia areata: A systematic review and meta-analysis. Skin Pharmacol Physiol. 2025;38:59-67.
- Xie B, Sun JY, Song XZ. Hair follicle melanocytes initiate autoimmunity in alopecia areata: A trigger point. Clin Rev Allergy Immunol. 2022;63:417-430.
- Shin JM, et al. The crosstalk between PTEN-induced kinase 1-mediated mitophagy and the inflammasome in the pathogenesis of alopecia areata. Exp Dermatol. 2024;33:e14844.
- Mustafa AI, Khashaba RA, Fawzy E, Baghdady SMA, Rezk SM. Cross talk between oxidative stress and inflammation in alopecia areata. J Cosmet Dermatol. 2021;20:2305-2310.
- Cohen JN, et al. Regulatory T cells in skin mediate immune privilege of the hair follicle stem cell niche. Sci Immunol. 2024;9:eadh0152.
- Kinoshita-Ise M, Martinez-Cabriales SA, Alhusayen R. Chronological association between alopecia areata and autoimmune thyroid diseases: A systematic review and meta-analysis. J Dermatol. 2019;46:702-709.
- Chen DY, Yang XY, Wang HX, Fan WL, He YQ. Molecular mechanism of polygonum multiflorum in the treatment of androgenic alopecia: based on bioinformatics and molecular docking method. Diagnosis and Therapy Journal of Dermato-Venereology 2022;29:101–108.
- Iwasa K, et al. Long term administration of loquat leaves and their major component, ursolic acid, attenuated endogenous amyloid-β burden and memory impairment. Sci Rep. 2023;13:16770.
- Makovi CM, Parker CH, Zhang K. Determination of amygdalin in apricot kernels and almonds Using LC-MS/MS. J AOAC Int. 2023;106:457-463.
- Li XJ, et al. Identifying the active components and mechanisms of Persicae Semen in treating androgenetic alopecia: Insights from network pharmacology and experimental evaluations. J Ethnopharmacol. 2025;347:119755.
- Wang Q, et al. Amygdalin alleviates psoriasis-like lesions by improving skin barrier function. Arch Dermatol Res. 2025;317:115.
- Li SY, et al. Effects of amygdalin on ferroptosis and oxidative stress in diabetic retinopathy progression via the NRF2/ARE signaling pathway. Exp Eye Res. 2023;234:109569.
- Kimura K, Liu YH, Hsieh CL. Amygdalin's neuroprotective effects on acute ischemic stroke in rats. J Ethnopharmacol. 2025;345:119621.
- He X, et al. Amygdalin ameliorates alopecia areata on C3H/HeJ mice by inhibiting inflammation through JAK2/STAT3 pathway. J Ethnopharmacol. 2024;331:118317.
- He X, et al. The antiinflammatory effects of Xuefu Zhuyu decoction on C3H/HeJ mice with alopecia areata. Phytomedicine. 2021;81:153423.
- Ma LP, et al. Melatonin inhibits senescence-associated melanin pigmentation through the p53-TYR pathway in human primary melanocytes and the skin of C57BL/6 J mice after UVB irradiation. J Mol Med (Berl). 2023;101:581-593.
- Hou Y, et al. Longzhibu disease and its therapeutic effects by traditional Tibetan medicine: Ershi-wei Chenxiang pills. J Ethnopharmacol. 2020;249:112426.
- Hou Y, Fan FH, Xie N, Zhang Y, Wang XB, Meng XL. Rhodiola crenulata alleviates hypobaric hypoxia-induced brain injury by maintaining BBB integrity and balancing energy metabolism dysfunction. Phytomedicine. 2024;128:155529.
- Hou Y, et al. Salidroside intensifies mitochondrial function of CoCl2-damaged HT22 cells by stimulating PI3K-AKT-MAPK signaling pathway. Phytomedicine. 2023;109:154568.
- Fan FH, et al. Association between systemic immune-inflammation indexes and Nuodikang capsule’s protection in LPS-induced acute lung injury in mice. Phytomedicine. 2025;147:157229.
- Wang XB, et al. Mechanistic insights into salidroside's mitochondrial protection via AMPK/Sirt1/HIF-1α pathway in hypoxic HT22 cells. JoVE. 2025;218:e66923.
- Wang XB, et al. Rhodiola crenulata attenuates apoptosis and mitochondrial energy metabolism disorder in rats with hypobaric hypoxia-induced brain injury by regulating the HIF-1α/microRNA 210/ISCU1/2(COX10) signaling pathway. J Ethnopharmacol. 2019;241:111801.
- Fan SJ, et al. PRMT5 encourages cell migration and metastasis of tongue squamous cell carcinoma through methylating ΔNp63α. Cell Death Differ. 2026; 33:465-479.
- Zhao Y, et al. Integrated analysis reveals that EGR1 promotes epithelial IL33 production in T2 asthma. J Transl Med. 2025;23:203.
- He XY, Wu LJ, Wang WX, Xie PJ, Chen YH, Wang F. Amygdalin - A pharmacological and toxicological review. J Ethnopharmacol. 2020;254:112717.
- Alan-Albayrak E, Simonsen U. Cyanide beyond toxicity: A systematic review of its effects on vascular function. Basic Clin Pharmacol Toxicol. 2025;137:e70124.
- Lachowicz JI, Alexander J, Aaseth JO. Cyanide and cyanogenic compounds-toxicity, molecular targets, and therapeutic agents. Biomolecules. 2024;14:1420.
- Jaszczak-Wilke E, Polkowska Ż, Koprowski M, Owsianik K, Mitchell AE, Bałczewski P. Amygdalin: Toxicity, anticancer activity and analytical procedures for its determination in plant seeds. Molecules. 2021;26:2253.
- Deeths MJ, Endrizzi BT, Irvin ML, Steiner LP, Ericson ME, Hordinsky MK. Phenotypic analysis of T-cells in extensive alopecia areata scalp suggests partial tolerance. J Invest Dermatol. 2006;126:366-373.
- Garzorz N, et al. Dissecting susceptibility from exogenous triggers: the model of alopecia areata and associated inflammatory skin diseases. J Eur Acad Dermatol Venereol. 2015;29:2429-2435.
- Belpaire A, Demeyer A, Van Caelenberg E, van Geel N, Speeckaert R. The AhR pathway is dysregulated in alopecia areata. J Transl Autoimmun. 2025;10:100282.
- Gilhar A, Schrum AG, Etzioni A, Waldmann H, Paus R. Alopecia areata: Animal models illuminate autoimmune pathogenesis and novel immunotherapeutic strategies. Autoimmun Rev. 2016;15:726-735.
- Oelert T, Gilhar A, Paus R. T-cell "induced-self" MHC class I/peptide complexes may enable "de novo" tolerance induction to neo-antigens occurring outside of the thymus: Lessons from the hair follicle. Exp Dermatol. 2017;26:529-531.
- Freyschmidt-Paul P, et al. Interferon-γ-deficient mice are resistant to the development of alopecia areata. Br J Dermatol. 2006;155:515-521.
- Lensing M, Jabbari A. An overview of JAK/STAT pathways and JAK inhibition in alopecia areata. Front Immunol. 2022;13:955035.
- Suzuki T, et al. Interleukin-15 is a hair follicle immune privilege guardian. J Autoimmun. 2024;145:103217.
- Fitzhugh MH, Hansen JG, Jabbari A, Berrebi KG. Pathophysiology of Alopecia Areata in the Pediatric Patient. Pediatr Dermatol. 2025;42:24-30.
- Ma YQ, Sun Z, Li YM, Xu H. Oxidative stress and alopecia areata. Front Med (Lausanne). 2023;10:1181572.
- Bakry OA, Elshazly RM, Shoeib MA, Gooda A. Oxidative stress in alopecia areata: A case-control study. Am J Clin Dermatol. 2014;15:57-64.
- Peterle L, Sanfilippo S, Borgia F, Cicero N, Gangemi S. Alopecia areata: A review of the role of oxidative stress, possible biomarkers, and potential novel therapeutic approaches. Antioxidants (Basel). 2023;12:135.
- Yang X, et al. Exosomes derived from platelet-rich plasma promote hair regeneration by regulating the SIRT1/FoxO3a pathway to alleviate oxidative stress. Regen Ther. 2025;30:710-718.
- Xu SC, Huang P, Yang JH, Du HX, Wan HT, He Y. Calycosin alleviates cerebral ischemia/reperfusion injury by repressing autophagy via STAT3/FOXO3a signaling pathway. Phytomedicine. 2023;115:154845.
- Tang QY, et al. Orlistat facilitates immunotherapy via AKT-FOXO3a-FOXM1-mediated PD-L1 suppression. J Immunother Cancer. 2025;13:e008923.