Мы представляем подробный, воспроизводимый протокол диссекции, иммуноокрашивания и монтирования развивающейся и взрослой зрительной системы Drosophila для получения изображений высокого разрешения. Эти методы позволяют визуализировать паттернирование нейробластов, спецификацию нейронов, таргетинг аксонов фоторецепторов и организацию нейропиля взрослых особей, предлагая универсальную основу для изучения развития зрительной системы.
Методическая статья
Протокол диссекции, иммуноокрашивания и монтирования зрительной системы Drosophila
В этой статье
Краткое содержание
Аннотация
The Drosophila Зрительная система представляет собой мощную модель для изучения того, как формируется нейрональное разнообразие и как оно интегрируется в функциональные нейронные цепи, что является центральным вопросом нейробиологии развития. Она состоит из сетчатки и четырех различных нейропилей: ламины, медуллы, лобулы и пластинчатой лобулы, которые вместе образуют высокоорганизованную структуру, обрабатывающую зрительную информацию, поступающую от сетчатки, и передающую ее в высшие центры головного мозга. В процессе развития зрительная система подвергается значительной перестройке. Во время личиночного развития из нейроэпителия последовательно генерируются нейробласты, которые делятся асимметрично, создавая разнообразные нейрональные подтипы путем интеграции программ пространственного и временного паттернирования. Затем эти нейроны дифференцируются и формируют точные синаптические связи, которые выстраивают функциональные цепи зрительной системы взрослого организма. Эти динамические процессы можно достоверно изучать с помощью иммуноокрашивания на личиночной, куколочной и имаго стадиях. В данном материале представлен подробный, воспроизводимый протокол диссекции и иммуногистохимического окрашивания развивающегося и взрослого Drosophila зрительная система. В основном мы фокусируемся на репрезентативном имиджинге нейробластов личинок, чтобы продемонстрировать пространственно-временную паттернизацию и спецификацию нейронов, а также для визуализации морфологии нейропиля взрослых особей. Это обеспечивает надежную основу для визуализации развивающейся Drosophila зрительная система
Введение
Зрительная система Drosophila melanogaster служит важной моделью развития для изучения клеточных и молекулярных механизмов, лежащих в основе развития нервной системы. Ее высокостереотипные структуры, обширный генетический инструментарий и консервативные процессы развития расширили наше понимание развития нейральных стволовых клеток, спецификации нейронов, сборки нейронных цепей и организации мозга. Зрительная система мухи состоит из сетчатки сложного глаза и четырех зрительных нейропилей — ламины, медуллы, лобулы и лобулярной пластинки, — организованных в сложную иерархическую цепь1. Сенсорные фоторецепторные клетки сетчатки улавливают свет и преобразуют его в нейронные сигналы2,3,4. Эти сигналы проходят через локальные интернейроны и проекционные нейроны, которые соединяют четыре зрительные нейропили, где на последовательных этапах обработки извлекаются такие визуальные признаки, как контраст, движение и цвет4,5. Затем обработанная визуальная информация передается в высшие центры мозга через зрительные проекционные нейроны для дальнейшей интеграции4,5,6.
Развивающаяся оптическая доля проходит через серию точно скоординированных событий развития, которые превращают пролиферирующий нейроэпителий (NE) в сложную сеть нейронных цепей7,8. NE возникает из оптического плакоды в ходе эмбриогенеза7,8. На личиночных стадиях нейроэпителиальные клетки изначально пролиферируют посредством симметричных делений для расширения пула предшественников. Впоследствии они постепенно трансформируются в нейробласты, которые делятся асимметрично, создавая нейроны и глиальные клетки взрослой зрительной системы9,10,11,12,13. Механизмы пространственно-временного паттернирования диверсифицируют идентичность нейронов, при этом вновь образованные нейроны формируют концентрические слои в развивающейся медулле и впоследствии дифференцируются в функциональные цепи в период развития куколки14,15,16,17,18,19. Интеграция пространственно-временных сигналов активирует специфичные для типов клеток нейронные факторы транскрипции, устойчивая экспрессия которых определяет типы нейрональных клеток14,15,20,21,22. Аналогичные механизмы существуют в ламине и лобуле для определения идентичности нейронов14,23,24,25,26.
Иммунофлуоресцентная визуализация развивающейся зрительной системы стала предпочтительным методом изучения клеточных и молекулярных событий, лежащих в основе ее развития. Успешная визуализация зависит не только от подготовки высококачественных образцов тканей и использования надежных реагентов для иммуноокрашивания, но и от тщательного препарирования и точной ориентации образца при монтировании27,28. Различные структуры в процессе развития и клеточные процессы требуют специфической ориентации образцов для выявления анатомических особенностей мозга. В ряде статей и протоколов подробно описаны методы препарирования и иммуноокрашивания мозга Drosophila28,29,30,31,32. Однако лишь немногие из них рассматривали этот вопрос в контексте широко изученного процесса развития зрительной системы27.
Здесь мы представляем подробный протокол препарирования, иммуноокрашивания и монтирования зрительных систем личинок и взрослых особей. Простой и экономичный метод препарирования мозга личинок с использованием общедоступных игол шприцев делает эту процедуру доступной для лабораторий и учебных заведений с ограниченным набором специализированных инструментов для диссекции. Мы демонстрируем протокол на репрезентативных примерах, включая визуализацию перехода нейроэпителия в нейробласт (NE в NB) у личинок, концентрическую организацию нейронов в развивающейся медулле, а также нейропили зрительных долей взрослого насекомого. Мы также приводим примеры, иллюстрирующие анализ пространственного и временного паттернирования, а также таргетинг фоторецепторов в развивающейся и взрослой зрительной системе. В совокупности эти процедуры и определенные ориентации при монтировании обеспечивают практическую основу для получения воспроизводимых высококачественных изображений развивающейся и зрелой зрительной системы Drosophila для исследований нейроразвития.
Протокол
1. Подготовка реагентов и оборудования
Для успешного препарирования и иммуноокрашивания зрительной системы Drosophila необходимо подготовить все реагенты и оборудование перед началом эксперимента. Предварительное приготовление всех растворов сводит к минимуму время манипуляций с тканью и помогает сохранить морфологию ткани на протяжении всей процедуры. Следующие реагенты должны быть подготовлены и находиться под рукой:
- Фосфатно-солевой буфер (1x PBS): приготовьте 1x PBS из 10-кратного стокового раствора для препарирования тканей, промывки и подготовки реагентов. PBS обеспечивает изотоническую среду, которая поддерживает целостность тканей во время манипуляций. Храните 1x PBS при 4 °C.
- Среда для препарирования: для препарирования используйте охлажденную до 0 °C среду Шнайдера для насекомых. Среда Шнайдера разработана для поддержания тканей Drosophila, так как она максимально приближена по ионному составу к гемолимфе насекомых, и рекомендуется для длительного препарирования.
- Фиксирующий раствор (4% формальдегид в 1x фосфатно-солевом буфере с Triton X-100 (PBST)): приготовьте свежий 4% раствор формальдегида из 16% стокового раствора формальдегида в 1x PBST для обеспечения оптимальной фиксации и сохранения тканей.
ОСТОРОЖНО: формальдегид обладает высокой реакционной способностью и токсичен при вдыхании, проглатывании или попадании на кожу. Работайте с ним в вытяжном шкафу, используя соответствующие средства индивидуальной защиты (СИЗ), и утилизируйте его как специализированные опасные отходы формальдегида. - Промывочный буфер (1x PBST): приготовьте PBST (1x PBS, содержащий 0.3% Triton X-100) для использования в качестве раствора для промывки и пермеабилизации.
- Блокирующий раствор: в качестве блокирующего раствора используйте либо 5% бычий сывороточный альбумин (приготовленный из 30% BSA в 1x PBST), либо 5% нормальную сыворотку козы (5% NGS в 1x PBST). Это помогает снизить неспецифическое связывание антител. Для длительного использования храните при 4 °C.
- Подготовка планшетов с покрытием Sylgard: чашки для препарирования с покрытием Sylgard имеют мягкую поверхность, которая иммобилизирует ткани и защищает кончики тонких пинцетов. Смешайте основу Sylgard 184 и отвердитель в соотношении 10:1 до полного объединения. Разлейте по чашкам Петри для создания равномерного слоя, затем выдержите при 37 °C в течение 2–4 дней до полного высыхания. Время жизни катализированного Sylgard 184 при комнатной температуре (22–25 °C) составляет около 2 ч, поэтому используйте смесь в течение этого времени.
- Предварительно охладите все среды и буферы для препарирования и держите их на льду во время подготовки образцов, препарирования и иммуноокрашивания для сохранения морфологии тканей и снижения деградации. Перед началом протокола убедитесь, что все инструменты для препарирования, предметные стекла, покровные стекла, среда для заключения образцов, пинцеты или иглы для препарирования подготовлены и находятся под рукой. Соберите мух или личинок на соответствующей стадии развития и подготовьте их к препарированию.
Для работы с Drosophila melanogaster этическое одобрение или рекомендации не требовались.
2. Диссекция, иммуноокрашивание и монтирование мозга личинки
- Диссекция:
- Соберите 8–10 блуждающих личинок Drosophila третьего возраста из флакона с помощью влажной кисточки и промойте их в стеклянном планшете в ледяном 1X PBS для удаления остатков пищи.
- С помощью пинцета или маленькой кисточки перенесите одну личинку из стеклянного планшета в каплю ледяного 1X PBS или среды Шнайдера в центр чашки Петри диаметром 150 мм (без Sylgard).
- Удерживая личинку в области середины тела иглой шприца объемом 1 мл недоминантной рукой, сделайте доминантной рукой поперечный разрез иглой шприца в той же позиции, разделив личинку на две половины (Рисунок 1A–B).
ОСТОРОЖНО: Иглы шприцев острые и могут привести к травмам. Утилизируйте использованные острые предметы в специальный контейнер для острых отходов. - Удерживая переднюю половину личинки (определяется по черным ротовым крючьям) за край разреза недоминантной рукой, аккуратно протолкните ротовые крючья внутрь через полость тела иглой шприца в доминантной руке, подобно тому как выворачивают носок. Это действие выворачивает кутикулу личинки, создавая препарат «навыворот». Метод диссекции «навыворот» выполняется быстрее и помогает уберечь мозг и имагинальные диски глаз от повреждений (Рисунок 1C–D).
- После выворачивания кутикулы становится виден мозг, прикрепленный к имагинальным дискам и ротовым крючьям. С помощью иглы шприца удалите ненужные ткани, включая кишечник, слюнные железы и жировое тело (Рисунок 1E).
- Перенесите диссекированный мозг в стеклянный планшет, содержащий 300 µL ледяного 1X PBS, который поддерживают на льду (Рисунок 1F).
- Повторяйте шаги 2.1.2–2.1.6, пока не будет диссекировано достаточное количество мозгов или пока не пройдет 20 мин.
ПРИМЕЧАНИЕ: Время диссекции не должно превышать 20 мин для сохранения высокого качества тканей. - Используя пипетку на 200 μL, аспирируйте большую часть буфера из лунок с мозгами, оставив ровно столько, чтобы они оставались погруженными.
- Фиксация: Добавьте 200 μL холодного раствора фиксатора (4% формальдегида) к мозгам в чашке для диссекции и накройте предметным стеклом, затем поместите чашку на лабораторный шейкер при скорости раскачивания 28 и угле наклона 8° на 20 мин.
ПРИМЕЧАНИЕ: Избегайте высоких скоростей раскачивания, чтобы предотвратить дезинтеграцию тканей.
ОСТОРОЖНО: Формальдегид опасен. При работе с растворами, содержащими формальдегид, используйте соответствующие СИЗ, включая перчатки, лабораторный халат, маску и средства защиты глаз. - Аспирируйте фиксирующий раствор, затем добавьте 200 μL промывочного буфера (1X PBS с 0,3% Triton X-100). Выполните две быстрые промывки PBST, затем две промывки по 20 мин.
ПРИМЕЧАНИЕ: Triton X-100 — это детергент, необходимый для пермеабилизации образцов тканей и облегчения проникновения антител. - Блокировка: Аспирируйте PBST и добавьте к мозгам блокирующий раствор (5% нормальная сыворотка козы или 5% BSA в 1x PBST). Инкубируйте в течение 40 мин при комнатной температуре.
ПРИМЕЧАНИЕ: Инкубация в блокирующем растворе насыщает неспецифические сайты связывания в ткани, тем самым снижая фоновое окрашивание и повышая специфичность антител. Этот шаг рекомендуется, хотя его можно пропустить, если окрашивание антителами специфично и имеет минимальный фон.
- Иммуноокрашивание
- Приготовьте коктейль из первичных антител в рекомендуемом разведении в приблизительно 50 μL промывочного PBST.
ПРИМЕЧАНИЕ: Во время приготовления держите аликвоты антител на льду для сохранения их стабильности и активности. - Перенесите мозги из стеклянной лунки в микроцентрифужные пробирки объемом 1,5 мл. Удалите излишки блокирующего раствора, оставив достаточное количество, чтобы образцы оставались погруженными.
- Приготовьте раствор коктейля из антител и добавьте его в пробирку с мозгами. Аккуратно перемешайте, пипетируя наконечником пипетки на 20 µL, чтобы обеспечить равномерное распределение антител.
ПРИМЕЧАНИЕ: Инкубация мозгов в 50 µL раствора первичных антител снижает расход антител без ущерба для качества окрашивания. - Инкубируйте пробирки с мозгами на штативе при 4 °C в течение 16 ч.
ПРИМЕЧАНИЕ: В некоторых случаях для усиления окрашивания инкубацию с первичными антителами можно проводить в течение 48–72 ч при 4 °C. Первичные антитела можно использовать повторно не менее 3 раз без снижения качества окрашивания. - Добавьте 200 μL PBST. Выполните 2 быстрые промывки, затем 2 длительные промывки по 20 мин каждая.
- Приготовьте коктейль из вторичных антител в рекомендуемых разведениях в приблизительно 250 μL промывочного PBST.
ПРИМЕЧАНИЕ: Все инкубации после добавления вторичных антител следует проводить в темноте, чтобы избежать воздействия света, которое может вызвать фотовыцветание. - Удалите излишки PBST, затем добавьте коктейль из вторичных антител к мозгам. Инкубируйте в течение 2 ч при комнатной температуре (22–25 °C) или 16 ч при 4 °C на шейкере, накрыв картонной коробкой для обеспечения темноты.
- Повторите вышеописанные этапы промывки (2 быстрые промывки, затем 2 длительные промывки по 20 мин каждая), используя PBST.
ТОЧКА ПРИОСТАНОВКИ: Мозги можно хранить в PBST при 4 °C до 1 недели. Однако рекомендуется проводить визуализацию образцов как можно скорее после монтажа, чтобы минимизировать потерю сигнала из-за деградации тканей или распада флуорофора.
- Приготовьте коктейль из первичных антител в рекомендуемом разведении в приблизительно 50 μL промывочного PBST.
- Монтирование оптических долей личинки
- Подготовьте предметное стекло, очистив его 70% этанолом, и дайте высохнуть в течение 5 мин (Рисунок 2E).
- Нанесите две параллельные полоски двустороннего скотча в центре предметного стекла, оставив зазор 5–10 мм между полосками.
- Используя пипетку на 200 µL с обрезанным наконечником, перенесите мозги на другое чистое предметное стекло и удалите ненужные ткани, такие как имагинальные диски ног, которые могут перекрывать область интереса при визуализации.
ПРИМЕЧАНИЕ: Мелкие фрагменты тканей, которые не перекрывают область интереса при визуализации, можно оставить при монтировании. - Перенесите мозги на предметное стекло с двусторонним скотчем.
ПРИМЕЧАНИЕ: Следите за тем, чтобы мозги не пересыхали и всегда оставались погруженными в буфер 1x PBST. - Определите передне-заднюю ориентацию каждого мозга личинки под стереомикроскопом, используя в качестве анатомических ориентиров характерную выпуклую морфологию мозга и положение вентрального нервного шнура (VNC) (Рисунок 2A–D).
- Переднее монтирование: Расположите мозг выпуклой стороной вверх, в сторону от стекла, а VNC — в сторону стекла (Рисунок 2A, Рисунок 3A).
- Заднее монтирование: Расположите мозг выпуклой стороной к стеклу, а VNC — в сторону от стекла (Рисунок 2B, Рисунок 3F).
- Латеральное монтирование: Разделите мозг и VNC, смонтированные передне, по срединной линии с помощью иглы шприца объемом 1 мл или тонкой вольфрамовой иглы, чтобы получить две гемисекции мозга (Рисунок 2C). Поверните каждое полушарие на 90° и расположите его латеральной стороной (со стороны лобулы) к покровному стеклу, а медиальной поверхностью среза — в сторону от плоскости визуализации (Рисунок 2D, Рисунок 3K).
ПРИМЕЧАНИЕ: При необходимости отрегулируйте положение мозга под стереомикроскопом для получения нужной ориентации. Держите мозг погруженным во время позиционирования. - Аспирируйте большую часть буфера, оставив достаточное количество, чтобы мозги оставались погруженными.
- Добавьте 20–40 μL среды для монтирования (SlowFade Gold Antifade) в область с мозгами и равномерно распределите её пипеткой на 20 μL.
- Осторожно накройте покровным стеклом так, чтобы оно опиралось на обе полоски скотча, и загерметизируйте края лаком для ногтей.
ПРИМЕЧАНИЕ: Если после наложения покровного стекла образуются крупные пузырьки, добавьте больше среды для монтирования в зазор между покровным и предметным стеклом, пока пузырьки не исчезнут.
3. Диссекция, иммуноокрашивание и монтирование мозга взрослой особи
- Диссекция: Диссекция мозга взрослых особей технически более сложна и требует осторожного обращения. Для диссекции мозга взрослых мух настоятельно рекомендуется использовать острый пинцет из нержавеющей стали.
- Анестезируйте достаточное количество взрослых мух требуемого возраста на CO2-салфетке, затем перенесите их на влажную салфетку, помещенную в стакан со льдом, чтобы поддерживать анестезию во время диссекции.
ПРИМЕЧАНИЕ: После анестезии мух можно поддерживать во влажном состоянии с помощью салфетки на льду во время диссекции, что избавляет от необходимости держать включенной CO2-систему и упрощает манипуляции. - С помощью тонкого пинцета осторожно возьмите взрослую муху за ноги и поместите её в чашку Петри с покрытием из Sylgard.
- Закрепите муху на пластине с покрытием из Sylgard, вставив булавку сверху через середину торакса, подальше от области мозга. Погрузите муху в каплю ледяного 1X PBS буфера/среды Шнайдера и расположите голову мухи для диссекции, поворачивая муху к себе или перемещая пластину.
ОСТОРОЖНО: Булавки для диссекции острые и могут привести к травмам. Утилизируйте их в специальный контейнер для острых предметов. - Используя пинцет в доминирующей руке, осторожно удалите хоботок и фронтальную кутикулу между глазами, чтобы частично обнажить мозг. Это создаст отверстие под ретинальной кутикулой, которое облегчит последующую диссекцию мозга с помощью пинцета.
- С помощью тонкого пинцета осторожно захватите сетчатку за самые крайние края и растяните её в разные стороны. Будьте осторожны, чтобы не проколоть оптические доли при отделении сетчатки.
- Осторожно удалите остатки тканей, таких как трахеи или передняя кишка, прикрепленных к мозгу.
- Перенесите очищенный мозг в стеклянный планшет с лунками, содержащий 200 µL 1X PBS, который должен находиться на льду.
- Повторяйте этапы диссекции с 3.1.2 по 3.1.7, пока не будет собрано достаточное количество мозгов или пока не пройдет 30 мин.
- Используйте дозатор на 200 µL, чтобы аспирировать PBS из лунок, оставив ровно столько, чтобы образцы оставались погруженными.
- Фиксация: Добавьте 200 μL холодного фиксирующего раствора (4% формальдегид в 1X PBS) в стеклянный планшет с диссекированными мозгами взрослых особей, затем поместите планшет, накрытый предметным стеклом, на лабораторный шейкер при скорости раскачивания 28 на 30 мин.
ОСТОРОЖНО: Формальдегид опасен. При работе с растворами, содержащими формальдегид, используйте соответствующие перчатки, лабораторный халат и средства защиты глаз. - Аспирируйте фиксирующий раствор, оставив достаточное количество для погружения мозгов, и добавьте 200 µL PBST. Повторите 3 быстрых и 2 длительных промывки по 20 мин каждая.
- Блокировка: Удалите PBST и инкубируйте мозги в блокирующем растворе (5% NGS или 5% BSA) в течение 45 мин.
- Перенесите мозги в пробирку объемом 1,5 mL и удалите большую часть блокирующего раствора, оставив лишь столько, чтобы мозги оставались погруженными.
- Анестезируйте достаточное количество взрослых мух требуемого возраста на CO2-салфетке, затем перенесите их на влажную салфетку, помещенную в стакан со льдом, чтобы поддерживать анестезию во время диссекции.
- Иммуноокрашивание
- Приготовьте коктейль из первичных антител с соответствующим разведением в 50 µL PBST.
- Добавьте коктейль из первичных антител в пробирку с мозгами и инкубируйте 12–16 ч при 4 °C.
- Аспирируйте раствор антител, затем добавьте PBST для 2 быстрых промывок и 2 длительных промывок по 20 мин каждая.
- Приготовьте коктейль из вторичных антител в рекомендуемых разведениях в 250 µL PBST.
- Удалите PBST, затем добавьте коктейль из вторичных антител. Инкубируйте на лабораторном шейкере при комнатной температуре (22–25 °C) в течение 2 ч или оставьте на 12–16 ч при 4 °C в темноте.
- Повторите промывки (3 быстрых и 2 длительных по 20 мин каждая).
ТОЧКА ОСТАНОВКИ: На данном этапе можно сделать паузу и хранить мозги в PBST при 4 °C в течение недели.
- Монтирование оптических долей взрослых особей
- Подготовьте предметное стекло, очистив его 70% этанолом.
- Подготовьте «мостик» из покровных стекол, поместив два покровных стекла размером 18 x 18 мм на маленькую каплю универсального клея, чтобы создать между ними пространство (менее 1 мм) для мозгов (Рисунок 2F).
- Используя обрезанный наконечник дозатора на 200 µL, перенесите очищенные мозги на стекло и удалите ткани, такие как трахеи или кутикула головы, которые могут перекрывать обзор при визуализации.
- Перенесите очищенные мозги на сторону монтирования, подготовленную на этапе 3.3.2.
ПРИМЕЧАНИЕ: В течение всей процедуры монтирования держите мозги погруженными в 1x PBST и не допускайте их высыхания. - Под стереомикроскопом определите передне-заднюю ориентацию каждого мозга взрослых особей, исходя из общей морфологии. Выпуклая поверхность соответствует передней стороне, а вогнутая — задней.
- Переднее монтирование: Расположите мозг так, чтобы передняя поверхность и антеннальные доли были обращены к покровному стеклу (Рисунок 4A).
- Заднее монтирование: Расположите мозг так, чтобы задняя поверхность была обращена к покровному стеклу, а антеннальные доли были направлены в сторону от покровного стекла (Рисунок 4D).
- Латеральное монтирование: Расположите мозг таким образом, чтобы зрительные нейропили были ориентированы параллельно плоскости визуализации. Поместите мозг в переднее положение, поверните его на 90° и прижмите к краю разделительного покровного стекла (Рисунок 4G).
- Аспирируйте большую часть буфера 1x PBST, оставив достаточное количество для погружения мозгов.
- Добавьте 40 μL среды для монтирования (предпочтительно VECTASHIELD Antifade Mounting Media) на область с мозгами, затем равномерно распределите её с помощью дозатора на 20 μL. При необходимости добавьте больше среды для монтирования.
ПРИМЕЧАНИЕ: Среда VECTASHIELD Antifade Mounting Media хорошо работает с предметными стеклами с «мостиком» из покровных стекол, так как её более высокая вязкость помогает ей удерживаться в пространстве между стеклами. - Осторожно наложите покровное стекло размером 22 x 22 мм так, чтобы оно опиралось на два нижних покровных стекла. Удалите пузырьки воздуха, добавив больше среды для монтирования в зазор.
- Загерметизируйте края с помощью лака для ногтей (Рисунок 2F).
4. Сбор и обработка изображений
- Снимайте изображения с помощью конфокального микроскопа Leica STELLARIS 8 с использованием объективов 40x (NA = 1.3) и 63x с масляным погружением (NA = 1.4) при разрешении 1024 × 1024 пикселя.
- Снимайте Z-стеки с шагом по оси z 1 µm при скорости сканирования 200 Hz.
- Выполняйте съемку с использованием двунаправленного сканирования с коэффициентом масштабирования (zoom) от 0.75–1.0x в зависимости от образца.
- Проводите детектирование при значении усиления (gain) 100, используя соответствующий детектор для каждого флуорофора.
ПРИМЕЧАНИЕ: Используйте длины волн возбуждения 405, 488, 555 и 647 nm и регулируйте мощность лазера в соответствии с используемыми антителами и флуорофорами. - Получайте изображения с помощью программного обеспечения для сбора данных Leica и обрабатывайте их в Fiji/ImageJ2 версии 2.16.0/1.54p.
Результаты
Успешное препарирование, иммуноокрашивание и правильная ориентация при монтировании имеют решающее значение для сохранения общей структуры развивающейся оптической доли и точной фиксации ее анатомических особенностей, стадий развития и типов клеток. Различные варианты ориентации при монтировании обеспечивают взаимодополняющие ракурсы зрительных систем личинок и взрослых особей Drosophila, позволяя визуализировать разные анатомические области и характеристики нейронов.
Ориентация личинок при монтировании:
В этом разделе представлены репрезентативные варианты ориентации при монтировании, которые облегчают визуализацию развивающейся зрительной доли личинки (Рисунок 3). Схема мозга личинки подчеркивает основные структуры зрительной доли, включая OPC, медуллу и ламину (Рисунок 3A). При переднем монтировании видны OPC, переход от нейроэпителия к нейробласту (NE-to-NB), полоса нейробластов медуллы и развивающаяся ламина. На мозге с передним монтированием, окрашенном на Deadpan (Dpn), E-Cadherin (ECad) и Dachshund (Dac), эти структуры выделены более отчетливо (Рисунок 3B). Такая ориентация также позволяет разрешить временной каскад транскрипционных факторов в нейробластах медуллы, что демонстрируется последовательной экспрессией Hth, Opa, Erm и Ey (Рисунок 3C). Аксоны фоторецепторов, помеченные антителами к Chp и перемежающиеся с нейронами ламины, также могут быть визуализированы при переднем монтировании (Рисунок 3D, E). Заднее монтирование открывает доступ к внутреннему центру пролиферации (IPC) и кончикам OPC, обеспечивая дополнительные ракурсы развивающейся зрительной доли (Рисунок 3F, G-H). Аксоны фоторецепторов (Chp-положительные), перемежающиеся с нейронами ламины, также могут быть визуализированы при заднем монтировании (Рисунок 3I, J). Вместе с передним монтированием эта ориентация обеспечивает взаимодополняющий доступ к различным областям развивающейся зрительной системы личинки. Боковое монтирование позволяет выявить пространственное распределение OPC, а также концентрическую организацию нейронов (Рисунок 3K). Боковое монтирование одновременно обеспечивает вид концентрической организации нейронов медуллы (Рисунок 3L). Репрезентативные популяции нейронов включают Bsh-положительные внутренние нейроны медуллы (Mi1), не зависящие от пространственного домена, и TfAP-2-положительные трансмедуллярные нейроны (Tm1, Tm2, Tm4 и Tm6), а также специфичные для конкретных областей подтипы нейронов, такие как Dm8, DRA-Dm8 и Dm11 (Рисунок 3L). Vsx и Optix (Optix-GAL4>GFP) присутствуют в нейроэпителии (NE), но не в нейробластах (NB), в то время как Rx обнаруживается и в NE, и в NB19. Кроме того, Vsx и Rx экспрессируются в специфических постмитотических нейронах, соответствующих их пространственным доменам19 (Рисунок 3M). Аксоны фоторецепторов, направляющиеся к ламине и медулле, могут быть визуализированы при боковом монтировании (Рисунок 3N, O). Эти варианты ориентации при монтировании позволяют анализировать, как пространственное и временное распределение нейробластов медуллы приводит к формированию различных типов нейронов14,22.
Варианты расположения взрослых особей при монтировании: В данном разделе представлены схема и репрезентативный пример вариантов расположения при монтировании для визуализации зрительной доли взрослой Drosophila. Переднее монтирование обеспечивает фронтальный вид зрительной доли, открывая ламину, медуллу, а также передние отделы лобулы и лобулярной пластинки (Рисунок 4A). Антитела к Bruchpilot (Brp) маркируют нейропили зрительной доли, в то время как Bsh отмечает нейроны Mi1 в коре медуллы (Рисунок 4B). При такой же ориентации антитела к Chaoptin (Chp) маркируют аксоны фоторецепторов, проецирующиеся в ламину и медуллу (Рисунок 4C). Заднее расположение при монтировании открывает более глубокие области зрительной доли, позволяя визуализировать нейропиль медуллы в глубине (Рисунок 4D, E). При такой ориентации окрашивание на Chp позволяет различить терминали фоторецепторов внутри медуллы (Рисунок 4F). Боковое монтирование обеспечивает вид зрительной доли сбоку, позволяя одновременно визуализировать ламину, медуллу, лобулу и лобулярную пластинку (Рисунок 4G, H). Bsh маркирует нейроны ламины (L4 и L5) вместе с внутренними нейронами медуллы (Mi1), в то время как Brp определяет границы нейропиля. Проекции фоторецепторов направлены в ламину и медуллу (Рисунок 4I), что дает общее представление об организации зрительной системы взрослой особи.
В совокупности передний, задний и латеральный варианты крепления обеспечивают взаимодополняющие ракурсы осмотра развивающейся и зрелой зрительной системы, что позволяет исследователям изучать различные анатомические области, особенности развития и популяции нейронов в зависимости от целей их эксперимента.
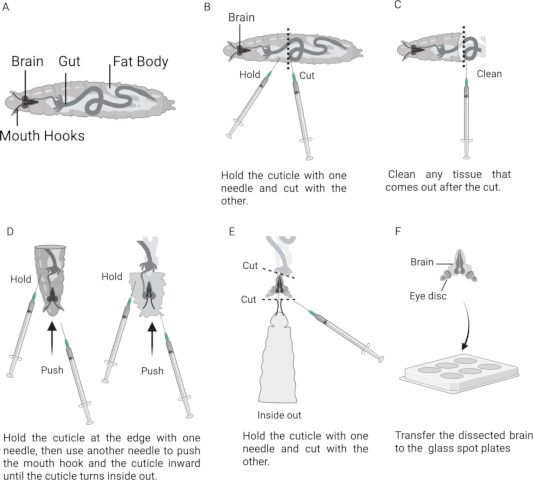
Рисунок 1: Диссекция мозга личинки Drosophila методом с использованием игл шприца. (A) Схема личинки поздней третьей стадии, показывающая расположение мозга и связанных с ним анатомических структур. (B) Положение личинки между двумя иглами шприца; пунктирная линия указывает примерное место поперечного разделения. (C) Передняя половина личинки после удаления окружающих тканей. (D) Последовательные этапы выворота кутикулы личинки с помощью игл шприца. (E) Вывернутый препарат, демонстрирующий мозг, имагинальные диски и ротовые крючки. (F) Изолированный мозг личинки в стеклянном планшете с лунками. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
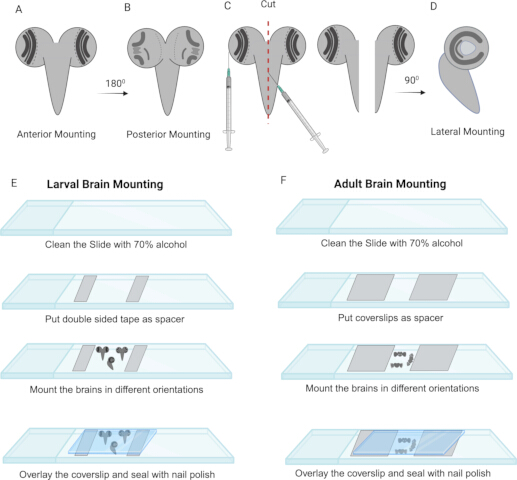
Рисунок 2: Этапы монтажа оптических долей личинок и взрослых особей Drosophila. (A) Передний вариант ориентации при монтаже мозга личинки. (B) Задний вариант ориентации при монтаже мозга личинки. (C) Билатеральное разделение мозга, смонтированного в передней ориентации, с помощью иглы шприца. (D) Боковой вариант ориентации при монтаже разделенного мозга. (E) Типичные этапы монтажа мозга личинки. (F) Типичные этапы монтажа мозга взрослой особи. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
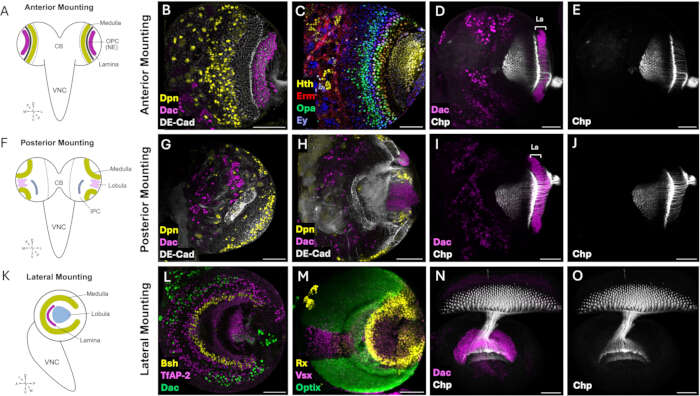
Рисунок 3: Варианты ориентации при монтировании для визуализации зрительной системы личинки Drosophila. (A) Схема, иллюстрирующая переднюю ориентацию монтирования мозга личинки третьей стадии, при которой передняя поверхность обращена к покровному стеклу. (B) Репрезентативное конфокальное изображение передне-смонтированного мозга личинки, показывающее внешний центр пролиферации (OPC), меченный anti-DE-Cadherin (DE-CAD, серый), нейробласты медуллы, меченные anti-Deadpan (Dpn, желтый), и развивающуюся ламину, меченную anti-Dachshund (Dac, пурпурный). (C) Изображение нейробластов медуллы, последовательно экспрессирующих временные факторы транскрипции Homothorax (Hth), Odd-paired (Opa), Earmuff (Erm) и Eyeless (Ey) в процессе развития нейробластов. (D-E) Репрезентативное изображение аксонов фоторецепторов, проецирующихся из имагинального диска глаза в развивающуюся ламину и медуллу. (F) Схема, иллюстрирующая заднюю ориентацию монтирования мозга личинки, при которой задняя поверхность обращена к покровному стеклу. (G) Конфокальное изображение поверхностной задней поверхности зрительной доли, показывающее внутренний центр пролиферации (IPC) и нейробласты медуллы, расположенные на концах OPC (tOPC). (H) Оптический срез, полученный глубже в задней части зрительной доли, с выделением IPC и развивающейся лобулы. (I-J) Вид сзади на аксоны фоторецепторов, проецирующиеся в развивающуюся зрительную долю. (K) Схема, иллюстрирующая латеральную ориентацию монтирования гемисекированного мозга личинки, при которой срезанная медиальная поверхность обращена к покровному стеклу для визуализации концентрической организации развивающейся медуллы вместе с ламиной и пробкой лобулы. (L) Репрезентативное конфокальное изображение, показывающее концентрическое расположение нейронных популяций медуллы, включая нейроны Mi1, меченные Brain-specific homeobox (Bsh), нейроны Tm1, Tm2, Tm4 и Tm6, меченные TfAP-2, Dachshund (Dac)-положительные нейроны Dm8 в вентральной медулле, а также нейроны DRA-Dm8 и Dm11 в дорсальной краевой области, иллюстрирующее пространственную организацию подтипов нейронов медуллы. (M) Максимальная проекция интенсивности внешнего центра пролиферации, показывающая домены пространственного паттернинга, определяемые факторами транскрипции Vsx, Optix (Optix-GAL4>GFP) и Rx в развивающейся зрительной доле. (N-O) Репрезентативное изображение аксонов фоторецепторов при латеральной ориентации монтирования, показывающее их проекции и таргетинг внутри развивающейся ламины и медуллы. Масштабная линейка = 50 µm. Сокращения: La = ламина. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
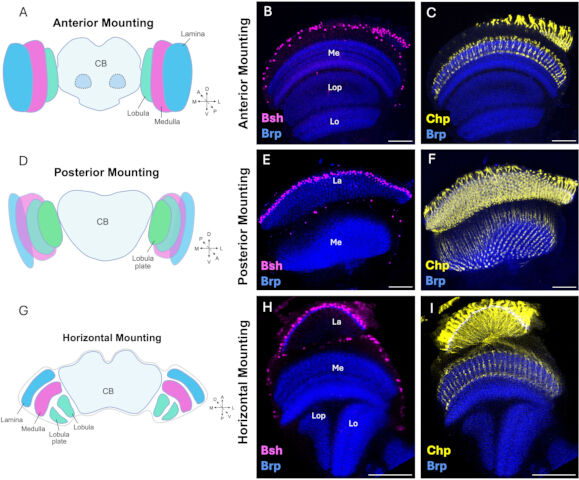
Рисунок 4: Варианты ориентации при монтировании для визуализации зрительной системы взрослой Drosophila. (A) Схема, иллюстрирующая переднюю ориентацию при монтировании мозга взрослой особи, когда передняя поверхность обращена к предметному стеклу. (B) Репрезентативное конфокальное изображение передне-смонтированного мозга взрослой особи, демонстрирующее Bsh-положительные (Brain-specific homeobox) нейроны Mi1 (пурпурный) в коре медуллы и нейропили, окрашенные антителами к Bruchpilot (Brp, синий). Такая ориентация обеспечивает вид спереди на периферическую ламину, медуллу, лобулу и лобулярную пластинку. (C) Репрезентативное изображение аксонов фоторецепторов, окрашенных антителами к Chaoptin (Chp, желтый), которые проецируются в нейропили ламины и медуллы. (D) Схема, иллюстрирующая заднюю ориентацию при монтировании мозга взрослой особи, когда задняя поверхность обращена к предметному стеклу. (E) Репрезентативное конфокальное изображение задне-смонтированной зрительной системы взрослой особи, демонстрирующее более глубокие слои нейропиля медуллы, окрашенные антителами к Brp. (F) Вид сзади на аксоны фоторецепторов, окрашенные антителами к Chaoptin (Chp, желтый), показывающий их распределение в нейропиле медуллы. (G) Схема, иллюстрирующая латеральную ориентацию при монтировании мозга взрослой особи, когда одна из зрительных долей расположена параллельно предметному стеклу для визуализации общей организации зрительной системы. (H) Репрезентативный латеральный вид зрительной доли взрослой особи, показывающий Bsh-положительные нейроны ламины (L4 и L5) и нейроны Mi1 медуллы (пурпурный), а также нейропили, окрашенные антителами к Brp (синий), что раскрывает пространственную организацию ламины, медуллы, лобулы и лобулярной пластинки. (I) Репрезентативное изображение аксонов фоторецепторов, окрашенных антителами к Chaoptin (Chp, желтый), проецирующихся в нейропили ламины и медуллы, окрашенные антителами к Brp (синий). Масштабная линейка = 50 µm. Сокращения: Me = медулла; La = ламина; Lo = лобула; Lop = лобулярная пластинка. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
Обсуждение
Данный протокол описывает надежный метод диссекции, иммуноокрашивания и заключения на предметное стекло зрительных систем личинок и взрослых особей Drosophila для получения конфокальных изображений высокого разрешения. Процедура позволяет сохранить структурную целостность и морфологию развивающихся и зрелых оптических долей, обеспечивая при этом такую ориентацию образцов, которая позволяет оптимально визуализировать ключевые процессы развития, популяции нейронов и структуры нейропиля. Описанные репрезентативные примеры включают переход нейроэпителия в нейробласты (NE-to-NB), пространственно-временной паттернинг в области медуллы, таргетинг аксонов фоторецепторов в оптической доле и организацию нейропиля зрительной системы взрослой особи9,10,13,14,23. Таким образом, данный протокол представляет собой гибкую основу, которую можно легко адаптировать для визуализации других процессов или типов клеток на любой стадии развития.
По сравнению с ранее опубликованными методами, данный протокол объединяет оптимизированные процедуры для зрительных систем личинок и взрослых особей Drosophila и предлагает несколько вариантов ориентации при монтировании, адаптированных под различные экспериментальные задачи. Несмотря на то, что в нескольких опубликованных протоколах описываются препарирование мозга и иммуноокрашивание Drosophila28,29,30,31,32, относительно немногие из них сосредоточены непосредственно на зрительной системе в контексте процессов развития27. В протоколе описан альтернативный метод препарирования личинок с использованием доступных шприцев объемом 1 mL вместо специализированных тонких пинцетов. Хотя этот подход требует большего времени на освоение, он представляет собой чистую, недорогую и быструю альтернативу, которая может быть особенно ценной для учебных лабораторий и исследовательских групп с ограниченным доступом к специализированному оборудованию для диссекции. По нашим данным, этот метод препарирования оказывает меньшее воздействие на мозг, чем метод с использованием пинцетов, при котором мозг растягивается во время диссекции, что часто приводит к повреждениям. Кроме того, наш протокол иммуноокрашивания предусматривает рациональное использование коктейлей антител в уменьшенных объемах без потери качества окрашивания, что позволяет экономить зачастую дорогостоящие коммерческие антитела. В совокупности эти особенности обеспечивают практические преимущества с точки зрения доступности, препарирования и монтирования, позволяя легко адаптировать протокол к различным экспериментальным требованиям.
Успешная реализация протокола зависит от тщательного соблюдения нескольких ключевых этапов. Распространенные трудности обычно можно решить путем корректировки процедур диссекции, фиксации, окрашивания или заключения в препарат. Чрезмерное механическое воздействие во время диссекции, перемешивания или пипетирования может привести к повреждению или фрагментации ткани. Поэтому проводите диссекцию быстро в ледяном PBS, используя осторожные движения при удалении окружающих тканей, а также при последующем перемешивании и пипетировании. Плохая фиксация, проявляющаяся в искажении ткани, потере морфологии или неравномерном окрашивании, может быть следствием недостаточного времени фиксации или использования ненадлежащего фиксирующего раствора. Использование свежеприготовленного раствора формальдегида и полное погружение ткани при фиксации помогают сохранить морфологию ткани и однородность окрашивания. Слабое или неравномерное окрашивание может быть результатом недостаточной пермеабилизации, плохого проникновения антител или субоптимальной инкубации с антителами. Увеличение времени пермеабилизации или инкубации с антителами, а также, при необходимости, продление инкубации с первичными антителами при 4 °C, может улучшить проникновение антител и качество окрашивания. Высокий фоновый сигнал может возникнуть из-за недостаточной блокировки или промывки, либо из-за избыточной концентрации антител. Тщательная блокировка и промывка в сочетании с соответствующим подбором концентрации антител помогают снизить неспецифическое окрашивание. Неправильная ориентация при заключении в препарат может скрыть область интереса или расположить ее слишком далеко от покровного стекла. Переориентация мозга в соответствии с анатомическими ориентирами, описанными в протоколе, и расположение области интереса близко к покровному стеклу облегчают визуализацию нужной анатомической структуры.
Несмотря на свою универсальность, протокол может потребовать корректировки в зависимости от конкретных тканей, стадий развития, антител и требований к визуализации. Например, для некоторых тканей может быть предпочтительна более короткая фиксация на льду, в то время как определенные антитела могут потребовать длительной инкубации при 4 °C в течение одной недели или, наоборот, более короткой инкубации при 22–25 °C. Качество фиксации можно оценить по сохранности общей морфологии мозга и оптических долей, четкости границ тканей, а также по минимальному уровню деформации, фрагментации или отслоения. Аналогично, адекватность пермеабилизации можно оценить по относительно равномерному окрашиванию антителами по всей ткани, что указывает на достаточное проникновение антител. Эти соображения обеспечивают гибкость при подборе условий фиксации, пермеабилизации, окрашивания и монтирования для конкретных экспериментальных целей при сохранении зрительной системы Drosophila.
Раскрытие информации
Авторы заявляют об отсутствии конфликта интересов. Авторы ознакомились со всеми окончательными правками и утвердили их.
Для исправления орфографических ошибок и переработки структуры предложений использовался инструмент редактирования языка (Grammarly).
Благодарности
Моноклональные антитела Brp, Dac, DE-Cad и Chp были получены из Банка гибридом в исследованиях развития (Developmental Studies Hybridoma Bank), созданного NICHD при NIH и поддерживаемого кафедрой биологии Университета Айовы, Айова-Сити, IA 52242. А.B., А.R. и С.S. получили поддержку от Tamkeen в рамках гранта Исследовательского института Нью-Йоркского университета в Абу-Даби для Центра геномики и системной биологии Нью-Йоркского университета в Абу-Даби (ADHPG-CGSB), а также по гранту NIH RO1 EY017916, выданному C.D.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| Булавки для фиксации насекомых Austerlitz, 0.15mm | Fine Science Tools | 26002-15 | |
| Антитело: мышиные анти-Brp | Developmental Studies Hybridoma Bank | nc82 | Разведение 1:50 |
| Антитело: мышиные анти-Chp | Developmental Studies Hybridoma Bank | 24B10 | Разведение 1:50 |
| Антитело: крысиные анти-DE-CAD | Developmental Studies Hybridoma Bank | DCAD2 | Разведение 1:20 |
| Антитело: мышиные анти-Dac | Developmental Studies Hybridoma Bank | mAbdac1-1 | Разведение 1:100 |
| Антитело: овечьи анти-GFP | BioRad | 4745-1051 | Разведение 1:200 |
| Антитело: кроличьи анти-Bsh | Desplan lab | - | Разведение 1:1000 |
| Антитело: морские свинки анти-Hth | Desplan lab | - | Разведение 1:100 |
| Антитело: морские свинки анти-TfAP-2 | Desplan lab | - | Разведение 1:500 |
| Антитело: кроличьи анти-Ey | Desplan lab | - | Разведение 1:200 |
| Антитело: крысиные анти-Erm | Desplan lab | - | Разведение 1:100 |
| Антитело: морские свинки анти-Rx | Desplan lab | - | Разведение 1:300 |
| Антитело: кроличьи анти-Vsx | Desplan lab | - | Разведение 1:100 |
| Антитело: ослиные анти-мышиные IgG, конъюгированные с Alexa Fluor 405 | Abcam | ab175658 | Разведение 1:250 |
| Антитело: ослиные анти-мышиные IgG, конъюгированные с Alexa Fluor 488 | Jackson ImmunoResearch | 715-547-003 | Разведение 1:400 |
| Антитело: ослиные анти-мышиные IgG, конъюгированные с Alexa Fluor 555 | ThermoFisher Scientific | A31570 | Разведение 1:500 |
| Антитело: ослиные анти-мышиные IgG, конъюгированные с Alexa Fluor 647 | Jackson ImmunoResearch | 715-605-151 | Разведение 1:250 |
| Антитело: ослиные анти-IgG морской свинки, конъюгированные с Alexa Fluor 405 | Jackson ImmunoResearch | 706-475-148 | Разведение 1:250 |
| Антитело: ослиные анти-IgG морской свинки, конъюгированные с Alexa Fluor 555 | Sigma-Aldrich | SAB4600297-5OUL | Разведение 1:500 |
| Антитело: ослиные анти-IgG морской свинки, конъюгированные с Alexa Fluor 647 | Jackson ImmunoResearch | 706-605-148 | Разведение 1:250 |
| Антитело: ослиные анти-кроличьи IgG, конъюгированные с Alexa Fluor 405 | Abcam | ab175651 | Разведение 1:250 |
| Антитело: ослиные анти-кроличьи IgG, конъюгированные с Alexa Fluor 555 | Invitrogen | A31572 | Разведение 1:500 |
| Антитело: ослиные анти-крысиные IgG, конъюгированные с Alexa Fluor 555 | Abcam | Ab150154 | Разведение 1:500 |
| Антитело: ослиные анти-овечьи IgG, конъюгированные с Alexa Fluor 488 | Jackson ImmunoResearch | 713-545-147 | Разведение 1:400 |
| Шприц BD 1ml в комплекте с иглой 25g x 16mm, 120 шт. | BD | 303175 | |
| Бычий сывороточный альбумин (BSA), 30% | Sigma-Aldrich | A7284-50ML | |
| Стеклянное покровное стекло 18 x 18 mm | VWR | 631-0120 | |
| Стеклянное покровное стекло 24 x 24 mm | VWR | 631-0126 | |
| Двусторонняя клейкая лента 19mm x 33m | Scotch | AMS12354 | |
| Муха: Canton S | BDSC | 64349 | |
| Муха: Optix-GAL4 | Kyoto | 104266 | |
| Муха: nls-GFP/CyO-YFP | BDSC/ Desplan lab | 4775 | |
| Подложки для мух Flystuff Drosophila Ultimate Flypads | Genesee Scientific Corporation | 59-172B | |
| Ведерко для льда с крышкой, круглое, 4L, синее | Corning | 432123 | |
| Программное обеспечение для обработки изображений (FIJI) | (National Institutes of Health, Bethesda, MD, USA) | Fiji/ImageJ2 version 2.16.0/1.54p | |
| Прецизионные салфетки Kimtech Science | Kimberly-Clark Professional | 05511 | |
| Лабораторная герметизирующая пленка | Parafilm M | PM-996 | |
| Предметные стекла | VWR | 8037/1 | |
| Микроцентрифуга | VWR | 521-2848 | |
| Лак для ногтей | Mumuso | 2023/11/05 | |
| Нормальная козья сыворотка | Sigma-Aldrich | G9023 | |
| Кисть для рисования | Camlin | S-66 | |
| Параформальдегид (PFA) | Sigma | P6148 | |
| Чашки Петри 100mm x 15mm | Falcon | 351029 | |
| Фосфатно-солевой буфер (PBS) | Sigma | P5493 | |
| Стеклянные планшеты PYREX® с 9 лунками | Corning | 7220-85 | |
| Шейкер-рокер (настольный) | Fisherbrand | 8861025 | |
| Пробирки Safelock 1.5mL | Eppendorf | O219706H | |
| Среда Шнайдера для насекомых | Sigma | S0146 | |
| Средство для предотвращения выцветания Slowfade gold | Invitrogen | S36936 | |
| Силиконовый эластомер Sylgard 184 | Dow | 4019862 | |
| TritonX-100 | Sigma | 93426 | |
| Вольфрамовые иглы 0.25 mm | Fine Science Tools | 10130-10 | |
| Вольфрамовые иглы 0.5 mm | Fine Science Tools | 10130-20 | |
| Универсальный клей UHU | UHU | 40815 | |
| Ультратонкий пинцет | WPI | 500235 | |
| Среда для заключения препаратов Vectashield antifade | Vector | H-1000 | |
| Вортекс-миксер | VWR | VM-3000 |
Ссылки
- Nériec N, Desplan C. From the Eye to the Brain: Development of the Drosophila Visual System. Curr Top Dev Biol. 2016;116:247–71.
- Montell C. Drosophila visual transduction. Trends Neurosci. 2012;35(6):356–63.
- Currier TA, Pang MM, Clandinin TR. Visual processing in the fly, from photoreceptors to behavior. Genetics. 2023;224(2),1–28.
- Fischbach KF, Dittrich APM. The optic lobe of Drosophila melanogaster. I. A Golgi analysis of wild-type structure. Cell Tissue Res. 1989;258(3):441–75.
- Dorkenwald S, et al. Neuronal wiring diagram of an adult brain. Nature. 2024;634(8032):124–38.
- Matsliah A, et al. Neuronal “parts list” and wiring diagram for a visual system. bioRxiv: The Preprint Server for Biology. Preprint posted online April 2024.
- Younossi-Hartenstein A, Nassif C, Green P, Hartenstein V. Early neurogenesis of the Drosophila brain. J Comp Neurol. 1996;370(3):313–29.
- Zhang Y, Li X. Development of the Drosophila Optic Lobe. Cold Spring Harb Protoc. 2024;2024(3):108156.
- Apitz H, Salecker I. A Challenge of Numbers and Diversity: Neurogenesis in the Drosophila Optic Lobe. J Neurogenet. 2014;28(3-4):233–49.
- Egger B, Gold KS, Brand AH. Notch regulates the switch from symmetric to asymmetric neural stem cell division in the Drosophila optic lobe. Development. 2010;137(18):2981–7.
- Sato M, Yasugi T, Minami Y, Miura T, Nagayama M. Notch-mediated lateral inhibition regulates proneural wave propagation when combined with EGF-mediated reaction diffusion. Proc Natl Acad Sci U S A. 2016;113(35):E5153–62.
- Wang W, et al. Notch signaling regulates neuroepithelial stem cell maintenance and neuroblast formation in Drosophila optic lobe development. Dev Biol. 2011;350(2):414–28.
- Yasugi T, Sugie A, Umetsu D, Tabata T. Coordinated sequential action of EGFR and Notch signaling pathways regulates proneural wave progression in the Drosophila optic lobe. Development. 2010;137(19):3193–203.
- Bakshi A, Ben El Kadhi K, Desplan C. Decoding neuronal diversity: Mechanisms governing neural cell fate in Drosophila. Curr Opin Neurobiol. 2025;93.
- Holguera I, Desplan C. Neuronal specification in space and time. Science (1979). 2018;362(6411):176–80.
- Konstantinides N, et al. A complete temporal transcription factor series in the fly visual system. Nature. 2022;604(7905):316–22.
- Li X, et al. Temporal patterning of Drosophila medulla neuroblasts controls neural fates. Nature. 2013;498(7455):456–62.
- Suzuki T, Kaido M, Takayama R, Sato M. A temporal mechanism that produces neuronal diversity in the Drosophila visual center. Dev Biol. 2013;380(1):12–24.
- Chen YC, et al. Single-locus chromatin memory enables flexible spatial fate specification in the Drosophila visual system. bioRxiv. Published online August 21, 2026:2026.08.09.743789.
- Erclik T, et al. Integration of temporal and spatial patterning generates neural diversity. Nature. 2017;541(7637):365–70.
- Simon F, et al. Spatial, temporal and Notch determination of terminal selector expression controls neuronal cell fate in the Drosophila optic lobe. Nat Neurosci. 2026;29(5):1068–78.
- Bhattacharya A, Rao H, Sen SQ. Chromatin priming and Hunchback recruitment integrate spatial and temporal cues in Drosophila neuroblasts. eLife15:RP110150.
- Bostock MP, Prasad AR, Donoghue A, Fernandes VM. Photoreceptors generate neuronal diversity in their target field through a Hedgehog morphogen gradient in Drosophila. Elife. 2022;11:e78093.
- El-Danaf RN, et al. Morphological and functional convergence of visual projection neurons from diverse neurogenic origins in Drosophila. Nat Commun. 2025;16(1):1–15.
- Pinto-Teixeira F, et al. Development of Concurrent Retinotopic Maps in the Fly Motion Detection Circuit. Cell. 2018;173(2):485–98.
- Xu C, Ramos TB, Rogers EM, Reiser MB, Doe CQ. Homeodomain proteins hierarchically specify neuronal diversity and synaptic connectivity. Elife. 2023;12:RP90133.
- Arain U, Valentino P, Islam IM, Erclik T. Dissection, Immunohistochemistry and Mounting of Larval and Adult Drosophila Brains for Optic Lobe Visualization. J Vis Exp. 2021;(170):e61273.
- Zhang Y, Li X. Immunostaining of Drosophila Brains to Study Optic Lobe Development. Cold Spring Harb Protoc. 2024;2024(3):108157.
- Daul AL, Komori H, Lee CY. Immunofluorescent staining of Drosophila larval brain tissue. Cold Spring Harb Protoc. 2010;2010(7):pdb.prot5460.
- Sweeney ST, Hidalgo A, de Belle JS, Keshishian H. Dissection of adult Drosophila brains. Cold Spring Harb Protoc. 2011;2011(12):1472–4.
- Tito AJ, Cheema S, Jiang M, Zhang S. A Simple One-step Dissection Protocol for Whole-mount Preparation of Adult Drosophila Brains. J Vis Exp. 2016;(118):55128.
- Wu JS, Luo L. A protocol for dissecting Drosophila melanogaster brains for live imaging or immunostaining. Nat Protoc. 2006;1(4):2110–5.
Перепечатки и разрешения
Эта статья была опубликована
Видео скоро будет доступно