Описан детальный метод оценки фенотипов мутантных генов, представляющих интерес, и определения их роли в слиянии миобластов с использованием эмбрионов Drosophila. Данный подход позволяет систематически охарактеризовать функцию генов в процессе развития эмбриональных мышц.
Методическая статья
Генетический, фенотипический и количественный анализ слияния миобластов в эмбрионах Drosophila
В этой статье
Краткое содержание
Аннотация
Слияние мононуклеарных миобластов в многоядерные синцитии является фундаментальным процессом развития скелетных мышц. Drosophila melanogaster представляет собой мощную, генетически доступную модель для быстрого и эффективного анализа функции генов-кандидатов, участвующих в этом процессе. В данном разделе мы описываем подробный протокол с пошаговыми инструкциями по анализу фенотипа слияния миобластов в эмбрионах Drosophila . Этот метод включает выбор мутантной линии для исследуемого гена, сбор и фиксацию эмбрионов, иммуноокрашивание целого препарата, определение стадии развития, конфокальную микроскопию и фенотипический анализ. Окрашивание на тяжелую цепь миозина (MHC) используется для визуализации общей морфологии мышц и идентификации неслившихся мононуклеарных миобластов. Параллельно окрашивание на белок Even-skipped (Eve) позволяет маркировать ядра внутри конкретного мышечного волокна, что обеспечивает количественный анализ степени слияния путем подсчета ядер, включенных в это волокно. В совокупности данный протокол позволяет исследователям оценивать мутантные фенотипы любых интересующих генов и определять их роль в слиянии миобластов. Этот подход создает надежную основу для идентификации и характеристики новых регуляторов слияния миобластов.
Введение
Скелетные мышцы являются самой распространенной тканью в организме человека, составляя более 30% от общей массы тела. В ходе эмбрионального развития волокна скелетных мышц образуются путем слияния одноядерных мышечных клеток, называемых миобластами, в многоядерные синцитиальные миоволокна1,2. Этот процесс имеет решающее значение для правильного формирования, роста и функционирования мышц, а его нарушение связано со многими мышечными заболеваниями3,4. Подобно скелетным мышцам позвоночных, многоядерные миоволокна, составляющие мускулатуру брюшной стенки эмбриона и личинки Drosophila melanogaster, также образуются путем слияния одноядерных миобластов5,6,7,8. У Drosophila слияние происходит между двумя типами мышечных клеток — клетками-основателями мышц и компетентными к слиянию миобластами (FCM) — в асимметричном фузогенном синапсе9,10,11,12,13. Важно отметить, что клеточные события и молекулярные механизмы, управляющие слиянием миобластов, высоко консервативны у Drosophila и позвоночных14,15,16, что делает Drosophila мощным модельным организмом для изучения генетических и клеточных основ слияния миобластов.
Модель Drosophila также обладает рядом экспериментальных преимуществ. Во-первых, короткий жизненный цикл Drosophila (~10 дней при 25 °C) позволяет проводить быстрое генетическое скрещивание и эффективное создание мутантных линий. Во-вторых, эмбрионы Drosophila малы и легко проницаемы для антител после фиксации, что позволяет проводить иммуноокрашивание целых образцов и визуализацию развития мышц с высоким разрешением без необходимости препарирования тканей. В-третьих, развитие эмбриональных мышц Drosophila происходит по строго стереотипному плану, при этом в большинстве абдоминальных полусегментов присутствует по 30 мышечных волокон. Каждое мышечное волокно специфицируется одной клеткой-основателем, которая сливается с определенным количеством FCM (от 3 до 30)17, что позволяет проводить воспроизводимый и количественный анализ слияния миобластов. Наконец, общедоступные коллекции генных мутантов и дефицитных линий с хромосомными делециями позволяют быстро проводить анализ потери функции почти всех генов без необходимости трудоемкого создания мутантов de novo.
Представлен подробный протокол оценки фенотипов слияния миобластов в эмбрионах Drosophila (Рисунок 1). Протокол включает стратегии подбора подходящих мутантных аллелей, сбор и фиксацию эмбрионов, иммуногистохимическое окрашивание целого препарата, визуализацию эмбрионов и количественный анализ фенотипов слияния. В совокупности эти процедуры обеспечивают быстрый и эффективный рабочий процесс для генетического анализа генов-кандидатов, участвующих в слиянии миобластов.
Протокол
1. Выбор мутантных линий для генетического анализа слияния миобластов
- Найдите мутантные линии интересующего гена в базе данных FlyBase. Откройте соответствующую страницу отчета по гену и изучите мутантные аллели, перечисленные в разделе «Alleles, Insertions, Constructs, and Aberrations».
- Выберите нуль-аллели или аллели с сильной потерей функции, проанализировав описанные молекулярные повреждения для каждого аллеля. Приоритет отдавайте аллелям, содержащим нонсенс-мутации, мутации сдвига рамки считывания, делеции или инсерции, нарушающие функцию гена.
- Перенесите выбранный мутантный аллель на балансерную хромосому с флуоресцентным маркером, чтобы отличать гомозиготные по мутации эмбрионы от сиблингов, несущих балансер. Выберите подходящий флуоресцентный балансер в зависимости от хромосомы, в которой находится мутантный аллель (Таблица 1).
2. Сбор и фиксация эмбрионов Drosophila
- Подготовьте стаканы для сбора эмбрионов, проделав с помощью иглы 25 G несколько вентиляционных отверстий на боковых стенках и дне пластиковых стаканов объемом 100 мл (Рисунок 1).
- Приготовьте виноградный соковый агар, смешав 15 г агара с 400 мл дистиллированной воды (dH2O)₂О) и автоклавирование при 121 °C в течение 21 мин. Охлаждайте расплавленный агар до температуры, при которой его можно держать в руках.
- Подогрейте 100 мл 100%-го виноградного сока до температуры, комфортной для прикосновения рукой, и тщательно перемешайте с расплавленным агаром. Разольте примерно по 10 мл в каждую чашку Петри диаметром 60 мм, дайте среде застыть при комнатной температуре и храните при 4 °C.
- Приготовьте свежую дрожжевую пасту, смешав 10 г сухих дрожжей в 15 мл дистиллированной воды (dH2O).₂перемешивайте до получения однородной пасты, пригодной для нанесения. Нанесите пасту в центр чашки с агаром с виноградным соком и предварительно прогрейте чашку до 25 °C (Рисунок 1).
ПРИМЕЧАНИЕ: Храните приготовленную дрожжевую пасту при 4 °C на срок до 2 недель. - Перенесите взрослых мух в возрасте 3–7 дней, гетерозиготных по мутантному аллелю и соответствующему флуоресцентному балансеру, в стаканы для сбора.
ПРИМЕЧАНИЕ: Используйте мух дикого типа, например в1118в качестве контролей. Для одного стакана для сбора достаточно примерно 50–80 самок и 40–50 самцов. - Поместите предварительно прогретую чашку с агаром с виноградным соком над стаканом для сбора и закрепите ее с помощью резинок (Рисунок 1). Инкубируйте стакан для сбора при 25 °C в течение 12 ч.
- Осторожно постучите по стакану для сбора, чтобы вытряхнуть мух, и замените чашку на новую, предварительно прогретую. Повторяйте замену чашек каждые 12 часов в течение 2 дней для акклиматизации мух.
ПРИМЕЧАНИЕ: предварительно прогрейте каждую планшетную пластину до 25 °C перед использованием, так как на холодных планшетах интенсивность яйцекладки снижается. - По истечении 2-дневного периода акклиматизации замените чашку на новую, предварительно прогретую. Оставьте мух для откладки яиц на ночь (на 14–15 ч).
- Наполните микроцентрифужную пробирку объемом 1,5 мл 0,1% (об/об) раствором Triton X-100 в дистиллированной воде. Соберите эмбрионы с планшета с помощью кисточки, предварительно замоченной в 0,1% растворе Triton X-100, затем перенесите их в пробирку.
- Интенсивно встряхните пробирку, чтобы ресуспендировать эмбрионы и удалить остатки дрожжевой пасты. Дайте эмбрионам осесть, затем промойте их 0,1% раствором Triton X-100 не менее 3 раз или до тех пор, пока раствор не станет прозрачным (Рисунок 1).
- Добавьте 1,5 мл бытового отбеливателя с концентрацией около 50%, чтобы конечная концентрация гипохлорита натрия составила 2,85%. Поместите пробирку на нутатор на 3 мин для дехорионирования эмбрионов.
ПРИМЕЧАНИЕ: Избегайте длительного воздействия гипохлорита натрия, так как чрезмерное удаление хориона может повредить эмбрионы и ухудшить результаты последующего иммуноокрашивания. - Дайте эмбрионам осесть, удалите отбеливатель и промойте их трижды 0,1% раствором Triton X-100.
- Удалите оставшийся промывочный раствор и добавьте 700 µL 3,7% формальдегида в фосфатно-солевом буферном растворе (PBS) и 700 µL гептана.
ПРЕДОСТЕРЕЖЕНИЕ: Работайте с формальдегидом и гептаном в вытяжном шкафу и утилизируйте их в соответствии с надлежащими процедурами химической безопасности. - Плотно закройте пробирку крышкой и интенсивно встряхивайте в течение 30 с. Поместите эмбрионы на нутатор на 30 мин для завершения фиксации.
- Позвольте эмбрионам скопиться на границе раздела между верхним слоем гептана и нижним водным слоем (Рисунок 1). Осторожно удалите водную фазу, не повреждая эмбрионы.
- Добавьте примерно 700 µL добавьте метанол и интенсивно встряхивайте в течение 30 с для девителлинизации эмбрионов.
ПРИМЕЧАНИЕ: Успешно девителлинизированные эмбрионы оседают на дно пробирки, в то время как отделенные вителлиновые оболочки остаются на границе раздела фаз (Рисунок 1).
ПРЕДОСТЕРЕЖЕНИЕ: Работайте с метанолом в вытяжном шкафу и утилизируйте его в соответствии с надлежащими правилами химической безопасности. - Удалите гептан и метанол, оставив эмбрионы покрытыми небольшим объемом метанола. Промойте эмбрионы метанолом дважды.
- Регидратируйте эмбрионы, промыв их трижды в растворе PBST (0,1% Triton X-100 в PBS) по 5 минут за каждую промывку на нутаторе. Защищайте эмбрионы от света на этом и всех последующих этапах.
ПРИМЕЧАНИЕ: После девителлинизации держите эмбрионы покрытыми раствором, чтобы предотвратить обезвоживание и сохранить морфологию эмбрионов. Минимизируйте воздействие окружающего света для сохранения флуоресцентных белков и антител, конъюгированных с флуорофорами.
3. Выполнение иммуноокрашивания целого препарата
- Удалите PBST и инкубируйте эмбрионы в 1,5 mL PBSBT (0,5% BSA (w/v) и 5 mM NaN3 в PBST) в течение не менее 1 ч при комнатной температуре на нутаторе.
- Отрежьте кончик наконечника пипетки, чтобы создать более широкое отверстие и минимизировать механические повреждения при переносе эмбрионов.
- Перенесите заблокированные эмбрионы в микроцентрифужную пробирку объемом 0,5 mL и удалите блокирующий раствор. Добавьте 200−300 µL свежего PBSBT, содержащего антитела к MHC (1:500)18 и/или антитела к Eve (0,5 µg/mL).
- Инкубируйте эмбрионы с первичными антителами в течение ночи при 4 °C на нутаторе.
ПРИМЕЧАНИЕ: Проводите совместное окрашивание антителами к Eve для количественного анализа после выявления фенотипа слияния миобластов. Для визуализации эмбриональной мускулатуры Drosophila можно использовать антитела к MHC, полученные от кролика или крысы. - Удалите раствор первичных антител и промойте эмбрионы трижды с помощью PBST по 10 мин за каждую промывку на нутаторе.
ПРИМЕЧАНИЕ: Храните раствор первичных антител при 4 °C для повторного использования, если это применимо. Раствор обычно можно использовать до трех раз в течение 1 месяца. - Инкубируйте эмбрионы в 300 µL PBSBT, содержащего соответствующие флуоресцентные вторичные антитела в разведении 1:500, в течение 2 ч при комнатной температуре на нутаторе.
- Удалите раствор вторичных антител и промойте эмбрионы трижды с помощью PBST по 10 мин за каждую промывку.
- Удалите финальную промывку PBST и добавьте примерно 80 µL среды для заключения. Перенесите эмбрионы на предметное стекло, аккуратно накройте образец покровным стеклом и загерметизируйте края (Рисунок 1).
ПРИМЕЧАНИЕ: Храните подготовленные стекла при 4 °C в защищенном от света месте и проведите визуализацию как можно скорее для получения оптимального сигнала флуоресценции.
4. Стадирование и получение изображений эмбрионов
- Идентифицируйте эмбрионы поздней 15-й стадии по характерной сердцевидной морфологии средней кишки19 при освещении в светлом поле.
ПРИМЕЧАНИЕ: Экспрессия белка MHC не обнаруживается в эмбрионах на 14-й стадии или более ранних. В эмбрионах на 16-й стадии сердцевидная средняя кишка подвергается сужению и разделяется на четыре камеры19. - Идентифицируйте гомозиготные мутантные эмбрионы по отсутствию флуоресцентного маркера.
ПРИМЕЧАНИЕ: Гомозиготные мутантные эмбрионы не несут флуоресцентно помеченную балансирующую хромосому, поэтому они не экспрессируют флуоресцентный белок. Пропустите этот шаг для контрольных эмбрионов дикого типа. - Отберите эмбрионы, ориентированные латерально, чтобы визуализировать всю соматическую мускулатуру, помеченную антителами к MHC.
ПРИМЕЧАНИЕ: Эмбрионы, ориентированные дорсально или вентрально, в основном демонстрируют соответствующую часть мускулатуры. Используйте латерально ориентированные эмбрионы для всесторонней оценки дефектов слияния миобластов. - Отрегулируйте мощность лазера и усиление детектора для получения четкой флуоресценции MHC без насыщения сигнала; сохраняйте эти настройки для всех образцов в рамках одного эксперимента. Определите верхний и нижний пределы z-стека, чтобы охватить всю глубину соматической мускулатуры.
- Установите разрешение изображения 1024 × 1024 пикселя, диафрагму (pinhole) на 1 единицу Airy, усреднение по линиям/кадрам (line/frame average) на 1 и коэффициент увеличения (zoom factor) на 1; сохраняйте эти настройки для всех образцов в рамках одного эксперимента. Получите изображения z-стека с помощью конфокального микроскопа с интервалом 1.0 µm, используя иммерсионный объектив 40×.
- Сфотографируйте примерно 6−10 эмбрионов каждого генотипа для оценки воспроизводимости фенотипа.
ПРИМЕЧАНИЕ: При необходимости подтверждения гомозиготного мутантного генотипа регистрируйте канал флуоресцентного маркера-балансира одновременно с каналом MHC.
5. Визуализация мышцы DA1 для количественной оценки слияния
- Выполните совместное окрашивание на MHC и Eve после выявления дефекта слияния миобластов в эмбрионах с латеральной ориентацией.
- Для визуализации выберите мутантные и контрольные эмбрионы стадии 15 с дорсальной ориентацией.
ПРИМЕЧАНИЕ: Белок Even-skipped (Eve) специфически экспрессируется в ядрах дорсальной острой мышцы 1 (DA1)20. Количественно оцените слияние миобластов, определив количество Eve-положительных ядер, включенных в мышцу DA1. - Настройте параметры визуализации для получения четкой флуоресценции MHC и Eve без насыщения сигнала. На основе сигнала Eve определите z-стек, охватывающий всю глубину мышцы DA1.
- Получите конфокальные z-стек изображения, используя описанные выше параметры визуализации. Для количественной оценки слияния проведите визуализацию примерно 6−10 эмбрионов каждого генотипа.
6. Количественный анализ ядер и проведение статистического анализа
- Идентифицируйте брюшные полусегменты A1−A7 по их стереотипным и повторяющимся мышечным паттернам.
- Идентифицируйте Eve-положительные ядра в мышце DA1, меченной MHC. Изучите весь z-стек и подсчитайте все Eve-положительные ядра, расположенные в разных фокальных плоскостях внутри каждой мышцы DA1.
ПРИМЕЧАНИЕ: Каждый брюшной полусегмент содержит одну мышцу DA1. Следовательно, все Eve-положительные ядра в данном полусегменте засчитываются соответствующей мышце DA1. - Количественно определите число ядер DA1 в одном и том же наборе брюшных полусегментов, например A2−A5, для каждого эмбриона.
ПРИМЕЧАНИЕ: Хотя мышцы DA1 брюшных полусегментов A1−A7 пригодны для количественного анализа, анализ всех семи полусегментов не является необходимым. Вместо этого проведите количественный анализ нескольких полусегментов на эмбрион, например A2−A5, и анализируйте один и тот же набор полусегментов во всех эмбрионах для обеспечения согласованности. - Вычислите среднее количество ядер на одну мышцу DA1 для каждого эмбриона и используйте это среднее значение как одну независимую точку данных. Введите данные по отдельным эмбрионам в программное обеспечение для статистического анализа с целью анализа и построения графиков.
- Используйте двухсторонний t-критерий Стьюдента для сравнения двух условий. Используйте однофакторный ANOVA с последующим тестом Даннетта для сравнения трех и более условий; значение p < 0.05 считайте статистически значимым.
Результаты
В качестве примера для иллюстрации выбора подходящего мутантного аллеля представлена страница отчета о гене spook (spo) из базы данных FlyBase. spo является одним из «хэллоуинских» генов, кодирующих ферменты, участвующие в биосинтезе стероидных гормонов21,22, и было показано, что он способствует слиянию миобластов23. В разделе «Alleles» (Аллели) на странице отчета FlyBase для гена spo перечислены 12 мутантных аллелей spo, описанных в литературе, четыре из которых были переданы в BDSC (Рисунок 2A) и доступны для заказа. Если желаемый аллель отсутствует в BDSC, его можно запросить напрямую у исследовательской группы, которая впервые описала данную мутантную линию.
Среди четырех мутантных аллелей, доступных из BDSC, spo1 несет миссенс-мутацию (G481E), в то время как spoMI06810 содержит инсерцию MiMIC в кодирующей последовательности, что приводит к сдвигу рамки считывания на аминокислоте Y341 (Рисунок 2B, C). Поскольку белок Spo состоит из 543 аминокислот, предполагается, что spoMI06810 (Y341fs) приводит к синтезу усеченного белка, лишенного примерно 40% своей общей длины, и, следовательно, вероятно, представляет собой аллель с выраженной потерей функции. Таким образом, для фенотипического анализа слияния миобластов предпочтительнее использовать spoMI06810, а не spo1 .
Слияние миобластов начинается на 12-й стадии эмбрионального развития (7,3−9,3 ч после откладки яиц [AEL]) и в значительной степени завершается к концу 15-й стадии (11,3−13,3 ч AEL)24. Поэтому фенотипы слияния обычно оценивают на поздней 15-й стадии развития эмбрионов, когда сформирован паттерн соматических мышц и завершилась большая часть процессов слияния.
Эмбрионы 15-й стадии можно идентифицировать по двум выраженным морфологическим признакам: завершению дорсального закрытия и приобретению характерной сердцевидной формы средней кишки (Рисунок 3A–C)19. Эмбрионы 14-й стадии отличаются продолжающейся инволюцией головы (Рисунок 3A), в то время как у эмбрионов 15-й стадии наблюдается характерная сердцевидная форма средней кишки (Рисунок 3B). Эмбрионы 16-й стадии можно определить по сужению средней кишки и формированию четырех камер (желудочные слепые отростки; Рисунок 3C)19. Кроме того, экспрессия белка MHC не обнаруживается на более ранних стадиях, включая 14-ю, но становится интенсивной на 15-й и последующих стадиях (Рисунок 3A–C).
На поздней 15-й стадии эмбрионального развития мускулатура стенки тела у эмбрионов дикого типа (w1118) полностью сформирована, и большинство брюшных полусегментов демонстрируют идентичный стереотипный рисунок мышц при виде сбоку (Рисунок 3B). Этот стереотипный рисунок мышц можно визуализировать с помощью антител к MHC, полученных от кролика или крысы (Рисунок 3B,D). Напротив, при визуализации эмбрионов в дорсальной или вентральной проекции видно меньше мышечных волокон (Рисунок 3E,F). Таким образом, визуализация эмбрионов в латеральной проекции позволяет увидеть всю мускулатуру стенки тела и облегчает оценку дефектов слияния миобластов.
Для изучения дефектов слияния миобластов проводится визуализация мускулатуры брюшной стенки гомозиготных мутантных эмбрионов в латеральной проекции. Гомозиготные мутанты идентифицируются по отсутствию флуоресцентного маркера балансера, такого как GFP или YFP. Например, гомозиготные эмбрионы-мутанты spo, полученные от родителей spoMI06810/TM3, twi>UAS-GFP, являются GFP-отрицательными, в то время как эмбрионы-сиблинги, несущие балансер, экспрессируют GFP в мезодерме (Рисунок 4B,C). По сравнению с эмбрионами дикого типа и GFP-положительными сиблингами, эмбрионы-мутанты spo демонстрируют дефект слияния миобластов, характеризующийся наличием многочисленных неслившихся миобластов, способных к слиянию (FCMs; Рисунок 4A–C).
Примечательно, что в более глубоких оптических срезах (Z3 и Z4) наблюдается больше несросшихся FCM, чем в поверхностном срезе (Z1) эмбрионов мутантов spo (Рисунок 4B). Такое распределение отражает пространственную организацию клеток-основателей и FCM в процессе слияния эмбриональных миобластов. Клетки-основатели и растущие миотрубки расположены преимущественно в поверхностном слое мезодермы, тогда как FCM находятся в более глубоких слоях до тех пор, пока не мигрируют к растущим миотрубкам и не сольются с ними25. Следовательно, несросшиеся миобласты более многочисленны в глубоких конфокальных срезах, особенно в эмбрионах с частичными дефектами слияния. Таким образом, получение z-стеков, охватывающих всю глубину мускулатуры брюшной стенки, необходимо во избежание недооценки выраженности фенотипа слияния.
Хотя визуализация общей мускулатуры стенки тела в латеральной проекции позволяет провести фенотипическую оценку дефектов слияния миобластов, количественный анализ может быть выполнен путем визуализации мышцы DA1 в дорсальной проекции. В эмбрионах дикого типа мышца DA1 полностью сформирована и содержит 13.03 ± 0.60 Eve-положительных ядер (Рисунок 5A,C). В эмбрионах мутантов spo число Eve-положительных ядер в мышце DA1 снижено до 8.16 ± 0.54 (Рисунок 5B,C), что указывает на дефект слияния, при котором меньшее количество FCM сливается с клеткой-основателем DA1. Для обеспечения согласованности и воспроизводимости количественных данных Eve-положительные ядра в мышцах DA1 одних и тех же брюшных полусегментов (A2−A5) подсчитывают и усредняют для каждого эмбриона, при этом среднее значение по каждому эмбриону используется как одна точка данных для статистического анализа (Рисунок 5C).
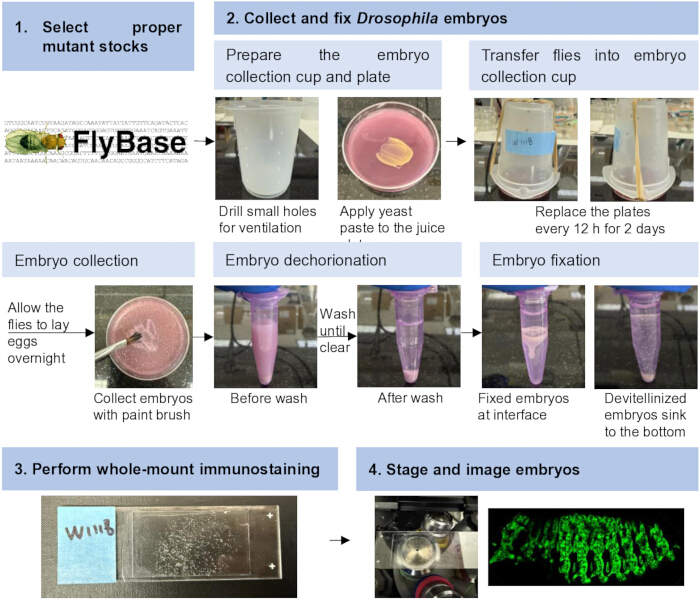
Рисунок 1: Алгоритм генетического, фенотипического и количественного анализа слияния миобластов в эмбрионах Drosophila. Алгоритм включает подбор соответствующих мутантных линий, сбор и фиксацию эмбрионов, иммуноокрашивание целого препарата и заключание в камеру, а также стадирование и визуализацию эмбрионов. Нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
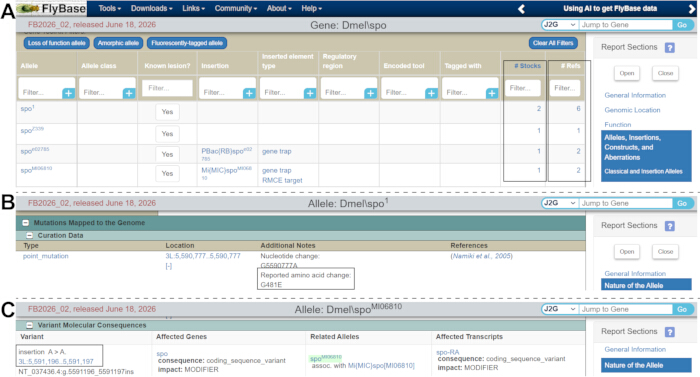
Рисунок 2: Подбор мутантных аллелей с помощью FlyBase. (A) Скриншот страницы отчета о гене spo в базе данных FlyBase. Мутантные аллели перечислены в разделе «Alleles». Столбец Stocks (выделен рамкой) указывает количество доступных линий, в то время как столбец Refs (выделен рамкой) указывает количество связанных ссылок. (B,C) Молекулярные повреждения двух репрезентативных мутантных аллелей spo: spo1 (B) и spoMI06810 (C). Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
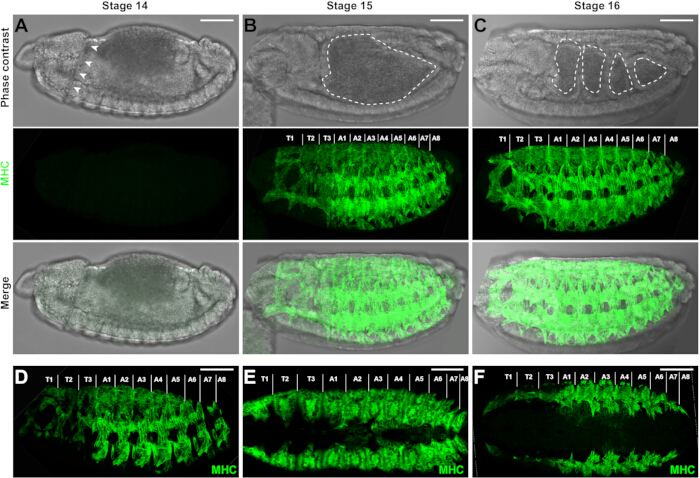
Рисунок 3: Мышечная система эмбриона Drosophila. (A–C) Фазово-контрастные изображения, конфокальные изображения z-проекций с окрашиванием на MHC и совмещенные изображения эмбрионов дикого типа (WT) на стадиях 14, 15, 16. Инволюция головы отчетливо видна (наконечники стрелок) у эмбриона на стадии 14 (A). Характерная сердцевидная форма средней кишки (пунктирная линия) наблюдается у эмбриона на стадии 15 (B), тогда как у эмбриона на стадии 16 (C) средняя кишка разделена на четыре отчетливые камеры (пунктирные линии). Экспрессия белка MHC не обнаруживается на стадии 14 (A), но становится выраженной на стадиях 15 (B) и 16 (C). Эмбрионы показаны в латеральной проекции: передний конец слева, задний справа, дорсальная сторона сверху, вентральная снизу. Указаны грудные (T1–T3) и брюшные (A1–A8) полусегменты. (D) Конфокальное изображение мышечной системы эмбриона WT на стадии 15 в латеральной проекции, визуализированное с помощью антител к MHC из крысы. Для изображений на других панелях использовались антитела к MHC из кролика. (E,F) Конфокальные изображения z-проекций мышечной системы эмбрионов WT на стадии 15 в дорсальной (E) и вентральной (F) проекциях. В дорсальной и вентральной ориентациях видно меньше мышечных волокон, чем в латеральной. Масштабная линейка = 50 µm. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
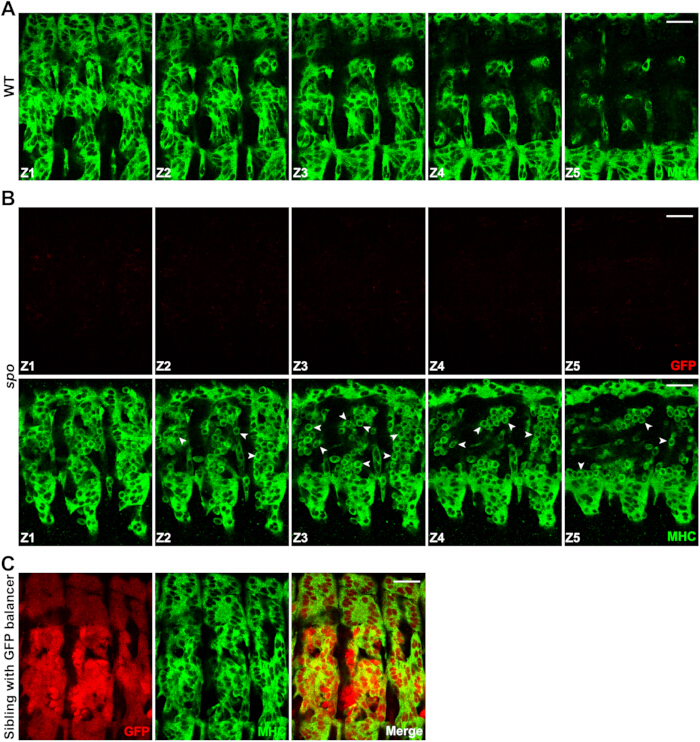
Рисунок 4: Сравнение мускулатуры эмбрионов дикого типа и мутантов spo. (A) Репрезентативные изображения Z-стека, полученные с помощью конфокальной микроскопии, демонстрируют мускулатуру брюшной стенки в латеральной проекции эмбриона WT на поздней 15-й стадии. Слияние миобластов завершено, неслившиеся миобласты не наблюдаются. MHC показан зеленым цветом. (B) Репрезентативные изображения Z-стека, полученные с помощью конфокальной микроскопии, демонстрируют мускулатуру брюшной стенки в латеральной проекции GFP-отрицательного эмбриона-мутанта spo, полученного от родителей spoMI06810/TM3, twi>UAS-GFP. Отсутствие флуоресценции GFP (красный) указывает на то, что эмбрион гомозиготен по spoMI06810. Наконечники стрелок указывают на типичные неслившиеся миобласты. В более глубоких оптических срезах (Z3 и Z4) наблюдается больше неслившихся миобластов, чем вблизи поверхности эмбриона (Z1). MHC показан зеленым цветом. (C) Конфокальные изображения в латеральной проекции GFP-положительного сиблинга-эмбриона, полученного от тех же родителей spoMI06810/TM3, twi>UAS-GFP. Мезодермальная экспрессия GFP (красный), индуцированная трансгеном twi>UAS-GFP на балансере TM3, позволяет отличить GFP-положительных сиблингов-эмбрионов от GFP-отрицательных гомозиготных эмбрионов-мутантов spo. MHC показан зеленым цветом. Масштабная линейка = 20 µm. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
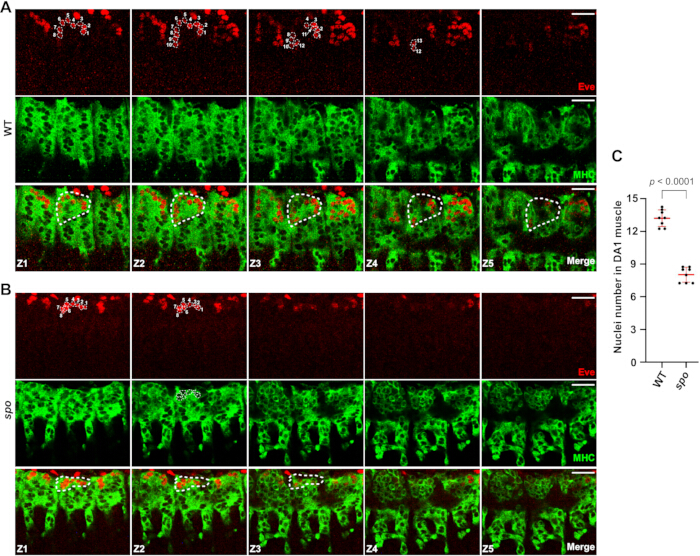
Рисунок 5Репрезентативные изображения z-стека конфокальной микроскопии и количественный анализ мышц DA1. (A,B) Конфокальные Z-стек изображения дорсального вида диких типов (WT) на поздней стадии 15 (A) и спо мутант (B) эмбрионы, помеченные антителами к MHC (зеленый цвет) и к Eve (красный цвет). Конфокальные z-стеки были получены по всей глубине Eve-положительной мышцы DA1 для захвата всех ядер внутри мышцы. Eve-положительные ядра выглядят как неокрашенные области внутри сигнала MHC. Репрезентативная мышца DA1 обведена пунктирной линией, а Eve-положительные ядра внутри мышцы DA1 пронумерованы. (CКоличественное определение ядер, экспрессирующих Eve, в мышцах DA1 у особей дикого типа (WT) и спо эмбрионы-мутанты. Для каждого генотипа было количественно определено восемь эмбрионов. Каждая точка данных представляет собой среднее количество ядер в мышцах DA1 полусегментов A2–A5 одного эмбриона. Данные представлены в виде среднего значения ± SD (красные столбцы). Статистическая значимость определялась с использованием двухстороннего t-критерия Стьюдента t-тест; p < 0,0001. Масштабная линейка = 20 µm. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
| номер штамма BDSC | Генотип | Цель |
| 6873 | N1/FM7c, twi>UAS-GFP | Экспрессия GFP в мезодерме позволяет идентифицировать гомозиготные мутантные эмбрионы, которые являются GFP-отрицательными. |
| 6662 | wgGla-1/CyO, twi>UAS-GFP | |
| 6663 | Д-рМио/TM3, twi>UAS-GFP | |
| 23229 | баз4/FM7c, Dfd-YFP | Специфическая экспрессия YFP в области головы позволяет идентифицировать YFP-отрицательные гомозиготные мутантные эмбрионы. |
| 23230 | СНА (синаптическая активность)Sco/ CyO, Dfd-YFP | |
| 23232 | Д-р1/TM6B, Dfd-YFP |
Таблица 1: Линии Drosophila, несущие ген флуоресцентного маркера на балансерных хромосомах.
Обсуждение
Описываемый здесь протокол представляет собой комплексный рабочий процесс для генетического, фенотипического и количественного анализа слияния миобластов в эмбрионах Drosophila. Важно отметить, что обнаружение дефекта слияния в мутантной линии требует дополнительных генетических анализов для подтверждения того, что именно интересующий ген ответственен за наблюдаемый фенотип. В процессе поддержания стока могут накапливаться спонтанные фоновые мутации, которые могут вносить вклад в фенотипы мутантов26. Одним из подходов является исследование транс-гетерозиготных эмбрионов, полученных путем скрещивания мутантного аллеля с хромосомной делецией, удаляющей интересующий ген. Наблюдение того же дефекта слияния в таких эмбрионах подтвердит вывод о том, что фенотип является результатом нарушения работы гена-кандидата, а не несвязанных фоновых мутаций. Эксперименты по генетическому спасению, например с использованием системы GAL4/UAS27, могут обеспечить дальнейшее подтверждение, позволяя определить, восстанавливает ли экспрессия интересующего гена нормальное слияние миобластов в эмбрионах мутантов.
Хотя проект по нарушению функций генов Drosophila (Drosophila Gene Disruption Project) создал общедоступную коллекцию мутантных линий, охватывающую примерно 75% генов Drosophila28, подходящие мутантные аллели, особенно сильные аллели с потерей функции, могут быть доступны не для каждого интересующего гена. В таких случаях линии с хромосомными делециями могут служить альтернативным ресурсом для оценки того, участвует ли кандидатный ген в слиянии миобластов. В настоящее время доступные коллекции линий с делециями охватывают более 98% эухроматина генома Drosophila29, что позволяет проводить анализ потери функции почти для всех генов. Хромосомные делеции можно найти в разделе «Aberrations» отчета по гену в базе FlyBase. Однако, поскольку каждая линия с делецией удаляет несколько генов, дефект слияния миобластов, наблюдаемый в гомозиготных по делеции эмбрионах, не может быть приписан конкретному гену внутри удаленного участка хромосомы без дальнейшей проверки. Таким образом, при выявлении дефекта слияния с использованием линии с делецией следует создать и проанализировать мутант с нокаутом одного гена, чтобы определить специфическую роль кандидатного гена в слиянии миобластов.
Хотя данный протокол ориентирован на фенотипический анализ мутантов по отдельным интересующим генам, этот рабочий процесс может быть также применен для крупномасштабного скрининга делеций с целью поиска новых регуляторов слияния миобластов с использованием доступных коллекций делеций29. Кроме того, замена антител к MHC антителами против специфических регуляторов слияния миобластов позволяет адаптировать общий рабочий процесс, включая сбор эмбрионов, фиксацию и иммуноокрашивание, для изучения локализации белков относительно фузогенного синапса. Наконец, описанные здесь методы могут быть адаптированы для фенотипического анализа других процессов эмбрионального развития, помимо слияния миобластов, что расширяет применимость данного протокола для более широкого спектра исследований развития.
Раскрытие информации
Авторы заявляют об отсутствии конфликта интересов. ChatGPT 5 (OpenAI) использовался исключительно для редактирования грамматики и языка. Он не использовался для создания научного содержания, данных, анализа или иллюстраций.
Благодарности
Мы благодарим центр стоков Блумингтона за предоставленные линии мух. Данная работа была поддержана грантами NIH R01AR085116 и R35GM136316, полученными E.H.C.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| Агар | Fisher | BP1423-500 | Порошкообразный агар; используется для приготовления твердой питательной среды. |
| Бычий сывороточный альбумин (BSA) | Sigma | A7906 | Бычий сывороточный альбумин; используется для приготовления блокирующих растворов при иммуноокрашивании. |
| Конфокальный микроскоп | Leica | SP8 | Лазерный сканирующий конфокальный микроскоп, используемый для флуоресцентной визуализации окрашенных образцов. |
| Конфокальный микроскоп | Nikon | A1R | Лазерный сканирующий конфокальный микроскоп, используемый для флуоресцентной визуализации окрашенных образцов. |
| Покрывное стекло | Fisher | 12-545-CP | Стеклянное покрывное стекло, 40 mm × 22 mm; используется для подготовки препаратов для микроскопии. |
| Культуральная чашка | Corning | 430166 | Культуральная чашка 60 mm; используется для работы, культивирования или обработки биологических образцов. |
| Сухие дрожжи | Sigma | YSC2 | Сухие дрожжи, используемые в качестве источника питания для культуры организмов. |
| Формальдегид, 37% | Fisher | BP531-500 | Концентрированный раствор формальдегида, используемый для приготовления фиксатора. ОСТОРОЖНО: Токсичен и летуч; работать, используя соответствующие средства индивидуальной защиты, в вытяжном шкафу. |
| Козьи антитела против мышиных IgG 647 | ThermoFisher | A-21236 | Ко secondary антитела против мышиных IgG, конъюгированные с флуорофором, для флуоресцентного детектирования первичных мышиных антител. |
| Козьи антитела против кроличьих IgG 568 | ThermoFisher | A-11036 | Ко secondary антитела против кроличьих IgG, конъюгированные с флуорофором, для флуоресцентного детектирования первичных кроличьих антител. |
| Гептан | Fisher | H350 | Органический растворитель, используемый при фиксации и пермеабилизации образцов. ОСТОРОЖНО: Легковоспламеняющееся и вредное вещество; работать в вытяжном шкафу с использованием соответствующих средств индивидуальной защиты. |
| Инкубатор | Percival | I36LL | Инкубатор с регулируемой температурой, используемый для поддержания культур или экспериментальных организмов в заданных условиях окружающей среды. |
| Метанол | Pharmco | 339000ACSBK01 | Метанол, используемый при фиксации, дегидратации или пермеабилизации образцов. ОСТОРОЖНО: Легковоспламеняющееся и токсичное вещество; работать в вытяжном шкафу с использованием соответствующих средств индивидуальной защиты. |
| Микроскопические стекла | Fisher | 12-550-15 | Стеклянные предметные стекла, используемые для подготовки образцов к визуализации. |
| Среда для заключения препаратов | ThermoFisher | P36980 | Среда для заключения с антифейдинговым эффектом, используемая для сохранения флуоресценции и заключения окрашенных образцов для микроскопии. |
| Мышиные антитела против Even skipped (Eve) | DSHB | 2B8 | Мышиные моноклональные первичные антитела, распознающие белок Even skipped; используются для иммунофлуоресцентного окрашивания. |
| Нутатор | Corning | 6720 | Настольный нутационный смеситель, используемый для осторожного и непрерывного перемешивания образцов во время этапов промывки, блокировки или инкубации с антителами. |
| Пластический стакан | Sigma | Z245380 | Пластический стакан объемом 100 mL используется для изготовления стакана для сбора мух. |
| Кроличьи антитела против тяжелой цепи миозина (MHC) | — | — | Кроличьи первичные антитела, распознающие тяжелую цепь миозина Drosophila; источник антител описан в Kiehart and Feghali (1986), Journal of Cell Biology 103, 1517–1525. |
| Крысиные антитела против тяжелой цепи миозина (MHC) | DSHB | BB7/21.14 | Крысиные моноклональные первичные антитела, распознающие тяжелую цепь миозина; используются для иммунофлуоресцентного окрашивания. |
| Азид натрия (NaN3) | Sigma | S8032 | Азид натрия, используемый в качестве консерванта в растворах антител или буферах. ОСТОРОЖНО: Высокотоксичен; избегать проглатывания, вдыхания, контакта с кожей и металлами. |
| Triton X-100 | Fisher | AAA16046AP | Неионогенный детергент, используемый для пермеабилизации мембран и приготовления промывочных или блокирующих буферов. |
| 10× фосфатно-солевой буфер (PBS) | Fisher | BP3994 | Концентрированный фосфатно-солевой буфер, используемый для приготовления 1× PBS для промывки, разведения и приготовления буферов. |
Ссылки
- Abmayr SM, Pavlath GK. Myoblast fusion: Lessons from flies and mice. Development. 2012;139(4):641-656.
- Petrany MJ, Millay DP. Cell fusion: Merging membranes and making muscle. Trends Cell Biol. 2019;29(12):964-973.
- Wherley TJ et al. Current topics in developmental biology. Vol. 158. Academic Press; 2024:53-82.
- Millay DP. Regulation of the myoblast fusion reaction for muscle development, regeneration, and adaptations. Exp Cell Res. 2022;415(2):113134.
- Dworak HA, Sink H. Myoblast fusion in Drosophila. Bioessays. 2002;24(7):591-601.
- Schejter ED. Myoblast fusion: Experimental systems and cellular mechanisms. Semin Cell Dev Biol. 2016;60:112-120.
- Deng S, Azevedo M, Baylies M. Acting on identity: Myoblast fusion and the formation of the syncytial muscle fiber. Semin Cell Dev Biol. 2017;72:45-55.
- Lee DM, Chen EH. Drosophila myoblast fusion: Invasion and resistance for the ultimate union. Annu Rev Genet. 2019;53:67-91.
- Bate M. The development of Drosophila melanogaster. CSH Laboratory Press; New York; 1993:1013-1090.
- Baylies MK, Bate M, Ruiz Gomez M. Myogenesis: A view from Drosophila. Cell. 1998;93(6):921-927.
- Chen EH, Olson EN. Towards a molecular pathway for myoblast fusion in Drosophila. Trends Cell Biol. 2004;14(8):452-460.
- Sens KL et al. An invasive podosome-like structure promotes fusion pore formation during myoblast fusion. J Cell Biol. 2010;191(5):1013-1027.
- Kim JH et al. Mechanical tension drives cell membrane fusion. Dev Cell. 2015;32(5):561-573.
- Chen EH. Invasive podosomes and myoblast fusion. Curr Top Membr. 2011;68:235-258.
- Kim JH, Jin P, Duan R, Chen EH. Mechanisms of myoblast fusion during muscle development. Curr Opin Genet Dev. 2015;32:162-170.
- Kim JH, Chen EH. The fusogenic synapse at a glance. J Cell Sci. 2019;132(18).
- Haralalka S, Abmayr SM. Myoblast fusion in Drosophila. Exp Cell Res. 2010;316(18):3007-3013.
- Kiehart DP, Feghali R. Cytoplasmic myosin from Drosophila melanogaster. J Cell Biol. 1986;103(4):1517-1525.
- Campos-Ortega JA, Hartenstein V. The embryonic development of Drosophila melanogaster. 2nd ed. Springer Berlin Heidelberg; Berlin, Heidelberg; 1997:9-102.
- De Joussineau C, Bataille L, Jagla T, Jagla K. Diversification of muscle types in Drosophila: Upstream and downstream of identity genes. Curr Top Dev Biol. 2012;98:277-301.
- Namiki T et al. Cytochrome P450 CYP307A1/Spook: A regulator for ecdysone synthesis in insects. Biochem Biophys Res Commun. 2005;337(1):367-374.
- Niwa R, Niwa YS. Enzymes for ecdysteroid biosynthesis: Their biological functions in insects and beyond. Biosci Biotechnol Biochem. 2014;78(8):1283-1292.
- Ruan ZR, Yu Z, Xing C, Chen EH. Inter-organ steroid hormone signaling promotes myoblast fusion via direct transcriptional regulation of a single key effector gene. Curr Biol. 2024;34(7):1438-1452.e6.
- Beckett K, Baylies MK. 3D analysis of founder cell and fusion competent myoblast arrangements outlines a new model of myoblast fusion. Dev Biol. 2007;309(1):113-125.
- Richardson B, Beckett K, Baylies M. Visualizing new dimensions in Drosophila myoblast fusion. BioEssays. 2008;30(5):423-431.
- Huang W et al. Spontaneous mutations and the origin and maintenance of quantitative genetic variation. eLife. 2016;5.
- McGuire SE, Roman G, Davis RL. Gene expression systems in Drosophila: A synthesis of time and space. Trends Genet. 2004;20(8):384-391.
- Bellen HJ et al. The Drosophila Gene Disruption Project: Progress using transposons with distinctive site specificities. Genetics. 2011;188(3):731-743.
- Cook RK et al. The generation of chromosomal deletions to provide extensive coverage and subdivision of the Drosophila melanogaster genome. Genome Biol. 2012;13(3).
Перепечатки и разрешения
Эта статья была опубликована
Видео скоро будет доступно