Электроакупунктура облегчает течение хронической сердечной недостаточности и патологическое ремоделирование сердца за счет восстановления нейронной активности в ядре одиночного тракта. Эта терапевтическая центральная нейромодуляция связана с повышением экспрессии фактора транскрипции YY1, который является потенциальной биологической мишенью.
Исследовательская статья
Центральные механизмы электроакупунктуры при хронической сердечной недостаточности: данные количественного протеомного анализа ядра одиночного тракта
* These authors contributed equally
В этой статье
Краткое содержание
Аннотация
Хроническая сердечная недостаточность (ХСН) является одной из главных мировых причин сердечно-сосудистой смертности, обусловленной вегетативной дисрегуляцией и гиперактивацией симпатической нервной системы. Хотя электроакупунктура (ЭА) оказывает кардиопротекторное действие посредством центральной нейромодуляции, ее конкретные молекулярные мишени в ядре одиночного тракта (NTS), ключевом центре интеграции вегетативных функций, остаются неясными. Для изучения этого вопроса была создана модель ХСН у крыс путем перевязки левой передней нисходящей коронарной артерии. Крысы подвергались ЭА в двусторонних акупунктурных точках HT7 в течение семи дней подряд. Функция сердца и повреждение миокарда оценивались с помощью эхокардиографии, иммуноферментного анализа и гистологического окрашивания. Нейрональная активность NTS оценивалась с помощью иммунофлуоресценции c-Fos и электрофизиологии in vivo. Молекулярные механизмы изучались с использованием количественного протеомного анализа и биоинформатики, а основные мишени подтверждались с помощью количественной ПЦР и вестерн-блоттинга. ЭА улучшила фракцию выброса левого желудочка, уменьшила фиброз миокарда и снизила уровень сывороточных маркеров сердечной недостаточности. Одновременно с этим ЭА восстановила частоту спонтанных нейронных разрядов, энергию локального полевого потенциала и экспрессию c-Fos в NTS. Протеомный профиль выявил 85 основных дифференциально экспрессируемых белков, модулируемых ЭА. Функциональная стратификация 58 белков с пониженной экспрессией и 27 белков с повышенной экспрессией выявила их соответствующее участие в организации внеклеточного матрикса и АТФ-зависимом ремоделировании хроматина. Поэтапный метод скрининга, объединяющий картирование топологической сети, анализ обогащения путей и профилирование экспрессии в тканях, позволил определить транскрипционный фактор YY1 в качестве высокочувствительной потенциальной мишени. Валидация in vivo подтвердила, что ЭА повышает экспрессию YY1. В целом, ЭА смягчила патологическое ремоделирование сердца и восстановила нейрональную активность NTS. YY1 был определен как потенциальная мишень, связанная с этой центральной нейромодуляцией, что дает молекулярное представление о механизмах, лежащих в основе эффектов ЭА при ХСН.
Введение
Хроническая сердечная недостаточность (ХСН) общепризнана как терминальная стадия различных сердечно-сосудистых патологий и остается ведущей причиной сердечно-сосудистой смертности во всем мире, создавая огромную нагрузку на глобальные системы здравоохранения1. Патофизиологическое прогрессирование ХСН обусловлено прежде всего дисрегуляцией вегетативной нервной системы, которая характеризуется стойкой гиперактивацией симпатического отдела и снижением тонуса парасимпатического отдела2. Таким образом, восстановление вегетативного гомеостаза считается важнейшей терапевтической стратегией для смягчения патологического ремоделирования сердца и улучшения общей функции сердца3.
Электроакупунктура (ЭА) представляет собой современное развитие традиционной акупунктуры и получила широкое признание благодаря своей клинической эффективности при лечении сердечно-сосудистых заболеваний4. Обширные исследования, включая наши предыдущие работы, показали, что эта терапия оказывает значительный кардиопротекторный эффект, главным образом путем модуляции центральной вегетативной нервной системы. В частности, мы продемонстрировали, что ЭА в акупунктурной точке Shenmen (HT7) может эффективно подавлять избыточный симпатический приток и восстанавливать симпато-вагальный баланс через направленные центральные нейронные механизмы, тем самым замедляя патологическое прогрессирование ХСН5,6,7,8.
Ядро одиночного тракта (NTS), расположенное в продолговатом мозге, является жизненно важным интеграционным центром для поддержания центрального автономного баланса. Оно служит основным реле для сердечно-сосудистых рефлексов и периферических сенсорных сигналов, регулируя динамическое равновесие между симпатическим и вагальным тонусом9. Несмотря на его анатомическую и функциональную значимость, специфические молекулярные изменения в этом критическом центре ствола мозга во время ЭА-терапии при ХСН остаются в значительной степени неизвестными. Современная высокопроизводительная протеомика в сочетании с биоинформационным анализом предоставляет мощный инструмент для беспристрастного картирования сложных белковых сетей и сигнальных каскадов, участвующих в этом центральном нейробиологическом процессе10.
Таким образом, данное исследование было направлено на изучение влияния электроакупунктуры (ЭА) в точке HT7 на функцию сердца и активность нейронов ядра одиночного тракта (NTS) при хронической сердечной недостаточности (ХСН), а также на характеристику молекулярных изменений в NTS, связанных с терапией ЭА. Путем интеграции электрофизиологических исследований in vivo с количественным протеомным анализом, биоинформатикой и молекулярной валидацией в данной работе ставилась цель выявить потенциальные молекулярные мишени, связанные с центральной нейромодуляцией при ХСН, опосредованной ЭА.
Протокол
Все методы с использованием позвоночных животных были выполнены в соответствии с требованиями Комитета по уходу и использованию животных Университета китайской медицины провинции Аньхой, номер одобрения AHUCM-rats-2024145. Используемые реагенты и оборудование перечислены в Таблице материалов.
Подготовка и группировка животных
Для всех экспериментов использовали самцов крыс линии Sprague-Dawley (чистый класс) в возрасте 8 недель и массой от 200 до 250 g. Животные содержались в контролируемой среде при температуре 24 ± 2 °C и относительной влажности 50%–60% со стандартным 12-часовым циклом свет-темнота. Всем крысам обеспечивался свободный доступ к корму и воде; перед началом любых экспериментальных процедур животные проходили период акклиматизации в течение 1 недели.
Для эксперимента I, в котором оценивалась функциональная и центральная нейронная активность, 24 крысы были случайным образом разделены на четыре группы по шесть животных в каждой: группы Sham, CHF, EA и Sham EA (Рисунок 1A). Для эксперимента II, в котором оценивались молекулярные мишени и высокопроизводительная протеомика, 36 крыс были случайным образом распределены по трем группам по 12 животных в каждой: Sham, CHF и EA. Размер выборки был определен с помощью метода уравнения ресурсов (Resource Equation Method) для соблюдения этических норм благополучия животных и принципа сокращения при обеспечении статистической достоверности (значение E = 20 для эксперимента I; значение E = 3 для эксперимента II)1. Данная стратегия формирования выборки соответствовала протоколам, использованным в предыдущих исследованиях влияния EA на сердечно-сосудистые заболевания8,12. Апостериорный анализ мощности показал, что статистическая мощность, превышающая 0,90, подтверждает адекватность такого распределения. Группа Sham EA была исключена из эксперимента II, так как предварительные функциональные оценки указали на отсутствие терапевтической эффективности.
Создание модели хронической сердечной недостаточности
Крыс подвергали голоданию в течение 12 ч перед операцией, при этом вода оставалась в свободном доступе. Анестезию индуцировали 3% изофлураном и поддерживали на уровне 1,5%–2% изофлурана во время процедуры. Поскольку изофлуран является летучим анестетиком, использовалась соответствующая система удаления отработанных газов, а процедура проводилась в хорошо проветриваемом помещении для предотвращения профессионального воздействия.
Проводилась непрерывная запись стандартных электрокардиограмм (ЭКГ) конечностей. Для обнажения сердца была выполнена левая торакотомия, после чего передняя нисходящая ветвь левой коронарной артерии (LAD) была перманентно перевязана на 2–3 мм ниже ушка левого предсердия с использованием нерассасывающейся нити 7-013. Успешное развитие ишемии подтверждали по подъему сегмента ST не менее чем на 0,2 mV на ЭКГ (Рисунок 1B). Для предотвращения инфекции и купирования боли в течение трех дней после операции ежедневно вводили пенициллин (20,0 U/mL) внутрибрюшинно и карпрофен (5 mg/kg) подкожно.
Для когорты ложнооперированного контроля была выполнена идентичная процедура торакотомии с последующим поверхностным введением иглы в соответствующее анатомическое место без перевязки передней нисходящей артерии (LAD). Обеспечивался идентичный послеоперационный уход и мониторинг. Эхокардиографическая оценка проводилась через 4 недели после операции. Модель считалась успешно созданной, если фракция выброса левого желудочка (LVEF) составляла ≤45%8 (Рисунок 1C). Животные, которые не соответствовали этим критериям, имели предоперационные отклонения на ЭКГ или подверглись преждевременной гибели, систематически исключались. Дополнительные крысы подвергались идентичным хирургическим протоколам для немедленной замены исключенных животных и поддержания единообразного размера выборки.
Электроакупунктурное воздействие
В соответствии с установленными протоколами сравнительной анатомии14, билатеральные акупунктурные точки HT7 меридиана сердца (Hand-Shaoyin Heart Meridian) определяли на ладонной поверхности поперечной складки запястья у локтевого края, непосредственно в радиальном углублении сухожилия локтевого сгибателя запястья. Местный участок подвергали стандартной дезинфекции. Две стерильные одноразовые иглы для акупунктуры (0.25 x 25 mm) вводили перпендикулярно в область каждой точки HT7 на целевую глубину 2–3 mm, располагая их примерно на расстоянии 1 mm друг от друга, чтобы они оставались строго в пределах одной и той же акупунктурной точки. Для видеодокументации глубину введения проверяли визуально, предварительно сделав метку на стержне иглы на отметке 3 mm перед введением.
Одну иглу прикрепили к катодному выводу аппарата EA, а соседнюю иглу — к анодному выводу для создания локальной электрической цепи (Рисунок 1D). Непрерывный электрический сигнал подавали с постоянной частотой 2 Hz и интенсивностью 1 mA, откалиброванной для вызова заметных, но слабых мышечных сокращений в соответствующих конечностях, по 30 min ежедневно в течение семи дней подряд под изофлурановой анестезией.
Для учета неспецифических соматосенсорных ответов в когорте с имитацией вмешательства (sham) применялся протокол минимального иглоукалывания15,16. Стерильные иглы вводились поверхностно на глубину 0.5–1 mm в те же точки HT7 без подключения электродов и подачи тока в течение 30 min, что соответствовало длительности анестезии. Контрольные группы Sham и CHF (базовый уровень) подвергались идентичному ежедневному воздействию изофлурана (1.5%–2% изофлурана в течение 30 min ежедневно на протяжении семи дней подряд) без введения игл или электрической стимуляции. Эта процедура позволила стандартизировать базовый уровень анестезии для всех экспериментальных когорт и исключить влияние потенциальных нейросупрессивных или кардиопротекторных артефактов, вызванных повторяющейся ингаляционной анестезией.
Эхокардиографическая оценка и эвтаназия животных
После вмешательства крыс наркотизировали 3% изофлураном для индукции и 1% для поддержания наркоза, после чего зафиксировали в положении на спине на платформе для животных. Шерсть на груди аккуратно удаляли с помощью депиляционного средства, а на открытую кожу равномерно наносили средство для акустического контакта. Функцию сердца оценивали с использованием цифровой ультразвуковой системы, оснащенной эхо-датчиком с частотой 18 MHz. Эхокардиография в M-режиме регистрировалась для измерения LVEF и фракционного сокращения левого желудочка (LVFS); для окончательного анализа рассчитывалось среднее значение по 3 техническим повторностям.
Кровь забирали из брюшной аорты, пока животные находились под воздействием анестезии, чтобы предотвратить последующую потерю крови и коагуляцию, а также обеспечить качество образцов для иммуноферментного анализа (ELISA). Крыс эвтаназировали сразу после этого путем непрерывного введения 5% изофлурана до прекращения сердцебиения и дыхания.
Затем образцы тканей были распределены в соответствии с планом эксперимента. Для Эксперимента I три крысы в каждой группе были использованы для забора сердца с целью окрашивания гематоксилином и эозином (HE) / по Массону, а также мозга для иммунофлуоресцентного анализа c-Fos. Остальные три крысы были направлены на электрофизиологические исследования in vivo. Для Эксперимента II у шести крыс в каждой группе были извлечены ткани двусторонних ядер одиночного тракта (NTS) для протеомного анализа. Ткани остальных шести крыс были забраны для молекулярного подтверждения: три использовались для вестерн-блоттинга и qPCR, а три — исключительно для qPCR.
ИФА (иммуноферментный анализ)
Собранные образцы крови оставляли для естественного свертывания при 4 °C в течение 10–20 мин. Образцы центрифугировали при 1,0 x g в течение 15 мин при 4 °C для отделения сыворотки, после чего собирали супернатанты. Если анализ не проводился немедленно, образцы сыворотки хранили при −80 °C до востребования. Концентрации N-концевого предшественника мозгового натрийуретического пептида (NT-proBNP) и сердечного тропонина T (cTnT) в сыворотке определяли с помощью специальных наборов для ELISA в соответствии со стандартными инструкциями. Измеряли значения оптической плотности и рассчитывали уровни биомаркеров на основании стандартных кривых.
Гистологическое и иммунофлуоресцентное окрашивание
Собранные ткани сердца промывали в предварительно охлажденном 0.9% растворе хлорида натрия, разрезали на уровне 5 mm выше верхушки и заливали в парафин. Срезы тканей депарафинизировали и регидратировали. Окрашивание гематоксилином и эозином (HE) проводили путем нанесения гематоксилина на 10 min с последующим контрастным окрашиванием эозином в течение 2.5 min. Окрашивание по Массону проводили путем нанесения гематоксилина на 60 s и трихрома Массона на 30–60 s. Срезы дифференцировали в 6%–8% фосфорной кислоте и контрастировали светло-зеленым красителем в течение 5 min. Для оценки фиброза миокарда определяли объемную долю коллагена (CVF).
Собранные ткани мозга фиксировали в 4% параформальдегиде, дегидратировали в растворах сахарозы возрастающей концентрации и нарезали на срезы толщиной 30 µm. Поскольку параформальдегид токсичен и является предполагаемым канцерогеном, работа с ним проводилась в вытяжном шкафу с использованием соответствующих средств индивидуальной защиты. Срезы блокировали буфером, содержащим 0.5% Triton X-100 и 3% бычьего сывороточного альбумина, затем инкубировали в течение ночи при 4 °C с первичными антителами к c-Fos. После этого срезы промывали фосфатно-солевым буфером и инкубировали с соответствующими вторичными антителами в течение 2 ч при комнатной температуре в темноте. Срезы монтировали с использованием раствора для гашения флуоресценции, содержащего 4',6-диамидино-2-фенилиндол (DAPI), после чего проводили визуализацию c-Fos-положительных нейронов.
Электрофизиология in vivo
Крысам вводили изофлуран в концентрации 3% для индукции и 1% для поддержания наркоза, после чего их фиксировали в стереотаксическом аппарате для мозга. Кожу головы выбривали и дезинфицировали. Для обнажения брегмы выполняли срединный разрез, затем удаляли твердую мозговую оболочку. В области NTS просверливали точное отверстие в черепе, исходя из следующих стереотаксических координат относительно брегмы: антеропостериорная (AP) ±12.6 mm, медиолатеральная (ML) ±0.9–2.1 mm и дорсовентральная (DV) ±7.6–8.1 mm.
После завершения электрофизиологических записей была проверена точная стереотаксическая локализация кончика электрода. На записывающий электрод кратковременно подавали постоянный ток силой 1 mA в течение 10 s для создания небольшого электролитического повреждения. После проведения эксперимента ствол мозга был рассечен, и гистологически подтверждено, что тракт повреждения анатомически локализован в пределах NTS.
Восьмиканальная (2 x 4) матрица микроэлектродов была имплантирована и медленно продвинута в целевую область мозга со скоростью 5 µm/s с помощью моторизованного микromanипулятора. После установления стабильной нейронной активности проводилась непрерывная запись в течение 40 s. Для регистрации нейронных спайковых разрядов (фильтрация 150–8,0 Hz, частота дискретизации 40 kHz) и локальных полевых потенциалов (LFP; фильтрация 0.7–40 Hz, частота дискретизации 1 kHz) использовали многоканальную систему сбора данных.
Для удаления типичных высокоамплитудных помех и артефактов с помощью кросс-корреляции форм волны использовалось программное обеспечение для сортировки спайков. Последующий анализ нейронных сигналов проводился с помощью программного обеспечения для нейронного анализа. Нейроны классифицировались как активные только в том случае, если они демонстрировали спонтанную среднюю частоту разрядов >2 Hz и поддерживали стабильное отношение сигнал/шум >3:1. Порог в 2 Hz был выбран на основе установленных физиологических характеристик нейронов NTS, связанных с вегетативной нервной системой; это позволило эффективно исключить преимущественно «молчащие» клетки и низкочастотные дыхательные ритмические вспышки, тем самым гарантируя, что анализ сосредоточен на тонически активных нейронах, опосредующих базальную сердечно-сосудистую регуляцию17,18,19,20. На основе этих критериев были построены графики средней частоты разрядов нейронов и растровые диаграммы спайков. Для оценки характеристик энергии нейронных осцилляций были построены энергетические спектрограммы 2D LFP и топографии трехмерной спектральной плотности мощности (PSD).
После завершения записи разрез ушили, и за крысами наблюдали до полного выхода из наркоза. Внутрибрюшинно вводили пенициллин, а также ежедневно в течение трех последовательных дней вводили карпрофен (5 mg/kg, с.к.).
Количественный протеомный анализ методом сбора данных, не зависящего от предшествующего анализа (DIA)
Общий белок экстрагировали лизирующим буфером и количественно определили бицинхониновым методом. Белки денатурировали, подвергли восстановительному алкилированию и переварили трипсином при 37 °C в течение 2 ч. Полученные пептиды обессолили с помощью колонки C18, сконцентрировали при 45 °C и ресуспендировали для последующего масс-спектрометрического анализа.
Пептиды наносили на концентрирующую колонку (5 µm C18, 300 µm x 5 mm), уравновешенную 96% буфером A (0,1% муравьиная кислота в воде). Разделение пептидов проводили на аналитической колонке для высокопроизводительной ультра-эффективной жидкостной хроматографии с использованием строго оптимизированного градиента буфера A и буфера B (0,1% муравьиная кислота в 80% ацетонитриле).
Масс-спектрометрия проводилась в режиме сбора данных, не зависящем от предшественника (DIA), с регистрацией положительных ионов при напряжении на электрораспылителе 1,9 kV. Полные сканирования масс-спектрометра регистрировались в диапазоне масс от 380 до 980 m/z при разрешении 240 0, с целевым значением автоматического управления усилением (AGC) 50% и максимальным временем инжекции 3 ms. Спектры MS/MS регистрировались при разрешении 80 00 (цель AGC: 50%; максимальное время инжекции: 3 ms; амплитуда РЧ-линзы: 40%). Фрагментация ионов-предшественников осуществлялась методом высокоэнергетической коллизионной диссоциации с окном изоляции 2 Th и нормированной энергией столкновения 25% при заданном времени цикла 0,6 s.
Необработанные данные масс-спектрометрии обрабатывали с помощью программного обеспечения DIA-NN. Спектральную библиотеку создавали с использованием встроенного алгоритма глубокого обучения; для количественного анализа по отношению к референсной базе протеома Rattus norvegicus применяли функцию match-between-runs с учетом трипсинолиза и до 2 пропущенных сайтов расщепления. Итоговую количественную матрицу белков фильтровали с использованием строгого порога уровня ложноположительных результатов (FDR) 1% как на уровне ионов-предшественников, так и на уровне белков.
Биоинформационный анализ и поиск хабовых генов
Биоинформатический анализ и визуализация данных проводились преимущественно в среде программирования R с использованием специализированного программного обеспечения для визуализации сетей. Для обеспечения методологической прозрачности и воспроизводимости все пользовательские R-скрипты, использованные в ходе этих аналитических процессов, представлены в Дополнительном файле 1. Первичный контроль качества данных и оценка общего распределения выполнялись с помощью пакета ropls. Была составлена сводная статистика по идентификации и количественному определению белков; для трех групп был проведен дискриминантный анализ методом частичных наименьших квадратов (PLS-DA); для попарных сравнений применялся ортогональный дискриминантный анализ методом частичных наименьших квадратов (OPLS-DA); тепловые карты корреляции образцов были построены с помощью пакета pheatmap.
Основные дифференциально экспрессируемые белки были отобраны с использованием пороговых значений: значение p <0.05, кратность изменения (fold change) >1.2 и показатель значимости переменной в проекции (VIP-score) >1.0. Для визуализации пересекающихся белков с помощью пакета ggplot2 были построены двойные графики «вулкан» (volcano plots), с помощью пакета ggVennDiagram определены пересечения, а с помощью пакета pheatmap построены тепловые карты иерархической кластеризации. Анализы обогащения по Gene Ontology (GO) и Киотской энциклопедии генов и геномов (KEGG) проводились отдельно для белков с повышенной и пониженной экспрессией с использованием пакета enrichR на основе базы данных Enrichr.
Все дифференциально экспрессируемые белки были сопоставлены с базой данных STRING с порогом достоверности 0,4 для построения сети белок-белковых взаимодействий. Данные о взаимодействиях были импортированы в программное обеспечение для визуализации сетей. С помощью плагина cytoHubba были рассчитаны топологические показатели, и на основе глубины цвета узлов были выделены 18 генов с наивысшими показателями. Для 18 потенциальных хаб-генов был проведен анализ обогащения путей, после чего были выбраны 10 наиболее значимых белков для оценки уровней их экспрессии в тканях человека с использованием базы данных Genotype-Tissue Expression (GTEx). Наиболее критический хаб-ген был определен на основе уровней экспрессии в головном мозге человека и топологических показателей сети. Браузер данных Cistrome Data Browser использовался для прогнозирования нижележащих факторов транскрипции и модификаций гистонов, связанных с конкретным хаб-геном.
Вестерн-блоттинг и количественная полимеразная цепная реакция
Общий белок экстрагировали из тканей NTS, используя смесь для лизиса, содержащую лизисный буфер с фенилметилсульфонилфторидом, PMSF и ингибиторы фосфатаз. Образцы гомогенизировали с помощью ультразвукового гомогенизатора и центрифугировали при 13,80 x g в течение 20 мин при 4 °C для сбора супернатантов. Концентрацию белка определяли с помощью набора для определения белка методом бицинкуниноновой кислоты. Всего 20 µg белка из каждого образца разделяли методом электрофореза в 10% полиакриламидном геле с додецилсульфатом натрия с последующим переносом на поливинилиденфторидные мембраны.
Мембраны блокировали 5% обезжиренным молоком в трис-солевом буфере с Твеном (TBST) в течение 1 ч при комнатной температуре, затем инкубировали в течение ночи при 4 °C со специфическими первичными антителами к Yin Yang 1 (YY1) и β-actin в качестве контрольного белка. Мембраны трижды промывали TBST по 5 мин и инкубировали с вторичными антителами, конъюгированными с пероксидазой хрена, в течение 1,5 ч при комнатной температуре. Полосы целевых белков визуализировали с помощью набора для усиленной хемилюминесценции, фиксировали с помощью системы визуализации и количественно оценивали относительно β-actin.
Общая РНК была экстрагирована из тканей NTS с использованием реагента для экстракции РНК. Концентрация и чистота РНК измерялись с помощью спектрофотометра, а синтез первой цепи кДНК проводили с использованием набора для обратной транскрипции. Количественную полимеразную цепную реакцию (ПЦР) в реальном времени выполняли с использованием набора SYBR Green PCR на системе ПЦР в реальном времени. Специфические последовательности праймеров, использованных для амплификации, вместе с соответствующими номерами доступа в базе NCBI Reference Sequence были следующими: YY1 (NM_010271.1), прямой 5'-AGCGTTCGTTGAGAGCTCAA-3' и обратный 5'-AGCCTTCGAATGTGCACTGA-3'; DPF2 (NM_01014264.1), прямой 5'-TGTGATGACTGTGACCGTGG-3' и обратный 5'-TCCAAACAGGTGGCAACT-3'; DMAP1 (NM_010705.1), прямой 5'-GGTGTGACATTACGGAGCCA-3' и обратный 5'-TCCAGCAGCATCTGTTCCAG-3'; и глицеральдегид-3-фосфатдегидрогеназа (GAPDH) (NM_017008.4), прямой 5'-GGCACAGTCAAGGCTGAGAATG-3' и обратный 5'-ATGGTGGTGAAGACGCCAGTA-3'. Относительные уровни экспрессии мРНК рассчитывали с использованием метода 2-ΔΔCt методом и нормированы по внутреннему референсному гену GAPDH.
Статистический анализ
Все экспериментальные данные были проанализированы с помощью статистического программного обеспечения и представлены в виде среднего значения ± стандартного отклонения (SD). Нормальность распределения оценивали с помощью критерия Шапиро-Уилка, а гомогенность дисперсии — с помощью критерия Брауна-Форсайта.
Для сравнения двух независимых групп при соблюдении критериев нормальности распределения использовали t-критерий Стьюдента или парный t-критерий. Данные, не соответствующие условиям нормальности, анализировали с помощью U-критерия Манна-Уитни или критерия Вилкоксона. Для сравнения нескольких групп при соблюдении условий нормальности и гомогенности использовали однофакторный дисперсионный анализ с последующим апостериорным тестом Холма-Сидака. В случаях, когда данные условия не соблюдались, применяли H-критерий Краскела-Уоллиса с последующим апостериорным тестом Данна.
Корреляции оценивали с помощью коэффициента корреляции Пирсона, рассчитанного с использованием пакета Hmisc в R. Соответствующие значения p корректировали с помощью метода контроля ложноположительных результатов Бенджамини-Хохберга через пакет stats для контроля повышенной частоты ошибок I рода, возникающих при множественном тестировании. Общий уровень статистической значимости был установлен при p <0.05.
Результаты
Электроакупунктура улучшает сердечную функцию и смягчает повреждение миокарда у крыс с хронической сердечной недостаточностью
Для оценки влияния ЭА на ХСН была создана модель на крысах путем лигирования передней нисходящей артерии (LAD) с последующим проведением специфического ЭА или имитации ЭА (Sham EA). Были проведены систематические исследования, включая эхокардиографию, биохимические анализы и гистологическое окрашивание (Рисунок 2A). Функционально в группе ХСН наблюдались дилатация желудочков и нарушение сократительной способности. Лечение ЭА позволило уменьшить снижение LVEF и LVFS, наблюдаемое у крыс с ХСН, в то время как в группе имитации ЭА показатели сердечной функции были сопоставимы с показателями группы ХСН (Рисунок 2B и Рисунок 2C).
Кроме того, электроакупунктура (EA) снизила уровни NT-proBNP и cTnT в сыворотке крови, что указывает на уменьшение нагрузки на сердце и смягчение повреждения миокарда. Напротив, в группе ложной EA (Sham EA) биохимические показатели были схожи с показателями группы ХСН (Рисунок 2E,F). Гистологический анализ показал, что в группе ХСН наблюдались структурные повреждения миокарда и фиброз. Лечение EA улучшило архитектуру миокарда и снизило CVF, в то время как в группе ложной EA сохранялись патологические изменения и уровни CVF, аналогичные группе ХСН (Рисунок 2D). В целом, EA оказала кардиопротекторное действие при ХСН, тогда как вмешательство с ложной EA не привело к аналогичным терапевтическим результатам.
Электроакупунктура активирует нейроны в ядре одиночного тракта крыс с хронической сердечной недостаточностью
Чтобы определить, опосредует ли NTS центральный ответ на электроакупунктурную (EA) терапию, оценивали активацию нейронов путем окрашивания на c-Fos, маркер нейронного возбуждения. Иммунофлуоресцентная визуализация (Рисунок 3A) и количественный подсчет клеток (Рисунок 3B) показали, что количество c-Fos-положительных нейронов в NTS в группе CHF было ниже по сравнению с группой Sham. Однако EA-терапия повысила экспрессию c-Fos до уровней, сопоставимых с базовым уровнем в группе Sham. Параллельно с периферическими функциональными результатами, в группе Sham EA наблюдались уровни экспрессии c-Fos, аналогичные группе CHF.
Для оценки функционального состояния этих нейронов NTS регистрировали электрофизиологические сигналы in vivo. Графики спайковой активности (Рисунок 3C) и количественные показатели средней частоты разрядов (Рисунок 3D) соответствовали гистологическим данным. Спонтанная частота разрядов нейронов NTS была снижена при ХСН. Напротив, вмешательство с помощью EA повышало частоту нейронных разрядов, тогда как процедура Sham EA не вызывала подобных электрофизиологических изменений.
Такой паттерн нейронной активации был подтвержден анализом локального полевого потенциала. Как показано на 2D-цветовых спектрограммах LFP и 3D-картах спектральной плотности мощности (Рисунок 3E), энергия нейронных осцилляций в NTS была снижена при состоянии ХСН. После проведения электроакупунктурной терапии (EA) наблюдалось увеличение интенсивности мощности во всем спектре нейронных частот, что свидетельствует об активации сети, которая отсутствовала в группе ложного воздействия (Sham EA).
Для изучения физиологической значимости этой центральной активации был проведен корреляционный анализ Пирсона, объединяющий периферические показатели сердечной деятельности с активностью нейронов центрального NTS (Рисунок 3F). Анализ показал, что средняя частота разрядов и экспрессия c-Fos в NTS положительно коррелировали с LVEF. Напротив, эти показатели центральной нейронной активности продемонстрировали отрицательную корреляцию с сывороточным маркером сердечной недостаточности NT-proBNP. Данные корреляции указывают на то, что нейронная активация NTS, модулируемая EA, связана с ее периферической кардиопротекторной эффективностью.
Электроакупунктура изменяет глобальный протеомный профиль в ядре одиночного тракта
В связи с отсутствием терапевтического эффекта, наблюдавшимся в группе ложного электроакупунктурного воздействия (Sham EA) в ходе предшествующих функциональных исследований, этап протеомного анализа включал только группы Sham, CHF и EA. Перед забором тканей 12 крыс из каждой группы прошли эхокардиографическую оценку для анализа терапевтического действия электроакупунктуры (EA), результаты которой представлены на Дополнительном рисунке 1A. После данной оценки 6 биологических повторов из каждой группы были подвергнуты количественному протеомному анализу методом масс-спектрометрии.
Для оценки достоверности и общего распределения протеомных данных были проведены контроль качества и многомерный анализ. Общее количество идентифицированных белков составило 5 914 в группе Sham, 5 980 в группе CHF и 5 836 в группе EA, что свидетельствует о сопоставимом уровне обнаружения белков в трех экспериментальных группах (Рисунок 4A и Дополнительная таблица 1). Дискриминантный анализ методом частичных наименьших квадратов продемонстрировал четкое разделение групп Sham, CHF и EA, что указывает на выраженные различия в общих протеомных профилях, связанных с патологическим состоянием и воздействием EA (Рисунок 4B).
Попарный ортогональный анализ дискриминантных функций методом частичных наименьших квадратов дополнительно продемонстрировал разделение между группами Sham и CHF (Рисунок 4C), а также между группами CHF и EA (Рисунок 4D). Соответствующие пермутационные тесты подтвердили надежность этих моделей. Кроме того, тепловая карта корреляции Пирсона показала высокую степень внутригрупповой корреляции и выраженные межгрупповые закономерности среди протеомных образцов, что подтверждает воспроизводимость биологических повторностей (Рисунок 4E). В совокупности эти данные контроля качества и многомерного анализа свидетельствуют о том, что полученный протеомный набор данных достаточно надежен для последующей идентификации и биоинформатического анализа дифференциально экспрессируемых белков.
Электроакупунктура модулирует ключевые дифференциально экспрессируемые белки и сигнальные пути в ядре одиночного пути
Для изучения молекулярных мишеней электроакупунктуры (EA) был проведен анализ изменений уровней белков. На графиках «вулкан» показано распределение белков с повышенной и пониженной экспрессией при сравнении групп Sham и CHF, а также CHF и EA (Рисунок 5A, Дополнительная таблица 2 и Дополнительная таблица 3). Для идентификации терапевтических мишеней был проведен анализ пересечений. Как показано на диаграммах Венна, было выявлено 58 белков, экспрессия которых была повышена в группе CHF, но снижена после лечения EA, а также 27 белков с пониженной экспрессией в группе CHF, уровень которых повысился в результате вмешательства EA (Рисунок 5B и Дополнительная таблица 4). В результате данного скрининга было выделено в общей сложности 85 ключевых дифференциально экспрессируемых белков. Теплокарта иерархической кластеризации продемонстрировала, что вмешательство EA модулировало аномальные паттерны экспрессии этих 85 белков, сдвигая их профили в сторону исходных значений группы Sham (Рисунок 5C).
Для определения биологических функций этих основных мишеней были проведены раздельные анализы обогащения GO и KEGG для двух различных подмножеств белков. Для подмножества из 58 белков, экспрессия которых была снижена под воздействием EA, пузырьковая диаграмма GO продемонстрировала значительное обогащение биологическими процессами, включая организацию внеклеточного матрикса и организацию внеклеточных структур, а также клеточными компонентами, такими как внешняя инкапсулирующая структура и коллагеновый тример, и молекулярными функциями, включая связывание с коллагеном и связывание с глутаматным рецептором (Рисунок 5D и Дополнительная таблица 5). Последующий анализ путей KEGG, визуализированный с помощью хорд-диаграмм и диаграмм Sankey, показал, что эти 58 белков участвуют в таких каскадах, как переваривание и всасывание белков, организация цитоскелета в мышечных клетках и сигнальный путь TGF-β (Рисунок 5E и Дополнительная таблица 6). Эти топологические визуализации выделили специфические белки, включая COL3A1, COL14A1, MYH11, DCN и DPF2, в качестве ключевых узлов, связывающих несколько патологических путей.
Напротив, функциональная аннотация была проведена для подмножества из 27 белков, экспрессия которых повышалась при воздействии электроакупунктуры (EA). Анализ обогащения GO указал на участие в таких биологических процессах, как регуляция клеточного роста и положительная регуляция элонгации транскрипции на ДНК-матрице, а также в молекулярных функциях, включая кальций-зависимое связывание белков и связывание тетрапиррола (Рисунок 5F и Дополнительная таблица 7). Соответствующие хорд-диаграммы и диаграммы Sankey в базе данных KEGG соотнесли эти белки с критически важными путями, включая АТФ-зависимое ремоделирование хроматина и репрессивный комплекс Polycomb (Рисунок 5G и Дополнительная таблица 8). Примечательно, что такое картирование сети позволило выделить ключевые белки, такие как YY1, E2F2 и ENTPD5, которые связывают эти центральные сигнальные сети. Эта комплексная функциональная стратификация заложила структурную основу для последующей валидации основных мишеней.
Топология сети и профилирование экспрессии идентифицируют YY1 как потенциальную мишень, связанную с эффектами воздействия электроакупунктуры
Для определения хаб-гена среди 85 дифференциально экспрессируемых белков была построена сеть белок-белковых взаимодействий. Топологический анализ выявил 18 узлов с высокими показателями связности (Рисунок 6A и Дополнительная таблица 9). Впоследствии был проведен анализ путей KEGG специально для этих 18 хаб-белков. Соответствующие хордовые диаграммы и диаграммы Санки отобразили сложные взаимосвязи между этими хабами и обогащенными сигнальными каскадами, включая АТФ-зависимое ремоделирование хроматина, репрессивный комплекс polycomb и сигнальный путь TGF-β (Рисунок 6A и Дополнительная таблица 10). На основании этого функционального профилирования для дальнейшего скрининга были выбраны 10 наиболее выраженно обогащенных белков. Поскольку терапевтическая мишень электроакупунктуры (EA) находится в центральной нервной системе, эти 10 кандидатов были оценены с помощью базы данных экспрессии в тканях человека GTEx (Рисунок 6B и Дополнительный рисунок 1B–J). Результаты показали, что в тканях мозга экспрессировались только YY1 (Рисунок 6B), DMAP1 (Дополнительный рисунок 1C) и DPF2 (Дополнительный рисунок 1D).
Для выделения высокочувствительного потенциального мишени ЭА были проведены молекулярные эксперименты in vivo с использованием тканей ЯПД. Для оценки транскрипционной реактивности трех кандидатов, обогащенных в головном мозге, использовали количественную ПЦР в реальном времени. Экспрессия мРНК YY1 была снижена при ХСН и повышалась после лечения ЭА, в то время как уровни экспрессии мРНК DPF2 и DMAP1 не продемонстрировали статистически значимых изменений в экспериментальных группах (Рисунок 6C). Данный транскрипционный скрининг позволил исключить DPF2 и DMAP1 из дальнейшей валидации и подтвердил, что YY1 является основным реактивным кандидатом. Последующий анализ методом вестерн-блоттинга показал, что уровни белка YY1 были снижены в группе ХСН по сравнению с контрольной группой (Sham), в то время как вмешательство с помощью ЭА противодействовало этой тенденции, увеличивая экспрессию белка YY1 (Рисунок 6D и Рисунок 6E). Эти экспериментальные результаты указывают на то, что ЭА усиливает экспрессию YY1 в ЯПД.
Для исследования вышележащих регуляторных механизмов, управляющих экспрессией YY1, были проанализированы соответствующие модификации гистонов и факторы транскрипции. Важно отметить, что эти результаты основаны исключительно на вычислительных биоинформатических прогнозах, полученных с помощью Cistrome Data Browser, и не представляют собой прямое экспериментальное подтверждение методом ChIP-seq. Эпигенетический прогноз выявил модификации гистонов, включая H3K27ac, H3K27me3 и H3K4me3, с высокими показателями регуляторного потенциала для локуса YY1 (Рисунок 6F). Одновременно с этим оценка регуляторного потенциала позволила определить такие факторы транскрипции, как CDK9, PRDM1 и ELL2, в качестве вышележащих регуляторов YY1 (Рисунок 6G). Данные биоинформатические прогнозы описывают потенциальные эпигенетические и транскрипционные сети, контролирующие экспрессию YY1 в NTS.
Таким образом, представленные данные демонстрируют, что электроакупунктурное (EA) воздействие эффективно улучшает системную функцию сердца и смягчает повреждение миокарда у крыс с ХСН. Эти периферические кардиопротекторные эффекты сопровождаются на центральном уровне восстановлением нейронной активности разрядов и энергии нейронных осцилляций в области NTS. Кроме того, количественный протеомный скрининг выявил 85 основных дифференциально экспрессируемых белков и определил транскрипционный фактор YY1 как высокочувствительную мишень-кандидат. В совокупности эти результаты позволяют предположить, что терапевтическая эффективность EA при ХСН тесно связана с восстановлением нейронной функции NTS, и что повышение экспрессии YY1 может быть вовлечено в этот центральный нейробиологический процесс.
Доступность данных
Все данные, полученные и проанализированные для подтверждения результатов этого исследования, включены в текст рукописи и ее Supplementary File 1. В соответствии с требованием о публичной доступности данных, все имеющиеся необработанные данные, лежащие в основе этого исследования, были помещены в открытый репозиторий Zenodo и доступны бесплатно по следующей ссылке: https://doi.org/10.5281/zenodo.2030720. Дополнительные подтверждающие данные могут быть предоставлены соответствующими авторами по обоснованному запросу.
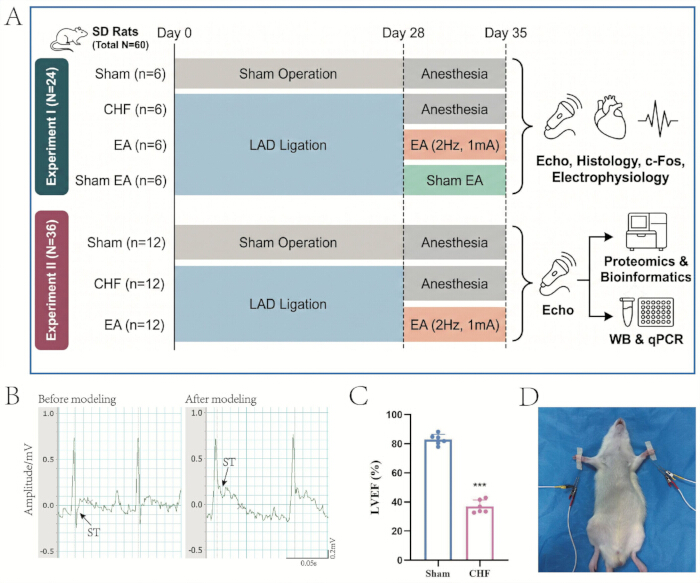
Рисунок 1: Схема эксперимента, создание модели хронической сердечной недостаточности у крыс и электроакупунктурное воздействие. (A) Общая схема эксперимента, включая временную шкалу и распределение по группам для двух независимых серий экспериментов. (Б) Репрезентативные записи электрокардиограмм до и после лигирования передней нисходящей ветви левой коронарной артерии; стрелками indicated элевация сегмента ST, подтверждающая ишемию миокарда. (C) Количественный анализ ФВЛЖ через 4 недели после операции для подтверждения успешного моделирования (биологических повторностей n = 6, среднее значение ± СКО). ***p < 0,01 по сравнению с контрольной группой (Sham). (D) Электроакупунктурное воздействие на билатеральные точки HT7. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
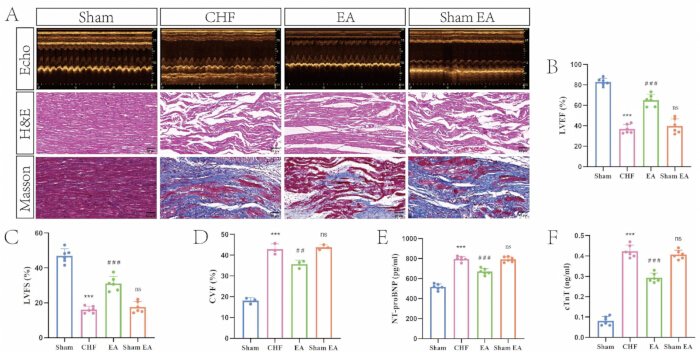
Рисунок 2: Электроакупунктура улучшает функцию сердца и уменьшает повреждение миокарда у крыс с хронической сердечной недостаточностью. (A) Репрезентативные эхокардиограммы в M-режиме, а также изображения тканей миокарда, окрашенных гематоксилином и эозином и по методу Массона, для 4 экспериментальных групп (масштабная линейка = 50 µm). (B) Количественный анализ LVEF в группах (биологические повторности n = 6, среднее ± SD). ***p < 0.01 по сравнению с группой Sham; ###p < 0.01 по сравнению с группой CHF; ns — статистически незначимо по сравнению с группой CHF. (C) Количественный анализ LVFS в группах (биологические повторности n = 6, среднее ± SD). ***p < 0.001 по сравнению с группой Sham; ###p < 0.01 по сравнению с группой CHF; ns — статистически незначимо по сравнению с группой CHF. (D) Количественный анализ CVF в группах (биологические повторности n = 3, среднее ± SD). ***p < 0.01 по сравнению с группой Sham; ##p < 0.01 по сравнению с группой CHF; ns — статистически незначимо по сравнению с группой CHF. (E) Количественный анализ уровней NT-proBNP в сыворотке крови в группах (биологические повторности n = 6, среднее ± SD). ***p < 0.001 по сравнению с группой Sham; ###p < 0.01 по сравнению с группой CHF; ns — статистически незначимо по сравнению с группой CHF. (F) Количественный анализ уровней cTnT в сыворотке крови в группах (биологические повторности n = 6, среднее ± SD). ***p < 0.001 по сравнению с группой Sham; ###p < 0.01 по сравнению с группой CHF; ns — статистически незначимо по сравнению с группой CHF. Пожалуйста, нажмите здесь, чтобы просмотреть этот рисунок в большем размере.
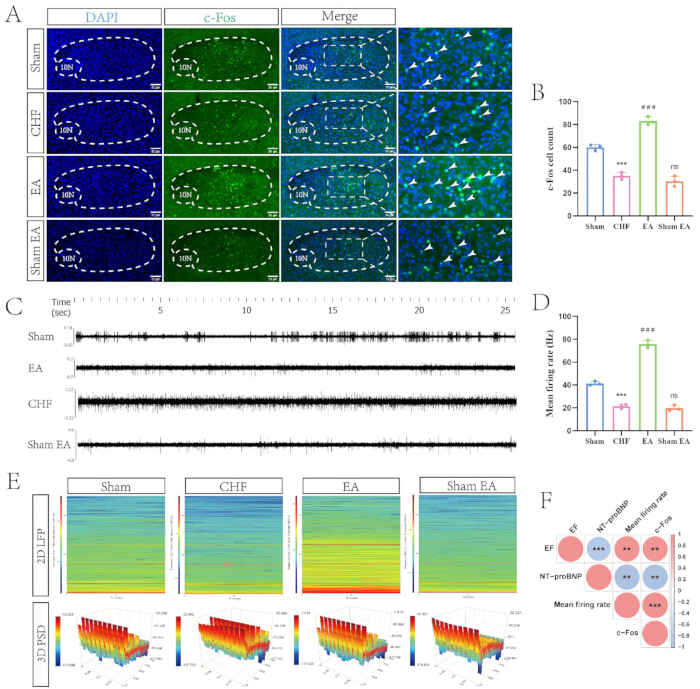
Рисунок 3: Электроакупунктура восстанавливает нейрональную активность в ядре одиночного тракта у крыс с хронической сердечной недостаточностью. (A) Репрезентативные изображения иммунофлуоресценции экспрессии c-Fos в NTS в разных группах. Ядра контрастированы DAPI, c-Fos-положительные клетки окрашены зеленым цветом. Пунктирные линии очерчивают анатомическую область, белые стрелки указывают на репрезентативные c-Fos-положительные нейроны (масштабная линейка = 30 µm). (B) Количественный анализ количества c-Fos-положительных клеток в разных группах (биологические повторности n = 3, среднее ± SD). ***p < 0.01 по сравнению с группой Sham; ###p < 0.001 по сравнению с группой CHF; ns — статистически не значимо по сравнению с группой CHF. (C) Репрезентативные записи электрофизиологических спайковых разрядов in vivo из NTS в разных группах. (D) Количественный анализ средней частоты нейрональных разрядов в разных группах (биологические повторности n = 3, среднее ± SD). ***p < 0.01 по сравнению с группой Sham; ###p < 0.01 по сравнению с группой CHF; ns — статистически не значимо по сравнению с группой CHF. (E) Репрезентативные 2D-спектрограммы локального полевого потенциала и 3D-топографии спектральной плотности мощности, иллюстрирующие энергию нейронных осцилляций в NTS. (F) Корреляционная матрица, оценивающая взаимосвязь между периферическими сердечно-сосудистыми фенотипами и параметрами центральной нейрональной активности. Красные и синие круги указывают на положительную и отрицательную корреляцию соответственно. **p < 0.01; ***p < 0.01. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
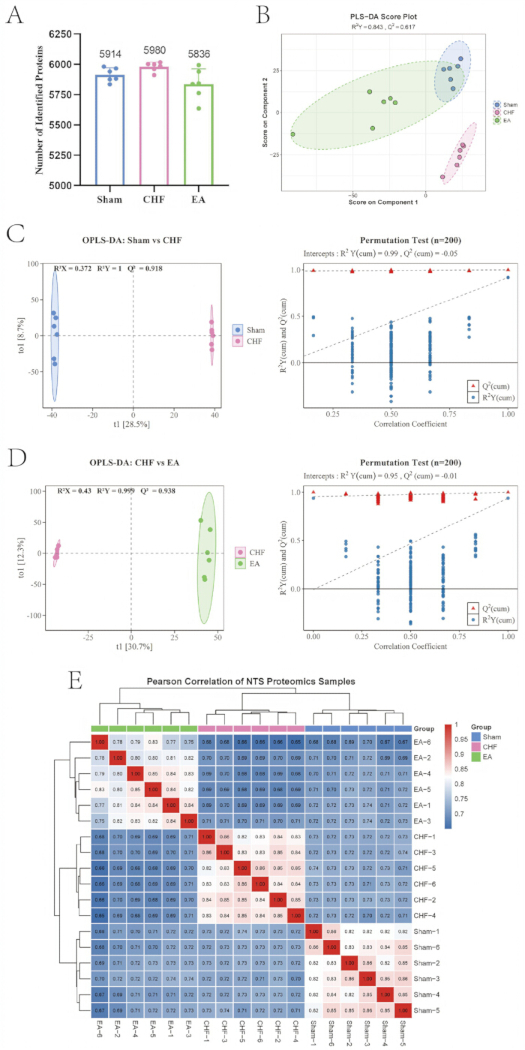
Рисунок 4: Контроль качества и многомерный статистический анализ протеомных профилей в одиночном ядре блуждающего нерва. (A) Количественный обзор идентифицированных белков в 3 экспериментальных группах (биологические повторности n = 6). (B) График оценок дискриминантного анализа методом частичных наименьших квадратов, иллюстрирующий общее пространственное распределение и разделение групп. (C) График оценок ортогонального дискриминантного анализа методом частичных наименьших квадратов и соответствующий пермутационный тест, подтверждающий надежность модели для сравнения групп Sham и CHF (20 пермутаций). (D) График оценок ортогонального дискриминантного анализа методом частичных наименьших квадратов и соответствующий пермутационный тест, подтверждающий надежность модели для сравнения групп CHF и EA (200 пермутаций). (E) Теплокарта иерархической кластеризации коэффициентов корреляции Пирсона, оценивающая внутригрупповую воспроизводимость и межгрупповую вариабельность всех протеомных образцов. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
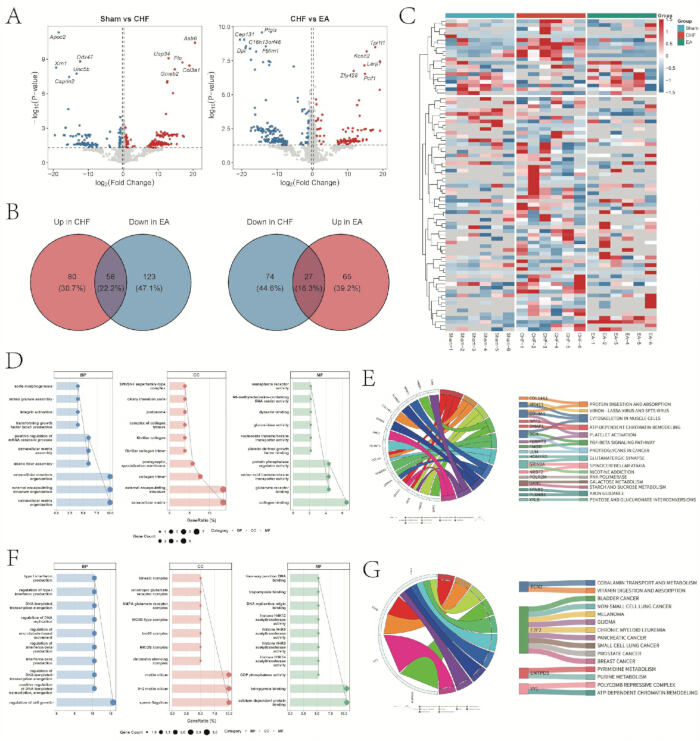
Рисунок 5: Идентификация и анализ функционального обогащения основных дифференциально экспрессируемых белков, модулируемых электроакупунктурой в ядре одиночного тракта. (A) Графики «вулкан» (volcano plots), иллюстрирующие распределение белков с повышенной и пониженной экспрессией при сравнениях Sham против CHF и CHF против EA. (B) Диаграммы Венна, отображающие анализ пересечений для идентификации основных белков с пониженной и повышенной экспрессией после воздействия EA. (C) Тепловая карта иерархической кластеризации профилей экспрессии основных дифференциально экспрессируемых белков. (D) Пузырьковые диаграммы GO, детализирующие обогащенные биологические процессы, клеточные компоненты и молекулярные функции для подмножества белков с пониженной экспрессией. (E) Хордовые и диаграммы Санки KEGG, отображающие сигнальные пути, обогащенные белками с пониженной экспрессией. (F) Пузырьковые диаграммы GO, детализирующие обогащенные биологические процессы, клеточные компоненты и молекулярные функции для подмножества белков с повышенной экспрессией. (G) Хордовые и диаграммы Санки KEGG, отображающие сигнальные пути, обогащенные белками с повышенной экспрессией. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
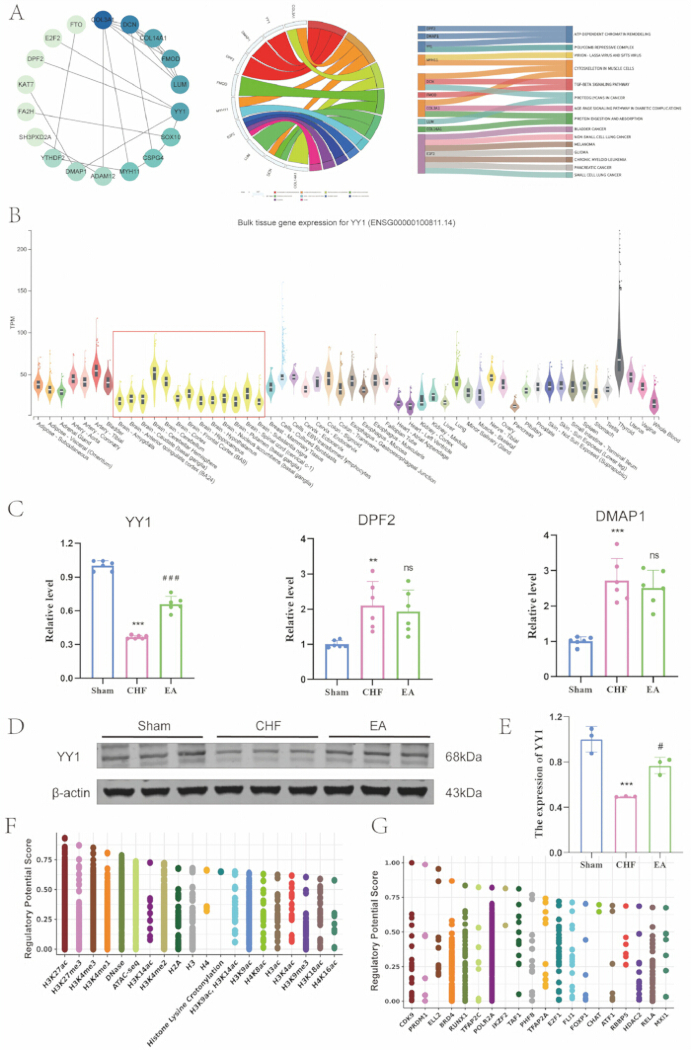
Рисунок 6: Топология сети, профилирование экспрессии в тканях и молекулярная валидация позволяют идентифицировать YY1 как потенциальную мишень, связанную с электроакупунктурой. (A) Сеть белок-белковых взаимодействий, хордовая диаграмма и диаграмма Санке для идентифицированных хабовых белков. (B) Профиль экспрессии YY1 в тканях человека, полученный из базы данных GTEx, где красной рамкой выделены ткани головного мозга. (C) Количественный анализ экспрессии мРНК YY1, DPF2 и DMAP1 в NTS в разных группах (биологические повторности n = 6, среднее ± SD). **p < 0.01, ***p < 0.01 по сравнению с группой Sham; ###p < 0.01 по сравнению с группой CHF; ns — статистически не значимо по сравнению с группой CHF. (D) Репрезентативные полосы вестерн-блоттинга для YY1 и β-actin в NTS в разных группах. (E) Количественный анализ экспрессии белка YY1 в разных группах (биологические повторности n = 3, среднее ± SD). ***p < 0.01 по сравнению с группой Sham; #p < 0.05 по сравнению с группой CHF. (F) Биоинформационное предсказание эпигенетических модификаций гистонов, регулирующих локус YY1, на основе показателей регуляторного потенциала. (G) Биоинформационное предсказание вышестоящих факторов транскрипции, регулирующих локус YY1, на основе показателей регуляторного потенциала. Нажмите здесь, чтобы просмотреть этот рисунок в большем размере.
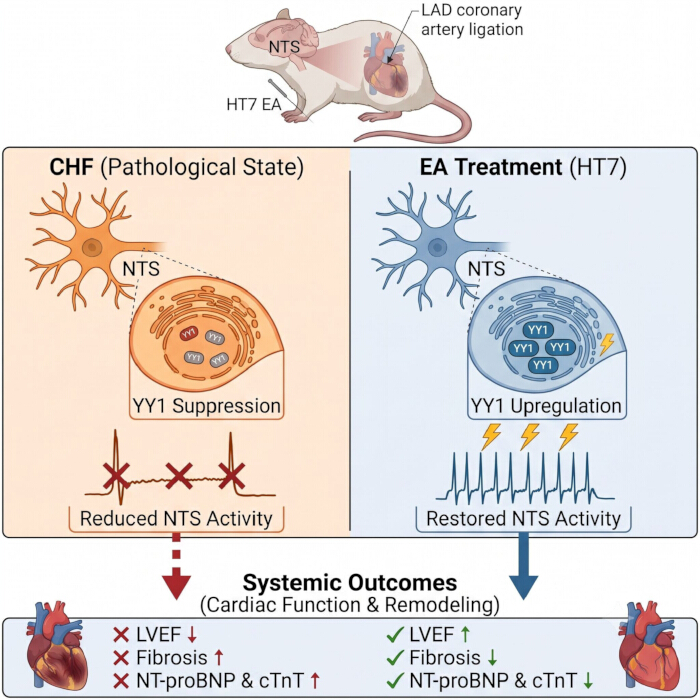
Рисунок 7: Предлагаемая модель связи между электроакупунктурой в точке HT7, повышением экспрессии YY1, восстановлением нейронной активности в ядре одиночного тракта и улучшением состояния при хронической сердечной недостаточности. (Слева) Патологическое состояние: в модели ХСН, индуцированной перевязкой левой передней нисходящей (LAD) коронарной артерии, нейронная активность в NTS снижена, что сопровождается подавлением транскрипционного фактора YY1. Это центральное нейронное торможение связано с патологическим ремоделированием сердца, проявляющимся в снижении LVEF, усилении фиброза миокарда и повышении уровня сывороточных маркеров сердечной недостаточности. (Справа) Лечение ЭА: воздействие ЭА в акупунктурной точке HT7 повышает экспрессию YY1 в NTS и восстанавливает активность нейронов. Эта центральная нейромодуляция оказывает кардиопротекторное действие, ослабляя патологическое ремоделирование и улучшая системную функцию сердца. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
Дополнительный рисунок 1: Оценка сердечной функции протеомной когорты и профили экспрессии потенциальных хаб-генов в тканях человека. (A) Количественный анализ LVEF и LVFS в разных группах (биологические повторности n = 12, среднее ± SD). ***p < 0.01 по сравнению с группой Sham; ###p < 0.001 по сравнению с группой CHF. (B-J) Профили экспрессии потенциальных хаб-генов в тканях человека, полученные из базы данных GTEx, включая COL3A1 (B), DMAP1 (C), DPF2 (D), FMOD (E), MYH1 (F), E2F2 (G), LUM (H), DCN (I) и COL14A1 (J).Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительная таблица 1: Комплексная матрица идентификации и количественного анализа глобального протеома в ядре одиночного тракта.В этой таблице представлен полный набор данных количественного протеомного анализа по всем экспериментальным когортам. Важные столбцы включают Protein ID (номер доступа UniProt), Gene (символ гена), First.Protein.Description (функциональная аннотация) и значения нормализованной интенсивности белков для каждого биологического повтора в группах Sham, CHF и EA (n = 6 в каждой группе).Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительная таблица 2: Показатели важности переменных в проекции (VIP) по методу OPLS-DA для белков при сравнении групп Sham и CHF.В этой таблице перечислены признаки, которые позволяют разграничить группы Sham и CHF согласно модели OPLS-DA. Основные столбцы включают feature (идентификатор конкретного белка/гена) и VIP_value (важность переменной в проекции), который указывает на вклад каждого признака в разделение групп (пороговое значение VIP > 1.0).Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительная таблица 3: Показатели важности переменных в проекции (VIP) OPLS-DA для белков при сравнении групп ХСН и ЭА.В этой таблице перечислены признаки, которые отличают группы ХСН и ЭА на основе модели OPLS-DA. Аналогично таблице S2, она включает столбец с признаками и соответствующее значение VIP_value, выделяя признаки, наиболее чувствительные к воздействию ЭА.Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительная таблица 4: Подробный список 85 основных дифференциально экспрессируемых белков, модулируемых электроакупунктурой. В этой таблице представлено пересечение белков, экспрессия которых была значительно изменена при ХСН и впоследствии восстановлена в результате вмешательства с помощью ЭА. Важные столбцы включают Protein_ID, Gene, log2FC (log2 кратности изменения, указывающий на вариацию экспрессии), P_value для статистической значимости (порог p < 0,05) и VIP_value для оценки вклада в модель.Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительная таблица 5: Анализ обогащения генных онтологий для подмножества снижающих экспрессию основных белков.В данной таблице представлена функциональная аннотация генных онтологий (GO) для 58 белков, экспрессия которых была снижена под воздействием EA. Важные столбцы включают ONTOLOGY (разделенный на категории: Биологический процесс [BP], Клеточный компонент [CC] и Молекулярная функция [MF]), функциональное описание (Description), p.adjust (скорректированное значение p для множественного тестирования) и geneID, который соответствует конкретным генам, обогащенным в каждом термине.Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительная таблица 6: Анализ обогащения путей Kyoto Encyclopedia of Genes and Genomes для подмножества сниженных основных белков. В этой таблице представлены обогащенные сигнальные каскады для 58 белков со сниженным уровнем экспрессии. Основные столбцы включают название пути (Term), скорректированное значение p-value, указывающее на статистическую значимость обогащения, и конкретные пересекающиеся гены (Genes), участвующие в каждом пути.Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительная таблица 7: Анализ обогащения Gene Ontology для подмножества повышенно экспрессируемых основных белков. В этой таблице представлена функциональная аннотация Gene Ontology (GO) для 27 белков, экспрессия которых повысилась под воздействием EA. Формат и определения столбцов (ONTOLOGY [BP, CC, MF], Description, p.adjust, geneID) идентичны тем, что подробно описаны в таблице S5.Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительная таблица 8: Анализ обогащения путей Kyoto Encyclopedia of Genes and Genomes (KEGG) для подмножества ап-регулируемых основных белков.В данной таблице представлены обогащенные сигнальные каскады для 27 ап-регулируемых белков. Формат и определения столбцов (Термин, Скорректированное значение p, Гены) идентичны тем, что подробно описаны в таблице S6.Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительная таблица 9: Показатели топологической связности 18 хабовых белков, полученные из сети белок-белковых взаимодействий.В данной таблице обобщены топологические параметры сети, использованные для идентификации основных хабовых генов. Ключевые столбцы включают название гена и центральные метрики сети, такие как степень (Degree), посредничество (Betweenness Centrality) и близость (Closeness Centrality), которые количественно определяют относительную значимость и связность каждого узла внутри биологической сети.Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительная таблица 10: Анализ обогащения путей KEGG (Киотская энциклопедия генов и геномов) для 18 белков-хабов сети.В этой таблице представлены специфические сигнальные пути, обогащенные исключительно 18 выявленными белками-хабами. Основные столбцы включают название пути (Term), скорректированное значение p для определения значимости и соответствующие гены, обеспечивающие функциональное обогащение.Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительный файл 1: R-скрипты, использованные для анализа и визуализации данных, и необрезанные изображения вестерн-блоттинга. Дополнительный файл содержит R-скрипты, использованные для анализа корреляции Пирсона, построения двойного графика «вулкан» (volcano plot) и идентификации белков с инверсией экспрессии под действием EA, анализа обогащения Gene Ontology (GO), построения тепловой карты иерархической кластеризации, визуализации обогащения Kyoto Encyclopedia of Genes and Genomes (KEGG), ортогонального анализа дискриминантных функций методом частичных наименьших квадратов (OPLS-DA) и пермутационного тестирования, анализа дискриминантных функций методом частичных наименьших квадратов (PLS-DA), построения тепловой карты корреляции протеомных образцов и анализа диаграмм Венна.Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Обсуждение
The present study investigated the central mechanisms of EA at the HT7 acupoint in the rat model of CHF. Physiological and histological data indicated that EA improved LVEF and attenuated myocardial fibrosis. In parallel with these peripheral changes, in vivo electrophysiological recordings and neural mapping supported that EA restored neuronal firing rates within the NTS. Through mass spectrometry-based proteomics, the molecular landscape of the NTS was mapped, and 85 differentially expressed proteins whose abnormal expression patterns were modulated by the intervention were identified. Subsequent topological analysis and tissue expression profiling isolated the transcription factor YY1 as a candidate biological target. Molecular validation indicated that EA upregulates YY1 expression. These findings construct a central molecular network for EA and suggest YY1 as a potential neurobiological target linking central autonomic regulation with the amelioration of CHF. The comprehensive central mechanisms are summarized in Figure 7.
The NTS serves as the integration center for central cardiovascular reflexes and autonomic regulation21,22. In the context of cardiovascular diseases, CHF involves sustained autonomic imbalance characterized by sympathetic overactivation and vagal withdrawal23. During the pathophysiological progression of this condition, the sensitivity of peripheral baroreceptors decreases, which reduces excitatory afferent inputs to the NTS24. Consequently, this neural blunting leads to a diminished activation of the caudal ventrolateral medulla and a subsequent disinhibition of the rostral ventrolateral medulla, culminating in excessive central sympathetic outflow25. In parallel with these mechanisms, the electrophysiological and histological data indicated that the spontaneous firing frequency and c-Fos expression of NTS neurons were reduced in the CHF state. As a targeted neuromodulation approach, EA-generated somatosensory afferent signals are theoretically proposed to be transmitted through peripheral nerves to the dorsal horn of the spinal cord and to ascend to brainstem structures, including the NTS26. The results indicated that EA intervention at the HT7 acupoint increased neural oscillatory energy and restored neuronal firing rate in this brain region. Physiologically, the restored NTS neuronal activity facilitates activation of inhibitory interneurons in the medulla, thereby suppressing hyperactive sympathetic premotor neurons while concurrently enhancing parasympathetic efferent signals27. Linking these central neural mechanisms to peripheral cardiovascular phenotypes, the correlation analysis supported that this central neural activation was positively associated with LVEF and negatively associated with the peripheral heart failure marker NT-proBNP. These findings indicate that EA may exert its peripheral cardioprotective effects by alleviating the pathological inhibition of NTS neurons and promoting central autonomic homeostasis.
To elucidate the molecular pathways underlying this central neuromodulation, the proteomic landscape of the NTS was analyzed. Mass spectrometry-based proteomics identified 85 proteins whose expression patterns were modulated by the intervention. Functional stratification revealed that a subset of 58 proteins downregulated by EA is prominently involved in extracellular matrix organization and the transforming growth factor β-signaling pathway. The extracellular matrix in the central nervous system forms an organized lattice, including perineuronal nets that physically enwrap synaptic terminals and regulate local ion homeostasis28. Under chronic pathological stress, such as heart failure, aberrant extracellular matrix deposition creates a restrictive microenvironment within the brainstem29. This structural remodeling physically impedes synaptic structural plasticity and maintains neural circuits in a state of sympathetic hyperactivity30. By modulating the expression of structural proteins, such as COL3A1 and COL14A1 alongside DCN, EA remodels this pathological extracellular barrier. Concurrently, the enrichment of related signaling cascades—categorized under the "cytoskeleton in muscle cells" KEGG pathway, which indicates general structural and integrin-mediated alterations rather than implying the actual presence of myocytes within the NTS—suggests that extracellular changes are transmitted into the intracellular compartment31. This mechanotransduction signaling restores the dynamic turnover of dendritic spines and regulates synaptic transmission and efficacy in the autonomic reflex arc32.
Beyond extracellular structural reorganization, functional annotation of the 27 proteins upregulated by the intervention indicated the involvement of ATP-dependent chromatin remodeling. Sustained cardiovascular autonomic imbalance is maintained by epigenetic restrictions, where condensed chromatin limits the accessibility of promoter regions for genes regulating neural inhibition33. ATP-dependent chromatin remodeling complexes use energy from ATP hydrolysis to slide or evict nucleosomes, thereby opening genomic loci for active transcription34. The enrichment of this pathway, alongside the positive regulation of DNA-templated transcription elongation, indicates that EA acts at the epigenetic level to remodel disease-associated transcriptional memory35. The structural relaxation of the extracellular microenvironment translates into nuclear epigenetic modifications, facilitating the coordinated transcription of neuroprotective gene networks bridged by key proteins such as YY1 and E2F236,37. To systematically isolate the biological target mediating the therapeutic efficacy of EA, a stepwise screening strategy was applied. The 85 differentially expressed proteins were filtered through topological network mapping and pathway enrichment analysis to identify 10 prominent hub candidates. Subsequent tissue expression profiling verified that only YY1 and DPF2, alongside DMAP1, are expressed in human brain tissues. In vivo molecular validation further excluded DPF2 and DMAP1 due to a lack of transcriptional responsiveness, confirming YY1 as a highly responsive candidate target. YY1 is a zinc-finger transcription factor that exerts control over central nervous system development and neuronal plasticity38. In mature neural circuits, YY1 functions as a neuroprotective regulator by maintaining mitochondrial homeostasis and mitigating oxidative stress39. During the pathological progression of CHF, sustained hemodynamic stress and peripheral inflammation induce metabolic dysfunction and structural damage in brainstem neurons40. The experimental data indicated that YY1 expression is suppressed in the NTS under CHF conditions, whereas EA intervention counteracted this pathological suppression. Based strictly on computational bioinformatics predictions rather than empirical validation, YY1 is hypothesized to interact with active histone modifications, such as H3K27ac and H3K4me3, to orchestrate the transcription of downstream neuroprotective gene networks 41. The restoration of YY1 activity may facilitate repair of neuronal metabolic pathways and promote the structural integrity of synaptic connections. Consequently, the modulated NTS neurons improve their capacity to process peripheral baroreflex inputs and exert inhibitory control over descending sympathetic premotor pathways, which ameliorates the cardiovascular deterioration associated with CHF42.
Despite these discoveries, several methodological limitations warrant rigorous consideration. First, the current experimental design relied on correlational omics and expression profiling without direct functional evidence. Future investigations must incorporate targeted genetic manipulations, such as viral vector-mediated knockdown or overexpression within the NTS, alongside empirical ChIP-seq or CUT&Tag assays, to definitively establish the causal role of YY1 and validate its downstream epigenetic networks. Second, excluding the Sham EA cohort from the proteomics phase limits our ability to definitively rule out molecular signatures induced by nonspecific somatosensory stimulation. However, comparing the CHF and EA groups relative to the Sham baseline is considered sufficient to isolate EA-specific molecular changes in the current design. This is because all non-intervention cohorts, specifically the Sham and CHF groups, underwent strict baseline standardization of daily isoflurane anesthesia exposure, which effectively minimized the most profound non-specific neurological stress confounders. Furthermore, our initial functional data showed that Sham EA did not elicit significant cardiovascular or neural activation relative to the CHF group, suggesting that superficial somatosensory stimulation without electrical current does not reach the threshold required to drive substantial central molecular reprogramming. Third, the study lacks standard non-acupoint control groups, which prevents the definitive confirmation of HT7 acupoint specificity. Furthermore, the proposed HT7-to-NTS afferent neural pathways remain speculative without direct neural tracing or nerve-blockade validation. Finally, the in vivo electrophysiology evaluated global NTS activity at a single time point without distinguishing between specific excitatory and inhibitory neuronal subpopulations, nor did it assess long-term neural plasticity. Subsequent research must address these critical gaps to refine the central neurobiological mechanisms.
Ultimately, by integrating these findings while acknowledging their correlational nature, this research provides a valuable molecular framework indicating that EA mitigates pathological cardiac remodeling by restoring NTS neuronal function. These data highlight YY1 as a highly responsive candidate target for central cardiovascular neuromodulation, offering novel neurobiological insights for the clinical application of acupuncture therapy in heart failure management.
Раскрытие информации
Все авторы заявляют об отсутствии конфликта интересов. Авторы также заявляют, что при подготовке любой части рукописи инструменты искусственного интеллекта не использовались.
Благодарности
Мы выражаем искреннюю благодарность всем исследователям, принявшим участие в данной работе, и с глубоким уважением признаем жертву подопытных животных. Эта работа была поддержана Национальной ключевой программой исследований и разработок Китая (гранты № 202YFC35050 и 2022YFC350502) и Университетской программой поддержки талантов Xu Nenggui (грант № DT24002). Спонсоры не принимали участия в планировании исследования, сборе и анализе данных, принятии решения о публикации или подготовке рукописи.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| Взрослые самцы крыс линии Sprague-Dawley | Liaoning Changsheng Biotechnology Co., Ltd. | № SCXK (LIAO) 2025-01 | RGD_70508 |
| Иглы для акупунктуры | Suzhou Tianxie Acupuncture Instrument Co., Ltd. | — | — |
| Монтирующая среда с антифейдинговым агентом и DAPI | Aibixin Biotechnology Co., Ltd. | abs9235-25мл | — |
| Первичные антитела к YY1 | Proteintech Group, Inc | 6281-1-Ig | AB_288164 |
| Первичные антитела к бета-актину | 609-1-Ig | AB_2687938 | |
| Бычий сывороточный альбумин (БСА) | Sigma Odellie Trading Co., Ltd. | V9093 | — |
| Набор для определения концентрации белка методом BCA | Shanghai Biyuntian Biotechnology Co., Ltd. | P012S | — |
| кроличьи моноклональные антитела c-Fos (9F6) | Sai Xin Tong Biological Reagents Co., Ltd. | 250S | AB_247211 |
| Cytoscape | Консорциум Cytoscape | версия 3.2.1 | SCR_03032 |
| Универсальная мастер-смесь ChamQ Universal SYBR qPCR Master Mix | Vazyme Biotech Co., Ltd. | Q71-02 | — |
| Аппарат для электроакупунктуры | Nanjing Jisheng Medical Technology Co., Ltd. | HANS-20A | — |
| Восьмиканальный (2 × 4) матрица микроэлектродов | Kewa Suzhou Medical Technology Co., Ltd. | - | — |
| Набор для ИФА (NT-proBNP) | Wuhan Enzyme Immuno-Biotechnology Co., Ltd. | MM-0329R1 | — |
| Набор для ИФА (cTnT) | MM-0795R2 | — | |
| Набор для усиленной хемилюминесценции | Proteintech Group, Inc | PK1001 | — |
| козий антитело к IgG кролика | Aimee Technology Co., Ltd. | 111-545-003 | AB_2338046 |
| вторичные антитела (козьи антимышиные IgG), конъюгированные с HRP | BeiJing Cowin Biotech Co.,Ltd. | CW0102 | Данные отсутствуют |
| HiScript III RT SuperMix | Vazyme Biotech Co., Ltd. | R323-01 | — |
| Программное обеспечение ImageJ | Национальные институты здравоохранения | версия 4.0 | SCR_03070 |
| Система визуализации | Bio-Rad Laboratories, Inc | ChemiDoc MP | |
| Многоканальный наркозный аппарат для мелких лабораторных животных | RWD Life Science Co., Ltd | R510-2-10 | — |
| Микроскоп | Olympus Optical Co., Ltd. | DP72 | — |
| программное обеспечение NeuroExplorer | Beijing Plexon Technology Co., Ltd. | версия 5.0 | SCR_01818 |
| программное обеспечение Offline Sorter | Beijing Plexon Technology Co., Ltd. | версия 4.7.2 | SCR_0012 |
| Orbitrap Astral | Thermo Fisher Scientific | — | — |
| Стандартный отвод конечностей II PowerLab система | AD Instruments International Trading Co., Ltd. | ML18 | — |
| Колонка-ловушка PepMap Neo Trap | Thermo Fisher Scientific | — | — |
| Ингибиторы фосфатаз | Shanghai Biyuntian Biotechnology Co., Ltd. | P1081 | — |
| программное обеспечение R | — | версия 4.5.2 | SCR_01905 |
| Буфер для лизиса RIPA | Yeasen Biotechnology Co., Ltd. | 2015ES60 | — |
| RNAiso Plus | TaKaRa Biotechnology Co., Ltd. | 9108 | — |
| Цифровая система ультразвукового исследования для мелких животных | Feiyino Technology Co., Ltd. | Лаборатория VINNO6 | — |
| Статистическое программное обеспечение | Программное обеспечение GraphPad | Версия 8.0 | SCR_02798 |
| Многоканальный сбор данных OmniPlex Система | Beijing Plexon Technology Co., Ltd. | версия 1.20.0 | — |
| Triton X-10 | Beijing Solab Technology Co., Ltd. | 22298142 | — |
| Система СВЭЖХ Vanquish Neo | Thermo Fisher Scientific | — | — |
| µPAC Колонка Neo High Throughput | Thermo Fisher Scientific | — | — |
Ссылки
- Valente V, et al. The global epidemiology of heart failure: a comprehensive and contemporary review. Eur J Heart Fail. 2026.
- Triposkiadis F, et al. The sympathetic nervous system in heart failure physiology, pathophysiology, and clinical implications. J Am Coll Cardiol. 2009;54(19):1747-62.
- Arshad MS, et al. Sympathetic nervous system in heart failure: targets for treatments. Curr Hypertens Rep. 2025;27(1):20.
- Fan H, et al. The hypotensive role of acupuncture in hypertension: clinical study and mechanistic study. Front Aging Neurosci. 2020;12:138.
- Zuo H, et al. Electroacupuncture alleviates acute myocardial ischemic injury in mice by regulating the β1 adrenergic receptor and post-receptor protein kinase A signaling pathway. Acupunct Med. 2024;42(6):342-55.
- Wu HS, et al. Neural mechanism of HT7 electroacupuncture in myocardial ischemia: critical role of the paraventricular nucleus oxytocin system. Front Neurosci. 2025;19:1678938.
- Kun W, et al. Electroacupuncture ameliorates cardiac dysfunction in myocardial ischemia model rats: a potential role of the hypothalamic-pituitary-adrenal axis. J Tradit Chin Med. 2023;43(5):944-54.
- Xu W, et al. Electroacupuncture ameliorates chronic heart failure: the role of CRH neurons in the paraventricular nucleus of the hypothalamus. Front Neurosci. 2026;20:1741523.
- Andresen MC, Kunze DL. Nucleus tractus solitarius--gateway to neural circulatory control. Annu Rev Physiol. 1994;56:93-116.
- Craft GE, et al. Recent advances in quantitative neuroproteomics. Methods. 2013;61(3):186-218.
- Charan J, Kantharia ND. How to calculate sample size in animal studies? J Pharmacol Pharmacother. 2013;4(4):303-6.
- Zhou J, et al. Electroacupuncture pretreatment mediates sympathetic nerves to alleviate myocardial ischemia-reperfusion injury via CRH neurons in the paraventricular nucleus of the hypothalamus. Chin Med. 2024;19(1):43.
- Litwin SE, et al. Serial echocardiographic assessment of left ventricular geometry and function after large myocardial infarction in the rat. Circulation. 1994;89(1):345-54.
- Shu Q, et al. Electroacupuncture alleviates myocardial ischemia-reperfusion injury by inhibiting hypothalamic paraventricular nucleus neurons projecting to the rostral ventrolateral medulla. Eur J Neurosci. 2024;60(5):4861-76.
- Wan F, et al. Electroacupuncture improves cerebral blood flow in vascular cognitive impairment mice by activating the locus coeruleus-prefrontal cortex circuit. Neuroscience. 2025;583:33-42.
- Xu R, et al. Electroacupuncture ameliorates incisional pain via suppressing IL-33 signaling-related macrophage infiltration and ROS overproduction in incised skin. Chin Med. 2026;21(1):26.
- Quiroga RQ, et al. Unsupervised spike detection and sorting with wavelets and superparamagnetic clustering. Neural Comput. 2004;16(8):1661-87.
- Goldwyn JH, et al. Gain control with A-type potassium current: IA as a switch between divisive and subtractive inhibition. PLoS Comput Biol. 2018;14(7):e1006292.
- Buzsáki G. Large-scale recording of neuronal ensembles. Nat Neurosci. 2004;7(5):446-51.
- Zhang J, Mifflin SW. Responses of aortic depressor nerve-evoked neurones in rat nucleus of the solitary tract to changes in blood pressure. J Physiol. 2000;529(Pt 2):431-43.
- Benarroch EE. The central autonomic network: functional organization, dysfunction, and perspective. Mayo Clin Proc. 1993;68(10):988-1001.
- Scheitz JF, et al. Bidirectional brain-heart interactions in health and disease. Nat Rev Neurol. 2026;22(4):209-25.
- Floras JS. Sympathetic nervous system activation in human heart failure: clinical implications of an updated model. J Am Coll Cardiol. 2009;54(5):375-85.
- Iannetta D, et al. Dissecting the exercise pressor reflex in heart failure: a multi-step failure. Auton Neurosci. 2025;259:103269.
- Sved AF, et al. Baroreflex dependent and independent roles of the caudal ventrolateral medulla in cardiovascular regulation. Brain Res Bull. 2000;51(2):129-33.
- Liu Y, et al. Neurophysiological basis of electroacupuncture stimulation in the treatment of cardiovascular-related diseases: vagal interoceptive loops. Brain Behav. 2024;14(10):e70076.
- Zhou W, Benharash P. Effects and mechanisms of acupuncture based on the principle of meridians. J Acupunct Meridian Stud. 2014;7(4):190-3.
- Fawcett JW, et al. The roles of perineuronal nets and the perinodal extracellular matrix in neuronal function. Nat Rev Neurosci. 2019;20(8):451-65.
- Moon S, Ito Y. Vasculature cells control neuroglial co-localization and synaptic connection in a central nervous system tissue mimic system. Hum Cell. 2023;36(6):1938-47.
- Ferrer-Ferrer M, Dityatev A. Shaping synapses by the neural extracellular matrix. Front Neuroanat. 2018;12:40.
- Rabinowitch I, et al. Understanding neural circuit function through synaptic engineering. Nat Rev Neurosci. 2024;25(2):131-9.
- McGeachie AB, et al. Stabilising influence: integrins in regulation of synaptic plasticity. Neurosci Res. 2011;70(1):24-9.
- Qiu L, et al. RNA modification: mechanisms and therapeutic targets. Mol Biomed. 2023;4(1):25.
- Clapier CR, et al. Mechanisms of action and regulation of ATP-dependent chromatin-remodelling complexes. Nat Rev Mol Cell Biol. 2017;18(7):407-22.
- Du W, et al. Mechanisms of chromatin-based epigenetic inheritance. Sci China Life Sci. 2022;65(11):2162-90.
- Rashid F, et al. Mechanomemory of nucleoplasm and RNA polymerase II after chromatin stretching by a microinjected magnetic nanoparticle force. Cell Rep. 2024;43(7):114462.
- Weintraub AS, et al. YY1 is a structural regulator of enhancer-promoter loops. Cell. 2017;171(7):1573-88.e28.
- Zurkirchen L, et al. Yin Yang 1 sustains biosynthetic demands during brain development in a stage-specific manner. Nat Commun. 2019;10(1):2192.
- Cunningham JT, et al. mTOR controls mitochondrial oxidative function through a YY1-PGC-1alpha transcriptional complex. Nature. 2007;450(7170):736-40.
- van Weperen VYH, Vaseghi M. The brain-heart axis: effects of cardiovascular disease on the CNS and opportunities for central neuromodulation. Nat Rev Neurosci. 2026;27(3):159-77.
- Lam JC, et al. YY1-controlled regulatory connectivity and transcription are influenced by the cell cycle. Nat Genet. 2024;56(9):1938-52.
- Montuoro S, et al. Neuroimmune cross-talk in heart failure. Cardiovasc Res. 2025;121(4):550-67.