Интегрированный анализ транскриптомов всего пула клеток и отдельных клеток позволил выявить шесть диагностических биомаркеров келоидов, связанных с метаболизмом гема. Экспериментальная проверка подтвердила дисрегуляцию рецептора 1 подгруппы C вируса лейкоза кошек (FLVCR1) в фибробластах келоидов, а молекулярный докинг определил (+)-галлокатехин в качестве потенциального соединения, взаимодействующего с FLVCR1, что обосновывает необходимость дальнейших функциональных исследований.
Исследовательская статья
Идентификация биомаркеров, связанных с метаболизмом гема в келоидах, с помощью транскриптомного анализа и культивируемых фибробластов человека
В этой статье
Краткое содержание
Аннотация
Келоид представляет собой фибропролиферативное заболевание с высокой частотой рецидивов и неясным патогенезом, для которого отсутствуют эффективные терапевтические мишени. Последние данные свидетельствуют о том, что метаболическое перепрограммирование, в частности в метаболизме гема, может стимулировать фиброз. В данной работе исследуется роль метаболизма гема, с особым вниманием к рецептору 1 подгруппы C вируса лейкоза кошек (FLVCR1), в патогенезе келоидов, а также изучается его диагностический и терапевтический потенциал. Мы проанализировали наборы данных bulk RNA-seq и данные секвенирования РНК единичных клеток (scRNA-seq). С помощью анализа дифференциальной экспрессии, метода наименьшего абсолютного сжатия и отбора (LASSO) и моделей случайного леса (RF) были определены диагностические биомаркеры, связанные с метаболизмом гема. Проведены анализ иммунной инфильтрации, картирование единичных клеток, построение сети микроРНК (miRNA) и молекулярный докинг с соединениями традиционной китайской медицины. Было выявлено шесть биомаркеров, связанных с метаболизмом гема, на основе которых построена диагностическая номограмма с высокой точностью. FLVCR1, обогащенный в эндотелиальных клетках и меланоцитах, отрицательно коррелировал с Т-фолликулярными хелперными клетками, что указывает на иммунометаболический перекрест. Анализ регуляторной сети miRNA выявил пять miRNA, совместно воздействующих на все шесть биомаркеров. Молекулярный докинг определил (+)-галлокатехин как высокоаффинный лиганд FLVCR1. Эти результаты указывают на связь между связанным с FLVCR1 метаболизмом гема и иммунными изменениями в патогенезе келоидов. Панель биомаркеров продемонстрировала исследовательский диагностический потенциал, а (+)-галлокатехин был идентифицирован как кандидат в соединения, взаимодействующие с FLVCR1 и требующие дальнейшей валидации. Данное исследование переосмысливает келоид в рамках метабо-фиброзного спектра и предлагает метаболическое иммунное вмешательство в качестве новой терапевтической стратегии.
Введение
Келоид — это фибропролиферативное заболевание, характеризующееся избыточным отложением внеклеточного матрикса, выходящим за пределы первоначального повреждения кожи; оно встречается у 4–16% населения мира, при этом значительно более высокая распространенность наблюдается среди лиц африканского, азиатского и испаноязычного происхождения1,2. Несмотря на гистологически доброкачественную природу, келоид вызывает значительную физическую и психосоциальную нагрузку из-за постоянного зуда, боли, функциональной контрактуры и косметического дефекта. Современные методы терапии, включая интралезиональное введение кортикостероидов, хирургическое иссечение, лучевую и лазерную терапию, остаются субоптимальными, а частота рецидивов при монотерапии превышает 50%3,4,5. Этот терапевтический тупик подчеркивает фундаментальный пробел в нашем понимании патогенеза келоидов, особенно в отношении вышестоящих факторов, которые инициируют и поддерживают фибротический каскад за пределами канонической профибротической сигнализации.
Современные исследования преимущественно сосредоточены на канонических путях, таких как сигнализация TGF-β/Smad и аберрантная активация фибробластов6,7,8. Хотя инфильтрация иммунных клеток — в частности, макрофагов M2-поляризации, регуляторных T-клеток и дисрегулированных дендритных клеток — была задокументирована в тканях келоидов9,10, в данных работах иммунные изменения в основном рассматриваются как следствия дисфункции фибробластов, а не как первичные механизмы ее запуска. Критически важным является то, что метаболические программы, которые могут активно формировать это иммунофибротические взаимодействие, остаются совершенно неизученными в патогенезе келоидов11,12,13. Этот пробел в знаниях особенно заметен с учетом новых парадигм фиброзных заболеваний, в которых метаболическое перепрограммирование служит главным регулятором ремоделирования тканей.
Метаболическое перепрограммирование в последнее время стало центральным узлом фиброгенеза в различных системах органов. При легочном и печеночном фиброзе нарушение гомеостаза гема — вследствие измененной экспрессии транспортеров, скавенджеров или биосинтетических ферментов — вызывает окислительный стресс, ферроптоз и стерильное воспаление, которые напрямую стимулируют отложение коллагена14. Накопление гема активирует инфламмасому NLRP3, что ведет к активации фибробластов, в то время как дефицит рецептора 1 подгруппы C вируса лейкоза кошек (FLVCR1) усугубляет фиброз тканей из-за некупированной токсичности гема. Эти данные позволяют рассматривать метаболизм гема не просто как поддерживающий процесс, а как динамический сигнальный центр, способный инициировать фибротические каскады — парадигма, которая еще не была протестирована при кожных фибропролиферативных заболеваниях.
Вероятность гем-опосредованной иммуномодуляции дополнительно подтверждается механистическими данными, полученными на моделях рака и хронического воспаления. Гем функционирует как сигнальная молекула, которая напрямую модулирует судьбу иммунных клеток: он способствует поляризации макрофагов по пути M1-в-M2 через сигналинг TLR4/NF-κB15, влияет на дифференцировку T-клеток посредством Bach2-опосредованной транскрипционной репрессии16 и критически регулирует созревание дендритных клеток через FLVCR1-зависимый экспорт гема17,18. Примечательно, что FLVCR1, экспортер гема из плазматической мембраны, необходимый для клеточного гомеостаза гема, недавно был связан с развитием иммунных клеток и эндотелиальной дисфункцией19. Эти совокупные данные позволяют рассматривать FLVCR1 как вероятное молекулярное звено, связывающее нарушение метаболизма гема с патологическим иммунным ремоделированием — гипотеза, имеющая важное значение для патогенеза келоидов, учитывая их характерное микроокружение, богатое иммунными клетками.
Несмотря на значительные успехи в понимании взаимодействия гема и иммунной системы при других заболеваниях, до сих пор остается совершенно неизученным вопрос о том, служит ли нарушение метаболизма гема первичным фактором, инициирующим или усиливающим патологический иммунный ответ при келоидах. Этот критический пробел в знаниях требует срочного изучения по нескольким взаимосвязанным причинам: келоиды имеют общие характерные патологические признаки — включая стойкое воспаление и окислительный стресс — с метаболически обусловленными фиброзными расстройствами, такими как фиброз легких и печени, что указывает на возможную общность лежащих в их основе регуляторных механизмов. Механизм экспорта гема, центрированный на FLVCR1, был механистически подтвержден в некожных тканях как прямой регулятор ключевых иммунных функций, таких как поляризация макрофагов и созревание дендритных клеток, что создает прочную теоретическую основу для экстраполяции этих данных на иммунопатологию келоидов20. Что наиболее важно, воздействие на эту метаболическую иммунную ось дает возможность сменить парадигму и перейти от нынешней симптоматической терапии, которая лишь подавляет последующие фиброзные эффекты, к потенциальному вмешательству на уровне метаболического источника прогрессирования заболевания21.
Основываясь на этом обосновании, мы выдвинули гипотезу о том, что нарушение метаболизма гема, центрированное на FLVCR1, активно перестраивает иммунное микроокружение, способствуя патогенезу келоидов. Для систематической проверки этой гипотезы мы применили многоуровневый подход, интегрирующий методы массового и одноклеточного транскриптомного анализа: сначала с помощью алгоритмов машинного обучения и верификации на независимой когорте мы идентифицировали и подтвердили диагностические биомаркеры, связанные с метаболизмом гема в тканях келоидов; затем с помощью картирования с одноклеточным разрешением мы определили паттерны пространственной экспрессии этих биомаркеров в различных клеточных компартментах, включая эндотелиальные клетки, фибробласты, меланоциты и субпопуляции иммунных клеток; далее мы установили их количественную корреляцию со специфическими популяциями иммунных клеток для выявления функциональных иммунно-метаболических связей; и, наконец, мы построили регуляторную сеть микроРНК (miRNA), центрированную на FLVCR1, и провели молекулярный докинг с соединениями традиционной китайской медицины для поиска точек терапевтического воздействия. Это комплексное исследование не только раскрывает ранее неизвестную ось «метаболизм гема — иммунитет» в патогенезе келоидов, но и предлагает трансляционно значимую панель биомаркеров с двойным диагностическим и терапевтическим потенциалом для этого резистентного фибропролиферативного заболевания.
Протокол
Этическое одобрение и информированное согласие не требовались для данного исследования, поскольку все данные были получены из общедоступных баз данных, включая Gene Expression Omnibus (GEO), и в исследовании не принимали прямого участия люди или животные.
Сбор и предварительная обработка данных
Гены, связанные с метаболизмом гема, были получены из базы данных молекулярных признаков (Molecular Signatures Database, MSigDB; см. Таблица материалов аНе определено Дополнительная таблица S1), включая наборы генов REACTOME_Heme_Biosynthesis, REACTOME_Heme_Degradation, Wikipathway_Heme_Biosynthesis, REACTOME_Scavenging_Heme_from_Plasma и HALLMARK_Heme_Metabolism. Все наборы данных, проанализированные в данном исследовании, были получены из открытых источников. Два набора данных микромассивов экспрессии генов общего пула были извлечены из базы данных Gene Expression Omnibus (GEO): GSE44270, включающий 18 образцов келоидов и 14 образцов нормальной кожи, и GSE7890, включающий 10 образцов келоидов и 9 образцов нормальной кожи. Наборы GSE44270 и GSE7890 были созданы на платформах GPL6244 и GPL570 соответственно. Файлы матриц серий и соответствующая информация об образцах были загружены и импортированы в среду R. Поскольку значения экспрессии в файлах матриц серий уже были предварительно обработаны и нормализованы авторами исходных данных, дополнительное логарифмическое преобразование (log2) или нормализация между образцами не проводились. Два набора данных обрабатывались независимо и не объединялись, так как они были созданы на разных платформах микромассивов. Предварительная обработка наборов данных проводилась следующим образом (см. раздел Таблица материалов). Генные зонды были сопоставлены с соответствующими символами генов; зонды, не имевшие генных аннотаций или соответствующие нескольким генам, были исключены. Для генов с несколькими наборами зондов значение экспрессии присваивалось на основе самого высокого выявленного уровня экспрессии. Кроме того, были загружены данные секвенирования РНК единичных клеток (scRNA-seq) из набора GSE163973, содержащего три образца келоида, которые были обработаны в соответствии со стандартами контроля качества, определенными в оригинальном исследовании.
Скрининг и валидация диагностических маркеров, связанных с метаболизмом гема, при келоидных рубцах
Для выявления дифференциально экспрессируемых генов, связанных с метаболизмом гема при келоидах, к данным GSE44270 был применен критерий суммы рангов Вилкоксона с использованием функции R wilcox.test при пороге значимости P < 0.05. Для поиска потенциальных диагностических маркеров келоидов были использованы две модели машинного обучения: случайный лес (RF) и логистическая регрессия с методом наименьших абсолютных сокращений и отбора (LASSO). Анализ методом случайного леса проводился с использованием фиксированного случайного числа (random seed = 1) для обеспечения воспроизводимости (см. Таблицу материалов). Модель была построена с использованием 500 деревьев (ntree = 500), а значимость генов оценивалась на основе среднего снижения неоднородности узла (IncNodePurity). В качестве потенциальных биомаркеров, отобранных методом случайного леса, были выбраны гены со значениями значимости более 0.3. Логистическая регрессия LASSO выполнялась при α = 1, в ходе обучения модели оценивалось 50 значений лямбда (см. Таблицу материалов). Оптимальный параметр штрафа был определен с помощью 5-кратной перекрестной проверки с использованием функции cv.glmnet с биномиальным откликом. Гены с ненулевыми коэффициентами регрессии были сохранены в качестве кандидатов, отобранных методом LASSO. В конечном итоге пересечение генов, идентифицированных методами случайного леса и регрессии LASSO, было принято за итоговую диагностическую генную сигнатуру. Итоговая диагностическая генная сигнатура оценивалась с помощью модели на основе номограммы. Весь отбор признаков и оценка параметров модели проводились исключительно в поисковой когорте (GSE44270), а установленная сигнатура из шести генов была дополнительно проверена в независимой валидационной когорте (GSE7890). Диагностическая эффективность номограммы оценивалась путем расчета площади под ROC-кривой (AUC). Для проверки стабильности модели анализ включал 5-кратную перекрестную проверку и 1 000 итераций бутстрэп-ресемплинга, на основе которых был получен скорректированный на оптимизм показатель AUC. Затем для оценки потенциальной чистой выгоды от использования номограммы применялся анализ кривых принятия решений (DCA); однако этот результат интерпретировался с осторожностью в связи с малым размером выборки.
Инфильтрация иммунных клеток и корреляционный анализ
Обогащение иммунными клетками оценивали с помощью анализа обогащения наборов генов для отдельных образцов (ssGSEA) (см. Таблицу материалов). Матрица сигнатур иммунных клеток была взята из ранее опубликованного исследования Charoentong et al.22 и содержала 782 маркерных гена, представляющих 28 популяций адаптивных и врожденных иммунных клеток. Анализ проводили с использованием гауссова ядра для непрерывных нормализованных значений экспрессии микрочипов. После сопоставления маркерных генов с матрицей экспрессии требовался минимальный размер набора генов, равный 10; полученные показатели ssGSEA были нормализованы. Все остальные настройки были оставлены по умолчанию. Впоследствии рассчитывали коэффициенты корреляции Пирсона для оценки взаимосвязи между показателями обогащения иммунными клетками и экспрессией диагностических генов. Полученную корреляционную матрицу визуализировали в виде корреляционного графика, а отдельные выявленные ассоциации дополнительно представили в виде леденцовых диаграмм (lollipop plots) (см. Таблицу материалов).
Обработка и анализ данных секвенирования РНК единичных клеток
Данные секвенирования РНК единичных клеток были получены из набора GSE163973; в настоящий анализ были включены только три образца келоидов: KF1, KF2 и KF3. Данные об экспрессии были импортированы и обработаны согласно описанию ниже (см. раздел Таблица материалов). Клетки с общим количеством уникальных молекулярных идентификаторов (UMI) менее 200 или более 6 000, а также предполагаемые дуплеты были исключены. Данные об экспрессии генов для каждой клетки были нормализованы по общей клеточной экспрессии, умножены на масштабный коэффициент 10 000 и подвергнуты логарифмическому преобразованию. Вариации, связанные с эффектом батча, были удалены методом регрессии при масштабировании данных; полученные масштабированные остатки использовались для последующего анализа. На основе среднего уровня экспрессии и дисперсии были отобраны 2 000 наиболее вариабельных генов, для которых был проведен анализ главных компонентов. Первые 15 главных компонентов использовались для построения графа k-ближайших соседей на основе евклидовых расстояний, который затем был преобразован в граф общих ближайших соседей. Кластеризация клеток проводилась с помощью алгоритма Louvain при разрешении 0,8; аппроксимация и проекция многообразия (UMAP) были выполнены с использованием тех же 15 главных компонентов. Аннотация типов клеток проводилась в соответствии с определениями типов клеток, представленными в исходном исследовании, и полученные аннотации были занесены в поле метаданных. Аннотации типов клеток и распределение по кластерам были визуализированы в координатах UMAP, а экспрессия диагностических генов была отображена для аннотированных популяций клеток.
Построение регуляторной сети miRNA–мРНК
Регуляторная сеть miRNA–mRNA была построена согласно описанию ниже (см. Таблицу материалов). В качестве организма был выбран Homo sapiens, идентификаторы генов были указаны в виде официальных символов генов (Official Gene Symbols). Кандидатные гены были введены в модуль взаимодействий Gene–miRNA, а в качестве базы данных взаимодействий была выбрана TarBase v9.0. TarBase содержит экспериментально подтвержденные регуляторные взаимодействия miRNA–ген. Для построения сети были оставлены только экспериментально подтвержденные взаимодействия miRNA–mRNA с участием введенных кандидатных генов, в то время как предсказанные взаимодействия без экспериментальных доказательств были исключены. Дополнительный порог показателя достоверности (confidence-score) не применялся.
Виртуальный скрининг на основе структуры и анализ молекулярного докинга
Для приоритизации потенциальных лигандов из библиотеки соединений в отношении человеческого белка FLVCR1 (белок 1, родственный рецептору вируса лейкоза кошек подгруппы С; см. Таблицу материалов) был проведен виртуальный скрининг с использованием рабочего процесса структурного виртуального скрининга (SBVS). Трехмерная структура человеческого FLVCR1 была получена из Protein Data Bank (PDB ID: 8UBZ). Эта структура представляет собой комплекс человеческого FLVCR1 с холином, определенный методом криоэлектронной микроскопии отдельных частиц при глобальном разрешении 3,02 Å (номер в EMDB: EMD-42110). Экспериментально определенная структура была выбрана, так как она содержит конформацию FLVCR1, связанную с субстратом, и, следовательно, предоставляет структурную информацию для определения физиологически значимой полости связывания лиганда. При подготовке рецептора совместно определенные молекулы холина (CHT) и cholesterol hemisuccinate (Y01) были сохранены для поддержания структурного окружения области входа субстрата и связывания лиганда. Пространство поиска при докинге было определено вокруг полости связывания субстрата/лиганда FLVCR1, охватывающей область связывания холина. Центр сетки был установлен в точках x = 160,587 Å, y = 160,613 Å и z = 160,484 Å. Размеры бокса докинга были установлены как [X × Y × Z Å] для обеспечения достаточного охвата полости связывания субстрата и окружающих ее остатков. Затем соединения-кандидаты были подвергнуты докингу в эту заранее определенную область связывания. Позы докинга ранжировались в соответствии с их предсказанным сродством к связыванию, при этом более отрицательные значения баллов докинга указывали на более благоприятные предсказанные взаимодействия лиганда с FLVCR1. Соединения с наивысшим рейтингом были отобраны для последующего анализа modes связывания и взаимодействий белок–лиганд.
Моделирование молекулярной динамики и расчет свободной энергии связывания методом MM/GBSA
Для дальнейшего изучения предсказанного комплекса белок-лиганд было использовано моделирование методом молекулярной динамики (МД) (см. раздел Таблица материалов). Топология лиганда была подготовлена путем назначения параметров общего силового поля Amber (GAFF) и включения зарядов ограниченного электростатического потенциала (RESP). Затем комплекс был описан с помощью силового поля Amber99SB-ILDN, помещен в модель воды с тремя точками (TIP3P) и нейтрализован тремя ионами Na+.⁺ ионы. После минимизации энергии методом наискорейшего спуска система подвергалась уравновешиванию в течение 100 пс в ансамбле с постоянным числом частиц, объемом и температурой (NVT), а затем в течение еще 100 пс в ансамбле с постоянным числом частиц, давлением и температурой (NPT), при этом на каждой фазе было выполнено по 100 000 шагов. Впоследствии был проведен продуктивный запуск продолжительностью 100 нс при температуре 300 К и давлении 1 бар с шагом по времени 2 фс. Полученная траектория была проанализирована на предмет среднеквадратичного отклонения (RMSD), среднеквадратичных флуктуаций (RMSF), радиуса гирации (Rg), доступной растворителю площади поверхности (SASA), устойчивости водородных связей и свободной энергии связывания методом молекулярной механики и обобщенной поверхности Борна (MM/GBSA).
Культивирование клеток
Линия нормальных дермальных фибробластов человека NHDF и линия первичных фибробластов келоидов PKF культивировали в среде для роста фибробластов с добавлением 2% эмбриональной телячьей сыворотки, рекомбинантного основного фактора роста фибробластов человека (1 ng/mL) и инсулина (5 µg/mL). Обе клеточные линии поддерживали в увлажненном инкубаторе при 37 °C и 5% CO₂, пересевали при достижении 80–90% конфлюэнтности.
Вестерн-блот анализ
Общий белок выделяли из клеток NHDF и PKF с использованием лизирующего буфера, состоящего из реагента для радиоиммунопреципитации, фенилметилсульфонилфторида, коктейля ингибиторов протеаз и ингибиторов фосфатаз. Концентрацию белка определяли с помощью бицинхонинового метода, после чего равные количества белка разделяли методом электрофореза в полиакриламидном геле с додецилсульфатом натрия и переносили на мембрану из поливинилиденфторида. Мембрану блокировали в течение 90 мин при комнатной температуре 5%-м раствором обезжиренного сухого молока, приготовленным в Tween/Tris-буферном салине, затем инкубировали в течение ночи при 4 °C с первичными антителами к FLVCR1 (кроличьи поликлональные, 1:1,000) и GAPDH (мышиные моноклональные, 1:20,000). На следующий день проводили инкубацию со вторичными антителами в течение 90 мин при комнатной температуре. Интенсивность полос измеряли с помощью ImageJ, а относительные уровни белка нормировали по внутреннему контролю GAPDH. Для каждого анализа методом вестерн-блоттинга использовали минимум три независимых биологических повторности.
Количественный анализ методом ПЦР с обратной транскрипцией в реальном времени (qRT-PCR) с использованием флуоресценции
Общую РНК выделяли из клеток NHDF и PKF с помощью указанного набора. Затем синтезировали кДНК с использованием указанной смеси для синтеза кДНК для qPCR (с dsDNase). qRT-PCR проводили на системе ПЦР в реальном времени, а экспрессию FLVCR1 измеряли с помощью указанной смеси SYBR Green Fast Mix. мРНК GAPDH служила внутренним контролем для нормализации. Каждую реакцию qRT-PCR проводили в трех технических повторностях, а относительные уровни мРНК рассчитывали методом 2−ΔΔCt. Каждый эксперимент повторяли независимо не менее трех раз; последовательности праймеров приведены в Дополнительной таблице S2.
Статистический анализ
Различия между группами оценивали с помощью критерия суммы рангов Уилкоксона; значения представлены как среднее ± стандартное отклонение (SD). Связи между непрерывными переменными исследовали с использованием коэффициента корреляции Пирсона. Результаты при P < 0.05 считали статистически значимыми. Уровни значимости обозначались как ns, P > 0.05; *, P < 0.05; **, P < 0.01; ***, P < 0.001; и ****, P < 0.0001.
Результаты
Скрининг потенциальных диагностических биомаркеров келоидов с использованием алгоритма машинного обучения
В данное исследование было включено в общей сложности 283 гена, связанных с метаболизмом гема. Анализ дифференциальной экспрессии в наборе данных GSE44270 при сравнении тканей келоида и нормальной кожи позволил выявить 25 значимо дифференциально экспрессируемых генов (Рисунок 1A и Дополнительная таблица S3). Для дальнейшего скрининга биомаркеров, ассоциированных с заболеванием, с помощью регрессии LASSO было выявлено 9 генов-кандидатов (Рисунок 1B,C и Дополнительная таблица S3), в то время как алгоритм случайного леса (RF) отобрал 11 генов с высокой прогностической значимостью (Рисунок 1D и Дополнительная таблица S3). Пересечение результатов LASSO и RF было визуализировано с помощью диаграммы Венна, что позволило выявить шесть основных биомаркеров, а именно: FLVCR1, TMCC2, EIF2AK1, XK, ГПХи КЕЛ (Рисунок 1E и Дополнительная таблица S3). Анализ рабочей характеристики приемника (ROC-анализ) в когорте GSE44270 продемонстрировал благоприятные диагностические показатели для всех шести биомаркеров, при этом значения AUC составили 0,8016 для FLVCR1, 0,7063 для TMCC2, 0,7817 для EIF2AK1, 0,7460 для XK, 0,7500 для HPX, а для [значение/объект] — 0,7857 KEL (Рисунок 1F). На основании этих шести биомаркеров с помощью пакета rms в среде R была построена диагностическая номограмма для келоидов (Рисунок 1G).
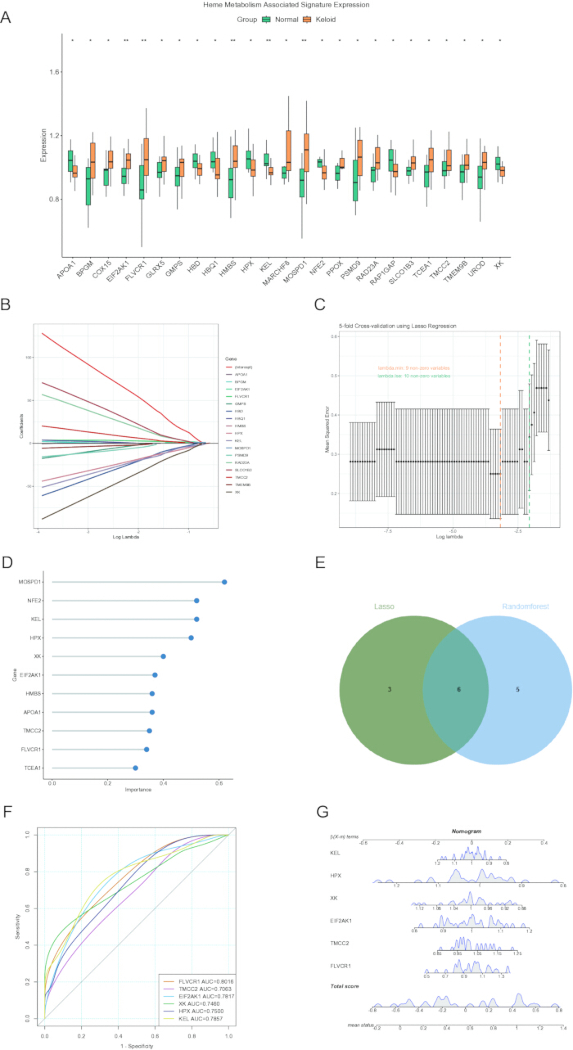
Рисунок 1: Идентификация потенциальных генов, связанных с метаболизмом гема и ассоциированных с келоидами, с использованием алгоритмов машинного обучения. (A) Диаграмма размаха, иллюстрирующая дифференциальную экспрессию генов метаболизма гема в тканях келоида и нормальных тканях. (B,C) Логистический регрессионный анализ LASSO для скрининга потенциальных диагностических маркеров. (D) Потенциальные биомаркеры, выбранные алгоритмом RF. (E) Диаграмма Венна, показывающая пересекающиеся гены, идентифицированные двумя алгоритмами машинного обучения. (F) Анализ ROC-кривых для оценки диагностической эффективности потенциальных биомаркеров. (G) Номограмма для прогнозирования келоида на основе сигнатуры из шести генов. Сокращения: LASSO — метод наименьшего абсолютного сжатия и отбора; RF — случайный лес; ROC — рабочая характеристика приемника. Статистическая значимость: ns, P > 0.05; *, P < 0.05; **, P < 0.01; ***, P < 0.001; и ****, P < 0.0001. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
Прогностическая эффективность диагностической номограммы была оценена как в обучающей когорте (GSE44270), так и в валидационной когорте (GSE7890). Модель продемонстрировала отличную диагностическую точность, достигнув значений AUC 0,984 (95% CI: 0,950–1,000) и 0,922 (95% CI: 0,806–1,000) соответственно (Рисунок 2A,D). Для дальнейшей оценки робастности и потенциального переобучения диагностической панели из шести генов был проведен дополнительный внутренний валидационный анализ в когорте обнаружения (GSE44270). Пятикратная перекрестная проверка показала стабильную дискриминационную способность во всех подмножествах со средним значением AUC 0,925, что указывает на сохранение моделью стабильной эффективности классификации, несмотря на вариации в обучающих выборках. Кроме того, бутстреп-валидация с 1 000 итерациями ресэмплинга дала среднее значение AUC 0,930 (95% CI: 0,794–1,000). После поправки на возможный оптимизм, вызванный ограниченным размером выборки, скорректированное значение AUC осталось равным 0,930, что свидетельствует об относительной стабильности диагностической эффективности панели из шести генов после внутренней валидации. Более того, анализ кривых принятия решений (DCA) показал, что номограмма обладает более высоким потенциальным чистым преимуществом по сравнению с альтернативными диагностическими стратегиями в диапазоне пороговых вероятностей, хотя эти результаты следует интерпретировать с осторожностью ввиду ограниченного размера выборки (Рисунок 2B,E). Кроме того, образцы келоидов имели значительно более высокие показатели риска, чем здоровый контроль, как в обучающей, так и в валидационной когортах (Рисунок 2C,F), что дополнительно подтверждает стабильность и надежность диагностической модели.
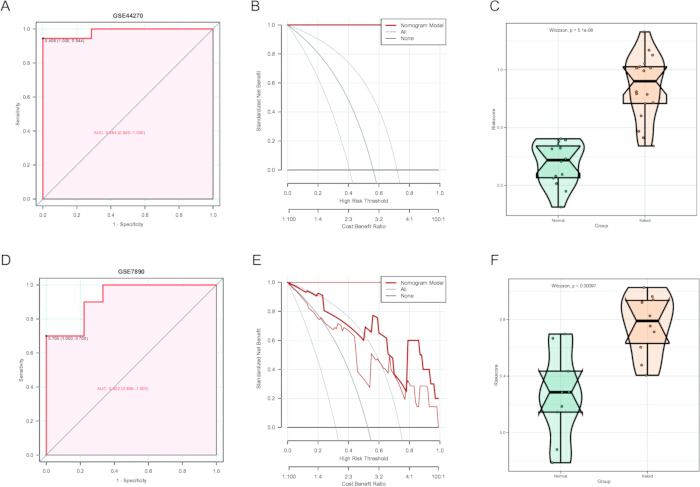
Рисунок 2: Валидация номограммы для прогнозирования келоидов. (A) ROC-кривая, оценивающая прогностическую эффективность номограммы в наборе данных GSE44270. (B) DCA, оценивающая клиническую полезность номограммы в GSE44270. (C) Распределение показателей риска при сравнении образцов с келоидами и здоровых образцов в GSE44270. (D) ROC-кривая, оценивающая прогностическую эффективность номограммы в независимом наборе данных GSE7890. (E) DCA, оценивающая клиническую полезность номограммы в GSE7890. (F) Распределение показателей риска при сравнении образцов с келоидами и здоровых образцов в GSE7890. Сокращения: ROC = рабочая характеристика приемника; DCA = анализ кривых принятия решений. Пожалуйста, нажмите здесь, чтобы просмотреть этот рисунок в большем размере.
Диагностические биомаркеры связаны с иммунными характеристиками келоида
Для изучения взаимосвязи между шестью диагностическими биомаркерами и иммунным микроокружением был проведен корреляционный анализ для оценки ассоциаций между экспрессией биомаркеров и инфильтрацией иммунных клеток. Результаты показали, что все шесть биомаркеров значимо связаны с несколькими популяциями инфильтрующих иммунных клеток (Рисунок 3A). В частности, экспрессия FLVCR1 была отрицательно связана с Т-фолликулярными хелперными клетками (Рисунок 3B). TMCC2 продемонстрировал положительную корреляцию с натуральными киллерами и активированными дендритными клетками, в то время как наблюдалась отрицательная корреляция с незрелыми дендритными клетками и незрелыми B-клетками (Рисунок 3C–F). Кроме того, экспрессия EIF2AK1 была отрицательно связана с CD56dim натуральными киллерами (Рисунок 3G), а XK был отрицательно связан с эозинофилами (Рисунок 3H).
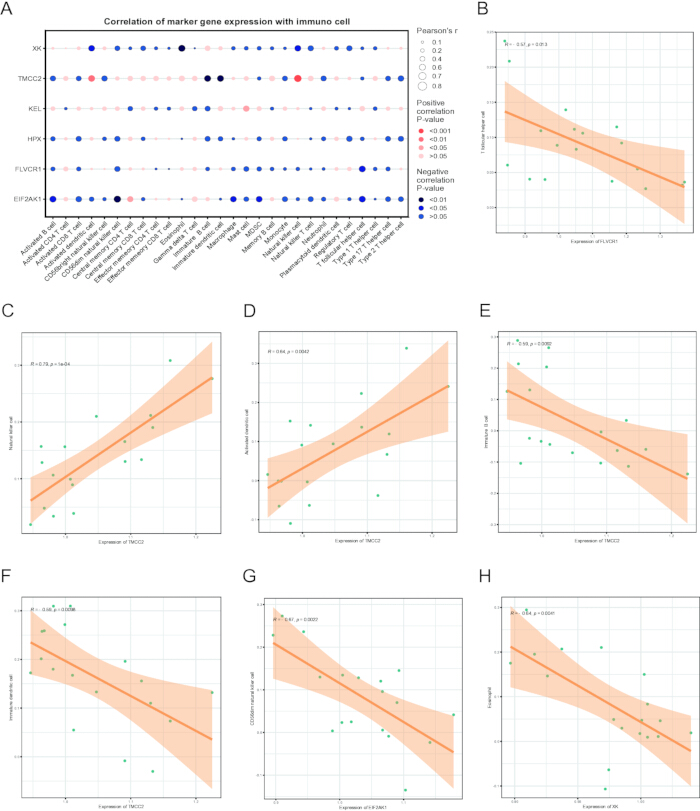
Рисунок 3Корреляция между генами-кандидатами, связанными с метаболизмом гема, и инфильтрацией иммунных клеток. (A) Тепловая карта, демонстрирующая корреляции между генами-кандидатами и популяциями иммунных клеток. Красным цветом обозначены положительные корреляции, синим — отрицательные. (B). Корреляция между FLVCR1 экспрессия и Т-фолликулярные хелперные клетки. (C-F) Корреляции между TMCC2 экспрессия и натуральные киллеры, активированные дендритные клетки, незрелые дендритные клетки и незрелые B-клетки соответственно. (G) Корреляция между EIF2AK1 экспрессия и CD56dim естественные киллеры. (H). Корреляция между XK экспрессия и эозинофилы. Сокращения: FLVCR1 = рецептор 1 подгруппы C вируса лейкоза кошек; TMCC2 = трансмембранный и спиральный домены 2; EIF2AK1 = эукариотическая киназа фактора инициации трансляции 2 альфа 1; CD56тусклый = CD56 dim (низкая экспрессия кластера дифференцировки 56). Нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
Анализ данных транскриптома отдельных клеток
Для характеристики паттернов экспрессии выявленных диагностических биомаркеров в микроокружении келоида мы проанализировали набор данных секвенирования РНК отдельных клеток GSE163973. После контроля качества и интеграции данных для последующего анализа было отобрано 21 488 высококачественных клеток. Клетки с общим количеством уникальных молекулярных идентификаторов (UMI) менее 200 или более 6 000 были исключены; потенциальные дуплеты были выявлены и удалены с помощью пакета DoubletDetection. Были выбраны 2 000 генов с наибольшей вариабельностью экспрессии, после чего было проведено снижение размерности и визуализация с помощью метода Uniform Manifold Approximation and Projection (UMAP). Всего было идентифицировано 10 основных популяций клеток, включая эндотелиальные клетки, фибробласты, мышечные волокна, кератиноциты, иммунные клетки, лимфатические эндотелиальные клетки, железистые клетки, нейральные клетки, меланоциты и неклассифицированную популяцию клеток (Рисунок 4A,B). Профилирование экспрессии выявило отчетливые специфические для типов клеток паттерны распределения диагностических биомаркеров. FLVCR1 экспрессировался преимущественно в эндотелиальных клетках и меланоцитах, тогда как EIF2AK1 демонстрировал относительно высокую экспрессию в нейральных клетках, железистых клетках и фибробластах. HPX был преимущественно обогащен в меланоцитах, в то время как KEL проявлял преимущественную экспрессию в железистых клетках (Рисунок 4C,D).
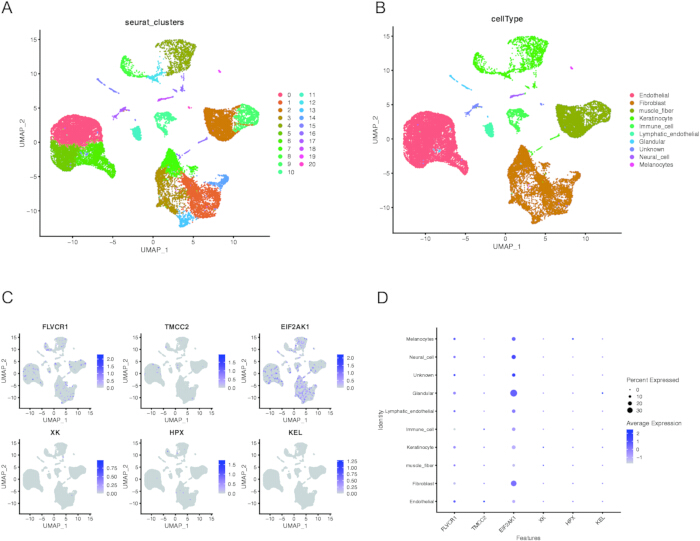
Рисунок 4: Распределение диагностических биомаркеров, связанных с метаболизмом гема, в одноклеточном транскриптоме келоида. (A) График UMAP, демонстрирующий 21 клеточный кластер, включающий 21 488 клеток из образцов келоида. (B) Аннотации типов клеток на основе данных, представленных в оригинальном исследовании. (C) Feature-графики, показывающие экспрессию диагностических биомаркеров, связанных с метаболизмом гема, в различных типах клеток. (D) Пузырьковая диаграмма, демонстрирующая средние уровни экспрессии и процент клеток, экспрессирующих диагностические биомаркеры метаболизма гема, в различных типах клеток. Сокращение: UMAP = равномерная аппроксимация и проекция многообразия. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
Идентификация и анализ сети взаимодействий потенциальных диагностических биомаркеров
Для изучения регуляторных механизмов, лежащих в основе потенциальных диагностических биомаркеров, была построена регуляторная сеть miRNA–mRNA. Для повышения надежности прогнозируемых взаимодействий были выявлены перекрывающиеся miRNA, нацеленные на потенциальные биомаркеры. В общей сложности было получено 282 miRNA, взаимодействующих с шестью диагностическими биомаркерами; resulting регуляторная сеть представлена на Рисунке 5. Примечательно, что hsa-miR-34a-5p, hsa-let-7a-5p, hsa-let-7d-5p, hsa-let-7e-5p и hsa-miR-26b-5p, по прогнозам, одновременно регулируют все шесть потенциальных биомаркеров.
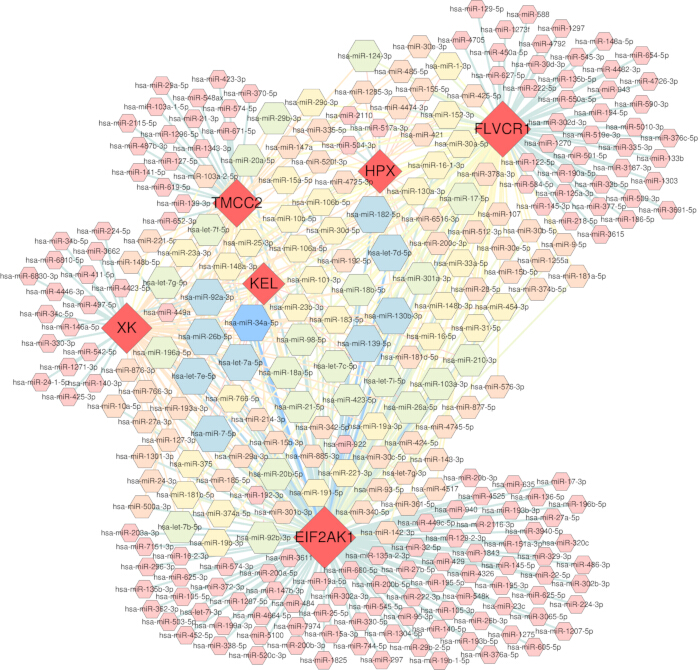
Рисунок 5: Регуляторная сеть миРНК для диагностических биомаркеров, связанных с метаболизмом гема. Сеть иллюстрирует регуляторные связи между шестью генами-биомаркерами диагностики (FLVCR1, HPX, TMCC2, KEL, XK и EIF2AK1) и соответствующими им миРНК. Узлы генов представляют диагностические биомаркеры, тогда как окружающие узлы представляют миРНК. Ребра указывают на экспериментально подтвержденные взаимодействия между миРНК и мРНК. Сокращения: FLVCR1 = рецептор 1 подгруппы С вируса лейкоза кошек; HPX = гемопексин; TMCC2 = трансмембранные и спиральные домены 2; KEL = металлоэндопептидаза Келл; XK = сцепленная с X-хромосомой группа крови Kx; EIF2AK1 = эукариотическая киназа 1 фактора инициации трансляции 2 альфа; miRNA = микроРНК; mRNA = матричная РНК. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
Экспериментальное подтверждение экспрессии FLVCR1 и молекулярный докинг потенциальных терапевтических соединений
Чтобы подтвердить биоинформационные результаты и функциональную значимость выявленного узлового гена, мы экспериментально оценили экспрессию FLVCR1 в PKF и NHDF. Анализы методом qRT-PCR и вестерн-блоттинга последовательно показали, что экспрессия FLVCR1 была значительно повышена в фибробластах келоидов по сравнению с нормальным контролем (Рисунок 6A–C, Дополнительный рисунок S1 и Дополнительная таблица S4). Столь высокая клеточная экспрессия подтверждает потенциальную роль нарушений метаболизма гема, связанных с FLVCR1, в патогенезе келоидов.
Учитывая потенциальную роль FLVCR1 в иммунных изменениях, связанных с метаболизмом гема, далее мы стремились идентифицировать потенциальные терапевтические соединения, которые могли бы напрямую воздействовать на FLVCR1 для прерывания этой патогенной оси. Высокопроизводительный виртуальный скрининг был проведен с использованием библиотеки соединений традиционной китайской медицины (TCM) и подготовленной структуры белка. Для дальнейшей оценки были выбраны 20 соединений с наиболее благоприятными показателями докинга (Дополнительная таблица S5). В целом, более низкая энергия связывания указывает на более сильное сродство, а энергия докинга ниже −5 kcal/mol считается признаком стабильных взаимодействий лиганд–белок. Среди проскринированных соединений (+)-галлокатехин, (−)-эпикатехин, (−)-галлокатехин и цианидин (хлорид) продемонстрировали благоприятное сродство к FLVCR1. Примечательно, что (+)-галлокатехин показал самое сильное взаимодействие с FLVCR1, образуя четыре водородные связи с GLU214, ASN245, GLN246 и GLN471, что указывает на стабильный режим связывания лиганда с белком (Рисунок 6D–G). Эти результаты позволяют рассматривать (+)-галлокатехин как перспективного кандидата для механистического терапевтического вмешательства, направленного на FLVCR1.
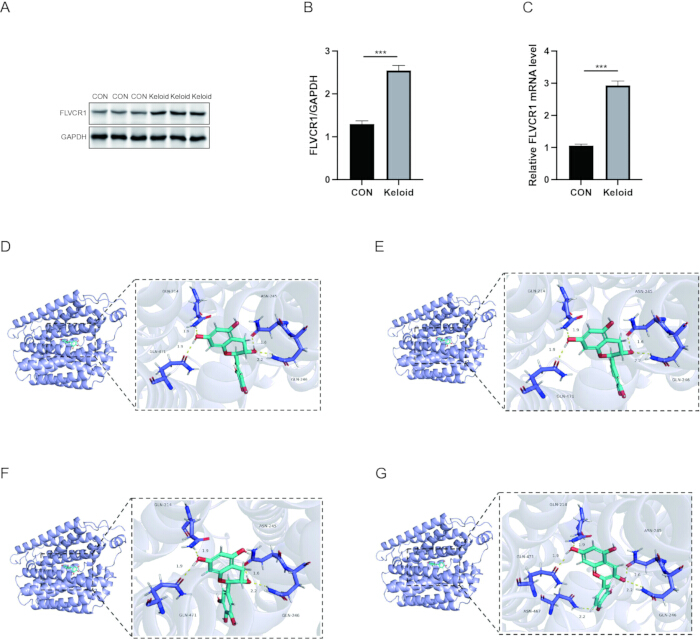
Рисунок 6: Экспериментальное подтверждение экспрессии FLVCR1 и молекулярный докинг потенциальных соединений, воздействующих на FLVCR1. (A) Репрезентативные изображения вестерн-блоттинга, демонстрирующие экспрессию белка FLVCR1 в группе CON и в келоиде. GAPDH служил контролем нагрузки. (B) Количественное определение уровней белка FLVCR1, нормализованных по GAPDH. (C) Относительные уровни экспрессии мРНК FLVCR1 в фибробластах групп CON и келоида, определенные методом qRT-PCR. GAPDH использовался в качестве внутреннего референса. (D–G) Трехмерные представления предсказанных режимов связывания между FLVCR1 и выбранными низкомолекулярными соединениями: (D) (+)-Gallocatechin. (E) (-)-Epicatechin. (F) (-)-Gallocatechin. (G) Cyanidin (Chloride). Сокращения: FLVCR1 = рецептор 1 подгруппы C вируса лейкоза кошек; CON, контроль; GAPDH, глицеральдегид-3-фосфатдегидрогеназа; qRT-PCR, количественная полимеразная цепная реакция с обратной транскрипцией; SD, стандартное отклонение. Данные представлены как среднее значение ± SD. Статистическая значимость: ns, P > 0.05; *, P < 0.05; **, P < 0.01; ***, P < 0.001; и ****, P < 0.0001. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
Подтверждение стабильности комплекса FLVCR1–(+)-галлокатехин с помощью моделирования молекулярной динамики
Для проверки достоверности предсказанного режима связывания лиганда с белком было проведено моделирование молекулярной динамики (МД) для комплекса FLVCR1–(+)-галлокатехин. Анализ был сосредоточен на том, сохранял ли комплекс структурную стабильность с течением времени и изменило ли связывание лиганда конформационное поведение белка, с использованием RMSD, RMSF, радиуса гирации (Rg), SASA, анализа водородных связей и расчетов MM/GBSA. Анализ RMSD (Рисунок 7A) показал, что как апо-белок, так и комплекс с лигандом претерпевали начальные флуктуации в течение первых 20 ns, после чего наступила постепенная стабилизация, что указывает на достижение системами равновесия в ходе симуляции. После уравновешивания значение RMSD комплекса FLVCR1–(+)-галлокатехин оставалось ниже 0.2 nm, что говорит о том, что связывание лиганда способствовало поддержанию структурной стабильности FLVCR1. Анализ RMSF (Рисунок 7B) продемонстрировал, что большинство остатков проявляли ограниченные флуктуации на протяжении всего моделирования, что указывает на сохранение общей целостности белка, в то время как несколько гибких областей могут представлять собой петли, участвующие в размещении лиганда. Кроме того, стабильные профили Rg и SASA (Рисунок 7C,D) показали, что комплекс сохранял компактную конформацию без явного структурного расширения или изменений в доступности растворителю. Анализ водородных связей (Рисунок 7E) выявил, что комплекс FLVCR1–(+)-галлокатехин поддерживал устойчивые межмолекулярные взаимодействия с образованием примерно 3–4 водородных связей в ходе симуляции, что подтверждает стабильность ассоциации лиганда с белком. Анализ MM/GBSA дополнительно показал, что комплекс FLVCR1–(+)-галлокатехин характеризуется благоприятной свободной энергией связывания (ΔGtotal = −34.87 ± 4.13 kcal/mol) (Дополнительная таблица S6). Анализ разложения энергии показал, что ван-дер-ваальсовы взаимодействия (ΔVDWAALS = −46.34 ± 2.16 kcal/mol) и электростатические взаимодействия (ΔEelec = −14.09 ± 3.45 kcal/mol) были основными благоприятными факторами связывания, несмотря на неблагоприятный вклад энергии полярной сольватации (ΔGsolvation = 25.55 ± 0.74 kcal/mol) (Дополнительная таблица S6). В совокупности эти результаты МД-моделирования продемонстрировали, что (+)-галлокатехин образует стабильный комплекс с FLVCR1, и дополнительно подтвердили достоверность режима связывания, предсказанного методом докинга.
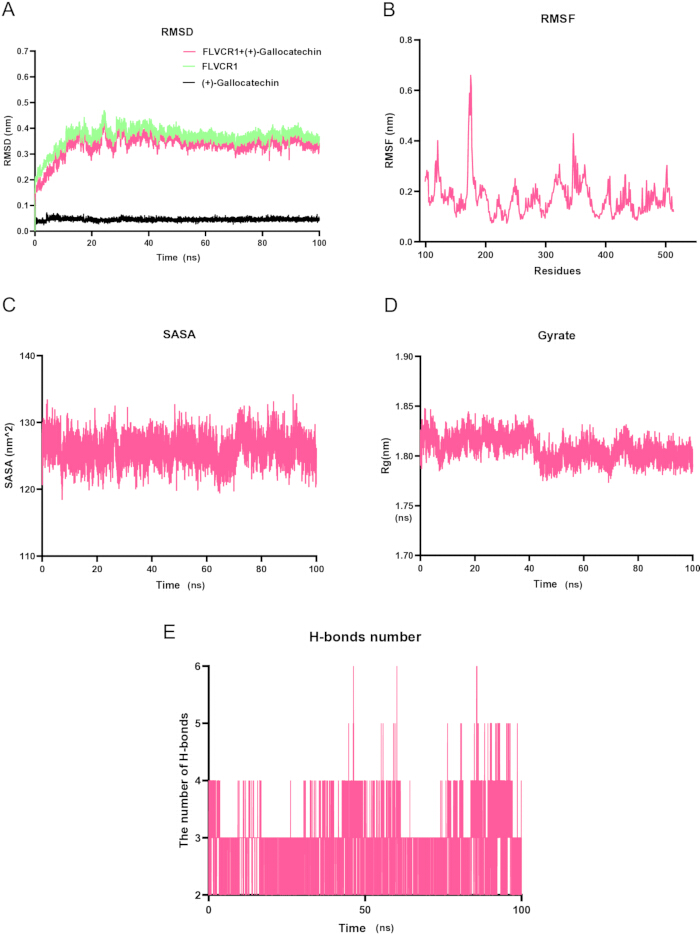
Рисунок 7: Анализ молекулярно-динамического моделирования комплекса FLVCR1–(+)-Gallocatechin. (A) Профили RMSD апо-формы FLVCR1 и комплекса FLVCR1–(+)-Gallocatechin в ходе 100 ns молекулярно-динамического моделирования. (B) Профиль RMSF, демонстрирующий флуктуации остатков FLVCR1 во время моделирования. (C) Профиль SASA, показывающий изменения площади доступной растворителю поверхности комплекса FLVCR1–(+)-Gallocatechin. (D) Профиль Rg, оценивающий компактность комплекса FLVCR1–(+)-Gallocatechin во время моделирования. (E) Анализ водородных связей, демонстрирующий динамические межмолекулярные взаимодействия между FLVCR1 и (+)-Gallocatechin на протяжении всего моделирования. Сокращения: FLVCR1 = рецептор 1 подгруппы C вируса лейкоза кошек; RMSD = среднеквадратичное отклонение; RMSF = среднеквадратичная флуктуация; SASA = площадь доступной растворителю поверхности; Rg = радиус инерции. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
Доступность данных:
Общедоступные наборы транскриптомных данных, проанализированные в данном исследовании, доступны в базе данных Gene Expression Omnibus (GEO) под номерами доступа GSE44270, GSE7890 и GSE163973. Исходные данные, полученные в ходе данного исследования и легшие в основу экспериментальной валидации, включая результаты qRT-PCR, оригинальные изображения вестерн-блоттинга и данные количественного анализа вестерн-блоттинга, представлены в Дополнительном рисунке S1, Дополнительной таблице S1, Дополнительной таблице S2, Дополнительной таблице S3 и Дополнительной таблице S4. Результаты молекулярного докинга и данные о свободной энергии связывания MM/GBSA также представлены в Дополнительной таблице S5 и Дополнительной таблице S6.
Дополнительный рисунок S1: Исходные данные вестерн-блоттинга.Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительная таблица S1: Гены, связанные с метаболизмом гема.Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительная таблица S2: Последовательности праймеров выбранных генов. Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительная таблица S3: Методы машинного обучения для идентификации потенциальных диагностических биомаркеров при келоидах. Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительная таблица S4: Исходные данные, подтверждающие экспериментальную валидацию экспрессии FLVCR1. Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительная таблица S5: 20 основных соединений-кандидатов, выявленных методом молекулярного докинга с FLVCR1.Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Дополнительная таблица S6: Анализ свободной энергии связывания MM/GBSA для комплекса FLVCR1–(+)-галлоктехин.Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Обсуждение
В данном исследовании выявлена потенциальная связь между нарушением метаболизма гема, экспрессией FLVCR1 и изменениями иммунного микроокружения при формировании келоидов. Интегрируя данные массового и одноклеточного транскриптомного анализа, мы определили FLVCR1 как молекулярное связующее звено, объединяющее дефицит экспорта гема с патологическим иммунным перепрограммированием, что позволяет рассматривать келоид в рамках развивающейся концепции «метабо-фибротических» расстройств23,24,25. Потенциальная значимость FLVCR1 подтверждается совокупными данными нескольких уровней анализа. Массовый транскриптомный анализ выявил его значимое повышение экспрессии в тканях келоидов с высокой диагностической способностью, в то время как картирование с одноклеточным разрешением локализовало его экспрессию преимущественно в эндотелиальных клетках и меланоцитах — двух типах клеток, критически вовлеченных в патогенез келоидов через аберрантный ангиогенез и гиперпигментацию соответственно26,27. Наиболее убедительным является тот факт, что экспрессия FLVCR1 демонстрировала сильную отрицательную корреляцию с T-фолликулярными хелперными (Tfh) клетками — подмножеством лимфоцитов, роль которых в стимуляции Th2-смещенного иммунитета и отложении коллагена в фибротических микроокружениях становится все более признанной28. Предыдущие исследования показали, что опосредованный FLVCR1 экспорт гема участвует в созревании дендритных клеток и презентации антигена29, что указывает на возможную связь между гомеостазом гема, связанным с FLVCR1, и иммунной регуляцией. Таким образом, наблюдаемая повышенная экспрессия FLVCR1 и ее отрицательная корреляция с инфильтрацией Tfh-клеток могут отражать изменения в иммунном гомеостазе, потенциально затрагивающие связанные с Tfh профибротические цитокины, такие как IL-4 и IL-1329,30,31.
Кроме того, внутриклеточное накопление гема, вызванное дисфункцией FLVCR1, вероятно, активирует инфламмасому NLRP3 — этот механизм хорошо документирован при фиброзе печени, где гем выступает в роли молекулярного паттерна, ассоциированного с повреждением (DAMP), который запускает стерильное воспаление32,33,34. Такая активация инфламмасомы должна способствовать высвобождению IL-1β/IL-18, что вызывает поляризацию макрофагов по типу M2 через сигналинг TLR4/NF-κB и создает самоподдерживающийся цикл окислительного стресса и активации фибробластов35,36. В совокупности эти данные позволяют рассматривать FLVCR1 как потенциальный биомаркер и возможный участник взаимодействий между метаболизмом гема и иммунным ответом при келоидных рубцах; однако предложенный механизм требует прямой функциональной валидации. Внутриклеточное удержание гема сначала индуцирует окислительное повреждение и активирует инфламмасому, что впоследствии приводит к дисфункции дендритных клеток, способствуя тем самым смещению дифференцировки в сторону фолликулярных Т-хелперов и иммунных ответов Th2-типа; эта иммунная девиация далее стимулирует поляризацию макрофагов по фенотипу M2, что в конечном итоге приводит к активации фибробластов и прогрессированию фиброгенеза.
Помимо воздействия одного лишь FLVCR1, синергическая дисрегуляция всех шести биомаркеров свидетельствует о скоординированном нарушении гомеостаза гема в нескольких регуляторных узлах. TMCC2, положительно коррелирующий с активированными дендритными клетками, но отрицательно связанный с незрелыми субпопуляциями, может представлять собой компенсаторный механизм, направленный на восстановление иммунной компетентности в условиях гемового стресса37,38. EIF2AK1, высоко экспрессируемый в фибробластах келоидов и железистых клетках, служит прямым молекулярным сенсором избытка гема, который фосфорилирует eIF2α для общего подавления синтеза белка при селективном усилении экспрессии генов стрессового ответа39,40,41. Это делает EIF2AK1 критическим связующим звеном, преобразующим накопление гема в фенотипическое переключение фибробластов, что потенциально объясняет, почему фибробласты келоидов демонстрируют повышенную устойчивость к апоптозу и избыточную выработку коллагена42,43,44. HPX, основной плазменный стержневой белок-ловушка гема, показал ограниченную экспрессию в меланоцитах, что указывает на клеточно-автономную попытку буферизации токсичности гема в богатых пигментом компартментах45,46,47. Одновременная дисрегуляция XK и KEL дополнительно указывает на роль механизмов обработки гема эритроидного ряда в патогенезе келоидов — этот результат имеет важные последствия для понимания того, почему келоиды часто возникают в местах травм с микрокровоизлияниями. Вместо того чтобы рассматривать эти шесть генов как независимые маркеры, мы интерпретируем их коллективную дисрегуляцию как свидетельство системного сбоя компартментализации гема, при котором нарушения экспорта (FLVCR1), сенсинга (EIF2AK1), поглощения (HPX) и мембранного транспорта (XK, KEL) объединяются, создавая профибротическую, богатую гемом микросреду.
Данная метаболически-иммунная модель дополнительно подкрепляется убедительным эпигенетическим уровнем: нами была выявлена сеть ceRNA, в которой снижение экспрессии специфических miRNAs (например, семейства let-7 и miR-34a-5p) может одновременно снимать репрессию с путей, связанных с метаболизмом гема и фиброзом, хотя эта регуляторная модель требует дальнейшего подтверждения23. Пространственное разрешение, обеспечиваемое одноклеточным анализом, проясняет клеточную «хореографию», лежащую в основе этого процесса, демонстрируя, как метаболическая дисфункция в структурных клетках активно формирует богатую иммунными клетками микросреду посредством паракринной сигнализации гема, тем самым трансформируя наше понимание от перспективы «общей ткани» к модели динамической клеточной экосистемы48,49,50. Накопление гема в эндотелии может способствовать сосудистой утечке и экстравазации лейкоцитов через индукцию гемоксигеназы-1 и ап-регуляцию молекул адгезии, создавая тем самым богатую иммунными клетками микросреду, наблюдаемую при келоидах51,52,53. Одновременно с этим экспрессия FLVCR1 в меланоцитах согласуется с клиническими наблюдениями гиперпигментации келоидов и указывает на общие метаболические уязвимости между пигментарными и фибротическими путями — возможно, опосредованные ответами на окислительный стресс54,55. Такое пространственное картирование меняет наше представление от анализа «общей ткани» к модели клеточной экосистемы, в которой метаболическая дисфункция в структурных клетках (эндотелии, меланоцитах) активно определяет поведение иммунных клеток посредством паракринной сигнализации гема.
С трансляционной точки зрения, разработанная нами номограмма, объединяющая все шесть биомаркеров, достигла почти идеальной диагностической точности, существенно превзойдя любой отдельный маркер и продемонстрировав явную клиническую чистую выгоду при анализе кривых принятия решений. Более того, молекулярный докинг выявил (+)-галлокатехин — биоактивный полифенол, содержащийся в больших количествах в зеленом чае и традиционных китайских лекарственных травах, — как высокоаффинный лиганд FLVCR1, образующий стабильные водородные связи с GLU-214, ASN-245, GLN-246 и GLN-471. Этот результат представляется особенно убедительным с учетом имеющихся данных о том, что катехины подавляют синтез коллагена, ингибируют секрецию трансформирующего ростового фактора-бета 1 и снижают окислительный стресс в фибробластах келоидов56,57,58. Мы предполагаем, что (+)-галлокатехин может стабилизировать конформацию FLVCR1 для повышения способности к экспорту гема, тем самым прерывая метаболический триггер фиброза в самом его источнике — стратегия, фундаментально отличающаяся от современных методов терапии, которые лишь подавляют последующую продукцию коллагена. Вопрос о том, может ли подобное метаболическое вмешательство повлиять на рецидивирование келоидов, требует дальнейшего экспериментального и клинического подтверждения.
Разумеется, данное исследование также имеет ограничения. Во-первых, наши анализы носят преимущественно расчетный характер, и наблюдаемая связь между экспрессией FLVCR1 и инфильтрацией Т-фолликулярных хелперов (Tfh) не устанавливает прямой причинно-следственной связи. Для выяснения потенциальной роли FLVCR1 в иммунной регуляции необходимы валидация Tfh-клеток методом проточной цитометрии и функциональные исследования с использованием нокдауна или оверэкспрессии FLVCR1 в фибробластах келоидов, а также анализы взаимодействия фибробластов с иммунными клетками или тесты с использованием кондиционированной среды. Во-вторых, относительно небольшой размер выборки может привести к неопределенности и излишнему оптимизму в оценке эффективности сигнатуры из шести генов. Несмотря на проведенную внутреннюю валидацию, надежная оценка диагностической эффективности и калибровки остается ограниченной. Таким образом, панель из шести генов следует рассматривать как исследовательскую молекулярную сигнатуру, требующую дальнейшей валидации на более крупных независимых когортах. В-третьих, набор данных одноклеточного секвенирования требует расширения для лучшего охвата межпациентной гетерогенности и редких популяций клеток. В-четвертых, валидация экспрессии биомаркеров на уровне белка и их пространственной локализации с помощью иммуногистохимии позволила бы усилить клиническую значимость наших результатов. Наконец, хотя молекулярный докинг предполагает возможность связывания (+)-галлокатехина с FLVCR1, перед клиническим внедрением необходимы анализы связывания in vitro и исследования эффективности in vivo. Несмотря на эти ограничения, наши результаты предоставляют многомерную структуру, связывающую метаболизм гема, ассоциированный с FLVCR1, с иммунными изменениями при келоидах, и определяют потенциальные молекулярные биомаркеры и терапевтические кандидаты для дальнейшего изучения.
Раскрытие информации
Авторы не заявляют о наличии конфликта интересов.
Вклад авторов
Цюянь Ян внесла вклад в разработку дизайна исследования. Цзяньпин Чжан участвовал в сборе данных. Цюянь Ян и Сяофан Су внесли вклад в статистический анализ. Цюянь Ян и Цзин Ван участвовали в создании диаграмм и подготовке окончательного варианта рукописи. Все авторы прочитали и утвердили окончательную версию рукописи.
Благодарности
Мы выражаем благодарность исследователям, которые создали и предоставили в открытый доступ наборы данных GSE44270, GSE7890 и GSE163973 через базу данных Gene Expression Omnibus (GEO).
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| AmberTools | Проект Amber | https://ambermd.org/AmberTools.php | Версия 22; Создание параметров лигандов с использованием силового поля GAFF |
| анти-FLVCR1 | Proteintech | 26841-1-AP | |
| антитела к GAPDH | Proteintech | 60004-1-Ig | |
| AutoDock Vina | Исследовательский институт Скриппса | https://vina.scripps.edu/ | Версия 1.2.3; Молекулярный докинг и прогнозирование аффинности связывания лиганда |
| AutoDockTools | Исследовательский институт Скриппса | https://ccsb.scripps.edu/autodocksuite/adt/ | Версия 1.5.6; Подготовка лиганда и рецептора для молекулярного докинга |
| Набор для определения концентрации белка методом BCA | Servicebio | G2026 | |
| Смесь для синтеза кДНК для кПЦР с dsDNase | UnionScript | Обратная транскрипция для qRT-PCR | |
| ChemBio3D | PerkinElmer | https://revvitysignals.com/products/research/chemdraw | Версия 14.0; трехмерная конформационная оптимизация и минимизация энергии лигандов |
| Система для хемилюминесцентной визуализации | Визуализация полос вестерн-блоттинга | ||
| пакет DoubletDetection | GitHub / JonathanShor | https://github.com/JonathanShor/DoubletDetection | Обнаружение и удаление прогнозируемых дуплетов при анализе scRNA-seq |
| ЭХЛ-хемилюминесцентный субстрат | Детекция сигнала в методе вестерн-блоттинга | ||
| Фетальная телячья сыворотка | конечная концентрация 2%; добавка для среды культивирования фибробластов | ||
| Среда для роста фибробластов 2 | PromoCell | C-23020 | |
| праймеры для FLVCR1 и GAPDH | Дополнительная таблица S2 | амплификация целевых и референсных генов методом ОТ-ПЦР в реальном времени | |
| Гауссово | Gaussian, Inc. | https://gaussian.com/ | Gaussian 16W; Расчет атомных зарядов RESP для параметризации лиганда |
| Аппарат для гель-электрофореза | Разделение белков методом Электрофореза в полиакриламидном геле в присутствии додецилсульфата натрия (SDS-PAGE) | ||
| Пакет GEOquery | Bioconductor | https://bioconductor.org/packages/GEOquery/ | Версия 2.68.0; Получение данных об экспрессии генов и метаданных из базы данных GEO |
| пакет ggplot2 | CRAN | https://cran.r-project.org/package=ggplot2 | Версия 4.0.2; Визуализация данных |
| пакет glmnet | CRAN | https://cran.r-project.org/package=glmnet | Версия 4.1.10; отбор признаков методом LASSO |
| GROMACS | Команда разработчиков GROMACS | https://www.gromacs.org/ | Версия 2022.3; Моделирование молекулярной динамики и анализ траекторий |
| GS AntiQ qPCR SYBR Green Fast Mix (Universal) | Гены и | SQ410 | |
| GSE163973 | база данных GEO | **Заголовок:** Одноклеточный РНК-секвенирование позволяет идентифицировать популяцию стволовых клеток с высокой пролиферативной способностью в человеческом эпителии дыхательных путей **Суммарное описание:** В данном исследовании использовалось секвенирование РНК единичных клеток (scRNA-seq) для анализа клеточного состава и транскриптомных профилей эпителия дыхательных путей человека. Целью работы была идентификация и характеристика специфических популяций клеток, ответственных за регенерацию и поддержание гомеостаза слизистой оболочки дыхательных путей. Была выявлена уникальная группа стволовых клеток с высокой пролиферативной способностью, которая играет ключевую роль в восстановлении эпителия. Анализ данных scRNA-seq позволил определить маркерные гены для этих клеток и реконструировать траектории их дифференцировки в специализированные типы клеток эпителия. **Общие данные:** * **ID набора данных:** GSE163973 * **Организм:** Homo sapiens * **Тип образца:** Эпителий дыхательных путей человека * **Метод:** scRNA-seq (секвенирование РНК единичных клеток) * **Платформа:** Illumina NovaSeq 6000 | 3 образца келоидов; Анализ экспрессии на уровне отдельных клеток |
| GSE44270 | база данных GEO | https://www.ncbi.nlm.nih.gov/geo/query/acc.cgi?acc=GSE44270 | 18 образцов келоидов и 14 нормальных образцов; дифференциальная экспрессия и скрининг биомаркеров |
| GSE7890 | база данных GEO | https://www.ncbi.nlm.nih.gov/geo/query/acc.cgi?acc=GSE7890 | 10 образцов келоидов и 9 нормальных образцов; независимая валидация диагностических биомаркеров |
| Пакет GSVA | Bioconductor | https://bioconductor.org/packages/GSVA/ | Версия 1.48.3; анализ инфильтрации иммунных клеток на основе ssGSEA |
| козанти-мышиные IgG с конъюгатом HRP | Abcam | ab97040 | |
| козантитела к IgG кролика, конъюгированные с HRP | Abcam | ab97051 | |
| Увлажненный CO22 инкубатор | 37 °C, 5% CO22Поддержание культур клеток NHDF и PKF | ||
| ImageJ | Национальные институты здравоохранения | https://imagej.nih.gov/ij/ | Количественная оценка интенсивности полос вестерн-блоттинга |
| Инсулин | 5 μg/mL конечная концентрация; добавка к среде для культивирования фибробластов | ||
| База данных молекулярных сигнатур (MSigDB) | Broad Institute | https://www.gsea-msigdb.org/gsea/msigdb | Версия 2024.1.Hs; Источник наборов генов, связанных с метаболизмом гема |
| NetworkAnalyst | NetworkAnalyst | https://www.networkanalyst.ca/ | Версия 3.0; Построение сети взаимодействий miRNA-mRNA |
| NHDF (нормальные дермальные фибробласты человека) | Procell | CP-H106 | |
| Обезжиренное сухое молоко | 5% раствор; Блокировка мембраны для вестерн-блот-анализа | ||
| Оптическая герметизирующая пленка или крышки | Герметизация реакций ОТ-кРПЦ | ||
| Фосфатно-солевой буфер | Procell | PB180327 | |
| PDB ID: 8UBZ | RCSB PDB | https://www.rcsb.org/structure/8UBZ | Структура человеческого FLVCR1; Источник структуры белка FLVCR1 для виртуального скрининга на основе структуры |
| Ингибиторы фосфатаз | Добавка к буферу для лизиса белков | ||
| PKF | Procell | GCP-H235 | |
| ПМСФ | Servicebio | G2008-1ML | |
| пакет pROC | CRAN | https://cran.r-project.org/package=pROC | Версия 1.19.0.1; Анализ ROC-кривой и AUC |
| Коктейль ингибиторов протеаз | Roche | 4693124001 | |
| Аппарат для переноса белков | Перенос белков на ПВДФ-мембрану | ||
| ПВДФ-мембрана | Millipore | IPVH08100 | |
| PyMOL | Шр.ödinger, LLC | https://pymol.org/ | Версия 2.6.1; Визуализация и анализ поз докинга белок-лиганд и молекулярных взаимодействий |
| планшеты или пробирки для ОТ-ПЦР в реальном времени | Постановка реакции кРТ-ПЦР | ||
| R | R Foundation for Statistical Computing | https://www.r-project.org/ | Версия 4.3.1; Статистический и биоинформатический анализ |
| пакет randomForest | CRAN | https://cran.r-project.org/package=randomForest | Версия 4.7.1.2; Отбор признаков методом случайного леса |
| REACTOME_БИОСИНТЕЗ_ГЕМА; REACTOME_ДЕГРАДАЦИЯ_ГЕМА; WIKIPATHWAYS_БИОСИНТЕЗ_ГЕМА; REACTOME_УТИЛИЗАЦИЯ_ГЕМА_ИЗ_ПЛАЗМЫ; HALLMARK_МЕТАБОЛИЗМ_ГЕМА | База данных молекулярных сигнатур (MSigDB) | https://www.gsea-msigdb.org/gsea/msigdb | Версия 2024.1.Hs; 283 уникальных гена после объединения; Определение генов, связанных с метаболизмом гема |
| Система ПЦР в реальном времени | Амплификация и детекция методом ОТ-ПЦР в реальном времени | ||
| Рекомбинантный основной фактор роста фибробластов человека | конечная концентрация 1 нг/мл; добавка к среде для культивирования фибробластов | ||
| Буфер RIPA | Servicebio | G2002 | |
| пакет rms | CRAN | https://cran.r-project.org/package=rms | Версия 6.7.1; Построение номограммы |
| Реагенты для SDS-PAGE или готовые гели | Разделение белков методом Электрофореза в полиакриламидном геле с додецилсульфатом натрия (SDS-PAGE) | ||
| пакет Seurat | CRAN | https://satijalab.org/seurat/ | Версия 5.4.0; предобработка, кластеризация и визуализация данных scRNA-seq |
| TarBase | Инструменты DIANA | https://carolina.imis.athena-innovation.gr/diana_tools/ | Версия 9.0; Источник экспериментально подтвержденных взаимодействий миРНК-мРНК |
| Набор для выделения общей РНК II | Омега | R6934-01 | |
| Библиотека активных соединений традиционной китайской медицины | Источник соединений-кандидатов для виртуального скрининга | ||
| Твин-Трис-буферный физраствор | Приготовление блокирующего буфера и промывка мембраны | ||
| Смесь для синтеза первой цепи кДНК UnionScript для кПЦР (с dsDNase) | Гены и | SR511 |
Ссылки
- Dirand Z, et al. Macrophage phenotype is determinant for fibrosis development in keloid disease. Matrix Biol. 2024;128:79-92.
- Fang X, et al. Hypertrophic scarring and keloids: epidemiology, molecular pathogenesis, and therapeutic interventions. MedComm (2020). 2025;6(10):e70381.
- Adler R, et al. Pentoxifylline and long-term risk of keloid formation: a real-world 10-year outcomes study using TriNetX. J Am Acad Dermatol. 2026;94(5):1561-3.
- Banerjee P, et al. Anti-fibrotic properties of a decellularized extracellular matrix scaffold from porcine small intestinal submucosa in normal human and keloid fibroblasts. Int J Mol Sci. 2025;26(24):11764.
- Chang YH, McGrath JA, Hsu CK. Regression of extensive keloids during imatinib therapy for gastrointestinal stromal tumor. JAMA Dermatol. 2025;161(12):1293-4.
- Wang QR, et al. CCL17 drives fibroblast activation in the progression of pulmonary fibrosis by enhancing the TGF-β/Smad signaling. Biochem Pharmacol. 2023;210:115475.
- Higuchi Y, et al. Cavin-2 promotes fibroblast-to-myofibroblast trans-differentiation and aggravates cardiac fibrosis. ESC Heart Fail. 2024;11(1):167-78.
- Zhang H, et al. Plasma apolipoprotein E protein attenuates pulmonary fibrosis through LRP1 and PLAU dual receptor-mediated TGF-β/Smad inhibition. J Adv Res. 2025. doi:10.1016/j.jare.2025.12.045.
- Chen Q, et al. Immune imbalance drives keloid pathogenesis: emerging targets for precision immunotherapy. Adv Wound Care (New Rochelle). 2026:21621918261417702.
- Deng CC, et al. Single-cell RNA-seq reveals immune cell heterogeneity and increased Th17 cells in human fibrotic skin diseases. Front Immunol. 2024;15:1522076.
- Wang Q, et al. Weighted gene co-expression network analysis and machine learning identified the lipid metabolism-related gene LGMN as a novel biomarker for keloid. Exp Dermatol. 2024;33(1):e14974.
- Zhang W, et al. New insights into keloid pathogenesis: biomarker potential for CDK7 and DDB2. Front Cell Dev Biol. 2025;13:1718189.
- Li W, et al. Altered arginine metabolism affects proliferation and radiosensitivity of keloids. Exp Dermatol. 2025;34(3):e70077.
- Jiang J, et al. Ambient fine particulate matter induces cardiac fibrosis through triggering ferroptosis by heme degradation induced-iron overload. Ecotoxicol Environ Saf. 2025;297:118227.
- Lin W, et al. Heme oxygenase-1 overexpression activates the IRF1/DRP1 signaling pathway to promote M2-type polarization of spinal cord microglia. Drug Dev Res. 2024;85(8):e70033.
- Knez J, Kovačič B, Goropevšek A. The role of regulatory T-cells in the development of endometriosis. Hum Reprod. 2024;39(7):1367-80.
- Voltarelli VA, et al. Heme: the lord of the iron ring. Antioxidants (Basel). 2023;12(5):1074.
- Wilks A, Egoshi R. Heme trafficking and the importance of handling nature's most versatile cofactor. Chem Rev. 2025;125(23):11358-78.
- Bertino F, et al. Dysregulation of FLVCR1a-dependent mitochondrial calcium handling in neural progenitors causes congenital hydrocephalus. Cell Rep Med. 2024;5(7):101647.
- Kumar A, et al. Iron regulates the quiescence of naive CD4 T cells by controlling mitochondria and cellular metabolism. Proc Natl Acad Sci U S A. 2024;121(17):e2318420121.
- Jiang H, et al. Gut microbiota dysbiosis in diabetic nephropathy: mechanisms and therapeutic targeting via the gut-kidney axis. Front Endocrinol (Lausanne). 2025;16:1661037.
- Charoentong P, et al. Pan-cancer immunogenomic analyses reveal genotype-immunophenotype relationships and predictors of response to checkpoint blockade. Cell Rep. 2017;18(1):248-62.
- Chen Y, et al. 5-ALA photodynamic metabolite-powered zero-waste ferroptosis amplifier for enhanced hypertrophic scar therapy. Nat Commun. 2025;16(1):8321.
- Li X, et al. Hypericin-mediated photodynamic therapy promotes apoptosis and inhibits fibrosis by inducing HMOX1-mediated ferroptosis in hypertrophic scar fibroblasts. J Photochem Photobiol B. 2025;273:113303.
- Chen Y, et al. Functional transdermal nanoethosomes enhance photodynamic therapy of hypertrophic scars via self-generating oxygen. ACS Appl Mater Interfaces. 2021;13(7):7955-65.
- Oh S, et al. Revealing the pathogenesis of keloids based on the status: active vs inactive. Exp Dermatol. 2024;33(5):e15088.
- Zhao S, et al. New anti-fibrotic strategies for keloids: insights from single-cell multi-omics. Cell Prolif. 2025;58(6):e13818.
- Yasujima T, et al. The role of FLVCR1 and FLVCR2 in choline transport in the Caco-2 intestinal epithelial cell model and rat small intestine. Biochim Biophys Acta Mol Basis Dis. 2025;1871(6):167883.
- Zhang M, Chen H, Qian H, Wang C. Characterization of the skin keloid microenvironment. Cell Commun Signal. 2023;21(1):207.
- Wang Y, et al. FoxC1 activates Notch3 signaling to promote the inflammatory phenotype of keloid fibroblasts and aggravates keloid. Exp Cell Res. 2025;444(2):114402.
- Zhang J, et al. ERG transcriptionally activates SFRP1 to promote apoptosis of keloid fibroblasts and inhibit epithelial-mesenchymal transition and fibrosis through the Wnt3a/β-catenin pathway. Arch Dermatol Res. 2025;317(1):467.
- Ramos-Tovar E, Muriel P. NLRP3 inflammasome in hepatic diseases: a pharmacological target. Biochem Pharmacol. 2023;217:115861.
- Brahadeeswaran S, et al. NLRP3: a new therapeutic target in alcoholic liver disease. Front Immunol. 2023;14:1215333.
- Xiao Y, et al. STING mediates hepatocyte pyroptosis in liver fibrosis by epigenetically activating the NLRP3 inflammasome. Redox Biol. 2023;62:102691.
- Paolucci T, et al. Quantum molecular resonance inhibits NLRP3 inflammasome/nitrosative stress and promotes M1 to M2 macrophage polarization: potential therapeutic effect in osteoarthritis model in vitro. Antioxidants (Basel). 2023;12(7):1358.
- Wei J, et al. FERM domain containing kindlin 1 knockdown attenuates inflammation induced by intracerebral hemorrhage in rats via NLR family pyrin domain containing 3/nuclear factor kappa B pathway. Exp Anim. 2023;72(3):324-35.
- Tao L, Zhou Y, Wu L, Liu J. Comprehensive analysis of sialylation-related genes and construct the prognostic model in sepsis. Sci Rep. 2024;14(1):18110.
- Sun Q, et al. Identification of hub genes and key pathways associated with sepsis progression using weighted gene co-expression network analysis and machine learning. Int J Mol Sci. 2025;26(9):4433.
- Chen JJ. HRI protein kinase in cytoplasmic heme sensing and mitochondrial stress response: relevance to hematological and mitochondrial diseases. J Biol Chem. 2025;301(5):108494.
- Chakrabarty Y, Yang Z, Chen H, Chan DC. The HRI branch of the integrated stress response selectively triggers mitophagy. Mol Cell. 2024;84(6):1090-100.e6.
- Bora P, et al. Drug repurposing screen identifies an HRI activating compound that promotes adaptive mitochondrial remodeling in MFN2-deficient cells. Proc Natl Acad Sci U S A. 2025;122(48):e2517552122.
- Zhang C, et al. CaMKII suppresses proteotoxicity by phosphorylating BAG3 in response to proteasomal dysfunction. EMBO Rep. 2024;25(10):4488-514.
- Chaabani H, et al. Trifloxystrobin induces oxidative stress-dependent activation of the OMA1-DELE1-HRI integrated stress response leading to apoptosis in human neuroblastoma cells. Environ Pollut. 2026;390:127562.
- Das R, et al. CMT2A-linked MFN2 mutation, T206I promotes mitochondrial hyperfusion and predisposes cells towards mitophagy. Mitochondrion. 2024;74:101825.
- De Simone G, et al. Heme scavenging and delivery: the role of human serum albumin. Biomolecules. 2023;13(3):575.
- Turilli-Ghisolfi ES, Lualdi M, Fasano M. Ligand-based regulation of dynamics and reactivity of hemoproteins. Biomolecules. 2023;13(4):683.
- Zhang P, et al. Risk factors and prediction models for cardiotoxicity induced by anthracyclines in malignant chemotherapy. Cancer Chemother Pharmacol. 2025;95(1):73.
- Petrillo S, et al. Endothelial cells require functional FLVCR1a during developmental and adult angiogenesis. Angiogenesis. 2023;26(3):365-84.
- Fiorito V, Tolosano E. Unearthing FLVCR1a: tracing the path to a vital cellular transporter. Cell Mol Life Sci. 2024;81(1):166.
- Manco M, et al. FLVCR1a controls cellular cholesterol levels through the regulation of heme biosynthesis and tricarboxylic acid cycle flux in endothelial cells. Biomolecules. 2024;14(2):149.
- Shi X, et al. Increased melanin induces aberrant keratinocyte-melanocyte-basal-fibroblast cell communication and fibrogenesis by inducing iron overload and ferroptosis resistance in keloids. Cell Commun Signal. 2025;23(1):141.
- Khunger N, Dash A. Impact of air pollution on skin pigmentation: mechanisms and protective strategies. Int J Dermatol. 2025;64(10):1788-801.
- Ahuja K, Raju S, Dahiya S, Motiani RK. ROS and calcium signaling are critical determinant of skin pigmentation. Cell Calcium. 2025;125:102987.
- Dutta A, Chakraborty S, Roy A, Mittal A, et al. Tissue fibrosis in cardiorenal syndrome: crosstalk between heart and kidneys. Nephrol Dial Transplant. 2025;40(7):1273-83.
- Noah AA, et al. Reversal of fibrosis and portal hypertension by empagliflozin treatment of CCl4-induced liver fibrosis: emphasis on gal-1/NRP-1/TGF-β and gal-1/NRP-1/VEGFR2 pathways. Eur J Pharmacol. 2023;959:176066.
- Murakami T, Shigeki S. Pharmacotherapy for keloids and hypertrophic scars. Int J Mol Sci. 2024;25(9):4674.
- Jin J, Zheng Z. Gut microbiota-derived metabolites in keloid and hypertrophic scarring. Front Microbiol. 2025;16:1644758.
- Aubert A, et al. Potential implications of granzyme B in keloids and hypertrophic scars through extracellular matrix remodeling and latent TGF-β activation. Front Immunol. 2024;15:1484462.