Восемь недель бега по беговой дорожке были связаны с изменениями в сердце, кишечном барьере и транскрипции гена Nlrp3, а также с изменением состава микробиоты кишечника, в частности, с увеличением количества Akkermansia muciniphila у мышей с диабетом.
Исследовательская статья
Беговые упражнения связаны с изменениями кишечного барьера и экспрессии гена Nlrp3 в сердце у мышей с сахарным диабетом
В этой статье
Краткое содержание
Аннотация
В данном исследовании изучались связи между физическими упражнениями, экспрессией генов, связанных с кишечным барьером, и экспрессией генов, связанных с сердечным инфламмасомой Nlrp3, на модели диабета у мышей. Метаболическая дисрегуляция индуцировалась у самцов мышей C57BL/6J с помощью диеты с высоким содержанием жиров в сочетании с низкой дозой стрептозотоцина, после чего следовало 8 недель бега на беговой дорожке (наклон 5°, скорость 12 m/min, 20–50 min/день, 5 дней/неделю). По сравнению с малоподвижными диабетическими мышами, у мышей, занимавшихся физическими упражнениями, наблюдались более низкие уровни глюкозы натощак, инсулинорезистентности и липидов в сыворотке крови, а также более высокая экспрессия мРНК Occludin в толстой кишке (относительная экспрессия: 0,38 ± 0,04 у диабетических мышей против 0,79 ± 0,05 у мышей, занимавшихся упражнениями, P < 0,001), более низкая экспрессия мРНК Nlrp3, IL-1β, TNF-α, Col1a1 и Tgfb1 в сердце, а также более низкое соотношение мРНК Bax/Bcl-2 (3,06 ± 0,19 против 1,48 ± 0,10, P < 0,001). Анализ qPCR фекалий шести выбранных таксонов показал, что упражнения были связаны с увеличением относительной численности Akkermansia muciniphila (с 0,31 ± 0,04 до 0,84 ± 0,07) и Lactobacillus (с 0,48 ± 0,05 до 1,01 ± 0,07) и снижением численности Escherichia coli (с 3,84 ± 0,33 до 1,68 ± 0,13, P < 0,01). У мышей, занимавшихся упражнениями, численность A. muciniphila отрицательно коррелировала с экспрессией мРНК Nlrp3 в сердце (R = −0,81, P = 0,0046). Эти корреляционные данные указывают на связи между физическими упражнениями, транскрипционными изменениями в сердце и кишечнике, а также отдельными таксонами кишечной микробиоты у диабетических мышей, но не устанавливают причинно-следственных связей. Все молекулярные результаты ограничены изменениями на уровне мРНК и не демонстрируют функцию кишечного барьера, активацию инфламмасомы, фиброз миокарда, апоптоз или другие функциональные эффекты или эффекты на уровне белков.
Введение
Сахарный диабет представляет собой растущую глобальную угрозу для здоровья, и диабетические осложнения со стороны сердца остаются серьезными состояниями с ограниченным числом специфических методов терапии1,2,3,4. Физические тренировки могут улучшить функцию сердца на моделях животных с диабетом5,6, однако лежащие в основе этого механизмы, особенно те, которые затрагивают микробиоту кишечника и кишечный барьер, остаются изученными не полностью.
Микробиота кишечника регулирует метаболизм и иммунитет хозяина7. При сахарном диабете дисбиоз кишечника и нарушение целостности барьера могут привести к усилению транслокации липополисахаридов (LPS), стимулировать воспаление, опосредованное TLR4, и усугублять повреждение миокарда8,9. Эта воспалительная нагрузка, происходящая из кишечника, может способствовать прогрессированию осложнений диабета, включая сердечную дисфункцию. Количество полезных бактерий, таких как Akkermansia и Faecalibacterium, может снижаться, в то время как бактерии, такие как E. coli, могут размножаться10,11. Подобные микробные изменения могут способствовать развитию локального воспаления кишечника и системной эндотоксемии, что потенциально влияет на отдаленные органы, включая сердце. Инфламмасома NLRP3 является важным медиатором воспаления сердца при диабетической сердечной патологии, и ее активация может модулироваться метаболитами кишечной микробиоты12,13. Определенные микробные продукты, в частности короткоцепочечные жирные кислоты и LPS, оказывают противоположное воздействие на прайминг и сборку NLRP3, что указывает на возможную связь между микробиотой кишечника и воспалительным статусом миокарда.
Физические упражнения могут изменять микробиоту кишечника и улучшать функцию кишечного барьера14,15, однако взаимосвязи между физическими упражнениями, экспрессией генов, связанных с кишечным барьером, и экспрессией генов, связанных с инфламмасомой NLRP3 в сердце, в моделях диабета остаются изученными не полностью. Эпителий кишечника служит интерфейсом между микробами просвета и системным кровотоком и, следовательно, может способствовать возникновению связей между изменениями микробиоты кишечника и воспалительными ответами в сердце. Тем не менее, по-прежнему отсутствуют прямые экспериментальные доказательства, устанавливающие причинно-следственную связь между вызванными упражнениями изменениями кишечного барьера, активацией инфламмасомы NLRP3 и защитой сердца в моделях диабета.
Таким образом, была выдвинута гипотеза о том, что физические нагрузки на беговой дорожке будут ассоциированы с изменениями транскрипции в сердце, изменением состава отдельных таксонов микробиоты кишечника, сохранением экспрессии генов, связанных с кишечным барьером, и снижением экспрессии генов, связанных с инфламмасомой NLRP3 в сердце, у мышей с диабетом. Модель диабета у мышей была создана с использованием диеты с высоким содержанием жиров в сочетании с низкой дозой стрептозотоцина, после чего следовало 8-недельное вмешательство в виде упражнений на беговой дорожке. Оценка включала метаболические параметры, экспрессию мРНК окклюдина в толстой кишке, экспрессию генов, связанных с инфламмасомой NLRP3 в сердце, а также маркеры экспрессии генов воспаления, фиброза и апоптоза. Также было проведено количественное определение отдельных таксонов микробиоты кишечника для оценки изменений в микробиоте, связанных с физическими нагрузками. Корреляционный анализ использовался для изучения взаимосвязей между выбранными таксонами микробиоты кишечника, экспрессией генов, связанных с кишечным барьером, и транскрипционными маркерами сердца. Эти анализы были направлены на выявление ассоциаций, а не на установление причинно-следственного механизма «кишечный барьер — NLRP3».
Протокол
Все процедуры с животными проводились в виварии, аккредитованном международной организацией по аккредитации ухода за лабораторными животными. Протокол был рассмотрен и утвержден Институциональным комитетом по уходу и использованию животных (IACUC; идентификатор утверждения: VS212500103) данного учреждения. Эксперименты проводились в утвержденном стороннем центре, так как в основном учреждении отсутствовал лицензированный виварий для данной конкретной модели.
Создание модели диабета у мышей
Самцов мышей C57BL/6J (возраст 8 недель, класс SPF, масса тела 20–22 g) акклиматизировали в течение 1 недели в контролируемых условиях (22 ± 2 °C, относительная влажность 50 ± 10%, цикл свет/темнота 12 ч) со свободным доступом к стандартному корму и воде.
После акклиматизации мыши были случайным образом распределены с помощью таблицы случайных чисел в группу нормального контроля (Control, n = 10) или группу индукции диабета. Экспериментальные процедуры и измерения результатов проводились исследователями, не знавшими о распределении животных по группам. Животные содержались по четыре особи в стандартных поликарбонатных клетках с обогащенным подстилочным материалом в условиях отсутствия специфических патогенов. Использовались только самцы, чтобы минимизировать потенциальную вариабельность, связанную с эстральным циклом, а также потому, что модель с использованием высокожировой диеты/STZ приводила к формированию более стабильных метаболических фенотипов у самцов.
Мышам, которым индуцировали диабет, в течение 4 недель давали высокожировую диету (60% ккал из жиров), после чего в течение 5 дней подряд вводили стрептозотоцин (STZ; 30 mg/kg массы тела) внутрибрюшинно. STZ растворяли непосредственно перед использованием в 0,1 mol/L цитратном буфере (pH 4.5), хранили в защищенном от света месте и вводили в течение 15 мин после приготовления. Мышам контрольной группы вводили эквивалентные объемы цитратного буфера. Через одну неделю после последней инъекции измеряли уровень глюкозы в крови натощак (FBG) по крови из кончика хвоста после 6-часового голодания. Мыши с FBG ≥ 11.1 mmol/L считались диабетическими. Этих мышей содержали на высокожировой диете еще 4 недели для развития связанных с диабетом изменений в экспрессии генов.
Индукцию модели проводили у 35 мышей, из которых 28 соответствовали критерию диабета. Массу тела и потребление корма контролировали еженедельно, однако эти показатели не использовались в качестве критериев исключения. В ходе фаз моделирования или вмешательства гибели или исключения животных не наблюдалось. Мышей с успешно созданной моделью случайным образом разделили на группу диабета (DM, n = 10) и группу с физическими нагрузками (DM+Ex, n = 10). Итоговый размер выборки для всех видов анализа составил n = 10 в группе, при этом экспериментальной единицей являлась каждая отдельная мышь.
Физические нагрузки на беговой дорожке
Мыши в группе DM+Ex выполняли упражнения на беговой дорожке при наклоне 5° и скорости 12 m/min 5 дней в неделю в течение 8 недель. Все занятия по физическим упражнениям проводились с 9:00 до 11:00. Перед началом вмешательства мыши проходили акклиматизацию к бегу на дорожке в течение 3 дней при скорости 6 m/min по 5 min/day с наклоном 0°. Каждое занятие включало 5-минутную разминку при 6 m/min и 5-минутную заминку при 6 m/min. Для стимулирования бега использовалось легкое подталкивание; электрическая стимуляция не применялась.
Ежедневная продолжительность бега составляла 20 min на 1-й неделе, 25 min на 2-й неделе, 30 min на 3-й неделе, 35 min на 4-й неделе, 40 min на 5-й неделе, 45 min на 6-й неделе и 50 min на 7–8-х неделях. Мыши контрольной группы и группы DM помещали на стационарные беговые дорожки на аналогичное время для контроля влияния манипуляций и воздействия окружающей среды. В качестве заранее определенного критерия исключения было установлено выполнение менее 80% предписанных сеансов физических упражнений. Ни одно животное не попало под этот критерий; все животные завершили предписанные сеансы упражнений, нежелательных явлений не наблюдалось.
Сбор образцов
Через двенадцать часов после последнего сеанса физических упражнений мышей подвергали голоданию в течение 6 ч и анестезировали путем ингаляции изофлурана (3% для индукции и 1,5–2% для поддержания в 100% O₂ при 1 L/min). Примерно 500 µL крови собирали из ретроорбитального венозного сплетения, оставляли для свертывания при комнатной температуре на 30 мин и центрифугировали при 3,000 × g в течение 15 мин при 4 °C. Полученную сыворотку хранили при −80 °C.
Затем мыши были подвергнуты эвтаназии путем перелома шейных позвонков под глубоким наркозом. Сердца быстро извлекали и промывали ледяным фосфатно-солевым буфером (PBS). Ткань левого желудочка была изолирована; одну часть подвергли мгновенной заморозке в жидком азоте и хранили при −80 °C для экстракции РНК, а оставшуюся ткань фиксировали в 4% параформальдегиде. Было собрано примерно 1 cm ткани дистального отдела толстой кишки, которую промыли PBS, мгновенно заморозили и хранили при −80 °C. Свежие образцы фекалий собирали непосредственно из прямой кишки в период с 9:00 до 10:00 утра для минимизации загрязнения в клетке, переносили в стерильные пробирки и помещали на хранение при −80 °C в течение 15 min после сбора.
Биохимические показатели сыворотки крови
Уровень FBG измеряли с помощью системы измерения глюкозы в крови. Уровень инсулина в сыворотке определяли методом иммуноферментного анализа, а общий холестерин и триглицериды измеряли с помощью автоматического биохимического анализатора. Инсулинорезистентность рассчитывали по гомеостатической модели оценки: HOMA-IR = FBG (mmol/L) × инсулин (mIU/L)/22.5.
Экстракция РНК и количественная ПЦР в реальном времени из тканей миокарда
Примерно 30 mg ткани левого желудочка гомогенизировали в реагенте для экстракции РНК на основе фенол-гуанидина, после чего общую РНК экстрагировали согласно протоколу производителя реагента. Концентрацию и чистоту РНК оценивали спектрофотометрически; приемлемым считалось соотношение A260/A280 в диапазоне 1.8–2.0. Общую РНК (1 µg) подвергали обратной транскрипции для получения комплементарной ДНК (кДНК).
Количественную ПЦР (кПЦР) проводили в реакционной смеси объемом 20 µL, содержащей флуоресцентную мастер-смесь для кПЦР с ДНК-связывающим красителем, прямые и обратные праймеры в концентрации 0,4 µmol/L каждый и 2 µL матрицы кДНК. Условия амплификации включали 95 °C в течение 30 s, после чего следовало 40 циклов: 95 °C в течение 5 s и 60 °C в течение 34 s. Анализ кривых плавления проводили в диапазоне 65–95 °C для подтверждения специфичности амплификации. Все реакции выполняли в дубликатах, включая контроли без матрицы и без обратной транскрипции. Эффективность амплификации для всех пар праймеров составляла 90–105%. Праймеры для Tnfa, Il1b, Tgfb1, Col1a1, Nlrp3 и Gapdh приведены в Таблице 1. Относительную экспрессию генов рассчитывали методом 2−ΔΔCt и выражали как кратность изменения по сравнению с контрольной группой.
Экстракция ДНК микробиоты кала и количественное определение методом кПЦР
Общая микробная ДНК была экстрагирована из образцов фекалий с использованием протокола экстракции ДНК из кала. Относительная численность шести выбранных бактериальных таксонов — Faecalibacterium prausnitzii, Akkermansia muciniphila, рода Lactobacillus, рода Bifidobacterium, Escherichia coli и рода Desulfovibrio — была определена методом кПЦР с использованием таксон-специфичных праймеров, перечисленных в Таблице 1. Универсальные бактериальные праймеры к 16S рРНК использовались в качестве эталона для определения общей численности бактерий.
Относительная численность рассчитывали по методу 2−ΔΔCt, используя общую бактериальную 16S рРНК в качестве референса, с нормализацией по контрольной группе. Для каждого целевого гена были построены стандартные кривые с использованием серийных разведений плазмидной ДНК с известными концентрациями для проверки эффективности амплификации. Все реакции проводили в двух повторах с анализом кривых плавления. Поскольку бактериальные таксоны различаются по количеству копий гена 16S рРНК, результаты представляли в виде относительной численности по методу 2−ΔΔCt, а не в виде абсолютного числа копий.
Оценка экспрессии окклюдина в толстой кишке
Примерно 30 mg ткани толстой кишки использовали для экстракции всей РНК и синтеза кДНК, как описано выше. Экспрессию мРНК Occludin измеряли методом кПЦР с использованием следующих праймеров: прямой, 5′-GTCGAATGTCTTTGCTGGTGGT-3′; обратный, 5′-GCAGCAGCCATGTACTCTTCAC-3′. В качестве внутреннего контроля использовали Gapdh, а относительную экспрессию рассчитывали с помощью метода 2−ΔΔCt.
Статистический анализ
Данные представлены в виде среднего значения ± стандартное отклонение (SD). Нормальность распределения оценивали с помощью теста Шапиро-Уилка, а однородность дисперсии — с помощью теста Ливена. Данные между группами, соответствующие параметрическим критериям, анализировали с помощью однофакторного дисперсионного анализа (ANOVA) с последующим применением теста Тьюки (HSD) для апостериорных попарных сравнений. Сравнения двух групп проводили с использованием двухстороннего t-критерия Стьюдента для независимых выборок t-тест.
Для оценки взаимосвязей между переменными использовался ранговый корреляционный коэффициент Спирмена. Для построения тепловой карты корреляций рассчитывались частные корреляции Спирмена с поправкой на экспериментальную группу. P значения были скорректированы с учетом множественных сравнений с помощью процедуры контроля частоты ложных открытий (FDR) Бенджамини — Хохберга, и скорректированный по FDR P < 0,05 считалось статистически значимым. Величины эффекта (d Коэна) f для ANOVA и р (для корреляций), а также 95% доверительные интервалы для ключевых различий средних значений были указаны там, где это было применимо. Весь статистический анализ был выполнен с использованием программного обеспечения для статистических вычислений (версия 4.2.0).
Результаты
Беговая дорожка способствовала улучшению метаболических нарушений у мышей с диабетом
По сравнению с группой контроля, у мышей с диабетом наблюдался значительно более высокий уровень глюкозы натощак (18,23 ± 0,61 против 6,03 ± 0,21 ммоль/л, P < 0,001), сывороточный инсулин (16,30 ± 1,04 против 8,23 ± 0,38 мЕд/л, P < 0,001), HOMA-IR (13,19 ± 1,18 против 2,21 ± 0.17, P < 0,001), общий холестерин (4,62 ± 0,23 против 2,01 ± 0,09 ммоль/л, P < 0,001) и триглицеридов (2,12 ± 0,15 против 0,80 ± 0,08 ммоль/л, P < 0,001). После 8-недельного вмешательства с упражнениями на беговой дорожке эти параметры снизились до 12,03 ± 0,63 ммоль/л, 10,61 ± 0,71 мМЕ/мл, 5,69 ± 0.67, 3.09 ± 0,24 ммоль/л и 1,20 ± 0,14 ммоль/л соответственно по сравнению с диабетическими мышами (P < 0,01 или P < 0,001); однако большинство значений оставались выше, чем в группе Контроль (Рисунок 1A–E). Однофакторный дисперсионный анализ показал значимое влияние группы на все параметры (все F(2,27) > 25.0, P < 0.001).
Физические упражнения ассоциировались с более высокой экспрессией мРНК окклюдина в толстой кишке и более низкой экспрессией генов, связанных с кардиальным инфламасомом
У мышей с диабетом в толстой кишке Окклюдин уровень экспрессии мРНК был приблизительно на 62 % ниже, чем в контрольной группе (0,38 ± 0,04 против 1,00 ± 0.06, P < 0,001). Одновременно с этим кардиальная Nlrp3, Il1bи Tnfa уровень экспрессии мРНК увеличился соответственно в 5,6, 6,5 и 5,1 раза по сравнению с контролем (все P < 0,001). После интервенции с физическими упражнениями, Окклюдин уровень экспрессии мРНК увеличился до 0,79 ± 0.05 (P < 0,001 против мышей с диабетом), тогда как Nlrp3, Il1bи Tnfa уровень экспрессии мРНК снизился до 2,30 ± 0.21, 2.66 ± 0,25 и 2,14 ± 0,17 соответственно (все P < 0,001 против мышей с диабетом; Рисунок 2A–D).
Физическая нагрузка была связана со снижением экспрессии генов, связанных с миокардиальным фиброзом и апоптозом
Группа с диабетом показала повышенную экспрессию в сердце генов, связанных с фиброзом Col1a1 (4.46 ± 0,29-кратное P < 0,001) и Tgfb1 (4.17 ± 0,24-кратное P < 0,001), наряду с более высоким Bax/Bcl2 соотношение мРНК (3,06 ± 0.19, P < 0,001) по сравнению с группой контроля. После тренировки Col1a1 и Tgfb1 уровень экспрессии мРНК снизился до 2,02 ± 0,16 и 1,92 ± 0,16, соответственно (оба P < 0,001 по сравнению с мышами с диабетом), и Bax/Bcl2 соотношение мРНК снизилось до 1,48 ± 0.10 (P < 0,001 против мышей с диабетом; Рисунок 3A–C).
Физические упражнения были связаны с изменениями отдельных таксонов кишечной микробиоты у мышей с диабетом
По сравнению с контрольной группой, у мышей с диабетом наблюдалось значительно более низкое относительное содержание четырёх выбранных бактериальных таксонов: F. prausnitzii (0.25 ± 0,03 против 1,01 ± 0.07), A. muciniphila (0.31 ± 0,04 против 1,00 ± 0.06), Lactobacillus (0.48 ± 0,05 против 0,99 ± 0,04), и Bifidobacterium (0.56 ± 0,06 против 1,00 ± 0,06; все P < 0,001). Напротив, относительные количества E. coli (3.84 ± 0,33 против 0,99 ± 0,08) и Desulfovibrio (3.07 ± 0,26 против 0,99 ± 0,07) были значительно выше (оба) P < 0,001). Вмешательство в виде физических упражнений ассоциировалось со значительно более высокими относительными содержаниями F. prausnitzii, A. muciniphila, Lactobacillusи Bifidobacterium (P < 0,01 или P < 0,001), с A. muciniphila достигая 0,84 ± 0.07. Одновременно относительные количества E. coli и Desulfovibrio снизилось до 1,68 ± 0,13 и 1,52 ± 0,08, соответственно (оба P < 0,001 против мышей с диабетом; Рисунок 4A–Ф).
Выбранные микробные изменения коррелировали с экспрессией генов в сердце и толстой кишке
Спирмен'Был проведен корреляционный анализ для оценки взаимосвязей между относительным содержанием отдельных таксонов микробов и маркерами экспрессии генов в тканях сердца и толстой кишки (Рисунок 5A). Относительная численность A. muciniphila была отрицательно коррелирована с сердечной Nlrp3 мРНК (R = −0.81, P = 0,0046) и Tnfa мРНКR = −0.80, P = 0,0054). Относительная численность E. coli положительно коррелировал с колонным Окклюдин экспрессия мРНК (R = 0.66, P = 0.036; Рисунок 5B–D). Эти результаты показали ассоциации между отдельными таксонами кишечных микроорганизмов и транскрипционными маркерами сердца и толстой кишки, но не установили причинно-следственные связи.
НАЛИЧИЕ ДАННЫХ:
Наборы данных, сгенерированные и/или проанализированные в ходе данного исследования, доступны у соответствующего автора по разумному запросу.
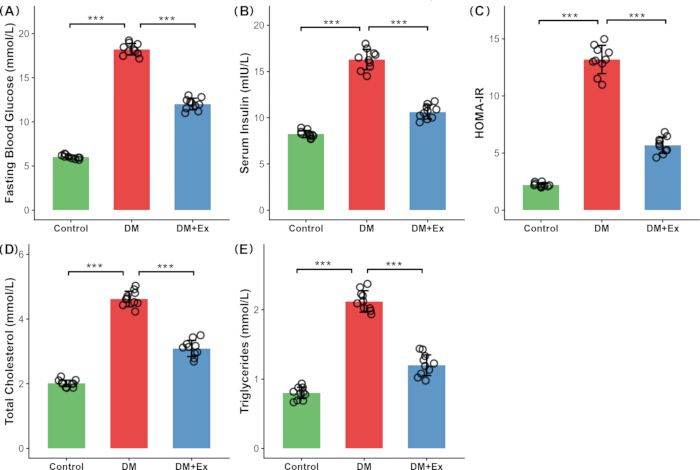
Рисунок 1: Влияние беговой дорожки на метаболические параметры у мышей с диабетом (AУровень глюкозы в крови натощак.B) Сывороточный инсулин. (CHOMA-IRDОбщий холестерин.EТриглицериды в группах Контроль, СД и СД+Упражнения. Данные представлены как среднее ± SD (n = 10 в каждой группе), с нанесенными на каждый столбец отдельными точками данных. Сравнения между группами проводили с использованием однофакторного дисперсионного анализа (ANOVA) с последующим тестом Тьюки'с последующим тестом. *P < 0.05, **P < 0.01, ***P < 0,001; ns = не значимо. Сокращения: DM = модель диабета; Ex = физические упражнения; HOMA-IR = гомеостатическая модель оценки инсулинорезистентности; SD = стандартное отклонение. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
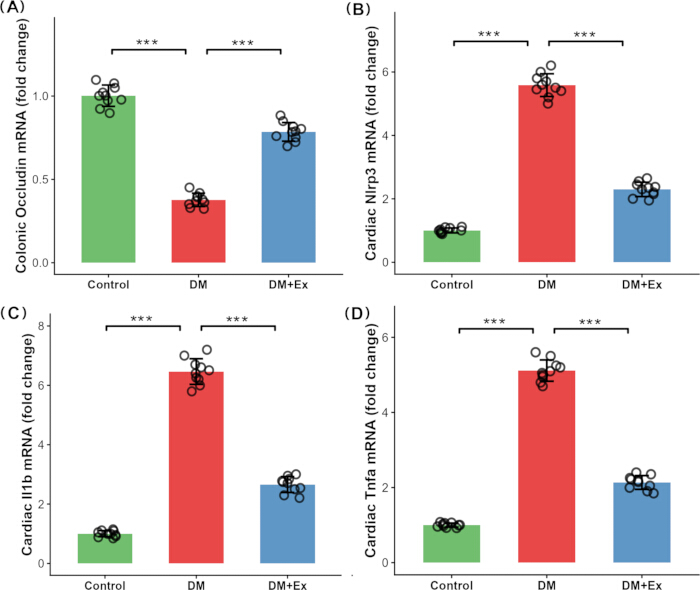
Рисунок 2: Влияние беговой дорожки на экспрессию генов, связанных с кишечным барьером, и генов, связанных с инфламмасомой сердца, у мышей с диабетом. (A) Относительная ободочная Окклюдин экспрессия мРНК. (B) Относительное сердечное Nlrp3 экспрессия мРНК. (C) Относительное сердце Il1b экспрессия мРНКD) Относительный сердечный Tnfa экспрессия мРНК. Экспрессия генов была нормализована к Gapdh и выражены в виде кратного изменения относительно группы контроля. Данные представлены как среднее ± SD (n = 10 в каждой группе). *P < 0.05, **P < 0.01, ***P < 0.001. Сокращения: IL-1β = интерлейкин-1β; ФНО-α фактор некроза опухолиα; SD = стандартное отклонение. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
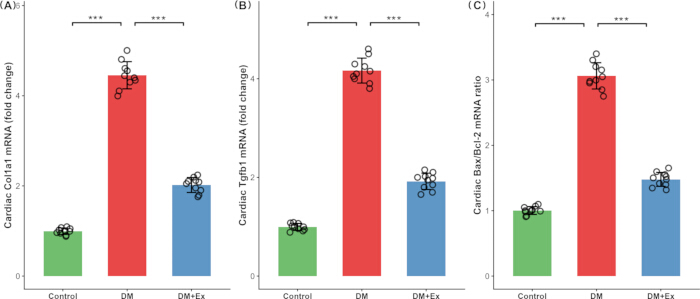
Рисунок 3Влияние беговой дорожки на экспрессию генов, связанных с миокардиальной фиброзом и апоптозом, у мышей с диабетом (A) Относительный кардиальный Col1a1 Экспрессия мРНК.B) Относительное сердечное Tgfb1 Экспрессия мРНК. (C) Bax/Bcl2 соотношение мРНК. Экспрессия генов была нормализована к Gapdh и выражали как кратность изменения относительно группы контроля. Bax/Bcl2 соотношение было рассчитано по относительным значениям экспрессии мРНК. Данные представлены как среднее ± SD (n = 10 в каждой группе), с нанесением отдельных точек данных на каждом столбце. *P < 0.05, **P < 0.01, ***P < 0,001. Сокращения: Col1a1 = коллаген I типа альфа 1; Tgfb1 = трансформирующий ростовой фактор-β1; Bax = белок BCL2-ассоциированный X; Bcl2 = лимфома B-клеток 2; SD = стандартное отклонение. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
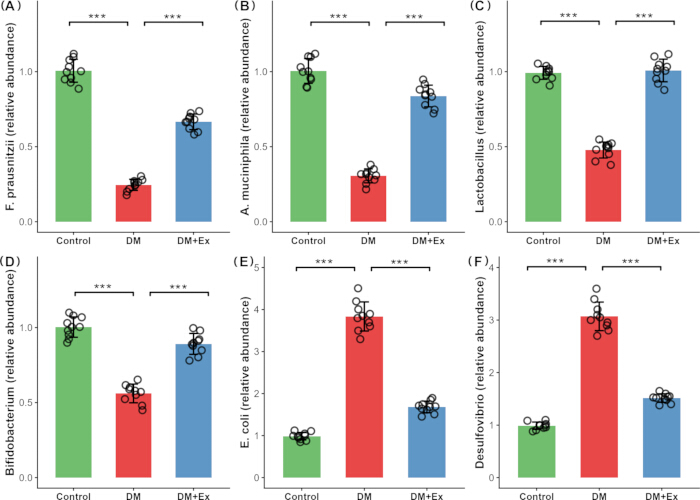
Рисунок 4: Влияние беговой дорожки на относительное содержание отдельных таксонов кишечной микробиоты у мышей с диабетом. (A) Faecalibacterium prausnitzii. (B) Akkermansia muciniphila. (C) Lactobacillus. (D) Bifidobacterium. (E) Escherichia coli. (F) DesulfovibrioОтносительная численность определялась методом количественной ПЦР с использованием специфичных для таксона мишеней 16S рРНК относительно общей бактериальной 16S рРНК и нормализовывалась к группе контроля. Данные представлены как среднее значение ± SD (н = 10 в каждой группе). *P < 0.05, **P < 0.01, ***P < 0,001. Аббревиатура: SD = стандартное отклонение. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
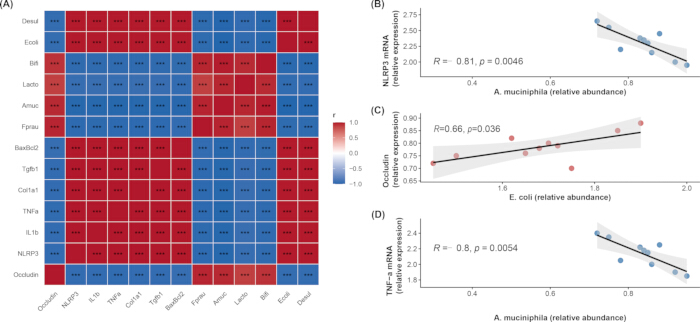
Рисунок 5Корреляционный анализ между избранными таксонами кишечной микрофлоры и параметрами экспрессии генов в сердце и толстой кишке. (AТепловая карта, показывающая коэффициент Спирмена'коэффициенты корреляции между выбранными таксонами бактерий и колонными Окклюдин мРНК, сердце Nlrp3, Il1bи Tnfa мРНК, Col1a1 и Tgfb1 мРНК и Bax/Bcl2 соотношение мРНК. Корреляции рассчитывали с использованием данных всех трех групп (n = 30) частные коэффициенты корреляции Спирмена с учётом экспериментальной группы. Цветовая шкала варьирует от синего для отрицательных корреляций до красного для положительных. Звёздочки внутри тепловой карты указывают на значимость после поправки FDR (*P < 0.05, **P < 0.01, ***P < 0.001). (BКорреляция между A. muciniphila относительная численность и сердце Nlrp3 экспрессия мРНК в группе DM+Ex.CКорреляция между E. coli относительное содержание и толстая кишка Окклюдин экспрессия мРНК в группе DM+Ex.D) Корреляция между A. muciniphila относительное содержание и сердце Tnfa Экспрессия мРНК в группе DM+Ex. Каждая точка соответствует отдельной мыши. Для визуализации показаны линии линейной регрессии и 95% доверительные интервалы. Аббревиатуры: DM = модель диабета; Ex = физическая нагрузка; FDR = частота ложных обнаружений. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
| Ген/Микробный | Прямой праймер | Обратный праймер |
| Tnfa | CCCTCACACTCAGATCATCTTCT | GCTACGACGTGGGCTACAG |
| Il1b | GCAACTGTTCCTGAACTCAACT | ATCTTTTGGGGTCCGTCAACT |
| Tgfb1 | CTCCCGTGGCTTCTAGTGC | GCCTTAGTTTGGACAGGATCTG |
| Col1a1 | GCTCCTCTTAGGGGCCACT | CCACGTCTCACCATTGGGG |
| Bax | AGACAGGGGCCTTTTTGCTAC | AATTCGCCGGAGACACTCG |
| Bcl2 | GCTACCGTCGTGACTTCGC | CCCCACCGAACTCAAAGAAGG |
| Nlrp3 | GTGAGCCCACACCACAGTTC | GACGTTCACCTCGCAGATGA |
| Gapdh | AGGTCGGTGTGAACGGATTTG | TGTAGACCATGTAGTTGAGGTCA |
| Общее количество бактерий (16S рРНК) | ACTCCTACGGGAGGCAGCAG | ATTACCGCGGCTGCTGG |
| F. prausnitzii | GGAGGAAGAAGGTCTTCGG | AATTCCGCCTACCTCTGCACT |
| A. muciniphila | CAGCACGTGAAGGTGGGGAC | CCTTGCGGTTGGCTTCAGAT |
| Lactobacillus | AGCAGTAGGGAATCTTCCA | ATTYCACCGCTACACATG |
| Bifidobacterium | TCGCGTCCGGTGTGAAAG | CCACATCCAGCATCCAC |
| E. coli | AGGCCTTCGGGTTGTAAAGT | GTTAGCCGGTGCTTCTTCTG |
| Десулfovибрио | CCGTAGATATCTGGAGGAACATCAG | ACATCTAGCATCCATCGTTTACAGC |
Таблица 1: Последовательности праймеров, использованных для количественной ПЦР в реальном времени.
Обсуждение
В данном исследовании была использована модель диабета у мышей, индуцированная диетой с высоким содержанием жиров в сочетании с низкими дозами STZ, для оценки метаболических, кишечных, сердечных и микробных изменений, связанных с физическими нагрузками. Восемь недель упражнений на беговой дорожке сопровождались улучшением метаболических показателей, повышением экспрессии мРНК Occludin в толстой кишке, снижением экспрессии генов, связанных с инфламмасомой Nlrp3 в сердце, а также снижением экспрессии генов, связанных с воспалением, фиброзом и апоптозом миокарда. Физические нагрузки также были связаны с изменениями относительной численности некоторых таксонов микробиоты кишечника. В совокупности эти результаты позволяют предположить, что вызванные физическими нагрузками транскрипционные изменения в сердце могут быть связаны с изменениями экспрессии генов кишечного барьера и состава определенных таксонов микробиоты кишечника, хотя причинно-следственная связь установлена не была.
Как и ожидалось для модели диабета, у мышей развились выраженные метаболические нарушения, включая гипергликемию, гиперинсулинемию, инсулинорезистентность и дислипидемию, что согласуется с общепринятой патологической парадигмой16,17. 8-недельный режим физических нагрузок был связан со снижением уровня глюкозы натощак примерно на 34% и индекса HOMA-IR на 57%, что указывает на частичное улучшение инсулиновой чувствительности. На уровне миокарда физические нагрузки привели к снижению экспрессии мРНК-маркеров воспаления (Tnfa, Il1b), фиброза (Tgfb1, Col1a1) и апоптоза (Bax/Bcl2) на 40%–60%, что соответствует результатам предыдущих исследований, связывающих аэробные нагрузки с активацией AMPK и ингибированием NF-κB18,19. Однако ни один из этих параметров не вернулся к значениям контрольной группы, что свидетельствует о недостаточности 8-недельного вмешательства для нормализации сформировавшегося транскрипционного фенотипа, связанного с диабетом, что может быть обусловлено стойкими эффектами «гликемической памяти»20.
Экспрессия мРНК Occludin в толстой кишке была примерно на 62% ниже у мышей с диабетом, что указывает на снижение экспрессии генов, связанных с кишечным барьером. Одновременно с этим экспрессия мРНК Nlrp3, Il1b и Tnfa в сердце увеличилась в 5,6, 6,5 и 5,1 раза соответственно. Инфламмасома NLRP3 является важным сенсором врожденной иммунной системы и вовлечена в развитие сердечной патологии при диабете. Гипергликемия может повышать экспрессию гена Nlrp3 в миокарде через пути активных форм кислорода (ROS) и белка, взаимодействующего с тиоредоксином (TXNIP), с последующим воздействием на воспалительную сигнализацию, связанную с IL-1β и IL-1821,22. Увеличенная системная транслокация липополисахаридов (LPS) вследствие нарушения кишечного барьера также была описана как вышестоящий стимул для прайминга NLRP323. LPS может повышать экспрессию Nlrp3 и про-Il1b через сигнальную ось TLR4/MyD88/NF-κB, обеспечивая первый сигнал, необходимый для прайминга инфламмасомы24. В данной модели диабета наблюдалось повышение относительного содержания E. coli, наряду со снижением экспрессии мРНК Occludin в толстой кишке и повышением экспрессии генов, связанных с сердечной инфламмасомой. Эти параллельные изменения согласуются с возможным воспалительным путем, связанным с кишечником, однако не демонстрируют усиления транслокации LPS или причинно-следственного механизма взаимодействия «кишечник-сердце».
Физические нагрузки были связаны с увеличением экспрессии мРНК Occludin в толстой кишке примерно до 79% от значения в контрольной группе, в то время как экспрессия мРНК Nlrp3, Il1b и Tnfa в сердце снизилась примерно в 2,3, 2,7 и 2,1 раза по сравнению со значениями в контрольной группе соответственно. Эти результаты указывают на связь между более высокой экспрессией генов, связанных с кишечным барьером, и более низкой экспрессией воспалительных генов в сердце после физических нагрузок. В предыдущих исследованиях предполагалось, что физическая активность может поддерживать функцию кишечного барьера за счет усиления выработки слизи, регуляции белков плотных контактов и улучшения перфузии кишечника25,26,27,28. Однако полученные данные были ограничены измерениями мРНК и, следовательно, не подтвердили эти функциональные механизмы.
Целевой анализ микробиоты кишечника показал, что физические упражнения были связаны с частичным обращением изменений относительной численности отдельных таксонов, характерных для диабета, в частности, с увеличением количества A. muciniphila и снижением количества E. coli. Эти взаимные изменения согласуются с ранее описанными ассоциациями между данными таксонами и процессами поддержания барьерной функции и эндотоксин-зависимыми процессами29,30,31. Однако, поскольку количественная оценка проводилась только для выбранных таксонов, полученные результаты следует интерпретировать как связанные с физическими упражнениями изменения относительной численности конкретных бактерий, а не как комплексную перестройку микробиоты кишечника.
Корреляционный анализ дополнительно выявил связи между выбранными микробными таксонами и транскрипционными маркерами. В группе с физическими нагрузками обилие A. muciniphila отрицательно коррелировало с экспрессией мРНК Nlrp3 (R = −0.81, P = 0.0046) и Tnfa (R = −0.80, P = 0.0054) в сердце. Напротив, обилие E. coli положительно коррелировало с экспрессией мРНК Occludin в толстой кишке (R = 0.66, P = 0.036; Рисунок 5C). Положительная связь между E. coli и мРНК Occludin противоречила первоначальной гипотезе и указывает на то, что взаимосвязь между выбранными таксонами микробиоты кишечника и экспрессией генов, связанных с кишечным барьером, не объясняется простой линейной моделью. Эти корреляции соответствовали связям между физическими нагрузками, выбранными микробными таксонами и транскрипционными маркерами хозяина, но не устанавливали причинно-следственной связи. Предыдущие данные, показывающие, что истощение популяции A. muciniphila может увеличить кишечную проницаемость и метаболическую эндотоксемию32, вместе с данными, указывающими на роль NLRP3 в патологии сердца при диабете33, обеспечивают биологический контекст для этих ассоциаций. Тем не менее, настоящее исследование не продемонстрировало напрямую, что увеличение количества A. muciniphila улучшало функцию слизистого барьера, снижало транслокацию LPS или ослабляло опосредованное TLR4/NLRP3 воспаление в сердце.
Данное исследование имело несколько ограничений. Во-первых, для количественного определения шести репрезентативных бактериальных таксонов использовалась таргетная qPCR 16S рРНК, а не секвенирование ампликонов 16S или метагеномное секвенирование. Следовательно, не удалось провести комплексную оценку структуры микробного сообщества кишечника и его функционального потенциала, а также оценить более широкие сдвиги в составе сообщества или функциональные пути. Таким образом, результаты были описаны как изменения относительной численности выбранных таксонов, а не как ремоделирование микробиоты кишечника. Во-вторых, уровни циркулирующего LPS, концентрации SCFA в плазме и проницаемость кишечника не измерялись напрямую, что ограничивает механистическую интерпретацию. В-третьих, исследование опиралось преимущественно на данные об экспрессии мРНК. Валидация целостности барьера, активации инфламмасом, фиброза и апоптоза на уровне белков и функциональном уровне не проводилась. Соответственно, выводы были ограничены транскрипционными изменениями и не устанавливали эффекты на функциональном или белковом уровнях. В-четвертых, изучался только один режим интенсивности и продолжительности физических нагрузок, что ограничивает выводы относительно оптимального назначения физических упражнений для коррекции транскрипционных изменений в сердце, связанных с диабетом. В-пятых, изучались только самцы мышей, и полученные результаты могут быть не применимы к самкам. В-шестых, отсутствие контрольной группы здоровых животных, подвергавшихся физическим нагрузкам, ограничило возможность отличить специфические для диабета ответы от физиологических эффектов упражнений. В-седьмых, эхокардиография и гистопатология сердца не проводились; поэтому модель была описана как модель мышей с диабетом, а не как подтвержденная модель диабетической кардиомиопатии, и все результаты по сердцу были ограничены транскрипционными изменениями. Наконец, некоторые наблюдаемые корреляции могли отражать разделение по группам, а не внутригрупповые биологические связи, хотя для снижения этого риска использовался анализ частичной корреляции с контролем по группам.
Таким образом, 8 недель упражнений на беговой дорожке были связаны с улучшением метаболизма, а также с изменениями транскрипции в сердце и толстой кишке у мышей с диабетом. Эти изменения происходили параллельно с изменением относительной численности отдельных таксонов микробиоты кишечника, в частности, с увеличением количества A. muciniphila и снижением количества E. coli. Наблюдаемые взаимосвязи обосновывают необходимость дальнейшего изучения отношений между физическими упражнениями, отдельными таксонами микробиоты кишечника, экспрессией генов, связанных с кишечным барьером, и транскрипцией генов, связанных с кардиальной инфламмасомой. Для проверки предлагаемых механизмов и установления причинно-следственной связи потребуются будущие исследования, включающие более широкий профиль микробиома, количественное определение SCFA, тесты на проницаемость кишечника, а также валидацию на уровне белков или гистологический анализ. Потребуются дополнительные интервенционные исследования с использованием трансплантации фекальной микробиоты, добавок A. muciniphila или ингибирования NLRP3, чтобы определить, отражают ли наблюдаемые ассоциации причинно-следственные пути.
Раскрытие информации
Авторы заявляют об отсутствии конфликтов финансовых интересов или личных отношений, которые могли бы повлиять на работу, описанную в данной статье. При подготовке данной рукописи или иллюстраций инструменты ИИ не использовались.
ВКЛАД АВТОРОВ:
H.H. и G.Z. разработали концепцию и дизайн исследования. H.H., G.Z. и Y.X. провели эксперименты на животных и сбор образцов. H.H. и G.Z. провели эксперименты по молекулярной биологии и собрали данные. H.H. и Y.X. выполнили статистический анализ. H.H. подготовил черновик рукописи. H.W. критически пересмотрел рукопись на предмет важного интеллектуального содержания. Все авторы прочитали и утвердили окончательный вариант рукописи
Благодарности
Данное исследование не получило никаких специальных грантов от финансирующих организаций государственного, коммерческого или некоммерческого секторов.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| Глюкометр Accu-Chek и тест-полоски | Roche | Accu-Chek Active | Используется для измерения уровня глюкозы в крови натощак |
| Автоматический биохимический анализатор | Hitachi | 7180 | Используется для биохимического анализа сыворотки крови |
| Мыши C57BL/6J (самцы, 8 недель) | Beijing Vital River Laboratory Animal Technology Co., Ltd. | SCXK (Beijing) 2021-0006 | Экспериментальные животные, использованные для создания модели диабета у мышей |
| Цитратный буфер (0.1 mol/L, pH 4.5) | Sigma-Aldrich | C8532 | Используется для приготовления раствора стрептозотоцина |
| Набор для иммуноферментного анализа (ELISA) инсулина мыши | Wuhan HuaMei Biotech | CSB-E05070m | Используется для измерения уровня инсулина в сыворотке крови |
| Диета с высоким содержанием жиров (60% ккал из жиров) | Research Diets | D12492 | Используется для индукции и поддержания модели диабета |
| Изофлуран | RWD Life Science | R510-22-10 | Используется для ингаляционной анестезии |
| Микроцентрифуга | Eppendorf | 5424 R | Используется для центрифугирования образцов |
| Спектрофотометр NanoDrop 2000 | Thermo Fisher Scientific | ND-2000 | Используется для оценки концентрации и чистоты RNA |
| Параформальдегид (4%, в PBS) | Servicebio | G1101 | Используется для фиксации образцов тканей |
| Фосфатно-солевой буфер (PBS) | Servicebio | G0002 | Используется для промывки образцов тканей |
| Power SYBR Green PCR Master Mix | Applied Biosystems (Thermo Fisher) | 4367659 | Используется для количественной ПЦР в реальном времени |
| PrimeScript RT Reagent Kit (для qPCR) | TaKaRa (Takara Bio) | RR037A | Используется для обратной транскрипции RNA в cDNA |
| QIAamp Fast DNA Stool Mini Kit | Qiagen | 51604 | Используется для экстракции микробной DNA из образцов фекалий |
| Программное обеспечение R | R Foundation | 4.2.0 | Используется для статистического анализа |
| Система ПЦР в реальном времени (StepOnePlus) | Applied Biosystems (Thermo Fisher) | StepOnePlus | Используется для амплификации и детекции в количественной ПЦР в реальном времени |
| Стрептозотоцин (STZ) | Sigma-Aldrich | S0130 | Используется совместно с диетой с высоким содержанием жиров для индукции модели диабета у мышей |
| Набор для определения общего холестерина (TC) | Nanjing Jiancheng Bioengineering Institute | A111-1 | Используется для измерения общего холестерина в сыворотке крови |
| Беговая дорожка (моторизованная, с контролем наклона) | Zhongshi Dichuang (Beijing) | ZS-PT-1 | Используется для проведения физических упражнений на беговой дорожке |
| Набор для определения триглицеридов (TG) | Nanjing Jiancheng Bioengineering Institute | A110-1 | Используется для измерения триглицеридов в сыворотке крови |
| Реагент TRIzol | Invitrogen (Thermo Fisher) | 15596018 | Используется для экстракции общей RNA из образцов тканей |
Ссылки
- Lu Y, et al. Vascular complications of diabetes: A narrative review. Medicine. 2023;102(40):e35285.
- Nakamura K, et al. Pathophysiology and treatment of diabetic cardiomyopathy and heart failure in patients with diabetes mellitus. International Journal of Molecular Sciences. 2022;23(7):3587.
- Abdullah AR, et al. A comprehensive review on diabetic cardiomyopathy (DCM): histological spectrum, diagnosis, pathogenesis, and management with conventional treatments and natural compounds. Naunyn-Schmiedeberg's Archives of Pharmacology. 2025;398(8):9929-9969.
- Hassooni FRH, et al. Advances in diabetic cardiomyopathy: current and potential management strategies and emerging biomarkers. Annals of Medicine and Surgery. 2025;87(1):224-233.
- Zhong L, et al. Exercise and dietary interventions in the management of diabetic cardiomyopathy: mechanisms and implications. Cardiovascular Diabetology. 2025;24(1):159.
- Ma X, et al. Beneficial effects of different types of exercise on diabetic cardiomyopathy. Biomolecules. 2025;15(9):1223.
- Liu Y, et al. Decoding the gut microbiota-immune dialogue: from bidirectional axis to therapeutic applications. Journal of Nanobiotechnology. 2026;24(1):469.
- Du L, et al. Lipopolysaccharides derived from gram-negative bacterial pool of human gut microbiota promote inflammation and obesity development. International Reviews of Immunology. 2022;41(1):45-56.
- Alhamar G, et al. Toll like receptor 4: A potential link between obesity and metabolic diseases. Obesity Reviews. 2026;16:e70107.
- Wu R, et al. Desulfovibrio vulgaris exacerbates sepsis by inducing inflammation and oxidative stress in multiple organs. Frontiers in Microbiology. 2025;16:1574998.
- Mohammadi K, Zhang D, Saris EJ. Strain-specific effects of Desulfovibrio on neurodegeneration and oxidative stress in a Caenorhabditis elegans PD model. npj Parkinson's Disease. 2025;11(1):236.
- Abbate A, et al. Interleukin-1 and the inflammasome as therapeutic targets in cardiovascular disease. Circulation Research. 2020;126(9):1260-1280.
- Chauhan R, et al. Decoding the gut microbiota-mitochondrial-inflammasome axis in cardiovascular disease. Molecular and Cellular Biochemistry. 2026;481(3):1081-1101.
- Yu C, et al. Exercise remodels Akkermansia-associated eicosanoid metabolism to alleviate intestinal senescence: Multi-omics insights. Microorganisms. 2025;13(6):1379.
- Zhang Y, et al. Enhancing intestinal barrier efficiency: A novel metabolic diseases therapy. Frontiers in Nutrition. 2023;10:1120168.
- Evangelista I, et al. Molecular dysfunction and phenotypic derangement in diabetic cardiomyopathy. International Journal of Molecular Sciences. 2019;20(13):3264.
- Parim B, et al. Diabetic cardiomyopathy: molecular mechanisms, detrimental effects of conventional treatment, and beneficial effects of natural therapy. Heart Failure Reviews. 2019;24(2):279-299.
- Liu J, et al. The combination of exercise and metformin inhibits TGF-β1/Smad pathway to attenuate myocardial fibrosis in db/db mice by reducing NF-κB-mediated inflammatory response. Biomedicine & Pharmacotherapy. 2023;157:114080.
- Zhang X, et al. Exercise improves heart function after myocardial infarction: the merits of AMPK. Cardiovascular Drugs and Therapy. 2025;39(5):1153-1161.
- Berezin A. Metabolic memory phenomenon in diabetes mellitus: achieving and perspectives. Diabetes & Metabolic Syndrome: Clinical Research & Reviews. 2016;10(2):S176-S183.
- Date S, Bhatt LK. Exploring thioredoxin-interacting protein (TXNIP) as a therapeutic target for cardiovascular diseases. Archiv der Pharmazie. 2025;358(8):e70082.
- Zhang L, et al. NLRP3 inflammasome/pyroptosis: a key driving force in diabetic cardiomyopathy. International Journal of Molecular Sciences. 2022;23(18):10632.
- Tilg H, et al. The intestinal microbiota fuelling metabolic inflammation. Nature Reviews Immunology. 2020;20(1):40-54.
- Huang P, et al. TREM2 deficiency aggravates NLRP3 inflammasome activation and pyroptosis in MPTP-induced Parkinson's disease mice and LPS-induced BV2 cells. Molecular Neurobiology. 2024;61(5):2590-2605.
- Li T, et al. Six weeks of moderate-intensity treadmill exercise improves intestinal barrier and intestinal inflammation in Parkinson's disease mice. Molecular Neurobiology. 2025;62(8):10779-10791.
- He XQ, et al. Prevention of ulcerative colitis in mice by sweet tea (Lithocarpus litseifolius) via the regulation of gut microbiota and butyric-acid-mediated anti-inflammatory signaling. Nutrients. 2022;14(11):2208.
- Wang J, et al. Microbial short chain fatty acids: Effective histone deacetylase inhibitors in immune regulation. International Journal of Molecular Medicine. 2025;57(1):16.
- Deng F, et al. Intestinal ischemia/reperfusion injury: mechanisms, diagnosis, and therapeutic advances. International Journal of Biological Sciences. 2026;22(8):4059.
- Mo C, et al. The influence of Akkermansia muciniphila on intestinal barrier function. Gut Pathogens. 2024;16(1):41.
- Di Vincenzo F, et al. Gut microbiota, intestinal permeability, and systemic inflammation: a narrative review. Internal and Emergency Medicine. 2024;19(2):275-293.
- Birg A, Lin HC. The role of bacteria-derived hydrogen sulfide in multiple axes of disease. International Journal of Molecular Sciences. 2025;26(7):3340.
- Macchione IG, et al. Akkermansia muciniphila: key player in metabolic and gastrointestinal disorders. European Review for Medical and Pharmacological Sciences. 2019;23(18):8075-8083.
- Song S, et al. Sirtuin 3 deficiency exacerbates diabetic cardiomyopathy via necroptosis enhancement and NLRP3 activation. Acta Pharmacologica Sinica. 2021;42(2):230-241.