В данном исследовании описывается протокол количественного определения биогенных аминов в головном мозге Drosophila с помощью высокоэффективной жидкостной хроматографии с электрохимическим детектированием (ВЭЖХ-ЭХД). Благодаря генетической доступности Drosophila и применению метода ВЭЖХ-ЭХД данный подход может помочь исследователям выяснить молекулярные и генетические механизмы, лежащие в основе изменений уровня биогенных аминов при заболеваниях головного мозга.
Методическая статья
Использование высокоэффективной жидкостной хроматографии для изучения изменений биогенных аминов в моделях заболеваний головного мозга на Drosophila
* These authors contributed equally
В этой статье
Краткое содержание
Аннотация
Многие нейропсихиатрические и нейродегенеративные расстройства характеризуются нарушениями в системе нейромедиаторов головного мозга, включая изменение уровней биогенных аминов (БА), таких как дофамин (DA) и серотонин (5-гидрокситриптамин; 5-HT), а также их высвобождения или обратного захвата. Эти нейрохимические изменения коррелируют с определенными ключевыми поведенческими фенотипами, в частности с локомоторным дефицитом, фрагментацией сна и измененными реакциями на стресс. Поскольку основные системы БА взаимодействуют между собой, модели заболеваний часто демонстрируют скоординированные сдвиги сразу по нескольким аминам, а не изолированные изменения одного нейромедиатора. Следовательно, точное одновременное количественное определение нескольких БА имеет важное значение для интерпретации поведенческих и генетических данных. Drosophila melanogaster представляет собой генетически доступную систему для моделирования таких расстройств и изменений нейромедиаторов, однако БА присутствуют в тканях мозга мухи в очень низких концентрациях — от наномолярных до фемтомолярных, а малый размер центральной нервной системы Drosophila делает их обнаружение технически сложной задачей. В данной работе описывается протокол определения и количественной оценки DA, 5-HT и октопамина в мозгах мух с использованием высокоэффективной жидкостной хроматографии в сочетании с электрохимическим детектированием (HPLC-ECD). Метод HPLC-ECD был применен для выявления изменений уровней DA и 5-HT в мозге на модели болезни Паркинсона у мух, основанной на дофаминергической гиперэкспрессии человеческого альфа-синуклеина. Применение данного протокола к модели болезни Паркинсона с альфа-синуклеином выявило значительно повышенный уровень дофамина при неизменном уровне серотонина по сравнению с контролем, что соответствует ранним компенсаторным дофаминергическим механизмам. Этот подход представляет собой чувствительный, недорогой и легкодоступный метод мультиплексного количественного определения БА при ограниченном объеме тканей Drosophila. Он также позволяет проводить систематический скрининг генетических модификаторов и потенциальных терапевтических средств, нацеленных на моноаминергические пути, имеющие отношение к заболеваниям головного мозга человека.
Введение
Моноаминовые нейромедиаторы, также известные как биогенные амины (БА), регулируют ряд ключевых неврологических и поведенческих характеристик у различных таксонов животных, включая, помимо прочего, мотивационные состояния, сон, обучение, память и регуляцию настроения1,2,3,4. Дисрегуляция БА, таких как дофамин (DA) и серотонин (5-гидрокситриптамин; 5-HT), является критической особенностью нейродегенеративных заболеваний, таких как болезнь Паркинсона, а также психических расстройств, например, шизофрении3,5. Однако взаимосвязь между прогрессированием заболевания и специфическими нейрохимическими изменениями в различных областях мозга и подтипах нейронов еще не полностью изучена. Ответ на такие вопросы требует модельной системы, которая была бы не только генетически доступной, но и способной воспроизводить физиологические и поведенческие фенотипы, имеющие значение для заболевания. Drosophila melanogaster стала мощной модельной системой для этих целей6,7. Плодовая мушка обладает дискретными, хорошо охарактеризованными популяциями дофаминергических и серотонинергических нейронов7,8, а биосинтетические пути, транспортеры и семейства рецепторов, управляющие этими системами, функционально консервативны по сравнению с их млекопитающими аналогами9. Такая консервативность обеспечивает механистическую основу для переноса нейрохимических данных, полученных на мушке, в более широкий контекст заболеваний человека.
Полезность мух для моделирования неврологических и психиатрических расстройств выходит далеко за рамки генетической гомологии. Благодаря генетической доступности системы, инструменты для работы с мухами позволяют проводить клеточно-специфический скрининг генов и сигнальных путей, выявляя факторы, которые либо усугубляют, либо обращают вспять симптомы, имеющие отношение к заболеванию, что способствует поиску новых терапевтических мишеней10. Более того, бинарные системы экспрессии позволяют воздействовать не только на специфические подтипы моноаминергических нейронов, но и на определенные окна развития11, обеспечивая тем самым исключительную пространственную и временную точность. Модельная система плодовой мушки также предоставляет репертуар количественно оцениваемых форм поведения, которые можно использовать для оценки воспроизведения симптомов заболевания, а также для тестирования стратегий терапии по их купированию7. Например, общепризнанные генетические модели болезни Паркинсона у мух включают животных с мутациями с потерей функции в генах Pink1 и parkin, а также мух с оверэкспрессией дикого типа или точечно-мутированных версий человеческого α-синуклеина (α-syn), SNCA12,13,14. Все эти модели мух демонстрируют некоторые из наиболее важных признаков заболевания, включая нарушения локомоции, дегенерацию дофаминергических нейронов, митохондриальную дисфункцию и агрегацию α-syn у мух, несущих человеческую последовательность15,16,17,18,19. С другой стороны, нарушения нейроразвития и аберрантная дофаминергическая сигнализация также считаются одними из основных причин таких расстройств, как шизофрения20. В соответствии с этим, Drosophila использовалась для моделирования симптомов, сходных с шизофренией, включая гиперактивность, измененную сенсорную реактивность и снижение уровня возбуждения у взрослых мух21,22,23,24,25. В совокупности эти модели демонстрируют, что Drosophila может отражать как прогрессирование нейродегенеративных заболеваний, так и особенности развития, лежащие в основе психических расстройств.
Связывание поведенческих изменений в генетических моделях с нейрохимическими изменениями требует точных и воспроизводимых количественных измерений биогенных аминов (БА). Кроме того, при ряде заболеваний дисрегуляция моноаминов не ограничивается одной нейромедиаторной системой. У мутантных мух Pink1B9 содержание серотонина снижено, а активность транспортера серотонина нарушена еще до появления двигательной дисфункции26. Раннее фармакологическое восстановление серотонинергической передачи предотвращает последующую гибель пораженных дофаминергических нейронов у мутантных мух Pink1B9. Таким образом, серотонинергические изменения могут предшествовать дофаминергической патологии и причинно способствовать ее развитию, что осталось бы незамеченным при анализе поведенческих показателей или измерении только одного аналита. Аналогичным образом, изменения в серотонинергической системе наблюдаются в моделях шизофрении22,27,28. Более того, основные биогенные амины у Drosophila взаимодействуют частично избыточным, а частично антагонистическим образом, поэтому состояние одной системы не может служить достоверным показателем состояния других29. Следовательно, количественное определение отдельных БА в этих моделях имеет первостепенное значение.
Биогенные амины представляют собой электрохимически активные моноамины (например, катехоламины, индоламины), присутствующие в биологических тканях в низких наномолярных и фемтомолярных концентрациях, что делает их одновременное обнаружение технически сложной задачей30,31. Таким образом, решение вопросов о генетических и молекулярных основах изменений уровней биогенных аминов при заболеваниях требует аналитического метода, способного разделять несколько структурно схожих аминов. Этот метод также должен обеспечивать детектирование биологически значимых концентраций в малых объемах тканей, доступных в препаратах центральной нервной системы Drosophila. Высокоэффективная жидкостная хроматография (ВЭЖХ) в сочетании с электрохимическим детектированием (ЭХД) отвечает этим требованиям. ВЭЖХ — это аналитический метод, позволяющий разделять различные молекулы в пробе на основе их физико-химических свойств. Сопряжение хроматографической системы с электрохимическим детектором обеспечивает быстрый и высокочувствительный анализ электрохимически активных аналитов, таких как биогенные амины. Принцип работы электрохимических детекторов заключается в индуцировании окисления аналитов при их выходе из колонки, что преобразует взаимодействия на поверхности электрода в количественный электрический сигнал. Другие методы, такие как масс-спектрометрия, могут обладать сравнимой селективностью и чувствительностью32,33. Однако низкая стоимость анализа одного образца и надежность ВЭЖХ-ЭХД делают этот метод идеальным для рутинного и доступного определения биогенных аминов в биологических исследовательских лабораториях. Сочетание данной методики с возможностями генетики Drosophila позволяет проводить быстрый и простой анализ генетических и молекулярных основ изменений в аминергических системах.
В данном исследовании используется генетическая модель болезни Паркинсона, основанная на гиперэкспрессии α-syn, для представления протокола определения различий в содержании BA в образцах мозга Drosophila. В статье также описывается, как этот подход может быть использован для изучения молекулярных основ нарушений работы мозга.
Протокол
Необработанные данные, представленные в этой работе, доступны по адресу https://doi.org/10.6084/m9.figshare.33868519.
Используемые реагенты и оборудование перечислены в Таблице материалов.
1. Синхронизация и сбор мух
- Перед сбором поддерживайте интересующих вас мух в постоянных циклах по 12 h света и 12 h темноты при постоянной температуре 25 °C в течение 3 дней. Чтобы обеспечить достаточное количество мух для каждого генотипа/условия, проведите синхронизацию 3–9 биологических повторностей по 5 мух в каждой.
- В день сбора поместите пробирки объемом 1.5 mL на сухой лед. Используйте одну пробирку для каждого генотипа/условия мух. С помощью воронки пересыпьте мух непосредственно в пробирки для их мгновенной заморозки.
ПРИМЕЧАНИЕ: Сбор непосредственно на сухом льду позволяет проводить процедуру в разное время суток, избегая потенциально вредного воздействия анестезии. На данном этапе образцы можно хранить при -80 °C неограниченное время или подвергнуть обработке немедленно. Собирайте экспериментальные и контрольные группы одновременно, чтобы избежать любых искажающих эффектов, связанных с суточными колебаниями. В представленных результатах мух собирали через 3 h после включения света.
2. Диссекция мозга и подготовка образцов
- Для подготовки к препарированию тканей используйте низкопрофильный контейнер, например крышку от коробки с наконечниками для пипеток, и наполните его льдом. Сверху поместите чашку Петри диаметром 30 mm, которая будет служить платформой для препарирования. Проведение препарирования тканей на льду, особенно при использовании стереомикроскопа с теплым освещением, предотвращает деградацию тканей.
- Поместите на чашку каплю (200 µL) ледяного 1x фосфатно-солевого буфера (PBS) и под стереомикроскопом препарируйте каждую муху, используя тонкий острый пинцет.
- Чтобы извлечь мозг, зажмите одну муху за брюшко одним пинцетом и погрузите ее в каплю PBS. Не отпуская муху, удалите голову, захватив место соединения головы с телом.
- И тело, и голова будут плавать в PBS. Удалите тело из капли и утилизируйте его. С помощью пинцета захватите голову за хоботок, чтобы протолкнуть ее обратно внутрь капли PBS.
- Свободным пинцетом захватите край глаза, чтобы зафиксировать голову, и удалите хоботок.
- Захватите ткани вокруг отверстия, образовавшегося после удаления хоботка, и потяните. Мозг должен обнажиться.
- Осторожно очистите мозг от остатков тканей головы, так как любые остатки могут повлиять на количественный анализ. Также извлекайте из пробирки на сухом льду по одной мухе за раз, чтобы предотвратить деградацию образцов.
- С помощью наконечника пипетки перенесите небольшой объем жидкости с препарированным мозгом непосредственно в пробирку с ледяным 1x PBS. Повторяйте этот шаг до тех пор, пока не будет собрано в общей сложности пять мозгов на одну биологическую реплику. Чтобы мозг не прилипал к наконечнику пипетки, предварительно кондиционируйте его раствором с планшета для препарирования, несколько раз прокачав жидкость вверх-вниз.
- После завершения препарирования проведите кратковременное центрифугирование (10 s) при 2,000 x g, чтобы собрать мозги на дне пробирки.
- Осторожно замените 1x PBS на 50 µL 0.2 N хлорной кислоты (PCA) на льду.
ПРЕДОСТЕРЕЖЕНИЕ: PCA обладает высокой коррозионной активностью. Заранее подготовьте аликвоты в вытяжном шкафу и используйте соответствующие средства индивидуальной защиты при работе. К ним относятся химически стойкие защитные очки, плотные неопреновые перчатки и резиновый фартук.
ПРИМЕЧАНИЕ: В качестве альтернативы мозги можно сразу собирать в 50 µL 0.2 N PCA. В этом случае используйте иглу для переноса мозгов, чтобы избежать нежелательного переноса PBS. - Используйте ультразвуковой гомогенизатор для гомогенизации ткани. Контролируйте амплитуду, чтобы избежать нагрева. В данном случае мы используем частоту 10 kHz с короткими импульсами по 3 s с последующим охлаждением на льду в течение 3 s.
- Центрифугируйте образец в течение 15 min при 15,000 x g и 4 °C. Соберите 40 µL супернатанта в новую пробирку, хранящуюся на льду. Хранение образцов в PCA предотвращает окисление BA. Избегайте попадания тканей на этом этапе, так как это может привести к засорению системы. Если часть тканей попала в пробу, можно использовать шприцевые фильтры, однако это отрицательно скажется на выходе образца.
- Непосредственно перед анализом образцов добавьте 8 µL 1 M ацетата натрия. Это приближает pH образца к pH подвижной фазы (3.5), что позволяет сохранить форму пика при прохождении образца через детектор. Образцы готовы к инъекции.
3. Приготовление подвижной фазы
- Приготовьте 1 L цитратно-ацетатной подвижной фазы, налив 870 mL ультрачистой воды в стеклянный флакон.
- Добавьте в емкость 5,61 g тригидрата ацетата натрия и 8,79 g безводной лимонной кислоты и перемешивайте до полного растворения. Убедитесь, что pH составляет 3,5; если нет, отрегулируйте его соответствующим образом.
- В вытяжном шкафу добавьте 130 mL метанола степени чистоты для ВЭЖХ.
- Добавьте 130 mg гидрата 1-октанесульфоната натрия и тщательно перемешайте.
- Профильтруйте раствор под вакуумом через фильтр с порами 0,2 µm, перемешивая в течение 1 h. Перемешивание способствует выходу захваченного газа из раствора, что облегчается применением вакуума и процессом фильтрации.
- Обработайте раствор в ультразвуковой бане (42 kHz) в течение 30 min для удаления пузырьков воздуха.
- Оберните контейнер алюминиевой фольгой и нанесите соответствующую маркировку.
ПРИМЕЧАНИЕ: Качество реагентов существенно влияет на время удерживания. Использование реагентов степени чистоты для ВЭЖХ помогает обеспечить воспроизводимость результатов между анализами. Использование одних и тех же реагентов при повторном приготовлении подвижной фазы также способствует стабильности результатов.
4. Приготовление стандартных образцов
- Для приготовления стандартов взвесьте по 10 mg OA, DA и 5-HT на бумаге для взвешивания.
- Поместите навески в отдельные стеклянные флаконы объемом 125 mL для приготовления индивидуальных стоковых растворов. Повторно взвесьте пустую бумагу, чтобы рассчитать точное количество OA, DA или 5-HT, перенесенное во флаконы.
- Рассчитайте объем растворителя, который необходимо добавить для достижения концентрации аналита 100 ng/µL. Если было добавлено полные 10 mg, используйте 100 mL растворителя. В качестве растворителя для OA и DA используйте 0.1 M соляную кислоту, а для 5-HT — 0.1 M уксусную кислоту.
- Добавьте в стандарты 2Na-EDTA до конечной концентрации 1 mg/mL. Тщательно перемешайте до полного растворения. Оберните флакон алюминиевой фольгой для защиты от света и храните при 4 °C.
ПРИМЕЧАНИЕ: В таких условиях стандарты могут храниться до 3 месяцев.
5. Приготовление калибровочных растворов
ПРИМЕЧАНИЕ: Для построения калибровочной кривой приготовьте три стандарта со смешанными BA в разных концентрациях. В данном примере используются рабочие растворы с концентрациями 0.03 ng/µL, 0.01 ng/µL и 0.001 ng/µL. При введении 10 µL количество стандарта составит соответственно 0.3 ng, 0.1 ng и 0.01 ng.
- Для начала приготовьте исходную смесь с концентрацией 1 ng/µL, добавив по 1 µL каждого исходного раствора BA с концентрацией 100 ng/µL к 97 µL 0,02 M уксусной кислоты и 1 mg/mL 2Na-EDTA. Тщательно перемешайте.
- Возьмите 2 µL исходного раствора с концентрацией 1 ng/µL и добавьте к 64,6 µL 0,02 M уксусной кислоты и 1 mg/mL 2Na-EDTA. Тщательно перемешайте. Это рабочий раствор с концентрацией 0,03 ng/µL.
- Возьмите 2 µL исходного раствора с концентрацией 1 ng/µL и добавьте к 18 µL 0,02 M уксусной кислоты и 1 mg/mL 2Na-EDTA. Тщательно перемешайте. Это рабочий раствор с концентрацией 0,1 ng/µL. Данный раствор не вводится в рамках этого протокола; он используется только для последовательных разведений.
- Возьмите 4 µL раствора с концентрацией 0,1 ng/µL и добавьте к 36 µL 0,02 M уксусной кислоты и 1 mg/mL 2Na-EDTA. Тщательно перемешайте. Это рабочий раствор с концентрацией 0,01 ng/µL.
- Наконец, возьмите 4 µL раствора с концентрацией 0,01 ng/µL и добавьте к 36 µL 0,02 M уксусной кислоты и 1 mg/mL 2Na-EDTA. Тщательно перемешайте. Это рабочий раствор с концентрацией 0,001 ng/µL.
ПРИМЕЧАНИЕ: Храните эти стандарты в коробке, защищенной от света. Все рабочие растворы стандартов необходимо готовить непосредственно перед использованием.
6. Настройка инъекции и запуск
ПРИМЕЧАНИЕ: Все системы ВЭЖХ работают по одним и тем же принципам. Однако различия в аппаратном обеспечении могут существенно повлиять на время удерживания и продолжительность анализа. Кроме того, чувствительность электрохимического детектора (ЭХД) обуславливает разные пределы обнаружения. Эти параметры необходимо определить эмпирически. В данном исследовании использовалась система высокоэффективной жидкостной хроматографии (ВЭЖХ), оснащенная обращенно-фазовой колонкой C18.
- Включите оборудование ВЭЖХ, включая насос и электрохимический детектор. Установите скорость потока 100 µL/min и дождитесь стабилизации базовой линии электрохимического детектора. Это должно занять от 10 min до 30 min.
- Когда образцы будут готовы к введению, установите скорость потока 500 µL/min. Дайте системе стабилизироваться в течение 5 min. Тем временем трижды промойте шприц Hamilton объемом 20 µL ультрачистой водой.
- Наберите в шприц 10–20 µL образца. Объем зависит от вместимости петли для образца. Для получения дополнительной информации обратитесь к руководству по эксплуатации петли для образца.
- При введении убедитесь в отсутствии пузырьков воздуха в шприце. Любые захваченные газы будут препятствовать правильной подаче подвижной фазы или измерениям ЭХД. При наличии пузырьков верните образец и попробуйте снова заполнить шприц.
- Полностью введите иглу в порт для инъекций. Переведите рычаг в положение загрузки и введите образец, нажимая на плунжер шприца до полного вытеснения жидкости из шприца. Опустите рычаг инжектора в положение «inject». Анализ начался и при данных условиях должен быть завершен за 30–35 min.
- Если необходимо проанализировать другие образцы, дайте системе поработать 10–15 min при скорости потока 500 µL/min перед введением следующего образца.
ПРИМЕЧАНИЕ: При наличии постоянных колебаний сигнала ЭХД проверьте изменения давления в системе. Газ, попавший в систему, может вызвать неравномерный поток и повышенный фоновый сигнал. Чтобы решить эту проблему, промойте систему свежим раствором на высокой скорости в обход ЭХД.
7. Извлечение и анализ данных
ПРИМЕЧАНИЕ: Для сбора и анализа данных такого типа доступно несколько вариантов аналого-цифровых преобразователей и программного обеспечения. Способы обработки данных в них могут различаться, однако общие принципы работы остаются едиными. В данном исследовании использовались программное обеспечение для преобразования данных, а также программное обеспечение для сбора и анализа хроматографических данных соответственно.
- Изменения тока/напряжения, вызванные окислением желчных кислот (BAs) и зафиксированные электрохимическим детектором (ECD), будут преобразованы аналого-цифровым преобразователем. Концентрация BAs пропорциональна изменению тока/напряжения.
- Для построения калибровочной кривой используйте площадь под кривой, полученную из графиков зависимости тока от времени при анализе стандартов BAs. Значения будут представлены в виде линейной регрессии на графике зависимости тока/напряжения (nA или mV) от количества (ng).
- Используя линейное уравнение, рассчитайте концентрацию BAs в вашем образце.
Результаты
Биологические соединения окисляются при разных напряжениях. В сложной матрице, такой как ткани мозга, выбор подходящего потенциала ЭХД позволит добиться более чистого и точного количественного определения. В данном случае мы выбрали два различных напряжения, чтобы показать влияние этого фактора на идентификацию и количественное определение OA, DA и 5-HT в образцах мозга Drosophila. При 950 mV мы можем легко обнаружить эти 3 амина в смеси (Рисунок 1A), тогда как при 650 mV наблюдаются только дофамин и серотонин (Рисунок 1B). Это согласуется с напряжениями окисления для этих соединений: 900–1000 mV для OA, 600–700 mV для DA и 5-HT. Время удерживания для OA, DA и 5-HT составляет 6 мин, 11 мин и 29 мин соответственно. Количественное определение трех различных количеств, 0.01 ng, 0.1 ng и 0.3 ng, дает сопоставимые калибровочные кривые для 950 mV или 650 mV (Рисунок 1C,D соответственно). Эти кривые демонстрируют линейность и чувствительность анализа для каждого аналита в исследуемом диапазоне концентраций при каждом потенциале детектирования.
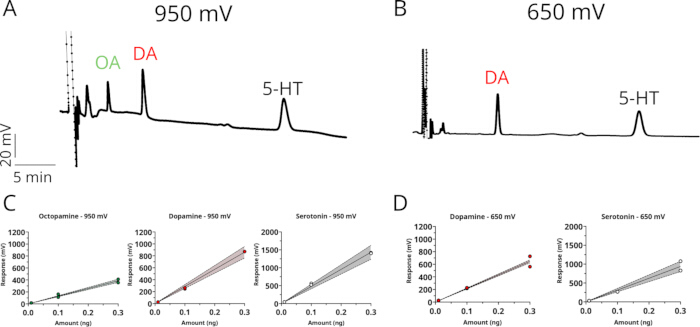
Рисунок 1: Обнаружение и количественное определение биогенных аминов с помощью ВЭЖХ-ЭХД при двух потенциалах окисления. (A,B) Репрезентативные хроматограммы, демонстрирующие разделение стандартов октопамина (OA), дофамина (DA) и серотонина (5-HT), обнаруженных при приложенном потенциале (A) 950 mV или (B) 650 mV. Вертикальная ось: отклик (mV); горизонтальная ось: время удерживания (5 min на одно деление, указано масштабной линейкой). (C,D) Калибровочные кривые для каждого аналита при (C) 950 mV и (D) 650 mV, представляющие зависимость отклика пика (mV) от количества стандарта (ng; 0,01–0,3 ng). Сплошные линии представляют собой аппроксимацию методом линейной регрессии, заштрихованные полосы обозначают 95% доверительные интервалы, а закрашенные/пустые кружки представляют 2 индивидуальных вкола стандарта для каждой концентрации. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
Сложные образцы, такие как экстракты мозга, обычно создают значительный биологический фон. Следуя описанному здесь протоколу, мы стремились определить влияние напряжения на электроде на детектирование и количественное определение биогенных аминов (БА) в образцах мозга. Взрослых самцов мух собирали при включении света после 2 полных дней синхронизации; мозг препарировали в ледяном PBS, а затем помещали в 0.2 N PCA на льду. После диссоциации ткани и центрифугирования супернатант уравновешивали 1 M ацетатом натрия, после чего вводили 10 µL. Установка потенциала электрода на 950 mV дает пики октопамина, дофамина и серотонина в соответствующие времена удерживания (Рисунок 2A, черная кривая). Их идентичность была дополнительно подтверждена путем анализа образца с добавлением известных количеств (по 0.01 ng) каждого БА (Рисунок 2A, красная кривая). Однако вблизи интересующих аналитов наблюдается несколько дополнительных пиков, что может затруднить количественное определение. Установка потенциала электрода на 650 mV решает эту проблему, но ценой потери детектирования октопамина (Рисунок 2B). Как и на Рисунке 1, OA не разделяется при 650 mV, что согласуется с его более высоким окислительным потенциалом.
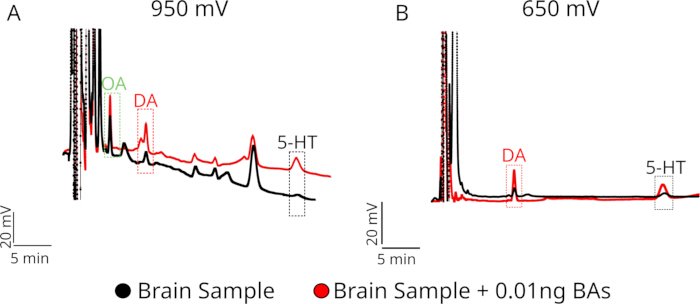
Рисунок 2: Идентификация эндогенных биогенных аминов в образцах мозга путем усиления пиков (метод добавки) при двух потенциалах окисления. (A,B) Репрезентативные хроматограммы экстракта ткани мозга, проанализированного методом ВЭЖХ-ЭХД при приложенном потенциале (A) 950 mV или (B) 650 mV, показанные до (черная линия, «Образец мозга») и после (красная линия, «Образец мозга + 0,01 ng БА») добавки известного количества (0,01 ng) стандартов октопамина (OA), дофамина (DA) и серотонина (5-HT). Пунктирные рамки обозначают окна времени удерживания для каждого аналита. Вертикальная ось: отклик (20 mV, указано на шкале); горизонтальная ось: время удерживания (5 min, указано масштабной линейкой). Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
Следуя тому же протоколу, мы использовали метод ВЭЖХ-ЭХД для определения различий в содержании биогенных аминов в мозге мух, экспрессирующих α-synuclein в дофаминергических нейронах (TH-T2A-GAL4 > UAS-SNCA.J34), что представляет собой модель болезни Паркинсона у мух. Предыдущие исследования с использованием модели БП, основанной на мутациях в гене Pink1 , выявили различия в уровнях дофамина у мух в возрасте всего 0–3 дней35. В данной работе для сравнения уровней дофамина и серотонина использовались мухи в возрасте 3–6 дней. Уровни дофамина в мозге мух с БП были значительно повышены по сравнению с контрольной группой (Рисунок 3A), в то время как уровни серотонина оставались неизменными (Рисунок 3B). Повышение уровня дофамина на ранних стадиях может отражать компенсаторные механизмы, предшествующие появлению симптомов БП в данной модели (Обзор в Blesa J et al.36).
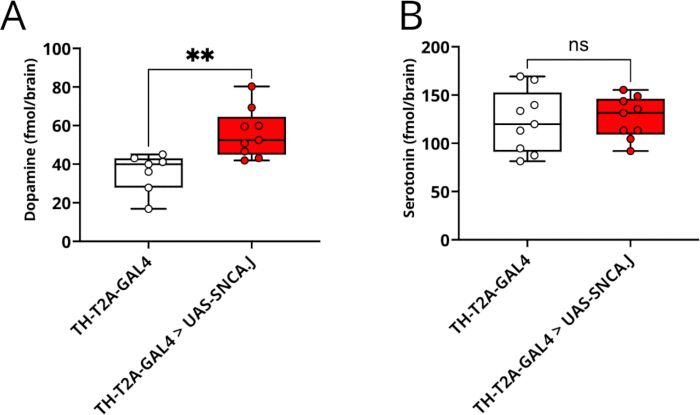
Рисунок 3: Количественное определение уровней дофамина и серотонина в модели болезни Паркинсона на Drosophila с помощью ВЭЖХ-ЭХД. Уровни дофамина (A) и серотонина (B) в тканях всего мозга, выраженные в fmol/brain, у контрольных мух (TH-T2A-GAL4, n = 7 в A и n = 9 в B) и мух модели болезни Паркинсона (TH-T2A-GAL4 > UAS-SNCA.J, n = 9). В данной модели кодон-оптимизированная последовательность человеческого α-синуклеина (SNCA.J) селективно гиперэкспрессируется в дофаминергических нейронах под контролем драйвера TH-T2A-GAL4. Данные представлены в виде диаграмм «ящик с усами» (медиана, межквартильный размах и минимум–максимум) с наложенными индивидуальными точками данных, каждая из которых представляет один биологический повтор (n), состоящий из 5 объединенных образцов мозга. Статистическая значимость определялась с помощью непарного t-критерия (**p < 0.01, ns — статистически не значимо). Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
Обсуждение
ВЭЖХ представляет собой высокоадаптируемый метод разделения. Таким образом, многие этапы данного протокола могут быть модифицированы. Надежность результатов зависит от тщательного подхода и последовательности при внесении этих изменений. Режим разделения определяется относительной полярностью неподвижной и подвижной фаз: при нормальной фазе полярная неподвижная фаза сочетается с неполярной подвижной фазой, тогда как при обращенной фазе неполярная неподвижная фаза сочетается с полярной подвижной фазой. Для анализа биогенных аминов в биологических тканях обычно используются условия обращенно-фазовой хроматографии. В данном исследовании использовалась цитратно-ацетатная подвижная фаза с метанолом в качестве основного растворителя; однако аналогичные измерения были успешно проведены с использованием фосфатного буфера и ацетонитрила в качестве растворителя22,26,35. Таким образом, состав буфера может меняться в зависимости от требуемого разрешения и формы пиков. Изменение состава подвижной фазы, скорее всего, приведет к изменению времени элюирования37. Это может вызвать перекрывание пиков, что затруднит или сделает невозможным количественное определение. Для устранения данной проблемы наиболее эффективным решением является изменение pH, поскольку взаимодействие аналита с колонкой сильно зависит от значения pKa38.
Амины подвержены окислительной деградации, поэтому сбор и обработка тканей являются важными этапами протокола. Важным шагом является сбор образцов на сухом льду и их хранение при -80 °C до момента обработки. После препарирования образцы должны быть быстро гомогенизированы в кислых условиях. Это предотвращает разложение ЖК30,39,40. В этом контексте могут быть полезны другие кислоты, если доступ к PCA ограничен. Для экстракции также может быть использована комбинация муравьиной кислоты, которая является не взрывоопасной альтернативой PCA в качестве окислителя, и метанола; однако мы не тестировали этот метод на образцах мозга Drosophila41.
Выбор детектора определяет, что можно измерить и с какой чувствительностью; распространенные варианты включают УФ/видимые, флуоресцентные и масс-спектрометрические детекторы, каждый из которых подходит для различных свойств аналитов и требований к чувствительности. Электрохимическое детектирование особенно хорошо подходит для катехоламинов и индоламинов, таких как DA и 5-HT, которые окисляются непосредственно на рабочем электроде с генерацией тока, пропорционального их концентрации. Электрохимическое детектирование (ECD) называют более простым и точным методом по сравнению с альтернативными способами, такими как флуоресцентное и ультрафиолетовое детектирование, которые зачастую требуют большего количества этапов подготовки перед анализом образцов, что делает их более сложными или трудоемкими42,43. ВЭЖХ-ЭХД обеспечивает исключительную чувствительность, позволяя обнаруживать аналиты в биологических образцах в фемтомолярных концентрациях44. Поскольку мозг одной особи Drosophila дает очень малое количество ткани, такой уровень чувствительности является необходимым. Важно, что ВЭЖХ-ЭХД также позволяет одновременно количественно определять несколько биогенных аминов в одном образце, а значит, полный профиль моноаминов препарата центральной нервной системы Drosophila может быть получен за один аналитический цикл.
Данный метод имеет определенные ограничения, определяющие область его применения. Несмотря на высокую чувствительность метода, количественное определение БА в образцах Drosophila требует объединения (пулинга) головного мозга нескольких особей. Таким образом, как и при использовании других подходов, обнаружение в одном головном мозге не было зарегистрировано45. Еще одним недостатком является загрязнение электрода. Со временем на поверхности электрода может образоваться тонкий изолирующий слой из продуктов окисления, что снижает чувствительность и приводит к дрейфу сигнала46. Это особенно заметно в наших результатах при использовании более высокого напряжения окисления (Рисунок 2). Чтобы учесть такие изменения, может быть полезно повторять стандартные инъекции через несколько прогонов. Стандартные инъекции также необходимо повторять при каждом изменении состава подвижной фазы или потенциала детектирования, чтобы учесть любые сдвиги наблюдаемых пиков. Периодическая очистка электрода может помочь решить эту проблему. Другой недостаток заключается в том, что ВЭЖХ-ЭХД обеспечивает суммарное статическое измерение содержания аминов, интегрированное по всей ткани, представленной для анализа. Метод не дает информации о локализации этих аминов в головном мозге, а также о relative вкладе конкретных популяций нейронов. Неэлектроактивные соединения, такие как ГАМК и глутамат, не обнаруживаются в стандартных условиях ЭХД и требуют проведения отдельных анализов. Возможно, самое важное то, что ВЭЖХ-ЭХД является таргетным методом. Его нельзя использовать для идентификации неизвестных молекул, которые могут быть коррелированы с поведенческим фенотипом, так как он полностью основан на сравнении времени удерживания с известными, хорошо охарактеризованными стандартами. Для нетаргетного поиска нейрохимических коррелятов поведения более подходящими были бы такие методы, как ЖХ-МС/МС, однако они отличаются более высокой стоимостью.
В этих рамках метод ВЭЖХ-ЭХД позволяет решать четко определенный и биологически значимый набор вопросов в моделях расстройств на Drosophila . С его помощью можно определить, изменяет ли генотип или проводимая терапия стационарные уровни аминов и являются ли такие изменения селективными для одной трансмиттерной системы или затрагивают общий профиль моноаминов. Метод позволяет отслеживать нейрохимические изменения на разных стадиях развития или при прогрессировании заболевания, что дает доказательства существования пресимптоматических биохимических состояний, предшествующих выявлению поведенческих фенотипов47. Он также хорошо подходит для оценки того, приводит ли фармакологическое или генетическое вмешательство к нормализации, чрезмерному избытку или же не может восстановить дефицит аминов в данной модели26. Ответы на такие вопросы, как на каком этапе происходит сдвиг каждого амина, вызывает ли коррекция одной системы нарушения в другой и оставляет ли нарушение в развитии устойчивый нейрохимический след, — это именно то, для чего предназначен чувствительный метод анализа совокупного содержания нескольких аминов. Используемый вместе с поведенческими тестами и генетическими инструментами, доступными для Drosophila, метод ВЭЖХ-ЭХД обеспечивает количественный биохимический уровень анализа, который существенно расширяет интерпретационный охват этих моделей расстройств.
Раскрытие информации
Авторы заявляют об отсутствии конфликта интересов.
Благодарности
Данная работа была поддержана грантом Национальных институтов здравоохранения R00NS133470 (S.H.). Содержание статьи является исключительной ответственностью авторов и не обязательно отражает официальную точку зрения Национальных институтов здравоохранения. R.V.Z поддерживается грантом Subvención a la Instalación en la Academia (SIA) N°85250142, а J.M.C — грантом FONDECYT 1231556, Agencia Nacional de Investigación y Desarrollo, Чили.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| Гидрохлорид октопамина (+-) | Sigma Aldrich | 770-05-8 | |
| Фильтрующий блок на 500 mL | Thermo Scientific | FB12566504 | Мембрана aPES 0.2 um, диаметр 75 mm |
| Уксусная кислота, ледяная | Fisher Scientific | 64-19-7 | |
| Лимонная кислота безводная | USB | 77-92-9 | |
| Программное обеспечение для хроматографии Clarity | Data Apex | Version 10.1 | |
| Конвертер данных Colibrick | Data Apex | АЦП-конвертер | |
| Гидрохлорид дофамина | Sigma Aldrich | 62-31-7 | |
| Пинцет Dumont #5 (Dumoxel Biology) | Fine Science Tools | 11252-30 | Диссекционный пинцет |
| ЭДТА, динатриевая соль, дигидрат, кристаллы (2Na-EDTA) | J.T Baker | 6381-92-6 | |
| EICOMPAK-5ODS | Eicom | 680.060.00 | Колонка для обращенно-фазового разделения |
| Ультрачистая вода (Тип 1) EMD Milipore Synergy UV-R | Milipore | ||
| Шприц Hamilton 25ul (22s/2"/3) | Hamilton | 80465 | |
| HTEC-600 | Eicom | Система ВЭЖХ | |
| Соляная кислота | Sigma Aldrich | 7647-01-0 | |
| Салфетки для легкой очистки тканей | VWR | 82003-820 | |
| Метанол для ВЭЖХ | Fisher Scientific | 67-56-1 | фильтрация 0.2 micron |
| Хлорперкислотная кислота, 70% в воде | Fisher Scientific | AC424032500 | использовать для приготовления 0.2 N PCA |
| Гидрохлорид серотонина 98% | Fisher Scientific | 153-98-0 | |
| Гидрат 1-октанесульфоната натрия, сорт ВЭЖХ, 99+% | Thermo Scientific | 5324-84-5 | |
| Ацетат натрия, тригидрат, кристаллы | J.T Baker | 6131-90-4 | |
| Ультразвуковая мойка Sonicator 1510 Bransonic | Branson | Model #: 1510R-MT | Соникатор |
| Ультразвуковой процессор-соникатор | Fisherbrand | Model FB50 | с зондом CL18 |
Ссылки
- Barron AB, Søvik E, Cornish JL. The roles of dopamine and related compounds in reward-seeking behavior across animal phyla. Front Behav Neurosci. 2010;4:163.
- Cardozo Pinto DF, et al. Opponent control of reinforcement by striatal dopamine and serotonin. Nature. 2025;639(8053):143-152.
- Jiang Y, et al. Monoamine neurotransmitters control basic emotions and affect major depressive disorders. Pharmaceuticals (Basel). 2022;15(10):1203.
- Swallow JG, Bubak AN, Grace JL. The role of monoamines in modulating behavior. Curr Zool. 2016;62(3):253-255.
- Ramesh S, Arachchige ASPM. Depletion of dopamine in Parkinson's disease and relevant therapeutic options: A review of the literature. AIMS Neurosci. 2023;10(3):200-231.
- Elgueta-Reyes M, Hidalgo S, Campusano JM. Beyond vertebrates: Drosophila melanogaster as a model to study negative symptoms of schizophrenia. Front Psychiatry. 2025;16:1622281.
- Kasture AS, Hummel T, Sucic S, Freissmuth M. Big lessons from tiny flies: Drosophila melanogaster as a model to explore dysfunction of dopaminergic and serotonergic neurotransmitter systems. Int J Mol Sci. 2018;19(6):1788.
- Owald D, Lin S, Waddell S. Light, heat, action: Neural control of fruit fly behaviour. Philos Trans R Soc Lond B Biol Sci. 2015;370(1677):20140211.
- Rosikon KD, Bone MC, Lawal HO. Regulation and modulation of biogenic amine neurotransmission in Drosophila and Caenorhabditis elegans. Front Physiol. 2023;14:970405.
- Pandey UB, Nichols CD. Human disease models in Drosophila melanogaster and the role of the fly in therapeutic drug discovery. Pharmacol Rev. 2011;63(2):411-436.
- Duffy JB. GAL4 system in Drosophila: A fly geneticist's Swiss army knife. Genesis. 2002;34(1-2):1-15.
- Feany MB, Bender WW. A Drosophila model of Parkinson's disease. Nature. 2000;404(6776):394-398.
- Narwal S, Singh A, Tare M. Analysis of α-syn and parkin interaction in mediating neuronal death in Drosophila model of Parkinson's disease. Front Cell Neurosci. 2024;17:1295805.
- Park J, et al. Mitochondrial dysfunction in Drosophila PINK1 mutants is complemented by parkin. Nature. 2006;441(7097):1157-1161.
- Aryal B, Lee Y. Disease model organism for Parkinson disease: Drosophila melanogaster. BMB Rep. 2019;52(4):250-258.
- Clark IE, et al. Drosophila pink1 is required for mitochondrial function and interacts genetically with parkin. Nature. 2006;441(7097):1162-1166.
- Park S, Kozhushko N, Wight TH, Whitworth AJ. Insights into PINK1/Parkin function and dysfunction from Drosophila models. Biochem J. 2025;483(1):BCJ20253459.
- Mohite GM, et al. Parkinson's disease associated α-synuclein familial mutants promote dopaminergic neuronal death in Drosophila melanogaster. ACS Chem Neurosci. 2018;9(11):2628-2638.
- Ordonez DG, Lee MK, Feany MB. α-Synuclein induces mitochondrial dysfunction through spectrin and the actin cytoskeleton. Neuron. 2018;97(1):108-124.e6.
- Eyles D, Feldon J, Meyer U. Schizophrenia: Do all roads lead to dopamine or is this where they start? Evidence from two epidemiologically informed developmental rodent models. Transl Psychiatry. 2012;2(2):e81.
- Calcagno B, Eyles D, van Alphen B, van Swinderen B. Transient activation of dopaminergic neurons during development modulates visual responsiveness, locomotion and brain activity in a dopamine ontogeny model of schizophrenia. Transl Psychiatry. 2013;3(1):e206.
- Hidalgo S, et al. The behavioral and neurochemical characterization of a Drosophila dysbindin mutant supports the contribution of serotonin to schizophrenia negative symptoms. Neurochem Int. 2020;138:104753.
- Hidalgo S, Campusano JM, Hodge JJL. Assessing olfactory, memory, social and circadian phenotypes associated with schizophrenia in a genetic model based on Rim. Transl Psychiatry. 2021;11(1):292.
- Hidalgo S, Campusano JM, Hodge JJL. The Drosophila orthologs of the schizophrenia-associated CACNA1A and CACNA1B voltage-gated calcium channels regulate memory, sleep and circadian rhythms. Neurobiol Dis. 2021;155:105394.
- Shao L, et al. Schizophrenia susceptibility gene dysbindin regulates glutamatergic and dopaminergic functions via distinctive mechanisms in Drosophila. Proc Natl Acad Sci U S A. 2011;108(46):18831-18836.
- Zárate RV, et al. An early disturbance in serotonergic neurotransmission contributes to the onset of Parkinsonian phenotypes in Drosophila melanogaster. Cells. 2022;11(9):1544.
- Nakao K, et al. 5-HT2A receptor dysregulation in a schizophrenia relevant mouse model of NMDA receptor hypofunction. Transl Psychiatry. 2022;12(1):168.
- Zhou W, et al. DISC1 mutant macaques capture behavioral and neural hallmarks of psychiatric disease. Natl Sci Rev. 2026;13(8):nwag200.
- Chen A, et al. Dispensable, redundant, complementary, and cooperative roles of dopamine, octopamine, and serotonin in Drosophila melanogaster. Genetics. 2013;193(1):159-176.
- Plenis A, Olędzka I, Kowalski P, Miękus N, Bączek T. Recent trends in the quantification of biogenic amines in biofluids as biomarkers of various disorders: a review. J Clin Med. 2019;8(5):640.
- Fredj Z, Sawan M. Advanced nanomaterials-based electrochemical biosensors for catecholamines detection: challenges and trends. Biosensors (Basel). 2023;13(2):211.
- Hori A, Nitta T, Inamori Kichiro, Kanoh H, Kuraishi T. High-throughput single-fly LC-MS/MS for quantitative profiling of biogenic amines in Drosophila. PLoS One. 2026;21(1):e0341188.
- Davla S, et al. An LC-MS/MS method for simultaneous analysis of up to six monoamines from brain tissues. J Chromatogr B. 2023;1216:123604.
- Chouhan AK, et al. Uncoupling neuronal death and dysfunction in Drosophila models of neurodegenerative disease. Acta Neuropathol Commun. 2016;4(1):62.
- Molina-Mateo D, et al. Characterization of a presymptomatic stage in a Drosophila Parkinson's disease model: unveiling dopaminergic compensatory mechanisms. Biochim Biophys Acta Mol Basis Dis. 2017;1863(11):2882-2890.
- Blesa J, et al. Compensatory mechanisms in Parkinson's disease: circuits adaptations and role in disease modification. Exp Neurol. 2017;298(Pt B):148-161.
- Snyder LR, Quarry MA, Glajch JL. Solvent-strength selectivity in reversed-phase HPLC. Chromatographia. 1987;24(1):33-44.
- Lewis JA, et al. Computer simulation for the prediction of separation as a function of pH for reversed-phase high-performance liquid chromatography: I. Accuracy of a theory-based model. J Chromatogr A. 1992;592(1):183-195.
- Chan EC, Wee PY, Ho PC. Evaluation of degradation of urinary catecholamines and metanephrines and deconjugation of their sulfoconjugates using stability-indicating reversed-phase ion-pair HPLC with electrochemical detection. J Pharm Biomed Anal. 2000;22(3):515-526.
- Bicker J, Fortuna A, Alves G, Falcão A. Liquid chromatographic methods for the quantification of catecholamines and their metabolites in several biological samples: a review. Anal Chim Acta. 2013;768:12-34.
- Miękus N, et al. Comparison of three extraction approaches for the isolation of neurotransmitters from rat brain samples. Int J Mol Sci. 2018;19(6):1560.
- Van Dam D, Vermeiren Y, Aerts T, De Deyn PP. Novel and sensitive reversed-phase high-pressure liquid chromatography method with electrochemical detection for the simultaneous and fast determination of eight biogenic amines and metabolites in human brain tissue. J Chromatogr A. 2014;1353:28-39.
- Han S, et al. A sensitive HPLC-ECD method for detecting serotonin released by RBL-2H3 cells stimulated by potential allergens. Anal Methods. 2015;7(20):8918-8924.
- Guiard BP, Gotti G. The high-precision liquid chromatography with electrochemical detection (HPLC-ECD) for monoamines neurotransmitters and their metabolites: a review. Molecules. 2024;29(2):496.
- Fang H, Vickrey TL, Venton BJ. Analysis of biogenic amines in a single Drosophila larva brain by capillary electrophoresis with fast-scan cyclic voltammetry detection. Anal Chem. 2011;83(6):2258-2264.
- Hanssen BL, Siraj S, Wong DKY. Recent strategies to minimise fouling in electrochemical detection systems. Rev Anal Chem. 2016;35(1):1-28.
- Meissner WG. When does Parkinson's disease begin? From prodromal disease to motor signs. Rev Neurol (Paris). 2012;168(11):809-814.
Перепечатки и разрешения
Эта статья была опубликована
Видео скоро будет доступно