Данный протокол представляет собой руководство по конфокальной визуализации динамики микротрубочек в живых сенсорных нейронах личинок Drosophila с использованием флуоресцентных маркеров микротрубочек.
Методическая статья
Визуализация динамики микротрубочек in vivo в сенсорных дендритах Drosophila
* These authors contributed equally
В этой статье
Краткое содержание
Аннотация
Drosophila сенсорные нейроны IV класса личинок расположены непосредственно под кутикулой и характеризуются сильно разветвленными дендритными деревьями, которые изотропно расширяются в двух измерениях по мере развития личинок. Рост этих деревьев определяется стохастическими процессами, включающими рост, сокращение и паузы терминальных окончаний дендритов. Чтобы проверить гипотезу о том, что динамика кончиков определяется динамикой микротрубочек, были разработаны протоколы визуализации флуоресцентно меченных микротрубочек внутри дендритов. Данный метод позволяет визуализировать динамику микротрубочек в тонких терминальных дендритах сенсорных нейронов IV класса с помощью конфокальной микроскопии. Он разработан таким образом, чтобы сохранить морфологию дендритного дерева во время визуализации, позволяя при этом наблюдать микротрубочки совместно с маркером мембраны. В данной статье описаны процедуры подготовки личинок Drosophila для живой визуализации и визуализации флуоресцентно меченных микротрубочек в дендритах. Таким образом, данный протокол предлагает подход к изучению поведения микротрубочек в тонких терминальных дендритах, оставаясь совместимым с совместным мечением мембран.
Введение
Нейроны представляют собой высокополяризованные клетки, архитектура которых определяется их цитоскелетом. Микротрубочки, один из компонентов нейронального цитоскелета, обеспечивают структурную поддержку и служат путями для транспорта грузов на большие расстояния1,2. Цитоскелет из микротрубочек имеет решающее значение для развития дендритов3. Дендриты растут стохастически посредством процессов ветвления, удлинения и сокращения4. Нейроны дендритной арборизации (da) личинок Drosophila являются мощной модельной системой in vivo для изучения дендритного морфогенеза. Эти сенсорные нейроны разделены на четыре класса (I–IV) в зависимости от возрастающей сложности дендритов3,5. Нейроны da класса IV обладают сложными, сильно разветвленными дендритами и функционируют как мультимодальные ноцицепторы6,7,8. Дендриты этих нейронов формируют стереотипные рецептивные поля вдоль абдоминальных сегментов и располагаются непосредственно под прозрачной кутикулой9,10. Такая анатомия в сочетании с генетической доступностью Drosophila делает нейроны da класса IV подходящей системой для визуализации развития дендритов in vivo с высоким пространственным и временным разрешением. По мере роста дендритов в ходе развития их кончики стохастически переходят между состояниями роста, сокращения и паузы11. Рост и сокращение кончиков имеют множество кинетических сходств с ростом и сокращением микротрубочек12. Следовательно, визуализация динамики микротрубочек в этих клетках представляет значительный интерес.
Общепринятым подходом к визуализации динамики микротрубочек в живых клетках, в том числе в клетках личинок Drosophila, является получение изображений флуоресцентно меченных белков, связывающихся с концами микротрубочек, таких как EB1 и EB313,14,15,16,17,18. Однако интерпретация сигналов EB-GFP может быть неоднозначной. Например, дистально перемещающаяся точка EB-GFP, удаляющаяся от тела клетки, может представлять собой растущий наружу плюс-конец микротрубочки или растущий внутрь плюс-конец микротрубочки, скользящей в дистальном направлении. Хотя EB-GFP преимущественно маркирует плюс-концы растущих микротрубочек, он также может маркировать растущие минус-концы19, что создает дополнительную неопределенность. Прямая визуализация микротрубочек позволяет уменьшить эти неоднозначности.
Альтернативным подходом по сравнению с использованием EB-GFP является прямое мечение микротрубочек с помощью GFP-тубулина20,21. Однако, несмотря на то что флуоресцентный тубулин эффективно метит проксимальные дендриты22, он не позволяет метить дистальные дендриты23. Еще одна сложность при использовании флуоресцентного тубулина заключается в том, что высокая концентрация растворимого тубулина затрудняет различение отдельных микротрубочек в узких отростках, таких как терминальные дендриты. Таким образом, визуализация динамики микротрубочек в интактных нейронах в нормальных физиологических условиях остается сложной задачей.
The Drosophila белок, ассоциированный с микротрубочками (MAP), Jupiter, являющийся структурным гомологом млекопитающих белков Tau, MAP2 и MAP4, был используется для маркировки микротрубочек в Drosophila ткани, включая яичники и эмбрионы24В дендритах IV класса для количественного определения микротрубочек в проксимальных ветвях использовались mCherry-Jupiter и sfGFP-Jupiter.22,25,26В данном протоколе описывается метод прижизненной визуализации, позволяющий проводить наблюдение за поведением нейрональных микротрубочек в дистальных дендритах с высоким разрешением в режиме таймлапс в... Drosophila (дрозофила) нейроны IV класса с использованием линий мух, экспрессирующих флуоресцентно меченный тубулин-связывающий домен белка Jupiter.
Протокол
В данном исследовании использовалась Drosophila melanogaster, беспозвоночная модель, для которой не требовалось одобрение институционального комитета по этике работы с животными. Инструменты, используемые в протоколе, перечислены в Таблице материалов.
1. Создание экспериментальных линий мух
- Проведите скрещивание для получения желаемой родительской линии. Используйте бинарную систему GAL4/UAS для экспрессии mNeonGreen (mNG)-Jupiter в дендритных arborization (da) нейронах IV класса, экспрессирующих GAL4 под промотором ppk.
- Скрестите девственных самок гомозиготной линии UAS-mNG-Jupiter с самцами гомозиготной линии ppk-GAL4; CD4tdTomato. Получите потомство F1, несущее как ppk-GAL4; CD4tdTomato, так и UAS-mNG-Jupiter.
ПРИМЕЧАНИЕ: Потомство F1, несущее и ppk-GAL4; CD4tdTomato, и UAS-mNG-Jupiter, демонстрирует сильную экспрессию mNG и CD4tdTomato в da нейронах IV класса. При проведении визуализации используйте личинок, полученных как минимум из трех независимых генетических скрещиваний, визуализируя не менее шести личинок из каждого скрещивания. - Содержите скрещиваемую пару в поддерживающем флаконе для спаривания, нанеся на стенку небольшое количество дрожжевой пасты. Инкубируйте при 25 °C в течение 2–3 дней.
ПРИМЕЧАНИЕ: Кормление дрожжами стимулирует откладку яиц. - Приготовьте дрожжевую пасту, поместив ложку дрожжей в небольшой стакан и добавив несколько капель воды. Тщательно перемешайте шпателем до достижения полутвердой консистенции, при необходимости добавляя воду по каплям.
- Ежедневно пересаживайте мух в новый поддерживающий флакон со свежей дрожжевой пастой.
ПРИМЕЧАНИЕ: Следите за тем, чтобы дрожжевая паста не была слишком мягкой или жидкой. Если она станет слишком мягкой, мухи могут в ней завязнуть. Дополнительные методические подробности см. в работах Hales et al.27 и Roote and Prokop28.
2. Откладка яиц на виноградный агар, сбор яиц и определение стадии развития личинок
- Приготовьте примерно 0,5 L виноградно-агаровой среды, смешав 376 mL дистиллированной воды, 126 mL виноградного сока, 15 g агара и 6 g сахарозы в подходящем для микроволновой печи стакане объемом 1 L.
- Нагревайте в микроволновой печи в течение 3–5 мин, перемешивая каждые 1 мин до полного растворения агара. Дайте смеси немного остыть, затем добавьте 10 mL этанола и 5 mL уксусной кислоты.
- Тщательно перемешайте и разлейте среду в чашки Петри диаметром 60 мм для приготовления виноградно-агаровых планшетов. Готовьте планшеты заранее, храните их при 4 °C, складывая стопкой вверх дном и оборачивая в специальные рукава для чашек Петри; используйте их в течение 2 недель. Перед использованием доведите планшеты до комнатной температуры.
- Перенесите примерно 150 мух (50 самцов и 100 самок) из флакона для содержания в клетку для откладки яиц.
- Накройте клетку для откладки яиц виноградно-агаровым планшетом диаметром 60 мм, на который нанесена порция дрожжевой пасты.
- Дайте мухам откладывать яйца при 25 °C в течение 2 ч на виноградно-агаровый планшет с дрожжевой пастой. Замените планшет новым виноградно-агаровым планшетом с дрожжевой пастой и дайте мухам откладывать яйца еще в течение 2 ч.
- Поместите третий виноградно-агаровый планшет диаметром 60 мм с дрожжевой пастой и дайте мухам откладывать яйца в течение 2 ч.
- Используйте третий планшет в качестве экспериментального, а первые два планшета утилизируйте, чтобы минимизировать неоднородность по возрасту эмбрионов.
ПРИМЕЧАНИЕ: Первичный сбор яиц часто содержит эмбрионы на разных стадиях развития, поскольку самки Drosophila могут удерживать оплодотворенные яйца в репродуктивном тракте в течение нескольких часов перед откладкой. Удаление первых планшетов помогает получить более синхронизированные яйца. - Для получения снимков на определенных стадиях после откладки яиц (AEL) выдерживайте эмбрионы на экспериментальных планшетах при 25 °C до достижения нужной стадии: стадия 1 — 24 h; стадия 2 — 48 h; стадия 3 — 72 h; стадия 4 — 96–120 h.
3. Очистка личинок
- Промойте личинок 5 mL 5% раствора сахарозы, затем 5 mL dH₂O, чтобы удалить остатки дрожжей с поверхности и предотвратить высыхание.
- Перенесите личинок (обычно три или четыре) на крышку 35-мм чашки для культивирования клеток с помощью кисти размера 3/0. Промокните личинок лабораторной салфеткой, чтобы удалить излишки воды.
4. Анестезирование
- Очистите и высушите личинок перед анестезией.
- Заранее подготовьте установку для анестезии (Рисунок 1). Поместите чашку для культивирования клеток в картонный короб, чтобы уменьшить движение воздуха над чашкой и минимизировать нарушение действия изофлурана.
ПРЕДОСТЕРЕЖЕНИЕ: Изофлуран является летучим анестетиком. Работайте с изофлураном при соответствующей лабораторной вентиляции и в соответствии с правилами техники безопасности при работе с химическими веществами, принятыми в вашем учреждении. Иммобилизуйте личинок, добавив отмеренный объем изофлурана в трубку-дозатор, закрепленную с помощью клейкой ленты внутри чашки для культивирования клеток диаметром 35 mm, которая служит резервуаром для испарения. - Поместите крышку чашки для культивирования с очищенными и высушенными личинками сверху на чашку.
- Проводите анестезию личинок в течение 2–3 min.
ПРИМЕЧАНИЕ: Объем изофлурана и продолжительность анестезии зависят от стадии развития и количества личинок. Определите необходимое количество эмпирически. Например, используйте 10–20 µL изофлурана в течение 2 min для анестезии трех 72 h личинок с последующим действием препарата примерно в течение 30 min. В качестве начальной дозы для иммобилизации используйте 5 µL изофлурана на одну личинку в минуту, независимо от стадии развития.
5. Монтирование
- С помощью вазелина создайте прямоугольную или круглую ограничительную рамку на чистом предметном стекле, оставив небольшой зазор в одном из углов (Рисунок 1C). Для нанесения рамки на стекло используйте дозатор для хны.
- Перенесите анестезированных личинок в рамку с помощью кисточки. Закрепите личинок спинной стороной вверх в капле масла Halocarbon Oil 700.
- Накройте личинку покровным стеклом № 1,5. Слегка надавите, пока вазелин не заполнит зазор между покровным и предметным стеклами, и личинка не будет слегка прижата к предметному стеклу.
- Проведите визуализацию образца сразу после переноса, описанного в шаге 5.2, в течение максимум 30–45 мин. Прекратите визуализацию, если в мембранном канале наблюдается образование везикул (блеббинг) или повреждение нейронов, включая разрывы дендритов; в этом случае используйте меньшую дозу анестетика.
ПРИМЕЧАНИЕ: Убедитесь в отсутствии пузырьков воздуха в масле Halocarbon Oil после установки покровного стекла. Отсутствие пузырьков необходимо для получения высококачественных динамических видео и минимизации дрейфа. Чтобы уменьшить образование пузырьков воздуха, оставьте небольшой зазор в одном углу вазелиновой рамки, чтобы воздух мог выходить при установке покровного стекла. При необходимости закройте зазор тонкой кисточкой.
6. Микроскопия и получение изображений
- Выполните прижизненную визуализацию образцов личинок с помощью спиннинг-дискового конфокального микроскопа, оснащенного пинхолом 50 µm и системой автоматической фокусировки (perfect-focus).
- Установите мощность лазерных линий 488 nm и 561 nm на уровне 30% от максимальной (при условии использования лазеров 100 mW) для визуализации маркера микротрубочек, такого как mNG-Jupiter, и мембранного маркера CD4tdTomato.
- Установите время экспозиции 200 ms. Снимайте изображения с помощью sCMOS-камеры с сенсорами 6.5 µm и соответствующего программного обеспечения для сбора данных.
- Снимайте все изображения, используя 40× водно-иммерсионный объектив с числовой апертурой 1.25 и размером пикселя 0.1614 µm.
- Сфокусируйтесь на образце вручную, чтобы найти второй, третий и четвертый абдоминальные полусегменты дорсальной поверхности, где нейроны IV класса легко доступны через прозрачную кутикулу.
- Для каждой записи получите серию z-стеков глубиной до 10 µm с шагом 1 µm. Снимайте стеки с интервалом 10 s в течение 10 или 15 min.
ПРИМЕЧАНИЕ: Если не указано иное, для визуализации используйте личинок в возрасте 72 h AEL.
7. Обработка и анализ изображений
- Импортируйте полученные таймлапс-видео в формате .ND2 в программу FIJI (Fiji Is Just ImageJ) с помощью импортера Bio-Formats. Конвертируйте видео в формат TIFF для последующего анализа.
- Стабилизируйте видео для коррекции дрейфа образца, используя плагин стабилизации изображений с настройками аффинного преобразования в FIJI.
- Исключите из анализа видео с чрезмерным движением. Считайте движение более 1 µm/min чрезмерным и исключите такие видео из анализа. Также исключите видео, если в канале маркера мембраны (CD4tdTomato) наблюдается блеббинг.
- Преобразуйте z-стеки в двумерные временные серии, создав проекции максимальной интенсивности вдоль оси z в FIJI.
- Очертите в FIJI линейные области интереса (ROI) вдоль исследуемого объекта для количественной оценки динамических свойств кончиков и микротрубочек. Используйте плагин Multi Kymograph в FIJI для построения кимографов. Сгенерируйте кимограф, используя линейное сканирование шириной 3 пикселя вдоль ROI, и обработайте его с помощью плагина Multi Kymograph в FIJI.
- Извлеките профили интенсивности с помощью инструмента Plot Profile с шириной линии 3 пикселя. Сформируйте многоколоночный CSV-файл, в котором чередующиеся столбцы кодируют положение и интенсивность вдоль каждого линейного сканирования.
- Оцените интенсивность фона по соответствующей ROI в пустой области поля зрения. Вычтите интенсивность фона из каждого кадра.
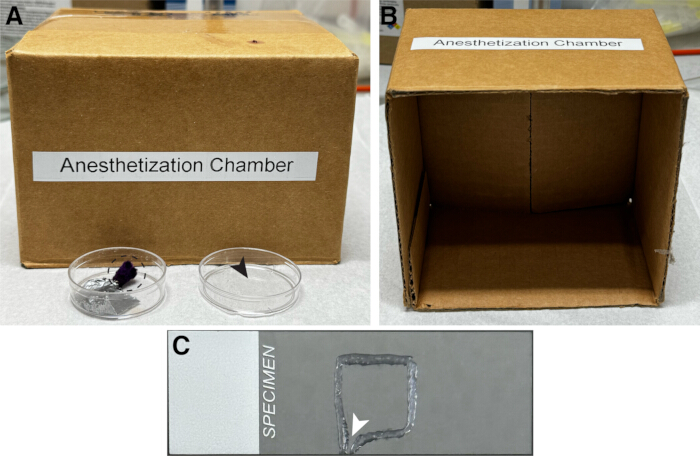
Рисунок 1: Компоненты установки для анестезирования. (A) Небольшая картонная коробка, накрывающая 35-мм чашку для культивирования клеток, в которой с помощью изоленты закреплен испарительный стержень с анестетиком (черный пунктирный круг). Крышка чашки для культивирования использовалась для содержания чистых сухих личинок до и во время анестезии (черный наконечник стрелки). (B) Вид внутри коробки. (C) Предметное стекло с квадратным ограничителем из вазелина, подготовленным с помощью диспенсера для хны, для удержания образца личинки во время визуализации. Небольшой зазор (белый наконечник стрелки) облегчает удаление воздуха при установке покровного стекла. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
Результаты
Следуя описанному выше протоколу, микротрубочки были успешно визуализированы в нейронах IV класса с дендритной арборизацией (da) с использованием mNG-Jupiter в сочетании с мембранным маркером CD4tdTomato (Рисунок 2A–C). Мембранный маркер очерчивал общую морфологию дендритного дерева, в то время как mNG-Jupiter маркировал области дендритов, содержащие микротрубочки. На дистальных концах терминальных дендритов флуоресценция mNG-Jupiter была слабой или отсутствовала вблизи кончиков дендритов, тогда как флуоресценция CD4tdTomato оставалась сильной в соответствующих терминалях (Рисунок 2D–F).
Дендритные деревья не обнаружили явных морфологических различий по сравнению с личинками, визуализированными только с использованием мембранного маркера в предыдущих исследованиях11Для количественной оценки того, вызвала ли экспрессия mNG-Jupiter морфологические отклонения, подсчитывали количество терминальных ветвей дендритов в арборах, экспрессирующих mNG-Jupiter, и в контрольных арборах через 72 ч после выхода из яйца (AEL). В восьми клетках восьми личинок, экспрессирующих mNG-Jupiter, количество ветвей в одной четверти арбора составило 153 ± 25 (среднее значение) ± (SD), по сравнению со 144 ± 27 (среднее значение ± SD) в контрольных личинках (Рисунок 2G). С помощью критерия Уэлча значимых различий обнаружено не было t-тест (см. подпись к рисунку 2). Таким образом, экспрессия mNG-Jupiter не привела к обнаруживаемому изменению количества дендритных ветвей.
Таймлапс-визуализация продемонстрировала динамику сигнала mNG-Jupiter в терминальных дендритах. На репрезентативной последовательности, показанной на рисунке 3A, видно, как со временем менялось положение яркого конца микротрубочки, меченного mNG-Jupiter. Последовательные линейные сканы сигнала mNG-Jupiter были расположены во временной последовательности для визуализации изменений положения и длины микротрубочек. Полученный кимограф на рисунке 3B демонстрирует чередующиеся фазы удлинения и сокращения флуоресцентного сигнала, что соответствует наблюдаемому росту и сокращению меченых микротрубочек в терминальных дендритах (видео 1 и 2). В более толстых дендритах, расположенных ближе к соме, большее количество микротрубочек препятствовало визуализации динамики отдельных структур.
Совокупность репрезентативных изображений и записей в режиме тайм-лапс показывает, что данный протокол позволяет визуализировать как морфологию дендритов, так и динамические изменения флуоресценции ассоциированных с микротрубочками белков в интактных сенсорных нейронах личинок Drosophila. Маркер мембраны служит ориентиром для определения структуры дендрита, в то время как mNG-Jupiter позволяет отслеживать поведение микротрубочек внутри дендрита с течением времени (Рисунки 2 и 3).
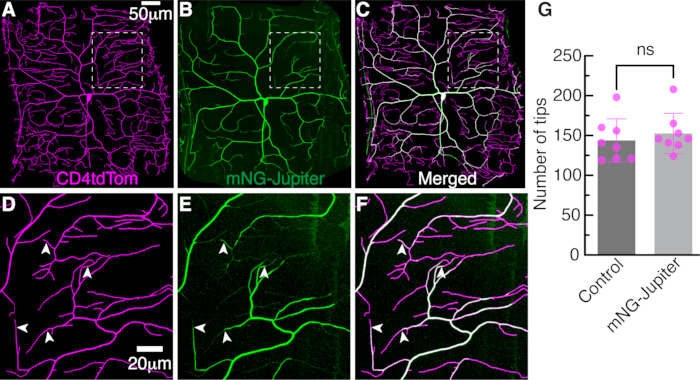
Рисунок 2Дендриты нейронов IV класса. Дендритное дерево нейрона IV класса с дендритной арборизацией (da), визуализированное с помощью спиннинго-дисковой конфокальной микроскопии через 72 часа после откладки яиц (AEL). Микротрубочки визуализированы с использованием бинарной системы экспрессии GAL4/UAS. Специфичный для клеток IV класса драйвер ppk-GAL4 (pickpocket) способствует экспрессии Jupiter с mNG-меткой (UAS-mNG-Jupiter). Дендритные мембраны маркируются прямым ppk промотор-опосредованная экспрессия tdTomato, слитого с мембранным маркером CD4 (ppk-CD4tdTomato). (А) Маркер мембраны, CD4tdTomato. (B) Маркер микротрубочек, mNG-Jupiter. (C) Комбинированное изображение. (D–F) Увеличенные изображения областей, обведенных белыми пунктирными рамками на панелях A–C соответственно, иллюстрируют распределение маркеров микротрубочек и мембран. Белые стрелки указывают на распределение mNG-Jupiter в терминальных дендритах.G) Количественное определение числа дендритных окончаний в контрольных нейронах и нейронах, экспрессирующих mNG-Jupiter, через 72 ч после вылупления (AEL). Каждая точка представляет собой количество окончаний, подсчитанных в одной четверти одного нейрона из отдельной личинки. В каждой группе было проанализировано в общей сложности восемь нейронов из восьми независимых личинок. Планки погрешностей обозначают среднее значение ± SD. Группы сравнивали с помощью двухстороннего непарного t-критерия Уэлча t-тест; ns, недостоверно (P > 0.05). Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
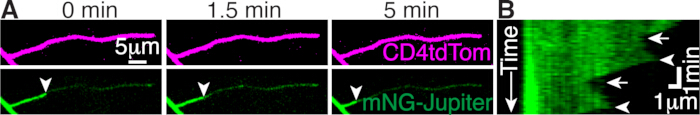
Рисунок 3: Динамика микротрубочек в терминальном дендрите. (A) Три изображения терминального дендрита, экспрессирующего CD4tdTomato (сверху) и mNG-Jupiter (снизу) в указанные моменты времени. Наконечники стрелок указывают на конец микротрубочки. Слабый сигнал mNG виден за пределами яркого сигнала микротрубочек. (B) Кимограмма, демонстрирующая рост и сокращение микротрубочек. Наконечники стрелок указывают на фазы роста, а стрелки — на фазы сокращения. Последовательные линейные сканы сигнала mNG шириной 3 пикселя расположены один под другим; время увеличивается в направлении вниз. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
Видео 1: Таймлапс-визуализация mNG-Jupiter в дендритных нейронах IV класса. Таймлапс-последовательность, демонстрирующая флуоресценцию mNG-Jupiter в дендритах IV класса личинок Drosophila. Последовательность иллюстрирует изменения флуоресценции, связанной с микротрубочками, с течением времени в дендритном дереве. Изображения были получены в условиях живой визуализации, описанных в протоколе. Масштабная линейка, 20 µm. Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Видео 2: Таймлапс-визуализация мембранного маркера CD4tdTomato в нейронах IV класса дендритной арборизации. Последовательность таймлапс-изображений, демонстрирующая флуоресценцию CD4tdTomato в соответствующем дендритном дереве IV класса личинки Drosophila. Мембранный маркер служит ориентиром для анализа морфологии дендритов в течение периода визуализации. Изображения были получены с использованием условий живой визуализации, описанных в протоколе. Масштабный отрезок, 20 µm. Пожалуйста, нажмите здесь, чтобы скачать этот файл.
Обсуждение
В данном протоколе демонстрируется использование трансгенных линий мух Jupiter для прижизненной визуализации динамики микротрубочек в сенсорных нейронах Drosophila с помощью конфокальной микроскопии. Этот метод позволяет визуализировать флуоресценцию, ассоциированную с микротрубочками, в целом организме личинки с сохранением морфологии дендритов, что было подтверждено с использованием мембранного маркера11,29. Аналогичный подход также применялся для визуализации динамики актина с использованием GFP-актина и LifeAct-GFP в нейронах IV класса22,30,31,32. В принципе, тот же общий подход может быть применен и для визуализации других микротрубочки-связывающих белков в клетках IV класса, а также в нейронах других классов с дендритной арборизацией (классы I, II и III). В частности, сочетание флуоресцентного мечения микротрубочек с мечением EB может уменьшить неоднозначность при интерпретации роста микротрубочек. Например, отсутствие «кометы» EB может указывать либо на отсутствие микротрубочек, либо на наличие микротрубочек, которые не растут активно; прямая визуализация микротрубочек помогает разграничить эти варианты. Таким образом, совместное мечение mNG-Jupiter и флуоресцентного EB1 может позволить интерпретировать динамику роста микротрубочек в локальном контексте их организации, количества и предполагаемой ориентации.
Для получения подходящих данных при живой визуализации критически важны несколько этапов. В данном протоколе используется летучий анестетик изофлуран для проведения определенного краткосрочного режима иммобилизации. Доза изофлурана во время иммобилизации должна тщательно контролироваться, так как недостаточная анестезия допускает движение личинок, в то время как избыточная может привести к деградации нейронов. Также следует избегать появления пузырьков воздуха при монтировании, поскольку они могут ухудшить качество изображения и способствовать дрифту образца. Кроме того, необходимо избегать чрезмерного давления покровного стекла, так как это может вызвать образование блеббинга дендритов и последующее повреждение нейронов. Эти шаги важны для поддержания стабильности образца и морфологии дендритов на протяжении всего процесса визуализации.
Важным ограничением данного протокола является то, что метод иммобилизации и визуализации, включающий сочетание воздействия анестетика и физического ограничения с помощью покровного стекла, может влиять на динамику микротрубочек. Чтобы определить, нарушена ли работа микротрубочек в этих условиях, можно использовать альтернативные методы иммобилизации отдельно или в сочетании с данным протоколом. Такие подходы включают визуализацию эмбрионов и использование температурно-чувствительных мутантов, таких как Shibirets 33, с последующим сравнением кинетических параметров, таких как скорость роста и частота катастроф.
При таком ограничении данный протокол позволяет проводить визуализацию личинок в течение примерно 30 минут после закрепления без появления дендритных выпячиваний, ухудшения морфологии или потери детектируемой динамики микротрубочек и их концов. Метод позволяет получать данные таймлапс-визуализации высокого разрешения от целых личинок и наблюдать динамическое поведение микротрубочек в терминальных дендритах.
Раскрытие информации
Авторы не заявляют о наличии конфликта интересов.
Благодарности
Авторы выражают благодарность всем сотрудникам лаборатории Ховарда, в особенности бывшему сотруднику лаборатории доктору Майцзя Ляо за инициирование проекта по маркировке микротрубочек, и доктору Сонал Шри за разработку протокола визуализации динамики дендритов у Drosophila в лаборатории Ховарда. Исследования, представленные в данной публикации, были поддержаны Национальными институтами здравоохранения (NIH) в рамках гранта № R35 GM161634 (Национальный институт общих медицинских наук) и гранта № R01 NS118884 (Национальный институт неврологических расстройств и инсультов), предоставленных J.H. Содержание публикации является исключительной ответственностью авторов и не обязательно отражает официальную позицию Национальных институтов здравоохранения. Эта работа также была поддержана грантом NSF PHY-2210464 и грантом PEW Charitable Trusts № 38044, предоставленными J.H.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| Уксусная кислота (ледяная, реактив ACS, ≥99.7%) | Sigma-Aldrich | 695092 | Используется для приготовления виноградного агара; 5 mL на каждые примерно 0.5 L раствора |
| Агар (бактоагар) | Becton Dickinson | 214010 | Используется для приготовления виноградного агара; 15 g на каждые примерно 0.5 L раствора |
| Анестезирующая палочка | Carolina Biological Supply Co. | 173010 | Используется для удержания изофлурана в резервуаре для испарения во время анестезирования личинок |
| Стакан, 1 L, подходящий для микроволновой печи | Corning Inc. | 1000-1L | Используется для приготовления примерно 0.5 L виноградного агара |
| Стакан, 100 mL | Corning Inc. | 1000-100 | Используется для приготовления дрожжевой пасты |
| Импортер Bio-Formats | Open Microscopy Environment Project | Not applicable | Плагин FIJI, используемый для импорта файлов таймлапс-съемки в формате .ND2 |
| Камера (sCMOS, Zyla 4.2 Plus) | Andor Technology | ZYLA-4.2P-USB3 | Сенсор 6.5 µm; используется для получения изображений |
| Картонная коробка (5 × 5 × 3 in) | Uline | S-4579 | Используется для накрытия установки для анестезии и уменьшения движения воздуха над чашкой для культивирования клеток |
| Чашка для культивирования клеток | Corning Incorporated | 430165 | 35 × 10 mm; используется для манипуляций с личинками и в качестве резервуара для испарения изофлурана |
| Покрывное стекло | Globe Scientific Inc. | 1404-15 | 22 × 22 mm, № 1.5; помещается поверх закрепленной личинки |
| Камера Darwin | Darwin Chambers | IN030-AA-LT-DA-MP | Используется для поддержания скрещиваний мух, откладки яиц и стадирования личинок при 25 °C |
| Дистиллированная вода, квалификации «чистый» | Research Products International (RPI) | Not applicable | Используется для приготовления виноградного агара, дрожжевой пасты и промывки личинок |
| Армированный скотч | Uline | S-6519 | Используется для фиксации анестезирующей палочки внутри чашки для культивирования клеток |
| Клетка для откладки яиц/сбора эмбрионов | Genesee Scientific | 59-100 | Малого размера; подходит для чашки Петри 60 × 15 mm; используется для контролируемого сбора яиц |
| Этанол (безводный, 200 proof) | Decon Labs Inc. | V1001G | Используется для приготовления виноградного агара; 10 mL на каждые примерно 0.5 L раствора |
| FIJI (Fiji Is Just ImageJ) | NIH | Version 2.16.0/1.54p | Используется для импорта изображений, стабилизации, проекции максимальной интенсивности, анализа ROI, построения кимограмм и извлечения профилей интенсивности |
| Линии мух: (1) w; ppk-Gal4; ppk-cd4-tdTom; (2) w; w+, UASt-mNeonGreen-Jupiter-RD/CyO | Bloomington Drosophila Stock Center(1); Howard Lab (2) | BDSC# 32078, BDSC# 35845 | Используются для экспрессии CD4tdTomato и mNG-Jupiter в дендритных нейронах IV класса |
| Виноградный сок, 100% сорт Конкорд | Welch's | Not applicable | Используется для приготовления виноградного агара; 126 mL на каждые примерно 0.5 L раствора |
| Галокарбоновое масло 700 | Sigma-Aldrich | H8898 | Используется для закрепления личинок при прижизненной визуализации |
| Диспенсер для хны | ZEYER | ZEYER-1005 | Используется для создания вазелиновой границы на предметном стекле |
| Стабилизатор изображений (Image Stabilizer) | Разработка Kang Li | Not applicable | Плагин FIJI, используемый с настройками аффинного преобразования для коррекции дрифта образца |
| Изофлуран | Santa Cruz Biotechnology, Inc. | sc-470926 | Используется для иммобилизации личинок перед закреплением и визуализацией |
| Лабораторные салфетки (Kimwipes) | Kimberly-Clark Professional | 34120 | Используются для удаления излишков воды с промытых личинок перед анестезией |
| Флакон для содержания | Lab Express Inc. | 7001-PBT | Полипропиленовый флакон с квадратным дном, 6 oz; содержит корм для мух B (рецепт Bloomington) и используется для содержания линий и скрещиваний мух |
| Микроволновая печь | Panasonic | NN-SN686S | Используется для растворения агара при приготовлении виноградного агара |
| Микроскоп, инвертированный | Nikon Instruments Inc. | 736228 | Инвертированный микроскоп Ti Eclipse, оснащенный системой Perfect Focus для прижизненной визуализации |
| Предметное стекло | Fisherbrand | 12550143 | Стекло Superfrost; используется для закрепления личинок для визуализации |
| Multi Kymograph | Разработка Jens Rietdorf, Arne Seitz и Johannes Schindelin | Not applicable | Плагин FIJI, используемый для построения кимограмм динамики микротрубочек |
| Программное обеспечение Nikon Elements | Nikon Instruments Inc. | Version 5.21.03 | Используется для получения таймлапс-изображений и генерации файлов .ND2 |
| Объектив, с иммерсией в воду | Nikon Instruments Inc. | MRD77400 | 40×, 1.25 NA; используется для прижизненной визуализации |
| Кисть для рисования | Dynasty | 2157r | Размеры 0 и 3/0; используются для переноса личинок и герметизации вазелиновой границы |
| Чашка Петри | Falcon | 351007 | 60 × 15 mm; используется для чашек с виноградным агаром |
| Шпатель | VWR | 82027-532 | 22.9 cm (9 in); используется для смешивания дрожжей с водой при приготовлении дрожжевой пасты |
| Спиннинг-дисковый конфокальный модуль | Yokogawa CSU-W1 | SBW001 | Диафрагма (pinhole) 50 µm; используется для прижизненной конфокальной визуализации |
| Сахароза | Sigma-Aldrich | 57-50-1 | Используется в составе виноградного агара и в виде 5% раствора для промывки личинок |
| Вазелин | Unilever | Not applicable | Используется для создания герметичного пространства между предметным и покрывным стеклами |
| Дрожжи (активные сухие дрожжи Red Star) | Lesaffre Corporation | Not applicable | Используются для приготовления дрожжевой пасты и стимуляции откладки яиц |
Ссылки
- Kapitein LC, Hoogenraad CC. Building the neuronal microtubule cytoskeleton. Neuron. 2015;87(3):492–506.
- Howard J, Hyman AA. Dynamics and mechanics of the microtubule plus end. Nature. 2003;422(6933):753–758.
- Jan YN, Jan LY. Branching out: mechanisms of dendritic arborization. Nature Reviews Neuroscience. 2010;11(5):316–328.
- Fujishima K, Horie R, Mochizuki A, Kengaku M. Principles of branch dynamics governing shape characteristics of cerebellar Purkinje cell dendrites. Development. 2012;139(18):3442–3455.
- Grueber WB, Jan LY, Jan YN. Tiling of the Drosophila. epidermis by multidendritic sensory neurons. Development. 2002;129(12):2867–2878.
- Hwang RY, et al. Nociceptive neurons protect Drosophila. larvae from parasitoid wasps. Current Biology. 2007;17(24):2105–2116.
- Grueber WB, et al. Dendrites of distinct classes of Drosophila. sensory neurons show different capacities for homotypic repulsion. Current Biology. 2003;13(8):618–626.
- Guo Y, et al. Identification of the peptide Vulnusin, a wound signal that mediates mechanical-injury-induced nociception in Drosophila. Neuron. 2025;113(20):3352–3362.e5.
- Han C, et al. Integrins regulate repulsion-mediated dendritic patterning of Drosophila. sensory neurons by restricting dendrites in a 2D space. Neuron. 2012;73(1):64–78.
- Grueber WB, et al. Projections of Drosophila. multidendritic neurons in the central nervous system: links with peripheral dendrite morphology. Development. 2007;134(1):55–64.
- Shree S, et al. Dynamic instability of dendrite tips generates the highly branched morphologies of sensory neurons. Science Advances. 2022;8(26):eabn0080. doi: 10.1126/sciadv.abn0080.
- Ouyang X, et al. Neurons exploit stochastic growth to rapidly and economically build dense dendritic arbors. Nature Communications. 2025;16(1):5903. doi: 10.1038/s41467-025-60800-7.
- Mimori-Kiyosue Y, Shiina N, Tsukita S. The dynamic behavior of the APC-binding protein EB1 on the distal ends of microtubules. Current Biology. 2000;10(14):865–868.
- Stepanova T, et al. Visualization of microtubule growth in cultured neurons via .the use of EB3-GFP (end-binding protein 3-green fluorescent protein). Journal of Neuroscience. 2003;23(7):2655–2664.
- Piehl M, Cassimeris L. Organization and dynamics of growing microtubule plus ends during early mitosis. Molecular Biology of the Cell. 2003;14(3):916–925.
- Ori-McKenney KM, Jan LY, Jan YN. Golgi outposts shape dendrite morphology by functioning as sites of acentrosomal microtubule nucleation in neurons. Neuron. 2012;76(5):921–930.
- Stone MC, Roegiers F, Rolls MM. Microtubules have opposite orientation in axons and dendrites of Drosophila. neurons. Molecular Biology of the Cell. 2008;19(10):4122–4129.
- Zheng Y, et al. Dynein is required for polarized dendritic transport and uniform microtubule orientation in axons. Nature Cell Biology. 2008;10(10):1172–1181.
- Zanic M, Stear JH, Hyman AA, Howard J. EB1 recognizes the nucleotide state of tubulin in the microtubule lattice. PLoS One. 2009;4(10):e7585. doi: 10.1371/journal.pone.0007585.
- Carminati JL, Stearns T. Microtubules orient the mitotic spindle in yeast through dynein-dependent interactions with the cell cortex. Journal of Cell Biology. 1997;138(3):629–641.
- Straight AF, Marshall WF, Sedat JW, Murray AW. Mitosis in living budding yeast: anaphase A but no metaphase plate. Science. 1997;277(5325):574–578.
- Nanda S, Bhattacharjee S, Cox DN, Ascoli GA. Distinct relations of microtubules and actin filaments with dendritic architecture. iScience. 2020;23(12):101865. doi: 10.1016/j.isci.2020.101865.
- Lee HH, Jan LY, Jan YN. Drosophila. IKK-related kinase Ik2 and Katanin p60-like 1 regulate dendrite pruning of sensory neuron during metamorphosis. Proceedings of the National Academy of Sciences of the United States of America. 2009;106(15):6363–6368.
- Karpova N, et al. Jupiter, a new Drosophila. protein associated with microtubules. Cell Motility and the Cytoskeleton. 2006;63(5):301–312.
- Poe AR, et al. Dendritic space-filling requires a neuronal type-specific extracellular permissive signal in Drosophila. Proceedings of the National Academy of Sciences of the United States of America. 2017;114(38):E8062–E8071.
- Nanda S, Bhattacharjee S, Cox DN, Ascoli GA. Local microtubule and F-actin distributions fully constrain the spatial geometry of Drosophila. sensory dendritic arbors. International Journal of Molecular Sciences. 2023;24(7):6741. doi: 10.3390/ijms24076741.
- Hales KG, Korey CA, Larracuente AM, Roberts DM. Genetics on the fly: a primer on the Drosophila. model system. Genetics. 2015;201(3):815–842.
- Roote J, Prokop A. How to design a genetic mating scheme: a basic training package for Drosophila. genetics. G3: Genes|Genomes|Genetics. 2013;3(2):353–358.
- Shree S, Howard J. Protocol for imaging the same class IV neurons at different stages of development. Bio-protocol. 2024;14(16):e5052. doi: 10.21769/BioProtoc.5052.
- Stürner T, et al. The branching code: a model of actin-driven dendrite arborization. Cell Reports. 2022;39(4):110746. doi: 10.1016/j.celrep.2022.110746.
- Nithianandam V, Chien CT. Actin blobs prefigure dendrite branching sites. Journal of Cell Biology. 2018;217(10):3731–3746.
- Kilo L, Stürner T, Tavosanis G, Ziegler AB. Drosophila. dendritic arborisation neurons: fantastic actin dynamics and where to find them. Cells. 2021;10(10):2777. doi: 10.3390/cells10102777.
- Liao M, Liang X, Howard J. The narrowing of dendrite branches across nodes follows a well-defined scaling law. Proceedings of the National Academy of Sciences. 2021;118(27):e2022395118. doi: 10.1073/pnas.2022395118.
Перепечатки и разрешения
Эта статья была опубликована
Видео скоро будет доступно