Данный протокол позволяет надежно изолировать жизнеспособные кардиомиоциты желудочков короткоживущей ежегодной киллифиш Nothobranchius furzeri разных возрастных групп, получая клетки, пригодные для проведения исследований возрастного ремоделирования сердца методом локальной фиксации потенциала (patch-clamp) в конфигурации «целая клетка».
Методическая статья
Выделение желудочковых кардиомиоцитов однолетней киллифиш Nothobranchius furzeri для регистрации методом патч-кламп в конфигурации whole-cell
В этой статье
Краткое содержание
Аннотация
Изолированные работающие кардиомиоциты остаются стандартным подходом к изучению электрофизиологии сердца. Препараты из отдельных клеток позволяют проводить прямое исследование и точное измерение ионных токов и потенциалов действия без структурной сложности интактной сердечной ткани. Nothobranchius furzeri (африканский бирюзовый киллифиш) быстро стал важным модельным организмом для геронтологических исследований благодаря исключительно короткой продолжительности жизни и сходству механизмов старения с млекопитающими, включая человека. Этот вид сочетает в себе такие практические преимущества, как малый размер, недорогое содержание и быстрый жизненный цикл, с трансляционной значимостью. У N. furzeri наблюдается возрастное снижение локомоторной активности, когнитивных функций и функций органов, накопление молекулярных маркеров старения, а также чувствительность к фармакологическому воздействию, модулирующему продолжительность и качество жизни. Однако исследование функционального упадка стареющего сердца требует надежного метода получения высококачественных жизнеспособных клеток, пригодных для сложных методов анализа отдельных клеток. В данном исследовании был оптимизирован ранее описанный протокол изоляции кардиомиоцитов Danio rerio для обеспечения стабильного получения здоровых работающих миоцитов как у молодых, так и у стареющих особей N. furzeri. Данный протокол описывает изоляцию желудочковых кардиомиоцитов N. furzeri, специально оптимизированную для метода локальной фиксации потенциала (patch clamp) в конфигурации whole-cell. В статье демонстрируется, как эффективно извлечь сердце, провести ферментативную диссоциацию миокарда путем ретроградной перфузии и хранить изолированные кардиомиоциты. Мы обсуждаем выбор ферментов, необходимых для расщепления внеклеточного матрикса и межклеточных соединений без повреждения структуры ионных каналов. Свежевыделенные кардиомиоциты пригодны для электрофизиологических анализов с высоким разрешением, включая регистрацию потенциалов действия и измерение основных входящих и выходящих ионных токов в разных возрастных группах. В статье также рассматриваются особенности изоляции кардиомиоцитов у рыб, которые отличаются от стандартных процедур изоляции у млекопитающих.
Введение
Возрастное функциональное снижение работы сердца обусловлено структурным, молекулярным и электрофизиологическим ремоделированием, что в совокупности ухудшает сердечный резерв и повышает предрасположенность к аритмогенезу1. Для понимания механизмов старения сердца на клеточном уровне незаменимым экспериментальным инструментом является метод локальной фиксации потенциала (patch clamp) в конфигурации «целая клетка» (whole-cell). Он позволяет проводить прямую количественную оценку отдельных трансмембранных ионных токов и их кинетики, а также потенциалов действия (ПД), что дает представление о конкретных изменениях ионных токов, лежащих в основе связанной со старением миокардиальной дисфункции. Исследование этих механизмов требует надежных моделей сердечного старения у позвоночных. В последние годы африканский бирюзовый киллифиш (Nothobranchius furzeri) стал перспективной моделью для изучения старения сердца благодаря своей естественной короткой продолжительности жизни2,3. Предварительные молекулярные и гистологические исследования выявили сходство процессов старения у Nothobranchius и млекопитающих. Исследования, проведенные другими группами, установили, что N. furzeri обладает основными признаками старения сердца млекопитающих, включая укорочение теломер, снижение содержания митохондриальной ДНК и экспрессии антиоксидантных ферментов, структурные и электрофизиологические изменения миокарда, а также накопление маркеров старения, таких как липофусцин и повышенная активность β-галактозидазы4,5,6.
Однако, несмотря на растущую значимость N. furzeri в сердечно-сосудистых исследованиях, детальная электрофизиологическая характеристика на уровне отдельных клеток ограничена постоянными техническими сложностями. Получение высококачественных записей методом патч-клампа напрямую зависит от выделения функциональных кардиомиоцитов, сохраняющих структурную целостность, интактные ионные каналы и негиперконтрактильную морфологию. В то время как протоколы ферментативной диссоциации для кардиомиоцитов млекопитающих хорошо разработаны, выделение жизнеспособных кардиомиоцитов из сердец рыб остается затруднительным из-за особенностей архитектуры тканей немлекопитающих, относительно низкого выхода клеток и малого размера сердца7,8. Основными ограничениями данной процедуры являются техническая сложность правильного канюлирования сердца и чувствительность препарата к небольшим отклонениям в режиме ферментативной обработки. Любое нарушение перфузионного потока приводит к заметному ухудшению как качества, так и выхода клеток. Кроме того, даже незначительные отклонения в концентрации фермента или времени дигестии могут существенно повлиять на жизнеспособность клеток и качество последующих электрофизиологических записей. Также следует учитывать возраст животного. Хотя сердца более старых рыб требуют несколько более высоких концентраций ферментов и более длительного времени дигестии из-за повышенного содержания коллагеновых волокон и фибробластов2, общие принципы выделения остаются неизменными, при этом концентрации ферментов и время воздействия варьируются в пределах 10% для достижения оптимальных результатов.
Следовательно, детальный и высоковоспроизводимый протокол ферментативного выделения является необходимым условием для развития электрофизиологических исследований старения сердца на моделях рыб. Несмотря на определенное морфологическое сходство в линейных размерах, выделение кардиомиоцитов из N. furzeri требует нескольких существенных модификаций по сравнению с протоколом для Danio rerio. Классическая процедура выделения клеток из сердца данио-рерио предполагает погружение целого сердца в ферментативный раствор на относительно длительный период7,8,9. Хотя этот подход позволяет получить жизнеспособные клетки, он может оказаться слишком агрессивным для сердца Nothobranchius и привести к избыточному ферментативному перевариванию. Данный метод обеспечивает стабильный приток растворов непосредственно в камеры сердца, что способствует более эффективному вымыванию крови из сердца и позволяет проводить более точную и щадящую ферментативную обработку. В данной статье описывается усовершенствованная методика выделения жизнеспособных кардиомиоцитов из N. furzeri, подходящих для метода локальной фиксации потенциала (patch clamp), с указанием ключевых корректировок, необходимых для обеспечения высокого качества электрофизиологических записей.
Протокол
Исследование проводили на N. furzeri линии GRZ. Для регистрации потенциалов действия и ионных токов в изолированных кардиомиоцитах желудочков использовали молодых половозрелых рыб обоих полов в возрасте 1,5–2 месяцев (N = 19, масса тела = 0,71 g ± 0,36 g). Рыбы были выведены и предоставлены Институтом экологии и эволюции им. А.Н. Северцова РАН. Животных содержали в аквариумах при температуре 24 °C ± 1 °C с 12-часовым циклом свет/темнота в резервуарах с водой объемом 60–100 L. Плотность посадки составляла 10–20 особей на резервуар в соответствии с ранее опубликованными рекомендациями10.
Принцип изоляции кардиомиоцитов из N. furzeri основан на классическом методе изоляции клеток рыб, описанном ранее и адаптированном для мелких рыб11,12. Все эксперименты проводились в соответствии с Руководством по содержанию и использованию лабораторных животных (Национальные институты здравоохранения США) и Директивой ЕС 2010/63/EU. Экспериментальный протокол был одобрен Комитетом по биоэтике МГУ имени М. В. Ломоносова (заявка №202-а, одобрена на заседании Комиссии по биоэтике №169-д от 27.02.2025). Используемые реагенты и оборудование перечислены в Таблице материалов.
1. Приготовление растворов
- Приготовьте раствор Ca2+2+бессульфатный изолирующий раствор, содержащий (в ммоль л-1): 100 NaCl, 10 KCl, 1,2 KH2ПО4, 4 MgSO44, 50 таурина, 20 глюкозы и 10 HEPES. Доведите pH до 6,9 с помощью NaOH при комнатной температуре (24 °C). Выполните изоляцию, используя физиологический раствор комнатной температуры. Оксигенация раствора для проведения изоляции не требуется.
ПРИМЕЧАНИЕ: Раствор для изоляции можно хранить при 4 °C в течение 3–4 дней в стеклянном флаконе. - Приготовьте 3 мл ферментного раствора на основе Ca2+-бесплотный раствор, содержащий 0,8 мг/мл-1 коллагеназа типа 1A, 0,5 мг/мл-1 трипсин, и 0,8 мг/мл-1 бычий сывороточный альбумин (БСА). Добавляйте ферменты непосредственно перед процедурой выделения, чтобы сохранить их ферментативную активность.
ПРИМЕЧАНИЕ: Концентрации ферментов могут потребовать корректировки, так как активность ферментов варьируется от партии к партии. - Предварительно охладите 50–100 мл водопроводной воды в холодильнике до +4 °CОхлажденная вода необходима для обеспечения анальгезии у рыб.
2. Подготовка системы изоляции
- Закрепите два цилиндра шприцев объемом 10 mL на штативе на высоте примерно 35 cm.
- Подсоедините силиконовые трубки (d = 8 mm) к цилиндрам и соедините их свободные концы с помощью трехходового инфузионного крана.
- Заполните одну трубку изоляционным раствором, не содержащим Ca2+, а другую — ферментативным раствором. Убедитесь, что в трубках не осталось пузырьков воздуха, так как они препятствуют потоку и снижают качество изоляции. Перекройте поток.
- С помощью инсулинового шприца объемом 1 mL заполните диспенсерную иглу 32 G раствором без Ca2+, чтобы избежать образования пузырьков воздуха у кончика иглы.
- Присоедините заполненную иглу к свободному концу трехходового крана.
- С помощью монтажного пластилина закрепите иглу на чашке Петри диаметром 100 mm параллельно плоскости дна.
- Поместите чашку Петри, подключенную к системе перфузии, под стереомикроскоп и зафиксируйте ее зажимами предметного столика и монтажным пластилином (Рисунок 1A).
3. Диссекция и выделение сердца
- Подготовьте хирургические инструменты: два набора микрохирургических офтальмологических ножниц и пинцетов, а также препаيراционный лоток с четырьмя медицинскими иглами.
- Возьмите предварительно охлажденную водопроводную воду из холодильника и быстро погрузите в нее рыбу. Подождите, пока жаберные крышки перестанут двигаться.
ПРЕДОСТЕРЕЖЕНИЕ: Перед продолжением убедитесь в прекращении движений оперкулума для обеспечения адекватной анальгезии. - Извлеките рыбу из воды, поместите ее на препаيراционный лоток спинной стороной вверх и перережьте спинной мозг офтальмологическими ножницами.
- Переверните рыбу на спину и закрепите ее на лотке иглами. Зафиксируйте голову, хвост и оперкулумы, отводя оперкулумы назад в полностью открытое положение для обеспечения большего пространства.
- Сделайте поперечный разрез брюшины. Продолжите разрез продольно до главной оси тела, осторожно приподнимая кожу над висцеральными органами с помощью пинцета. Продолжайте разрез до края нижней челюсти и зафиксируйте края кожи слева и справа (Рисунок 1B).
- Найдите желудочек и бульбус артериозус. Захватите бульбус артериозус пинцетом как можно дальше от желудочка и осторожно извлеките его из тела. Не отпуская пинцет, сделайте разрез каудально от желудочка, чтобы сохранить его целостность.
- Перенесите изолированное сердце в чашку Петри под стереомикроскоп. Закрепите кончик канюли в желудочке, сначала введя ее в бульбус артериозус, затем осторожно проведя через аортальный клапан, не повреждая окружающие ткани. Успешная канюляция достигалась в > 90% сердец.
- Закрепите бульбус артериозус на канюле с помощью лигатуры (Рисунок 1C).
ПРИМЕЧАНИЕ: В качестве лигатуры хорошо подходит человеческий волос (d = 50–70 µm), так как стандартная шовная нить слишком толстая для маленького сердца.
4. Изоляция кардиомиоцитов
- Откройте трехходовой кран, чтобы обеспечить поток раствора, не содержащего Ca2+. При правильном выполнении желудочек заполняется раствором и расширяется. Скорость потока была установлена на уровне 43 µL min-1.
- Обрежьте остатки предсердия и синуса венозного микрохирургическими ножницами, не повреждая стенки желудочка.
- Проводите перфузию сердца в течение 10–12 min, контролируя равномерность потока. Осторожно сожмите силиконовую трубку, чтобы подать кратковременный импульс раствора, который расширит трабекулы желудочка и вымоет остатки крови. Признаком успешного вымывания являются остановка сердца и прекращение потока эритроцитов, наблюдаемые под стереомикроскопом.
- Переключите кран, чтобы направить ферментативный раствор в желудочек. Проводите перфузию в течение 4–6 min. Визуально подтвердите эффективность ферментативной обработки по нарушению целостности стенки желудочка и отслоению мелких фрагментов миокарда.
ПРЕДОСТЕРЕЖЕНИЕ: Избегайте отбора проб перфузата или его переноса на инвертированный микроскоп для исследования, так как это может привести к потере или механическому повреждению клеточного материала и прервать непрерывный мониторинг качества перфузии. Рекомендуется полагаться на описанные выше признаки успешной изоляции, которые отчетливо видны под бинокулярным микроскопом. - Добавьте небольшую аликвоту (300–400 µL) раствора, не содержащего Ca2+, в чашку для культивирования тканей диаметром 35 mm. Отрежьте желудочек от бульбуса артериозного и перенесите его в чашку.
- Измельчите желудочек мелкими ножницами, затем аккуратно тритурируйте ткань путем многократного пипетирования микропипеткой на 100 µL с обрезанным наконечником.
- Перенесите клеточную суспензию в пробирку объемом 1500 µL. Проверьте аликвоту под инвертированным микроскопом при малом увеличении (10×). Визуально оцените плотность палочковидных поперечнополосатых кардиомиоцитов в поле зрения. Если поле перегружено и наблюдается много перекрывающихся палочковидных клеток (>50 на поле 10×), добавьте раствор, не содержащий Ca2⁺, чтобы снизить плотность клеток и избежать их чрезмерного скопления в регистрационной камере. Перед началом регистрации оставьте клетки для осаждения при 4 °C на 40–50 min.
ПРИМЕЧАНИЕ: В период осаждения клетки можно хранить при 4 °C; используйте их для записей в течение 8 h после изоляции.
5. Регистрация токов методом локальной фиксации потенциала в конфигурации «целая клетка» (whole-cell patch clamp)
- Приготовьте внеклеточные и внутриклеточные растворы для регистрации различных ионных токов и потенциалов действия, перечисленных в Таблице 1.
- Вытяните патч-пипетки из тонкостенных боросиликатных стеклянных капилляров (без филамента) на вертикальном пуллере и заполните их внутриклеточным раствором. Сопротивление заполненной пипетки должно составлять 2,0–3,0 MΩ для всех конфигураций регистрации.
- Заполните резервуар для перфузии внеклеточным ванным раствором и прокачайте линии для удаления всех пузырьков воздуха перед помещением клеток в регистрирующую камеру.
- Добавьте небольшой объем (30–40 µL) суспензии изолированных кардиомиоцитов в регистрирующую камеру со стеклянным дном и дайте клеткам осесть в течение 5–10 мин.
- Подсоедините пипетку к головному каскаду усилителя. Под контролем микроскопа с помощью микроманипулятора опустите пипетку к целевому кардиомиоциту до тех пор, пока кончик не коснется мембраны, что проявится в виде небольшого углубления и увеличения сопротивления пипетки.
- Примените осторожное отрицательное всасывание для создания гигаомного (GΩ) уплотнения, которое обычно формируется в течение нескольких секунд.
- Установите удерживающий потенциал на -80 mV. Разрушьте мембрану серией коротких импульсов всасывания. После установления конфигурации whole-cell минимизируйте емкостные переходные процессы, а также скомпенсируйте емкость клетки и последовательное (доступное) сопротивление с помощью цепей компенсации усилителя.
- Скомпенсируйте эти емкостные токи, используя регуляторы Cell capacitance и Series resistance на усилителе. Настройте регулятор Cell capacitance для минимизации основного емкостного переходного процесса, затем настройте регулятор Series resistance для уменьшения оставшегося перелета до тех пор, пока он будет практически полностью устранен, а базовая линия тока станет плоской.
- Для регистрации потенциалов действия и ионных токов используйте только те клетки, расчетное сопротивление доступа которых после компенсации составляет ≤10–12 MΩ. Перейдите к регистрации потенциалов действия или ионных токов, при необходимости добавляя специфические блокаторы, перечисленные в Таблице 2, перед началом записи.
- Выполняйте запись с помощью программного обеспечения для патч-клампа, которое позволяет настраивать индивидуальные протоколы стимуляции для каждого целевого тока. Протоколы фиксации потенциала (voltage-clamp), использованные в данном исследовании, показаны на Рисунке 2.
Результаты
Данный протокол позволяет выделить отдельные палочковидные кардиомиоциты желудочков N. furzeri, пригодные для высокоразрешающей регистрации методом локальной фиксации потенциала (patch clamp) в конфигурации «целая клетка». Успешность выделения оценивается сначала по морфологии клеток и качеству герметизации (seal), а затем подтверждается функционально путем регистрации стабильных потенциалов действия и каждого из основных ионных токов с ожидаемой вольтаж-зависимостью и амплитудой. Представленные ниже репрезентативные записи были получены от молодых особей N. furzeri и определяют эталонные значения, указывающие на здоровую клетку с качественной фиксацией. Отклонения от этих показателей обычно свидетельствуют о субоптимальном выделении и описаны для каждого критерия.
Морфология клеток и формирование герметичного уплотнения
Жизнеспособные вентрикулярные кардиомиоциты N. furzeri выглядят удлиненными и палочковидными, с гладким, морфологически неповрежденным сарколеммой (Рисунок 3). В некоторых клетках при помощи светового микроскопа можно было различить слабую поперечную исчерченность, хотя она проявлялась не во всех клетках; поэтому основным критерием отбора клеток для регистрации служили гладкая, неповрежденная мембрана и удлиненная палочковидная морфология. Такие клетки легко образуют гирметичное соединение с высоким сопротивлением (>1 GΩ) и переносят прорыв мембраны. Напротив, округлые, сокращенные, гранулярные или набухшие клетки являются признаками избыточного переваривания или механического повреждения: они плохо формируют соединение, быстро теряют активность и подлежат удалению. Здоровая клетка сохраняет стабильный потенциал покоя мембраны и демонстрирует минимальную утечку при удерживающем потенциале -80 mV.
Характеристики регистрации методом патч-кламп
Регистрация токов методом patch-clamp в конфигурации «целая клетка» проводилась при 22–24 °C с использованием patch-clamp усилителя. Частота дискретизации сигналов составляла 10 kHz, фильтрация нижних частот выполнялась в диапазоне 1–2 kHz. Коэффициент усиления на выходе (α) был установлен на ×0.5 для оптимизации разрешения сигнала на дигитайзере. Последовательное сопротивление компенсировали на 70%–80% с задержкой (lag) 10 µs. Регистрации отбраковывали, если расчетное сопротивление доступа превышало 10–12 MΩ или изменялось более чем на ~10% в процессе записи. При регистрации потенциалов действия и ионных токов линейное вычитание токов утечки не применялось.
Клетки исключались из анализа, если они соответствовали любому из следующих критериев: потенциал покоя менее отрицательный, чем −70 mV в режиме фиксации тока (current‑clamp); невозможность формирования стабильного гигаомного контакта (>1 GΩ); сопротивление доступа >10–12 MΩ после компенсации; быстрое затухание ионных токов во время записи; морфологические повреждения (округлый, гранулярный или гиперконтрагированный вид).
Потенциалы действия (положительный контроль жизнеспособности)
Потенциалы действия (ПД), зарегистрированные в режиме фиксации тока (current-clamp), обеспечивают наиболее прямую оценку электрической жизнеспособности изолированного кардиомиоцита. Вызывайте ПД с помощью деполяризующих импульсов тока длительностью 1 ms (0,4–1 nA, ~30% выше порога). Установите частоту стимуляции 0,3 Hz. Регистрируйте ПД примерно через 5 min, когда форма сигнала достигнет стабильного стационарного состояния. В хорошо изолированном кардиомиоците молодой особи N. furzeri потенциал покоя (ПП) стабилен и близок к -85 mV (Рисунок 4B). ПД имеет овершут примерно до +30 mV, что обеспечивает четкий фазовый подъем по принципу «все или ничего» (Рисунок 4A). Характерные показатели ПД включают APD90 ~530 ms, APD50 ~460 ms и максимальную скорость нарастания (dV/dtmax) ~50 V s-1. Деполяризованный ПП (менее отрицательный, чем около -70 mV), снижение или отсутствие овершута, замедление скорости нарастания или невозможность поддерживать повторяющийся разряд со стабильной амплитудой и длительностью в большинстве случаев указывают на поврежденную клетку или плохую фиксацию потенциала, что делает такую клетку непригодной для оценки характеристик ПД.
Быстрый натриевый ток (INa)
Быстрый натриевый ток лежит в основе фазы подъема потенциала действия и служит чувствительным маркером целостности мембраны и качества фиксации (clamp quality). При использовании растворов на основе Cs+, указанных в Таблице 1, INa регистрируется как большой, быстро активирующийся и инактивирующийся входящий ток (Рисунок 5A). В здоровых молодых миоцитах INa становится обнаруживаемым при значениях около -60 mV, достигает пиковой плотности приблизительно -13 pA pF−1 при -30 mV и меняет направление (реверсирует) около +20 mV (Рисунок 5B). Постоянная времени инактивации уменьшается с ~8 ms при -50 mV до ~2 ms при -10 mV, а напряжение полуинактивации находится около -70 mV13 (Рисунок 5C,D). Значительно сниженная амплитуда пикового тока, смещенный или плохо определенный потенциал реверсии, а также замедленная и искаженная кинетика активации/инактивации указывают на недостаточный контроль напряжения (ошибка последовательного сопротивления) или нарушение целостности мембраны, а не на сам процесс изоляции.
Кальциевые токи (ICaL и ICaT)
При записи с использованием растворов для измерения кальциевых токов (Table 1), кардиомиоциты N. furzeri демонстрируют суммарный входящий кальциевый ток, состоящий из двух компонентов. Ток начинает активироваться примерно при -60 mV, что указывает на наличие T-типа компонента (ICaT) в дополнение к доминирующему току L-типа (ICaL), и достигает пиковой плотности около -7 pA pF−1 в диапазоне от -10 mV до 0 mV (Figure 6B). Идентичность компонентов подтверждается фармакологически: 10 µM нифедипина частично блокирует ток, в то время как 100 µM вызывает почти полное ингибирование (Figure 6A). Важно отметить, что концентрация нифедипина 100 µM использовалась только в специальных контрольных экспериментах, чтобы подтвердить, что остаточный ток после применения 10 µM нифедипина полностью чувствителен к более высоким концентрациям и, следовательно, может быть идентифицирован как ICaT. Для стандартных рутинных записей достаточно 50 µM для полного блокирования суммарного тока ICa . Компонент ICaL определяется как ток, вызываемый при удерживающем потенциале -50 mV, а ICaT рассчитывается как разница между током, записанным при -90 mV, и изолированным ICaL (Figure 6C,D). Четко выраженный, чувствительный к нифедипину входящий ток с описанными напряжениями активации и пикового тока свидетельствует о хорошей сохранности кальциевых каналов.
Калиевые токи замедленного выпрямления (IKr и IKs)
Наличие выходящих калиевых токов подтверждает, что механизмы реполяризации остаются функционально сохранными после изоляции. В данных фармакологических условиях (Таблица 2) деполяризация до -40 mV и выше вызывает выходящий ток во всех здоровых клетках. С помощью селективных блокаторов различают два компонента: медленный калиевый ток замедленного выпрямления (IKs), чувствительный к хроманолу 293B (20 µM), и быстрый калиевый ток замедленного выпрямления (IKr), чувствительный к E4031 (1 µM) (Рисунок 7A,B). В миоцитах молодых рыб плотность IKs, так же как и IKr, достигает примерно 1 pA pF−1 при сильной деполяризации (Рисунок 7C,D). Наличие обоих компонентов тока замедленного выпрямления, которые играют основную роль в реполяризации желудочков человека, но в меньшей степени выражены в стандартных моделях грызунов14, служит ключевым подтверждением того, что регистрируемая клетка является миоцитом желудочка N. furzeri с сохранными реполяризирующими токами.
Фоновый ток выпрямителя внутрь (IK1)
Фоновый ток входящего выпрямителя определяет потенциал покоя мембраны, который удобно оценивать с помощью протокола с линейным изменением напряжения от +60 до -120 mV (Рисунок 7E). В здоровой клетке IK1 меняет знак (инвертируется) вблизи -80 mV, что согласуется с потенциалом покоя (RMP), измеренным в режиме фиксации тока. При потенциалах, превышающих потенциал реверсии, IK1 демонстрирует характерный внешний «горб» с пиком в несколько pA pF−1 (Рисунок 7F). Потенциал реверсии, значительно отличающийся от -80 mV, или большой постоянный ток утечки указывают на плотость прилегания мембраны (плохой seal) или на повреждение мембраны.
В совокупности подготовка считается успешной, если в результате получаются удлиненные палочковидные клетки с гладкими, неповрежденными мембранами, которые образуют гигаомные мембранные уплотнения (gigaohm seals) и демонстрируют эталонную форму волны потенциала действия и характеристики токов, описанные выше. Получение нескольких таких клеток из одного сердца подтверждает, что ферментативная диссоциация сохранила как целостность мембраны, так и полный набор сердечных ионных каналов, необходимых для последующего электрофизиологического исследования.
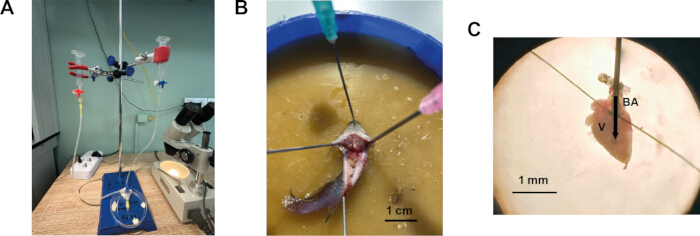
Рисунок 1: Процедура выделения кардиомиоцитов желудочка из сердца N. furzeri. (A) Система выделения кардиомиоцитов, модифицированная для мелких рыб. (B) Рыба зафиксирована в препарировочном лотке брюшной стороной вверх, брюшина рассечена поперечно и продольно. (C) Сердце N. furzeri канюлировано и зафиксировано для перфузии. BA – бульбус артериозный, V – желудочек. Стрелка указывает направление потока раствора в желудочек. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
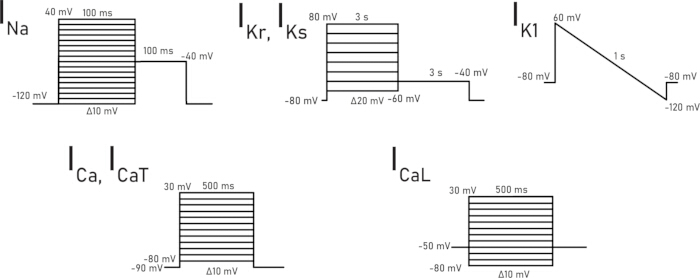
Рисунок 2: Протоколы фиксации потенциала, используемые для регистрации каждого конкретного ионного тока. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
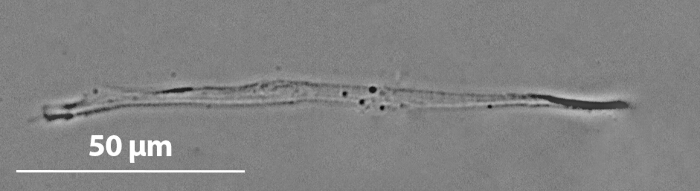
Рисунок 3: Репрезентативная микрофотография вентрикулярного кардиомиоцита молодой N. furzeri. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
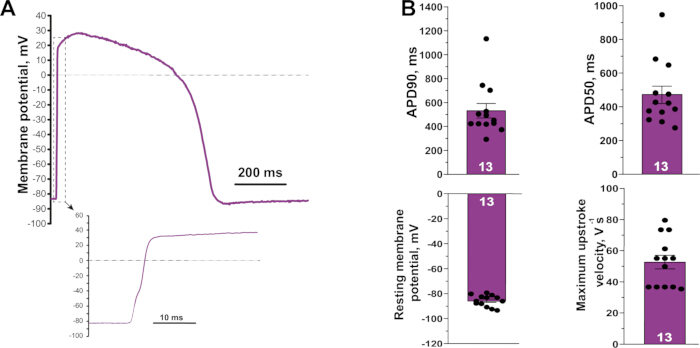
Рисунок 4: Репрезентативный потенциал действия, зарегистрированный от вентрикулярного кардиомиоцита молодой особи N. furzeri. (A) Форма волны потенциала действия. На врезке показана быстрая фаза деполяризации в расширенном временном масштабе. (B) Характеристики потенциала действия, измеренные в изолированных миоцитах молодых особей (потенциал покоя мембраны, APD50, APD90 и максимальная скорость нарастания). (N = 7, n = 13). Значения представлены как среднее ± S.E.M. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
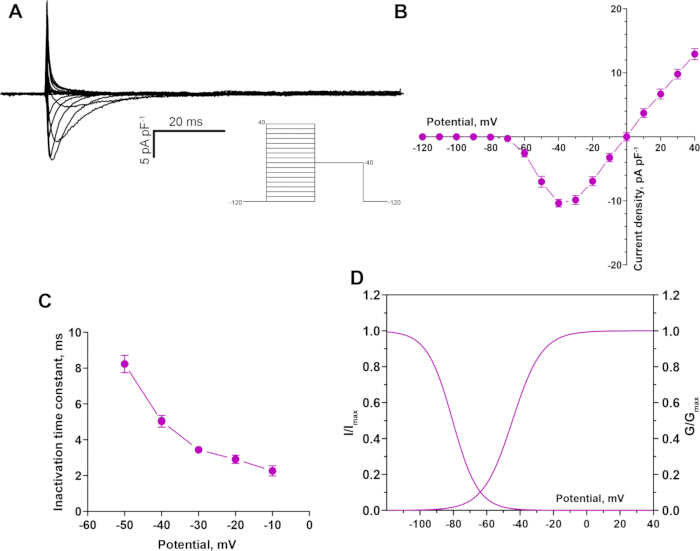
Рисунок 5: Быстрый натриевый ток (INa), зарегистрированный в вентрикулярном кардиомиоците молодой особи N. furzeri. (A) Репрезентативная запись INa. (B) Вольт-амперная характеристика INa: активация начинается около -60 mV с пиком в районе -30 mV. (C) Вольтажная зависимость постоянной времени инактивации. (D) Кривые стационарной активации и инактивации. (N = 5, n = 11). Значения представлены как среднее ± S.E.M. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
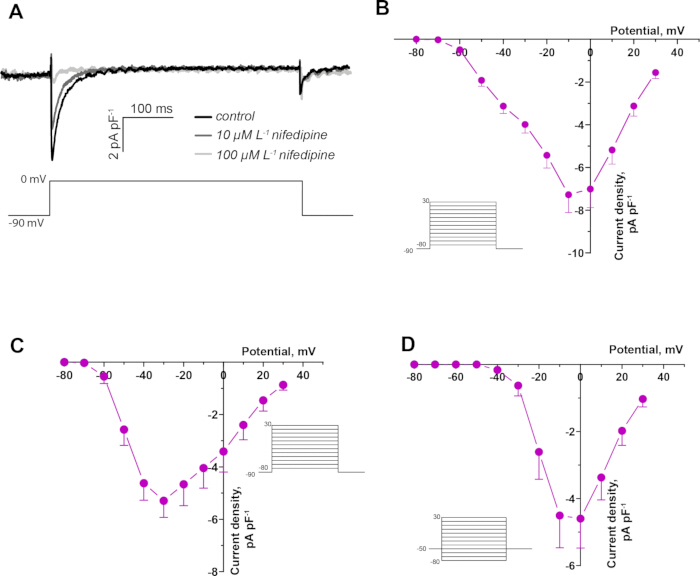
Рисунок 6: Кальциевые токи в вентрикулярном кардиомиоците молодой особи N. furzeri. (A) Репрезентативная запись чистого кальциевого тока в контроле и в присутствии 10 µM и 100 µM нифедипина в вентрикулярном кардиомиоците молодой особи N. furzeri. (B) Вольт-амперная характеристика чистого кальциевого тока с активацией вблизи -60 mV и пиком около -10 mV (N = 5, n = 11). (C) Вольт-амперная характеристика T-типа компонента (ICaT) (N = 3, n = 6). (D) Вольт-амперная характеристика L-типа компонента (ICaL) (N = 5, n = 7). Значения представлены как среднее ± S.E.M. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
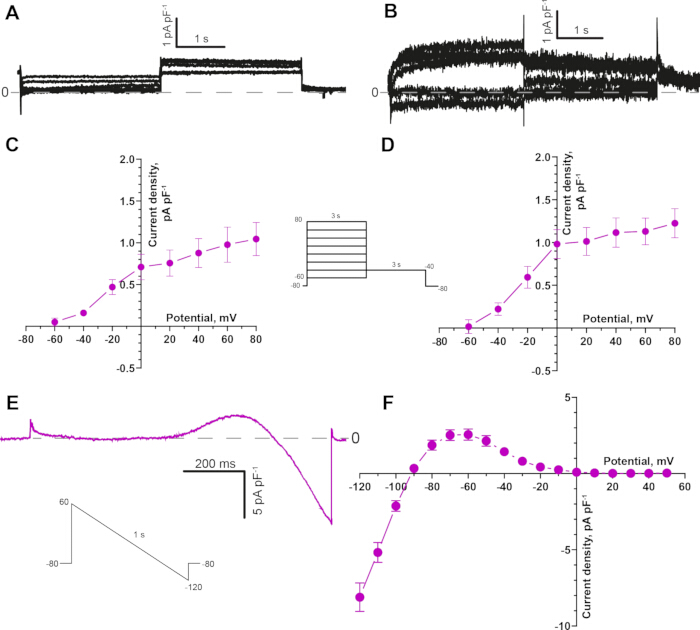
Рисунок 7: Калиевые токи в вентрикулярных кардиомиоцитах молодых N. furzeri. (A) Репрезентативная запись тока медленного задержанного выпрямления (IKs), изолированного в присутствии E4031 (1 µM) для блокирования IKr. (B) Репрезентативная запись тока быстрого задержанного выпрямления (IKr), изолированного в присутствии хроманола 293B (20 µM) для блокирования IKs. (C) Вольт-амперная характеристика тока IKs (N = 5, n = 9). (D) Вольт-амперная характеристика тока IKr (N = 5, n = 10). (E) Репрезентативный IK1, записанный с использованием протокола с нисходящей вольтажной рампой от +60 mV до -120 mV. (F) Вольт-амперная характеристика IK1 с потенциалом реверсии около -80 mV (N = 5, n = 18). Значения представлены как среднее ± S.E.M. Пожалуйста, нажмите здесь, чтобы просмотреть увеличенную версию этого рисунка.
| Название раствора | Реагент и концентрация (mM) |
| Внеклеточный раствор для регистрации потенциала действия и калиевых токов | 150 NaCl, 3 KCl, 1.2 MgCl2, 1.8 CaCl2, 10 glucose, 10 HEPES; pH 7.4 отрегулирован с помощью NaOH |
| Внутриклеточный раствор для регистрации потенциала действия и калиевых токов | 140 KCl, 1 MgCl2, 5 EGTA, 4 MgATP, 0.03 Na2GTP и 10 HEPES; pH 7.2 отрегулирован с помощью KOH |
| Внеклеточный раствор для регистрации натриевого тока | 20 NaCl, 123 CsCl, 1 MgCl2, 1.8 CaCl2, 10 glucose и 10 HEPES; pH 7.2 отрегулирован с помощью CsOH |
| Внутриклеточный раствор для регистрации натриевого тока | 5 NaCl, 130 CsCl, 1 MgCl2, 5 EGTA, 10 HEPES, 4 MgATP, 0.03 Na2GTP и 15 TEA; pH 7.2 отрегулирован с помощью CsOH |
| Внеклеточный раствор для регистрации кальциевого тока | 150 NaCl, 3 CsCl, 1 MgCl2, 1.8 CaCl2, 10 glucose и 10 HEPES; pH отрегулирован до 7.2 с помощью NaOH |
| Внутриклеточный раствор для регистрации кальциевого тока | 130 CsCl, 1 MgCl2, 5 EGTA, 10 HEPES, 4 MgATP, 0.03 Na2GTP и 15 TEA; pH 7.2 отрегулирован с помощью CsOH. |
Таблица 1: Состав внеклеточного и внутриклеточного растворов для регистрации потенциалов действия и ионных токов методом патч-кламп.
| Регистрируемый ток | Концентрация блокатора (μM) | |
| 1. | Потенциал действия | Блокаторы не требуются |
| 2. | IKr | 50 Nifedipine, 20 Chromanol 293B |
| 3. | IKs | 50 Nifedipine, 1 E4031 |
| 4. | IK1 | 50 Nifedipine, 20 Chromanol 293B, 1 E4031 |
| 5. | INa | 50 Nifedipine |
| 6. | ICaT | 1 Tetrodotoxin |
| 7. | ICaL | 1 Tetrodotoxin |
Таблица 2: Фармакологические блокаторы, добавляемые во внеклеточные растворы для селективной регистрации конкретного ионного тока.
Обсуждение
Успешное выделение жизнеспособных кардиомиоцитов желудочков N. furzeri представляет собой методологический прогресс, который позволяет провести прямую электрофизиологическую характеристику возрастного ремоделирования сердца на клеточном уровне. Такое разрешение необходимо для выявления конкретных ионных механизмов, лежащих в основе возрастной сердечной дисфункции, которые невозможно дифференцировать только с помощью препаратов органов или целого сердца. Изучение нативных кардиомиоцитов дает прямое представление о том, как старение изменяет фундаментальные электрофизиологические свойства, включая ионные токи и характеристики потенциала действия.
Несколько этапов данного протокола имеют решающее значение для получения высококачественных кардиомиоцитов N. furzeri, пригодных для метода патч-кламп. Прежде всего, активность ферментов варьируется от партии к партии, поэтому концентрации коллагеназы и трипсина следует корректировать для каждой подготовки. Избыточное переваривание приводит к повреждению мембраны и потере функции ионных каналов, в то время как недостаточное переваривание приводит к малому количеству клеток и препятствует созданию стабильного контакта между пипеткой и мембраной. Изолированные клетки сохраняют вытянутую палочковидную морфологию с гладким, неповрежденным сарколеммой, что указывает на сохранение целостности клеток в процессе изоляции; в некоторых клетках при рассмотрении под световым микроскопом также может быть заметна слабая саркомерная исчерченность. Такое сохранение структуры критически важно для получения достоверных электрофизиологических данных, так как поврежденные клетки часто демонстрируют измененную функцию ионных каналов и нарушенные свойства мембраны. Во-вторых, малый размер сердца N. furzeri представляет собой техническую сложность, требующую тщательной оптимизации ферментативной изоляции и точного ручного препарирования, при этом выход клеток с одного сердца ниже, чем в препаратах млекопитающих. Более того, нестабильная перфузия или утечка из канюлированного сердца также являются одними из наиболее распространенных проблем, которые могут возникнуть в ходе процедуры. Отработайте технику канюлирования на нескольких сердцах, чтобы выработать постоянный угол и глубину введения. Убедитесь, что кончик иглы не содержит пузырьков воздуха, а луковица (bulbus) надежно перевязана без прорезания тканей. Также перед началом записи убедитесь, что клетки имеют палочковидную форму и гладкую, неповрежденную мембрану (в некоторых клетках может быть видна слабая исчерченность). Округлые или гранулярные клетки следует отбраковать. Проверьте, что все растворы свежеприготовлены и имеют правильно отрегулированный pH. Убедитесь, что сопротивление пипетки находится в рекомендуемом диапазоне (2.0–3.0 MΩ). Во время записи проверьте параметры усилителя, описанные выше; сопротивление доступа после компенсации не должно превышать 10–12 MΩ; потенциал покоя мембраны в режиме current-clamp должен быть менее отрицательным, чем −70 mV, а клетка должна формировать стабильный гигаомный затвор (gigaseal).
Тем не менее, данный протокол позволяет стабильно получать высококачественные клетки, подходящие для регистрации методом патч-клампа и, возможно, для других применений, что утверждает N. furzeri в качестве практической модели клеточного старения сердца. Поскольку N. furzeri обладает явными преимуществами перед традиционными моделями млекопитающих для изучения старения сердца. Будучи позвоночным с самым коротким сроком жизни, которого можно содержать в неволе, этот вид позволяет проводить лонгитюдные исследования старения сердца в приемлемые временные рамки по сравнению с моделями на мышах, которым требуется 18–24 месяца для достижения аналогичного биологического возраста15. Несмотря на короткую продолжительность жизни, у данного вида проявляются ключевые признаки старения сердца позвоночных, включая электрофизиологическое ремоделирование, сохранение длительности потенциала действия при снижении скорости нарастания деполяризации и подавление важных ионных токов6.
Сравнение с существующими подходами к изоляции кардиомиоцитов.
Ферментативное выделение жизнеспособных кардиомиоцитов желудочков является общепринятым необходимым условием для проведения электрофизиологических исследований отдельных клеток у широкого спектра видов. У млекопитающих «золотым стандартом» является метод ретроградной перфузии интактного сердца через аорту сначала бескальциевым буфером, а затем раствором, содержащим ферменты (обычно коллагеназу и протеазы), при контролируемом давлении и температуре. Данная стратегия обеспечивает равномерную доставку ферментов через коронарные сосуды, эффективное вымывание крови и относительно бережную диссоциацию миокарда, что позволяет получить большое количество палочковидных миоцитов, подходящих для регистрации с помощью метода патч-клампа с высоким разрешением16,17.
Однако у костистых рыб анатомическое строение сердца и отсутствие коронарной артериальной системы, сопоставимой с таковой у млекопитающих, обуславливают необходимость внесения важных модификаций. У zebrafish, одной из наиболее широко используемых моделей мелких рыб в сердечно-сосудистых исследованиях, успешное выделение вентрикулярных кардиомиоцитов основано на переваривании целого сердца в ферментативном растворе в течение относительно длительного периода времени8,9. В этих протоколах иссеченное сердце переносят непосредственно в каплю или небольшой объем раствора фермента, где его инкубируют при комнатной температуре или температуре, соответствующей виду, с последующей механической тритурацией для высвобождения отдельных клеток. Было показано, что данный подход позволяет получить жизнеспособные поперечнополосатые кардиомиоциты, пригодные для регистрации основных ионных токов11.
Несмотря на свою полезность, стратегия пакетного переваривания имеет несколько ограничений при применении к очень маленьким или особенно хрупким сердцам. Во-первых, воздействие ферментов менее контролируемо: внешние слои желудочка подвергаются воздействию более высокой эффективной концентрации фермента в течение более длительного времени, чем внутренние слои, что может привести к гетерогенному перевариванию и смеси недо- и перевариваемых клеток. Во-вторых, длительное погружение в раствор фермента повышает риск избыточного переваривания, особенно когда активность различных партий фермента варьирует или когда сердце исключительно малое. В-третьих, вымывание крови основано преимущественно на пассивной диффузии и осторожном ручном промывании, чего может быть недостаточно для полного очищения узких просветов кровеносных сосудов крошечного желудочка костистой рыбы.
Мы сохранили общие принципы обработки в бескальциевой среде, ферментативного переваривания и осторожного тритурирования. Однако в данном исследовании был изменен способ подачи растворов: была выполнена канюляция бульбуса артериозуса (bulbus arteriosus) с последующей перфузией непосредственно в просвет желудочка. Такой подход позволяет исследователю вымыть кровь из желудочков перед перевариванием, менять растворы без перемещения сердца и прекратить ферментативную обработку, как только стенка желудочка начнет размягчаться. Эти модификации особенно важны для маленького и хрупкого сердца N. furzeri, поскольку длительное погружение в раствор фермента может привести к избыточному перевариванию и снижению качества клеток.
Будущие области применения
Представленный метод изоляции открывает несколько направлений для будущих исследований. Во-первых, он позволяет проводить систематическую характеристику возрастных изменений морфологии потенциала действия, а также плотности, кинетики и вольтовой зависимости ионных токов в кардиомиоцитах N. furzeri, дополняя недавние молекулярные и гистологические описания старения сердца у этого вида2,3,4,5. Во-вторых, данный протокол может быть совмещен с фармакологическими методами для изучения того, как вмешательства, модулирующие продолжительность жизни или период здорового долголетия, влияют на электрофизиологию сердца на уровне отдельных клеток. В-третьих, изолированные кардиомиоциты N. furzeri могут быть использованы в целях, выходящих за рамки записей методом патч-клампа, включая молекулярный анализ (кПЦР, RNA‑seq, протеомика) возрастных изменений экспрессии ионных каналов и посттрансляционных модификаций, иммуноцитохимию и визуализацию организации саркомеров с высоким разрешением. Наконец, описанная здесь методологическая база может быть адаптирована для других моделей мелких костистых рыб с аналогичным размером и анатомией сердца, что расширяет возможности использования N. furzeri в качестве трансляционной модели для исследования старения сердца.
Раскрытие информации
Авторы заявляют об отсутствии конфликта финансовых интересов.
Благодарности
Данная работа была поддержана Российским научным фондом (грант № 22-14-00075). Авторы выражают благодарность Андрею Никифорову за помощь в разведении и содержании Nothobranchius furzeri популяция, использованная в данном исследовании.
Материалы
| Имя | Компания | Каталожный номер | Комментарии |
|---|---|---|---|
| Инсулиновый шприц 1 mL | Med Aim | 939863 | |
| Шприцы 10 mL | Changzhou Jinlong Medical Plastic Appliancy Co | – | |
| Чашка Петри 100 mm | SARSTEDT | 83.3902 | |
| Микропипетка 100 μL | Thermo Scientific | 4640040 | |
| Чашка для культивирования тканей 35 mm | SPL LIFE SCIENCES | 11035 | |
| Трехходовой инфузионный кран | iLife Medical Devices Pvt. Ltd | 902.07.10 | |
| Пробирка 500 μL | Eppendorf | EP0030124537-500EA | |
| Наконечник 5-200 μL | Deltalab | 200009 | |
| Усилитель | Molecular devices | Axopatch 200B | |
| Blu Tack | BOSTIK | 202401906 | |
| Боросиликатные стеклянные капилляры | Sutter Instrument | B150-110-10 | |
| Бычий сывороточный альбумин | Dia-M | 9048-46-8 BSA.0100 | |
| CaCl2*2H20 | Sigma-Aldrich | C5080 | |
| Хроманол 293B | Sigma-Aldrich | C2615 | |
| Коллагеназа тип 1A | Sigma-Aldrich | C9891 | |
| CsCl | Acros Organics | 422855000 | |
| CsOH | Sigma-Aldrich | 232068 | |
| Дозирующая игла (32G) | BSTEAN | 744370739503 | |
| E4031 | MedChemExpress | HY-15551 | |
| EGTA | Sigma-Aldrich | E-4378 | |
| Глюкоза | helicon | Solarbio G8150-500G | |
| HEPES | Sigma-Aldrich | H3375 | |
| Инвертированный микроскоп | Nikon | – | Eclipse Ti-S |
| KCl | Chimmed | 00000000089 | |
| KH2PO4 | helicon | SRL-90654-500G | |
| KOH | helicon | SRL-38630-1KG | |
| MgATP | MACKLIN | A922363 | |
| MgCl2*6H2O | helicon | Solarbio M8161 | |
| MgSO4*7H2O | helicon | SRL-74440-500G | |
| Микроманипулятор | RWD | MM-500 | |
| Микрохирургический офтальмологический пинцет | CILITA | F-111T | |
| Микрохирургические офтальмологические ножницы | CILITA | S-056S | |
| Na2GTP | Sigma-Aldrich | 51120 | |
| NaCl | helicon | H-1418-1.0 | |
| NaOH | helicon | SRL-13913-500G | |
| Нифедипин | Sigma-Aldrich | N7634 | |
| Система перфузии | Biotechnologies | Bio_4_p | |
| Пипеттяный вытягиватель | Narishige Group | PC-10 | |
| Силиконовые трубки (d = 8 mm) | MEDSIL | TY 9398-004-18037666-94 | |
| Стойка | NV-lab | 00000034085 | |
| Стереомикроскоп | Labkompleks LCC | 10557 | |
| Таурин | Acros Organics | 166545000 | |
| Хлорид тетраэтиламмония (TEA) | Merck | 822148 | |
| Тетродотоксин | Tocris Bioscience | 1078 | |
| Трипсин | Sigma-Aldrich | T0303 | |
| Программное обеспечение WinWCP | University of Strathclyde | – | V5.7.5 |
Ссылки
- Nakou E et al. Healthy aging and myocardium: a complicated process with various effects in cardiac structure and physiology. Int J Cardiol. 2016;209:167-175.
- Ma X et al. Nothobranchius furzeri: a vertebrate model for studying cardiac aging and cellular senescence. NPJ Aging. 2025;11(1):63.
- Valdesalici S, Cellerino A. Extremely short lifespan in the annual fish Nothobranchius furzeri. Proc R Soc Lond B Biol Sci. 2003;270(Suppl 2):S189-191.
- Platzer M, Englert C. Nothobranchius furzeri: a model for aging research and more. Trends Genet. 2016;32(9):543-552.
- Otsuka T, Matsui H. The African turquoise killifish (Nothobranchius furzeri): a model of age-related diseases and declining regenerative capability across multiple organs. Mech Ageing Dev. 2025;226:112087.
- Filatova TS, Dzhumaniiazova IH, Shamshura AV, Abramochkin DV. Aging-associated remodeling of ionic currents in ventricular myocytes of seasonal fish Nothobranchius furzeri. Comp Biochem Physiol A Mol Integr Physiol. 2026;317:112013.
- Sander V et al. Isolation and in vitro culture of primary cardiomyocytes from adult zebrafish hearts. Nat Protoc. 2013;8(4):800-809.
- Singareddy SS, McClenaghan C, Roessler HI, Tryon R, Nichols CG. Isolation of cardiac and vascular smooth muscle cells from adult, juvenile, larval and embryonic zebrafish for electrophysiological studies. J Vis Exp. 2022;(180):63225.
- Vornanen M. Sarcolemmal Ca influx through L-type Ca channels in ventricular myocytes of a teleost fish. Am J Physiol Regul Integr Comp Physiol. 1997;272(5):R1432-R1440.
- Polačik M, Blažek R, Reichard M. Laboratory breeding of the short-lived annual killifish Nothobranchius furzeri. Nat Protoc. 2016;11(8):1396-1413.
- Dzhumaniiazova I, Vornanen M, Pustovit OB, Voronkov YI, Abramochkin DV. Effects of tetrodotoxin and ranolazine on the late INa of zebrafish ventricular myocytes. J Evol Biochem Phys. 2022;58(Suppl 1):S22-S30.
- Brette F et al. Characterization of isolated ventricular myocytes from adult zebrafish (Danio rerio). Biochem Biophys Res Commun. 2008;374(1):143-146.
- Filatova TS, Dzhumaniiazova IH, Shamshura AV, Pustovit OB, Abramochkin DV. Reduction of fast sodium current in the myocardium of fish (N. furzeri) during aging. Bull Exp Biol Med. 2026;181(1):109-116.
- Joukar S. A comparative review on heart ion channels, action potentials and electrocardiogram in rodents and human: extrapolation of experimental insights to clinic. Lab Anim Res. 2021;37(1):25.
- Holtze S et al. Alternative animal models of aging research. Front Mol Biosci. 2021;8.
- Wolska BM, Solaro RJ. Method for isolation of adult mouse cardiac myocytes for studies of contraction and microfluorimetry. Am J Physiol Heart Circ Physiol. 1996;271:H1250-H1255.
- Louch WE, Sheehan KA, Wolska BM. Methods in cardiomyocyte isolation, culture, and gene transfer. J Mol Cell Cardiol. 2011;51(3):288-298.
Перепечатки и разрешения
Эта статья была опубликована
Видео скоро будет доступно