De zebravis is een krachtig modelsysteem voor ontwikkelingsbiologie en onderzoek naar menselijke ziekten vanwege hun genetische overeenkomsten met hogere gewervelde dieren. Dit protocol beschrijft een methodologie om haploïde zebravis-embryo's te creëren die kunnen worden gebruikt voor forward screen-strategieën om recessieve mutaties in genen die essentieel zijn voor vroege embryogenese te identificeren.
Methodenartikel
Productie van Haploid zebravis embryo's door
In dit artikel
Samenvatting
Samenvatting
De zebravis is uitgegroeid tot een mainstream gewervelde model dat relevant is voor vele disciplines van de wetenschappelijke studie is. Zebravis zijn bijzonder goed geschikt voor voorwaartse genetische analyse van ontwikkelingsprocessen vanwege hun externe bevruchting, embryonale grootte, snelle ontogenie en optische helderheid - een constellatie van eigenschappen die de directe waarneming van evenementen, variërend van gastrulation in organogenese met een basis stereomicroscoop schakelen. Verder kan zebravis embryo overleven enkele dagen in het haploïde toestand. De productie van haploïde embryo's in vitro is een krachtig hulpmiddel voor mutatieanalyse, omdat kan worden vastgesteld recessieve mutante allelen aanwezig op eerste generatie (F1) draagsters na mutagenese in het ouderlijk (P) genereren. Deze aanpak elimineert de noodzaak om meerdere generaties (F2, F3, enz.) die fokprogramma van mutant gezinnen gaat verhogen, waardoor het opslaan van de onderzoeker tijd samen met het verminderende behoefte aan zebravis kolonie ruimte, arbeid, en de veeteelt kosten. Hoewel de zebravis zijn gebruikt om naar uit te voeren schermen voor de afgelopen decennia, is er sprake van een gestage uitbreiding van transgene en genoom editing tools. Deze instrumenten bieden nu een overvloed aan manieren om genuanceerde assays voor de volgende generatie schermen die kunnen worden gebruikt voor het verder ontleden het gen regulerende netwerken gewervelde ontogenie schijf. Hier beschrijven we hoe u haploïde zebravis embryo's voor te bereiden. Dit protocol kan worden toegepast voor nieuwe toekomstige haploïde schermen, zoals bij enhancer en suppressor schermen, de mechanismen van ontwikkeling platform voor een groot aantal processen en weefsels tijdens de vroege embryonale stadia vormen.
Inleiding
De fundamentele processen die gewervelde ontwikkeling orkestreren zijn grotendeels behouden 1. Een krachtige manier om genen essentiële rollen in ontwikkeling om erfelijke mutaties die leiden tot fenotypische defecten in het proces van belang te isoleren. De zebravis, Danio rerio, is een klein zoetwater teleost soorten die behoren tot de karpers vissen familie die is uitgegroeid tot een veelgebruikt modelorganisme voor gewervelde ontwikkelingsgenetica in de afgelopen tientallen jaren 2. Zebravis eieren worden extern bevrucht, waardoor toegang tot de zygote vanaf het begin van bevruchting 3. Verder is het vroege embryo optisch transparant, waardoor visualisatie van ontwikkeling met een eenvoudige stereomicroscoop 3. Zebravis ontogenie is snel, het proces van splitsing, gastrulatie en organogenese van vele structuren, zoals het hart en nieren, grotendeels voltooid op de eerste dag van ontwikkeling 3. Thij tijd van larvale stadia tot seksuele rijpheid duurt 2-3 maanden, en de volwassenen zijn kleine gewervelde dieren ongeveer 3-4 cm in lengte, kan zo veel vis in een minimale ruimte 2 worden gehandhaafd. Bovendien zebravis volwassenen hoge vruchtbaarheid, waarbij elke vis kunnen honderden embryo per week 2 produceren. Deze attributen hebben de traceerbaarheid van zebravis voor vooruit en achteruit verleende genetische screens. Zebravis beschikken over een hoge mate van conservering in hun anatomie, celbiologie en fysiologie met meer geavanceerde gewervelde diersoorten zoals zoogdieren 2,4. In feite is recent sequentie analyse toonde dat de zebravis genoom homologen tot bijna 70% van menselijke genen 5. Dit behoud is voor onderzoekers mogelijk om de zebravis als model te gebruiken voor tal van menselijke ziekten, met inbegrip van zowel embryonale en volwassen voorwaarden 2,4. Tezamen hebben deze factoren zebravis een uitstekend systeem voor scherm ter identificatie van genen die gemaaktessentieel voor een normale gewervelde ontogenie.
Een aantal grootschalige schermen zijn uitgevoerd in zebravis uitgevoerd en hebben enkele duizenden mutaties geïdentificeerd in ontwikkelingsgenen 6-8. De zebravis volwassen mannetje is vatbaar voor mutagenese, en chromosomale afwijkingen kunnen worden gegenereerd met relatief hoge frequentie, waarbij de chemische mutageen ethylnitrosourea (ENU) 6,7 of retrovirale insertiemutagenese 9. Tot op heden hebben meer dan 9000 erfelijke mutaties zijn gemaakt, en omvatten genen die vrijwel alle aspecten van de embryogenese beïnvloeden. De zebravis gemeenschap heeft een centrale bank van deze mutanten vastgesteld op de zebravis International Resource Center (of Zirc) 10, waarvan ongeveer 5.000 mutant en transgene allelen heeft verzameld uit de hele wereld. Veel van deze mutaties zijn geanalyseerd en gekloneerd, waardoor onderzoekers door biologische disciplines waardevolle informatie die is gebruikt om plagen elkaar numeroons cellulaire en fysiologische paden door de inzichten uit met zebravissen experimenten.
Hoewel schermen uit een indrukwekkend aantal belangrijke genen geïdentificeerd veel moet nog duidelijk de genetische regulerende netwerken die een groot aantal processen mediëren. Veel schermen tot nu toe ondernomen hebben geen verzadiging bereikt, en dus naar voren evenals omgekeerde genetische screens zijn een hoeksteen om mechanismen van embryogenese te identificeren en te analyseren gebleven. Hoewel er enorme inzichten die kan worden afgeleid uit een enkele mutant zebravis lijn, heeft een belangrijke beperkende factor op het gebied van oudsher de tijdrovende inspanning bij de positionele klonering. Daarom is de identiteit van vele chemisch geïnduceerde mutaties een raadsel gebleven. Echter, met de recente komst van whole genome sequencing benaderingen die snelle klonen 11-14 vergemakkelijken, ongelooflijk efficiënte identificatie van genetische mutaties is nu feasible.
De prototypische vooruit scherm in de zebravis is een diploïde scherm dat recessieve mutaties kunnen identificeren binnen drie generaties 6,7 (Figuur 1, linkerkolom). Deze techniek omvat het genereren van mutaties in de geslachtscellen van de parentale (P) mannelijke, en koppelen deze man met een wildtype vrouwelijk. Elk van de eerste generatie (F1) nakomelingen van deze combinatie zal herbergen een of meer unieke mutaties door het chromosomale bijdragen van de gemuteerde vaderlijke genoom. De F1 nakomelingen zijn verhoogd en outcross met wilde soorten te F2 gezinnen te creëren. In de F2-familie, zal siblings of wild type of heterozygote dragers zijn en worden willekeurig incrossed F3 koppelingen die worden geanalyseerd op fenotype (s) van belang te genereren. De F3 klauwen van heterozygote dragers zal 25% wild-type, 50% heterozygoot, en 25% homozygote mutant vis bevatten. Deze multi-generationele screening schema is effectief, maar een groot nadeel aan dit eenAANPAK omvat de tijd die nodig is om voor te bereiden op het scherm: minimaal 1 jaar van vis veeteelt alleen betrokken is, omdat elke generatie vergt ongeveer 3 maanden geslachtsrijp. Andere beperkingen van dit soort diploïde scherm zijn het werk, ruimte en kosten van huisvesting deze generaties.
De haploïde screen is een alternatief dat kan worden gebruikt om recessieve mutaties te identificeren en vervolgens te isoleren met vergelijkbare mutagenese strategieën 15 (figuur 1, rechterkant). De productie van haploïde zebravis embryo werd eerst beschreven in 30 jaar geleden 16 en het vermogen van de normale diploïde zebravis ontwikkelen gedurende enkele dagen een haploïde chromosomale ploïdie is gebruikt voor tal van genetische studies sinds die tijd. Het grote voordeel van het haploïde scherm is dat deze methode niet gepaard gaat met het verhogen van F2 families om te screenen op recessieve mutant allelen. In plaats daarvan worden de F1-generatie vrouwtjes geëvalueerdheterozygotie van recessieve mutaties in het proces van belang zijn bij hun onderzoek F2 nakomelingen in een haploïde toestand (figuur 1, rechter kolom). Kortom, de stappen om haploïde embryo schaffen relatief eenvoudig (figuur 2). Na bereiding van de benodigde oplossingen sperma hanteren, zijn eieren van F1-generatie vrouwtjes verkregen door handmatige manipulatie teneinde extruderen (of "squeeze") de eieren van de buik. Nadat de eieren zijn verkregen, worden ze in vitro bevrucht door blootstelling aan ultraviolet (UV) geïnactiveerd sperma. De UV geïnactiveerde sperma staat dragen levensvatbare DNA om het ei te wijten aan het feit dat de korte golflengte UV verknoopt de vaderlijke DNA. Echter, het sperma nog in staat triggering ei activiteit en de gebeurtenissen in verband met zygotische ontwikkeling. Bij metabole activering, zal het ei voltooien meiose II, en ga verder te ontwikkelen met alleen de een de moeder afgezet exemplaar van elk chromome. Hierdoor 1N ploïdie, het embryo onder de ontwikkeling gevolgen van een recessief mutant allel, indien aanwezig op een moederlijke chromosoom. Dus elk F2 haploïde koppeling wordt 50% wildkleur en 50% mutant embryo's bevatten als de moeder is een heterozygote drager van een volledig penetrant recessief allel. Deze verdeling van embryonale genotypes kunnen betrekkelijk gemakkelijk voor het evalueren van de koppeling op de aanwezigheid van mutant fenotype (s) plaats. Indien een dergelijke fenotype wordt gedetecteerd, wordt de F1-generatie vrouwelijke oprichter vervolgens outcross wildtype male zebravis meer heterozygote dragers maken en te verhogen. Omdat het niet nodig is om meerdere generaties te verhogen om het scherm uit te voeren, kan de onderzoeker veel tijd, arbeid en aquarium ruimte te besparen, maar heeft nog steeds de mogelijkheid om een groot aantal van genomen op basis van het aantal F1-vrouwtjes onderzocht overzien. Zo haploïde schermen zijn bijzonder haalbaar voor kleine laboratoria of projecten gestart in de absence van aanzienlijke financiering.
Er zijn echter verscheidene beperkingen en nadelen aan het gebruik van haploïden. Eerste, haploïde zebravis embryo's leven slechts enkele dagen, en meestal sterven tussen de 3 en 5 dagen na de bevruchting (DPF) 15. Haploid zebravis embryo's kunnen worden onderscheiden van diploïde basis van verschillende karakteristieken, belangrijkste onder hen zijn kort en gedrongen lichaam dat niettemin is normaal aantal somite segmenten 15,17. Naarmate de ontwikkeling vordert, de hersenen vertoont verhoogde celdood en de circulatie is slecht, meestal geassocieerd met bloed pooling met 2-3 DPF en oedeem 15,17. Verder haploiden niet tot een zwemblaas 15,17 blazen. Ondanks deze morfologische verschillen meeste belangrijke organen en weefsels gevormd, waaronder het hart, oog en notochorda 15,17. Een kenmerk opgemerkt over haploïde koppelingen is dat ze bevatten een scala van fenotypen in termen van rassen van defecte embryo's & #8212; een functie waargenomen over zebravis stammen. Zo moet men controleren of het weefsel (s) en tijd bijzondere plaats blijkt redelijk normale ontwikkeling in het wildtype haploïde stam en derhalve het potentieel om te worden geëvalueerd voor genetische defecten in een scherm of ander onderzoek.
Ondanks deze uitdagingen, zijn haploïde schermen met succes geïmplementeerd om genen die nodig zijn voor de vroege ontwikkeling van processen in de zebravis te identificeren, en haploïde protocollen zijn goed ingeburgerd middelen in de gemeenschap voor vele jaren 15-19. Meer recent is het proces van het genereren haploïde visembryo's gebruikt door onderzoekers haploïde embryonale stamcellen (ES) celculturen van medaka vis 20,21 creëren. Na de productie van medaka haploïde embryo's in vitro, werden de embryo's die primaire celkweken die werden gepasseerd gedurende 15 weken gevolgd door een 5-8 weken zuivere klonen van haploïde cellen met genereren leidenES-cel eigenschappen 15-19. De generatie van vis haploïde ES cellijnen houdt brede belofte voor de toekomst voor het analyseren van recessieve fenotypes bij gewervelde cellijnen, en vertegenwoordigt een nieuwe benadering voor de genetische analyse in de komende jaren. Zo is het genereren van haploïde vis embryo is groeiende toepassingen in de biomedische onderzoeksgemeenschap. Deze video artikel geeft een visuele demonstratie van de stappen die betrokken zijn bij de productie van haploïde zebravis embryo's in vitro met behulp van UV-geïnactiveerd sperma op basis van vastgestelde protocollen 15-19,22.
Protocol
OPMERKING: De procedures voor het werken met de zebravis embryo's beschreven in dit protocol werd goedgekeurd door het Comite Institutional Animal Care en gebruik aan de Universiteit van Notre Dame. OPMERKING: Hoewel de volgende protocol geeft een demonstratie van sperma isolement dat euthanasie van de mannen gaat, sperma kan het verzamelen van de genitale porie van verdoofd living mannetje zebravis gebruikt zachte abdominale druk en een microcapillaire voor zaden inzameling 17,18. Het drukken van levende mannen vereist een aantal mannetjes worden gebruikt om de equivalente hoeveelheid sperma die kan worden verkregen uit een euthanized mannetje 17,18 verzamelen. Echter, mannetjes die getoetst knijpen blijven heel gezond en kan worden gebruikt voor natuurlijke paringen of latere in vitro procedures 17. Indien mogelijk moet gekozen procedures onnodig vis offer te minimaliseren.
1. Voorbereiding van Solutions en zebravis Koppelen Chambers
- Bereid Hank's Stock Solutions (# 1, 2, 4, 6) en Hank's premix-oplossing (zie ook Materiaal tabel) 19, dan autoclaaf en bewaar bij 4 ° C.
- Selecteer het gewenste aantal volwassen zebravissen vrouw (en) voor haploïde clutch collectie. OPMERKING: Op basis van ervaring, het gebruik van een gemutageniseerde F1 bestaat uit inteelt Tübingen stam zebravis, ongeveer 50% van de seksueel volwassen wijfjes waren 'kneedbaar' gemiddeld na priming hen door ze in een paring kooi 's nachts met een man - dat wil zeggen een koppeling werd verkregen via het knijpen procedure - en de meerderheid van deze koppelingen (variërend tussen 70-90%) die levensvatbaar haploïden. Met twee onderzoekers het uitvoeren van de haploïde voorbereiding, kan ongeveer 80 volwassen vrouwelijke F1 zebravissen worden geperst in een ochtend. De reagentia die nodig zijn voor de haploïde experiment factor in zowel de squeeze snelheid van de F1-generatie en het aantal onderzoekers waarover de exp voeren berekeningeriment. Houd in gedachten dat het aantal vrouwen dat een hoge kwaliteit haploïde klauwen zal produceren is zeer variabel, met verschillen waargenomen tussen zebravis vrouwtjes van verschillende stammen, leeftijden, en voedsel dieet 15.
- Bereid paring kooien door het plaatsen van elke volwassen zebravissen vrouw met een volwassen man zebravissen in een kamer systeemwater zodat ze gescheiden door een verdeler nachts. OPMERKING: De wijfjes moeten worden blootgesteld aan een man 's nachts naar prime, of hen voor te bereiden, te paaien via knijpen.
2. Dissectie van Testes
- Maak Hank's Stock Solution # 6 vers door het toevoegen van 0,35 g natriumbicarbonaat tot 10 ml gedestilleerd water. Meng goed tot het natriumbicarbonaat poeder op te lossen.
- Combineer de volgende in een rol op ijs om de gebufferde Hank Final werkoplossing voor sperma maken: 9,9 ml Hanks Premix I met 100 pl voorraadoplossing # 6.
- Meng goed, dan aliquot 500 pi van de hank7; s Final werkende oplossing in een microcentrifugebuisje en leg ze op ijs. Opmerking: Elke 500 ul aliquot wordt gebruikt om sperma te bereiden van de testes van 4-5 mannelijke zebravis.
- Selecteer tussen 4-5 mannelijke zebravissen voor elke sperma oogst. Opmerking: Dit zal voldoende zaadcellen worden verzameld, verwerkt en opgeslagen in een 1,5 ml microcentrifugebuis, die kan worden gebruikt om ongeveer 15 haploïde koppelingen bevruchten oogsten. Selecteer aanvullende cohorten mannen om extra buizen bereiden naargelang de omvang van het experiment. Als de geselecteerde mannelijke zebravis klein of testes dissectie onvolledig, typisch 5 mannetjes nodig.
- Euthanaseren elke man met een net om zacht overdracht de vis in een schaal die 0,2% tricaïne gedurende ongeveer 5-6 minuten bij kamertemperatuur. LET OP: Wees voorzichtig om ervoor te zorgen dat de man goed is gedood voor het begin van de dissectie. Typisch, wacht enkele (2-3) minuten na de kieuwen van de vis stoppen met bewegen en de visniet meer reageert op aanraking.
- Pluk de mannelijke up voorzichtig met een plastic lepel en de mannelijke droge vloeistof zorgvuldig vlek. Verwijder vervolgens het hoofd van de man met een scherpe schaar en knip een incisie langs de ventrale middellijn. OPMERKING: Het verwijderen van alle overtollige vloeistof uit de vis is van essentieel belang om te voorkomen dat triggering activering van het sperma.
- Verwijder de darm en de bijbehorende darm organen uit de buikholte met behulp van fijne pincet en plaats in een biohazard afvalcontainer.
- Gebruik fijn pincet om de testikels, die zijn gelegen langs de dorsale lichaamswand, lateraal van de zwemblaas te verwijderen, en hebben een witte ondoorzichtige uiterlijk wanneer bekeken onder de stereomicroscoop. OPMERKING: Houd de testes intact kan helpen om de blootstelling van het sperma om water gebaseerde lichaamsvloeistoffen te voorkomen en daarmee te voorkomen dat voortijdige activering.
- Plaats de testes in het sperma oplossing op ijs en houd de buis op ijs als de andere testes worden ontleed. Herhaal stap 2,6-2,9 totdat alle males zijn ontleed.
- Plaats de karkassen en de resterende dierlijke weefsels in een biohazard container voor een juiste institutionele beschikking.
3. UV Sperm inactivatie
- Homogeniseren de testikels door voorzichtig slijpen de microcentrifugebuis met een steriele microbuis stamper.
- Breng de bovenstaande om een petrischaaltje of op horlogeglas op ijs. OPMERKING: weefselafval niet overdragen, samen met de bovenstaande oplossing. Dit zal schaduwen en afbreuk doen aan de UV-inactivatie van sperma.
- Spoel het sperma buis met tussen 300-400 ul van extra Hank's Final werkende oplossing (bereid in stap 2.2 en bewaard op ijs), en voeg dit supernatant wassen om de kleine petrischaal of horlogeglas in stap 3.2.
- Expose de schotel naar UV van een bank lamp (254 nm) voor een totaal van 2 minuten bij een afstand van de bron lamp ongeveer 15 cm (38,1 cm). LET OP: Wees voorzichtig bij het werken met een UV-lamp en draag een vizier ofandere oog persoonlijke beschermingsmiddelen.
- Breng het gerecht om het ijs emmer, breng de UV geïnactiveerd sperma om een frisse microcentrifugebuis en bewaar het monster op ijs. NB: Op dit punt zullen er ongeveer 800 ul van UV geïnactiveerd sperma op haploïde koppeling bevruchting. Het sperma moet op ijs bewaard gedurende de gehele duur van de tijd besteed aan knijpen vrouwtjes. Sperma koude Hank's kunnen worden gebruikt tot 6 uur zonder vermindering van bevruchting uitkomst. Interessant is dat andere onderzoekers gemeld dat sperma in koude Hanks levensvatbaar van enkele uren tot enkele dagen 18.
4. Egg Procurement van de Adult zebravis Vrouwelijke en In Vitro Fertilisatie van de Koppeling
- Bereid tricaïne bad voor anesthesie door het combineren van 20 ml 0,2% tricaïne voorraad met 80 ml van vis systeem water.
- Selecteer het wijfje voor eierverzameling, met behulp van een net om haar zachtjes te plaatsen in de schotel van tricaine.
- Wacht tot 2-3 min, totdat het vrouwtje is verdoofd en niet meer reageert op aanraking. OPMERKING: Als het vrouwtje samentrekkingen of uitlokt andere bewegingen, geef haar extra tijd te bezwijken voor de anesthesie.
- Gebruik een plastic lepel om til de vrouwelijke, decanteren de oplossing voor het plaatsen van het vrouwtje op een papieren handdoek om lont weg overtollig vocht. OPMERKING: Zorg dat u extra oplossing te laten op de vrouw, zoals vloeibaar ei activering zal leiden voor de toevoeging van sperma.
- Plaats de vrouw op haar dia in een schone petrischaal en visualiseren haar buik onder de stereomicroscoop.
- Stroke buik van het vrouwtje zachtjes gedurende ongeveer 10-20 seconden met behulp van een of twee vingers van de ene hand naar eieren knijpen van haar buik, ondertussen steun in de rug van het vrouwtje door het plaatsen van een of twee vingers van de andere kant net achter haar dorsale lichaam muur. OPMERKING: Bij streelde de buik van het vrouwtje, moeten de eieren heel gemakkelijk. Als de eieren ontstaan niet with te verlichten is het niet raadzaam om 'push harder' en kracht eieren van het vrouwtje. Dit geeft aan dat de eieren niet aanwezig zijn en / of niet klaar voor de bevruchting, en bleef duwen wordt geassocieerd met een aanzienlijk risico op nadelige gevolgen voor de vrouwelijke (bv. deflatie van de zwemblaas of het veroorzaken van andere dodelijke inwendig letsel). Als een vrouw wordt geperst, maar biedt geen of weinig eieren, de terugkeer van de vrouw naar het dier faciliteit. Na 1-2 weken rust, koppelen het vrouwtje met een mannetje voor een natuurlijke dekking voor het reinigen van de resterende ei puin. Gescheiden vrouwen die van nature paren in een tank voor een ander 1-2 weken rust voordat je probeert een tweede druk. Als alternatief kunnen de vrouwtjes uitgerust te zijn voor 4 weken, gedurende welke tijd ze kunnen worden ingesteld voor natuurlijke dekkingen 15.
- Gebruik een fijne sonde of kleine spatel om eieren schep onder de vrouwelijke en / of haar buik oppervlak.
- Til de vrouw en haar terug te keren naar een geschikt gemerkte isolatietank met vis systeem water.
- Voeg 50 ul van UV geïnactiveerd sperma oplossing voor het legsel en incubeer bij kamertemperatuur gedurende 30 seconden gedurende welke tijd, brengen de corresponderende etiket om de schotel te volgen met het nummer dat aan de vrouwelijke ouder.
- Voeg 1 ml van E3 op de eieren en incubeer bij kamertemperatuur gedurende 1 minuut.
- Voeg voldoende E3 oplossing van de schotel halverwege vullen en plaats de embryo's bij 28 ° C voor daaropvolgende incubatie. OPMERKING: De toevoeging van penicilline / streptomycine (1% (v / v) pen-strep oplossing die 5000 eenheden penicilline en 5 mg streptomycine per ml) 19 aan de E3 kan helpen bij algehele gezondheid van de haploïde embryo.
5. Observatie en behandeling van Haploid embryo
- Na 4-8 uur, verwijderen onbevruchte embryo's uit de schotel en was de resterende embryo's door het vervangen van de E3 embryo media met verse E3 oplossing. OPMERKING: bevruchte embryo's zal een witte, ondoorzichtige uiterlijk geven of kan een transparante een weerppearance met een misvormde enkele cel.
- Incubeer tot de gewenste tijd bezienswaardigheid, en vervolgens te gebruiken in de gewenste scherm assay of ander onderzoek applicatie (s).
Resultaten
De productie van haploïde embryo's kunnen worden toegepast om recessieve mutaties in de F2-generatie te identificeren wanneer haploïden zijn verkregen uit volwassen zebravis vrouwtjes die de nakomelingen van gemutageniseerde ouders (figuur 1). Dit bespaart tijd en ruimte in vergelijking met de traditionele diploïde scherm, waarin onderzoekers moeten F2 gezinnen waarvan diploïde nakomelingen worden vervolgens geëvalueerd voor fenotypes van belang (figuur 1) te verhogen.
De belangrijkste stap in het protocol beschreven in de stappen 1-5 hierboven voor het verkrijgen zebravis haploïde embryo door in vitro fertilisatie worden geschematiseerd als een stroomschema (Figuur 2). Deze stappen omvatten de bereiding van oplossingen en priming van vrouwen door blootstelling aan mannelijke hormonen in het koppelen tanks (dag 1), gevolgd door sperma en ei aanschaf en in vitro fertilisatie (Dag 2), en tenslotte fokken van haploïden (dagen 3-5) (Figuur 2). Wanneer comgecombineerd met een genetische screen, een gemeenschappelijke mutagenese procedure omvat de zebravis eerdere blootstelling van de mannelijke zebravis wildtype volwassenen mutageen (bijvoorbeeld een chemisch mutageen zoals ENU, hoewel andere procedures, zoals retrovirale gebaseerde mutagenese worden uitgevoerd dat ook vergemakkelijken klonering van de chromosomale afwijking), gevolgd door kweken met wildtype vrouwtjes een gemutageniseerd F1-generatie. Dergelijke preparaten vereisen een aantal maanden werk (circa 6 maanden) op basis van de generatie als nodig is om achter de wilde soorten, mutagenese uit te voeren, en achter de daaropvolgende gemutageniseerde F1 15,17,22.
Een ander belangrijk punt van aandacht in dienst haploiden voor een scherm is de keuze van de zebravis stam. De AB * (AB ster) stam is bekend geworden voor het produceren haploïde embryo's met betere algemene kenmerken en gezondheid dan andere stammen 15. Echter, in de afgeleide Tübingen stam gekweekt in onze laboratoriatory, hebben we onlangs geconstateerd embryologische kenmerken die succesvolle schermen hebben ingeschakeld voor ontwikkelingsanomalieën van de renale systeem (G. Gerlach en R. Wingert, niet gepubliceerd). Volwassen zebravissen Tübingen stam mannen werden gemutageniseerd door een serie van drie ENU behandelingen, en vervolgens gekruist met wild type Tübingen vrouwen om een F1 generatie genereren voor screening. De F1-vrouwtjes werden geperst om eieren te verkrijgen en deze F2 eieren werden bevrucht met UV geïnactiveerd sperma. Vergeleken met diploïde koppelingen verkregen door natuurlijke paringen van wildtype Tübingen ouders (figuur 3A), embryo's die haploïde stam Tübingen koppelingen weergegeven kortere, gedrongen stam kenmerk van de haploïde toestand (figuren 3B, C). Verder haploïde klauwen typisch uit embryo siblings dat een aantal gebreken die wij waargenomen en (figuren 3B, C), waarvan bekend is variëren binnen stammen, zoals hieronder verder besproken 15,17 weergegeven.
Eerdere studies hebben een canonieke indeling serie opgericht, die overeenkomt met de rangen A tot en met D, om het bereik van haploïde fenotype gebreken 15,17 categoriseren, en bovendien haploiden zijn ook in termen van de bijvoeglijke naamwoorden goede, intermediaire en slechte kwaliteit 22 bedoelde. Grade A haploiden, wat overeenkomt met een hoge kwaliteit haploiden, zijn de meest normale in verschijning, met een kort en gedrongen lichaam maar over het algemeen vertonen een morfologische verschijning vergelijkbaar met diploïden 15,17,22 (diploïde broers en zussen (d) te vergelijken met haploïde klasse A (label A) broers en zussen, Figuur 3B). Haploid rang A embryo's ontwikkelen ook bescheiden pericardiale oedeem, dat is een typisch kenmerk van haploïde ontwikkeling van de zebravis 15,17,22 (Figuur 3B). In vergelijking tot de rang A haploiden, intermediair of zogenaamde rang B haploïde embryo's (met label B, Figuren 3B, C) onderscheiden zich door de ontwikkeling van een verder verkort of geknikt / twisted kofferbak, maar kenmerken van een kop en staart zijn duidelijk te onderscheiden 15,17,22. Tot slot, de rang C of slechte kwaliteit haploiden (ook in sommige referenties als C / D vermeld) 15,17,22 zijn uiterst gebrekkig en geven een ongeorganiseerde massa van cellen in associatie van met een dooier bal (label C, Figuur 3C). Zelfs onder dezelfde stam, haploïde koppelingen verschillen in de verdeling van A, B en C fenotypes die zal waarnemen. Bijvoorbeeld, de haploïde koppeling van de ene Tübingen vrouwelijke weergegeven betere ontwikkeling in het algemeen, met voornamelijk A en B klasse haploïde nakomelingen (Figuur 3B) in vergelijking met haploiden verkregen uit een tweede Tübingen vrouw, wiens koppeling bestond uit tal van rang C haploïde nakomelingen zowel als A en B haploïde fenotypen (figuur 3C). Vergelijkbare strainvariabiliteit van haploïde embryo kwaliteiten zijn eerder waargenomen in AB en AB * stam vis ook 15.
Ondanks deze mormorfologische verschillen, organogenese van vele structuren verloopt relatief normaal in de haploïde embryo. Hoewel ze een kortere lichaam stam, ontwikkeling van organen zoals de ogen en het hart relatief vergelijkbaar met die van wildtype diploïde embryo en celtypes zoals pigmentcellen (melanoforen en xanthophores) kunnen ook 15 geëvalueerd. Bovendien hebben we onlangs aangetoond dat de pronephros of embryonale nier wordt ontwikkeld door 1 dag na de bevruchting in het wildtype haploïde, vergelijkbaar met wildtype diploïde. Als bewijs van dit type pronephros cel patronen geeft de prototypische patroon segmenten (figuur 4). Verder, het fenotype van recessieve mutaties die pronephros ontwikkeling, zoals lib mutatie die retinoïnezuur productie vermindert veranderen, een vergelijkbaar patroon in de haploïde toestand vergeleken met de diploïde staat (figuur 4) 23,24. Deze waarneming is in overeenstemming met die van andere recessive mutaties die leiden tot vergelijkbare fenotypes in zowel de haploïde en diploïde conditie, al is dit niet altijd het geval is met alle mutaties en moet in gedachten worden gehouden als evaluatie van dit type scherm strategie 15.
Een aantal weefsels en organen zijn typisch abnormaal in haploïden. Bijvoorbeeld, haploiden tonen gebreken in omloop, die algemeen vertonen bloed pooling, die hun vermogen om een aantal aspecten van vasculogenesis bestuderen beperkt 15 kunnen maken. Voorts is geconstateerd dat haploïden onregelmatigheden kunnen hebben oor ontwikkeling, zodat zij kunnen worden onderzocht op mutaties die otic vesicles volledig voorkomen, maar niet voor mutaties die subtiele processen bij morfogenese van deze structuur 15 beïnvloeden. Als een ander voorbeeld, hersenen morfogenese abnormaal in haploïden en dus haploïde schermen vereiste hersenontwikkeling trajecten identificeren beperkt 15. Ondanks deze beperkingen, ons eenbestudeert de analyse van de ontwikkeling van de nieren in de haploïde toestand (figuur 4) voegt dit orgel aan de lijst van 'screenen' embryonale structuren. Deze bevinding wijst erop dat een haploïde scherm methode kan worden gebruikt om de genetische componenten van renale voorlopercellen patroonvorming ontleden en voegt nadruk op het sentiment dat ingenieuze scherm benaderingen de beperkingen van haploïde embryo ontogenie kunnen omzeilen om waardevolle nieuwe mutant modellen ontdekken voor gewervelde ontwikkeling 15 bestuderen.

Figuur 1. Schema van diploïde en haploïde scherm strategieën op zebrafishmodel. Na mutagenese van de ouderlijke generatie kan de F1-generatie worden gebracht en gebruikt worden om F2 mutante families die worden gebruikt om de F3 generatie screenen diploïde toestand (links genereren ) of rechtstreeks schermed in een haploïde strategie (rechts). In een haploïde scherm, zijn de geslachtsrijpe F1-generatie vrouwtjes gebruikt om haploïde F2 koppelingen te verzamelen voor genetische analyse. Vrouw heterozygote dragers worden geïdentificeerd als ongeveer de helft van de F2 haploiden weer een mutant fenotype (rood embryo's) in vergelijking met het wild type haploïde broers en zussen (geel embryo's).

Figuur 2. Haploid embryo productie stroomschema. De belangrijkste stappen van in vitro bevruchting tot haploïde embryo's worden geschematiseerd als taken uitgevoerd op dag 1 (roze dozen) om sperma oplossingen en prime volwassen zebravissen vrouwtjes, taken uitgevoerd op Dag 2 (oranje dozen bereiden ) verzamelen en UV geïnactiveerd sperma, eieren verzamelen, om de eieren te bevruchten met UV geïnactiveerd sperma om haploïden genereren en vervolgens de moederplant herleven en Finally taken uitgevoerd op de daaropvolgende dagen 3-5 (geel kader) als de koppelingen worden uitgebroed om de gewenste tijd (en) voor observatie en analyse.

Figuur 3. Vergelijking van diploïde en haploïde Tübingen stam zebravis embryo's. A) Diploïde wildtype embryo's werden geproduceerd door natuurlijke paai-en vervolgens geïncubeerd tot ongeveer 30 hpf. B, werden C) Haploid wild type embryo's die door in vitro fertilisatie van koppelingen verkregen van F1-generatie gemutageniseerd vrouwtjes met UV-geïnactiveerd sperma, en geïncubeerd tot ongeveer 30 hpf. Haploiden vertoonde een reeks van afwijkingen in de ontwikkeling ten opzichte van diploïde wildtype embryo's (zwarte pijlpunten, d tot diploïde te geven). Relatief normaal haploiden een verkorte, meer voorraad lichaam analoog aan het beoordelingssysteem van gehadeen A haploïde 15 (rode pijlpunten, label A), terwijl haploiden met grote afwijkingen vertoonden een sterk ingekorte lichaamsas (paars pijlpunten, met label B) die overeenkomt met een cijfer van B, en tenslotte de rang C (blauw pijlpunten, het label C) op basis van gepubliceerd beschrijvingen 15. Alle embryo's werden levend gefotografeerd op een 2.5 x vergroting.
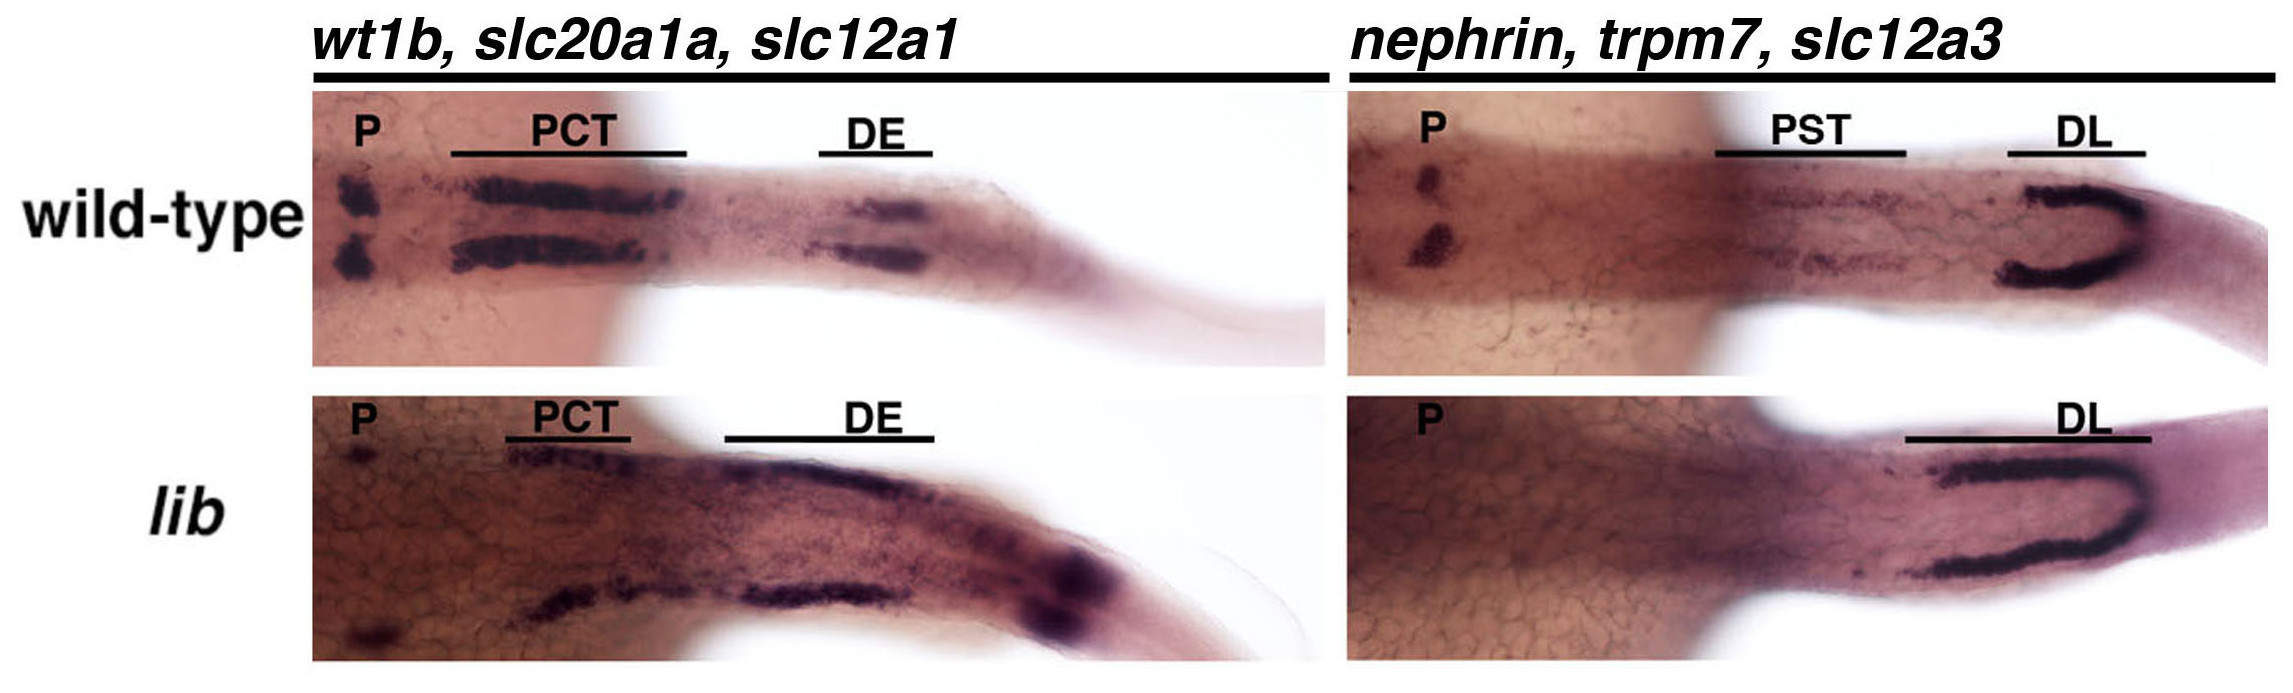
Figuur 4. Developmental patroonvorming van celtypen die de pronephros embryonale nier orgaan in Tübingen haploïde stam zebravis omvatten. Haploid wildtype vertoonden een normaal patroon van celtypes in het embryonale nier structuur (bovenste rij). De embryonale nier bestaat uit een paar gesegmenteerde functionele eenheden bekend als nefronen. De gesegmenteerde patroon van discrete celtypes aanwezig nefronen kan worden gevisualiseerd op basis van de gehele berg in situ hybridisatie expressie patroon van gen-transcripten die uniek zijn voor de gedifferentieerde nefron celtypes, die de podocytes (P) gekenmerkt door wt1b en nephrin nemen zijn, de proximale tubulus (PCT) gekenmerkt door slc20a1a, de proximale recht tubulus (PST ) gekenmerkt door TRPM7, de distale vroeg (DE) gekenmerkt door slc12a1, en de distale late tubulus (DL) gekenmerkt door slc12a3. lib haploïde mutant embryo's (onderste rij) verminderd podocytes, PCT en een afwezige PST, samen met een uitgebreide DE en DL segment vergelijkbaar met diploïde embryo lib 18. Embryo's werden gefotografeerd in een dorsale aanzicht, met anterieure links bij een 10X vergroting.
Discussie
Haploïde screening is een nuttige techniek om essentiële genen vereiste voor de vroege ontwikkelingsstadia ontdekken. Verder is het kweken van haploïde cellen van de vis medaka gebruikt om ES-achtige cellijnen die talrijke onderzoekstoepassingen en potentieel, waaruit blijkt dat haploïde cellen een waardevolle toekomstige locatie kunnen andere soorten gewervelde genetische studies 20,21 isoleren. Dit protocol geeft een demonstratie van de betrokken bij het uitvoeren van de productie van haploïde zebravis embryo's door in vitro fertilisatie met UV geïnactiveerd sperma methoden. Deze methode kan worden gebruikt om naar haploïde schermen voeren met gemutageniseerde F1 vis, die kunnen worden gemaakt met wildtype of mutante transgene stammen voor enhancer / suppressor screening.
Hoewel de screening tijd met behulp van een haploïde strategie is sterk verkort in vergelijking met diploïde screening, zal het toch een aantal maanden in beslag nemen. Zoals we descrieerder bed, zijn er vele voordelen die bestaan bij het uitvoeren van een scherm met een haploïde schema, die kunnen helpen bij het maken van nieuwe bijdragen aan de huidige kennis over een aantal ontwikkelingsprocessen. De methodologie haploïde scherm is efficiënter voor de identificatie van recessieve mutant allelen dan diploïde schermen op door de vermindering van de tijd, ruimte en het aantal vissen dat nodig is. Er zijn verschillende valkuilen een haploïde scherm. Een haploïde scherm kan alleen mutanten te identificeren in de genen dat binnen de eerste paar dagen van de ontwikkeling actief zijn, als het embryo alleen kunnen overleven voor een beperkte tijd met een haploïde genoom. Genen die later in de ontwikkeling tot expressie zou moeten worden geïdentificeerd door een andere methode, zoals een diploïde scherm. Ook moet je sommige organen niet goed ontwikkelen in een haploïde organisme. Er kunnen anatomische afwijkingen, of een vertraagde tijd van ontwikkeling, die kan de mutatie te missen door de haploïde screening techniek. Ikn Daarnaast hebben sommige stammen van vis niet zo goed ontwikkelen in een haploïde toestand 15. Haploiden kunnen worden gecategoriseerd door een indeling reeks van goede, intermediaire en slechte embryonale eigenschappen, met een embryo is de meest normale, B om embryo's aan te wijzen met defecten in de as, maar een duidelijke kop en staart, en C / D om embryo's aan te wijzen met onherkenbare eigenschappen (massa van cellen bovenop dooier ballen) 15,17. De verhoudingen van embryo's binnen deze categorieën verschilt per zebravis stam, met verhoogde aantallen van betere kwaliteit haploiden vaker in het bijzonder genetische achtergronden 15,17. Vanwege deze factoren is het noodzakelijk om een goede stam van zebravis zodat de mutagenese en daaropvolgende kruisen voeren. In onze recente ervaringen het wildtype Tübingen stam geproduceerd levensvatbare haploïden voor screening (zie figuren 3 en 4) hoewel historisch zebravis onderzoekers AB en AB * stammen gebruikt voor haploïde experimentatie 15.
Naast deze genoemde problemen zullen niet alle geprimede volwassen zebravissen vrouwtjes een koppeling dat hij op het uitvoeren knijpen techniek. Bijvoorbeeld, in samenwerking met ENU-gemutageniseerde stam Tübingen vrouwtjes, ongeveer de helft van alle vrouwen produceerde een koppeling op knijpen, en sommige van deze fractie (typisch 10-30%) waren slechte embryokwaliteit of niet konden worden bevrucht. Dus, om een haploïde scherm uit te voeren moet men van plan om minstens twee keer zoveel vis als nodig is om het gewenste aantal van genomen (elk vrouwtje vertegenwoordigt een genoom gescreend) screenen verhogen. Ongeacht deze overweging, de voordelen van de haploïde werkwijze voor het screenen van grote aantallen genomen bestrijken zonder massieve dierenverblijf zijn inderdaad zeer belangrijk wanneer het assay vatbaar is voor de haploïde toestand. Er moet echter worden opgemerkt dat de verdere studie van de mutatie (s) die in de haploïde koppeling is volledig afhankelijk succes verhogen van eenn outcross van de vrouwelijke oprichter. Zoals bij elk scherm, 'raakt' aanvankelijk geïdentificeerd tijdens de screening proces moet opnieuw worden vastgesteld in de diploïde staat.
Ondanks de valkuilen van het gebruik van de haploïde scherm is aangetoond zeer succesvol in het identificeren van mutanten die zijn grondig bestudeerd duidelijke voordelen aan de wetenschap 15 zijn. Haploid schermen kunnen worden toegepast om andere slecht begrepen processen van gewervelde ontwikkeling te onderzoeken. Met behulp haploiden voor versterker en suppressor schermen is een manier om meer inzicht in de activiteiten en regelgevende netwerk van een gen van belang te krijgen. De haploïde screening techniek kan ook worden gebruikt om versterkers en onderdrukkers van mutanten die al zijn geïsoleerd door methoden zoals chemische of insertiemutagenese of reverse genetics benaderingen zoals bewerken, dan wel Talens identificeren. Kortom, het voorheen geïsoleerde mutant worden gemutageniseerd met ENU en gescreend op enhancers of suppressors van de oorspronkelijke mutant fenotype. De mutant moet kunnen adulte bereiken, zodat het noodzakelijk is om een dier heterozygoot of homozygoot mutant zwakke vis dit scherm worden echter recente ontwikkelingen in transgenese heeft onderzoekers toegestaan om dit probleem te omzeilen. Leren hoe om trajecten te manipuleren in ontwikkeling kan leiden tot veel spannende mogelijkheden, waaronder het vooruitzicht van storende wegen naar ziekten te behandelen.
Openbaarmakingen
De auteurs hebben niets te onthullen.
Dankbetuigingen
Dit werk werd ondersteund door financiering RAW uit de volgende: NIH subsidies K01 DK083512, DP2 OD008470 en R01 DK100237; March of Dimes Basil O'Connor Starter Scholar Award # 5-FY12-75; opstarten fondsen van de University of Notre Dame College of Science and Department of Biological Sciences; en een gulle gift aan de Universiteit van Notre Dame van Elizabeth en Michael Gallagher namens de Gallagher Family ter bevordering van stamcelonderzoek. De financiers hadden geen rol in de onderzoeksopzet, gegevensverzameling en-analyse, besluit tot publicatie, of voorbereiding van het manuscript. Wij danken de medewerkers van de afdeling Biologische Wetenschappen voor hun steun, en het Centrum voor Onderzoek zebravis in Notre Dame voor hun uitstekende inzet in de zorg en het welzijn van onze zebravis kolonie. Wij danken GF Gerlach voor het nemen van de foto's die in figuur 4. Slot danken wij alle leden van ons onderzoek lab voor hun opmerkingen, discussies en INSIGhts over dit werk.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Hank's Stock Solution #1 | 8,0 g NaCl, 0,4 g KCl in 100 ml ddH2O | ||
| Hank's Stock Solution #2 | 0,358 g Na2HPO4 anhydrous; 0,60 g K2H2PO4 in 100 ml ddH2O | ||
| Hank's Stock Solution #4 | 0,72 g CaCl2 in 50 ml ddH2O | ||
| Hank's Stock Solution #5 | 1,23 g MgSO4-7H2O in 50 ml ddH2O | ||
| Hank's Premix | Combine in de volgende volgorde: (1) 10,0 ml HS#1, (2) 1,0 ml HS#2, (3) 1,0 ml HS#4, (4) 86 ml ddH2O, (5) 1,0 ml HS#5. Bewaar alle HS-oplossingen en Premix bij 4 °C. | ||
| Hank's Stock Solution #6 | 0,35 g NaHCO3 in 10,0 ml ddH2O; maak vers op de dag van gebruik. | ||
| Hank's Final working solution | Combineer 9,9 ml van Hank's Premix met 0,1 ml HS Stock #6 | ||
| XX-Series UV Bench lamp | UVP | 95-0042-05 | Model XX-15S Bench Lamp |
| XX Bench Stand (Adjustable) | UVP | 18-0062-01 | Model XX-15 Stand |
| Embryo incubation dish | Falcon | 35-1005 | |
| 50 X E3 | 250 mM NaCl, 8,5 mM KCl, 16,5 mM CaCl2, 16,5 mM MgSO4 in gedistilleerd water. Supplement met methyleenblauw (1 x 10⁻⁵ M) (Sigma M9140) om besmetting te voorkomen. | ||
| 1 X E3 | Verdun 50 X E3 in gedistilleerd water | ||
| Stereomicroscope | Nikon | SMZ645; SMZ1000 |
Referenties
- Haffter, P., Nüsslein-Volhard, C. Large scale genetics in a small vertebrate, the zebrafish. Int J Dev Biol. 40, 221-227 (1996).
- Lieschke, G. J., Currie, P. D. Animal models of human disease: zebrafish swim into view. Nat Rev Genet. 8, 353-367 (2007).
- Kimmel, C. B., et al. Stages of embryonic development of the zebrafish. Dev Dyn. 203, 253-310 (1995).
- Santoriello, C., Zon, L. I. Hooked! Modeling human disease in zebrafish. J Clin Invest. 122, 2337-2343 (2012).
- Howe, K., et al. The zebrafish reference genome sequence and its relationship to the human genome. Nature. 496, 498-503 (2013).
- Haffter, P., et al. The identification of genes with unique and essential functions in the development of the zebrafish, Danio rerio. Development. 123, 1-26 (1996).
- Driever, W., et al. A genetic screen for mutations affecting embryogenesis in zebrafish. Development. 123, 37-43 (1996).
- Eisen, J. S. Zebrafish make a big splash. Cell. 87, 969-977 (1996).
- Amsterdam, A., et al. A large-scale insertional mutagenesis screen in zebrafish. Genes Dev. 13, 2713-2724 (1999).
- Bradford, Y., et al. ZFIN: enhancements and updates to the zebrafish model organism database. Nucleic Acids Res. 39, (2011).
- Bowen, M. E., et al. Efficient mapping and cloning of mutations in zebrafish by low-coverage whole-genome sequencing. Genetics. 190, 1017-1024 (2012).
- Leshchiner, I., et al. Mutation mapping and identification by whole-genome sequencing. Genome Res. 22, 1541-1548 (2012).
- Obholzer, N., et al. Rapid positional cloning of zebrafish mutations by linkage and homozygosity mapping using whole-genome sequencing. Development. 139, 4280-4290 (2012).
- Voz, M. L., et al. Fast homozygosity mapping and identification of a zebrafish ENU-induced mutation by whole-genome sequencing. PLoS ONE. 7, (2012).
- Walker, C. Haploid screens and gamma ray mutagenesis. Meth Cell Biol. 60, 43-70 (1999).
- Steisinger, G., et al. Production of clones of homozygous diploid zebra fish (Brachydanio rerio). Nature. 291, 293-296 (1981).
- Westerfield, M. Chapter 2, Embryo Production by in vitro fertilization.”. The Zebrafish Book 4th ed. , University of Oregon Press. Eugene, USA. (2000).
- Walker, C., et al. Making gynogenetic diploid zebrafish by early pressure. (28), (2009).
- Westerfield, M. Chapter 10: Recipes.”. The Zebrafish Book 4th ed. , University of Oregon Press. Eugene, USA. (2000).
- Yi, M., Hong, N., Hong, Y. Generation of medaka fish haploid embryonic stem cells. Science. 326, 430-433 (2009).
- Yi, M., Hong, N., Hong, Y. Derivation and characterization of haploid embryonic stem cell cultures in medaka fish. Nat Protoc. 5, 1418-1430 (2010).
- Layton, J. E. Undertaking a successful gynogenetic haploid screen in zebrafish.” Zebrafish, Methods and Protocols. 1st ed. , Humana Press. (2009).
- Wingert, R. A., et al. The cdx genes and retinoic acid control the positioning and segmentation of the zebrafish pronephros. PLoS Genet. 3, 1922-1938 (2007).
- Wingert, R. A., Davidson, A. J. Zebrafish nephrogenesis involves dynamic spatiotemporal expression changes in renal progenitors and essential signals form retinoic acid and irx3b. Dev Dyn. 240, 2011-2027 (2011).
Herprints en machtigingen
