نقدم بروتوكولا مفصلا لزراعة أجنة الفئران والتصوير الذي يتيح تصوير وقت 3D + للخلايا السلفية القلبية. تتناول مجموعة أدوات الفيديو هذه المهارات الأساسية المطلوبة للتصوير المباشر الناجح الذي يصعب اكتسابه من المنشورات النصية فقط.
يتطلب اشتراك JoVE لعرض هذا المحتوى. تسجيل الدخول أو ابدأ نسخة تجريبية مجانية
مقالة منهجية
التصوير الحي لأسلاف القلب المبكرة في جنين الفأر
في هذه المقالة
ملخص
الملخص
تتضمن الخطوات الأولى لنمو القلب تغييرات جذرية في سلوك الخلية والتمايز. بينما يسمح تحليل الأجنة الثابتة بدراسة مراحل نمو محددة بالتفصيل في لقطة ثابتة ، فإن التصوير الحي يلتقط الأحداث المورفولوجية الديناميكية ، مثل هجرة الخلايا وتغيرات الشكل والتمايز ، عن طريق تصوير الجنين أثناء تطوره. هذا يكمل التحليل الثابت ويوسع فهم كيفية تطور الأعضاء أثناء التطور الجنيني. على الرغم من مزاياه ، نادرا ما يستخدم التصوير المباشر في نماذج الماوس بسبب تحدياته التقنية. تكون أجنة الفئران المبكرة حساسة عند استزراعها خارج الجسم الحي وتتطلب معالجة فعالة. لتسهيل الاستخدام الأوسع للتصوير الحي في أبحاث نمو الفئران ، تقدم هذه الورقة بروتوكولا مفصلا للفحص المجهري الحي ثنائي الفوتون الذي يسمح باكتساب أجنة الفئران على المدى الطويل. بالإضافة إلى البروتوكول ، يتم تقديم نصائح حول التعامل مع الأجنة وتحسين الثقافة. سيساعد هذا في فهم الأحداث الرئيسية في تكوين أعضاء الفئران المبكرة ، مما يعزز فهم بيولوجيا السلف القلبي الوعائي.
المقدمة
يتشكل القلب مبكرا أثناء التطور الجنيني لبدء ضخ العناصر الغذائية إلى الجنين بأكمله ، بينما يستمر في النمو1. في أجنة الفئران ، بعد يوم ونصف من بدء المعدة ، يتجمع عضو القلب البدائي في القطب الأمامي 2,3. بحلول مرحلة الخط المبكر (ES) ، يدخل السلف القلبي في epiblast عبر الخط البدائي إلى طبقة الأديم المتوسط الوليدة4،5،6 ويبدأ في الهجرة إلى القطب الأمامي ، حيث يتمايز لتشكيل أنبوب القلب البدائي. خلال هذه العملية ، يخضع أسلاف القلب الأوائل لإعادة ترتيب الخلايا ، وتحولات الشكل ، والتمايز ، بالإضافة إلى الهجرة7 (الشكل 1).
اجتذب أسلاف القلب الأوائل الباحثين لما يقرب من قرن من الزمان بسبب قدرتهم الرائعة على التمييز وبناء عضو وظيفي في وقت واحد. على مدى العقدين الماضيين ، أظهر التحليل النسيلي ونماذج الضربة القاضية الشرطية أن نمو القلب المبكر ينطوي على مصادر خلايا متميزة في عملية ديناميكية للغاية8،9،10. ومع ذلك ، فإن البنية ثلاثية الأبعاد لأنبوب القلب البدائي والطبيعة الديناميكية لتشكله تجعل من الصعب دراسته (الشكل 1) ، ونحن بعيدون عن فهم تعقيده الكامل11.
لدراسة هذه العمليات الخلوية الديناميكية ، تقدم طرق التصوير الحية الآن تفاصيل غير مسبوقة7،12،13،14. في نموذج الماوس ، كانت الأساليب الحية أساسية لاستجواب الموضوعات التنموية التي يصعب معالجتها من خلال التحليل الثابت7،13،15. في حين أن زراعة الجسم الحي على المدى الطويل وإعدادات المجهر القوية تتقدم بسرعة16,17 ، فإن القليل من الباحثين لديهم الخبرة اللازمة لتصوير الأجنة الحية بنجاح. على الرغم من أن المنشورات الورقية توفر تفاصيل فنية كافية لإعادة إنتاج تجارب التصوير الحية ، إلا أنه من الصعب فهم بعض المهارات والحيل بدون أمثلة مرئية أو مساعدة من نظير إلى نظير. لتسريع عملية التعلم هذه ونشر استخدام التصوير الحي بين المختبرات ، قمنا بتجميع بروتوكول فيديو (الشكل 2) يجمع المهارات اللازمة لإجراء التصوير الحي على أجنة الفئران المعدة.
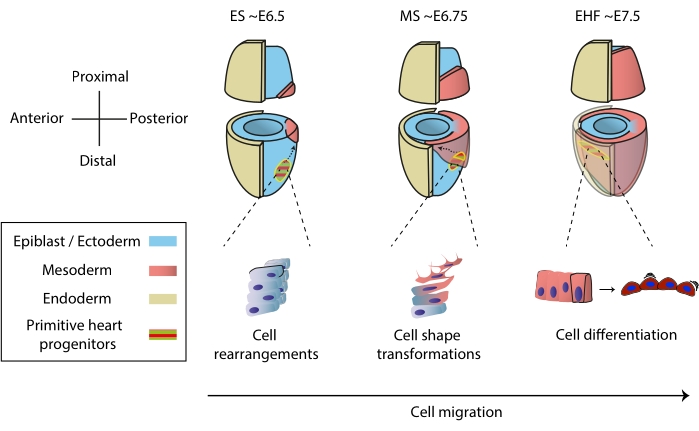
الشكل 1: التمايز المبكر للخلايا السلفية القلبية في جنين الفأر من بداية عملية شد المعدة إلى المرحلة التي تسبق تكوين أنبوب القلب البدائي. تدخل الخلايا السلفية القلبية الأديم المتوسط بعد وقت قصير من بدء المعدة ، وتهاجر إلى الجانب الآخر من الجنين. تتم كتابة مرحلة اليوم المورفولوجي والجنيني (E) أعلى المخططات. تصور الأسهم المتقطعة مسار هجرة أسلاف أنبوب القلب البدائي أثناء المعدة. تم تكييف هذا الرقم من11. الاختصارات: ES = الخط المبكر ؛ MS = الخط الأوسط ؛ EHF = طية الرأس المبكرة. يرجى النقر هنا لعرض نسخة أكبر من هذا الرقم.

الشكل 2: مخطط سير العمل للتصوير الحي لأسلاف القلب المبكرة. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
البروتوكول
تمت الموافقة على جميع الإجراءات الحيوانية من قبل لجنة أخلاقيات التجارب على الحيوانات CNIC ، من قبل مجتمع مدريد (المرجع PROEX 220/15) وتتوافق مع توجيه الاتحاد الأوروبي 2010/63EU والتوصية 2007/526 / EC بشأن حماية الحيوانات المستخدمة لأغراض تجريبية وعلمية أخرى ، تم فرضها في القانون الإسباني بموجب Real Decreto 1201/2005.
يتضمن هذا البروتوكول استخدام ذكرين من خط الفأر الفلوري المعدل وراثيا للإبلاغ عن نشاط NOTCH Tg (CBF: H2BVenus ، +) 18. راجع جدول المواد للحصول على تفاصيل حول المواد والحيوانات والمعدات المستخدمة في هذا البروتوكول.
1. الأدوات وتخصيص الحامل
- قطع قطع سلك التنغستن بطول 1 سم وشحذها إلى قطر 0.02-0.05 مم باستخدام أي من الطرق البسيطة المتاحة ، على سبيل المثال ، غمر طرف السلك في محلول نتريت الصوديوم المشبع19.
- إعداد الشعيرات الدموية الزجاجية الكوع.
- ضع نقطة المنتصف للشعيرات الزجاجية القياسية مقاس 1.0 مم فوق ولاعة بنسن لمدة 3-6 ثوان ، واسحب ببطء من كلا الطرفين حتى تصبح الشعيرات الدموية رقيقة ومرنة. عند هذه النقطة ، كسر الشعيرات الدموية إلى نصفين وتسخينها لفترة وجيزة لإنتاج انحناء 90 درجة 2 سم من الطرف.
- رأى قطعة من بولي ميثيل ميثاكريلات يبلغ طولها حوالي 7 مم وعرضها 4 مم وسمكها 2 مم (الشكل 3 د).
ملاحظة: يمكن الحصول على صفائح البولي ميثيل ميثاكريلات من معدات المختبرات المعاد تدويرها أو طلبها جديدة. - امسك قطعة الميثاكريلات باستخدام ملزمة مقاعد البدلاء. بعد ذلك ، قم بحفر ثقوب بحجم مخصص بشكل عرضي عبر القطعة بأكملها (الشكل 3D).
ملاحظة: عادة ، تتطلب أجنة الفئران E6.5 إلى E7.5 استخدام مثاقب قطرها 0.2-0.5 مم.- قم بتدوير المثقاب ببطء أثناء الضغط المنخفض ولكن المستمر. إذا انكسر المثقاب داخل الحامل ، فتخلص من القطعة ، حيث لا يمكن إخراج المعدن.
- استخدم ملفا جيدا لتنعيم حواف الحامل وضبط حجمه. بالإضافة إلى ذلك ، قم بإنشاء منحدر خفيف على حواف الحامل لتسهيل وضع الجنين (الشكل 3 د).
- ضع الحامل النهائي في طبق به ماء مقطر لشطفه.
- تحقق من الحامل الموجود أسفل المجهر المجسم لمعرفة ما إذا كانت الثقوب تحتوي على غبار حفر. في حالة وجود غبار ، استخدم إبر التنغستن لإزالته.
- لتعقيم الحامل ، ضعه في أنبوب مخروطي مملوء بالماء المقطر وقم بصوتنه لمدة 20 دقيقة مع خرج طاقة لا يقل عن 20 واط.
2. إعداد وسائل الإعلام
- لتسخين النظام المتمم ، اترك قسامتين سعة 500 ميكرولتر من مصل الفئران 20 التجاري أو محلي الصنع عند 56 درجة مئوية لمدة30 دقيقة.
ملاحظة: للحصول على بروتوكول مفصل حول كيفية تحضير مصل الفئران ، انظر21. - في غطاء زراعة الخلايا ، قم بإعداد حصتين من الوسط لزراعة الأجنة في المجهر. لكل منها ، امزج 490 ميكرولتر من DMEM لتصوير الخلايا الحية ، و 500 ميكرولتر من مصل الفئران المعطل ، و 10 ميكرولتر من البنسلين - الستربتومايسين للحصول على تركيز نهائي قدره 50 ميكروغرام / مل من البنسلين و 50 ميكروغرام / مل من الستربتومايسين22.
ملاحظة: يعتمد حجم وسط الاستزراع على وقت وعدد الأجنة المراد استزراعها. كقاعدة عامة ، يتطلب النمو الأمثل ما لا يقل عن 200 ميكرولتر لكل جنين يوميا في أجنة E7.0. - باستخدام حقنة سعة 2 مل ، قم بتصفية الوسط من خلال مرشح غشاء بحجم المسام 0.22 ميكرومتر في أنبوب جديد وضعه مفتوحا في حاضنة زراعة الخلايا عند 37 درجة مئوية و 7٪ CO2 لمدة 1 ساعة قبل زراعة الجنين23.
- تحضير وسط التشريح عن طريق إضافة ما يلي إلى 500 مل من DMEM المكمل بزجاجة L-glutamine: 50 مل من مصل الأبقار الجنينية ، 10 مل من 25 mM HEPES-NaOH (درجة الحموضة 7.2) ، و 10 مل من البنسلين والستربتومايسين (50 ملغ / مل).
- بعد ذلك ، افصلها إلى 50 مل من القسامة، ضع ثلاث قسوم في حمام 37 درجة مئوية وقم بتخزين الباقي عند 4 درجات مئوية لمدة تصل إلى 3 أشهر.
3. تشريح الجنين
- القتل الرحيم للفأر الحامل E6.75-E7.5.
- استخرج الرحم وضعه على مناديل ورقية جافة ونظيفة. ثم ، قم بقطع الرحم ، وإدخال طرف المقص الناعم من الجانب mesometrial وتحريك الشفرة على طول لفضح deciduae ونقلها إلى وسط التشريح. للحصول على بروتوكول مفصل ، انظر24.
- تشريح الأجنة ، والحفاظ على مخروط المشيمة الخارجية سليمة (الشكل 3 أ ، ب). للحصول على طريقة تشريح مفصلة ، راجع25.
- ثم ، انزع غشاء رايشرت ، تاركا جزءا منه في المنطقة خارج الجنين (الشكل 3 ب).
ملاحظة: الملقط الدقيق ضروري لهذه الخطوة. يمكن للمستخدمين عديمي الخبرة تشريح الأجنة على أطباق مغلفة بهلام الأغاروز بنسبة 2٪ لتجنب ثني أطراف الملقط على سطح الطبق (الشكل 3C). - للحفاظ على درجة حرارة متوسطة للتشريح ، استبدلها كل 10 دقائق. علاوة على ذلك ، قم بتشريح deciduae في مجموعات من 3-4 مع الاحتفاظ بالباقي في وسط تشريح يوضع في حمام 37 درجة مئوية. ضع على الفور الأجنة تشريح في وسط الثقافة.
- حدد الأجنة ذات الميزات الفلورية المطلوبة باستخدام مجهر مجسم مضان وضعها في الأنبوب الذي يحتوي على وسط زراعة في حاضنة زراعة الخلايا.
- إذا كانت الأجنة في مراحل E6.5 إلى E7.0 ، أغلق الغطاء واترك الأجنة تتعافى لمدة 2 ساعة قبل التصوير.
ملاحظة: الأجنة E6.5 إلى E7.0 حساسة. يمكن أيضا وضعها مباشرة تحت المجهر ولكن الزراعة المسبقة تسمح باختيار تلك التي تتعافى بشكل أفضل من التشريح ، مما يزيد من فرصة النجاح.
4. إعداد المجهر
- قم بتشغيل جميع مكونات المجهر ، بما في ذلك الليزر والكمبيوتر والبرامج. قم بتشغيل أجهزة التحكم في درجة الحرارة واضبطها على 37 درجة مئوية قبل 3 ساعات لضمان التوازن.
- في حالة استخدام هدف للكشف عن الغمر ، قم بتنظيفه باستخدام مناديل خالية من البقايا يمكن التخلص منها. اغمس طرف الهدف في ماء مقطر مزدوج باستخدام طبق 60 مم واتركه حتى يبدأ الاستحواذ.
- قم بتشغيل وحدة تحكم CO2 واضبطها على 7٪.
- ضع قطرة من شحم السيليكون عالي التفريغ على طبق 35 مم مع غطاء زجاجي سفلي (قطر 14 مم) ، ضع الحامل أعلى القطرة ، واضغط برفق لتثبيته.
- تحت المجهر المجسم ، أضف وسيط ثقافة لملء الجزء السفلي الزجاجي من الطبق. أثناء القيام بذلك ، وجه التيار إلى فتحات الحامل لمنع تكوين فقاعات الهواء فيها.
- إذا بقيت الفقاعات ، فاستخدم الشعيرات الدموية الزجاجية المحضرة في الخطوة 1.2 ، المتصلة بأنبوب سيليكون مع قطعة فم ، لامتصاص الفقاعات برفق.
ملاحظة: ستسهل نهاية الكوع الشعرية الوصول من خلال الثقوب.
5. تصاعد الجنين
- نقل 2-3 أجنة تركت للتعافي في الحاضنة إلى الطبق مع حاملها. اترك الباقي في الحاضنة كنسخة احتياطية.
- ضع الأجنة في الثقوب باستخدام زوج من الملقط وإبرة التنغستن المدببة. استخدم الإبرة لربط الجنين بواسطة مخروط المشيمة الخارجية وإدخاله في فتحة مطابقة للحجم. لشل حركة الجنين ، قم بتدوير المخروط بمقدار 90-120 درجة بحيث يلتصق غشاء الرايختر بجدران الثقب (الشكل 3C). للحصول على وصف بديل، انظر26.
- انقل الطبق الذي يحتوي على الأجنة والحامل بعناية إلى لوحة المجهر (الشكل 3F ، G).
ملاحظة: إذا لم يتم تحريكه بثبات ، يمكن للجنين الخروج من الحامل. - خفض الهدف حتى يتم تشكيل الغضروف المفصلي السائل في واجهة الهدف المتوسط.
- حدد موقع الجنين باستخدام الضوء المرسل تحت مجهر المجهر وضع الجنين في بؤرة التركيز.
- قم بتركيب غرفة الحضانة وختمها حول الهدف باستخدام شريط (الشكل 3F).
- باستخدام Live Capture في برنامج التحكم المجهري ، اضبط مستويات إخراج الليزر والكسب.
ملاحظة: للحصول على فوتونين من البروتين الفلوري الأخضر (GFP) ومراسلي Tdtomato ، تم استخدام طاقة ليزر ناتجة بنسبة 30٪ عند 980 نانومتر وكسب 70٪ على أجهزة الكشف غير الممسوحة ضوئيا في هذا البروتوكول (الشكل 3G). - لتجنب التبخر ، قم بتغطية الوسط بزيت البارافين عن طريق تقطيره ببطء على الهدف.
ملاحظة: هذه هي النقطة الأخيرة حيث يمكن تركيب أجنة إضافية في الحامل. بمجرد تغطيته بزيت البارافين ، سيتعين على المرء تنظيف الحامل واستبدال الوسط للقيام بذلك. للحصول على طرق تركيب بديلة ، انظر27.
6. الحصول على الصور
- إعداد تسجيل الفاصل الزمني. اضبط فاصلا زمنيا من 5 إلى 10 دقائق مع مسافة z 3-5 ميكرومتر بين الأكوام. اترك مساحة فارغة أعلى مكدس z لتوقع نمو الجنين ، بحد أدنى 50 ميكرومتر ، مع إضافة 30 ميكرومتر لكل ساعة لن يتم الإشراف على عملية الاستحواذ.
- إذا كان ذلك متاحا ، فقم بتمكين خيار الحفظ التلقائي للسماح بالإشراف على الاستحواذ من جهاز كمبيوتر شخصي للسماح بتعديل حجم z-stack ، إذا لزم الأمر ، لتناسب مجال الاهتمام ضمن التركيز.
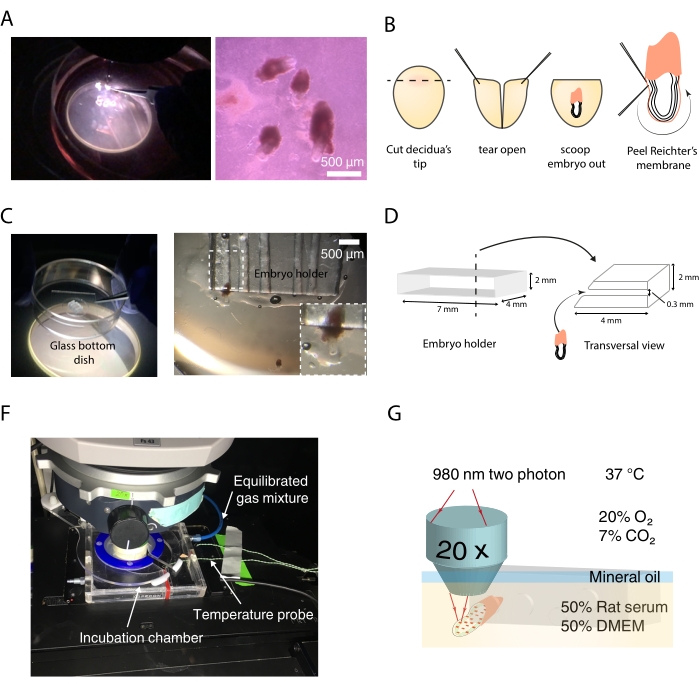
الشكل 3: أدوات التصوير المباشر والإعداد. أ: تشريح أجنة الفئران باستخدام طبق مغطى بالأغاروز تحت المجهر المجسم. ب: رسم تخطيطي لخطوات تشريح أجنة الفئران للتصوير الحي. ج: وضع الجنين في الحامل. (د) تصميم حامل الجنين وخصائصه. (و) غرفة حاضنة حول هدف الغمر. (ز) رسم تخطيطي للإعداد النهائي لاقتناء الفاصل الزمني. شريط المقياس = 500 ميكرومتر (A). يرجى النقر هنا لعرض نسخة أكبر من هذا الرقم.
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
النتائج
استخدمنا البروتوكول لتصور تنشيط إشارات NOTCH في أسلاف القلب المبكرة على وشك التمايز إلى الخلايا البطانية أثناء تشكل أنبوب القلب البدائي. لذلك ، عبرنا الفئران من النوع البري C57BL / 6-N مع الفئران Tg (CBF: H2BVenus ، +)18 للحصول على أجنة تبلغ عن نشاط NOTCH من خلال بروتين الفلورسنت الأصفر فينوس. في E7.5 ، يوجد تألق فينوس في جميع أنحاء الأديم الظاهر العصبي ، مع وجود عدد قليل من النوى الإيجابية في الأديم المتوسط السطحي وخارج الجنين. بعد 4 ساعات ، تنشط الأسلاف البطانية كوكب الزهرة وتتجمع لتشكيل أنبوب ا...
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
المناقشة
ينتظم أسلاف القلب الأوائل في أنبوب قلب بدائي يبدأ في النبض بينما لا يزال يتشكل. يعد فهم كيفية حدوث هذه العملية أمرا أساسيا لتحديد مجموعة واسعة من عيوب القلب الخلقية لأحداث مورفوجينية محددة. لذلك ، يوفر التصوير الحي فرصة لدراسة التطور الجنيني الطبيعي والمعيب مع زيادة الدقة الزمنية. هذا مفيد بشكل خاص لدراسة الخلايا السلفية القلبية المبكرة أثناء انتقالها بسرعة من خلال سلوكيات التمايز والهجرة المتعددة7.
نظرا لأنه يمكننا دراسة المراحل الجنينية المختلفة في عينة واحدة ، يمكن ا...
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
الإفصاحات
ليس لدى المؤلفين أي تضارب في المصالح للكشف عنه.
شكر وتقدير
يعترف المؤلفون بالدكتور كينزو إيفانوفيتش لعمله السابق على هذه الطريقة ومجموعة الدكتور شيجينوري نوناكا (المعاهد الوطنية للعلوم الطبيعية ، اليابان) لتوفير الخبرة الأولية في تركيب الأجنة. تم دعم هذه الدراسة من قبل Grant PGC2018-096486-B-I00 من وزارة العلوم والابتكار الإسبانية و Grant H2020-MSCA-ITN-2016-722427 من برنامج EU Horizon 2020 إلى MT و Grant 1380918 من برنامج التشغيل FEDER Andalucía 2014-2020 إلى JND. تم دعم MS من خلال زمالة الدكتوراه في مؤسسة La Caixa (LCF / BQ / DE18 / 11670014) وزمالة سفر شركة علماء الأحياء (DEVTF181145). يتم دعم CNIC من قبل وزارة العلوم الإسبانية ومؤسسة ProCNIC.
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| # 55 ملقط | دومون ; | 11295-51 | |
| 35 مم طبق مع غطاء زجاجي أسفل 14 مم قطر | Mattek | P35G-1.5-14-C | |
| 35 مم طاولة ملزمة | Grandado | SKU 8798771617573 | |
| أنابيب 50 مل | BD Falcon | 352070 | |
| ماء | |||
| DMEM - Dulbecco's Modified Eagle Medium | Gibco | 11966025 | مع L-Glutamine ، بدون جلوكوز ، بدون Na Pyruvate |
| Fetal Bovine Serum | Invitrogen | 10438-026 | |
| الفئران المعدلة وراثيا الفلورية (Tg (CBF: H2BVenus ، +) ؛ | JAX | ||
| فلوروبريت DMEM | ThermoFisher | A1896701 | DMEM لتصوير الخلايا الحية |
| شحم سيليكون عالي الفراغ | Dow Corning | Z273554-1EA | |
| حامل للأسلاك Perlen | Pressen | pwb1 | |
| LSM 780 مجهر مستقيم | Zeiss & nbsp ؛ | ||
| مايتاي ديبسي بعيد الأحمر النبضي الليزر المضبوطة في 980 نانومتر | Spectra-Physics | ||
| غير الممسوحة ضوئيا كاشفات مجهزة بمجموعات المرشحات السماوي الأصفر (BP450-500 / BP520-560) والأخضر والأحمر (BP500-520 / BP570-610) والأصفر والأحمر (BP520-560 / BP645-710) | Zeiss & nbsp ؛ | ||
| Obj: 20x غمس الماء 1.0 NA ، مسافة عمل طويلة | Zeiss ؛ | ||
| ماصات P1000 و P200 زيت | |||
| البارافين | Nidacon | VNI0049 | |
| البنسلين الستربتومايسين | Invitrogen | 15070-063 | (يجب أن يكون التركيز النهائي 50 مو ؛ جم / مل البنسلين و 50 مو ؛ جم / مل ستربتومايسين) |
| أطباق بتري 35 مم × 10 مم | BD Falcon | 351008 | |
| أطراف | |||
| بولي ميثيل ميثاكريلات ؛ | أعيد استخدامها من معدات المختبرات | ||
| القديمة جنين زراعة مصل الفئران ، ذكور الفئران SPRAGUE DAWLEY RjHan SD | Janvier Labs | 9979 | |
| مجموعة من غرامات 160 مم RS | PRO | 541-6933 | |
| الشعيرات الدموية الزجاجية القياسية 1.0 مم | Anima Lab | ؛ 1B100F-3 | |
| معقم 0.22 مو ؛ م حقنة مرشح | كورنينج | 431218 | |
| معقمة 5 مل حقنة | فيشر العلمية | 15809152 | |
| التنغستن إبر | |||
| بالموجات فوق الصوتية (سونيكاتور) | Bandelin | BASO_17021 |
المراجع
- Tyser, R. C. V., et al. Calcium handling precedes cardiac differentiation to initiate the first heartbeat. eLife. 5, 17113(2016).
- Kelly, R. G., Buckingham, M. E., Moorman, A. F. Heart fields and cardiac morphogenesis. Cold Spring Harbor Perspectives in Medicine. 4 (10), 015750(2014).
- Evans, S. M., Yelon, D., Conlon, F. L., Kirby, M. L. Myocardial lineage development. Circulation Research. 107 (12), 1428-1444 (2010).
- Tam, P. P., Parameswaran, M., Kinder, S. J., Weinberger, R. P. The allocation of epiblast cells to the embryonic heart and other mesodermal lineages: the role of ingression and tissue movement during gastrulation. Development. 124 (9), Cambridge, England. 1631-1642 (1997).
- Kinder, S. J., Loebel, D. A. F., Tam, P. P. L. Allocation and early differentiation of cardiovascular progenitors in the mouse embryo. Trends in Cardiovascular Medicine. 11 (5), 177-184 (2001).
- Lawson, K. A. Fate mapping the mouse embryo. International Journal of Developmental Biology. 43 (7), 773-775 (1999).
- Ivanovitch, K., Temiño, S., Torres, M. Live imaging of heart tube development in mouse reveals alternating phases of cardiac differentiation and morphogenesis. eLife. 6, 30668(2017).
- Meilhac, S. M., Buckingham, M. E. The deployment of cell lineages that form the mammalian heart. Nature Reviews Cardiology. 15 (11), 705-724 (2018).
- Buckingham, M., Meilhac, S., Zaffran, S. Building the mammalian heart from two sources of myocardial cells. Nature Reviews Genetics. 6 (11), 826-835 (2005).
- Meilhac, S. M., Lescroart, F., Blanpain, C. D., Buckingham, M. E. Cardiac cell lineages that form the heart. Cold Spring Harbor Perspectives in Medicine. 4 (9), 013888(2014).
- Sendra, M., Domínguez, J. N., Torres, M., Ocaña, O. H. Dissecting the complexity of early heart progenitor cells. Journal of Cardiovascular Development and Disease. 9 (1), 5(2022).
- McDole, K., et al. In toto imaging and reconstruction of post-implantation mouse development at the single-cell level. Cell. 175 (3), 859-876 (2018).
- Saykali, B., et al. Distinct mesoderm migration phenotypes in extra-embryonic and embryonic regions of the early mouse embryo. eLife. 8, 42434(2019).
- Ichikawa, T., et al. Live imaging of whole mouse embryos during gastrulation: Migration analyses of epiblast and mesodermal cells. PLoS ONE. 8 (7), 64506(2013).
- Tyser, R. C. V., et al. Single-cell transcriptomic characterization of a gastrulating human embryo. Nature. 600 (7888), 285-289 (2021).
- Aguilera-Castrejon, A., et al. Ex utero mouse embryogenesis from pre-gastrulation to late organogenesis. Nature. 593 (7857), 119-124 (2021).
- Yue, Y., et al. in toto live imaging of cardiomyocyte behaviour during mouse ventricle chamber formation at single-cell resolution. Nature Cell Biology. 22 (3), 332-340 (2020).
- Nowotschin, S., Xenopoulos, P., Schrode, N., Hadjantonakis, A. K. A bright single-cell resolution live imaging reporter of Notch signaling in the mouse. BMC Developmental Biology. 13 (1), 15(2013).
- Cold Spring Harbor Protocols. Sharpened tungsten needles. Cold Spring Harbor Protocols. , (2012).
- Tam, P. P., Snow, M. H. The in vitro culture of primitive-streak-stage mouse embryos. Journal of Embryology and Experimental Morphology. 59, 131-143 (1980).
- Garcia, M. D., Udan, R. S., Hadjantonakis, A. K., Dickinson, M. E. Preparation of rat serum for culturing mouse embryos. Cold Spring Harbor Protocols. 2011 (4), 5593(2011).
- Tam, P. P. L. Postimplantation mouse development: Whole embryo culture and micro- manipulation. International Journal of Developmental Biology. 42 (7), 895-902 (1998).
- González Hinojosa, F. Optimización de propiedades fisicoquímicas y medios de cultivo para el cultivo del embrión de ratón ex vivo. Universidad de Jaén. Biología Experimental. , Available from: https://hdl.handle.net/10953.1/1400 (2021).
- Behringer, R., Gertsenstein, M., Vintersen Nagy, K., Nagy, A. Manipulating the mouse embryo: A laboratory manual, Fourth Edition. , Cold Harbor Laboratory Press. 814(2014).
- Shea, K., Geijsen, N. Dissection of 6.5 dpc mouse embryos. Journal of Visualized Experiments. (2), e160(2006).
- Nonaka, S. Modification of mouse nodal flow by applying artificial flow. Methods in Cell Biology. 91, 287-297 (2009).
- Garcia, M. D., Udan, R. S., Hadjantonakis, A. K., Dickinson, M. E. Time-lapse imaging of postimplantation mouse embryos. Cold Spring Harbor Protocols. 2011 (4), 5595(2011).
- Crainiciuc, G., et al. Behavioural immune landscapes of inflammation. Nature. 601 (7893), 415-421 (2022).
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
إعادة الطباعة والأذونات
