ينطوي الاتجار بالغشاء على نقل البروتينات من غشاء البلازما إلى داخل الخلية (أي الالتقام الخلوي) متبوعا بالاتجار إلى الجسيمات الحالة للتحلل أو إلى غشاء البلازما لإعادة التدوير. تم تصميم الطرق الموضحة في هذه المقالة لدراسة الالتقام الخلوي وإعادة تدوير بروتينات غشاء البلازما.
مقالة منهجية
في دراسة لالإلتقام وإعادة غشاء البلازما من البروتينات القائم على خلية L-الجلوتاثيون حماية فحوصات
في هذه المقالة
ملخص
الملخص
ينطوي الاتجار بالغشاء على نقل البروتينات من غشاء البلازما إلى داخل الخلية (أي الالتقام الخلوي) متبوعا بالاتجار إلى الجسيمات الحالة للتحلل أو إلى غشاء البلازما لإعادة التدوير. يمكن استخدام فحوصات حماية L-glutathione القائمة على الخلية لدراسة الالتقام الخلوي وإعادة تدوير مستقبلات البروتين والقنوات والناقلات وجزيئات الالتصاق الموضعية على سطح الخلية. يتطلب الاختبار الداخلي وضع العلامات على بروتينات سطح الخلية بغشاء الخلية غير منفذ للبيوتين يحتوي على رابطة ثاني كبريتيد وإستر N-hydroxysuccinimide (NHS) عند 4 درجات مئوية - وهي درجة حرارة لا يحدث عندها تهريب الغشاء. يحدث الالتقام الخلوي لبروتينات غشاء البلازما الحيوية عن طريق الحضانة عند 37 درجة مئوية. بعد ذلك ، تنخفض درجة الحرارة مرة أخرى إلى 4 درجات مئوية لوقف الاتجار بالخلايا الداخلية ويتم تقليل رابطة ثاني كبريتيد في البيوتين المرتبطة تساهميا بالبروتينات التي بقيت في غشاء البلازما باستخدام L-glutathione. في هذه المرحلة ، تظل البروتينات التي تم خلطها فقط محمية من L-glutathione وبالتالي تظل بيوتينيل. بعد تحلل الخلية ، يتم عزل البروتينات الحيوية باستخدام الستربتافيدين أغاروز ، المملح من الاغاروز ، ويتم الكشف عن البروتين الحيوي ذي الأهمية عن طريق النشاف الغربي. أثناء اختبار إعادة التدوير ، بعد تحضين الخلايا الحيوية عند 37 درجة مئوية لتحميل الحويصلات الداخلية ببروتينات بيوتينيل ورابطة ثاني كبريتيد في البيوتين المرتبطة تساهميا بالبروتينات المتبقية في غشاء البلازما يتم تقليلها باستخدام L-glutathione عند 4 درجات مئوية كما هو الحال في المقايسة الداخلية الخلية. بعد ذلك ، يتم تحضين الخلايا مرة أخرى عند 37 درجة مئوية للسماح للبروتينات الحيوية من الحويصلات الداخلية بإعادة التدوير إلى غشاء البلازما. ثم يتم تحضين الخلايا عند 4 درجات مئوية ، ويتم تقليل رابطة ثاني كبريتيد في البيوتين المرتبطة بالبروتينات التي يتم إعادة تدويرها إلى أغشية البلازما باستخدام L-glutathione. البروتينات الحيوية المحمية من L-glutathione هي تلك التي لم يتم إعادة تدويرها إلى غشاء البلازما.
المقدمة
تعالج جميع الخلايا الحية المعلومات عن طريق تهريب البضائع ، مثل الروابط خارج الخلية والكائنات الحية الدقيقة والمغذيات وبروتينات الغشاء والدهون من غشاء البلازما إلى الحويصلات الداخلية (أي الالتقام الخلوي). تعمل عملية متبادلة تسمى إعادة التدوير على موازنة الالتقام الخلوي وتعيد الكثير من الغشاء الداخلي والبضائع إلى سطح الخلية. يتحكم التوازن بين الالتقام الخلوي وإعادة التدوير في تكوين غشاء البلازما ويزود الخلايا بالمعلومات التي تم حلها في الزمان والمكان. الالتقام الخلوي وإعادة التدوير هما منظمان رئيسيان للوظائف الخلوية المتنوعة مثل امتصاص المغذيات والتمثيل الغذائي ، والتطور ، والانتشار ، والتمايز والقطبية ، وإعادة البرمجة ، والهجرة ، والتصاق الخلايا وهجرتها ، والحركة الخلوية ، والنقل العصبي1-3. مسارات الخلايا الداخلية وإعادة التدوير ديناميكية للغاية ومنسقة للغاية وتسمح للخلايا بقلب ما يعادل غشاء البلازما بأكمله 1-5x في الساعة.
تعد فحوصات حماية L-glutahione القائمة على الخلايا مفيدة لدراسة الالتقام الخلوي وإعادة تدوير البروتينات عبر الغشاء بما في ذلك المستقبلات والقنوات والناقلات وجزيئات الالتصاق في الخلايا الظهارية وغير الظهارية4-8. لقد درسنا سابقا الالتقام الخلوي وإعادة تدوير منظم التوصيل عبر الغشاء للتليف الكيسي (CFTR) في الخلايا الظهارية لمجرى الهواء البشري وخلايا HEK2939-15. تم تحسين المقايسات القائمة على البيوتينيل الموضحة في المخطوطة لفحص الالتقام الخلوي وإعادة التدوير في الخلايا الظهارية المزروعة في ظل ظروف الاستقطاب على دعامات النمو شبه المنفذة. يمكن تعديل هذه البروتوكولات لدراسة الالتقام الخلوي وإعادة تدوير البروتينات في الخلايا الظهارية المزروعة في أطباق زراعة الأنسجة البلاستيكية أو في الخلايا غير الظهارية. يحتوي الشكلان 1 و 2 على أمثلة على فحوصات الخلايا الداخلية وإعادة التدوير في الخلايا الظهارية وغير الظهارية.
يتم إجراء فحوصات الخلايا الداخلية كما هو موضح سابقا9-15. يتم زراعة الخلايا على دعم النمو شبه المنفذ المطلي بالكولاجين11،14. بدلا من ذلك ، يمكن زراعة الخلايا في أطباق زراعة الأنسجة البلاستيكية المطلية بالكولاجين10،15. يتم تبريد الخلايا بسرعة إلى 4 درجات مئوية لوقف تهريب الأغشية ويتم تمييز بروتينات غشاء البلازما عند 4 درجات مئوية باستخدام غشاء الخلية البيوتين غير المنفذ. يتفاعل البيوتين مع ε-amine من بقايا اللايسين ورابطة ثاني كبريتيد قابلة للانقسام. بعد تحضين الخلايا الحيوية عند 37 درجة مئوية للحث على تهريب البروتين وتحميل الحويصلات الداخلية لمدة 2.5 أو 5.0 أو 7.5 أو 10 دقائق. بعد ذلك ، يتم تبريد الخلايا إلى 4 درجات مئوية ويتم تقليل رابطة ثاني كبريتيد في البيوتين المرتبط تساهميا ببروتينات غشاء البلازما باستخدام L-glutathione (GSH). في هذه المرحلة من البروتوكول ، يتم حماية البروتينات التي تم خلطها من غشاء البلازما فقط من GSH وبالتالي تظل بيوتينيل. ستعمل الخلايا التي تبقى عند 4 درجات مئوية بعد البيوتينيل دون حضانة عند 37 درجة مئوية أو معالجة GSH على تحديد كمية CFTR الحيوية في الوقت الصفر. ستعمل الخلايا المتبقية عند 4 درجات مئوية بعد البيوتينيل دون حضانة عند 37 درجة مئوية ولكن مع معالجة GSH على تحديد كفاءة تقليل روابط ثاني كبريتيد. بعد العلاجات الموصوفة أعلاه ، يتم تحلل الخلايا ، ويتم عزل البروتينات الحيوية بواسطة الستربتافيدين أغاروز ، ويتم شطبها في المخزن المؤقت لعينة SDS ، وفصلها بواسطة SDS-PAGE. يتم الكشف عن البروتين محل الاهتمام في العينات الحيوية عن طريق النشاف الغربي. تعتبر كمية البروتين البيوتينيل عند 4 درجات مئوية في الوقت صفر (بدون ارتفاع درجة الحرارة 37 درجة مئوية) 100٪. تعتبر كمية البروتين المتبقية البيوتينيل بعد معالجة GSH عند 4 درجات مئوية خلفية ويتم طرحها من كمية البروتين المتبقية البيوتينيل بعد الاحترار إلى 37 درجة مئوية في نقاط زمنية مختلفة. يتم حساب الالتقام الخلوي للبروتين بعد طرح الخلفية ويتم التعبير عنه كنسبة مئوية من البروتين الحيوي في كل نقطة زمنية بعد الاحترار إلى 37 درجة مئوية مقارنة بكمية البروتين الحيوي الموجودة في الوقت الصفر.
يتم إجراء فحوصات إعادة التدوير كما هو موضحسابقا 11،16. يتم زراعة الخلايا على دعم النمو شبه المنفذ المطلي بالكولاجين11. بدلا من ذلك ، يمكن زراعة الخلايا على أطباق زراعة الأنسجة البلاستيكية المطلية بالكولاجين13. يتم تسخين الخلايا إلى 37 درجة مئوية بعد البيوتينيل لتحميل الحويصلات الداخلية ببروتينات البيوتينيل. يتم تحديد وقت الحضانة الأولى عند 37 درجة مئوية من خلال الوقت الذي يصل فيه الالتقام الخلوي للبروتين محل الاهتمام إلى الحد الأقصى أثناء الزيادة الخطية للإشارة الداخلية الخلية. الوقت خاص بالبروتين وقد يعتمد على نوع الخلية وظروف زراعة الخلايا. في تجربتنا ، وصل الالتقام الخلوي CFTR إلى الحد الأقصى عند 5.0 أو 7.5 دقيقة13،14 (الشكلان 1 و 2). بعد ذلك ، يتم تبريد الخلايا على الفور إلى 4 درجات مئوية ويتم تقليل رابطة ثاني كبريتيد في البيوتين المرتبط ببروتينات غشاء البلازما باستخدام GSH. بعد ذلك ، يتم تحلل الخلايا لتحديد كمية البروتين الموجود في الخلايا الداخلية محل الاهتمام أو تسخينها مرة أخرى إلى 37 درجة مئوية لفترات زمنية مختلفة للسماح للبروتين الحيوي الموجود بالخلايا الداخلية ذي الأهمية بإعادة تدويره إلى غشاء البلازما. ثم يتم تبريد الخلايا مرة أخرى إلى 4 درجات مئوية ، ويتم تقليل رابطة ثاني كبريتيد على البيوتين المرتبط بالبروتينات المعاد تدويرها في أغشية البلازما باستخدام GSH. يتم تحديد إعادة تدوير البروتين محل الاهتمام من الفرق بين كمية البروتين البيوتينيل بعد علاج GSH الأول والثاني.
تعتمد جدوى فحوصات الخلية الداخلية وإعادة التدوير على عدة عوامل. أولا ، يعد تكوين الطبقات الأحادية للخلية شرطا أساسيا والخلايا التي لا تشكل طبقة أحادية أو تنمو كطبقات متعددة ليست مناسبة للمقايسات الموضحة في هذه المخطوطة. ثانيا ، تعد وفرة البروتين محل الاهتمام على سطح الخلية ووجود جسم مضاد للكشف عن البروتين عن طريق النشاف الغربي أمرا بالغ الأهمية. نوصي بتحديد وفرة الحالة المستقرة للبروتين أولا في محللات الخلية الكاملة (WCL). ثالثا ، يجب اختبار القدرة على بيوتينيل بروتين سطح الخلية المحدد. يرتبط البيوتين ببقايا اللايسين. وبالتالي ، فإن كفاءة البيوتينيل تعتمد جزئيا على عدد بقايا اللايسين في مجال البروتين خارج الخلية. وفقا لذلك ، نوصي بفحص تسلسل البروتين لتحديد ما إذا كانت بقايا اللايسين موجودة في المجال (المجالات) خارج الخلية. قد لا تكون جميع بقايا اللايسين خارج الخلية متاحة بالتساوي للبيوتين بسبب طي البروتين. ومن ثم ، يجب إجراء بيوتينيل البروتين في حالة مستقرة متبوعا بالنشاف الغربي ليس فقط لتحديد وفرة الحالة المستقرة للبروتين على سطح الخلية ولكن أيضا لفحص جدوى المقايسات القائمة على البيوتينيل للبروتين المعني.
< p class = "jove_content">تم تحسين هذا البروتوكول لفحص الالتقام الخلوي وإعادة تدوير CFTR من النوع البري في الخلايا الظهارية لمجرى الهواء البشري CFBE41o- المزروعة على 24 مم يدعم النمو شبه المنفذ في واجهة الهواء والسائل9،10،13-15. يستقطب CFTR إلى مجال الغشاء القمي. وبالتالي ، يصف البروتوكول البيوتينيل لمجال الغشاء القمي. ستكون هناك حاجة إلى البيوتينيل في مجال الغشاء القاعدي الجانبي لدراسة الالتقام الخلوي وإعادة تدوير البروتينات المستقطبة للغشاء القاعدي الجانبي. يحتوي بروتوكول الفحص الداخلي الموصوف في هذه المخطوطة على 6 شروط: بيوتينيل فقط (BT = الوقت صفر ؛ العينة أ) ؛ التحكم في GSH (GSH ؛ العينة ب) ؛ والنقاط الزمنية 2.5 أو 5.0 أو 7.5 أو 10 دقائق (العينات ج ؛ الجدول 1). يمكن تعديل عدد و / أو طول النقاط الزمنية الداخلية في البروتوكول حسب الحاجة.يتم إجراء اختبار إعادة التدوير بعد تحديد النقطة الزمنية التي يصل فيها الالتقام الخلوي للبروتين المعني إلى الحد الأقصى أثناء الزيادة الخطية للإشارة الداخلية. سيتم استخدام هذه النقطة الزمنية لتحميل الحويصلات الداخلية بالبروتين محل الاهتمام قبل تحفيز إعادة التدوير. يعتمد الوقت على البروتين وقد يختلف بين أنواع الخلايا وظروفالثقافة 15. لقد أثبتنا سابقا أن الالتقام الخلوي CFTR وصل إلى الهضبة عند نقطة زمنية مدتها 7.5 دقيقة في الخلايا الظهارية لمجرى الهواء البشري CFBE41o- معبرة بثبات عن CFTR15. على النقيض من ذلك ، وصل الالتقام الخلوي CFTR إلى الهضبة عند 5.0 دقيقة في خلايا HEK293 التي تعبر بثبات عن CFTR13. يحتوي بروتوكول فحص إعادة التدوير الموصوف في هذه المخطوطة على 5 شروط: بيوتينيل فقط (BT = الوقت صفر ؛ العينة أ) ؛ التحكم في GSH (GSH ؛ العينة ب) ؛ 5.0 دقائق من الالتقام الخلوي (Endo ؛ العينة c) ، 5.0 دقائق من الالتقام الخلوي متبوعا بنقاط زمنية لإعادة التدوير لمدة 2.5 أو 5.0 دقيقة (Rec ؛ عينات d ؛ الجدول 2). يمكن تعديل عدد و / أو طول النقاط الزمنية لإعادة التدوير في البروتوكول حسب الحاجة.
البروتوكول
< p class = "jove_title" >1. خلايا البذر
سير العمل: الإيبوتينيل الحيوي لبروتينات سطح الخلية عند 4 درجات مئوية → الاحترار إلى 37 درجة مئوية لتحميل الحويصلات الداخلية ببروتينات البيوتينيل → التبريد إلى 4 درجات مئوية لوقف تهريب الخلايا الداخلية → تقليل رابطة ثاني كبريتيد في البيوتين المرتبط بالبروتينات التي بقيت على سطح الخلية → تحلل الخلية → عزل البيوتينيل (أي. البروتينات الداخلية مع الستربتافيدين أغروز → شطف البروتينات الحيوية من الستربتافيدين أغاروز → الرحلان الكهربائي للبروتين والنشاف الغربي.
- قم بمعالجة مرشحات 24 مم مسبقا مع 10٪ كولاجين I (قم بإعداد 10٪ كولاجين I في الحد الأدنى من الوسط الأساسي (MEM) ، وقم بتغطية سطح الفلتر بالكامل بمحلول الكولاجين ، واحتضن تحت ضوء الأشعة فوق البنفسجية في درجة حرارة الغرفة لمدة 30 دقيقة ، وفي حاضنة زراعة الخلايا عند 37 درجة مئوية لمدة ساعة واحدة ، قم بشفط الكولاجين الزائد بعد الحضانة).
- تحضير وسط زراعة الخلايا (MEM غاز بثاني أكسيد الكربون2 لمدة 20 دقيقة ، مصل بقري للجنين 10٪ (FBS) ، 50 وحدة / مل بنسلين ، 50 وحدة / مل ستربتومايسين ، 2 ملي لتر جلوتامين ، 0.5 ميكروغرام / مل بورومايسين)
- بذور CFBE41o- خلايا على ستة مرشحات 24 مم للالتقام الخلوي وإعادة التدوير ، على التوالي ، عند 1 × 10⁶ / مرشح.
- قم بإزالة الوسط القمي في اليوم التالي للبذر وأطعمه يوميا من الجانب القاعدي الجانبي فقط.
- تتغذى مع المضاد الحيوي السلبي الاختيار قبل 24 ساعة من التجربة. قم بإجراء تجربة في خلايا CFBE41o بعد 6-10 أيام من البذر.
- قم بإعداد مساحة مقعد في الغرفة الباردة. يجب إجراء فحوصات الخلايا الداخلية وإعادة التدوير في الغرفة الباردة باستثناء الحضانة عند 37 درجة مئوية ، ويجب وضع الألواح التي تحتوي على مرشحات 24 مم مباشرة على سطح المقعد في الغرفة الباردة.
- قم بتشغيل الحاضنة 37 درجة مئوية.
- تحضير 500 مل من PBS ++ ، درجة الحموضة 8.2 (محلول ملحي مخزن بالفوسفات من Dulbecco (PBS) ، و 1 ملي مولار كلوريد المغنيسيوم ، و 0.1 ملي كلوريد الكالسيوم ، درجة الحموضة 8.2) واحتفظ ب 250 مل عند 37 درجة مئوية في حاضنة و 250 مل عند 4 درجات مئوية في الغرفة الباردة.
- املأ الآبار في صفيحة 6 آبار باستخدام PBS ++ ، درجة الحموضة 8.2 ، 37 درجة مئوية واحتفظ بها في الحاضنة عند 37 درجة مئوية.
- املأ الآبار في لوحة أخرى مكونة من 6 آبار باستخدام PBS ++ ، درجة الحموضة 8.2 ، 4 درجات مئوية واحتفظ بها في الغرفة الباردة عند 4 درجات مئوية.
- تحضير 100 مل من PBS ++ ، درجة الحموضة 8.6 عند 4 درجات مئوية واحتفظ بها في الغرفة الباردة.
- قم بإعداد البيوتين الذي يحتوي على رابطة ثاني كبريتيد وإستر NHS بتركيز 0.8 مجم / مل في PBS ++ ، درجة الحموضة 8.2 ، 4 درجات مئوية في غضون 30 دقيقة من خطوة البيوتينيل (يجب أن يغطي حجم عازلة البيوتين سطح المرشح بالكامل ؛ نوصي بمرشح 1.5 مل / 24 مم.
- تحضير 100 مل من محلول GSH في الماء ، ودرجة الحموضة 8.6 وتبرد إلى 4 درجات مئوية (75 ملي كلوريد الصوديوم ، و 1 ملي كلوريد المغنيسيوم ، و 0.1 ملي كلوريد الكالسيوم ، و 50 ملي مولار GSH ، و 80 ملي هيدروكسيد الصوديوم ، و 10٪ FBS). يجب إضافة GSH وهيدروكسيد الصوديوم قبل التجربة مباشرة. تحقق من الرقم الهيدروجيني واضبطه على 8.6 ؛ يعمل هيدروكسيد الصوديوم على تحييد مجموعات الكربوكسيل ويزيل البروتونات نصف بقايا السيستين في الجلوتاثيون. يتم تخزينه بقوة عند pKa لهذا السيستين ، وهو 8.64. (قم بإعداد نفس الحجم من المخزن المؤقت GSH لمقايسة إعادة التدوير).
- قم بإعداد 50 مل من محلول التحلل ، درجة الحموضة 8.2 واحتفظ بها عند 4 درجات مئوية (25 ملي مولار HEPES ، درجة الحموضة 8.2 ، 1٪ (حجم / حجم) Triton X-100 ، 10٪ (حجم / حجم) جلسرين) ؛ أضف كوكتيل كامل مثبط البروتياز لكل 50 مل من محلول التحلل وتبرد إلى 4 درجات مئوية ؛ تحقق من الرقم الهيدروجيني بعد إضافة Complete حيث قد يحدث انخفاض في الأس الهيدروجيني.
- قم بإعداد عازلة عينة Laemli مع 100 ملي مولار DTT.
- قم بإعداد 1x Running Buffer (100 مل من 10x Running Buffer ، 900 مل من الماء).
- قم بإعداد 1x ناقل مؤقت وتبرد إلى 4 درجات مئوية (100 مل من 10x نقل المخزن المؤقت بدون كبريتات دوديسيل الصوديوم (SDS) ، 200 مل من الميثانول ، 700 مل من الماء).
3. فحص الخلية
الداخلية < p class = "jove_content" >CFTR يستقطب إلى مجال الغشاء القمي ؛ وبالتالي ، يصف البروتوكول البيوتينيل لمجال الغشاء القمي. ستكون هناك حاجة إلى البيوتينيل في مجال الغشاء القاعدي الوحشي لدراسة الالتقام الخلوي للبروتينات المستقطبة للغشاء القاعدي الجانبي.سير العمل: الإيبوتينيل الحيوي لبروتينات سطح الخلية عند 4 درجات مئوية → الاحترار إلى 37 درجة مئوية لتحميل الحويصلات الداخلية ببروتينات البيوتينيل → التبريد إلى 4 درجات مئوية لوقف تهريب الخلايا الداخلية → تقليل رابطة ثاني كبريتيد في البيوتين المرتبط بالبروتينات التي بقيت على سطح الخلية → تحلل الخلية → عزل البيوتينيل (أي. البروتينات الداخلية مع الستربتافيدين أغروز → شطف البروتينات الحيوية من الستربتافيدين أغاروز → الرحلان الكهربائي للبروتين والنشاف الغربي.
- أحضر اللوحة التي تحتوي على ستة مرشحات مقاس 24 مم (الجدول 1: عينات A-c) من حاضنة زراعة الخلايا وانقلها بسرعة إلى اللوحة المملوءة بالبرودة (4 درجات مئوية) PBS ++ ، درجة الحموضة 8.2 على الجليد.
- دع PBS ++ يفيض السطح القمي لتغطية السطح بأكمله بسرعة. أحضر الطبق على الثلج إلى الغرفة الباردة وضعه على سطح المقعد.
- قم بإزالة PBS ++ بسرعة عن طريق قلب اللوحة رأسا على عقب مع تثبيت المرشحات في مكانها لمنع السقوط. أضف ~ 2 مل من PBS ++ إلى الجانب القمي والقاعدي.
- اغسل المرشحات ب ~ 2 مل من PBS ++ البارد ، درجة الحموضة 8.2 3x لمدة دقيقتين.
- شفط آخر غسلة وأضف 1 مل من PBS ++ ، درجة الحموضة 8.2 إلى الجانب القاعدي. أضف 1.5 مل من مخزن البيوتين المؤقت إلى الجانب القمي واحتضنه في الظلام لمدة 30 دقيقة. تجنب انسكاب المخازن المؤقتة على الجانب المقابل.
- قم بشفط المخزن المؤقت للبيوتين من الجانب القمي واغسله باستخدام PBS ++ ، درجة الحموضة 8.2 3x لمدة دقيقتين.
- ضع جانبا في طبق مختلف مرشحين (الجدول 1: عينتان أ و ب) ، أضف ~ 2 مل من PBS ++ ، درجة الحموضة 8.2 إلى الجانب القمي والقاعدي الجانبي واحتفظ بها في الغرفة الباردة. احتفظ بالمرشحات الأربعة المتبقية في لوحة واحدة (الجدول 1: العينات ج) وأضف ~ 2 مل من PBS ++ درجة الحموضة 8.2 على الجانب القمي والقاعدي الجانبي لكل مرشح. ضع الطبق على الثلج واتركه إلى أعلى المقعد بجوار الحاضنة 37 درجة مئوية.
- انقل المرشحات بسرعة من الثلج إلى اللوحة في حاضنة 37 درجة مئوية مملوءة بدرجة الحموضة PBS ++ الدافئة مسبقا 8.2 واحتضان مرشحا واحدا لكل منهما بدقة لمدة 2.5 أو 5.0 أو 7.5 أو 10 دقائق يغطي السطح الكامل لكل مرشح بدرجة حموضة PBS ++ دافئة 8.2.
- أثناء الحضانة يملأ تماما أربعة آبار في الصفيحة على الجليد مع بارد (4 درجة مئوية) PBS ++ درجة الحموضة 8.2.
- بعد الوقت المحدد للحضانة ، اقلب كل مرشح رأسا على عقب لتصريف PBS ++ الدافئ (37 درجة مئوية) ، الرقم الهيدروجيني 8.2 ونقله إلى اللوحة على الجليد. أضف PBS ++ البارد ، درجة الحموضة 8.2 لتجاوز الجانب القمي وتغطية سطح كل مرشح بالكامل بسرعة.
- بعد نقل المرشحات إلى الثلج ، أحضر الطبق إلى الغرفة الباردة وضعه على سطح المقعد.
- قم بشفط PBS ++ من كلا الجانبين في جميع المرشحات (العينات A-c) واملأ الجانب القاعدي الجانبي ب 1 مل من PBS ++ pH 8.6. أضف 1.5 مل من PBS ++ ، درجة الحموضة 8.6 إلى الجانب القمي من المرشح أ (الجدول 1: العينة أ).
- قلل رابطة ثاني كبريتيد في البيوتين المتصل ببروتينات الغشاء القمي مع عازلة GSH (درجة الحموضة 8.6) في المرشحات b و c (الجدول 1: العينة b و c).
- أضف 1.5 مل من المخزن المؤقت GSH إلى الجانب القمي ، واحتضنه لمدة 15 دقيقة ، وكرر ذلك ست مرات.
- احتفظ ب 1 مل من PBS ++ درجة الحموضة 8.6 على الجانب القاعدي. تجنب انسكاب العازلة إلى الجانب القاعدي الجانبي.
- بعد الانتهاء من الإجراء 3.15 ، اغسل جميع المرشحات (الجدول 1: العينات أ و ب و ج) لفترة وجيزة باستخدام PBS ++ درجة الحموضة 8.2 2x ، وشفط الغسيل من الجانب القمي والقاعدي الوحشي واضبط اللوحة بالمرشحات بزاوية 45 درجة لتصريف كل الغسيل والشفط مرة أخرى.
- ضع اللوحة بشكل مسطح على سطح المقعد وأضف 500 ميكرولتر من محلول التحلل إلى الجانب القمي لكل مرشح واحتضنه في الغرفة الباردة مع الرج لمدة 15 دقيقة.
- اكشط الخلايا مع شرطي مطاطي واجمعها في أنبوب إيبندورف سعة 1.5 مل.
- تدور عند 14,000 × جم لمدة 10 دقائق عند 4 درجات مئوية.
- انقل المواد الطافية إلى أنابيب جديدة سعة 1.5 مل وتخلص من الكريات. تسمى المواد الطافية الآن محللات الخلية الكاملة (WCL).
- أضف 100 ميكرولتر من عينة Laemli مع DTT إلى 50 ميكرولتر من WCL (10٪ من WCL بالكامل) واحتضنه عند 37 درجة مئوية لمدة 30 دقيقة (عينات WCL).
- قم بإعداد 200 ميكرولتر من 50٪ من الستربتافيدين أغاروز وقم بإزالة كل عازلة الغسيل بإبرة 27 جم متصلة بشفط: اغسل 2x مع 1 مل من PBS ، حبات الحبيبات مع دوران النبض بين الغسالات ؛ اغسل مرة واحدة ب 1 مل من محلول التحلل للتوازن قبل إضافة WCL ؛ شفط تجفيف الاغاروز قبل إضافة WCL.
- احتضان WCL المتبقي باستخدام الستربتافيدين agarose المغسول (ارفع الحجم إلى 1.2 مل مع عازلة التحلل وقم بتدويرها في الظلام لمدة ساعتين على الأقل أو O / N في الغرفة الباردة).
- اغسل مجمعات البروتين الستربتافيدين الاغاروز - البيوتينيل ثلاث مرات باستخدام 1 مل من محلول التحلل (لا يحتاج المخزن المؤقت للتحلل إلى احتواء كامل أثناء الغسيل) ، وقم بتدوير النبض في الاغاروز بين الغسالات ، وجفف الشفط بعد الغسيل الأخير.
- احتضان مجمعات البروتين الستربتافيدين الاغاروز - البيوتينيل مع 65 ميكرولتر من عينة Laemli مع DTT عند 85 درجة مئوية لمدة 5 دقائق.
- نبض الدوران وجمع مجمعات البروتين البيوتينيل المملوءة بالحيوية.
- قم بتحميل 7.5٪ من المواد الهلامية مع 40 ميكرولتر من عينات WCL والحجم الكامل للعينات الحيوية (BT) لكل بئر.
- قم بتشغيل المواد الهلامية عند 120 فولت في SDS التي تحتوي على مخزن مؤقت قيد التشغيل.
- نقل البروتينات إلى غشاء PVDF عند 90-95 فولت لمدة 1.5 ساعة (بطول <400 أمبير) في مخزن مؤقت للنقل بدون SDS.
- منع الحليب الخالي من الدسم بنسبة 5٪ في TBS-T 0.1٪ O / N. لطخة كلا الغشاءين بالجسم المضاد أحادي النسيلة للفأر المضاد CFF596 والجسم المضاد الثانوي المترافق HRP المضاد للفأر.
- أداء التلألؤ الكيميائي. قم بإزالة لطخة كلا الغشاءين إما بالجسم المضاد للإزرين أو المضاد للأكتين.
سير العمل: البيوتينيل لبروتينات سطح الخلية عند 4 درجات مئوية → الاحترار إلى 37 درجة مئوية لتحميل الحويصلات الداخلية ببروتينات البيوتينيل → التبريد إلى 4 درجات مئوية لوقف تهريب الخلايا الداخلية → تقليل رابطة ثاني كبريتيد في البيوتين المرتبط بالبروتينات التي بقيت على سطح الخلية → الاحترار إلى 37 درجة مئوية للسماح للبروتينات الحيوية من الحويصلات الداخلية بإعادة التدوير إلى سطح الخلية → التبريد إلى 4 درجات مئوية لوقف الاتجار بالخلايا الداخلية → تقليل رابطة ثاني كبريتيد في البيوتين المرتبط بالبروتينات التي تم إعادة تدويرها على سطح الخلية → تحلل الخلية → عزل البروتينات الحيوية (أي تلك التي لم يتم إعادة تدويرها) مع الستربتافيدين أغاروز → تميذ البروتينات الحيوية من الستربتافيدين أغروز → الرحلان الكهربائي للبروتين والنشاف الغربي.
- قم ببيوتينيل البروتينات السطحية القمية في خمسة مرشحات 24 مم (الجدول 2: عينات من أ إلى د) باتباع الإجراء الموصوف في الفحص الداخلي (القسم 3.1-3.6).
- في الغرفة الباردة ، ضع في لوحة جديدة مرشحين (الجدول 2: عينتان أ و ب) ، أضف ~ 2 مل من PBS ++ ، درجة الحموضة 8.2 إلى الجانب القمي والقاعدي الجانبي واحتفظ بها في الغرفة الباردة.
- احتفظ بالمرشحات الثلاثة المتبقية في لوحة واحدة (الجدول 2: العينات ج و د) مع ~ 2 مل من PBS ++ درجة الحموضة 8.2 على الجانب القمي والقاعدي الجانبي لكل مرشح. ضع اللوحة مع المرشحات c و d على الجليد وضعها على المقعد خارج الحاضنة 37 درجة مئوية.
- انقل المرشحات بسرعة من اللوحة الموجودة على الثلج إلى الطبق المملوء بدرجة الحموضة PBS ++ الدافئة مسبقا 8.2 في الحاضنة واحتفظ بها لمدة 5.0 دقائق.
- أثناء الحضانة ، املأ 3 آبار من اللوحة على الجليد بالبرودة (4 درجات مئوية) PBS ++ درجة الحموضة 8.2.
- انقل المرشحات بعد الحضانة لمدة 5.0 دقيقة عند 37 درجة مئوية إلى اللوحة على الجليد. دع PBS ++ الرقم الهيدروجيني البارد 8.2 يفيض الجانب القمي ويغطي السطح الكامل لكل مرشح بسرعة.
- أحضر الطبق على الثلج إلى الغرفة الباردة وضعه على سطح المقعد.
- قم بشفط PBS ++ درجة الحموضة 8.2 من جانبي المرشحات a و b و c و d وأضف 1 مل من PBS ++ pH 8.6 إلى الجانب الجانبي.
- احتفظ بالمرشحات a و b بشكل منفصل عن المرشحات c و d. أضف 1 مل من PBS ++ pH 8.6 إلى الجانب القمي للمرشحات a و b.
- تقليل رابطة ثاني كبريتيد في البيوتين المتبقية على سطح الخلية في المرشحات b و c و d باتباع الإجراء الموصوف في مقايسة الخلية الداخلية (الخطوات 3.13-3.15).
- اغسل المرشحات b و c و d لفترة وجيزة باستخدام PBS ++ pH 8.2 2x واستبدلها ب PBS ++ و pH 8.2 جديدة. ضع المرشحات d في طبق جديد وأحضر الثلج إلى أعلى المقعد خارج الحاضنة 37 درجة مئوية.
- انقل المرشحات بسرعة من اللوحة الموجودة على الجليد إلى اللوحة في الحاضنة المملوءة بدرجة الحموضة PBS ++ الدافئة مسبقا 8.2 واحتضان مرشحا واحدا لكل منهما بدقة لمدة 2.5 أو 5.0 دقيقة كما هو موضح أعلاه في الخطوات 4.4-4.9.
- قلل رابطة ثاني كبريتيد في البيوتين المتصل ببروتينات الغشاء القمي باستخدام المخزن المؤقت GSH بعد الحضانة الثانية عند 37 درجة مئوية في المرشحات د كما هو موضح في 4.4 باستثناء أنه سيتم إجراء ثلاث حضانات لمدة 15 دقيقة فقط مع المخزن المؤقت GSH خلال هذه الخطوة. احتفظ بالمرشحات a و b و c في PBS ++ درجة الحموضة 8.6 على الجانب القمي والقاعدي الوحشي خلال هذه الخطوة.
- بالنسبة لتحلل الخلية ، والتحاف الغربي ، اتبع الإجراءات الموضحة في مقايسة الخلية الداخلية (الخطوات 3.16-3.31).
النتائج
تمت دراسة عملية الالتقام الخلوي لبروتين CFTR في خلايا CFBE41o- المستزرعة على مرشحات مطلية بالكولاجين (الشكل 1). وتم تصور CFTR المبرتن عن طريق لطخة ويسترن باستخدام جسم مضاد أحادي النسيلة من الفأر، النسيلة 596، وجسم مضاد للفأر مرتبط ببيروكسيداز الفجل باستخدام نظام الكشف عن لطخة ويسترن متبوعاً بالتلألؤ الكيميائي. وأُجري القياس الكمي لـ CFTR المبرتن عن طريق قياس الكثافة الضوئية باستخدام التعريضات ضمن المدى الديناميكي الخطي للفيلم. وحُسب الالتقام الخلوي لـ CFTR بعد طرح قيمة الخلفية، وعُبر عنه كنسبة مئوية من CFTR المبرتن عند كل نقطة زمنية بعد التدفئة إلى 37 ºC مقارنة بكمية CFTR المبرتن الموجودة عند الزمن صفر (الشكلان 1A و 1B). وكان الالتقام الخلوي لـ CFTR خطياً بين 0-7.5 min. واستُبعدت التجارب التي كانت فيها خلفية CFTR >10% بسبب عدم كفاءة المعالجة بـ GSH (الشكل 1D).
تمت دراسة إعادة تدوير CFTR في خلايا HEK293 المستنبتة في أطباق زراعة أنسجة مغلفة بالكولاجين (الشكل 2). كان إدخال CFTR الخلوي خطياً بين 0.0-5.0 دقيقة ووصل إلى أقصى حد عند النقطة الزمنية 5.0 دقيقة (الشكل 2A)، وبناءً على ذلك، تم تحضين الخلايا عند 37 ºC لمدة 5.0 دقيقة لتحميل الحويصلات الإدخالية بالبروتينات المبيوتنة بما في ذلك CFTR (الشكلان 2B و 2C). تم حساب إعادة تدوير CFTR المَدخل خلويًا على أنها الفرق بين كمية CFTR المبيوتن بعد المعالجة الأولى والثانية بـ GSH.
الجدول 1. فحوصات الالتقام الخلوي.
| الالتقام الخلوي | تعديل السلوك (Behavior Therapy) | الجلوتاثيون (GSH) | Endo-2.5 | إندو-5.0 (Endo-5.0) | إندو-7.5 (Endo-7.5) | إندو-10.0 (Endo-10.0) |
| عينة | a | b | جـ2.5 | س5.0 | س7.5 | ج10.0 |
| بيوتين | + | + | + | + | + | + |
| ٣٧ درجة مئوية | (-) | (-) | ٢.٥ دقيقة | ٥.٠ دقائق | ٧,٥ دقيقة | ١٠ دقائق |
| الجلوتاثيون المختزل (GSH) | (-) | + | + | + | + | + |
الجدول 2. مقايسة إعادة التدوير.
| إعادة التدوير | تعديل السلوك (BT) | جلوتاثيون (GSH) | إندو-5 (Endo-5) | ريك-2.5 (Rec-2.5) | Rec-5.0 |
| عينة | a | b | جـ | د2.5 | د5.0 |
| بيوتين | + | + | + | + | + |
| الأولى 37 درجة مئوية | (-) | (-) | ٥ دقائق | ٥ دقائق | ٥ دقائق |
| الجلوتاثيون المختزل الأول (1st GSH) | (-) | (-) | + | + | + |
| 37 درجة مئوية ثانيةً | (-) | (-) | + | + | + |
| الجلوتاثيون المختزل الثاني (2nd GSH) | (-) | (-) | (-) | ٢.٥ دقيقة | ٥ دقائق |
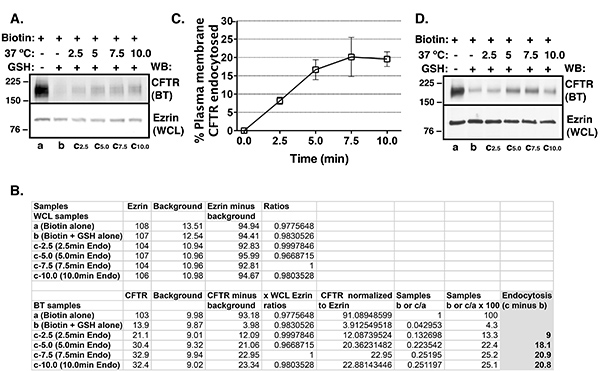
الشكل 1. ملخص لمقاييس الإدخال الخلوي التي أجريت لتحديد عملية إدخال CFTR الخلوية في خلايا CFBE41o- . تم استزراع الخلايا على مرشحات مغلفة بالكولاجين. تظهر لطخات Western ممثلة (A)، وقيم قياس الكثافة الضوئية ممثلة (B)، وملخص للتجارب (C) توضح عملية إدخال CFTR الخلوية كدالة في الزمن. استُخدمت عملية البيوتنلة الانتقائية لسطح الخلية ولطخات Western لتحديد وفرة CFTR في الغشاء البلازمي. تم قياس كمية البروتين عن طريق قياس الكثافة الضوئية باستخدام تعريضات تقع ضمن النطاق الديناميكي الخطي للفيلم. عند الزمن صفر، اعتبرت كمية CFTR المبيوتنلة (BT) بنسبة 100% (الجدول 1: العينة a). عند الزمن صفر، اعتبرت كمية BT CFTR المتبقية بعد المعالجة بـ GSH بمثابة خلفية CFTR (العينة b؛ يرجى ملاحظة أن هذه خلفية تختلف عن تلك التي تم طرحها من جميع العينات كما هو موضح في الشكل 1B). بلغت خلفية CFTR نسبة 6.7 ± 0.9% (المتوسط ± الخطأ المعياري للمتوسط S.E.M.) في التجارب المشمولة في التحليل. تم طرح خلفية CFTR من BT CFTR بعد التدفئة لمدة 2.5 أو 5.0 أو 7.5 أو 10 min عند 37 ºC (العينات c ناقص العينة b). عُبر عن عملية إدخال CFTR الخلوية كنسبة مئوية من CFTR الذي ظل مبيوتنلاً عند النقاط الزمنية 2.5 أو 5.0 أو 7.5 أو 10 min بعد طرح خلفية CFTR. كانت عملية إدخال CFTR الخلوية خطية بين الزمن صفر و 7.5 min. استُخدمت وفرة Ezrin في محلل الخلية الكامل (WCL) كضابط تحميل. 4 تجارب/مجموعة. استُبعدت التجارب التي كانت فيها خلفية CFTR >10% بسبب عدم كفاءة المعالجة بـ GSH (D). بلغت كمية CFTR المبيوتنلة في ضابط GSH (العينة b) في التجربة المستبعدة 14.5%.
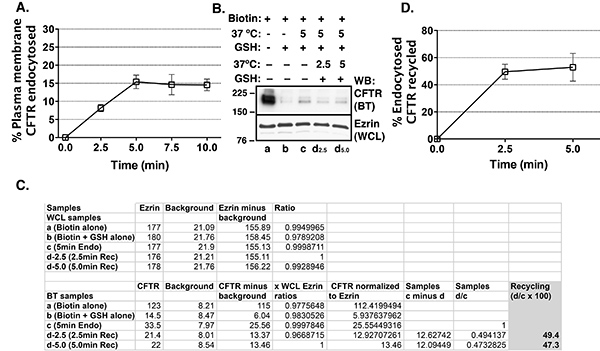
الشكل 2. ملخص لمقايسات الالتقام الخلوي وإعادة التدوير التي أجريت في خلايا HEK293 التي تعبر بشكل مستقر عن CFTR. تم زراعة الخلايا في أطباق زراعة أنسجة مغلفة بالكولاجين. ملخص للبيانات التي توضح أن عملية التقام CFTR كانت خطية بين 0-5 min (A). وبناءً على ذلك، في مقايسات إعادة التدوير، تم تحميل الحويصلات الالتقامية ببروتينات مُوسومة بالبيوتين (BT) بما في ذلك CFTR عن طريق التدفئة عند 37 ºC لمدة 5 min. تم قياس وفرة البروتين عن طريق قياس الكثافة الضوئية باستخدام تعريضات تقع ضمن النطاق الديناميكي الخطي للفيلم. لطخة وسترن ممثلة (B)، وقيم قياس كثافة ممثلة (C)، وملخص للتجارب (D) يوضح إعادة تدوير CFTR كدالة في الزمن. عند الزمن صفر، اعتبرت كمية BT CFTR بنسبة 100% (Table 2: العينة a). وعند الزمن صفر، اعتبرت كمية BT CFTR المتبقية بعد معالجة GSH بمثابة خلفية CFTR (العينة b؛ يرجى ملاحظة أن هذه خلفية مختلفة عن تلك التي تم طرحها من جميع العينات كما هو موضح في C). تم استبعاد التجارب التي كانت فيها خلفية CFTR >10% بسبب عدم كفاءة معالجة GSH. تم تحميل الحويصلات الالتقامية ببروتينات BT بما في ذلك CFTR عن طريق التحضين عند 37 ºC لمدة 5 min تلتها معالجة GSH لفصل البيوتين عن البروتينات المتبقية في الغشاء البلازمي (العينتان c و d). وتمثل كمية BT CFTR بعد التدفئة لمدة 5 min عند 37 ºC متبوعة بمعالجة GSH بروتين CFTR الذي تم التقامه (العينة c). وبعد التدفئة لمدة 5 min عند 37 ºC ومعالجة GSH الأولى، تمت تدفئة الخلايا مرة أخرى عند 37 ºC لمدة 2.5 أو 5.0 min للسماح للبروتينات الملتقمة بإعادة التدوير إلى الغشاء البلازمي، وتم اختزال البيوتين الموجود على CFTR المعاد تدويره بواسطة معالجة GSH الثانية (العينات d). وفي هذه المرحلة، ظل فقط CFTR الذي لم يتم تدويره من الأجسام الداخلية إلى الغشاء البلازمي مُوسوماً بالبيوتين (العينات d). تم حساب إعادة تدوير CFTR كفرق بين BT CFTR بعد معالجة GSH الأولى (العينة c) ومعالجة GSH الثانية عند 2.5 و 5.0 min (العينات d)، وعُبِّر عنها كنسبة مئوية من CFTR الذي تم التقامه. كانت إعادة تدوير CFTR سريعة ووصلت إلى حدها الأقصى بحلول 2.5 min. استُخدمت وفرة Ezrin في مستخلص الخلية الكامل (WCL) كضابط تحميل. 3 تجارب/مجموعة.
المناقشة
يعتمد نجاح المقايسات التماثيل الخلوية وإعادة التدوير على البيوتينيل الفعال ل CFTR في غشاء البلازما. يجب تحضير البيوتين مباشرة قبل الاستخدام لأن جزء NHS-ester يتحلل بسهولة ويصبح غير متفاعل. علاوة على ذلك ، تتطلب خطوة البيوتينيل تحكما صارما في درجة الحرارة عند 4 درجات مئوية لوقف تهريب البروتين. إذا ارتفعت درجة الحرارة أثناء التصنيع البيوتينيلي ، فقد تحدث خطوة أعلى من 4 درجات مئوية ، فقد يحدث تهريب البروتين مما يؤدي إلى البيوتينيل لكميات متغيرة من CFTR.
يعتمد نجاح المقايسات الداخلية وإعادة التدوير أيضا على التقليل الفعال لرابطة ثاني كبريتيد في CFTR البيوتينيل المتبقي في غشاء البلازما. يجب أن تكون كمية CFTR المتبقية البيوتينيل بعد معالجة GSH <10٪ من إجمالي CFTR البيوتينيل في الوقت صفر. يجب استبعاد التجارب التي تكون فيها كمية CFTR البيوتينيل >10٪ في عينة التحكم في GSH. يوضح الشكل 1D تجربة "فاشلة" حيث كانت كمية CFTR البيوتينيل في عنصر تحكم GSH 14.5٪. قد يكون التخفيض غير الكافي لرابطة ثاني كبريتيد في CFTR البيوتينيل ثانويا لضعف التحكم في درجة الحرارة أثناء التجربة. إذا ارتفعت درجة الحرارة أثناء علاج GSH فوق 4 درجات مئوية ، فقد يحدث تهريب للبروتين وسيؤدي التداخل الخلوي المضاد إلى CFTR البيوتينيل نتيجة الزيادة غير المقصودة في درجة الحرارة إلى زيادة CFTR في الخلفية. بدلا من ذلك ، قد ينتج الانخفاض غير الكافي في رابطة ثاني كبريتيد في CFTR البيوتينيل عن انخفاض عمر النصف ل GSH في محلول مائي ناتج عن الأكسدة في الهواء أو من درجة الحموضة غير المناسبة. كما تم تحديده سابقا ، يظل GSH مخزنا بقوة عند الرقم الهيدروجيني 8.64. في تجربتنا ، أدت ستة علاجات لمدة 15 دقيقة باستخدام مخزن GSH المؤقت إلى تقليل رابطة ثاني كبريتيد بأكثر من 90٪ ، بكفاءة أكبر من علاج واحد لمدة 90 دقيقة.
تتطلب ثقافة الخلايا اهتماما خاصا. يجب أن يصل البيوتين إلى مجال غشاء البلازما في الخلايا السليمة حيث يتم التعبير عن البروتين محل الاهتمام. لقد استخدمنا فحوصات الالتقام الخلوي وإعادة التدوير القائمة على البيوتينيل لدراسة الالتقام الخلوي وإعادة تدوير CFTR المعبر عنها في مجال الغشاء القمي. يمكن استخدام هذه المقايسات أيضا لدراسة الاتجار الداخلي للبروتينات الموجودة في مجال الغشاء القاعدي الجانبي في الخلايا المزروعة على دعامات النمو شبه المنفذة. الخلايا الظهارية التي تشكل طبقات متعددة ليست مناسبة لهذه المقايسات لأن المخازن المؤقتة للبيوتين و GSH ستصل فقط إلى الطبقة العليا من الخلايا للكشف عن بروتينات الغشاء القمي أو الطبقة السفلية للكشف عن بروتينات الغشاء القاعدي. قد تكون الخلايا الظهارية المزروعة على البلاستيك أكثر عرضة للغسيل أثناء الفحوصات. سيؤدي الفقدان العشوائي للخلايا أثناء التجربة إلى الإضرار بالنتائج. نوصي بالفحص الدوري لسلامة الطبقة الأحادية تحت المجهر في التجارب حيث يتم زراعة الخلايا في أطباق زراعة الأنسجة البلاستيكية. قد يؤدي طلاء أطباق زراعة الأنسجة بالكولاجين إلى زيادة التصاق الخلايا.
يجب اختبار عينات البروتين البيوتينيل بشكل روتيني بحثا عن التلوث بالبروتينات داخل الخلايا. قد يشير الكشف عن البروتينات داخل الخلايا في عينات البروتين البيوتينيل إلى عدم كفاية الغسيل لمجمعات البروتين الستربتافيدين agarose - البيوتينيل بعد الحضانة باستخدام WCL. وبالتالي ، فإن الخطوة الأولى هي زيادة كفاءة الغسيل. علاوة على ذلك ، فإن وجود خلايا ذات سلامة غشاء البلازما المخترقة سيسمح بوصول البيوتين إلى البروتينات داخل الخلايا. يمكن استخدام النشاف الغربي للبروتين الذي يتم التعبير عنه حصريا في حجرة داخل الخلايا مثل الشبكة الإندوبلازمية للكشف عن البيوتينيل للبروتينات داخل الخلايا. بدلا من ذلك ، يمكن استخدام بروتينات الهيكل الخلوي مثل الأكتين أو الإزرين لاختبار تلوث عينات البروتين البيوتينيل بالبروتينات داخل الخلايا. قد تشكل بروتينات الهيكل الخلوي مجمعات مع بروتينات عبر الغشاء ويمكن اكتشاف كميات صغيرة من بروتينات الهيكل الخلوي في عينات البروتين البيوتينيل. ومع ذلك ، في تجربتنا ، فإن نسبة البيوتينيل / WCL ezrin أو الأكتين هي <1: 1,000 ، وبالتالي ، فإن هذه البروتينات مناسبة لتحديد سلامة غشاء الخلية في المقايسات القائمة على البيوتينيل.
يمكن إخماد تفاعل البيوتينيل باستخدام الجلايسين أو تريس لإزالة كاشف البيوتينيل غير المتفاعل كما ورد سابقا17. علاوة على ذلك ، يمكن إخماد GSH باستخدام يودو أسيتاميد6. من واقع خبرتنا ، يمكن إزالة كاشف البيوتينيل غير المتفاعل و GSH بكفاءة عن طريق الغسيل اللطيف باستخدام PBS ++ دون استخدام كواشف التبريد.
يجب تحديد اختيار الستربتافيدين مقابل نيوترافيدين أغاروز لعزل مجمعات البروتين البيوتينيل على أساس كل حالة على حدة. في تجربتنا ، يوفر الستريبتافيدين أغاروز عزلا فعالا لمجمعات البروتين البيوتينيل مع الحد الأدنى من الارتباط بالبروتينات غير البيوتينيل ، على عكس النيوترافيدين agarose حيث يحدث الارتباط غير المحدد عند مستويات تتداخل مع نتائج الفحص (ملاحظة غير منشورة).
الإفصاحات
يعلن المؤلفون أنه ليس لديهم مصالح مالية متنافسة.
شكر وتقدير
تم دعم هذه الدراسة من قبل منح المعاهد الوطنية الأمريكية للصحة (NIH) R01HL090767 و R01HL090767-02S1 و P30 DK06010 ، ومؤسسة NepCure التي أنشأت منحة المحقق New Direction ، (إلى AS-U.).
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| CFBE41o- مرجع الخلايا | 10،11،13،14،15 < / sup> | ||
| خلايا | 13< / sup> | ||
| الحد الأدنى من الوسط الأساسي (MEM) | Gibco | 11095 | |
| L-Glutamine | Cellgro | 25-005-CL | |
| البنسلين | سيجما | P0781 | |
| الستربتومايسين | |||
| Puromycin | InvivoGen | ant-pr-1 | |
| PureCol كولاجين البقري الحل النوع الأول | من | ||
| s محلول ملحي مخزن بالفوسفات (PBS) | جيبكو | 14190 | |
| كلوريد الكالسيوم | سيجما | C3306 | |
| كلوريد المغنيسيوم | سيجما | M2670 | |
| كلوريد الصوديوم | سيجما | S3014 | |
| EZLink Sulfo-NHS-SS-Biotin | بيرس | 21331 | |
| L-Glutathione مخفضة (GSH) | Sigma | G6529 | |
| راتنج ستربتافيدين أغاروز | ثيرمو فيشر | 20353 | |
| هيدروكسيد الصوديوم | سيجما | 224165 | |
| مصل الأبقار الجنينية | Gemini Bioscience | 100-106 | |
| Milli-Q Water | Millipore | Advantage System | |
| HEPES | Sigma | H3375 | |
| Triton X-100 | Bio Rad | 161-0407 | |
| Glycerol | Fisher Scientific | G33 | |
| Laemli عينة عازلة | BioRad | 161-0737 | |
| Dithiothreitol (DTT) | سيجما | 646563 | |
| البروتياز الكامل كوكتيل مثبط | Roche | 1697498 | |
| Streptavidin | Beads Thermo Scientific | 20353 | |
| Chemiluminescence | Perkin Elmer | NEL104001EA | |
| الكواشف | |||
| الجاف الخالي من الدسم | قرنفل | N / A | |
| Tween-20 | BioRad | 170-6539 | |
| Tris-buffered Saline (TBS) | BioRad | 170-6435 | |
| ألبومين مصل الأبقار (BSA) | Gibco | 15120 | |
| الابتدائي والثانوي | |||
| الأجسام المضادة للفأر الغربي النشاف | |||
| أحادي النسيلة المضاد ل CFTR 596 | Cystic Fibrosis Foundation Therapeutics، Inc., Chapel Hill, NC | ||
| Anti-ezrin | |||
| تشغيل المخزن المؤقت 10x | BioRad | 161-0772 | |
| نقل المخزن المؤقت 10x ( بدون SDS) | BioRad | 161-0771 | |
| الميثانول | فيشر | A4129 | |
| كولتر عداد | بيكمان كولتر | Z1Coulter عداد | |
| الخلية القياسية ؛ معدات | |||
| غطاء مزرعة الخلية مع ضوء | |||
| قوارير الأسهم مرشحات | |||
| Transwell - 24 مم | Corning | 3412 | |
| أطباق | |||
| مقياس | |||
| 15 مل و 50 مل أنابيب | |||
| مخروطية الشكل1.5 مل أنابيب | |||
| شرطي | |||
| دلاء ثلج غرفة | |||
| وثلج | |||
| 27 جم إبر | |||
| 37 & ordm ؛ C حاضنة | |||
| ترمومتر | |||
| طرد | |||
| منضدة جهاز طرد | |||
| معدات | |||
| الكهربائي المطور | |||
| فيلم | GE Amersham | 28-9068-36 | |
| غشاء | PVDFبرنامج Millipore | IPVH00010 | |
| ImageJ | المعاهد الوطنية للصحة |
المراجع
- Sigismund, S., et al. Endocytosis and signaling: cell logistics shape the eukaryotic cell plan. Physiol. Rev. 92, 273(2012).
- Andersson, E. R. The role of endocytosis in activating and regulating signal transduction. Cell Mol. Life Sci. 69, 1755(2012).
- Grant, B. D., Donaldson, J. G. Pathways and mechanisms of endocytic recycling. Nat. Rev. Mol. Cell Biol. 10, 597(2009).
- Bretscher, M. S., Lutter, R. A new method for detecting endocytosed proteins. EMBO J. 7, 4087(1988).
- Watts, C., Davidson, H. W. Endocytosis and recycling of specific antigen by human B cell lines. EMBO J. 7, 1937(1988).
- Graeve, L., Drickamer, K., Rodriguez-Boulan, E. Polarized endocytosis by Madin-Darby canine kidney cells transfected with functional chicken liver glycoprotein receptor. J. Cell Biol. 109, 2809(1989).
- Garza, L. A., Birnbaum, M. J. Insulin-responsive aminopeptidase trafficking in 3T3-L1 adipocytes. J. Biol. Chem. 275, 2560(2000).
- Le, T. L., Joseph, S. R., Yap, A. S., Stow, J. L. Protein kinase C regulates endocytosis and recycling of E-cadherin. Am. J. Physiol. Cell Physiol. 283, C489(2002).
- Swiatecka-Urban, A., et al. PDZ-domain interaction controls the endocytic recycling of the cystic fibrosis transmembrane conductance regulator. J. Biol. Chem. 277, 40099(2002).
- Swiatecka-Urban, A., et al. Myosin VI Regulates Endocytosis of the Cystic Fibrosis Transmembrane Conductance Regulator. J. Biol. Chem. 279, 38025(2004).
- Swiatecka-Urban, A., et al. The short apical membrane half-life of rescued uF508-CFTR results from accelerated endocytosis uF508-CFTR in polarized human airway epithelial cells. J. Biol. Chem. 280, 36762(2005).
- Swiatecka-Urban, A., et al. Pseudomonas aeruginosa inhibits endocytic recycling of CFTR in polarized human airway epithelial cells. Am. J. Physiol. Cell. Physiol. 290, C862(2006).
- Swiatecka-Urban, A., et al. Myosin Vb is required for trafficking of the cystic fibrosis transmembrane conductance regulator in Rab11a-specific apical recycling endosomes in polarized human airway epithelial cells. J. Biol. Chem. 282, 23725(2007).
- Ye, S., et al. c-Cbl facilitates endocytosis and lysosomal degradation of cystic fibrosis transmembrane conductance regulator in human airway epithelial cells. J. Biol. Chem. 285, 27008(2010).
- Cihil, K. M., et al. Disabled-2 protein facilitates assembly polypeptide-2-independent recruitment of cystic fibrosis transmembrane conductance regulator to endocytic vesicles in polarized human airway epithelial cells. J. Biol. Chem. 287, 15087(2012).
- MacEachran, D. P., et al. The Pseudomonas aeruginosa secreted protein PA2934 decreases apical membrane expression of the cystic fibrosis transmembrane conductance regulator. Infect. Immun. 75, 3902(2007).
- Pagano, A., Crottet, P., Prescianotto-Baschong, C., Spiess, M. In vitro formation of recycling vesicles from endosomes requires adaptor protein-1/clathrin and is regulated by rab4 and the connector rabaptin-5. Mol. Biol. Cell. 15, 4990(2004).
إعادة الطباعة والأذونات
