يعد تسجيل تيارات Ca2+ في غشاء وجه الإطلاق قبل المشبكي مفتاحا لفهم دقيق لدخول Ca2+ وإطلاق الناقل العصبي. نقدم تفككا حادا للحبل الشوكي اللامبري الذي ينتج محاور شبكية نخاعية معزولة وظيفية ، مما يسمح بالتسجيل مباشرة من غشاء الوجه المطلق لأطراف ما قبل المشبك الفردية.
يتطلب اشتراك JoVE لعرض هذا المحتوى. تسجيل الدخول أو ابدأ نسخة تجريبية مجانية
مقالة منهجية
التفكك الحاد من الجلكى الشبكي المحاوير لتمكين تسجيل من الإصدار الوجه غشاء من محطات قبل المشبكي الوظيفية الفردية
في هذه المقالة
ملخص
الملخص
انتقال متشابك هو عملية سريعة للغاية. إمكانات العمل مدفوعة تدفق الكالسيوم 2+ في محطة قبل المشبكي، من خلال قنوات الكالسيوم الجهد بوابات (VGCCs) الموجود في غشاء الوجه الإفراج عنهم، هو على الزناد لانصهار حويصلة والافراج عن العصبي. حاسمة بالنسبة لسرعة انتقال متشابك هو التزامن المكاني والزمني بين وصول إمكانات العمل، VGCCs وآلية إطلاق ناقل عصبي. القدرة على تسجيل مباشرة الكالسيوم 2+ التيارات من الغشاء الإفراج وجه محطات قبل المشبكي الفردية أمر حتمي لفهم دقيق للعلاقة بين الكالسيوم قبل المشبكي 2+ وإطلاق ناقل عصبي. الوصول إلى غشاء قبل المشبكي الإفراج الوجه لتسجيل الكهربية غير متوفر في معظم الاستعدادات والكالسيوم قبل المشبكي 2+ تميزت الدخول باستخدام تقنيات التصوير وmeasureme الحالي العيانيةاليلة - التقنيات التي ليس لديها قرار زمني يكفي لتصور دخول الكالسيوم 2+. لم يكن توصيف VGCCs مباشرة في محطات قبل المشبكي واحدة ممكن في نقاط الاشتباك العصبي المركزي وتمت حتى الآن تحققت بنجاح إلا في الكأس من نوع المشبك من العقدة الهدبية وفرخ في كؤوس زهرية الفئران. عالجنا هذه المشكلة بنجاح في المشبك الشبكي العملاق من الحبل الشوكي الجلكى من خلال تطوير إعداد فصلها تماما من الحبل الشوكي يمكن أن ينتج محاور الشبكي المعزولة مع محطات قبل المشبكي وظيفية خالية من الهياكل بعد المشبكي. يمكننا تسمية fluorescently وتحديد محطات قبل المشبكي الفردية واستهدافهم للتسجيل. باستخدام هذا الإعداد، واتسمت VGCCs مباشرة في وجه الافراج عن محطات قبل المشبكي الفردية باستخدام المناعية والكهربية النهج. وقد سجلت كاليفورنيا 2+ التيارات مباشرة في إطلاق الوجه غشاء سمحطات قبل المشبكي فردية جمعة، أول مثل هذا التسجيل التي يتعين الاضطلاع بها في نقاط الاشتباك العصبي المركزي.
المقدمة
انتقال متشابك هو عملية سريعة ودقيقة للغاية. العمل غزو محتمل من المحطة قبل المشبكي يؤدي إلى فتح VGCCs تقع في الغشاء الإفراج جهه، والزيادة الناتجة في كاليفورنيا قبل المشبكي 2+ بوصفها الزناد عن الانصهار الحويصلة والعصبي الإفراج 1. كل هذه الخطوات تحدث داخل مئات ميكروثانية 2، وبالتالي تتطلب اقتران مكاني ضيق من VGCCs إلى حويصلة الانصهار الآلات 3. وقد تميزت الكالسيوم قبل المشبكي 2+ تدفقات المقام الأول من خلال النهج التصوير باستخدام الأصباغ الكالسيوم 2+ الحساسة 4. دمج الكالسيوم 2+ المخازن المؤقتة التي تعدل الكالسيوم في الخلايا العصبية قبل المشبكي 2+ وقد استخدم لتوصيف غير مباشر العلاقة بين الكالسيوم والنقل العصبي قبل المشبكي 3. بالإضافة إلى ذلك، تحوير قبل المشبكي مجانا كا 2+ تركيز الكالسيوم عن طريق uncaging 2+ 5 أو تسجيل macroscopiج كا استخدمت 2+ التيارات جنبا إلى جنب مع التدابير الانصهار الحويصلة و / أو الإطلاق. مثل قياسات السعة 2 6 أو بعد المشبكي الردود على معالجة نفس السؤال. ومع ذلك، تميز كا 2+ التيارات مباشرة في وجه الإفراج عنهم، وقسم متخصص للغشاء قبل المشبكي حيث تتم ترجمة الاستقطاب في غشاء الكالسيوم 2+ التيارات اثار الانصهار حويصلة متشابك وإطلاق ناقل عصبي، هو جزء لا يتجزأ من الحصول على قياس دقيق لكا 2+ شرط حويصلة متشابك الانصهار. وبالإضافة إلى ذلك، فإن القدرة على تميز مباشرة الكالسيوم 2+ التيارات في محطات قبل المشبكي فردية، إلى جانب قياسات دقيقة في وقت واحد الانصهار حويصلة والافراج يسمح التوضيح الدقيق للعلاقة بين توقيت مدار الساعة من إمكانات العمل، قبل المشبكي الكالسيوم 2+ الحالية، الانصهار حويصلة والافراج عنهم. الوصول إلى غشاء الإفراج الوجهغير متوفرة في معظم محطات قبل المشبكي المقرر ان تغلق بدل من التشعبات بعد المشبكي. وكانت هذه صعوبة الوصول عقبة رئيسية في توصيف VGCCs لأنه يمنع القياسات المباشرة الحالية في محطات قبل المشبكي فردية. وحتى الآن لم توصيف المباشر من قبل المشبكي الكالسيوم 2+ التيارات في محطات قبل المشبكي فردية ممكن في نقاط الاشتباك العصبي المركزي، وقد تتحقق إلا في اثنين من نوع كأسي محطات قبل المشبكي. الكأس من نوع المشبك من فرخ العقدة الهدبية 7-10 والفئران الكؤوس 11،12. في جميع محطات قبل المشبكي الأخرى بما في ذلك المشبك الشبكي العملاق في الجلكى الحبل الشوكي 13، وعدم الوصول إلى غشاء قبل المشبكي الإفراج الوجه وقد استلزم استخدام الأساليب غير المباشرة مثل التصوير الكالسيوم 2+ لدراسة الكالسيوم قبل المشبكي 2+ التدفقات.
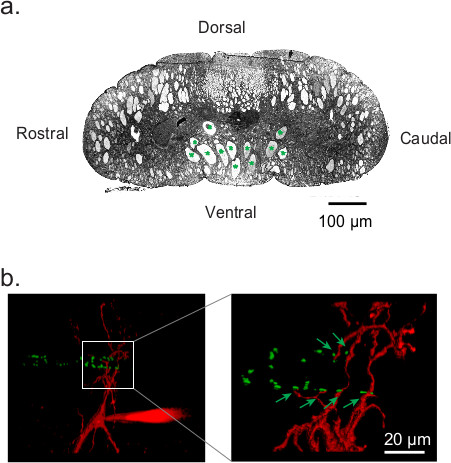 الرقم 1. الجلكى المشبك الشبكي العملاق. (أ) عبر قسم من الجلكى الحبل الشوكي مما يدل توجيه ظهراني البطني. وتتميز محاور الشبكي مع أستريكس الأخضر (ب) إعادة الإعمار 3-D من المشبك الشبكي في النخاع الشوكي الجلكى تظهر المحوار قبل المشبكي الشبكي جعل العديد أون الاتصالات بسنت (تميزت السهام الخضراء) على عصبون بعد المشبكي 13. وقد وصفت محطات قبل المشبكي مع اليكسا فلور 488 هيدرازيد phalloidin مترافق (الأخضر)، بينما يتم شغل عصبون بعد المشبكي مع اليكسا فلور 568 هيدرازيد (الحمراء).
محاور الشبكي الجلكى العملاقة، وتقع في المنطقة البطنية من النخاع الشوكي مواز للمحور منقاري الذيلية-1A الشكل، شكل متعددة أون الاتصالات متشابك بسنت على الخلايا العصبية للالشوكي القرن البطني الشكل 1B 14 13. وقد سجلت العيانية خلية كاملة الكالسيوم 2+ التيارات من محاور الشبكي في النخاع الشوكي سليمة 13،15. ومع ذلك، محاولات عمياء السابقة في القياس المباشر من الكالسيوم أثبتت 2+ التيارات في محاور الشبكي في الجلكى الحبل الشوكي سليمة باستخدام الخلية المرفقة تقنية المشبك التصحيح الفاشل 13 بسبب عدم وجود الوصول إلى غشاء قبل المشبكي الإفراج الوجه بسبب العمليات بعد المشبكي معارضة الشكل 1B. غشاء الإفراج وجه أحرز في السابق الوصول إليها عن طريق إزالة الخلايا العصبية بعد المشبكي 11، اضطراب الميكانيكية المشبك قبل تسجيل 12 أو المعالجة الأنزيمية إلى جانب التفكك الميكانيكية 16. نظرا لمنظمة معقدة من الحبل الشوكي، فإنه يكون من الصعب للغاية تحديد الخلايا العصبية بعد المشبكي وسحب ذلك ميكانيكيا أو التشويش عشرالبريد المشبك. ومن هنا، قررنا استخدام المعالجة الأنزيمية 17 تليها التفكك الميكانيكية.
باستخدام هذا النهج، قمنا بتطوير وإعداد فصلها تماما من الحبل الشوكي الجلكى أن ينتج محاور الشبكي منعزلة قابلة للحياة مع محطات قبل المشبكي وظيفية خالية من أي عمليات بعد المشبكي، وبالتالي توفير وصول غير مقيد إلى محطات قبل المشبكي الفردية. بالتزامن مع معيار مقلوب المجهر والتصوير مضان، وتمكننا من تحديد واستهداف محطات قبل المشبكي fluorescently التي تم تحديدها الفردية، مع ماصة التصحيح يحتوي على محلول التسجيل الذي يعزل الكالسيوم 2+ التيارات والشكل الشكل 4C 4D، لتسجيل باستخدام الخلوي تعلق تقنية الجهد المشبك. وقد سجلت كاليفورنيا 2+ التيارات مباشرة في الغشاء قبل المشبكي الإفراج مواجهة فردية محطات قبل المشبكي الشكل 4F. هذا هو الهامة فياختراق الإقليم الشمالي في مجال انتقال متشابك لأنه هو الأول من نوعه التسجيل التي يتعين الاضطلاع بها في نقاط الاشتباك العصبي المركزي.
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
البروتوكول
1. إعداد بولي-D-يسين هيدروبروميد
- إعداد 1 ملغ / مل بولي-D-يسين هيدروبروميد في 0.1 م العازلة بورات (الرقم الهيدروجيني 8.5).
- قسامة وتخزينها في -20 درجة مئوية.
2. طلاء بولي يسين من Coverslips
ملاحظة: إجراء جميع الخطوات التنظيف والطلاء في غرفة تدفق الصفحي.
- coverslips مكان في طبق بتري تحتوي على 1 حمض الهيدروكلوريك N (حمض الهيدروكلوريك) لمدة 2 ساعة.
- نضح كل حمض الهيدروكلوريك وشطف مع 70٪ إيثانول (ETOH) 2-3x.
- ترك في ETOH 70٪ لمدة 1 ساعة.
- نضح عن 70٪ ETOH وشطف مع 100٪ ETOH 2-3x.
- ترك في 100٪ ETOH لمدة 2 ساعة. نضح كل ETOH.
- وصمة عار الجافة مع ورق الترشيح والهواء الجاف لبضع ثوان.
- مكان O / N في 1 ملغ / مل حل بولي يسين.
- شطف coverslips اليوم التالي مع ميليبور 4-5x المياه.
- الهواء الجاف بولي يسين المغلفة coverslips على بكرات زجاجية في طبق بيتري نظيفة.
- لimmunohistochemistrذ، استخدم 35 × 10 مم طبق بيتري الأغطية. إعداد sylgard (polydimethylsilioxane، PDMS) اصطف أطباق بصب PDMS (المطاط الصناعي وكيل علاج 10: 1 بالوزن) في طبق لسمك 0.3 سم والسماح لضبط عند 30 درجة CO / N. مرة واحدة وقد وضعت هذا، وقطع 2 سم في 1 سم أقحم في PDMS. نظيفة ومعطف أقحم مع بولي يسين باتباع نفس الخطوات المذكورة أعلاه لcoverslips.
- مخزن بولي يسين coverslips المغلفة وأطباق غطت داخل غرفة التدفق الصفحي حتى استخدام (تصل إلى 2 أسابيع، ولكن تحقيق أفضل النتائج لاصقة من خلال إعداد دوري كل 3-4 أيام).
- إعداد كتلة PDMS، يعلقون الحبل الشوكي في تقطيع اللحم والأنسجة تهتز. مزيج المرنة A و B إلاستومر 1: 1 بالوزن. تصب في 100 × 15 مم طبق بتري والسماح لضبط O / N عند 30 درجة مئوية. قطع قطعة مستطيلة من نظام تطوير إدارة الأداء والغراء على قاعدة لوحة التقطيع باستخدام الغراء الايبوكسي. السماح للالغراء لتعيين تحديد PDMS في مكان وشريحة رقيقة أقسام متعددة من السطح للحصول على شقةسطح لدبوس الأنسجة جرا.
3. الحاد التفكك لالجلكى الحبل الشوكي إلى العائد المعزولة الشبكي المحاوير
- تخدير وammoecoete أو الكبار الجلكى (Petromyzon مارينوس) مع methanesulphonate تريكين (MS-222؛ 100 ملغم / لتر). إضافة مخدر في الماء، في كوب من البلاستيك غطاء من تغطيتها، تحتوي على الجلكى لا بد من التضحية.
- قطع رأس الجلكى في البارد (4 ° C) حل رينغر من التشكيل التالي (مم): 130 كلوريد الصوديوم، و 2.1 بوكل، 2.6 CaCl 2، 1.8 MgCl 2، 4 HEPES، 4 سكر العنب (الرقم الهيدروجيني 7.6، الأسمولية 270 الميلي أسمول) وإزالة الجسم عضلات جدار لفضح السطح الظهري للحبل الشوكي.
- إزالة السحاءة primitiva من السطح الظهري للحبل الشوكي باستخدام ملقط غرامة. لا تقم بإزالة بطني السحاءة primitiva في هذه المرحلة.
- قطع النخاع الشوكي في 1 سم قطع طويلة.
- دبوس قطعة الحبل الشوكي باستخدام دبابيس الحشرات الجميلة، الجانب الظهري متجهة لأعلى، على PDMS تشريح قاعدة جيش التحرير الشعبى الصينى واصطفالشركة المصرية للاتصالات (انظر 2.12) في تقطيع اللحم والأنسجة تهتز غرفة تحتوي على حل رينغر الجليد الباردة.
- إزالة الجزء الأوسط من العمود الظهري في النخاع الشوكي تشريح على طول محور rostro-الذيلية مع شفرة من قبل، تاركا وراءه أقسام العمود الظهري سليمة على منقاري والذيلية تنتهي لتكون بمثابة يعالج أثناء عملية التفكك الشكل 2A و 2B الشكل. استخدام أبطأ سرعة الإعداد الذي يسمح تشريح وإعداد عمق التي تزيل فقط العمود الظهري ترك العمود الأساسي محوار الشبكي الشكل 2B غير التالفة.
- احتضان قطع الحبل الشوكي شرائح في RT لمدة 45 دقيقة في مزيج من 1 ملغ / البروتيني مل (النوع الرابع عشر من المتسلسلة غريس) و 1 ملغ / كولاجيناز مل أعد (نوع IA من كلوستريديوم الحالة للنسج) في محلول رينغر (مقتبس من ش Manira وBussières ، 1997 17).
- قطع في الحبل الشوكي دبوس المعالجة انزيم باستخدام دبابيس الجميلة في PDMS اصطف طبق بتري حساب المشتركining الباردة (4 ° C) حل رينغر.
- إزالة بطني السحاءة primitiva مع ملقط غرامة.
- قطع مساحات الجانبية للنخاع الشوكي بشفرة المشرط في منتصف الجزء الظهري شرائح ترك العمود المركزي من المحاور الشبكي سليمة في الحبل الشوكي الشكل 2D.
- وضع قطرة من زيت الغمر على العدسة.
- وضع ساترة بولي يسين المغلفة (الشكل 3A، اكبر قطعة، مستطيل أحمر) في الفتحة من غرفة تسجيل الشكل 3 وتطبيق الشحوم فراغ لجميع الحواف (الفضاء بين المستطيلات الحمراء والزرقاء في الشكل 3A، لتسهيل ختم. برغي أعلى في مكانها. وضع الغرفة في أقحم على منصة التسجيل.
- إضافة حل رينغر إلى غرفة تسجيل باستخدام ماصة باستور.
- توصيل أنابيب تدفق زجاجة تحتوي على محلول مضاد الضغط على جهاز التبريد الحرارية إدخال الأنبوب. ربط OUTPالتحرير أنابيب للجهاز التبريد الحرارية إلى نهاية الإدخال من سترة التبريد الخارجي ونهاية الإخراج إلى 3B خزان الشكل.
- وضع قطعة واحدة من الحبل الشوكي في وقت في غرفة تسجيل وفصل بلطف الحبل الشوكي الحفاظ عليه على طول ساترة في جميع الأوقات باستخدام ملقط تفلون المغلفة حتى محاور هي معزولة 2E الشكل والشكل 2F.
- جعل درجة حرارة المحلول تسجيل إلى 10 ° C بتمرير الضغط (غاز النيتروجين يتم الضغط في زجاجة) حل التجمد (بالنزوح)، عن طريق جهاز التبريد الحرارية، من خلال سترة التبريد الخارجية لل3B تسجيل غرفة الشكل.
- تسمح محاور لاسترداد لمدة 1 ساعة آخر التفكك في 10 درجة مئوية.
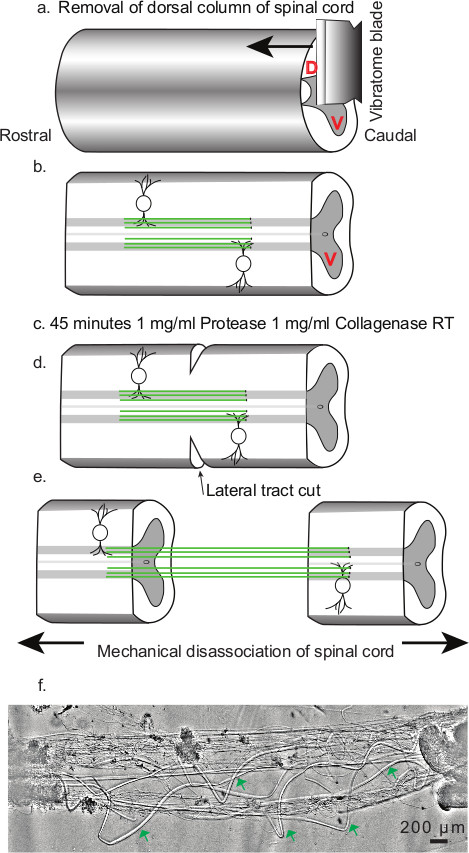
(أ) إزالة العمود الظهري. السهم يشير إلى اتجاه تشريح الأنسجة. يتم وضع علامة القرون الظهرية من الأبجدية D (لون الخط الأحمر)، في حين أن القرون البطنية بواسطة الأبجدية V (لون الخط الأحمر). (ب) إزالة عمود ظهري في الجزء المركزي من الحبل الشوكي تعريض محاور الشبكي (خطوط خضراء ). وتتميز قرون البطنية، التي لا تزال على حالها بعد عملية التقطيع، من خلال الأبجدية V (لون الخط الأحمر). (ج) العلاج 45 دقيقة مع البروتيني الانزيمات وكولاجيناز كوكتيل (1 ملغ / مل). (د) قطع مساحات الجانبية من الحبل الشوكي. مشيرا إلى موقف والتوجيه ومدى خفض الجانبي. (ه) التفكك الميكانيكية من الحبل الشوكي. السهام تشير موقف ملقط واتجاه القوة خلال فصل التفكك. (و) Representatiلقد مثال فصل إعداد محوار الشبكي. الأسهم الخضراء علامة مناطق محاور الشبكي فصلها تماما من دون أي عمليات بعد المشبكي.
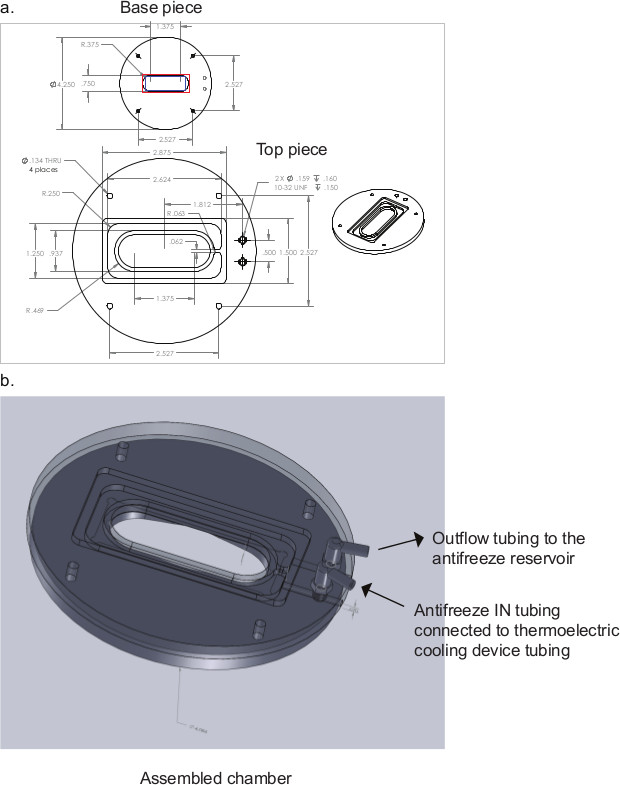
الرقم 3. تخطيطي لغرفة تسجيل للتجارب الكهربية. الأبعاد المقدمة هي في بوصة. مستطيل أحمر هو مبين في الرسم البياني basepiece (أ) يشير المواقع من ساترة في الأخدود ساترة في basepiece. المنطقة بين المستطيل الأحمر والأزرق، كما هو موضح في الرسم البياني basepiece (أ) حيث يتم تطبيق الشحوم فراغ عالية. (ب) يبين غرفة تسجيل تجميعها.
4. وصفها وتحديد محطات قبل المشبكي مع وزير الخارجية 1-43
- تسمية محطات قبل المشبكي، من خلال دمج FM 1-43 في الخامسesicles خلال متشابك EXO-K خلال الإلتقام عالية + الاستقطاب. يروي إعداد مع 5 ميكرومتر FM 1-43 (في 5 مل من محلول رينغر تحتوي على 30 ملي بوكل).
- يروي إعداد مع 1 ملغ / مل Advasep-7 (في 5 مل من محلول رينغر) لإزالة الصبغة الزائدة FM) 18.
- يروي التحضير مع حل رينغر لمدة 15 دقيقة لتبييض أي صبغة remant وAdvasep.
- صورة مع 100 X الغمر النفط عدسة (NA 1.25) على مجهر مضان مقلوب، جنبا إلى جنب مع كاميرا CCD الرقمية والحصول على الصور برنامج Micromanager، باستخدام بروتوكولات التصوير مضان القياسية.
- تحديد fluorescently المسمى لاستهداف محطات قبل المشبكي لتسجيل 4C الشكل والشكل 4D.
5. المناعية معزولة الشبكي من محاور عصبية
- ملء طبق أقحم (بروتوكول القسم 2.10.) ثنائي التكافؤ مع أيون (الكالسيوم والمغنيسيوم 2+ 2+) مجاناحل رينغر.
- تلفيق الماصات التصحيح في P-87 مجتذب micropipette. ضع كمية صغيرة من الغراء خياطة في واحدة من نهاية أقحم بولي يسين باستخدام ماصة التصحيح (1.5 ملم الزجاج القطر الخارجي) وشفط (باستخدام أنابيب السيليكون 0.89 مم القطر الداخلي مع طرف micropipette تعلق على نهاية الشفط).
- تنفيذ dissociations باستخدام نفس الإجراء كما هو مذكور في القسم بروتوكول 3 الشكل 2. ضع واحدة من نهاية الحبل الشوكي على الغراء خياطة واضغط بلطف مع ملقط على الالتزام بقوة إلى السطح. وضع آخر قطرة من خياطة الغراء في الطرف الآخر من أقحم وتمتد برفق الحبل الشوكي حتى يتم فصلها محاور والتمسك نهاية الحبل الشوكي المجانية عن طريق سحبه برفق فوق الغراء خياطة. إصلاح في مكانها بواسطة لطيف الضغط إلى أسفل مع ملقط.
- تبادل ثنائي التكافؤ تحرير حل رينغر مع حل قارع الأجراس منتظم من خلال نضح.
- تسمح محاور لاستعادة لمدة 20 دقيقة آخر dissocينتقم في 10 درجة مئوية.
- إصلاح محاور فصل في بارافورمالدهيد 4٪ (PFA) {أعد العازلة الفوسفات المالحة (PBS، (ملم) 137 كلوريد الصوديوم، بوكل 2.7، نا 2 هبو 4 10، KH 2 PO 4 1.8، ودرجة الحموضة 7.4)} لمدة 20 دقيقة. تصفية PFA حل قبل استخدامها عن طريق تمرير من خلال مرشح حقنة 0.2 ميكرومتر.
- تغسل PFA بواسطة perfusing 0.1 M جليكاين (في PBS) لمدة 10 دقيقة.
- في احتضان 0.1٪ تريتون-X (في PBS) لمدة 10 دقيقة.
- يغسل من قبل perfusing برنامج تلفزيوني لمدة 20 دقيقة.
- منع مع 5٪ الحليب الخالي من الدسم (في برنامج تلفزيوني) لمدة 6 ساعة عند 4 درجات مئوية.
- إضافة إلى الأجسام المضادة الأولية في VGCC الفائدة (1: 200 التخفيف في برنامج تلفزيوني)، واحتضان لمدة 20 ساعة في 4 درجات مئوية.
- يغسل من قبل perfusing برنامج تلفزيوني لمدة 20 دقيقة.
- منع مع 5٪ الحليب الخالي من الدسم (في PBS) لمدة 10 دقيقة في 4 درجات مئوية.
- إضافة في الضد الثانوية (1: 400 التخفيف في برنامج تلفزيوني)، واحتضان في الظلام لمدة 2 ساعة في 4 درجات مئوية.
- يغسل من قبل perfusing مع برنامج تلفزيوني لمدة 20 دقيقة.
- منع مع 1٪ مصل بقري البودقيقة (في PBS) لمدة 20 دقيقة.
- إضافة في اليكسا فلور 488 phalloidin (5 وحدات / ميكرولتر تركيز عمل، الأسهم أعدت في الميثانول 200 وحدة / مل).
- يغسل من قبل perfusing مع برنامج تلفزيوني لمدة 20 دقيقة.
- الصورة باستخدام 100X عدسة غمر المياه على المجهر متحد البؤر.
6. تسجيل الكهربية
- تلفيق الماصات الزجاج التصحيح ألومينوسيليكات (المقاومة ماصة 2-5 MΩ) في P-87 مجتذب micropipette. تصميم ماصة التصحيح بحيث يشمل كامل ماصة قطر المحطة قبل المشبكي.
- PDMS الماصات معطف التصحيح عن طريق غمس ماصة التصحيح تحت ضغط 50-60 رطل في PDMS 23 (إرفاق أنابيب السيليكون، 0.89 مم القطر الداخلي، متصلة اسطوانة غاز النيتروجين، إلى نهاية الجزء الخلفي من ماصة التصحيح) وتجفيف باستخدام الحرارة بندقية. بالتناوب، يدويا معطف ماصة مع PDMS، وتطبيق طلاء أقرب إلى الطرف ممكن، تحت المجهر المركب.
- النار ماصات التصحيح البولندية باستخدام ميكرoforge (خيوط البلاتين عرف بني تركيبها مرحلة المجهر المركب).
- تحديد محاور معزولة مما يدل محطات قبل المشبكي وصفت من قبل مضان المجهري.
- ملء حل تسجيل (المصممة لعزل التيارات الكالسيوم 2+ و 10 مم CaCl 2 أو 90 ملي بووتون 2 كما الناقل تهمة، مخزنة HEPES الرقم الهيدروجيني 7.6، الميلي أسمول الأسمولية 270) في ماصة التصحيح باستخدام حقنة.
- إدراج ماصة التصحيح في حامل ماصة وموقف فوق حمام باستخدام مناور MP225 الميكانيكيه. خفض بلطف ماصة التصحيح في الحمام وموقف ضد مواجهة محطة قبل المشبكي حددت fluorescently.
- دفع ماصة التصحيح ببطء حتى يتم الاتصال مع الغشاء. في هذه المرحلة، وتحقيق ختم gigaohm بواسطة طيف الامتصاص الفم من خلال أنبوب تعلق على حامل ماصة.
- لتحقيق منخفضة للغاية مستويات الضوضاء الخلفية المطلوبة لتسجيل قناة واحدة الكالسيوم 2+ التيارات، واستخدام وxopatch 200B مع headstage تبريد للتسجيلات. عينة البيانات في 20-50 كيلو هرتز ومرشح باستخدام 5 كيلو هرتز بسل التصفية. تنفيذ جمع البيانات باستخدام مسجل المحاور X.
- استخدام بروتوكول خطوة القياسية، في الزيادات من 10 بالسيارات والتحفيز. إدراج ما قبل النبض في البروتوكول، التي سبقت البروتوكول الخطوة، لضمان تفعيل القصوى من قنوات الكالسيوم 2+. إدراج 10 بالسيارات خطوة تسرب في بروتوكول خطوة لمرحلة ما بعد تحليل الطرح التيارات تسرب.
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
النتائج
هذه العوائد بروتوكول التفكك صحية وظيفية محاور الشبكي معزولة خالية من التوقعات بعد المشبكي الشكل 2F، ولكنها مع ذلك تحتفظ محطات قبل المشبكي وظيفية قادرة على أثار حويصلة متشابك إكسو والإلتقام الشكل 4C و 4D الشكل. أجزاء من المناطق المعزولة من محاور الشبكي يمكن التعرف بوضوح تحت المجهر الضوئي أن يكون واضحا من أي عمليات الخلايا العصبية الأخرى مما يتيح الوصول غير المقيد إلى الشبكي غشاء المحوار الشكل 2F. محاور تحتفظ السلام...
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
المناقشة
بروتوكول التفكك الكبير الذي لدينا هو العائد محاور الشبكي معزولة خالية من التوقعات بعد المشبكي الشكل 2F، ولكن مع ذلك الذي يحتفظ ظيفية محطات قبل المشبكي 4C الشكل والشكل 4D. غياب العمليات بعد المشبكي معارضة المحطة قبل المشبكي يسمح تسجيل الوصول المباشر إلى غشاء قبل المشبكي الإفراج وجه في محطات قبل المشبكي واحدة، في السابق غير ممكن في نقاط الاشتباك العصبي المركزي وحققت بنجاح في كأسي من نوع محطات قبل المشبكي اثنين فقط؛ الكأس من نوع المشبك من فرخ العقدة ...
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
الإفصاحات
وليس لدى أصحاب البلاغ أي مصالح مالية متنافسة أو تضارب في المصالح للكشف عنها.
شكر وتقدير
تم دعم هذا العمل من قبل NINDS و RO1NS52699 و MH84874 إلى SA.
نود أن نشكر الدكتور ديف فيذرستون (قسم العلوم البيولوجية ، جامعة إلينوي في شيكاغو) لتزويدنا بغراء الخياطة المستخدم في أعمال الكيمياء المناعية. نشكر مايكل ألبرت على تعليقاته وتدقيقه اللغوي للمخطوطة.
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| 0.2 وميكرو ؛ م مرشح حقنة | EMD Millipore | SLGV004SL | |
| 22 × 60 مم Coverslips | Fisherbrand | 12545J | |
| Advasep-7 | Cydex Pharmaceuticals | ADV7 | |
| Alexa Fluor 488 Phalloidin | Invitrogen / Life Technologies | A12379 | |
| Alexa-633 الماعز المترافق المضاد للأرانب الأجسام المضادة الثانوية | Invitrogen / Life Technologies | A21070 | |
| مضاد التجمد | بريستون | ||
| حمض البوريك | سيجما ألدريتش | B7660 | |
| ألبومين مصل الأبقار | سيجما ألدريتش | A7906 | |
| مصدر ضوء المجال الساطع | دولان جينر | فايبرلايت 180 | |
| كلوريد الكالسيوم | سيجما ألدريتش | C4901 | |
| كولاجيناز نوع IA من Cloristridium Histolyticum | Sigma-Aldrich | C9891 | |
| غطاء زلة | فيشر Scientific | 12-545-J | |
| سكر العنب | Sigma-Aldrich | D9559 | |
| كاميرا CCD الرقمية | Hamamatsu | C8484-03G01 | |
| تشريح ملقط دقيق | أدوات العلوم الدقيقة | 91150-20 | |
| ملقط تشريح | أدوات العلوم الدقيقة | 11251-20 | |
| مجهر تشريح | Leica Biosystems | Leica MZ 12 | |
| مقص تشريح | أدوات العلوم الدقيقة | 15025-10 | |
| مقص تشريح جيد | أدوات العلوم | الدقيقة 91500-09 | |
| مقص تشريح أدوات | العلوم | فائقة الدقة 15000-08 | |
| FM 1-43 | Invitrogen / Life Technologies | T3163 | |
| جلايسين | سيجما-ألدريتش | G7126 | |
| هيبس | سيجما-ألدريتش | H7523 | |
| شحم الفراغ العالي | داو كورنينج | ||
| حمض الهيدروكلوريك | فيشربراند | SA-56-500 | |
| زيت الغمر | فيشر Scientific | M2000 | |
| خزان غاز النيتروجين الصناعي | Praxair | UN1066 | |
| دبابيس الحشرات | أدوات العلوم | الدقيقة 26002-10 | |
| غراء خياطة سائلة | براون قسم Cair البيطري | 8V0305 | تم توفير غراء الخياطة الذي استخدمناه في تجاربنا من قبل مختبر آخر. لم يعد يتم تصنيعه. لقد حصلنا على غراء خياطة Histoacryl للاستخدام المستقبلي من Aesculap (Ts1050071FP) |
| كلوريد المغنيسيوم | Sigma-Aldrich | M2670 | |
| الميثانول | سيجما ألدريتش | 154903 | |
| إشارات خلايا | الحليب الجاف الخالي | من الدسم 9999S | |
| P-87 مجتذب الماصة | الدقيقة أدوات السوتر | ||
| سيجما-ألدريتش | P6148 | ||
| مضخة التروية | كول بالمر | ماستر فلكس C / L | |
| طبق بتري 100 × 15 مم | طبق بتري 875712 | ||
| 35 × 10 مم | 875712 | فيشر ساينتيفيك | |
| هيدروبروميد بولي دي ليسين | سيجما ألدريتش | P1024 | ميجاوات > 300،000 |
| كلوريد البوتاسيوم | سيجما ألدريتش | P9333 | |
| فوسفات البوتاسيوم أحادي القاعدة | Sigma-Aldrich | P5379 | |
| الأجسام المضادة الأولية قناة الكالسيوم من النوع R | Alomone Labs | ACC-006 | |
| Protease Type XIV من Streptomyces Griseus | Sigma-Aldrich | P5147 | |
| شفرات مشرط | World Precision Instruments | 500240 | |
| زجاجة ضغط شوت دوران | فيشر ساينتفيك | 09-841-006 | |
| أنابيب سيليكون لتطبيق الغراء | كول بالمر | 07625-26 | |
| لوحة قاعدة التقطيع | Leica Biosystems | 14046327404 | |
| غرفة التقطيع | Leica Biosystems | 14046230132 | |
| كلوريد الصوديوم | Sigma-Aldrich | S7653 | |
| هيدروكسيد | S8045 | ||
| فوسفات الصوديوم ثنائي القاعدة | سيجما ألدريتش | S9763 | |
| رباعي الصوديوم | سيجما ألدريتش | B3545 | |
| سيلجارد 160 سيليكون المطاط الصناعي كيت | داو كورنينج | SYLGARD® 160 | للتحضير ، اخلطي المطاط الصناعي A واللدائن B 10: 1 بالوزن |
| Sylgard 184 مجموعة المطاط الصناعي السيليكون | Dow Corning | SYLGARD® 184 | للتحضير ، اخلطي المطاط الصناعي وعامل المعالجة 10: 1 بالوزن |
| ملقط مطلي بالتفلون | أدوات العلوم الدقيقة | 11626-11 | |
| ميثان التريكايين | سيلفونات سيجما-ألدريتش | A5040 | |
| شفرات الاهتزاز | أدوات الدقة العالمية ؛ | شفرات | |
| مصباح زينون | نيكون |
المراجع
- Katz, B., Miledi, R. The timing of calcium action during neuromuscular transmission. Journal of Physiology. 189 (3), 535-544 (1967).
- Sabatini, B. L., Regehr, W. G. Timing of neurotransmission at fast synapses in the mammalian brain. Nature. 384 (6605), 170-172 (1996).
- Augustine, G. J., Adler, E. M., Charlton, M. P. The calcium signal for transmitter secretion from presynaptic nerve terminals. Annals of the New York Academy of Sciences. 635, 365-381 (1991).
- Zucker, R. S. Calcium and transmitter release. Journal of Physiology Paris. 87 (1), 25-36 (1993).
- Delaney, K. R., Shahrezaei, V. Uncaging Calcium in Neurons. Cold Spring Harbor protocols. (12), (2013).
- Paradiso, K., Wu, W., Wu, L. G. Methods for patch clamp capacitance recordings from the calyx. Journal of Visualized Experiments. (6), 244(2007).
- Stanley, E. F. The calyx-type synapse of the chick ciliary ganglion as a model of fast cholinergic transmission. Canadian Journal of Physiology and Pharmacology. 70, S73-S77 (1992).
- Church, P. J., Stanley, E. F. Single L type calcium channel conductance with physiological levels of calcium in chick ciliary ganglion neurons. The Journal of Physiology. 496 (Pt 1), 59-68 (1996).
- Stanley, E. F. Single calcium channels and acetylcholine release at a presynaptic nerve terminal. Neuron. 11 (6), 1007-1011 (1993).
- Weber, A. M., Wong, F. K., Tufford, A. R., Schlichter, L. C., Matveev, V., Stanley, E. F. N-type Ca(2+) channels carry the largest current implications for nanodomains and transmitter release. Nature Neuroscience. 13 (11), 1348-1350 (2010).
- He, L., Wu, X. S., Mohan, R., Wu, L. G. Two modes of fusion pore opening revealed by cell attached recordings at a synapse. Nature. 444 (7115), 102-105 (2006).
- Sheng, J., He, L., et al. Calcium channel number critically influences synaptic strength and plasticity at the active zone. Nature Neuroscience. 15 (7), 998-1006 (2012).
- Photowala, H., Freed, R., Alford, S. Location and function of vesicle clusters, active zones and Ca2+ channels in the lamprey presynaptic terminal. The Journal of Physiology. 569. 569 (Pt 1), 119-135 (2005).
- Rovainen, C. M. Synaptic interactions of reticulospinal neurons and nerve cells in the spinal cord of the sea lamprey. Journal of Comparative Neurology. 154 (2), 207-223 (1974).
- Takahashi, M., Freed, R., Blackmer, T., Alford, S. Calcium influx independent depression of transmitter release by 5 HT at lamprey spinal cord synapses. The Journal of Physiology. 532 (2), 323-336 (2001).
- Stanley, E. F., Goping, G. Characterization of a calcium current in a vertebrate cholinergic presynaptic nerve terminal. The Journal of Neuroscience. 11 (4), 985-993 (1991).
- El Manira, A., Bussières, N. Calcium channel subtypes in lamprey sensory and motor neurons. Journal of Neurophysiology. 78 (3), 1334-1340 (1997).
- Kay, A. R., Alfonso, A., et al. Imaging synaptic activity in intact brain and slices with FM1 43 in C elegans lamprey and rat. 24 (4), 809-817 (1999).
- Betz, W. J., Bewick, G. S. Optical analysis of synaptic vesicle recycling at the frog neuromuscular junction. Science. 255 (5041), 200-203 (1992).
- Bleckert, A., Photowala, H., Alford, S. Dual pools of actin at presynaptic terminals. Journal of Neurophysiology. 107 (12), 3479-3492 (2012).
- Gustafsson, J. S., Birinyi, A., Crum, J., Ellisman, M., Brodin, L., Shupliakov, O. Ultrastructural organization of lamprey reticulospinal synapses in three dimensions. The Journal of Comparative Neurology. 450 (2), 167-182 (2002).
- Broadie, K., Featherstone, D. E., Chen, K. Electrophysiological Recording in the Drosophila Embryo. Journal of Visualized Experiments. (27), (2009).
- Rae, J. L., Levis, R. A. A method for exceptionally low noise single channel recordings. Pflügers Archiv European Journal of Physiology. 420 (5-6), 618-620 (1992).
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
إعادة الطباعة والأذونات
