هذا البروتوكول تفاصيل كيفيه تنفيذ وأداء التسجيلات الضوئية متعددة ألياف ، وكيفيه تصحيح للتحف المستقلة الكالسيوم ، والاعتبارات الهامه للتصوير الضوئي ثنائي اللون.
يتطلب اشتراك JoVE لعرض هذا المحتوى. تسجيل الدخول أو ابدأ نسخة تجريبية مجانية
مقالة منهجية
القياس الضوئي متعدد ألياف لتسجيل النشاط العصبي في الكائنات المتحركة بحريه
في هذه المقالة
ملخص
الملخص
تسجيل نشاط مجموعه من الخلايا العصبية في الحيوانية تتحرك بحريه هو مهمة صعبه. وعلاوة علي ذلك ، كما يتم تشريح الدماغ في المجموعات الفرعية الوظيفية أصغر وأصغر ، يصبح من الاهميه بمكان لتسجيل من الإسقاطات و/أو السكان الفرعيين المحددة وراثيا من الخلايا العصبية. ألياف الضوئية القياس هو نهج يمكن الوصول اليها وقويه التي يمكن التغلب علي هذه التحديات. من خلال الجمع بين المنهجيات البصرية والجينية ، يمكن قياس النشاط العصبي في هياكل الدماغ العميق عن طريق التعبير عن مؤشرات الكالسيوم المشفرة وراثيا ، والتي تترجم النشاط العصبي إلى اشاره بصريه يمكن قياسها بسهوله. ويفصل البروتوكول الحالي مكونات نظام القياس الضوئي متعدد ألياف ، وكيفيه الوصول إلى هياكل الدماغ العميقة لتقديم وجمع الضوء ، وطريقه لحساب القطع الاثريه الحركية ، وكيفيه معالجه وتحليل إشارات الفلورسنت. ويفصل البروتوكول الاعتبارات التجريبية عند اجراء التصوير بألوان الاحاديه أو المزدوجة ، سواء من ألياف بصريه مزروعة واحده أو متعددة.
المقدمة
القدرة علي ربط الاستجابات العصبية مع جوانب محدده من سلوك الحيوانية أمر بالغ الاهميه لفهم دور مجموعه معينه من الخلايا العصبية يلعب في توجيه أو الاستجابة لعمل أو التحفيز. نظرا لتعقيد السلوك الحيواني ، مع عدد لا يحصي من الدول الداخلية والمحفزات الخارجية التي يمكن ان تؤثر حتى ابسط الإجراءات ، وتسجيل اشاره مع قرار واحد المحاكمة يزود الباحثين مع الاداات اللازمة للتغلب علي هذه القيود.
أصبحت ألياف الضوئية تقنيه الاختيار للعديد من الباحثين في مجال علم الأعصاب نظم بسبب بساطتها النسبية مقارنه بغيرها من تقنيات التسجيل المجرية ، وارتفاع نسبه الاشاره إلى الضوضاء ، والقدرة علي تسجيل في مجموعه متنوعة من النماذج السلوكية1،2،3،4،5،6،7،8. وخلافا للأساليب الكهربائية الكهربية التقليدية ، فان القياس الضوئي هو النهج البصري الأكثر استخداما بالاقتران مع مؤشرات الكالسيوم المرمزة وراثيا (جيكسيس ، سلسله GCaMP)9. وتقوم اليتالق بتغيير قدرتها علي الاعتماد علي ما إذا كانت مرتبطة بالكالسيوم ام لا. لان التركيز الداخلي للكالسيوم في الخلايا العصبية هو منظم باحكام وقناات الكالسيوم الجهد بوابات مفتوحة عندما حرائق الخلايا العصبية المحتملة العمل ، وزيادات عابره في تركيز الكالسيوم الداخلي ، مما يؤدي إلى زيادات عابره في يمكن للقدرة علي الفلورية إلى مضان ، يمكن ان يكون وكيلا جيدا لإطلاق النار العصبية9.
مع ألياف الضوئية ، يتم توجيه ضوء الاثاره أسفل رقيقه ، وألياف البصرية مولتيمود في الدماغ ، ويتم جمع اشاره الانبعاثات النسخ الاحتياطي من خلال نفس ألياف. لان هذه ألياف البصرية خفيفه الوزن وانحناء ، يمكن للحيوان ان يتحرك إلى حد كبير دون عوائق ، مما يجعل هذه التقنية متوافقة مع مجموعه واسعه من الاختبارات والظروف السلوكية. بعض الظروف ، مثل الحركات السريعة أو الانحناء من ألياف البصرية الحبل التصحيح خارج دائره نصف قطرها التي يمكن ان تحافظ علي الانعكاس الداخلي الكلي ، يمكن إدخال التحف اشاره. لغموض عن اشاره من الضجيج ، يمكننا استغلال ممتلكات GCaMP المعروفة باسم "نقطه isosbestic." بإيجاز, مع [غكمب], بما ان الطول موجي من الاثاره ضوء يكون غيرت إلى اليسار, انبعاثاته في ال [كلسيوم-فيف] دوله تناقصات والاذاعه في الدولة [كلسيوم-اونبد] زيادات هامشيا. والنقطة التي تكون فيها الكثافة النسبية لهذين النوعين من الانبعاثات متساوية تسمي النقطة الايزوبيتيك. عندما يكون GCaMP متحمسا في هذه المرحلة ، فان انبعاثاته لا تتاثر بالتغيرات في تركيزات الكالسيوم الداخلية ، وغالبا ما يكون التباين في الاشاره بسبب توهين الاشاره من الانحناء الزائد لحبل التصحيح بألياف البصرية أو حركه الانسجه العصبية بالنسبة للألياف المزروعة.
وحده واحده من فسيولوجيا الكهربائية لا يزال معيار الذهب للتحرك بحريه في التسجيلات المجرية بسبب الخلية واحده والقرار مستوي واحد سبايك. ومع ذلك ، قد يكون من الصعب تحديد الهوية الجزيئية للخلايا التي يتم تسجيلها ، ويمكن ان يكون التحليل اللاحق لذلك شاقا للغاية. بينما ألياف الضوئية ليس لديها دقه خليه واحده ، فانه يسمح للباحثين لطرح الاسئله من المستحيل معالجه مع التقنيات التقليدية. الجمع بين الاستراتيجيات الفيروسية مع الكائنات المحورة وراثيا ، يمكن توجيه التعبير عن جيكليس إلى أنواع الخلايا العصبية المحددة وراثيا لتسجيل النشاط العصبي المحدد للسكان أو الإسقاط ، والذي يمكن تنفيذه عن طريق مراقبه اشاره الكالسيوم مباشره في محور عصبي انتهائيه10,11. وعلاوة علي ذلك ، من خلال زرع العديد من ألياف البصرية ، فمن الممكن لمراقبه النشاط العصبي في وقت واحد من عده مناطق الدماغ ومسارات في نفس الحيوانية12،13.
في هذه المخطوطة ، نقوم بوصف تقنيه لقياس الضوء الأحادي ومتعدد ألياف ، وكيفيه تصحيح القطع الاثريه المستقلة عن الكالسيوم ، وتفاصيل كيفيه اجراء تسجيلات أحاديه اللون ومزدوجة ألوان. كما نقدم أمثله علي أنواع الاسئله التي تمكن المرء من طرحها ومستوياتها المتزايدة من التعقيد (انظر الشكل 1). ويمكن بناء الاعداد الضوئي ألياف للتسجيلات متعددة ألياف مفصله في هذا البروتوكول باستخدام قائمه من المواد الموجودة في https://sites.google.com/view/multifp/hardware (الشكل 2).
فمن الضروري ان تكون مجهزه للنظام لكل من 410 nm و 470 nm الاثاره الموجات للانبعاثات الكالسيوم مستقله والكالسيوم المعتمدة من GCaMP6 أو المتغيرات لها. للاجهزه التي بنيت خصيصا أو إذا كان هناك اي برنامج متاح لتشغيل النظام ، ويمكن استخدام البرنامج المفتوح المصدر الحرة بونساي (http://www.open-ephys.org/bonsai/). بدلا من ذلك ، يمكن تشغيل ألياف الضوئية من خلال MATLAB (علي سبيل المثال ، https://github.com/deisseroth-lab/multifiber)12 أو غيرها من لغة البرمجة14. وينبغي ان البرمجيات والاجهزه من النظام تسمح التلاعب في كل من 410 nm و 470 nm المصابيح والكاميرا ، واستخراج الصور (الشكل 2) ، وحساب كثافة الفلورسنت يعني في مناطق الاهتمام (rois) رسمها حول ألياف علي الصور. يجب ان يكون الإخراج جدول قيم كثافة متوسط سجلت مع 470 nm و 410 nm المصابيح من كل ألياف في الحبل التصحيح. عند اجراء التجارب متعددة ألياف ، 400 μm ألياف المجمعة قد تحد من حركه الفئران. في مثل هذه الحالات ، نوصي باستخدام الحبال التصحيح 200 μm ، والتي توفر المزيد من المرونة. قد يكون من الممكن أيضا استخدام أصغر الكابلات وهميه اثناء تدريب الفئران.
ومن الاهميه بمكان ان تكون قادره علي استخراج النقاط الزمنيه للاحداث المثيرة للاهتمام اثناء اكتساب ألياف الضوئية. إذا لم يوفر النظام بسهوله نظام مدمج لدمج TTLs لاحداث محدده ، فان الاستراتيجية البديلة هي تعيين طابع زمني للنقاط الزمنيه الفردية المسجلة لتتماشي مع الأوقات والاحداث المحددة اثناء التجربة. ويمكن القيام به ختم الوقت باستخدام ساعة الكمبيوتر.
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
البروتوكول
وقد أجريت جميع التجارب وفقا للجان المؤسسية للعناية بالماشية واستخدامها التابعة لجامعه كاليفورنيا وسان دييغو والدليل الكندي لرعاية واستخدام المختبرات وتمت الموافقة عليها من قبل جامعه لافال لحماية الماشية اللجنه.
1. محاذاة المسار البصري بين CMOS (التكميلية أكسيد المعدن أشباه الموصلات) الكاميرا والفردية أو المتفرعة الحبل التصحيح
- تخفيف جميع البراغي علي المترجم 5-محور (11 ، الشكل 2ب).
- برغي في الحبل التصحيح (12 ، الشكل 2ب) إلى محول [SMA (الفرعية مصغره A) أو FC (موصل ألياف البصرية)] التي تلصق علي المترجم 5-محور.
- بدوره علي ضوء الاثاره 470 nm (1 ، الشكل 2B) في الطاقة المنخفضة (100 μw) ، ووضع غيض من باتش الاشاره إلى شريحة بلاستيكية الفلورسنت التلقائي. هذا ليس له اي تاثير علي التسجيلات في المستقبل ولكن هو فقط لتصور عمليه المحاذاة.
- سجل من كاميرا CMOS (13 ، الشكل 2B) في الوضع الحي. زيادة الربح أو ضبط جدول البحث (لوط) حتى الصورة ليست سوداء تماما. وهذه النقطة هي ان تكون قادره علي رؤية صوره في نقطه الاتصال للهدف (10 ، الشكل 2 ب).
- تقدم المترجم 5-محور نحو الهدف ، وضمان ان يتم توسيط ضوء 470 nm علي ألياف في SMA أو FC نهاية الحبل التصحيح ، حتى يمكن حل صوره علي الكاميرا.
- اضبط المحورين X و Y حتى يتم توسيط الصورة وحلها بشكل جيد.
- تصور الضوء المنبعث من نهاية السلك اللاصق. يجب ان تظهر كدائره متساوية الخواص. إذا تم استخدام سلك التصحيح المتفرعة ، يجب ان تكون كميه الضوء المنبعثة في نهايات الطواده من كل سلك التصحيح مماثله. إذا لم تكن الدائرة متساوية الخواص أو كان الضوء المنبعث غير متساو ، اضبط المترجم خماسي المحاور في محور س-ص.
2. اعداد ROIs حول ألياف لقياس كثافة الفلورسنت يعني
- بدوره علي جميع أضواء الاثاره لتصور أفضل للألياف. ضبط كسب الكاميرا بحيث يتم المشبعة لا بكسل وصوره واضحة من ألياف موجودة.
- سجل مباشر أو التقاط صوره أوليه.
- رسم ROIs حول ألياف والاحتفاظ بها لقياس قيم كثافة متوسط اثناء التسجيلات (الشكل 2ا).
- لتسجيلات ألياف متعددة ، اختبار للاستقلال في الإشارات.
- سجل حي من كل ألياف.
- نقطه واحده ألياف نحو مصدر الضوء والاستفادة باصبع. وينبغي ان تحدث تقلبات كبيره جدا فقط في تلك القناة (تسرب مقبول 1:1000).
- إذا كانت الإشارات ليست مستقله ، أعاده رسم ROIs أكثر تحفظا وتكرار اختبار الاستقلال.
- لتسميه وتتبع العائد علي الاستثمار الذي يقابل ألياف ، الشريط الملون أو طلاء الأظافر يمكن تطبيقها علي نهاية ألياف. التقط صوره قبل بدء اي تجربه كتذكير ثانوي.
3. الاعداد لتسجيل الساحة
- شنق الحبل التصحيح فوق الساحة باستخدام المدرجات ، والمشابك ، أو أصحاب.
- تاكد من ان الحيوانية يمكن ان تتحرك بحريه في جميع انحاء الساحة بأكملها ، غير المستغلة من قبل طول ألياف.
- ما إذا كان يتم استخدام مربع استثابي أو حقل مفتوح ، والتاكد من ان الحبل التصحيح سوف تكون قادره علي الوصول إلى الحيوانية مع الحد الأدنى من الانحناء. إذا كان هذا يتطلب كزه الأنف ، وضمان ان هناك ما يكفي من المساحة الزائدة لمنع الانحناء من ألياف. تجنب اي الإفراط في الانحناء أو التواء من الحبل التصحيح.
4. في الجسم التسجيلات
ملاحظه: اجراء زرع ألياف البصرية كانولا للتجارب ألياف الضوئية مطابق للاجراء لoptogenetics كما هو موضح في سبارتا وآخرون15. نوصي باستخدام الاسمنت الأسنان (انظر جدول المواد) ، والذي يوفر ترسيخ قوي من الراس إلى عظم الجمجمة. سيكون الاسمنت السني مفيدا بشكل خاص في الحالات التي لا يمكن فيها استخدام مسامير التثبيت.
- بصريا فحص الطرف البعيد من ألياف الحبل التصحيح بالعين ومع مجهر مينيفايبر. إذا تم خدش سطح ألياف ، وأعاده طلاء ألياف باستخدام ألياف تلميع/اللف الفيلم مع حصى غرامه (1 μm و 0.3 μm).
- تنظيف الأطراف البعيدة من الحبل التصحيح مع 70 ٪ الايثانول وقضيب طرف القطن.
- تنظيف ألياف البصرية cannulas باستخدام 70 ٪ الايثانول وقضيب القطن تلميح.
- ربط نهاية الطواده من الحبل التصحيح إلى ألياف مزروع باستخدام السيراميك الانقسام الأكمام مغطاه أنبوب يتقلص الأسود. اثناء الاتصال ، تاكد من ان الأكمام ضيقه ، والا استخدام الأكمام الجديدة.
ملاحظه: سيكون هناك كميه كبيره من فقدان الاشاره إذا كان هناك اي مسافة بين الطواده الحبل التصحيح وزرع ، والتسجيلات لن تعمل. - السماح للحيوان للشفاء لبضع دقائق قبل بدء الاختبارات السلوكية.
- أبدا بتسجيل الاشاره الضوئية وقم بتشغيل التجربة.
- اثناء التسجيل ، والحفاظ علي العين بعناية علي تتبع الحية لضمان جوده التسجيلات. ومن المتوقع ان تنخفض الاشاره بسرعة كداله للوقت في أول 2 دقيقه من التسجيل. ويحدث هذا التاثير بسبب الحرارة التي تتوسطها تسوس الصمام ، حيث تزيد الزيادة في الحرارة مقاومه العنصر البصري.
- إذا قفزه في الاشاره التي تتجاوز حركيه علي/قباله يحدث GCaMP ، وهذا هو في كثير من الأحيان اشاره إلى ان الأكمام ليست ضيقه بما فيه الكفاية والمسافة بين الحبل التصحيح وزرع يتغير. في هذه الحالة ، ووقف التجربة وأعاده الاتصال الحيوانية باستخدام كم جديد.
5. تحليل البيانات الضوئية ألياف
ملاحظه: هذا هو أسلوب تحليل البيانات الذي يعمل بشكل جيد لمعظم التسجيلات. غير انه يمكن تنفيذ نهج بديله. مثال التعليمه البرمجية لتحليل البيانات يمكن العثور عليها هنا: https://github.com/katemartian/Photometry_data_processing.
- استخراج يعني قيم كثافة الفلورية المسجلة من 470 نانومتر (int470) و 410 Nm (int410) المصابيح ، المقابلة لكل ألياف الفردية.
- سلاسة كل اشاره باستخدام خوارزميه متوسطه متحركة (الشكل 3ا).
- قم باجراء تصحيح خط الأساس لكل اشاره (الشكل 3A و 3b) باستخدام خوارزميه التكيف التكراري المتكررة التي تعاقب علي اقل المربعات (airpls) (https://github.com/zmzhang/airPLS) لأزاله الانحدار والتردد المنخفض تقلبات في الإشارات.
- توحيد كل اشاره باستخدام القيمة المتوسطة والانحراف المعياري (الشكل 3ج):
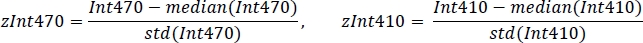
- باستخدام غير سالبه الانحدار الخطي قويه ، تناسب موحده zint410 إلى zint470 إشارات (الشكل 3د) إلى وظيفة الانحدار:
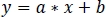
- استخدام معلمات الانحدار الخطي (a، b) للعثور علي قيم جديده من Zint410 المجهزة zint470 (Fitint410 ، الشكل 3د ، ه):
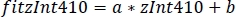
- استخدام معلمات الانحدار الخطي (a، b) للعثور علي قيم جديده من Zint410 المجهزة zint470 (Fitint410 ، الشكل 3د ، ه):
- حساب المبلغ الموحد df/f (z dF/f) (الشكل 3و):
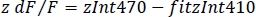
6. التسجيلات ذات ألوان المزدوجة في وقت واحد
- أضافه إلى نظام قياس الضوء LED 560 nm لأثاره الأحمر الفلورسنت الاستشعار الكالسيوم والمرايا والفلاتر المناسبة ديشرويك (انظر كيم وآخرون ، 2016 للحصول علي وصف مفصل)12.
- أضف صوره مقسمه بين الهدف وكاميرا CMOS لفصل الأطوال الموجية للانبعاثات الخضراء والحمراء (انظر الشكل 5). سيشكل التقسيم صوره صورتين معكوسه علي جهاز استشعار الكاميرا ، المقابلة للإشارات الحمراء والخضراء (علي سبيل المثال ، الحبل التصحيح مع 3 فروع سوف تخلق صوره مع 6 ألياف).
- رسم ROIs حول جميع ألياف في كلا اللونين كما هو مفصل أعلاه. تاكد من تحديد كل عائد الاستثمار بوضوح مع ألياف المقابلة والقناة (الأخضر والأحمر) (الشكل 4ا).
- الزناد الاثاره في وقت واحد مع 470 nm و 560 nm المصابيح والبديل لهم مع 410 nm LED (الشكل 5ا).
7. تحليل البيانات المزدوجة اللون
- اتبع الخطوات المنصوص عليها في القسم 5 للعثور علي Fitint410 للاشاره 470 Intوحساب z dF/F.
- لان نقطه isosbestic لاحمر-تحول جيكسيس غير معروف عموما ، اشاره سجلت مع 410 nm الصمام في القناة الخضراء يمكن استخدامها لتصحيح الحركة عبر كلا القناتين. اتبع الخطوات المنصوص عليها في القسم 5 للعثور علي Fitint410 للاشاره 560 Intوحساب z dF/F.
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
النتائج
الارتباطات العصبية من الاستجابات السلوكية يمكن ان تختلف تبعا لمجموعه متنوعة من العوامل. في هذا المثال ، استخدمنا في الجسم ألياف الضوئية الفوتومتري لقياس نشاط محطات محور عصبي من منطقه طائي الجانبية (lha) التي تنتهي في عنان وحشي الجانبية (lha). تم حقن الفئران نوع البرية مع فيروس المرتبطة adeno (AAV) ترميز GCaMP6s (AAV-hSyn-GCaMP6s) في LHA وتم زرع ألياف البصرية مع غيض مباشره فوق Lha (الشكل 4ا). تم العثور علي التعبير GCaMP6s في الهيئات الخلوية لل LHA ومحطاتها محور عصبي إسقاط لل ...
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
المناقشة
ألياف الضوئية القياس هو نهج يمكن الوصول اليها التي تسمح للباحثين لتسجيل ديناميات الكالسيوم السائبة من السكان الخلايا العصبية المحددة في الحيوانية تتحرك بحريه. ويمكن الجمع بين هذه الطريقة مع مجموعه واسعه من الاختبارات السلوكية, بما في ذلك "حركه ثقيله" المهام مثل اختبارات السباحة القسري2, الخوف-تكييف18, التفاعلات الاجتماعية1,4, وغيرها7, 8و
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
الإفصاحات
سيج ارونسون هو الرئيس التنفيذي ومؤسس نيوروفوتوميتريكس المحدودة ، التي تبيع أنظمه القياس الضوئي متعددة ألياف.
شكر وتقدير
وكان هذا العمل مدعوما بمنحه من مجلس العلوم الطبيعية والبحوث الهندسية في كندا (NSERC: RGPIN-2017-06131) إلى C.P. c. P. هو FRSQ Chercheur-Boursier. كما نشكر الhttps://www.neurophotonics.ca/fr/pom التي استخدمت في هذه الدراسة لإنتاج النواقل الفيروسية المستخدمة فيها.
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| 1/4 "-20 برغي غطاء من الفولاذ المقاوم للصدأ ، 1" SH25S100 | Thorlabs | ||
| 1/4 "-20 برغي غطاء من الفولاذ المقاوم للصدأ ، 1/2" | Thorlabs | طويل SH25S050 | |
| 1/4 "-20 برغي غطاء من الفولاذ المقاوم للصدأ ، 3/8" | Thorlabs | طويل SH25S038 | |
| 1000 ومايكرو ؛ م ، 0.50 NA ، SMA-SMA كابل تصحيح الألياف | Thorlabs | M59L01 | |
| 12.7 مم عمود بصري | Thorlabs | TR30 / M | |
| 12.7 مم حامل عمود الركيزة | Thorlabs | PH20EM | |
| 15 فولت ، 2.4 أمبير وحدة إمداد الطاقة مع موصل مقبس 3.5 مم ل T-Cube | Thorlabs | KPS101 | |
| 20x الموضوعي | Thorlabs | RMS20X | # 10 في الشكل 2 ، # 11 في الشكل 5 |
| قفص 30 مم مع حامل مرشح ثنائي اللون | Thorlabs | CM1-DCH / M | # 8-9 في الشكل 2 ، # 8-10 في الشكل 5 |
| 405 نانومتر عدسات LED | دوريك | CLED_405 | # 2 في الشكل 2 |
| مرشح ممر النطاق الترددي 410 نانومتر | Thorlabs | FB410-10 | # 5 في الشكل 2 ؛ # 7 في الشكل 5 |
| 465 نانومتر. | عدسات LED دوريك | CLED_465 | # 1 في الشكل 2 |
| ممر النطاق الترددي 470 نانومتر | Thorlabs | FB470-10 | # 4 في الشكل 2 ؛ # 6 في الشكل 5 |
| ممر النطاق الترددي 560 نانومتر | Semrock | FF01-560 / 14-25 | # 5 في الشكل 5 |
| 560 نانومتر | عدسات LED دوريك | CLED_560 | # 1 في الشكل 3 |
| محاور حركية جبل | Thorlabs | K5X1 | # 11 في الشكل 2 ، # 12 في الشكل 5 |
| محول مزدوج | Thorlabs | AC254-035-A-ML | # 7 في الشكل 2 |
| محول ل 405 موازي | Thorlabs | AD11F | # 3 في الشكل 2 ؛ # 4 في الشكل 5 |
| محول للموازية القابلة للتعديل | Thorlabs | AD127-F | # 3 في الشكل 2 ؛ # 4 في الشكل 5 |
| الألومنيوم اللوح | Thorlabs | MB1824 | |
| شوكة لقط | Thorlabs | CF125 | |
| موصل مكعب | Thorlabs | CM1-CC | |
| مزدوج 493/574 ثنائي اللون | Semrock | FF493 / 574-Di01-25x36 | # 10 في الشكل 5 |
| مرشح انبعاث ل GCaMP6 | Semrock | FF01-535 / 22-25 | # 6 في الشكل 2 |
| الضميمة مع ألواح الألواح الصلبة | السوداء Thorlabs | XE25C9 | |
| SM1 غطاء نهاية الخيوط لتصنيع | Thorlabs | SM1CP2M | |
| مرشح أنبوب عدسة SM1 سريع التغيير | Thorlabs | SM1QP | # 4-6 في الشكل 2 ، # 5-7 في الشكل 5 |
| الموازاة الثابتة لضوء 405 نانومتر | Thorlabs | F671SMA-405 | # 3 في الشكل 2 ؛ # 4 في الشكل 5 |
| موازاة ثابتة لضوء 470 و 560 نانومتر | Thorlabs | F240SMA-532 | # 3 في الشكل 2 ؛ # 4 في الشكل 5 |
| مرشح الانبعاث الأخضر | Semrock | FF01-520 / 35-25 | في مقسم شعاع الضوء |
| عالية الدقة USB 3.0 CMOS Camera | Thorlabs | DCC3260M | # 13 في الشكل 2 ، # 15 في الشكل 5 |
| فاصل شعاع الضوء | القياسات العصبية | الضوئية SPLIT | # 14 في الشكل 5 |
| مرآة Longpass ثنائية اللون ، 425 نانومتر Cutoff | Thorlabs | DMLP425R | # 8 في الشكل 2 ، # 9 في الشكل 5 |
| مرآة Longpass ثنائية اللون ، 495 نانومتر Cutoff | Semrock | FF495-Di03 | # 9 في الشكل 2 ، # 8 في الشكل 5 |
| أسمنت الأسنان Metabond | C & B | ||
| M8 - M8 كابل | دوريك عدسات | Cable_M8-M8 | |
| قنيات الألياف البصرية | عدسات | دوريك تحتاج إلى تحديد أنه سيتم استخدامها في تجارب القياس الضوئي التي تتطلب منخفض التألق | |
| الذاتي الألياف البصرية | عدسات | دوريك تحتاج إلى تحديد أنه سيتم استخدامها في تجارب القياس الضوئي التي تتطلب مرشح انبعاث أحمر منخفض التألق | |
| Semrock | FF01-600 / 37-25 | في شعاع الضوء | |
| مقسم T7 | LabJack LabJack | ||
| T-cube LED سائق | Thorlabs | LEDD1B | |
| USB 3.0 كابل إدخال / إخراج ، Hirose 25 ، ل DCC3240 | Thorlabs | CAB-DCU-T3 |
المراجع
- Gunaydin, L. A., et al. Natural Neural Projection Dynamics Underlying Social Behavior. Cell. 157 (7), 1535-1551 (2014).
- Proulx, C. D., et al. A neural pathway controlling motivation to exert effort. Proceedings of the National Academy of Sciences of the United States of America. 115 (22), 5792-5797 (2018).
- Muir, J., et al. In Vivo Fiber Photometry Reveals Signature of Future Stress Susceptibility in Nucleus Accumbens. Neuropsychopharmacology. 43 (2), 255-263 (2017).
- Wang, D., et al. Learning shapes the aversion and reward responses of lateral habenula neurons. eLife. 6, (2017).
- de Jong, J. W., et al. A Neural Circuit Mechanism for Encoding Aversive Stimuli in the Mesolimbic Dopamine System. Neuron. 101 (1), 133-151 (2018).
- Lerner, T. N., et al. Intact-Brain Analyses Reveal Distinct Information Carried by SNc Dopamine Subcircuits. Cell. 162 (3), 635-647 (2015).
- Calipari, E. S., et al. In vivo imaging identifies temporal signature of D1 and D2 medium spiny neurons in cocaine reward. Proceedings of the National Academy of Sciences of the United States of America. 113 (10), 2726-2731 (2016).
- González, A. J., et al. Inhibitory Interplay between Orexin Neurons and Eating. Current Biology. 26 (18), 2486-2491 (2016).
- Chen, T. -W., et al. Ultrasensitive fluorescent proteins for imaging neuronal activity. Nature. 499 (7458), 295-300 (2013).
- Barker, D. J., et al. Lateral Preoptic Control of the Lateral Habenula through Convergent Glutamate and GABA Transmission. Cell Reports. 21 (7), 1757-1769 (2017).
- Siciliano, C. A., Tye, K. M. Leveraging calcium imaging to illuminate circuit dysfunction in addiction. Alcohol. 74, 47-63 (2018).
- Kim, C. K., et al. Simultaneous fast measurement of circuit dynamics at multiple sites across the mammalian brain. Nature Methods. 13 (4), 325-328 (2016).
- Sych, Y., Chernysheva, M., Sumanovski, L. T., Helmchen, F. High-density multi-fiber photometry for studying large-scale brain circuit dynamics. Nature Methods. 16 (6), 553-560 (2019).
- Akam, T., Walton, M. E. pyPhotometry: Open source Python based hardware and software for fiber photometry data acquisition. Scientific Reports. 9 (1), 3521(2019).
- Sparta, D. R., et al. Construction of implantable optical fibers for long-term optogenetic manipulation of neural circuits. Nature Protocol. 7 (1), 12-23 (2011).
- Stamatakis, A. M., et al. Lateral Hypothalamic Area Glutamatergic Neurons and Their Projections to the Lateral Habenula Regulate Feeding and Reward. The Journal of Neuroscience. 36 (2), 302-311 (2016).
- Tervo, G. D., et al. A Designer AAV Variant Permits Efficient Retrograde Access to Projection Neurons. Neuron. 92 (2), 372-382 (2016).
- Yu, K., da Silva, P., Albeanu, D. F., Li, B. Central Amygdala Somatostatin Neurons Gate Passive and Active Defensive Behaviors. The Journal of Neuroscience. 36 (24), 6488-6496 (2016).
- Falkner, A. L., Grosenick, L., Davidson, T. J., Deisseroth, K., Lin, D. Hypothalamic control of male aggression-seeking behavior. Nature Neuroscience. 19 (4), 596-604 (2016).
- Ren, J., et al. Anatomically Defined and Functionally Distinct Dorsal Raphe Serotonin Sub-systems. Cell. 175 (2), 472-487 (2018).
- Barnett, L. M., Hughes, T. E., Drobizhev, M. Deciphering the molecular mechanism responsible for GCaMP6m’s Ca2+-dependent change in fluorescence. PLOS ONE. 12 (2), 0170934(2017).
- Sun, F., et al. A Genetically Encoded Fluorescent Sensor Enables Rapid and Specific Detection of Dopamine in Flies, Fish, and Mice. Cell. 174 (2), 481-496 (2018).
- Patriarchi, T., et al. Ultrafast neuronal imaging of dopamine dynamics with designed genetically encoded sensors. Science. 360 (6396), (2018).
- Feng, J., et al. A Genetically Encoded Fluorescent Sensor for Rapid and Specific In Detection of Norepinephrine. Neuron. 102 (4), 745-761 (2019).
- Akerboom, J., et al. Genetically encoded calcium indicators for multi-color neural activity imaging and combination with optogenetics. Frontiers in Molecular Neuroscience. 6, 1-29 (2013).
- Dana, H., et al. Sensitive red protein calcium indicators for imaging neural activity. eLife. 5, (2016).
- Wang, H., Jing, M., Li, Y. Lighting up the brain: genetically encoded fluorescent sensors for imaging neurotransmitters and neuromodulators. Current Opinion in Neurobiology. 50, 171-178 (2018).
- Lu, L., et al. Wireless optoelectronic photometers for monitoring neuronal dynamics in the deep brain. Proceedings of the National Academy of Sciences. 115 (7), 1374-1383 (2018).
- Jennings, J. H., et al. Visualizing Hypothalamic Network Dynamics for Appetitive and Consummatory Behaviors. Cell. 160 (3), 516-527 (2014).
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
إعادة الطباعة والأذونات
