تقدم هذه الدراسة مقايسة FRET نسبية بسيطة وسهلة الاستخدام للكشف عن نشاط DNase والتقييم الكمي لها ، وتوضح تطبيقه في تحليل النوكلياز الضعيف.
يتطلب اشتراك JoVE لعرض هذا المحتوى. تسجيل الدخول أو ابدأ نسخة تجريبية مجانية
مقالة منهجية
تقييم نشاط DNase عن طريق نقل طاقة الرنين الفلوري النسبي
في هذه المقالة
ملخص
الملخص
يصف البروتوكول الحالي مقايسة نقل طاقة رنين فورستر (FRET) البسيطة والحساسة للكشف والتقييم الكمي لنشاط DNase. تستفيد قياسات FRET النسبية من نسبة إشارات البث المانحة والمستقبلة. يكتشف الاختبار فواصل الحمض النووي أحادية الشريطة باستخدام مسبار قليل FRET 38-mer ذو علامة مزدوجة الشكل ، ويستخدم كمستشعر انقسام الحمض النووي في الوقت الفعلي. التطبيق الرئيسي للنهج الموصوف هو التقييم الكمي لتأثيرات ظروف التفاعل ، مثل الأس الهيدروجيني ودرجة الحرارة وتكوين المخزن المؤقت ، على نشاط DNase. نظرا لقدرته على اكتشاف انقسام الحمض النووي البسيط والبطيء ، فإن الاختبار مناسب بشكل خاص للتحقيق في نشاط الحالة النووية الضعيف الذي يتطلب فترات طويلة من الملاحظة ولدراسة تأثيرات الأس الهيدروجيني على نشاط DNase. تتضح هذه المزايا المحددة لبروتوكول FRET النسبي هذا من خلال تطبيقه على اكتشاف وتحليل نشاط DNase لمثبط الإيلاستاز للكريات البيض (LEI).
المقدمة
نهج التألق النسبي هو طريقة تحليلية تستخدم نسب إشارات التألق بدلا من الاعتماد فقط على شدة إشارة واحدة1،2. تتمثل ميزة استخدام النسب في أنها توفر معايرة داخلية وتعوض العديد من العوامل العشوائية ، مثل الاختلافات في تركيزات العينة والمسبار ، ومعلمات الأداة ، وما إلى ذلك. هذا يعزز دقة وحساسية مجسات الفلورسنت.
في السياق المحدد لمجسات نقل طاقة الرنين Förster (FRET) ، يشير مصطلح "قياس النسبة" إلى حقيقة أن القياس يعتمد على نسبة إشارتي انبعاث من زوج من الفلوروفورات المانحة والمستقبلة FRET. لتحديد نشاط التحليل المستهدف ، تستخدم مجسات FRET النسبية نسبة شدة الانبعاثات من المستقبل / المانح (أو ، في بعض الحالات ، نسبة المتبرع / المستقبل المقلوب). ترتبط النسبة ارتباطا مباشرا بكفاءة FRET. يوفر آلية تطبيع ذاتية تقلل من ضوضاء الخلفية وتأخذ في الحسبان الاختلافات في ظروف الإضاءة وتركيز المسبار3.
تشمل التطبيقات الحديثة المثيرة للاهتمام لطريقة قياس النسبة استخدامها في أجهزة الاستشعار الحيوية الكهروكيميائية النسبية للكشف عن الحمض النووي للورم المتداول (ctDNA) 4،5 ، في الآلات النانوية الحيوية التي تعمل بالحركة البراونية للكشف عن FRET للمرحلة البلعمية من موت الخلايا المبرمج6 ، ولوضع العلامات السريعة FRET وتحليل إزالة البلعمة7. يعد نهج FRET النسبي الموصوف في هذا العمل مفيدا للتقييم الكمي لنشاط DNase. تستند قياسات الفحص إلى نسب انبعاثات زوج FRET. نظرا لقدرته على اكتشاف انقسام الحمض النووي البسيط والبطيء ، فإن الاختبار مناسب بشكل خاص للتحقيق في النشاط المحلل للنواة الضعيف الذي يتطلب فترات مراقبة أطول وللتجارب على مستويات الأس الهيدروجيني المختلفة.
هنا ، يتم توضيح بعض المزايا المحددة لمقايسة FRET النسبية من خلال تطبيقه لدراسة نشاط DNase لمثبط الإيلاستاز النوكلياز والكريات البيض الضعيف (LEI). يتضمن التقرير بروتوكولا مفصلا مع إرشادات خطوة بخطوة ووصفا لتحليل بيانات قياس النسبة.
وصف مسبار FRET النسبي
مسبار FRET النسبي هو أوليغو DNA 38-mer مكمل ذاتيا يحمل زوج FRET المتبرع والمتقبل من FAM-TAM (Fluorescein-Tetramethylrhodamine). تسلسله هو 5'-AAGGGT (TAM) CCTGCTGCAGGACCCTTAACGCATTATGCGT (FAM) T-3'. يفترض 38-mer ذاتي التهجين شكلا أساسيا ، يتألف من دبابيس شعر متصلة من 23 و 15 نيوكليوتيد ، والتي تضع اثنين من الفلوروفورات 23.8 Å من بعضهما البعض. هذا أقرب بكثير من نصف قطر فورستر لهذا الزوج ، R0 = 55 Å8. يتوافق هذا التحديد مع كفاءة عالية جدا لنقل الطاقة من المانح إلى المستقبل7: EFRET = 0.993477. نتيجة لذلك ، عند إضاءته عند الطول الموجي للإثارة FAM (488 نانومتر) ، ينبعث مسبار FRET من التألق عند الطول الموجي للانبعاث للمستقبل TAM (580 نانومتر) ، بينما يتم قمع انبعاث FAM (525 نانومتر).
يوضح الشكل 1 أ الهيكل الثانوي الذي تنبأ به UNAFold للمسبار ، مع حلقات صغيرة في كل من قمم دبوس الشعر بسبب العائق الفراغي من الانحناء الضيق. يتم عرض الرسم التخطيطي للكشف عن كسر الحمض النووي بواسطة مسبار FRET في الشكل 1 ب. يظهر أن كسر المسبار قليل بواسطة DNase يفصل زوج FRET الخاص به. ينتج عن هذا الفصل تغييرات جذرية في أطياف الانبعاث لكل من الفلوروفورات في المسبار. يعرض الشكل 1C أطياف انبعاث المسبار قبل وبعد انقسامه ويوضح أن انقسام زوج FRET بعد انقسام مسبار DNase II يزيد من انبعاث المتبرع عند 525 نانومتر (ID 525 نانومتر) ويقلل في نفس الوقت من انبعاث المستقبل عند 580 نانومتر (IA 580 نانومتر). يوضح الشكل 1D نسب PAGE gel و FRET المقابلة لأطياف الإرسال. أنتج انقسام مسبار DNase II شريطين عريضين يقابلان شظايا 12-16-mer FAM (أخضر) و 20-24-mer TAM (أحمر) ، مما يشير إلى قطع عشوائية ل 38-mer على جانبي T23 بالقرب من منطقة الاتصال بين دبابيس الشعر.
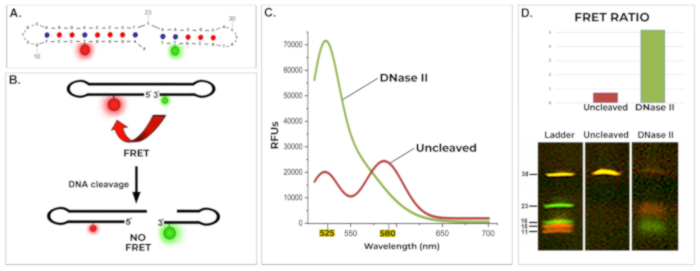
الشكل 1: هيكل وتشغيل مسبار FRET النسبي. (أ) الهيكل الثانوي المتوقع لمسبار FRET الذي تم إنشاؤه بواسطة UNAFold. (ب) التمثيل التخطيطي للمسبار العامل FRET. مسبار FRET النسبي هو قليل النوكليوتيدات 38 مير على شكل ديلة مسمى بمتبرع FRET (FAM) ومتقبل (TAM) على مسافة FRET فعالة تبلغ 23.8 Å ، مما يضمن كفاءة FRET بنسبة >99٪. انقسام المسبار قليل بواسطة DNase يفصل زوج FRET ، مما يلغي FRET. (ج) أطياف الانبعاثات لمسبار FRET قبل وبعد الانقسام بوساطة DNase II. قبل الانقسام ، يتم قمع انبعاث FAM ، ويكون انبعاث TAM بارزا. يفصل الانقسام بوساطة DNase بين FAM و TAM ، ويستعيد انبعاث FAM (ذروة 525 نانومتر) ويلغي انبعاث TAM (انخفاض 580 نانومتر). λالإثارة = 488 نانومتر. (د) التقييم النسبي والكهربي لمسبار FRET قبل وبعد انقسام DNase II. اللوحة العلوية: نسب FRET (RD / A = ID 525 نانومتر / IA 580 نانومتر) ، تمثل مقياسا كميا لحالة المسبار. أحمر: غير مشقوق. الأخضر: DNase II-مشقوق. اللوحة السفلية: تغيير طبيعة هلام PAGE المقابل للبيانات الفلورومترية. ينتج عن انقسام DNase II شظايا تحمل علامة FAM (12-16 nt ، خضراء) وشظايا تحمل علامة TAM (20-24 nt ، أحمر) ، مما يشير إلى الانقسام بالقرب من الاتصال بين دبابيس الشعر ، ويحيط ب T23. يظهر التحكم غير المشقوق التألق الأصفر. سلم: قليل النوكليوتيدات المسماة FAM و TAM المقابلة للأجزاء 5 و 3 من المسبار 38 مير ، مع ملصقات الفلورسنت في مواقعها الأصلية. ظروف التفاعل: 10 ملي مولار من أسيتات الصوديوم (درجة الحموضة 5.2) ، 1 جزء من الميكرولتر / ميكرولتر مسبار FRET ، 0.0033 وحدة / ميكرولتر DNase II ، 24 ساعة عند 37 درجة مئوية. RD / A = ID 525 نانومتر / أناأ 580 نانومتر ؛ λالإثارة = 488 نانومتر. UNAFالظروف القديمة: 1 ميكرومتر مسبار FRET ، 10 ملي مولار Na + ، 0 ملي مولار2+ ، 37 درجة مئوية. الرجاء النقر هنا لعرض نسخة أكبر من هذا الرقم.
وفي حين أن التغيرات في أطياف البث الاختبارية الفردية واضحة، فإن المقارنات الكمية بين الأعداد الكبيرة من أطياف البث تتطلب معلمة كمية أكثر سهولة في الاستعمال وأكثر إحكاما. يتم لعب هذا الدور من خلال نسبة FRET. تنتمي طريقة التألق المعروضة إلى مجموعة من الأساليب النسبية التي تعتمد على النسب المباشرة (ثنائية القناة) لانبعاثات التألق لأعضاء زوج FRET لتقييماتهم الكمية2،9.
يستخدم النهج نسبة انبعاثات المانحين / المستقبلين (RD / A = ID 525 nm / IA 580 nm) ، والتي ترتبط بكفاءة FRET وتميز كمية حالة 38-mer (مكسورة أو سليمة). توفر نسبة ID / IA آلية تطبيع ذاتي تمثل بطبيعتها الاختلافات في عوامل مثل تركيز المسبار وشدة الإثارة والتبييض الضوئي3. هذا النهج مناسب فقط لمجسات FRET التي يرتبط بها مانح ومتقبل داخل نفس المسبار ، حيث تكون نسبتها معروفة وثابتة. لهذا السبب ، لا يحتاج النهج إلى النظر في الإثارة المباشرة للحديث المتبادل للمتقبل أو المتبرع2. يضمن القياس المتكافئ الثابت للمتبرع والمستقبل للمسبار عدم تأثر نسب انبعاث المانح / المستقبل بهذه الاختلافات وتعكس بشكل مباشر حالة المسبار. نتيجة لذلك ، توفر نسبة انبعاثات المتبرع إلى المستقبل معلمة انقسام الحمض النووي الكمي مع تطبيع إشارةمدمج 2،3.
يستخدم الفحص نسبة ID / I A (بدلا من نسبة IA / ID ) لأن هذه النسبة تصف توقف FRET بعد انقسام المسبار وبالتالي تتغير في نفس اتجاه زيادة نشاط DNase مع زيادة الانقسام. يتضح ذلك من خلال الشكل 1D ، والذي يوضح نسبة FRET للمسبار النسبي والرحلان الكهربائي PAGE قبل وبعد انقسامه بواسطة DNase II ، وكلاهما يتوافق مع الأطياف في الشكل 1C. لإثبات راحة مقايسة FRET النسبية ، والوقت الاقتصادي ، وسهولة الاستخدام ، تم تطبيقه للكشف عن ودراسة نشاط DNase لمثبط الإيلاستاز النوكلياز والكريات البيض الضعيف (LEI).
معرف كيان قانوني ضعيف للنوكلياز
معرف الكيان القانوني لمثبطات الإنزيم البروتيني قابل للاستقرار بشكل طبيعي، أي غير متوازن طوبولوجيا. هذه الميزة ضرورية لآليتها المثبطة. عندما يشق البروتياز المستهدف حلقة الموقع التفاعلي لمعرفات الكيانات القانونية (RSL)، يخضع جزيء مثبط الإنزيم البروتيني لتغيير توافقي جذري، مما يؤدي إلى شد البروتياز ميكانيكيا إلى شكل غير نشط10،11. ومن اللافت للنظر أن هذا يكسر أيضا جزيء معرفات الكيانات القانونية نفسه ويكشف عن موقع DNase مشفى مغطى في حظره الأصلي، وبالتالي تحويل معرفات الكيانات القانونية إلى نوكلياز داخلي نشط L-DNase II (DNase II المشتق من معرفات الكيانات القانونية)11،12. يمكن أيضا أن يتعرض موقع DNase الخفي من خلال تمسخ معرفات الكيانات القانونية وكسرها الناجم عن حضانة معرفات الكيانات القانونية طوال الليل عند درجة الحموضة 2 في حمض الكبريتيك10،13. أظهر استخدام مقايسة FRET هذه لدراسة معرفات الكيانات القانونية أن علاجات التمسخ الكيميائي القاسية والانقسام الأنزيمي المستهدف ليست مطلوبة بشكل صارم لكشف نشاط التحلل النووي الكامن لمعرفات الكيانات القانونية.
يصف التطبيق والبروتوكول المقدمان لنهج FRET النسبي الكشف عن نشاط DNase الضعيف الموجود بطبيعته في معرفات الكيانات القانونية العادية غير المشوهة. كان اكتشاف القدرة المحللة للنواة الجوهرية لمعرفات الكيانات القانونية غير المشقوقة وتحليلها ممكنا بسبب ملاءمة الاختبار لفترات طويلة من الملاحظة عند مستويات الأس الهيدروجيني الحمضية المختلفة.
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
البروتوكول
تقييم نشاط DNase عن طريق نقل طاقة الرنين الفلوري النسبي
هذه الطريقة مناسبة للكشف عن وتحليل خصائص الحالة النووية للبروتين القابل للذوبان. لفحص اعتماد الأس الهيدروجيني ل DNase الذي تم فحصه ، يقوم الإجراء في نفس الوقت بتقييم نشاط DNase عبر مجموعة من قيم الأس الهيدروجيني. يمكن استخدام هذه التقنية لدراسة أنشطة نوكلياز ضعيفة وبطيئة. تفاصيل الكواشف والمعدات المستخدمة في هذه الدراسة مدرجة في جدول المواد.
1. إعداد مكونات مزيج الحضانة لنظام التقييم الفلورومتري
- قم بإعداد المحاليل العازلة في نطاقات الأس الهيدروجيني المرغوبة. بالنسبة لنطاق الأس الهيدروجيني من 6.8 إلى 8.0 ، استخدم مخازن Tris-HCl أو الفوسفات. استخدم المخزن المؤقت Tris-HCl لظروف الأس الهيدروجيني الفسيولوجية (الرقم الهيدروجيني 7.2 إلى 8.0) نظرا لاستقراره والحد الأدنى من التداخل مع نشاط الإنزيم.
ملاحظة: تعتبر المخازن المؤقتة للفوسفات مناسبة لنطاق الأس الهيدروجيني هذا ولكنها أقل ملاءمة لقيم الأس الهيدروجيني الأعلى (>7.5) بسبب قيود سعة التخزين المؤقت.
للحصول على نطاق الأس الهيدروجيني من 4.2 إلى 7.2 ، استخدم مخازن الأسيتات أو السترات. يعتبر المخزن المؤقت للأسيتات فعالا في ظروف الأس الهيدروجيني المنخفض ، وصولا إلى درجة الحموضة 4.2.
ملاحظة: يمكن استخدام المخزن المؤقت للسترات عند قيم الأس الهيدروجيني الأعلى قليلا (الرقم الهيدروجيني 5.6 إلى 7.2) ويوفر سعة تخزين مؤقت جيدة. هذه المخازن المؤقتة مناسبة لدراسة نشاط DNase في ظل الظروف الحمضية إلى المحايدة. استخدمت الدراسة المقدمة لنشاط التحلل النووي لمعرفات الكيانات القانونية 10 ملي مولار من أسيتات الصوديوم مع درجة حموضة تتراوح من 4.8 إلى 6.5. - خفف عينة البروتين إلى تركيز مناسب في كل محلول عازل. عندما يكون النشاط في العينة غير معروف تماما ، قم بإعداد مجموعة من تخفيفات البروتين. يعتمد التخفيف الأمثل على قوة نشاط DNase ويجب تحديده تجريبيا عن طريق اختبار العديد من تركيزات البروتين.
ملاحظة: استخدمت الدراسة المقدمة للنشاط الخاسي للنواة الضعيف للغاية لمعرفات الكيانات القانونية بتركيز 1 ميكرومتر.- تحقق دائما من الرقم الهيدروجيني للمحلول النهائي عند استخدام المخازن المؤقتة عالية التركيز ، لأن الرقم الهيدروجيني للمخازن المركزة يمكن أن يتغير عند التخفيف.
- تحضير محلول مسبار FRET النسبي في الماء الخالي من النوكلياز. استخدم تركيزات مسبار FRET القريبة من 1 ميكرومتر (1 ميكرومول / ميكرولتر). تجنب استخدام تركيزات عالية جدا من المسبار.
قم بتسخين وتبريد محلول المسبار بسرعة قبل التطبيق لضمان التفكك الكامل لأزواج القواعد غير المرغوب فيها.
ملاحظة: استخدمت الدراسة المقدمة للنشاط المحلل النووي لمعرفات الكيانات القانونية تركيزا قدره 1 ميكرومتر (1 بمول / ميكرولتر) من مسبار FRET في الماء الخالي من النوكلياز.
2. تحريض تفاعل DNase باستخدام مسبار FRET النسبي كركيزة
- قم بإعداد ثلاثة آبار في صفيحة 96 بئرا لكل حالة من حالات الأس الهيدروجيني المراد اختبارها. قم بتضمين ثلاثة آبار إضافية ، لكل منها الضوابط الإيجابية والسلبية.
- في كل بئر لسلسلة الأس الهيدروجيني ، اجمع بين ما يلي:
70 ميكرولتر من الماء الخالي من النوكلياز
10 ميكرولتر من 10X Buffer (مخزن مؤقت من اختيارك)
10 ميكرولتر من العينة مع البروتين
10 ميكرولتر من محلول المسبار النسبي (تركيز مخزون 10 pmol / μL)
ملاحظة: استخدمت الدراسة المقدمة للنشاط المحلل للنواة لمعرفات الكيانات القانونية في الأس الهيدروجيني الحمضي المخزن المؤقت 10X التالي: 100 ملي مولار أسيتات الصوديوم الأس الهيدروجيني 5.2 - في كل بئر تحكم إيجابي ، اجمع بين ما يلي:
79 ميكرولتر من الماء الخالي من النوكلياز
10 ميكرولتر من 10X DNase II Buffer (100 ملي مولار Na Acetate الرقم الهيدروجيني 5.2)
0.33 ميكرولتر من DNase II (مخزون 1 وحدة / ميكرولتر)
10 ميكرولتر من محلول المسبار النسبي (تركيز مخزون 10 pmol / μL)
ملاحظة: بالنسبة للدراسات في درجة الحموضة الحمضية ، استخدم DNase II كعنصر تحكم إيجابي. عند تقييم نشاط DNase بالقرب من الرقم الهيدروجيني 7 (على وجه التحديد الرقم الهيدروجيني 6.5-8) ، قم بالتبديل إلى DNase I والمخزن المؤقت المرتبط به (على سبيل المثال ، 10 ملي مولار Tris-HCl ، 2.5 ملي مولار MgCl2 ، 0.5 ملي CaCl2 ، درجة الحموضة 7.6) بدلا من DNase II ومخزن الأسيتات. - في كل بئر تحكم سلبي ، أضف الماء الخالي من النوكلياز بدلا من عينة البروتين.
- في كل بئر لسلسلة الأس الهيدروجيني ، اجمع بين ما يلي:
- تحفيز تفاعل DNase عن طريق إضافة محاليل المسبار إلى مخاليط التفاعل التي تحتوي على بروتين DNase بقيم الأس الهيدروجيني المختلفة.
ملاحظة: امزج جميع العينات جيدا مع تجنب تكوين الفقاعات. بالنسبة لعينات DNase النشطة ، ابدأ جميع التفاعلات في أقرب وقت ممكن من وقت واحد. بالنسبة للنشاط الضعيف للغاية، مثل نشاط معرف الكيان القانوني، يكون التوقيت الصارم أقل أهمية.
ملاحظة: لضمان أوقات حضانة متسقة ، خاصة عند التعامل مع نوكليازات نشطة ، قم بترتيب إضافة العينات بناء على الوقت المطلوب لكل قياس. على سبيل المثال، إذا استغرق كل قياس 10 ثوان، أضف العينة الثانية بعد 10 ثوان من الأولى.
3. حضانة
- احتضان DNase المدروس باستخدام مسبار FRET النسبي عند 37 درجة مئوية في حمام مائي أو حاضنة منظمة لدرجة الحرارة لفترات زمنية مختلفة. استخدم نقاطا زمنية متعددة مع فترات أخذ عينات منتظمة لتقييم معدلات دوران الإنزيم بدقة وتقليل القطع الأثرية. استخدمت الدراسة المقدمة للنشاط المحلل للنواة الضعيف للغاية لمعرفات الكيانات القانونية حضانات لمدة 24 ساعة لتسجيل التفاعل المحلل للنواة البطيء.
ملاحظة: حدد وقت الحضانة الأمثل في التجارب الأولية ، لأنه يعتمد على قوة DNase المدروسة. قد يتطلب النوكلياز النشط وقتا قصيرا جدا لإكمال انقسام المسبار ، لذا ابدأ بحضانة لمدة 15-30 دقيقة. إذا كانت العينة مركزة للغاية ، وكان التفاعل سريعا جدا ، فيجب تقليل تركيز البروتين. إذا كان بروتين العينة ضعيفا جدا ، يمكن أن يزداد وقت الحضانة حسب الحاجة.
4. تطبيع الإشارة إلى نفس ظروف الأس الهيدروجيني
- أوقف جميع تفاعلات الحضانة عن طريق إضافة 100 ميكرولتر من 250 ملي مولار Tris-HCL (الرقم الهيدروجيني 8.0). تعمل هذه الخطوة أيضا على معادلة الأس الهيدروجيني عبر جميع العينات.
ملاحظة: تعد خطوة معادلة الأس الهيدروجيني مهمة عند مقارنة التفاعلات التي بدأت في ظل ظروف الأس الهيدروجيني المختلفة. يضمن الإجراء الفصل الكامل لشظايا المسبار مما يزيد من الإشارة القائمة على FRET. بالإضافة إلى ذلك ، يتم تقليل انبعاث الفلوروفور FAM للمسبار في الأس الهيدروجيني الحمضي وهو الأمثل عند درجة الحموضة 8.0. بالنسبة للعينات ذات القوة الأيونية الأعلى من تلك المستخدمة في هذه الدراسة ، قد تكون هناك حاجة إلى محلول معادلة أكثر تركيزا (>250 ملليمتر) ودرجة حموضة أعلى (>8.0) لتحقيق تعديل فعال للأس الهيدروجيني.
ملاحظة: يوقف الرقم الهيدروجيني القلوي بشكل فعال نشاط نوكليازات الحمض مثل LEIS، كما هو موضح في الدراسة الحالية. بالنسبة للنوكليازات المحايدة أو القلوية ، يجب تحديد طرق التعطيل المحددة المناسبة وتطبيقها قبل تقييم الإشارة.
5. الكشف عن الإشارات الفلورومترية وحساب نسب FRET
- مباشرة بعد خطوة معادلة الأس الهيدروجيني ، استخدم مقياس الطيف فلوري لتسجيل أطياف الانبعاث لكل من الفلوروفورات المانحة والمتقبلة. قم بإجراء القياسات مباشرة في لوحة 96 بئرا عن طريق إثارة فلوروفور المتبرع عند 488 نانومتر والكشف في نفس الوقت عن الانبعاثات عند 525 نانومتر (المانح) و 580 نانومتر (إشارة المستقبل المشتقة من FRET).
- استخدم شدة التألق المسجلة لتقييم نشاط DNase في كل عينة. تطبيق الأساليب الإحصائية المناسبة لتحليل البيانات وتقييم الأهمية.
ملاحظة: احسب نسبة FRET باستخدام الصيغة: RFRET = انبعاث المانحين عند 525 نانومتر/انبعاث المستقبل عند 580 نانومتر. في هذا الاختبار ، يعطل انقسام الحمض النووي FRET عن طريق فصل الفلوروفورات ، مما يؤدي إلى زيادة انبعاث المتبرع وانخفاض انبعاث المستقبل. يرفع هذا التحول نسبة FRET (RFRET) ، والتي تعمل كمؤشر على نشاط DNase.
6. التحقق المستند إلى الصفحة من الانقسام
- تحقق من انقسام مسبار FRET عن طريق إجراء الرحلان الكهربائي لهلام بولي أكريلاميد تغيير طبيعة (PAGE) 14. تم تمييز مسبار FRET ومنتجات الانقسام الخاصة به بالفلورسنت ومرئية دون تلطيخ إضافي.
ملاحظة: في الدراسة التمثيلية، تم تأكيد الانقسام بوساطة معرفات الكيانات القانونية لمسبار FRET 38 mer عن طريق تغيير طبيعة PAGE (انظر الشكل 2). وكشف التحليل أن معرفات الكيانات القانونية أنتجت شظايا تحمل علامة FAM من 6 إلى 8 مرات وشظايا تحمل علامة TAM، بما يتفق مع الانقسام بالقرب من قمم دبوس الشعر. يختلف هذا النمط عن ملف تعريف الجزء الذي تم إنشاؤه بواسطة DNase II.- قم بتحميل 15 ميكرولتر من كل عينة على جل PAGE متغير الطبيعة بنسبة 20٪.
- قم بتشغيل الجل لمدة 1 ساعة عند 100 فولت.
- احصل على صور هلامية باستخدام نظام توثيق مزود بكاميرا ملونة عالية الدقة.
ملاحظة: تم التقاط الصور في الدراسة التمثيلية باستخدام كاميرا SLR رقمية.
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
النتائج
تسلط هذه الدراسة التمثيلية الضوء على المزايا المحددة لنهج FRET النسبي القياسي للتحقيق في التفاعلات الأنزيمية البطيئة التي تتطلب فترات طويلة من المراقبة. على وجه الخصوص، يوضح التطبيق اكتشاف وتحليل نشاط DNase المتأصل في معرفات الكيانات القانونية باستخدام نظام FRET النسبي. تظهر نتائج هذه الدراسة في الشكل 2.
باستخدام هذا النهج، أظهرنا أن معرفات الكيانات القانونية تظهر نشاط DNase في ظل ظروف حمضية معتدلة ...
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
المناقشة
توضح هذه الدراسة تطبيق FRET النسبي القياسي للكشف عن نشاط DNase وتقييمه باستخدام مثبط إيلاستاز الكريات البيض الضعيف (LEI). يوفر النهج طريقة ملائمة وكمية لتقييم خصائص DNase للبروتينات والجزيئات الحيوية. بروتوكولها مباشر وإجراء تحليل البيانات المباشر والبسيط. يستخدم الاختبار مسبارا FRET 38 mer يتحمل الحضانات الطويلة عند درجة حموضة حمضية مختلفة. هذه الخاصية ، كما أوضحنا ، تمكن الفحص من اكتشاف انقسام الحمض النووي البسيط والبطيء. يوفر هذا الاستقرار ميزة مميزة على الطرق الأخرى القائمة على المسب...
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
الإفصاحات
المؤلفون ليس لديهم ما يكشفون عنه.
شكر وتقدير
تم دعم هذا البحث من خلال منحة R01 GM148812 من المعهد الوطني للعلوم الطبية العامة ، المعاهد الوطنية للصحة. بمنح R21 CA255979 من المعهد الوطني للسرطان ، المعاهد الوطنية للصحة ؛ ويمنح R21 AG073887 و R21 AG071978 كلاهما من المعهد الوطني للشيخوخة ، المعاهد الوطنية للصحة (جميعها VD).
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| 96 لوحة بئر | صقر | 353219 | |
| مسبار الحمض النووي FRET | IDT DNA | 5'-AAG GGT(TAM)CCT GCT GCA GGA CCC TTA ACG CAT TAT GCG TT (FAM)T- 3'; FAM – فلورسين-دي تي. تام – رباعي ميثيل رودامين-dT. | |
| DNase II | سيجما ألدريتش | D8764 | |
| كاميرا EVOLT الرقمية SLR | أوليمبوس | [إ500] | |
| جهاز الرحلان الكهربائي هلام مع مزود الطاقة | بيو راد | ||
| لي | نوفوبروتين | سي جيه 01 | |
| نظام تصوير الجل LiCOR | ليكور | ||
| مياه خالية من النوكلياز | إنفيتروجين | 10977015 | |
| جل PAGE قبل الصب | إنفيتروجين | EC68852 | |
| محلول عازلة أسيتات الصوديوم درجة الحموضة 5.2 | سيجما ألدريتش | S2899-100 مل | |
| مقياس الطيف الفلوري | تيكان | سافير 2 |
المراجع
- A guide to ratiometric fluorescence. , AZoM. https://www.azom.com/article.aspx?ArticleID=16081 (2018).
- Müller, S. M., Galliardt, H., Schneider, J., Barisas, B. G., Seidel, T. Quantification of Förster resonance energy transfer by monitoring sensitized emission in living plant cells. Front Plant Sci. 4, 413(2013).
- Lakowicz, J. R. Principles of fluorescence spectroscopy. , Springer Science & Business Media. (2006).
- Chai, H., Tang, Y., Guo, Z., Miao, P. Ratiometric electrochemical switch for circulating tumor DNA through recycling activation of blocked DNAzymes. Anal Chem. 94 (6), 2779-2784 (2022).
- Liu, G., Ma, X., Tang, Y., Miao, P. Ratiometric fluorescence method for ctDNA analysis based on the construction of a DNA four-way junction. Analyst. 145 (4), 1174-1178 (2020).
- Minchew, C. L., Didenko, V. V. Nanoblinker: Brownian motion powered bio-nanomachine for FRET detection of phagocytic phase of apoptosis. PLoS One. 9 (9), e108734(2014).
- Didenko, V. V. Express FRET labeling and analysis of phagocytic clearance. Methods Mol Biol. 1644, 3-11 (2017).
- Domingo, B., Sabariegos, R., Picazo, F., Llopis, J. Imaging FRET standards by steady-state fluorescence and lifetime methods. Microsc Res Tech. 70 (12), 1010-1021 (2007).
- Lee, M. H., Kim, J. S., Sessler, J. L. Small molecule-based ratiometric fluorescence probes for cations, anions, and biomolecules. Chem Soc Rev. 44 (13), 4185-4191 (2015).
- Torriglia, A., Leprêtre, C., Padrón-Barthe, L., Chahory, S., Martin, E. Molecular mechanism of L-DNase II activation and function as a molecular switch in apoptosis. Biochem Pharmacol. 76 (11), 1490-1502 (2008).
- Padron-Barthe, L., Leprêtre, C., Martin, E., Counis, M. F., Torriglia, A. Conformational modification of serpins transforms leukocyte elastase inhibitor into an endonuclease involved in apoptosis. Mol Cell Biol. 27 (11), 4028-4036 (2007).
- Torriglia, A., Martin, E., Jaadane, I. The hidden side of SERPINB1/leukocyte elastase inhibitor. Semin Cell Dev Biol. 62, 178-186 (2017).
- Torriglia, A., et al. L-DNase II, a molecule that links proteases and endonucleases in apoptosis, derives from the ubiquitous serpin leukocyte elastase inhibitor. Mol Cell Biol. 18 (6), 3612-3619 (1998).
- Summer, H., Grämer, R., Dröge, P. Denaturing urea polyacrylamide gel electrophoresis (Urea PAGE). J Vis Exp. (32), e1485(2009).
- Lauková, L., Konečná, B., Janovičová, Ľ, Vlková, B., Celec, P. Deoxyribonucleases and their applications in biomedicine. Biomolecules. 10 (7), 1036(2020).
- Minchew, C. L., Didenko, V. V. Dual detection of nucleolytic and proteolytic markers of lysosomal cell death: DNase II-type breaks and cathepsin D. Methods Mol Biol. 1554, 229-236 (2017).
- Nucleases (DNases and RNases). , Sigma-Aldrich. https://www.sigmaaldrich.com/US/en/products/protein-biology/proteins-and enzymes/nucleases (2025).
- Altairac, S., Zeggai, S., Perani, P., Courtois, Y., Torriglia, A. Apoptosis induced by Na+/H+ antiport inhibition activates the LEI/L-DNase II pathway. Cell Death Differ. 10 (5), 548-557 (2003).
- Li, J. J., Geyer, R., Tan, W. Using molecular beacons as a sensitive fluorescence assay for enzymatic cleavage of single-stranded DNA. Nucleic Acids Res. 28 (11), E52(2000).
- Ma, C., Tang, Z., Huo, X., Yang, X., Li, W., Tan, W. Real-time monitoring of double-stranded DNA cleavage using molecular beacons. Talanta. 76 (2), 458-461 (2008).
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
إعادة الطباعة والأذونات
