يوفر هذا البروتوكول وصفا شاملا لطريقة لتسجيل إشارات الكالسيوم المتزامنة من الخلايا العصبية والخلايا النجمية عبر مناطق دماغية متعددة مرتبطة بالذاكرة ويظهر تطبيقه خلال نموذج سلوك التعلم والذاكرة.
يتطلب اشتراك JoVE لعرض هذا المحتوى. تسجيل الدخول أو ابدأ نسخة تجريبية مجانية
مقالة منهجية
طريقة القياس الضوئي الليفية ثنائية اللون لتسجيل نشاط الخلايا العصبية النجمية عبر مناطق دماغية متعددة أثناء التعلم وسلوكيات الذاكرة
في هذه المقالة
ملخص
الملخص
يعتمد التعلم والذاكرة بشكل حاسم على التنسيق بين الخلايا العصبية والخلايا النجمية عبر مناطق دماغية موزعة. تقوم الخلايا النجمية بتنظيم انتقال المشبك وإثارة الخلايا العصبية، مما يساهم في ترميز وترسيخ المعلومات داخل الدوائر المرتبطة بالذاكرة. تعد الارتباطات داخل وبين المناطق بين الخلايا النجمية والعصبونات حيوية لفهم اضطرابات الذاكرة والإدراك. ومع ذلك، لا تزال المراقبة المتزامنة لنشاط الخلايا النجمية والنشاط العصبي عبر مناطق متعددة أثناء سلوك الذاكرة تحديا تقنيا. هنا، يتم تقديم طريقة تسهل تسجيل إشارات الكالسيوم هذه في نفس الوقت من الخلايا النجمية والخلايا العصبية في عدة مناطق مرتبطة بالذاكرة. تجمع هذه الاستراتيجية بين مؤشرات الكالسيوم المشفرة جينيا ثنائية اللون الخاصة بنوع الخلية (GECIs)، ونظام فوتومترية الألياف متعدد القنوات، وتتبع سلوكي متزامن لتحقيق مراقبة فورية لنشاط الخلايا العصبية والخلايا النجمية في القشرة الجبهية الإنسية (mPFC)، ومنطقة CA1 في الحصين، والقشرة الإنسية الإنسية (MEC). تظهر النتائج التمثيلية ديناميكيات الكالسيوم المنسقة عبر المناطق وأنواع الخلايا خلال مهمة التعرف على الأجسام. توفر هذه الطريقة إطارا تجريبيا قابلا للتكرار وفعالا للتحقيق في تفاعلات الخلايا النجمية مع الخلايا العصبية التي تقوم عليها عمليات التعلم والذاكرة.
المقدمة
التعلم والذاكرة هما عمليتان معرفيتان أساسيتان تتعلق باكتساب وتخزين واسترجاع المعلومات، وهما ضروريان لتكوين السلوكيات التكيفية. تدعم هذه العمليات مجموعة متنوعة من الوظائف المعقدة، مثل التنقل المكاني، والتعرف على الأشياء، والارتباط بالسياقات، واتخاذ القرار. بالإضافة إلى ذلك، تظهر الأمراض المختلة الذهنية، بما في ذلك مرض الزهايمر، والأمراض المعرفية المرتبطة بالعمر، وإصابات الدماغ الرضحية، تشوهات في تكوين الذاكرة 1,2,3. لذلك، يتطلب فهم شامل للأساس العصبي للتعلم والذاكرة توضيح التفاعل الديناميكي بين أنواع الخلايا المختلفة. يحدث هذا التفاعل داخل وعبر هذه المناطق أثناء الترميز واسترجاع المعلومات.
تقليديا، كان يعتقد أن تكوين الذاكرة يتحدد بشكل رئيسي بنشاط الخلايا العصبية. ومع ذلك، أظهرت الأبحاث المكثفة أن الخلايا النجمية تنظم بشكل كبير ترميز المعلومات وتجميعها واسترجاعها. تحقق ذلك من خلال تعديل الانتقال المشبكي، وتنظيم استثارة الخلايا العصبية، وإطلاق الناقلات الدبقية، وتوفير الدعم الأيضي 4,5,6,7,8. تتفاعل الخلايا النجمية ديناميكيا مع الخلايا العصبية، ويشار إلى الاتصال ثنائي الاتجاه مجتمعة باسم "شبكة الخلايا النجمية-العصبونية"9,10,11. لذلك، فإن فهم التفاعلات المنسقة بين الخلايا النجمية والعصبونات أمر بالغ الأهمية لفهم آليات التعلم والذاكرة الخلوية والشبكية.
يعتمد التعلم والذاكرة على التكامل الديناميكي للمعلومات عبر مناطق دماغية متعددة. التفاعلات بين الخلايا النجمية والعصبونات لا تقتصر على الدوائر الدقيقة المحلية فقط، بل تمتد عبر مناطق دماغية موزعة مرتبطة بالذاكرة، بما في ذلك القشرة الجبهية الإنسية (mPFC)، ومنطقة CA1 في الحصين، والقشرة الإنسية الإنسية (MEC). وقد تم ربط mPFC بترسيخ الذاكرة وتنظيم الذاكرة على المدى الطويل؛ يعد CA1 مركزيا في ترميز وإعادة تنشيط الذاكرة الحلقية؛ ويعمل MEC كمركز لتكامل المعلومات المكانية ومتعددة الوسائط، حيث يوفر مدخلات أساسية لدائرة الحصين-القشرية 12,13,14,15,16. تشير الأدلة المتراكمة إلى أن الخلايا النجمية في هذه المناطق تشارك في ديناميكيات منسقة عبر المناطق مع الخلايا العصبية، وتلعب أدوارا رئيسية في تدفق المعلومات وانتقالات الحالة أثناء التعلم والذاكرة17,18.
على الرغم من زيادة الاعتراف بالوظيفة التآزرية للخلايا النجمية والخلايا العصبية في معالجة الذاكرة، إلا أن التحدي التقني الكبير لا يزال قائما في مراقبة نشاط الكالسيوم في كل من الخلايا النجمية والعصبونات العصبية عبر مناطق دماغية متعددة مرتبطة بالذاكرة أثناء سلوك الحيوانات الحرة الحرة. يوفر التصوير بفوتونين تصويرا مكانيا عالي الدقة لكنه مقيد بالعمق وتثبيت الرأس19،20؛ تمكن الفيزيولوجيا الكهربائية متعددة القنوات من تسجيلات عالية الدقة الزمنية لكنها تفتقر إلى خصوصية نوع الخلية ولا تستطيع تمييز إشارات الكالسيوم النجمية. لذا، تم تطوير طريقة تتيح تسجيل إشارات الكالسيوم النجمية والخلايا العصبية في نفس الوقت عبر مناطق دماغية متعددة مرتبطة بالذاكرة في الفئران الحرة. تشير مؤشرات الكالسيوم المشفرة وراثيا (GECIs) عن ديناميكيات Ca2+ داخل الخلية من خلال تغيرات شكلية معتمدة على CaM2+ في CaM/M13 التي تعدل فلورة الفلورفورات المشفرة وراثيا. تستخدم طرق GECI ثنائية اللون مؤشرات قابلة للفصل طيفيا، مثل حساسات الكالسيوم الأخضر والأحمر، إلى جانب محفزات خاصة بنوع الخلية لتمكين تسجيل نشاط Ca2+ النجمي والخلوي في نفس منطقة الدماغ بشكل متزامن. من خلال دمج GECIs ثنائية اللون الخاصة بنوع الخلية (GCaMP6f و jRGECO1a) ونظام الفوتومترية الليفية متعدد القنوات، تم تحقيق مراقبة لحظية لنشاط الكالسيوم في الخلايا العصبية والخلايا النجمية في mPFC وCA1 وMEC. علاوة على ذلك، وباستخدام مهمة التعرف على الأشياء الجديدة (NOR) كمثال، تم إثبات ديناميكيات الكالسيوم المنسقة عبر مناطق الدماغ وأنواع الخلايا في مهام التعلم. تعد هذه الطريقة بروتوكولا قابلا للتكرار والموثوق والقابل للتوسع للتحقيق في نشاط تجمع الخلايا النجمية والخلايا العصبية عبر مناطق الدماغ أثناء التعلم والذاكرة.
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
البروتوكول
تمت الموافقة على جميع تجارب الحيوانات من قبل لجنة العناية واستخدام الحيوانات في الجامعة الطبية العسكرية الثالثة (رقم الموافقة على أخلاقيات الحيوانات: AMUWEC20230126) وأجريت وفقا لدليل الجامعة الطبية العسكرية الثالثة لرعاية واستخدام الحيوانات المخبرية لضمان المعاملة الأخلاقية للحيوانات. المواد المستخدمة والمواد المستخدمة مدرجة في جدول المواد.
لضمان سلامة المجرب، تم إجراء جميع الإجراءات التجريبية التي تشمل الحيوانات الحية والناقلات الفيروسية مع ارتداء ملابس واقية وقفازات معقمة وقناع. تم تعقيم جميع الأجهزة جيدا قبل الاستخدام، وتم تنظيف الأسطح التجريبية بنسبة 70٪ إيثانول قبل وبعد كل تجربة. تم التخلص من المواد المتبقية وفقا للوائح التخلص المؤسسية من النفايات. تم التعامل مع جميع المواد والمعدات لتجنب الاتصال المباشر بالجلد أو العينين.
1. تحضير الحيوانات والتعامل مع الفيروسات
- أضع فئران C57BL/6 عمرها 4 أشهر (كلا الجنسين) تحت دورة ضوء/ظلام مدتها 12 ساعة مع إمكانية الوصول إلى الطعام والماء بإطلاقا .
- إذابة الكميات من AAV5-GfaABC1D-GCaMP6f أو AAV9-hSyn-jRGECO1a على الجليد عند درجة حرارة 0–4 درجة مئوية مباشرة قبل الاستخدام.
- توصيل ميكروبايبت زجاجية مسحوبة (قطر الرأس 15–25 ميكرومتر) بحقنة وركبها على مضخة حقن دقيقة.
- ضع الفأر على منصة جراحية معقمة وقم بتعقيم جميع الأجهزة بنسبة 70٪ إيثانول.
2. حقن فيروسي بتقنية التجسيد
ملاحظة: تم استخدام استراتيجية حقن الفيروس ذات الخطوتين في هذه الدراسة. في ظل الظروف التجريبية الحالية، يمكن تنفيذ هذه الاستراتيجية بشكل موثوق ومستقر، ونمط التعبير الناتج يتوافق مع ملف المروج المتوقع الخاص بنوع الخلية.
- الجراحة الأولى: حقن AAV5-GfaABC1D-GCaMP6f (العداد: 7 ×10 12 vg/mL) للخلايا النجمية
- تحفز التخدير باستخدام 3٪ إيزوفلوران في غرفة، ثم الحفاظ على التخدير بنسبة 0.8٪–1.2٪ إيزوفلوران عبر مخروط أنف (وفقا لبروتوكولات معتمدة مؤسسيا).
- حافظ على درجة حرارة الجسم بين 37–38 درجة مئوية باستخدام وسادة تسخين ووضع مرهم العيون لمنع جفاف القرنية.
- قم بإزالة شعر فروة الرأس وقم بتعقيم الجلد جيدا. قم بعمل شق في منتصف المنتصف لكشف سطح الجمجمة.
- ضع الرأس في الأداة المجسمة، وضبط خياطات البريغما واللامبدا على نفس المستوى الأفقي، ثم عدل الإطار أكثر لضمان أن النقاط الجانبية 2 مم من البريغما على الجانبين مستوية.
- تحديد الإحداثيات المجسمة باستخدام أطلس دماغ الفأر، مع وجود بريغما كنقطة مرجعية.
mPFC: AP +1.8 مم، ML +0.3 مم، DV −3.0 مم
CA1: AP −2.1 مم، ML +1.6 مم، DV −1.2 مم
MEC: AP −4.5 مم، ML −2.9 مم، DV −2.0 مم - احفر فتحة جمجمة دائرية بقطر 0.6 مم فوق كل موقع، وحافظ على رطوبة الجاف الأم سليمة وغير مرتبة بعد فتح الجمجمة.
- املأ فيروس GCaMP6f في الحقنة بسرعة 5 نانولتر/ثانية وركب الحقنة في ذراع الستيريوتاكسيك.
- اخفض الماصة ببطء، ثم حقن 150 نانولتر بسرعة 0.6 نانولتر/ثانية، ثم اثبت لمدة 8 دقائق، ثم اسحب بسرعة 0.1 مم/ثانية. كرر هذا الإجراء لجميع المناطق.
- أغلق الشق بمادة لاصقة وترك أسبوعين للتعبير الفيروسي.
- الجراحة الثانوية: حقن AAV9-hSyn-jRGECO1a (العداد: 1 ×10 13 vg/mL) للخلايا العصبية.
ملاحظة: أجريت الجراحة بعد 14 يوما من أول حقنة فيروس.- تحفيز والحفاظ على التخدير كما هو موضح أعلاه (الخطوة 2.1.1).
- حافظ على درجة حرارة الجسم واحمي العينين.
- أعد فتح فروة الرأس على طول خط المنتصف واستوى الجمجمة.
ملاحظة: تم تسوية الجمجمة عن طريق محاذاة البريغما واللامبدا في نفس المستوى الأفقي. - حطام أنسجة شفاف في نفس المواقع التي ظهرت فيها نوافذ شق الجمجمة من الجراحة الأولى، مما يكشف عن الجاف الأم سليما.
- ضبط الإحداثيات باستخدام البريغما كنقطة مرجعية، وإجراء الحقن بدقة في نفس الإحداثيات والأعماق كما هو موضح سابقا.
- املأ فيروس jRGECO1a بسرعة 5 نانولتر/ثانية وقم بتركيب الحقنة.
- حقن 150 نانولتر بسرعة 0.6 نانولتر/ثانية، ابقيه لمدة 8 دقائق، ثم اسحب ببطء. كرر هذا الإجراء لجميع المناطق واترك 3 أسابيع للتعبير الفيروسي.
3. زرع مسبار الفوتومترية الليفية متعدد المواقع
ملاحظة: قم بإجراء الحقن مباشرة بعد حقن jRGECO1a.
- قم بتركيب العارضة البصرية في حامل ستيريوتاكسيك.
- ضع الألياف (حلقات 1.25 مم، قلب 200 ميكرومتر، NA 0.39) على ارتفاع 100–150 ميكرومتر فوق عمق حقن الفيروس:
mPFC: AP +1.8 مم، ML +0.3 مم، DV −2.9 مم
CA1: AP −2.1 مم، ML +1.6 مم، DV −1.1 مم
MEC: AP −4.5 مم، ML −2.9 مم، DV −1.9 مم - أغلق عملية فتح الجمجمة بمادة لاصقة وثبت الفيرول بأسمنت الأسنان.
4. تسجيل الفوتومترية الليفية متعددة القنوات
ملاحظة: لضمان التعبير المستقر والكامل لمؤشري الكالسيوم، تم إجراء الفوتومترية متعددة القنوات بالألياف الضوئية بعد ثلاثة أسابيع من الحقن الثاني للفيروس للتسجيل.
- تعود الفئران على نظام الألياف والساحة مرة واحدة يوميا لمدة ثلاثة أيام.
- بعد 3 أسابيع من التعبير الفيروسي، قم بتخدير الفأر لفترة وجيزة باستخدام 3٪ من الأيزوفلوران.
- ربط أحد طرفي الألياف البصرية المرفقة بنظام اكتساب الفوتومترية الألياف.
- اضبط ضوء الإثارة على طولين موجيين: 470 نانومتر و560 نانومتر.
- اضبط تردد الاستحواذ على 30 هرتز.
- ربط الفروع الثلاثة في الطرف الآخر من الألياف المرفقة بثلاث مناطق دماغية: القناة 1 إلى mPFC، القناة 2 إلى CA1، القناة 3 إلى MEC.
- ضع الفئران في منطقة مفتوحة بطول جانبي يبلغ 50 سم ودع الاستكشاف بحرية.
- بعد 10 دقائق، افصل الألياف وأعد الفئران إلى أقفاصها المنزلية.
- تسجيل الفوتومترية بالألياف خلال مهمة التعرف على الأجسام الجديدة
ملاحظة: نظف المنصة والأشياء بإيثانول بنسبة 75٪ قبل كل تجربة.- ضع جسمين متماثلين في أرباع متقابلة بشكل قطري.
- قم بتوصيل حزمة الألياف في حالة تخدير خفيف.
- دع الفئران تستكشف الأشياء لمدة 10 دقائق، ثم أعدها إلى أقفاص المنزل دون إزالة الألياف.
- قم بتسجيل الفوتومترية الليفية أثناء اختبار التعرف الجديد على الأجسام في الفئران.
ملاحظة: استبعد التجربة إذا كانت التشوهات في الحركة مفرطة بالنسبة لبيانات التسجيل المستقرة.- ضبط ليزرات التحفيز:
470 نانومتر ل GCaMP6f (الخلايا النجمية)
560 نانومتر ل jRGECO1a (الخلايا العصبية) - تسجيل إشارات الكالسيوم عند 30 هرتز، متزامنة مع تتبع الفيديو عند 30 هرتز. وضع ديود ليزر داخل إطار الفيديو (خارج مجال رؤية الفأرة) عند بدء الاقتناء ليكون علامة زمني.
- بعد عشر دقائق من مرحلة التعلم، استبدل أحد الأشياء بشيء جديد وأعد الفأرة لعشر دقائق من الاستكشاف أثناء التسجيل.
- افصل الألياف باستخدام الفيرول السيراميك وأعد الفئران إلى أقفاص المنزل.
- ضبط ليزرات التحفيز:
5. معالجة البيانات وتحليلها
ملاحظة: صنف الإشارة الزائدةCa 2⁺ في تسجيلات الفوتومترية الليفية كإشارة حقيقية فقط إذا كانت سعتها تتجاوز ثلاثة أضعاف الانحراف المعياري لنطاق الضوضاء21، 22، 23. اختبار التعرف على الأشياء الجديد (NORT) بروتوكول24:D التفاعلات المتعلقة بالأشياء هي الأحداث التي تلامس فيها الفئران الجسم جسديا، إما عن طريق وخزه أو شمه بأنوفها. لقياس الإشارة، عرف الخط الأساسي كمتوسط الإشارة خلال نافذة -2 إلى -1 ثانية (بالنسبة لبداية التفاعل عند t=0). اضبط نافذة تحليل الحدث المحيط لتمتد من ثانيتين قبل بدء كل تفاعل مع كائن، وفقا للبروتوكولات المحددة.
- استيراد آثار الفلورة إلى برامج التحليل.
ملاحظة: تم إجراء معالجة إشارة الفلورة باستخدام برنامج تحليل خاص يتبع سير عمل الفوتومترية الليفية القياسية. البرنامج نفسه ليس مفتوح المصدر ولا يمكن مشاركته. للاعتبارات المنهجية العامة المتعلقة بمعالجة إشارات الفوتومترية الأليافية، انظر تقارير المنهجية الأخيرة25. - قم بتصحيح الأساس ومحاذاة إشارات الكالسيوم مع بداية مهمة NOR باستخدام فيديو متزامن.
- حول ΔF/F إلى درجات Z للمقارنات بين المناطق والألوانالمزدوجة 9:
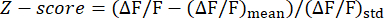
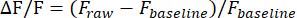
ملاحظة:
(ΔF/F)المتوسط: متوسط ΔF/F.
(ΔF/F)الانحراف المعياري ل ΔF/F.
Fخام: شدة الفلورة الخام.
خط أساس F: شدة التألق الأساسية (متوسط خلال فترة الأساس المحددة مسبقا). - قم بقياس مقاييس مثل المساحة تحت المنحنى (AUC) لاستجابات الخلايا النجمية واستجابات الكالسيوم العصبية أثناء استكشاف الأجسام الجديدة مقابل المألوفة.
6. التحقق النسيجي بعد التسجيل
- تخدير الفأر بجرعة زائدة من بنتوباربيتال حتى يتم تأكيد فقدان ردود الفعل تماما.
- أجر تروية عبر القلب باستخدام محلول ملحي طبيعي، تليها 4٪ بارافورمالديهيد (PFA).
- قم بتشريح الدماغ بعناية وثبته لاحقا في 4٪ من PFA عند 4 درجات مئوية لمدة 12–24 ساعة.
- انقل الدماغ إلى 30٪ سكاروز في PBS عند 4 درجات مئوية حتى يغوص النسيج للحماية بالتبريد.
- دمج الدماغ في مركب بدرجة حرارة القطع المثالية، تجميده، وقطع مقاطع تاجية (بسماكة 40 ميكرومتر) باستخدام جهاز تجميد.
- قم بإجراء تلوين فلوري مناعي للتحقق من تعبير الفيروس وتوزيع الألياف.
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
النتائج
استنادا إلى البروتوكول الموضح أعلاه، تم إجراء تسجيل ألياف متعدد المواقع ثنائي اللون مستهدفا mPFC وCA1 وMEC لفئران C57 التي تبلغ من العمر 4 أشهر. في هذه الدراسة، طبقنا استراتيجية حقن فيروسات ذات خطوتين لإدخال المؤشرين بشكل متسلسل. في ظل ظروفنا التجريبية، يمكن تنفيذ هذه الاستراتيجية بشكل موثوق ومستقر، ونمط التعبير الناتج يتوافق مع ملف المحفز المتوقع الخاص بنوع الخلية.
في اليوم 0، تم حقن AAV5-GfaABC1D-GCaMP6f في المناطق الثلاث، وفي اليوم 14، تم حقن AAV9-hSyn-NES-...
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
المناقشة
في هذه الدراسة، تم تطوير طريقة لتسجيل نشاط الكالسيوم النجمي ونشاط الكالسيوم العصبي في مناطق دماغية متعددة ذات صلة بالذاكرة في الفئران أثناء التعلم والسلوكيات المرتبطة بالذاكرة. على عكس التصوير الأحاديالمنطقة 28 أو تقنيات الفيزيولوجيا الكهربائية، يلتقط التسجيل المتزامن متعدد المناطق ديناميكيات منسقة عبر شبكات الذاكرة الموزعة، مما يثبت كأداة قوية للتحقيق في التعلم والذاكرة 9,29,30
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
الإفصاحات
لا يعلن المؤلفون عن أي تضارب مصالح، سواء كان ماليا أو غير ذلك.
شكر وتقدير
تم الاعتراف بالسيدة جيا لو على المساعدة التقنية، وتم الاعتراف ب Sai Te Xin Si (أداة الذكاء الاصطناعي) لمساعدتها في تحرير اللغة. حصل هذا العمل على دعم من المؤسسة الوطنية للعلوم الطبيعية في الصين (المنحة رقم 82371485، 82588301، 32400932) ومؤسسة العلوم الطبيعية في تشونغتشينغ، الصين (المنحة رقم CSTB2024NSCQ-JQX0024 2024NSCQ-MSX1104).
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| 75 RN 5uL SYR W/O NEEDLE | Hamilton | 7634-01 | يتصل بالميكروبايبت لإدخال الفيروس |
| AAV5-GfaABC1D-GCaMP6f | Addgene | 52925 | تعبير خاص بالخلايا النجمية عن GCaMP6f |
| AAV9-hSyn-NES-jRGECO1a | Addgene | 100854 | مؤشر الكالسيوم الأحمر المنحرف الخاص بالعصبونات |
| Bepanthen Eye and Nasal Ointment | Bepanthen | MA0008 | يمنع جفاف القرنية |
| Bundled optical fibers with ceramic sleeves | Inper | BFO-1x3-W1.25 | يربط الألياف المزروعة بنظام التصوير الضوئي |
| Camera | Mind Vision | MV-SUA502C-T | مقاطع الفيديو السلوكية المتزامنة مع إشارات الكالسيوم |
| Dental cement | NISSIN | Super-Bond C&B | يستخدم لتثبيت الأعمدة على الجمجمة |
| Ferrule holder | Inper | SCH-1.25 | يثبت العمود الخزفي بإحكام أثناء الزرع |
| Isoflurane vaporizer & Anesthesia system | RWD Life Science | R510-29 | لإحداث التخدير والصيانة |
| Multi-channel fiber photometry system | RWD Life Science | R821 | للتسجيل ثنائي اللون |
| OFRS software | RWD Life Science | تحليل إشارات الكالسيوم المسجلة | |
| Optical fibers | RWD Life Science | R-FOC-BL200C-39N | تزرع في منطقة الدماغ المستهدفة |
| Stereotaxic instrument | RWD Life Science | 68801 | يستخدم للحقن الفيروسي الدقيق وزرع الألياف |
| Syringe pump | KD Scientific | 788130 | يوفر الفيروس بمعدلات مضبوطة |
| Tissue glue | 3M Animal Care Products | 1469SB Vetbond | لإغلاق الشقوق |
المراجع
- Eichenbaum, H. Memory: Organization and Control. Annu Rev Psychol. 68, 19-45 (2017).
- Kamatham, P. T., Shukla, R., Khatri, D. K., Vora, L. K. Pathogenesis, diagnostics, and therapeutics for Alzheimer’s disease: Breaking the memory barrier. Ageing Res Rev. 101, 102481(2024).
- Graff-Radford, J., et al. New insights into atypical Alzheimer’s disease in the era of biomarkers. Lancet Neurol. 20 (3), 222-234 (2021).
- Araque, A., et al. Gliotransmitters travel in time and space. Neuron. 81 (4), 728-739 (2014).
- Khakh, B. S., Sofroniew, M. V. Diversity of astrocyte functions and phenotypes in neural circuits. Nat Neurosci. 18 (7), 942-952 (2015).
- Di Castro, M. A., et al. Local Ca2+ detection and modulation of synaptic release by astrocytes. Nat Neurosci. 14 (10), 1276-1284 (2011).
- Savtchouk, I., Volterra, A. Gliotransmission: Beyond Black-and-White. J Neurosci. 38 (1), 14-25 (2018).
- Perea, G., Navarrete, M., Araque, A. Tripartite synapses: Astrocytes process and control synaptic information. Trends Neurosci. 32 (8), 421-431 (2009).
- Wang, H., et al. Mapping multi-regional functional connectivity of astrocyte-neuronal networks during behaviors. Neurophotonics. 11 (4), 045010(2024).
- Lines, J., Martin, E. D., Kofuji, P., Aguilar, J., Araque, A. Astrocytes modulate sensory-evoked neuronal network activity. Nat Commun. 11 (1), 3689(2020).
- Lines, J., et al. Astrocyte-neuronal network interplay is disrupted in Alzheimer’s disease mice. Glia. 70 (2), 368-378 (2022).
- Brincat, S. L., Miller, E. K. Frequency-specific hippocampal-prefrontal interactions during associative learning. Nat Neurosci. 18 (4), 576-581 (2015).
- DeNardo, L. A., et al. Temporal evolution of cortical ensembles promoting remote memory retrieval. Nat Neurosci. 22 (3), 460-469 (2019).
- Kitamura, T., et al. Engrams and circuits crucial for systems consolidation of a memory. Science. 356 (6333), 73-78 (2017).
- Gonzalo Cogno, S., et al. Minute-scale oscillatory sequences in medial entorhinal cortex. Nature. 625 (7994), 338-344 (2024).
- Roudi, Y., Moser, E. I. Grid cells in an inhibitory network. Nat Neurosci. 17 (5), 639-641 (2014).
- Williamson, M. R., et al. Learning-associated astrocyte ensembles regulate memory recall. Nature. 637 (8045), 478-486 (2025).
- Curreli, S., Bonato, J., Romanzi, S., Panzeri, S., Fellin, T. Complementary encoding of spatial information in hippocampal astrocytes. PLoS Biol. 20 (3), e3001530(2022).
- Oheim, M., Michael, D. J., Geisbauer, M., Madsen, D., Chow, R. H. Principles of two-photon excitation fluorescence microscopy and other nonlinear imaging approaches. Adv Drug Deliv Rev. 58 (7), 788-808 (2006).
- Helmchen, F., Denk, W. Deep tissue two-photon microscopy. Nat Methods. 2 (12), 932-940 (2005).
- Zhang, K., Chen, X. Sensory response in host and engrafted astrocytes of adult brain in vivo. Glia. 65 (12), 1867-1884 (2017).
- Qin, H., et al. A visual-cue-dependent memory circuit for place navigation. Neuron. 99 (1), 47-55.e44 (2018).
- Yao, J., et al. A corticopontine circuit for initiation of urination. Nat Neurosci. 21 (11), 1541-1550 (2018).
- Mirzayi, P., Shobeiri, P., Kalantari, A., Perry, G., Rezaei, N. Optogenetics: Implications for Alzheimer’s disease research and therapy. Mol Brain. 15 (1), 20(2022).
- Simpson, E. H., et al. Lights, fiber, action! A primer on in vivo fiber photometry. Neuron. 112 (5), 718-739 (2024).
- Chen, T. W., et al. Ultrasensitive fluorescent proteins for imaging neuronal activity. Nature. 499 (7458), 295-300 (2013).
- Dana, H., et al. Sensitive red protein calcium indicators for imaging neural activity. Elife. 5, 12727(2016).
- Serikov, A., Martsishevska, I., Shin, W., Kim, J. Protocol for in vivo dual-color fiber photometry in the mouse thalamus. STAR Protoc. 5 (2), 102931(2024).
- Gilbert, C. D. Horizontal integration and cortical dynamics. Neuron. 9 (1), 1-13 (1992).
- de Pasquale, F., Corbetta, M., Betti, V., Della Penna, S. Cortical cores in network dynamics. Neuroimage. 180 (Pt B), 370-382 (2018).
- Suthard, R. L., et al. Engram reactivation mimics cellular signatures of fear. Cell Rep. 44 (10), 116409(2025).
- Sandoval, K. C., Rychlik, J., Choe, K. Y. Calcium dynamics in hypothalamic paraventricular oxytocin neurons and astrocytes associated with social and stress stimuli. eNeuro. 12 (5), (2025).
- Srinivasan, R., et al. Ca(2+) signaling in astrocytes from Ip3r2(-/-) mice in brain slices and during startle responses in vivo. Nat Neurosci. 18 (5), 708-717 (2015).
- Spellman, T., et al. Hippocampal-prefrontal input supports spatial encoding in working memory. Nature. 522 (7556), 309-314 (2015).
- Hu, W., et al. Optogenetics sheds new light on tissue engineering and regenerative medicine. Biomaterials. 227, 119546(2020).
- Liddelow, S. A., et al. Neurotoxic reactive astrocytes are induced by activated microglia. Nature. 541 (7638), 481-487 (2017).
- Shah, D., et al. Astrocyte calcium dysfunction causes early network hyperactivity in Alzheimer’s disease. Cell Rep. 40 (8), 111280(2022).
- Jiménez-Balado, J., Eich, T. S. GABAergic dysfunction, neural network hyperactivity and memory impairments in human aging and Alzheimer’s disease. Semin Cell Dev Biol. 116, 146-159 (2021).
- Lin, R., Guo, Y., Jiang, W., Wang, Y. Advanced technologies for the study of neuronal cross-organ regulation: a narrative review. Adv Technol Neurosci. 1 (2), 166-176 (2024).
- Reitman, M. E., et al. Norepinephrine links astrocytic activity to regulation of cortical state. Nat Neurosci. 26 (4), 579-593 (2023).
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
إعادة الطباعة والأذونات
