يصف هذا البروتوكول توليد وتوصيف المظاهر الشكلية لنموذج فأر من سلالة C57BL/6N-Cracdem1(c.538-83 to c.3352+255 del) باستخدام تقنية CRISPR/Cas9 لدراسة دور CRACD في إعادة تشكيل القلب بعد احتشاء عضلة القلب.
مقالة منهجية
توليد وتوصيف نمطي لنموذج فأر يفتقر إلى جين Cracd تم هندسته بواسطة تقنية CRISPR/Cas9 لدراسات إعادة تشكيل القلب بعد احتشاء عضلة القلب
في هذه المقالة
ملخص
الملخص
ما يزال احتشاء عضلة القلب (MI) سبباً رئيسياً للمراضة والوفيات في جميع أنحاء العالم. يصف هذا البروتوكول طريقة لتوليد وتوصيف... تكسر/تصدع (بناءً على السياق التقني)سلالة فئران ناقصة لـ - على خلفية C57BL/6N باستخدام تقنية CRISPR/Cas9. حُقنت الزيجوتات (اللقاحات) بشكل مشترك بـ mRNA الخاص بـ Cas9، وبنية gRNA، وقالب مانح مصمم لإحداث حذف جينومي بطول 3153 زوجاً قاعدياً. تم تأكيد الأليل المعدل عن طريق التنميط الجيني باستخدام PCR وتسلسل سانجر. ولتقييم الدور الوظيفي لـ CRACD في إعادة التشكيل بعد احتشاء عضلة القلب، تصدعخضعت الفئران من النوع البري (WT, C57BL/6N) والفئران التي تعاني من نقص [المكون المفقود] لعملية احتشاء عضلة القلب (MI) التي تم تحفيزها عن طريق الربط الدائم للشريان التاجي الأمامي النازل الأيسر. وفي اليوم السابع بعد الجراحة، تم تقييم وظيفة القلب وحركة جدار البطين الأيسر باستخدام تخطيط صدى القلب عبر الصدر وتصوير الانفعال بتتبع البقع، متبوعاً بالتقييم النسيجي المرضي باستخدام صبغة H&صبغة #38;E وصبغة ماسون ثلاثية الألوان (Masson's trichrome staining). وأظهرت النتائج التمثيلية أن يبدو أن النص المقدم "Cracd" غير مكتمل أو يحتوي على خطأ مطبعي، لذا لا يمكن ترجمته علمياً. يرجى تقديم النص الكامل المراد ترجمته.أظهرت الفئران التي تعاني من نقص في [البروتين/الجين] انخفاضاً في تمدد البطين مع الحفاظ على الوظيفة الانقباضية مقارنة بمجموعة الضبط من النوع البري (WT). يوفر هذا البروتوكول منصة تجريبية موثوقة للدراسات الميكانيكية لـ CRACD في الاعتلالات المرضية الوظيفية للقلب.
المقدمة
لا يزال احتشاء عضلة القلب (MI) سببًا رئيسيًا للمراضة والوفيات في جميع أنحاء العالم، مما يساهم في عبء كبير على الصحة القلبية الوعائية العالمية1. ويتحدد الإنذار طويل المدى بعد احتشاء عضلة القلب بشكل أساسي من خلال عملية إعادة تشكيل البطين الأيسر (LV)2، والتي تشمل تمدد البطين، وترقق الجدار، والتليف الخلالي3,4، وهي عوامل رئيسية تساهم في التطور نحو فشل القلب (HF). كما يؤدي معدل الإصابة العالمي بفشل القلب الناتج عن إعادة تشكيل القلب بعد احتشاء عضلة القلب إلى تفاقم عبء أمراض القلب والأوعية الدموية5. وعلى الرغم من هذه الملاحظات السريرية الراسخة، تفتقر الساحة إلى دراسات منهجية تستخدم نماذج حية حساسة وقابلة للتكرار لتقييم دور جينات معينة في إعادة التشكيل بعد احتشاء عضلة القلب. ولا يوجد حاليًا بروتوكول يجمع بين نموذج تعطيل جيني هندسياً بواسطة CRISPR/Cas9 وتصوير الانفعال المتقدم لتقييم منظم للهيكل الخلوي مثل CRACD. وبناءً على ذلك، هناك حاجة ملحة لمنهجية تتيح التلاعب الجيني الدقيق والتوصيف الظاهري القلبي عالي الدقة.
يعد البروتين المثبط لمنظم ديناميكيات الأكتين المرتبط بالغطاء (CRACD)، والمعروف أيضاً باسم KIAA1211، منظماً لبلمرة الأكتين يتمركز بشكل أساسي في العصارة الخلوية ويلعب دوراً حاسماً في ديناميكيات الهيكل الخلوي6. وهو ينظم بلمرة الأكتين إيجابياً من خلال الارتباط ببروتينات غطاء الأكتين (CAPZA1 وCAPZA2 وCAPZB) ومنعها من تغطية النهايات الشوكية لخيوط الأكتين7. وفي الأنسجة الظهارية، يلعب CRACD دوراً حاسماً في الحفاظ على شكل الخلية ونقل الإشارات من خلال الحفاظ على سلامة هيكل الأكتين الخلوي8,9. أما في الخلايا الورمية، فإن خلل تنظيمه يرتبط بتعزيز انتقال الخلايا السرطانية وتكاثرها6,10. ولم يتم فهم دور CRACD في القلب بشكل كامل، إلا أن دراسات ترانسكريبتوم القلب والتدخلات التجريبية تظهر أن التعبير الجيني لـ Cracd يستجيب للإجهاد المرضي وقد ينظم الجينات المرتبطة بديناميكيات الهيكل الخلوي أثناء إعادة تشكيل البطين9,11. علاوة على ذلك، ارتبط البروتين المثبط له CapZ ارتباطاً وثيقاً بأمراض القلب؛ حيث تنظم فسفرة CapZ نمو الليفات العضلية أثناء التضخم الناجم عن الفينيل-إيفرين12. وتشير أبحاثنا المبكرة إلى أن التثبيط المعتدل لـ CRACD يوفر حماية ضد تلف عضلة القلب ويحافظ على قدرة الخيوط العضلية على الانقباض بعد نقص التروية الحاد13. تثير هذه النتائج احتمال قيام CRACD بدور في إعادة تشكيل البطين غير التكيفية بعد احتشاء عضلة القلب (MI). ومع ذلك، كانت هناك حاجة إلى دراسات منهجية لفقدان الوظيفة في الجسم الحي لاختبار ما إذا كان نقص Cracd يعدل من إعادة التشكيل بعد احتشاء عضلة القلب، ويرجع ذلك إلى حد كبير إلى غياب بروتوكول مصادق عليه ومفصل لإنتاج وتحديد النمط الظاهري لفأر ناقص Cracd تحت إجهاد نقص التروية.
توجد عدة طرق لإنتاج فئران تعاني من تعطل جيني بنيوي (constitutive knockout). وتعد عملية إعادة التركيب المتماثل التقليدية في الخلايا الجذعية الجنينية (ES) دقيقة ولكنها مكلفة وتستغرق وقتاً طويلاً (12-18 شهراً)، وتقتصر على سلالات معينة من الفئران14. أما الطفرات المستحثة بواسطة ENU (N‑ethyl‑N‑nitrosourea) فتنتج طفرات نقطية عشوائية تتطلب عمليات تهجين رجعي وتسلسلاً جينياً مكثفاً15. وفي المقابل، توفر تقنية CRISPR/Cas9 مزايا عملية متميزة لهذه الدراسة: (1) إذ يؤدي الحقن المباشر للزيجوت إلى تقصير الجدول الزمني إلى 4-6 أشهر؛ (2) وتسمح بحذف قطعة جينومية كبيرة (3153 bp) لضمان الفقدان الكامل للوظيفة؛ (3) وتعمل مباشرة على خلفية سلالة C57BL/6N دون الحاجة لتحويل السلالة؛ (4) وتتجنب استخدام علامة اختيار (selectable marker)، مما يقلل من التداخل النسخي غير المقصود. وبناءً على ذلك، تعد تقنية CRISPR/Cas9 الخيار الأكثر كفاءة لإنتاج سلالة تفتقر إلى جين Cracd وتكون مناسبة للتنميط الظاهري القلبي الوعائي الروتيني. وقد استُخدمت هذه التقنية على نطاق واسع لإجراء دراسات دقيقة لفقدان الوظيفة in vivo16,17.
يعد تصوير الانفعال بتتبع البقع (Speckle‑tracking strain imaging) تقنية لمعالجة البيانات اللاحقة تتبع حركة البقع الصوتية الطبيعية داخل عضلة القلب إطاراً تلو الآخر، مما يسمح بحساب معايير تشوه عضلة القلب مثل الانفعال (التغير الجزئي في الطول) ومعدل الانفعال (معدل التشوه)18. وبخلاف تخطيط صدى القلب التقليدي بنمط M أو ثنائي الأبعاد، الذي يوفر مؤشرات وظيفية عامة (الكسر القذفي، والتقصير الجزئي، والقطر الداخلي للبطين الأيسر) ويكون غير حساس نسبياً للاضطرابات الإقليمية في حركة الجدار، يمكن لتصوير الانفعال قياس الوظيفة الانقباضية القطاعية كمياً. وهذا أمر مهم بشكل خاص في الفترة المبكرة بعد الاحتشاء، حيث قد يحافظ فرط الحركة التعويضي للقطاعات غير المصابة بالاحتشاء على الكسر القذفي العام رغم وجود خلل وظيفي إقليمي ملحوظ. ويوفر تتبع البقع عدة مزايا مقارنة بنقاط النهاية القياسية: فهو يعطي الانفعال القطاعي ومعدل الانفعال، والإزاحة، والسرعة، مما يسمح بالكشف عن التغيرات الدقيقة دون السريرية19؛ كما يمكنه تحديد عدم التزامن والعجز الانقباضي المبكر قبل حدوث إعادة تشكيل غير عكسية؛ وهو يستقصي مباشرة الطبقة تحت الشغاف، وهي الطبقة الأكثر عرضة للإقفار20. في هذه الدراسة، يعد CRACD منظماً للهيكل الخلوي قد يؤثر على انقباض الألياف العضلية على المستوى المجهري. وقد تغفل القياسات التقليدية القائمة على تجويف القلب مثل هذه التأثيرات الميكانيكية المحلية بسهولة. لذا، فإن دمج تحليل تتبع البقع في هذا البروتوكول يعزز القدرة على اكتشاف التأثيرات الوقائية المبكرة لنقص Cracd. وبناءً على ذلك، فإن دمج تتبع البقع في هذا البروتوكول يوفر أداة حساسة وكمية لتقييم إعادة التشكيل بعد الاحتشاء، خاصة خلال الأسبوع الأول بعد احتشاء عضلة القلب (MI) عند ظهور التوسع المبكر والخلل الوظيفي الانقباضي21,22.
تم تصميم هذا البروتوكول للباحثين الذين يدرسون التأثير الوظيفي لحذف جين معين على إعادة التشكيل الحاد (لمدة 7 أيام) بعد احتشاء عضلة القلب، وذلك باستخدام مزيج من التعطيل الجيني التأسيسي والتصوير عالي الدقة. وهو مناسب للدراسات التي تهدف إلى توليد الفرضيات حيث يكون الفقد الشامل للجين المستهدف مقبولاً، ويكون الهدف النهائي الرئيسي هو تقييم وظيفة الانقباض المبكرة والتغيرات الهيكلية. ومع ذلك، يجب مراعاة عدة قيود؛ أولاً، الفأر الذي يعاني من نقص Cracd هو تعطيل جيني شامل، وبالتالي لا يمكن عزو التأثيرات الوقائية للقلب الملاحظة حصرياً إلى فقدان CRACD في الخلايا العضلية القلبية، حيث قد تلعب المساهمات الجهازية دوراً أيضاً، وستكون هناك حاجة إلى دراسات مستقبلية تستخدم استراتيجيات التعطيل الجيني الشرطي لتحقيق حذف خاص بالقلب. ثانياً، يركز البروتوكول على نقطة زمنية واحدة (اليوم 7) ولا يتناول إعادة التشكيل المزمن أو تطور فشل القلب، مما يتطلب إجراء دراسات طولية تتجاوز المرحلة الحادة. ثالثاً، يتطلب تحليل تتبع البقع صوراً عالية الجودة (حدود داخلية واضحة للقلب) وبرمجيات متخصصة، والتي قد لا تكون متوفرة في جميع المرافق المركزية. وبالرغم من هذه القيود، يوفر هذا البروتوكول منصة قوية وقابلة للتكرار للتوصيف الوظيفي الأولي للجينات المشاركة في إعادة تشكيل القلب بعد احتشاء عضلة القلب.
هدفت هذه الدراسة إلى استخدام نظام CRISPR/Cas9 لإنتاج والتحقق من صحة نموذج فأر ناقص الجين Cracd (C57BL/6N-Cracdem1 (c.538-83 to c.3352+255 del)) لبحث تأثير نقص Cracd على إعادة تشكيل القلب بعد احتشاء العضلة القلبية (MI) وحركة جدار البطين. تم تحفيز احتشاء العضلة القلبية في كل من الفئران من النوع البري (WT, C57BL/6N) والفئران ناقصة الجين Cracd، وأجريت تقييمات شاملة بعد أسبوع واحد من الاحتشاء. شملت التقييمات معايير تخطيط صدى القلب التقليدية، وتحليل الإجهاد بتتبع البقع (speckle-tracking strain analysis)، والتقييم النسيجي المرضي. ركزنا بشكل خاص على المرحلة المبكرة بعد الاحتشاء (اليوم 7) لرصد أحداث إعادة التشكيل الأولية وتحديد ما إذا كان نقص Cracd يؤثر على تمدد البطين والوظيفة الانقباضية خلال المرحلة الحادة من احتشاء العضلة القلبية. ومن المتوقع أن توفر النتائج رؤى قيمة حول دور CRACD في تعديل إعادة تشكيل القلب الضارة بعد احتشاء العضلة القلبية.
البروتوكول
تمت الموافقة على جميع تجارب الحيوانات من قبل لجنة رعاية الحيوان واستخدامها المؤسسية في معهد قوانغدونغ للتكنولوجيا الأحيائية (رقم الموافقة: IACUC2025179). استخدمت الدراسة 20 فأراً معفيّاً من نوع Cracd خالٍ من الممرضات المحددة (SPF) و20 فأراً من النوع البري (WT) مطابقين من حيث العمر والوزن. وكان عمر جميع الفئران يتراوح بين 10 و12 أسبوعاً، ووزنها بين 20 و25 غراماً. تم تسكين جميع الحيوانات الذكور في منشأة معتمدة من قبل AAALAC (رقم الترخيص: SYXK (Yue) 2016-0122) في معهد قوانغدونغ للتكنولوجيا الأحيائية (معهد مراقبة الحيوانات المعملية بقوانغدونغ). وتم الحفاظ على بيئة السكن عند درجة حرارة 22–25 °C ورطوبة نسبية تتراوح بين 50 و70%، ضمن دورة ضوئية تتكون من 12 ساعة نهار و12 ساعة ليل.
1. إنشاء فئران ناقصة لـ Cracd باستخدام CRISPR/Cas9
- استخدم تقنية تحرير الجينات كريسبر/كاس9 لإنشاء Cracdفئران مصابة بنقص على سلالة C57BL/6N. احذف التسلسل الجينومي من c.538-83 إلى c.3352+255 (من الجزء الأول من الإنترون 5 إلى الإنترون 6) Cracd عن طريق الإصلاح الموجه بالتماثل.
ملاحظة: الفأر Cracd الجين (NCBI RefSeq: NM_001163793.1؛ Ensembl: ENSMUSG00000036377) يقع على الكروموسوم 5 ويتكون من 9 إكسونات، حيث يقع كودون البدء ATG في الإكسون 2 وكودون التوقف TAA في الإكسون 9. - صمم تسلسل ناقل gRNA والتسلسل المتماثل المانح (مع تسلسل الهدف محاطًا بتسلسلات متماثلة بطول 120 زوج قاعدي من الجانبين).
- سجّل الدخول إلى موقع NCBI، وحدّد وظيفة Primer-BLAST، وصمّم أوليغي نوكليوتيدات تفاعل البوليميراز المتسلسل (PCR) للنوع الجيني.
- الصق رقم تسلسل مرجع NCBI لـ Cracd (رقم التسلسل NM_001163793.1) في حقل قالب تفاعل البلمرة المتسلسل (PCR)، وحدد النطاق الإكسوني للتكبير، ثم انقر على "الحصول على البدائل" للحصول على أزواج متعددة من البدائل المرشحة لاكتشاف الأليلات المحذوفة ونوع البرية باستخدام تفاعل البلمرة المتسلسل (PCR).
- صمم حاملات وحيدة للـRNA التوجيهي (gRNAs) تستهدف المواقع التي تحد الفاصل المقصود حذفه في الـDNA Cracd جين.
- اختر أربع تسلسلات gRNA (20 نيوكليوتيد قبل تسلسل PAM) باستخدام أدوات تصميم CRISPR المتاحة عبر الإنترنت.
- للحد من التأثيرات الجانبية غير المستهدفة المحتملة، قيّم gRNAs المرشحة باستخدام CRISPRater واختر تسلسليْن مثاليين (بما في ذلك تسلسل NGG PAM).
ملاحظة: أمثلة على التسلسلات المختارة
gRNA-A1: CGGCGCTCTTAACATCCAGAGGG (الدرجة: 0.71)
gRNA-A2: CCCTTCAGTCTGGGTAGTAGAGG (النتيجة: 0.71)
قبول gRNAs ذات درجة CRISPRater ≥ 0.5. بالنسبة للتحقق في المختبر، قبول gRNAs ذات > كفاءة قطع بنسبة 50% في كيت كشف كفاءة الهدف الخاص بـ Cas9/gRNA.
- صمم أوليغونوكليوتيدًا واهبًا أحادي الشريط لتعزيز الربط الفعّال للنقاط المقصودة للكسر. مثال على تسلسل الواهب: TTAACCATCAACGGGCCGCTGCAAGGGCTGCTGT
GTCTATA CTCAGGACCACCTGCCCTCTAGAGGCAGGAAGGT
AGAGTTCCAAGCTCTGCTGTGCTAGGTTAAATGCAACTTAACATC - حقن mRNA الخاص بـ Cas9 وgRNA و寡ونوكليوتيد المانح معًا في البويضات المخصبة لتوليد Cracdفئران ناقصة. قم بإعداد الـ Cas9 mRNA والـ gRNA بالنسخ المتماثل في المختبر.
- تحضير الحمض النووي الريبي الموجه
- نسخ الحوامل الريبوزيمية الموجهة في المختبر من قوالب الحمض النووي باستخدام MEGAshortscript™ طقم النسخ T7 (انظر جدول الموادوفقًا لبروتوكول الشركة المصنعة.
- قم بتنقية gRNAs المُترسَّخة باستخدام علبة تنقية RNA (انظر جدول الموادوأخرجها في ماء خالٍ من الريبونوكلياز.
- تقييم نشاط قطع gRNA باستخدام كيت كشف كفاءة الهدف في المختبر (in vitro) الخاص بـ Cas9/gRNA (انظر جدول المواد).
- قم بتنفيذ جميع خطوات تحضير الحمض النووي الريبي (RNA) على الجليد باستخدام مستهلكات خالية من إنزيمات التحلل الريبي (RNase-free) (أطواق نقل لمضخة نقل السوائل، أنابيب، ماء). احفظ عينات الحمض النووي الريبي (RNA) على الجليد في جميع الأوقات لمنع تحللها.
- لإجراء اختبار التحلل: امزج الحمض النووي الريبي المُترانسكريب (25 نانوغرام/µLمع بروتين Cas9 المعاد التركيب (50 نانوغرام/ميكرو لتر)µLوجزء DNA مُضخّم باستخدام تفاعل البلمرة المتسلسل (PCR) يحتوي على التسلسل المستهدف (50 نانوغرام).
- احتضان التفاعل عند 37 °C لمدة 30 دقيقة.
- شغّل المنتجات على جيل أغاروز 2% لتصوير الحزم غير المقطوعة والمقطوعة.
- احسب كفاءة التحلل كنسبة شدة الحزام المحلل إلى الشدة الكلية (الحزام المحلل + الحزام غير المحلل).
- قبول gRNAs مع > كفاءة قطع 50٪
- تحضير mRNA الخاص بـ Cas9
- أخرج المكونات من كيت T7 ARCA mRNA من التجميد (انظر جدول المواد).
- عند درجة حرارة الغرفة، اخلط معًا 10 µL من أصل 2× مزيج ARCA/NTP، 1 µL من الحمض النووي القالبي، 2 µL مزيج بوليميراز RNA T7، والماء الخالي من النوكلياز 20 µL.
- اخلط جيدًا، ثم قم بعملية طرد مركزي قصيرة في جهاز طرد مركزي صغير (5 ثوانٍ عند 5000) × ج)، واحتضن عند 37 °C لمدة 30 دقيقة.
- إزالة الحمض النووي القالبي عن طريق إضافة 2 µL من DNase I (1 وحدة/µL)، اخلط جيدًا واحتضن عند 37 °C لمدة 15 دقيقة للحصول على mRNA الخاص بـ Cas9. يمكن إضافة اختياريًا 1 µL من مثبّط الريبونوكلياز (40 وحدة/µL) (انظر جدول الموادلمنع تدهور الحمض النووي الريبي (RNA).
- قم بإجراء جميع الخطوات على الجليد باستخدام مستهلكات خالية من RNase. احفظ mRNA الخاص بـ Cas9 على الجليد حتى الاستخدام.
- حقن إناث الفئران C57BL/6N البالغة من العمر 4 أسابيع بجرعة 5 وحدة دولية من هرمون الحصان الحبلي المنبه للجريب (PMSG) عن طريق الحقن داخل الصفاق، ثم بعد 48 ساعة بجرعة 5 وحدة دولية من الهرمون المضغي القنوي البشري (hCG) لتحفيز التبويض الزائد.
تحذير: هرمونات PMSG وhCG قد تسبب تحسس الجلد. ارتدِ القفازات والتخلص من الإبر في حاوية حادة. - بعد حوالي 14–18 ساعة من حقن hCG، قم بإعدام إناث الفئران من سلالة C57BL/6N وذكر واحد من نفس السلالة بعمر 8–12 أسبوعًا عن طريق فك الرقبة. اجمع البويضات من قناتي البيض لدى الإناث، واجمع الحيوانات المنوية من الذيل الرباطي للبربخ لدى الذكر.
تحذيريجب تنفيذ القتل الرحيم وفقًا للإرشادات المؤسسية. ويجب أن يُجرى فصل الرقبة فقط من قِبل أفراد مدربين. - أجعل الحيوانات المنوية قادرة على الإخصاب في وسط التنشيط (انظر جدول المواد).
- أضف حجمًا صغيرًا من معلق الحيوانات المنوية إلى البويضات للإخصاب في المختبر، ثم قم بالزراعة المشتركة لمدة 3–4 ساعات عند 37 °C للحصول على الزيجوتات المخصبة.
- خفّض تركيز gRNA المحضّر وmRNA الخاص بـ Cas9 باستخدام الماء الخالي من إنزيمات RNase إلى التركيزات العملية (عادةً 25 نانوغرام/ميكرو لتر)µL لـ gRNA و 50 نانوغرام/µL لـ mRNA Cas9) و寡ヌクレオチド المانح بتركيز 10 نانوغرام/ميكروجرام)µL.
- حقن 1–2 بيكلولتر من الخليط في السيتوبلازم للاقتران المخصب باستخدام نظام الحقن المجهري (انظر جدول المواد).
- تحديد الزيجوتات السليمة من خلال وجود نواتين غاميتين واضحين وجسم قطبي سليم تحت المجهر المجسم.
- قم بزراعة 300 من الزيجوتات المخصبة السليمة في قناتي فالوب لإناث الفئران الكاذبة الحمل، والتي تم تلقيحها بذكور معقمة.
ملاحظة: يؤدي هذا إلى إنتاج فئران تأسيسية إيجابية (F0) عددها 2. - استخدم ماءً خاليًا من RNase وظروف باردة جدًا أثناء التخفيف للحفاظ على سلامة الـRNA.
- حدد الفئران من الجيل F0 باستخدام التضخيم المتسلسل للبوليمر (PCR) لعينات الخزع من الذيل (انظر القسم 1.6).
- قم بتربية مؤسسي الجيل F0 مع فئران النوع البري (WT) لتوليد نسل الجيل F1 المُتغاير، للحصول على انتقال الحذف عبر الخط التناسلي.
- تزاوج الفئران الهترودايزوغوتية من الجيل F1 لإنتاج فئران الهومودايزوغوتية من الجيل F2 Cracdالفئران الناقصة
- تحضير الحمض النووي الريبي الموجه
- النمط الجيني باستخدام تفاعل البوليميراز المتسلسل (PCR)
ملاحظة: يستخدم البروتوكول التالي علبة استخلاص الحمض النووي الجيني التجارية TIANamp Genomic DNA Kit (انظر جدول المواد.Buffer GL هو محلول التحلل، وBuffer GB هو محلول الارتباط، وBuffer WA وBuffer WB هما محلولا الغسيل- ضع ما يقارب 2–5 مم من نسيج ذيل الفأر في أنبوب ميكرو سانترفيوج يحتوي على 180 µL من محلول GL 20 µL من بروتيناز K (محلول مخزون بتركيز 20 مغ/مل)، و 10 µL من محلول مخزون ريبونوكلياز A (10 ملغ/مل)
- احتضن العينة عند 56 °C طوال الليل لهضم النسيج.
- أدرّ الأنبوب في جهاز الطرد المركزي عند 13800 × ج لمدة دقيقتين عند درجة حرارة الغرفة لترسيب بقايا الأنسجة، ثم انقل الطبقة الفوقية إلى أنبوب جديد.
- أضف 200 µL من محلول GB و 200 µL إضافة الإيثانول 100٪ إلى المخلوط الفوق صفي، وخلطه جيدًا، ثم تطبيق الخليط على عمود الطرد المركزي الموضوع في أنبوب جمع.
- أدر في جهاز الطرد المركزي عند 13800 × ج لمدة دقيقتين عند درجة حرارة الغرفة، ثم تخلص من المحلول المار.
- أضف 500 µL إضافة عازل WA إلى العمود، ثم الطرد المركزي عند 13800 × ج لمدة دقيقة واحدة في درجة حرارة الغرفة، ثم تخلص من المحلول المار.
- أضف بعناية 700 µL إلى عمود الطرد، اطرد عند 13800 × ج لمدة دقيقة واحدة عند درجة حرارة الغرفة، ثم تخلص من المحلول المار.
- طبق محلول الغسيل WB على الجدار الداخلي للعمود لغسل الأملاح المتبقية.
- كرر الخطوة 1.6.5 مرة واحدة، ثم انقل العمود إلى أنبوب جمع جديد وقم بالطرد المركزي عند 13800 × ج لمدة دقيقتين عند درجة حرارة الغرفة لتجفيف الغشاء وإزالة الإيثانول المتبقي.
- ضع العمود في أنبوب ميكروسيتريفيوج جديد بسعة 1.5 مل. أضف 50–200 µL من الماء المعقم أو محلول الطرد (المسخن مسبقًا إلى 65 °Cإلى مركز الغشاء، ثم احتضن لمدة 5 دقائق.
- قم بتدوير العمود في جهاز الطرد المركزي عند 13800 × ج لمدة دقيقتين عند درجة حرارة الغرفة لاستخلاص الحمض النووي.
- لزيادة العائد من الحمض النووي، إما إعادة تطبيق المحلول النافذ على الغشاء أو إضافة 50– إضافية200 µL من الماء المعقم، احتضن لمدة 5 دقائق.
- قم بإجراء طرد مركزي نهائي عند 13800 × ج لمدة دقيقتين.
ملاحظة: توقع عائد الحمض النووي من 50 إلى 200 نانوغرام/µL من نسيج الذيل؛ يشير نسبة A260/A280 تتراوح بين 1.8 و2.0 إلى الحمض النووي النقي.
- ضع ما يقارب 2–5 مم من نسيج ذيل الفأر في أنبوب ميكرو سانترفيوج يحتوي على 180 µL من محلول GL 20 µL من بروتيناز K (محلول مخزون بتركيز 20 مغ/مل)، و 10 µL من محلول مخزون ريبونوكلياز A (10 ملغ/مل)
- النمط الجيني باستخدام تفاعل البلمرة المتسلسل المتعدد مع ثلاث بادئات في تفاعل واحد
- صمم ثلاثة أوليّات (برايمرات) للتمييز بين الأنماط الجينية البرية (WT)، والمتحولة الوراثية المختلطة (heterozygous)، والمتحولة الوراثية النقية (homozygous) في تفاعل تضخيم واحد باستخدام تفاعل البوليميراز المتسلسل (PCR): الأولية الأمامية F1 (5’-CAGAAGTCATAGCAGCAAGGCAG-3’، ترتبط قبل منطقة الحذف)، والأولية الأمامية F2 (5’-GAGGGAATTGAGAGGGAGCC-3’، ترتبط داخل المنطقة المحذوفة، وتوجد فقط في الأليل البري)، والأولية العكسية R1 (5’-GCCAATTTAGCTGCTTCAAATGTTC-3’، وهي أولية عكسية مشتركة تقع بعد منطقة الحذف).
ملاحظة: الأليل المستهدف يُولِّد نمط تضخيم بطول 421 زوج قاعدي (F1 + R1) فقط عند وجود الحذف؛ بينما يُولِّد الأليل البري نمط تضخيم بطول 357 زوج قاعدي (F2 + R1) فقط عند وجود الأليل السليم. - قم بإعداد تفاعل PCR في جهاز PCR 25 µL الحجم الكلي الذي يحتوي على 50–100 نانوغرام من الحمض النووي الجيني 0.2 µM كل مادة أولية (F1، F2، وR1)، 200 µM dNTPs، 1.5 مم كلوريد المغنيسيوم₂، و1 وحدة من بوليميراز تاق للحمض النووي (انظر جدول المواد).
- استخدم برنامج التدوير الحراري التالي: التحلل الأولي عند 95 °C لمدة 3 دقائق؛ 35 دورة من التحلل عند 95 °C لمدة 15 ثانية، وتبريد عند 60°C لمدة 15 ثانية، ثم التمديد عند 72 °C لمدة 25 ثانية؛ وتمديد نهائي عند 72 °C لمدة 5 دقائق
- افصل منتجات تفاعل البلمرة المتسلسل باستخدام ترحيل كهربائي على هلام الأجاروز بتركيز 1–2% (120 فولت، 30 دقيقة) في 1× مخفف TAE
- تفسير الجينوتايب بناءً على نمط الحزام: يُظهر النوع البري (WT) حزامًا واحدًا بحجم 357 زوج قاعدي (F2+R1)؛ ويُظهر الحالة المتغايرة الزيجوت حزامين بحجم 421 زوج قاعدي (F1+R1) و357 زوج قاعدي (F2+R1)؛ ويُظهر الحالة المتماثلة الزيجوت حزامًا واحدًا بحجم 421 زوج قاعدي (F1+R1).
- صمم ثلاثة أوليّات (برايمرات) للتمييز بين الأنماط الجينية البرية (WT)، والمتحولة الوراثية المختلطة (heterozygous)، والمتحولة الوراثية النقية (homozygous) في تفاعل تضخيم واحد باستخدام تفاعل البوليميراز المتسلسل (PCR): الأولية الأمامية F1 (5’-CAGAAGTCATAGCAGCAAGGCAG-3’، ترتبط قبل منطقة الحذف)، والأولية الأمامية F2 (5’-GAGGGAATTGAGAGGGAGCC-3’، ترتبط داخل المنطقة المحذوفة، وتوجد فقط في الأليل البري)، والأولية العكسية R1 (5’-GCCAATTTAGCTGCTTCAAATGTTC-3’، وهي أولية عكسية مشتركة تقع بعد منطقة الحذف).
٢. إنشاء نموذج احتشاء عضلة القلب
- خدر الفئران عن طريق استنشاق 3% من الأيزوفلورين (يُوصَل مع 100% أكسجين بسرعة 1 لتر/دقيقة)، ثم ضعها في وضع الاستلقاء على منصة جراحية، وتأكد من عمق التخدير بعدم وجود انعكاس سحب القدم.
تحذير: الأيزوفلورين هو مخدر متطاير. استخدمه فقط في مكان جيد التهوية أو تحت غطاء شفط لتجنب الاستنشاق. - قم بالتنبيب الرغامي الفموي باستخدام غمد قسطرة وريدية مقاس 20. ضع مرهم العيون على كلتا العينين لمنع جفاف القرنية أثناء الجراحة.
- عند نجاح التنبيب، وصّل الأنبوب بجهاز تنفس اصطناعي للحفاظ على التهوية والتخدير باستخدام 2% من الأيزوفلورين.
ملاحظة: يُؤكَّد نجاح التنبيب بوجود حركات صدرية مرئية متزامنة مع جهاز التنفس.
- عند نجاح التنبيب، وصّل الأنبوب بجهاز تنفس اصطناعي للحفاظ على التهوية والتخدير باستخدام 2% من الأيزوفلورين.
- أزل الشعر من الجزء الأمامي من الصدر باستخدام كريم مزيل الشعر. قم بتطهير المنطقة الجراحية بتطبيق اليود البوفيدوني والكحول 70% بحركة دائرية عدة مرات، بدءًا من المركز وانتهاءً بالخارج.
- بعد كشف الجلد بالكامل، اصنع شقًا بطول 1–1.5 سم في الجدار الصدري الأيسر بين الفراغات الأضلاعية الثانية والثالثة لفتح التجويف الصدري.
- اقطع الغشاء التاموري لكشف القلب بالكامل.
تحذير: يجب إجراء الإجراءات الجراحية في ظروف معقمة. استخدم معدات الحماية الشخصية المناسبة (PPE)، بما في ذلك القفازات والكمامة الجراحية.
- باستخدام الحافة السفلية للأذين الأيسر كنقطة مرجعية، مرر إبرة خياطة غير مؤذية مقاس 7–0 أسفل الشريان التاجي النازل الأمامي الأيسر (LAD) على بعد حوالي 2–3 مم من نقطة بدايته.
- مرر الإبرة بعمق حوالي 0.5–1 مم وشدها ببطء لتجنب تمزق عضلة القلب.
- تأكد من نجاح الانسداد بملاحظة شحوب (بياض) الجدار الأمامي للبطين الأيسر أسفل موقع الربط خلال 30 ثانية.
- في مجموعات السيطرة المزيفة، افتح الصدر ومرر الخيط أسفل الشريان التاجي دون ربط العقدة.
- بعد إنشاء النموذج، قم بخياطة الأضلاع (بخيط قابل للامتصاص مقاس 4-0، بنمط منقطع بسيط) ثم الجلد (بخيط قابل للامتصاص مقاس 4-0، بنمط مستمر) تباعًا لإغلاق التجويف الصدري. أزل أنبوب التنبيب الرغامي بمجرد أن يستعيد الفأر تنفسه التلقائي المستقر.
- ضع الفئران على وسادة تسخين (37 °C) حتى تستعيد وعيها بالكامل.
- أعطِ مسكّنات ما بعد الجراحة (مثل الببرينورفين 0.05–0.1 مغ/كغ، تحت الجلد، كل 12 ساعة لمدة 48 ساعة) وفقًا لإرشادات اللجنة المؤسسية لرعاية واستخدام الحيوانات في الأبحاث (IACUC)، وراقب عن كثب الحالة الصحية بعد الجراحة لعدة أيام.
ملاحظة: راقب علامات التوتر (وضعية منحنية، فرو مشعث، حركة محدودة، فقدان وزن > 20%).
- أعطِ مسكّنات ما بعد الجراحة (مثل الببرينورفين 0.05–0.1 مغ/كغ، تحت الجلد، كل 12 ساعة لمدة 48 ساعة) وفقًا لإرشادات اللجنة المؤسسية لرعاية واستخدام الحيوانات في الأبحاث (IACUC)، وراقب عن كثب الحالة الصحية بعد الجراحة لعدة أيام.
- معدل الوفيات ومعايير الاستبعاد.
- سجّل عدد الفئران التي تموت خلال الأيام السبعة الأولى بعد جراحة احتشاء عضلة القلب (MI).
ملاحظة: في مجموعة نموذجية، يتوقع معدل وفيات حوالي 10–20% بحلول اليوم السابع بعد الجراحة، دون فرق كبير بين الفئران البرية (WT) والفئران الناقصة لـ Cracd. تشمل الأسباب الشائعة للوفاة احتشاءً واسع النطاق يؤدي إلى فشل قلبي حاد، أو نزيفًا جراحيًا، أو استرواح صدري. استبعد أي فأر يعاني من اضطراب نظم مستمر (معدل ضربات القلب < 350 نبضة/دقيقة) أو علامات توتر شديد (مثل وضعية منحنية، فرو مشعث، فقدان وزن > 20%) من التحاليل الصدى القلبي والنسيجية اللاحقة. بالنسبة للفئران المزيفة، يجب أن يكون معدل الوفيات < 5%.
- سجّل عدد الفئران التي تموت خلال الأيام السبعة الأولى بعد جراحة احتشاء عضلة القلب (MI).
3. التقييم بالصدى فوق الصوتي
- تحضير الحيوان والتخدير
- شغّل نظام التصوير بالموجات فوق الصوتية عالي الدقة للحيوانات الصغيرة (انظر جدول المواد) ومرتبة التسخين المدمجة فيه.
- تأكد من توصيل المسبار عالي التردد المناسب بشكل آمن إلى جهاز التثبيت وفقًا لتعليمات الشركة المصنعة. عيّن درجة حرارة المرتبة المسخّنة على 37 °C واتركها تستقر.
- ضع الفئران في غرفة التخدير وخدّرها باستخدام 3% من الآيزوفلوران في الأكسجين (1–2 لتر/دقيقة) حتى يختفي رد الفعل الانسحابي للقدم. انقل الفئران المخدّرة إلى المنصة المسخّنة في وضع الاستلقاء.
- استمر في التخدير باستخدام 1–1.5% من الآيزوفلوران عبر قناع الأنف، وقم بتعديل الجرعة للحفاظ على معدل ضربات القلب بين 450–550 نبضة في الدقيقة.
- طبّق مرهم العيون على العينين لمنع جفاف القرنية.
- حلق منطقة الصدر، وطبّق كريم إزالة الشعر بالتساوي لمدة لا تزيد عن 3 دقائق، ثم ازالة كريم إزالة الشعر بشكل كامل باستخدام شاش مبلل.
- اشطف الجلد بلطف بالمحلول الملحي الدافئ عند الحاجة وجفّف المنطقة. ثبّت أقطاب تخطيط القلب السطحية على الأطراف باستخدام هلام القطب عند نقاط التلامس وثبتها بشريط لاصق.
ملاحظة: تأكد من استقرار تخطيط القلب ومعدل ضربات القلب ضمن النطاق 450–550 نبضة في الدقيقة قبل المضي قُدمًا في التصوير بالموجات فوق الصوتية.
- شغّل نظام التصوير بالموجات فوق الصوتية عالي الدقة للحيوانات الصغيرة (انظر جدول المواد) ومرتبة التسخين المدمجة فيه.
- استخلاص صور الموجات فوق الصوتية التقليدية
- ضع الفأر في وضع أفقي مستلقٍ على المنصة المسخّنة، مع إمالة طفيفة نحو اليسار عند الحاجة لتحسين تصوير القلب.
- طبّق كمية وافرة من هلام التوصيل بالموجات فوق الصوتية المسبق التسخين على المنطقة السابقة للصدر اليسرى الخالية من الشعر، مع تجنّب فقاعات الهواء.
- ضع المسبار بلطف على جدار الصدر في الموضع الباراستيرنالي الأيسر. عدّل موضعه بحيث يشير علامة الفهرس نحو كتف الفأر الأيمن، وضبط الزاوية والضغط بدقة لتحسين جودة الصورة.
- انتقل إلى التصوير بالنمط B (ثنائي الأبعاد)، وقم بتعديل العمق ونطاق التركيز ومعدل الإطار للحصول على صورة واضحة للبعد الطولي الباراستيرنالي للبطين الأيسر. تتطلب جودة الصورة المقبولة رؤية واضحة لحدود البطانة القلبية دون فقدان أي جزء.
- بمجرد استقرار معدل ضربات القلب (450–550 نبضة في الدقيقة)، استخلص ثلاث حلقات سينمائية منفصلة للنمط B للبعد الطولي الباراستيرنالي، تحتوي كل منها على 3–5 دورات قلبية متتالية على الأقل.
- احفظ كل حلقة بالضغط على "Cine Store"، واحفظ لقطات ثابتة تمثيلية باستخدام "Frame Store".
- من منظور الطول، قم بتدوير المسبار 90° في اتجاه عقارب الساعة للحصول على منظور قصير المحور عند مستوى الحليمات المتوسطة.
- استخلص ثلاث حلقات سينمائية منفصلة للنمط B قصيرة المحور (كل منها تحتوي على ≥ 3–5 دورات).
- فعّل النمط M، ووضع المؤشر عموديًا على الحاجز بين البطينين والجدار الخلفي، وسجّل ثلاث تسجيلات منفصلة للنمط M.
ملاحظة: تتطلب تسجيلات النمط M المقبولة حدودًا واضحة للبطانة القلبية طوال دورة القلب.
- استخدم برنامج VevoLab 3.2.0 (انظر جدول المواد) لقياس المعاملات التالية من تسجيلات النمط M وفقًا لطريقة الحافة الأمامية لجمعية الموجات فوق الصوتية الأمريكية: سماكة الحاجز بين البطينين في الانبساط والانقباض (IVSd، IVSs)، وقطر البطين الأيسر الداخلي في الانبساط والانقباض (LVIDd، LVIDs)، وسماكة الجدار الخلفي للبطين الأيسر في الانبساط والانقباض (LVPWd، LVPWs).
- احسب كسر إخراج البطين الأيسر (EF) ونسبة التقصير (FS) باستخدام صيغة تايخهولتز: EF (%) = [(LV Vold - LV Vols) / LV Vold] × 100، LV Vold = ((7 / (2.4 + LVIDd)) × LVIDd3)، LV Vol;s = ((7 / (2.4 + LVIDs)) × LVIDs3)، FS (%) = [(LVIDd – LVIDs) / LVIDd] × 100.
ملاحظة: بالنسبة لكل فأر، تم توسط القياسات من ثلاث دورات قلبية متتالية لكل تسجيل بالنمط M، وأخذ المتوسط من ثلاث تسجيلات منفصلة، مما أدى إلى إجمالي 9 قياسات لكل معامل لكل فأر.
- احسب كسر إخراج البطين الأيسر (EF) ونسبة التقصير (FS) باستخدام صيغة تايخهولتز: EF (%) = [(LV Vold - LV Vols) / LV Vold] × 100، LV Vold = ((7 / (2.4 + LVIDd)) × LVIDd3)، LV Vol;s = ((7 / (2.4 + LVIDs)) × LVIDs3)، FS (%) = [(LVIDd – LVIDs) / LVIDd] × 100.
- ضع الفأر في وضع أفقي مستلقٍ على المنصة المسخّنة، مع إمالة طفيفة نحو اليسار عند الحاجة لتحسين تصوير القلب.
- تحليل الانفعال بتتبع النقاط
- قم بإجراء تحليل تتبع النقاط باستخدام برنامج التحليل المخصص (وحدة VevoStrain ضمن VevoLab 3.2.0).
- افتح حلقة سينمائية واضحة للنمط B للبعد الطولي الباراستيرنالي، وحدّد "Vevo Strain" للدخول إلى وضع تحليل الانفعال، واحتفظ فقط بالدورات القلبية الكاملة، ثم اختر "Long Axis".
- قم برسم حدود البطانة القلبية يدويًا في إطار نهاية الانبساط. بعد رسم حدود البطانة القلبية، يولد البرنامج تلقائيًا حدودًا للغشاء الظهاري الخارجي (عدّل حسب الحاجة). ثم ابدأ تحليل الانفعال وفعّل وظيفة "toggle contour/vector/orbit line/B mode" لتصور مسار الحركة.
- قيّم جودة التتبع من خلال الشبكة الملونة: يجب أن تظهر باللون الأخضر، وتمشي بشكل وثيق مع حدود البطانة والغشاء الظهاري الخارجي دون اهتزاز، وتحرك بشكل متزامن مع انقباض واسترخاء عضلة القلب. إذا لم يكن كذلك، قم بتحسين الحدود يدويًا وأعد التحليل.
- فعّل "تحليل الوقت للذروة" لتقسيم البطين الأيسر إلى ستة أجزاء (أمامي قاعدي، أمامي متوسط، أمامي قمي، خلفي قمي، خلفي متوسط، خلفي قاعدي)، مع تمثيل كل لون جزءًا فرديًا. بمجرد تحقيق تتبع مرضٍ، صدّر البيانات لمعاملات حركة الجدار: السرعة (سم/ث)، الإزاحة (سم)، الانفعال (%)، ومعدل الانفعال (1/ث) لكل من المحور الطولي والشعاعي.
ملاحظة: إذا بقيت جودة التتبع ضعيفة بعد ثلاث محاولات استخلاص (مثل منحنيات انفعال غير منتظمة، أو عدم القدرة على رؤية مسارات حركة واضحة)، استبعد الفأر من تحليل الانفعال.
- قم بإجراء تحليل تتبع النقاط باستخدام برنامج التحليل المخصص (وحدة VevoStrain ضمن VevoLab 3.2.0).
4. التحليل النسيجي المرضي
- بعد إجراء تخطيط صدى القلب، قم بإعطاء جرعة قاتلة من الإيزوفلوران للجرذان المخدرة تخديراً عميقاً، وطبق طريقة فيزيائية ثانوية (مثل التفكيك العنقي) وفقاً للإرشادات المؤسسية.
- افتح التجويف الصدري، واستأصل القلوب بسرعة واغسلها بلطف بمحلول ملحي مخفف بالفوسفات البارد (PBS).
تحذير: يجب أن تُنفَّذ عملية القتل الرحيم وفقًا للبروتوكولات المعتمدة من المؤسسة.
- افتح التجويف الصدري، واستأصل القلوب بسرعة واغسلها بلطف بمحلول ملحي مخفف بالفوسفات البارد (PBS).
- قم بتقليم القلوب، وقم بإزالة الأوعية الكبيرة، ثم قم بتقطيعها عرضيًا من القمة إلى القاعدة إلى شرائح بعدد 2–3 شرائح (بسمك حوالي 2–3 مم).
- انقع شرائح الأنسجة في محلول يحتوي على 4% بارافورمالدهيد في محلول ملحي فوسفاتي (PBS) وثبتها عند 4 °C لمدة 12–24 ساعة.
ملاحظة: استخدم نسبة حجمية بين المثبت والأنسجة لا تقل عن 10:1.
تحذير: البولي فورمالدهيد مادة سامة ويشتبه في كونها مسرطنة. يجب التعامل معها داخل غطاء تهوية، وارتداء معدات الحماية الشخصية المناسبة (قفازات، معطف مختبر، نظارات واقية). تُتخلص من نفايات البولي فورمالدهيد باعتبارها نفايات كيميائية خطرة وفقًا للتوجيهات المؤسسية.
- انقع شرائح الأنسجة في محلول يحتوي على 4% بارافورمالدهيد في محلول ملحي فوسفاتي (PBS) وثبتها عند 4 °C لمدة 12–24 ساعة.
- تجفيف النسيج من خلال سلسلة كحول إيثيلي متدرجة (50%، 70%، 80%، 95%، 100% إيثانول، كل منها لمدة ساعة واحدة)، ثم تنقيته في الزايلين (تغييران، كل منهما لمدة 30 دقيقة)، وتضمينه في البارافين، وتقسيمه إلى شرائح بسمك 4–5 µm السمك باستخدام الميكروتوم.
ملاحظة: يجب أن تكون الأقسام خالية من الطيات والتمزقات.
تحذير: الزيلين قابل للاشتعال وسامٍ. استخدمه فقط داخل غطاء استخراج الأبخرة وتجنّب ملامسته للجلد. اجمع مخلفات الزيلين في وعاء مخصص وتصرّف فيها باعتبارها نفايات كيميائية خطرة. - أزل الشمع من الأقسام في الزايلين (مرتين، 5–10 دقائق لكل مرة)، ثم أعد ترطيبها باستخدام سلسلة تنازلية من الإيثانول (100٪، 95٪، 80٪، 70٪، كل منها لمدة 3 دقائق) حتى الماء.
- صبغها باستخدام صبغة الهيماتوكسيلين والإيوزين القياسية (H&E&؛ هـ) (انظر جدول المواد) وبروتوكولات صبغ التري كروم حسب ماسون (انظر جدول المواد).
تحذير: الزايلين مادة سامة. يجب استخدامه داخل غطاء تهوية فقط وتجنب ملامسته للجلد. تخلص من مخلفات الزايلين كمادة خطرة.
- صبغها باستخدام صبغة الهيماتوكسيلين والإيوزين القياسية (H&E&؛ هـ) (انظر جدول المواد) وبروتوكولات صبغ التري كروم حسب ماسون (انظر جدول المواد).
- افحص المقاطع الملونة تحت المجهر الضوئي (انظر جدول المواد).
- للحصول على تحليل كمي، التقط صورًا رقمية عند 4×, 20×، و40× تكبير الصورة باستخدام كاميرا رقمية مثبتة على المجهر. قِس حجم النخر ومساحة النسيج الليفي باستخدام برنامج ImageJ.
ملاحظة: حجم النخر (%) = (مساحة النخر / مساحة البطين الأيسر الكلي) × ١٠٠؛ محتوى الكولاجين (٪) = (المساحة الملونة باللون الأزرق / المساحة القلبية الإجمالية) × 100.
- للحصول على تحليل كمي، التقط صورًا رقمية عند 4×, 20×، و40× تكبير الصورة باستخدام كاميرا رقمية مثبتة على المجهر. قِس حجم النخر ومساحة النسيج الليفي باستخدام برنامج ImageJ.
النتائج
Generation of Cracd-deficient mice
A heritable mouse model carrying a targeted deficiency in the Cracd gene was generated using CRISPR/Cas9-mediated genome editing (Figure 1A, Figure 1B). To distinguish WT, heterozygous, and homozygous genotypes, a multiplex PCR was performed using three primers (F1, F2, R1) in a single reaction. Mice homozygous for the deletion (Cracd‑deficient) displayed only the 421 bp band, WT mice showed only the 357 bp band (Figure 1C). Sanger sequencing of genomic DNA from Cracd-deficient mice confirmed the predicted deletion in the target gene compared to WT controls (Figure 1D). Western blot analysis further demonstrated a marked reduction in CRACD protein levels in cardiac tissues from Cracd-deficient mice compared with WT controls (Figure 1E). Together, these data confirm the successful establishment of the Cracd-deficient mouse line.
Echocardiography
Echocardiographic assessment on postoperative day 7 revealed pronounced pathological cardiac remodeling in WT mice after MI (WT-MI) compared with sham-operated controls (Figure 2A). The WT-MI group showed thinning of the interventricular septum (Figure 2B, C), significant left ventricular (LV) dilation as reflected by increased LVIDd (Figure 2D) and LVIDs (Figure 2E), and thinning of the posterior wall (Figure 2F, G). These structural alterations were associated with a pronounced decline in global systolic function, as demonstrated by significantly reduced EF (Figure 2H) and FS (Figure 2I). In contrast, Cracd-deficient mice displayed a cardioprotective phenotype following MI. LV dilation was significantly attenuated, with notably smaller LVIDd and LVIDs compared with the WT-MI group. Furthermore, these mice exhibited improved systolic thickening of the posterior wall and maintained significantly higher EF and FS values. These findings indicate that Cracd deficiency effectively attenuates post-infarction LV dilation and preserves global systolic function.
Speckle-tracking strain analysis
Left ventricular myocardial motion and deformation were further evaluated by speckle‑tracking echocardiography using only parasternal long‑axis views (Figure 3A). To ensure data reliability, we defined pragmatic criteria for acceptable output based on the capabilities of the VevoStrain software. Acceptable strain analysis required: (i) a clear parasternal long‑axis view with endocardial borders visible throughout the cardiac cycle; (ii) a stable heart rate between 450–550 bpm during acquisition; (iii) after automatic tracking, the colour‑coded mesh (activated via “toggle contour/vector/orbit line/B mode”) had to closely follow the endocardial and epicardial borders without jerking or losing contact; and (iv) strain curves had to be smooth, show consistent waveforms across segments, and lack sudden spikes or arrhythmic interruptions. Suboptimal output—most commonly erratic strain curves or inability to visualise clear motion trajectories—led to manual adjustment of endocardial or epicardial contours and re‑analysis. If quality remained poor after three attempts, the mouse was excluded. Using these criteria, we obtained reliable strain data in WT‑MI mice and Cracd‑deficient MI mice.
Compared with the sham group, WT-MI mice exhibited significantly reduced radial velocity (Figure 3B) and longitudinal velocity (Figure 3C), as well as radial displacement (Figure 3D) and longitudinal displacement (Figure 3E), indicating impaired global myocardial motion. The absolute values of radial strain (Figure 3F), radial strain rate (Figure 3G), longitudinal strain (Figure 3H), and longitudinal strain rate (Figure 3I) were also markedly decreased, reflecting severely compromised regional myocardial deformation and function. In contrast, Cracd-deficient mice showed significant improvement in these parameters. Compared with the WT-MI group, they displayed better recovery of radial and longitudinal displacements. Furthermore, radial velocity, radial strain, and radial strain rate were maintained at higher levels, while longitudinal strain and longitudinal strain rate were significantly improved. These results suggest that Cracd deficiency not only preserves global systolic function but also enhances regional LV myocardial deformation after MI.
The speckle‑tracking imaging analysis also included visualization of segmental strain distribution and cardiac motion trajectories. Parasternal long‑axis B‑mode images with segmented six regions (BA, MA, AA, AP, MP, BP) and color gradient mapping are displayed in Figure 4A. Cardiac motion trajectories, time‑to‑peak curves for radial and longitudinal strain, parametric distribution maps of strain synchrony, and three‑dimensional reconstructions are presented in Figure 4B. These data further support the functional improvements observed in Cracd‑deficient mice.
Histological examination
To assess the protective effect of Cracd deficiency against MI, histopathological examination was performed on heart sections from WT and Cracd-deficient mice at 7 days post-MI using H&E and Masson's trichrome staining. Whole‑heart longitudinal sections are shown in Figure 5A, with quantitative analysis of infarct size and collagen content presented in Figure 5B and Figure 5C, respectively. High‑magnification views of the infarct zone, border zone, and remote zone are displayed in Figure 5D. In WT-MI hearts, H&E staining showed pronounced left ventricular wall thinning and a well-demarcated infarct zone. Within the infarct region, extensive inflammatory cell infiltration, myocardial necrosis, and marked fibrosis with scar formation were observed. In the border zone, inflammatory infiltration, myocardial necrosis, fibrosis and cardiomyocyte hypertrophy were evident, while the remote zone displayed prominent hypertrophic changes. Corresponding Masson's trichrome staining further demonstrated extensive interstitial fibrosis within both the infarct and border zones of WT hearts following MI. In contrast, Cracd-deficient mice exhibited substantially attenuated pathological alterations, including reduced wall thinning, diminished inflammatory infiltration and myocardial necrosis, less pronounced cardiomyocyte hypertrophy, and markedly decreased interstitial fibrosis compared with WT-MI hearts. These histological findings indicate that Cracd deficiency mitigates post-infarction myocardial damage and adverse remodeling.
Successful protocol execution should yield: (i) a well‑demarcated infarct zone with extensive collagen deposition in WT-MI hearts; (ii) clear cellular morphology without staining artifacts; and (iii) significantly attenuated pathology in Cracd‑deficient MI hearts. Although infarct size may vary with ligation precision, the genotype‑dependent difference is a reliable indicator of successful performance.
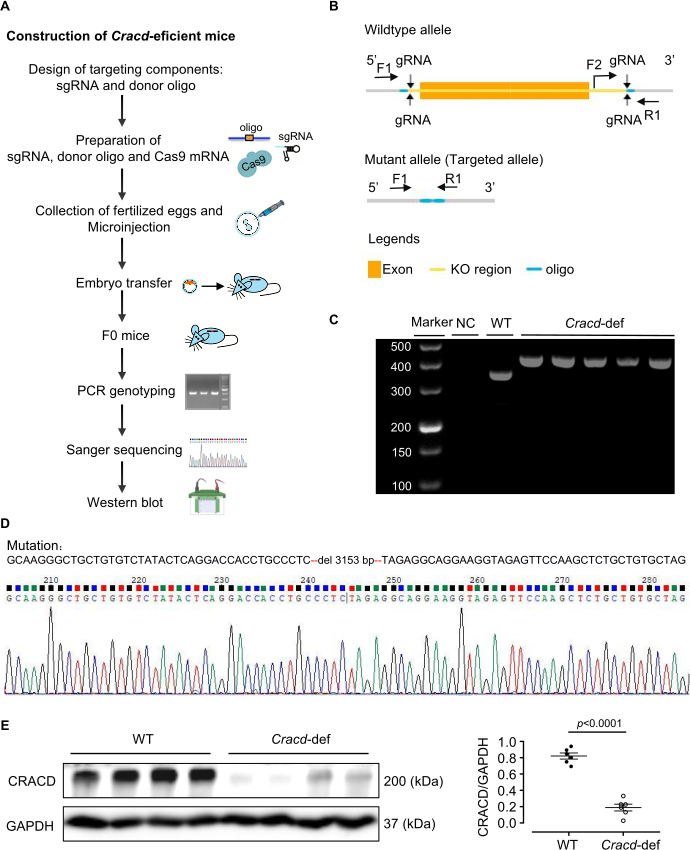
Figure 1: Generation of Cracd-deficient mice. (A) Construction of Cracd-deficient mice. (B) Schematic of the Cracd gene modification strategy. (C) PCR genotyping of tail genomic DNA. WT mice show a single 357 bp band, while homozygous (Cracd‑deficient) mice show a single 421 bp band. (D) Sanger sequencing of genomic DNA confirmed the predicted deletion in the Cracd locus of deficient mice compared to WT controls. (E) Western blot analysis showed significantly reduced CRACD protein levels in the hearts of Cracd-deficient mice compared to WT controls. n = 6 mice per group. Data are presented as mean ± SEM. Statistical significance was calculated with a two-tailed unpaired Student's t-test. Please click here to view a larger version of this figure.
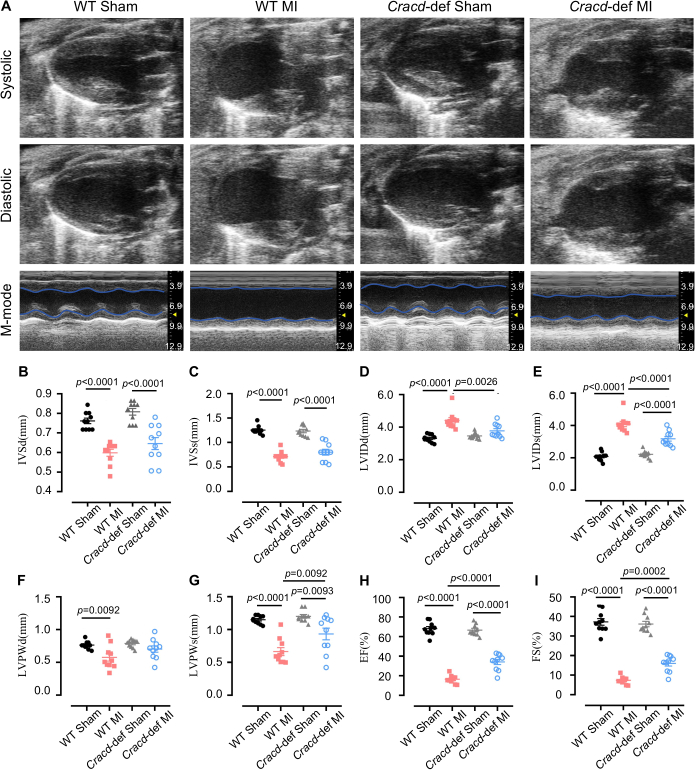
Figure 2: Echocardiographic assessment of cardiac function. (A) Representative B-mode and M-mode echocardiographic images of mouse hearts at diastole and systole. Quantitative analysis of (B) interventricular septum thickness at diastole (IVSd) and (C) systole (IVSs), (D) left ventricular internal diameter at diastole (LVIDd) and (E) systole (LVIDs), (F) left ventricular posterior wall thickness at diastole (LVPWd) and (G) systole (LVPWs), (H) ejection fraction (EF), and (I) fractional shortening (FS). n = 10 mice per group. Data are presented as mean ± SEM. Statistical significance was determined by one-way ANOVA followed by Tukey's multiple comparisons test. Please click here to view a larger version of this figure.
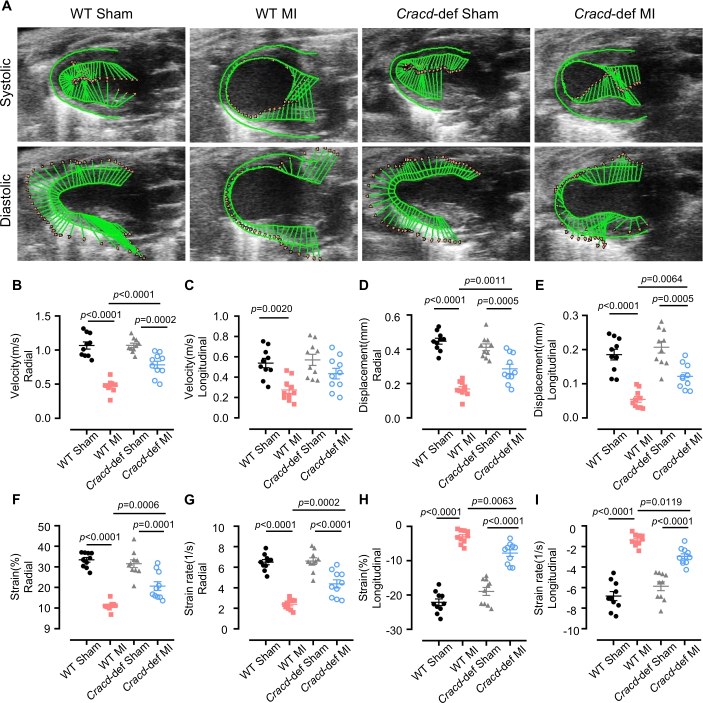
Figure 3: Speckle-tracking strain analysis. (A) Representative images of left ventricular wall motion and deformation at diastole and systole. Quantitative analyses of the following parameters: (B) radial velocity, (C) longitudinal velocity, (D) radial displacement, (E) longitudinal displacement, (F) radial strain, (G) radial strain rate, (H) longitudinal strain, and (I) longitudinal strain rate. n = 10 mice per group. Data are presented as mean ± SEM. Statistical significance was determined by one-way ANOVA followed by Tukey's multiple comparisons test. Please click here to view a larger version of this figure.
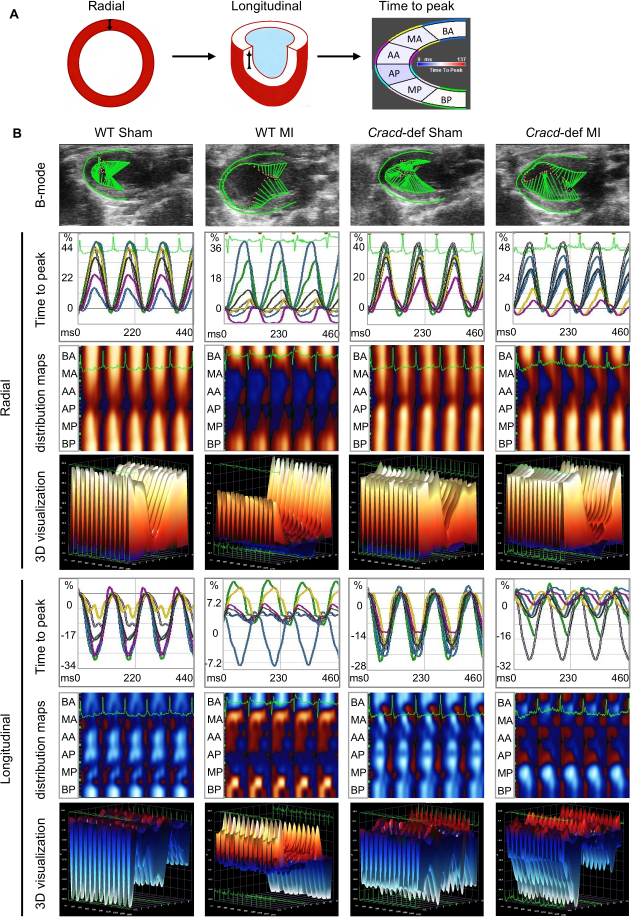
Figure 4: Speckle-tracking imaging in WT-Sham, WT-MI, Cracd-deficient Sham, and Cracd-deficient MI groups at 7 days post-MI. (A) Parasternal long‑axis B‑mode images. Left ventricular wall was segmented into six regions: BA (basal anterior), MA (mid anterior), AA (apical anterior), AP (apical posterior), MP (mid posterior), and BP (basal posterior). Color gradient from blue to red represents increasing strain magnitude. (B) Cardiac motion trajectories; time-to-peak curves for radial and longitudinal strain values along with corresponding peak times. Parametric distribution maps of strain synchrony (blue/red indicate direction: radial – away from/toward center; longitudinal – away from/toward apex). White dots = highest velocity regions, black dots = lowest velocity. Three-dimensional reconstructions (X: time, Y: spatial position, Z: strain magnitude). Please click here to view a larger version of this figure.
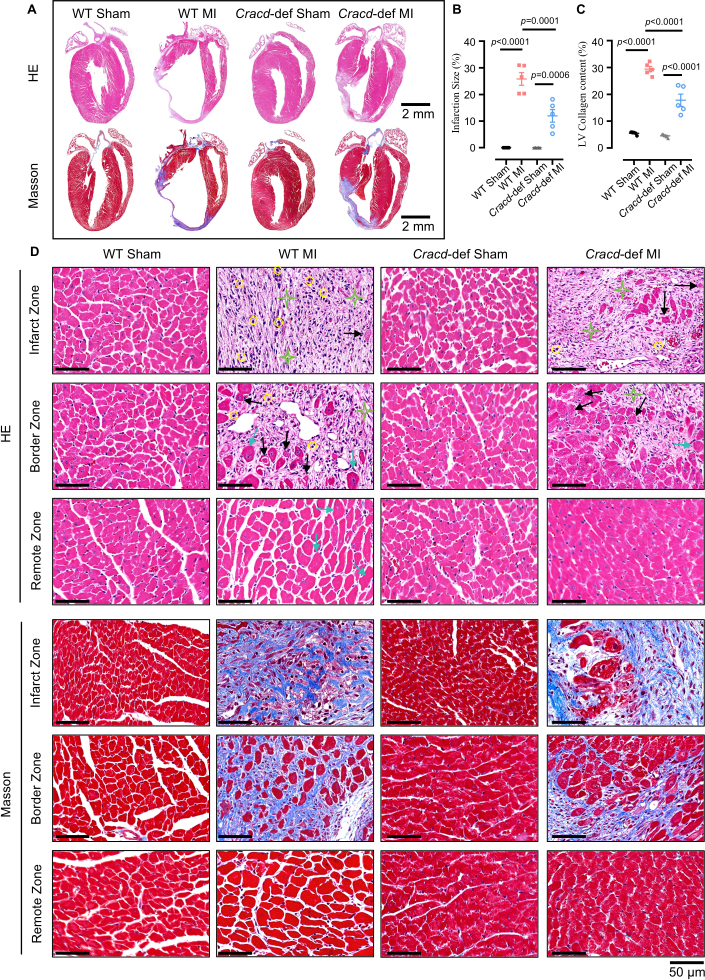
Figure 5: Histopathological analysis of cardiac remodeling after MI. (A) Whole-heart longitudinal sections with H&E and Masson's trichrome staining. Scale bars: 2 mm. (B) Quantitative analysis of infarct size and (C) collagen content. (D) High‑magnification views of infarct zone (IZ), border zone (BZ), and remote zone (RZ). H&E: yellow circles = inflammatory infiltration; black arrows = myocardial necrosis; green stars = fibrosis; blue arrows = hypertrophy. Masson’s trichrome: blue indicates collagen deposition. Scale bar: 50 μm. n = 5 mice per group. Data are presented as mean ± SEM. Statistical significance was determined by one-way ANOVA followed by Tukey's multiple comparisons test. Please click here to view a larger version of this figure.
المناقشة
في هذه الدراسة، قمنا بإنتاج فأر مفتقر لـ Cracd مُعدل بواسطة تقنية CRISPR/Cas9، ووضعنا سير عمل لتحديد نمطه الظاهري بعد احتشاء عضلة القلب (MI) باستخدام تخطيط صدى القلب التقليدي، وتصوير الانفعال بتتبع البقع، وعلم الأنسجة. وقد أنتج البروتوكول فئرانًا معطلة جينيًا مع تأكيد فقدان بروتين CRACD. وأظهرت الفئران المفتقرة لـ Cracd توسعًا بطينيًا أقل، وكفاءة قصفيّة (EF) أفضل، وتليفًا منخفضًا مقارنة بمجموعات التحكم من النوع البري (WT) بعد احتشاء عضلة القلب، مما يؤكد فائدة هذا النموذج في دراسة إعادة تشكيل القلب.
يعتمد نجاح هذا النموذج على عدة خطوات حاسمة؛ حيث يؤثر تصميم الحمض النووي الريبوزي الموجه (gRNA) والتحقق من صحته في المختبر (in vitro) بشكل مباشر على كفاءة تحرير الزيجوت.23نستخدم برنامج CRISPick أو Benchling لاختيار حمض نووي ريبوزي موجه (gRNAs) بدرجات CRISPRater تبلغ 0.5 أو أكثر، ثم نختبر كفاءة القطع باستخدام مقايسة Cas9/gRNA في المختبر. فقط أحماض gRNAs التي تحقق > يتم حقن 50% من الأجنة في مرحلة الانقسام مجهرياً. كما يعد ربط الشريان التاجي الأيسر النازل (LAD) بشكل صحيح أمراً بالغ الأهمية بالقدر ذاته؛ إذ يجب أن تمر خياطة 7-0 على مسافة 2-3 مم من منشأ الشريان التاجي الأيسر النازل وعلى عمق 0.5-1 مم لتجنب ثقب البطين الأيمن (في حال كان العمق زائداً) أو الإخفاق في سد الوعاء الدموي (في حال كان العمق ضئيلاً)؛ ويؤكد التبييض الفوري للجدار الأمامي حدوث الانسداد. كما يعد التحكم في معدل ضربات القلب أثناء تخطيط صدى القلب أمراً ضرورياً أيضاً.24ويؤدي الحفاظ على معدل ضربات القلب بين 450 و550 نبضة في الدقيقة من خلال ضبط تركيز الإيزوفلوران (عادةً بنسبة 1-2%) إلى تحسين إمكانية تكرار قياسات الانفعال والقياسات التقليدية. وأخيرًا، بالنسبة لتحليل تتبع البقع (speckle‑tracking analysis)، يُعد التقييم البصري للشبكة المرمزة بالألوان أمرًا ضروريًا.25يجب أن تتبع الشبكة حدود عضلة القلب دون تذبذب، وإلا سيكون من الضروري إجراء تحسين يدوي؛ وفي حال بقاء الجودة منخفضة بعد ثلاث محاولات، يتم استبعاد الفأر.
حتى عند اتباع البروتوكول بدقة، قد تظهر بعض الصعوبات التقنية. ويمكن لحل المشكلات بشكل منهجي أن يعالج معظمها. وعادة ما تشير معدلات الانتقال الوراثي المنخفضة (أقل من 10%) إلى ضعف في دمج قليلة النوكليوتيد المانحة أو ضعف في نشاط الحمض النووي الريبوزي الموجه (gRNA).26وبناءً على ذلك، فإن زيادة كمية قليلة النوكليوتيدات المانحة (donor oligo) إلى 20 نانوجرام/µL، وتمديد أذرع التماثل لتصبح بطول 120-200 زوج قاعدي، وإعادة التحقق من قطع gRNA (> (50%) يمكن أن يحسّن من عملية النقل. وغالباً ما تعزى معدلات الوفيات المرتفعة بعد احتشاء عضلة القلب (أعلى من 30%) إلى استرواح الصدر، والنزيف، والاحتشاء الواسع.27وبناءً على ذلك، فإن إبقاء الفئران تحت تزويد مستمر بالأكسجين حتى تستيقظ، واستخدام وسادة تدفئة للحفاظ على درجة حرارة الجسم، يقلل معدلات الوفيات بشكل ملحوظ. وإذا لم يتحول الجدار الأمامي إلى اللون الشاحب بعد الربط، فمن المحتمل أن يكون قد حدث خطأ في تحديد الشريان التاجي الأيسر النازل (LAD) أو أن الغرزة ضحلة للغاية. وفي هذه الحالة، يمكن حل هذه المشكلة عن طريق إعادة تحديد موقع الشريان التاجي الأيسر النازل (وهو وعاء قطري أحمر زاهٍ) وإعادة تمرير الإبرة إلى عمق يتراوح بين 0.5 و1 مم، وأحياناً باستخدام مجهر تشريحي. أما بالنسبة لرداءة جودة تتبع البقع (speckle-tracking)، فإن الأسباب المعتادة تكون انخفاض معدل الإطارات، أو الحدود غير الواضحة، أو الآثار الاصطناعية الناتجة عن الحركة.28وبناءً على ذلك، فإن زيادة معدل الإطارات، والضبط الدقيق للكسب، وتصحيح تتبع الشغاف يدويًا، واستبعاد الدورات التي تتخللها عدم انتظام ضربات القلب، تساعد في ذلك.
وبعيداً عن هذه الاعتبارات التشغيلية، فإن لهذه الطريقة قيوداً واضحة. إن تعطيل جين Cracd هو تعطيل شامل، لذا فإن بروتين CRACD يكون مفقوداً في جميع الأنسجة. وبناءً على ذلك، لا يمكن عزو الحماية الملحوظة حصرياً إلى الخلايا العضلية القلبية، حيث قد تلعب المساهمات الجهازية دوراً أيضاً. وسيكون من الضروري استخدام تعطيل شرطي للفصل بين الأدوار الخاصة بكل نوع من الخلايا. وثمة قيد آخر يتمثل في تحديد نقطة زمنية واحدة عند اليوم 7؛ مما يعني أننا لا نملك أي معلومات حول إعادة التشكيل المزمن. لذا، ينبغي إضافة نقاط زمنية لاحقة (4 أو 8 أسابيع) للدراسات طويلة المدى. كما تتأثر إمكانية تكرار النتائج بالاعتماد على جودة الصور: إذ لا يمكن لكل نظام تصوير بالموجات فوق الصوتية تقديم حدود دقيقة لبطانة القلب، كما أن خبرة المشغل تلعب دوراً هاماً. ومن ثم، يُوصى بأن يقوم شخص مدرب باحترافية بإجراء جميع العمليات الجراحية والقياسات.
في ظل هذه القيود، من المفيد مقارنة نهجنا باستراتيجيات بديلة لدراسة وظيفة الجينات في عملية إعادة تشكيل القلب بعد احتشاء عضلة القلب (post‑MI remodeling). ويُعد التلاعب الجيني بوساطة الفيروسات المرتبطة بالغدة AAV (AAV‑mediated gene manipulation) والأليغونوكليوتيدات المضادة لـلـمعنى (ASOs) بديلين شائعين29,30. يمكن لـ AAV9 إيصال تعبير مفرط أو تعطيل جيني مؤقت وخاص بالقلب دون الحاجة إلى التربية، ولكن تظل سعة التعبئة المحدودة (~4.7 kb)، وكفاءة التحول المتغيرة، والتأثيرات خارج الهدف من أبرز السلبيات31. وفي المقابل، يوفر نموذج التعطيل الجيني باستخدام CRISPR/Cas9 فقداناً دائماً وكاملاً للوظيفة، وهو أمر مفيد للدراسات طويلة المدى. أما ASOs فتوفر تعطيلاً جينياً عكسياً ومعتمداً على الجرعة مع بدء سريع للتأثير، مما يجعلها مناسبة للتدخلات الحادة؛ ومع ذلك، فهي تتطلب جرعات متكررة وتفتقر إلى النوعية النسيجية32. وبناءً على ذلك، فإن التعطيل الجيني التأسيسي (constitutive knockout) الموصوف هنا هو الأفضل للاكتشاف الأولي والتوصيف المظهري المزمن.
وأخيراً، يمكن توسيع نطاق هذا البروتوكول ليتجاوز CRACD؛ إذ يمكن استخدام سير العمل ذاته — المتمثل في توليد فئران معطلة جينياً باستخدام تقنية CRISPR/Cas9، مدمجاً مع تخطيط صدى القلب، وتصوير الانفعال، وعلم الأنسجة — لتقييم أي جين مرشح في عملية إعادة تشكل القلب بعد احتشاء عضلة القلب (post-MI remodeling). كما يتوافق إطار التوصيف الظاهري مع نماذج أمراض القلب والأوعية الدموية الأخرى، مثل التضييق المستعرض للأبهر (فرط حمل الضغط) أو إصابة نقص التروية وإعادة التروية. بالإضافة إلى ذلك، يمكن استخدام عينات الأنسجة التي يتم الحصول عليها من هذا البروتوكول في تحليلات الأوميكس المتعددة (الترانسكريبتوميكس، والبروتيوميكس، والميتابولوميكس) للكشف عن الآليات الجزيئية. كراكد (Cracd)يمكن أن يعمل النموذج الناقص يمكن أن يعمل كأداة لاختبار العقاقير: حيث يمكن تقييم المركبات التي يُشتبه في أنها تعمل عبر مسار CRACD. وبذلك، يوفر هذا البروتوكول منصة قابلة للتكيف مع مجموعة واسعة من الدراسات الميكانيكية والترجمية في أبحاث القلب والأوعية الدموية.
الإفصاحات
يعلن المؤلفون أنه لا توجد لديهم أي تضاربات في المصالح.
شكر وتقدير
تم دعم هذا العمل من قبل مؤسسة قوانغدونغ للبحوث الأساسية والتطبيقية الأساسية (2023A1515011278)، ومشروع معهد أبحاث التكنولوجيا الحيوية في مقاطعة قوانغدونغ الممول ذاتياً (GDBRI-ZL202602)، والتبادل والتعاون الأكاديمي الصيني الكندي بشأن نماذج أمراض القلب والأوعية الدموية ومسببات الأمراض (MS202500058).
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| CRISPR/Cas9 | |||
| محلول هيدروكلوريد التريزما | Sigma-Aldrich، الولايات المتحدة الأمريكية | T2663 | تُستخدم لتحضير محلول استخلاص الحمض النووي (DNA) المنظم |
| بروتيناز ك (Proteinase K) | Sigma-Aldrich، الولايات المتحدة الأمريكية | 539480 | تُستخدم لهضم ذيل الفأر |
| مزيج Taq الأخضر | Vazyme، الصين | P131 | تُستخدم لتضخيم تفاعل البوليميراز المتسلسل (PCR) |
| أجاروز | BioFroxx، ألمانيا | 1110GR500 | تُستخدم للفصل الكهربائي لهلام الحمض النووي (DNA) عند 1–تركيز 2% |
| مؤشر الحمض النووي (DNA Marker) | Thermo Scientific، الولايات المتحدة الأمريكية | SM0242 | تُستخدم كدليل لقطع الحمض النووي (DNA ladder) لتحديد أحجام نواتج تفاعل البوليميراز المتسلسل (PCR) |
| طقم TIANamp لاستخلاص الحمض النووي الريبوزي منقوص الأكسجين الجينومي (Genomic DNA) | Tiangen Biotech، الصين | DP304 | تستخدم لاستخلاص الحمض النووي الريبوزي منقوص الأكسجين (DNA) الجينومي من أنسجة ذيل الفأر |
| MEGAshortscript™ طقم النسخ T7 | Thermo Scientific، الولايات المتحدة الأمريكية | AM1354 | تُستخدم في النسخ المختبري لـ gRNA |
| طقم تنقية الحمض النووي الريبوزي (RNA) | Zymo Research، الولايات المتحدة الأمريكية | R1016 | تُستخدم لتنقية الحمض الريبي النووي الدليل (gRNA) المنسوخ |
| بيو كريسبر (BeyoCRISPR)™ طقم فحص sgRNA | Beyotime، الصين | D8412S | تُستخدم للتقييم المختبري لنشاط قطع الحمض النووي الريبوزي الموجه (gRNA) |
| مثبط الريبانوكلياز | NEB، الولايات المتحدة الأمريكية | M0314 | تُستخدم لمنع تحلل الحمض النووي الريبوزي (RNA) أثناء عملية النسخ في المختبر |
| TaKaRa Taq | Takara Bio، اليابان | R001A | تُستخدم في التنميط الجيني بتقنية PCR للحمض النووي المستخلص من ذيل الفأر |
| فيرتي آب (FERTIUP)® وسط تحضين مسبق لنطاف الفئران: PM | Cosmo Bio، اليابان | KYD-002-EX | تُستخدم لتهيئة الحيوانات المنوية قبل عملية الإخصاب في المختبر |
| طقم T7 ARCA mRNA | NEB، الولايات المتحدة الأمريكية | E2060 | تُستخدم في النسخ المختبري لـ mRNA الخاص بـ Cas9 |
| مُنبه الغدد التناسلية المأخوذ من مصل الفرس الحوامل | MCE، الولايات المتحدة الأمريكية | 9002-70-4 | تُستخدم لتحفيز الإباضة المفرطة، وتُعطى عن طريق الحقن داخل الصفاق |
| موهون الغدد التناسلية المشيمائي البشري | ProSpec، إسرائيل | HOR-250 | تُستخدم لتحفيز عملية التبويض، وتُعطى عن طريق الحقن داخل الصفاق |
| ماء خالٍ من رناز (RNase-free water) | Aladdin، الصين | R665526 | تُستخدم لإذابة الحمض النووي الريبوزي (RNA) وتحضير تفاعل البوليميراز المتسلسل (PCR) |
| البادئات | Sangon Biotech، الصين | / | تُستخدم للتنميط الجيني |
| الجراحة | |||
| إيزوفلوران | RWD Life Science، الصين | R510-22-10 | تُستخدم لاستحثاث التخدير والحفاظ عليه أثناء الجراحة |
| كريم إزالة الشعر | فيت، فرنسا | 1000207 | يُوضع على منطقة الصدر لإزالة الفراء قبل الجراحة والتصوير بالموجات فوق الصوتية |
| خيط جراحي 7-0 | لينغتشياو، الصين | LQ7022380206 | تُستخدم للربط الدائم للشريان التاجي النازل الأمامي الأيسر (LAD) |
| خيط جراحي 4-0 | لينغكياو، الصين | LQ4022380412 | تُستخدم لإغلاق شق الجلد بعد الجراحة |
| جهاز تنفس التخدير | Harvard Apparatus، الولايات المتحدة الأمريكية | سطح الطاولة | تُستخدم لإيصال الإيزوفلوران ودعم التنفس |
| جهاز تنفس اصطناعي للحيوانات الصغيرة | تايمينغ، الصين | HX-101E | تُستخدم لتوفير التهوية بالضغط الإيجابي أثناء جراحة الصدر المفتوحة |
| وسادة تسخين ذات درجة حرارة ثابتة | TigerGene، الولايات المتحدة الأمريكية | TG-TP-GS | تُستخدم للحفاظ على درجة حرارة جسم الفأر أثناء الجراحة وفترة التعافي |
| مباعد الأضلاع | شركة شينزين هوايون للتكنولوجيا الحيوية (Shenzhen Huayon Biotech)، الصين | LN-18-4101 | تُستخدم لفصل الأضلاع وكشف القلب من أجل ربط الشريان التاجي الأمامي النازل (LAD) |
| مقص | شركة شينزين هوايون للتكنولوجيا الحيوية، الصين | 18-0551 | تُستخدم لإجراء شقوق جلدية وقص الأنسجة |
| مجهر ستيريوسكوبي (مجهر تشريحي) | نيكون، اليابان | SMZ 745 | تُستخدم لتوفير رؤية مكبّرة أثناء جراحة ربط الشريان التاجي الأيسر النازل (LAD) |
| حامل إبر مجهري | شركة شينزين هوايون للتكنولوجيا الحيوية (Shenzhen Huayon Biotech)، الصين | 18-2211 | تُستخدم للتحكم في إبرة الخياطة الصغيرة من مقاس 7-0 تحت المجهر |
| المواد الكيميائية والكواشف | |||
| عوامل الاقتران بالموجات فوق الصوتية | شركة تيانجين جينيا لتطوير التكنولوجيا، الصين | TM-100 | يُوضع على الصدر لإجراء تخطيط صدى القلب، مما يضمن التلامس الصحيح للمسبار. |
| بارافورمالدهيد | Sigma-Aldrich، الولايات المتحدة الأمريكية | V900894 | تستخدم لتثبيت أنسجة القلب بعد الحصاد |
| زايلين | ماكلين، الصين | 1330-20-7 | تُستخدم لإزالة البارافين وتصفية الأنسجة قبل التلوين |
| الهيماتوكسيلين | Sigma-Aldrich، الولايات المتحدة الأمريكية | H3136 | صبغة نووية، تُستخدم في تلوين الـ HE، |
| إيوسين | Sigma-Aldrich، الولايات المتحدة الأمريكية | E4009 | صبغة سيتوبلازمية، تُستخدم في تلوين الهيماتوكسيلين والإيوسين (HE)، |
| بونسو إس (Ponceau S) | Sigma-Aldrich، الولايات المتحدة الأمريكية | P3504 | تُستخدم في صبغ ماسون لصبغ السيتوبلازم |
| حمض فوسفوموليبديك | Sigma-Aldrich، الولايات المتحدة الأمريكية | 221856 | تُستخدم في صبغ ماسون كشابّة (مادة مثبتة) وللتمييز النسيجي |
| محلول أنيلين الأزرق | Sigma-Aldrich، الولايات المتحدة الأمريكية | 415049 | تُستخدم في صبغ ماسون لصبغ ألياف الكولاجين (باللون الأزرق) |
| الأجسام المضادة لـ CRACD | أبسيا، الصين | KC-35356 | الجسم المضاد الأولي للكشف عن بروتين CRACD بواسطة لطخة ويسترن، بتخفيف 1:2000 |
| الأجسام المضادة لـ GAPDH | CST، الولايات المتحدة الأمريكية | 2118S | الأجسام المضادة للتحكم في التحميل لتقنية لطخة ويسترن، بتخفيف 1:5000 |
| إيثانول | ماكلين، الصين | 64-17-5 | تُستخدم للتجفيف وتحضير الكواشف (بتركيزات 70%، 80%، 95%، 100%) |
| المعدات المختبرية | |||
| Sorvall™ توضيح™ جهاز طرد مركزي Micro 17 | Thermo Scientific، الولايات المتحدة الأمريكية | 75002541 | تُستخدم لتحضير العينات الروتيني |
| جهاز الدورات الحرارية لتفاعل البوليميراز المتسلسل (PCR) | Bio-Rad Laboratories، الولايات المتحدة الأمريكية | 1861096 | تستخدم لتضخيم الحمض النووي (DNA) |
| نظام الحقن المجهري | Eppendorf، ألمانيا | 5193000020 | تُستخدم للحقن المجهري لكواشف CRISPR/Cas9 في الزيجوتات |
| نظام التصوير Vevo 2100 | VisualSonics، كندا | Vevo2100 | نظام تصوير عالي التردد للتقييم غير الجراحي لوظيفة القلب وبنيته بعد احتشاء عضلة القلب |
| المجهر الضوئي | Leica، ألمانيا | DM2500 | تُستخدم لفحص مقاطع القلب المصبوغة بصبغة الهيماتوكسيلين والإيوزين (HE) وصبغة ماسون (Masson) |
| برمجيات التحليل | |||
| ImageJ | المعاهد الوطنية للصحة، الولايات المتحدة الأمريكية | / | تُستخدم لتحليل الصور، بما في ذلك قياس المساحة، والتقدير الكمي للإشارة، ومعالجة الصور النسيجية (صبغتا HE وMasson) |
| VevoLab 3.2.0 / VevoStrain | VisualSonics، كندا | / | برنامج VevoLab لتحليل الوظائف القلبية؛ ووحدة VevoStrain المستخدمة في تحليل انفعال عضلة القلب لتقييم الأداء القلبي بعد احتشاء عضلة القلب |
| GraphPad Prism 8 | GraphPad Software، الولايات المتحدة الأمريكية | / | تُستخدم للتحليل الإحصائي وإعداد الرسوم البيانية |
المراجع
- Fauconnier J, Meli AC, Thireau J, Roberge S, Shan J, Sassi Y, et al. Ryanodine receptor leak mediated by caspase-8 activation leads to left ventricular injury after myocardial ischemia-reperfusion. Proc. Natl. Acad. Sci. U. S. A. 2011;108(32):13258-63.
- Cohn JN, Ferrari R, Sharpe N. Cardiac remodeling-concepts and clinical implications: a consensus paper from an international forum on cardiac remodeling. J Am Coll Cardiol. 2000.
- Liu D, Tian X, Liu Y, Song H, Cheng X, Zhang X, et al. CREG ameliorates the phenotypic switching of cardiac fibroblasts after myocardial infarction via modulation of CDC42. Cell Death Dis. 2021;12(4).
- Contessotto P, Pandit A. Therapies to prevent post-infarction remodelling: from repair to regeneration. Biomaterials. 2021;275.
- Zhu R, Sun H, Yu K, Zhong Y, Shi H, Wei Y, et al. Interleukin-37 and dendritic cells treated with interleukin-37 plus troponin I ameliorate cardiac remodeling after myocardial infarction. J Am Heart Assoc. 2016;5(12).
- Chang Y, Zhang J, Huo X, Qu X, Xia C, Huang K, et al. Substrate rigidity dictates colorectal tumorigenic cell stemness and metastasis via CRAD-dependent mechanotransduction. Cell Rep. 2022;38(7).
- Seo Y, Jang J, Ko KP, Zou G, Huang Y, Zhang S, et al. Actin dysregulation induces immune evasion via oxidative stress-activated PD-L1 in gastric cancer. bioRxiv. 2024.
- Kim B, Zhang S, Huang Y, Ko KP, Jung YS, Jang J, et al. CRACD loss induces neuroendocrine cell plasticity of lung adenocarcinoma. Cell Rep. 2024;43(6).
- Jung YS, Wang W, Jun S, Zhang J, Srivastava M, Kim MJ, et al. Deregulation of CRAD-controlled cytoskeleton initiates mucinous colorectal cancer via β-catenin. Nat Cell Biol. 2018;20(11):1303-14.
- Liu Z, Cao H, Shi Y, Yang R. KIAA1211 plays an oncogenic role in human non-small cell lung cancer. J Cancer. 2019;10(26):6747-53.
- Snider PL, Snider E, Simmons O, Lilly B, Conway SJ. Analysis of uncharacterized mKiaa1211 expression during mouse development and cardiovascular morphogenesis. J Cardiovasc Dev Dis. 2019;6(2).
- Lin YH, Warren CM, Li J, McKinsey TA, Russell B. Myofibril growth during cardiac hypertrophy is regulated through dual phosphorylation and acetylation of the actin capping protein CapZ. Cell Signal. 2016;28(8):1015-24.
- Yang FH, Pyle WG. Reduced cardiac CapZ protein protects hearts against acute ischemia-reperfusion injury and enhances preconditioning. J Mol Cell Cardiol. 2012;52(3):761-72.
- Tong C, Huang G, Ashton C, Wu H, Yan H, Ying QL. Rapid and cost-effective gene targeting in rat embryonic stem cells by TALENs. J Genet Genomics. 2012;39(6):275-80.
- Cordes SP. N-ethyl-N-nitrosourea mutagenesis: boarding the mouse mutant express. Microbiol Mol Biol Rev. 2005;69(3):426-39.
- Cong L, Ran FA, Cox D, Lin S, Barretto R, Habib N, et al. Multiplex genome engineering using CRISPR/Cas systems. Science. 2013;339(6121):819-23.
- Kanke KL, Rayner RE, Bozik J, Abel E, Venugopalan A, Suu M, et al. Single-stranded DNA with internal base modifications mediates highly efficient knock-in in primary cells using CRISPR-Cas9. Nucleic Acids Res. 2024;52(22):13561-76.
- Mihos CG, Liu JE, Anderson KM, Pernetz MA, O'Driscoll JM, Aurigemma GP, et al. Speckle-tracking strain echocardiography for the assessment of left ventricular structure and function: a scientific statement from the American Heart Association. Circulation. 2025;152(10).
- Garg PK, Biggs ML, Kizer JR, Shah SJ, Psaty B, Carnethon M, et al. Glucose dysregulation and subclinical cardiac dysfunction in older adults: the Cardiovascular Health Study. Cardiovasc Diabetol. 2022;21(1).
- Asanuma T, Fukuta Y, Masuda K, Hioki A, Iwasaki M, Nakatani S. Assessment of myocardial ischemic memory using speckle tracking echocardiography. JACC Cardiovasc Imaging. 2012;5(1):1-11.
- Chong SY, Zharkova O, Yatim SMJM, Wang X, Lim XC, Huang C, et al. Tissue factor cytoplasmic domain exacerbates post-infarct left ventricular remodeling via orchestrating cardiac inflammation and angiogenesis. Theranostics. 2021;11(19):9243-61.
- Hung CL, Verma A, Uno H, Shin SH, Bourgoun M, Hassanein AH, et al. Longitudinal and circumferential strain rate, left ventricular remodeling, and prognosis after myocardial infarction. J Am Coll Cardiol. 2010;56(22):1812-22.
- Labuhn M, Adams FF, Ng M, Knoess S, Schambach A, Charpentier EM, et al. Refined sgRNA efficacy prediction improves large- and small-scale CRISPR-Cas9 applications. Nucleic Acids Res. 2018;46(3):1375-85.
- Wu J, Bu L, Gong H, Jiang G, Li L, Ma H, et al. Effects of heart rate and anesthetic timing on high-resolution echocardiographic assessment under isoflurane anesthesia in mice. J Ultrasound Med. 2010;29(12).
- Voigt JU, Pedrizzetti G, Lysyansky P, Marwick TH, Houle H, Baumann R, et al. Definitions for a common standard for 2D speckle tracking echocardiography: consensus document of the EACVI/ASE/Industry Task Force to standardize deformation imaging. J Am Soc Echocardiogr. 2015;28(2):183-93.
- Port F, Chen HM, Lee T, Bullock SL. Optimized CRISPR/Cas tools for efficient germline and somatic genome engineering in Drosophila. Proc Natl Acad Sci U S A. 2014;111(29).
- Gao E, Lei YH, Shang X, Huang ZM, Zuo L, Boucher M, et al. A novel and efficient model of coronary artery ligation and myocardial infarction in the mouse. Circ Res. 2010;107(12):1445-53.
- Rösner A, Barbosa D, Aarsæther E, Kjønås D, Schirmer H, D'Hooge J. The influence of frame rate on two-dimensional speckle-tracking strain measurements: a study on silico-simulated models and images recorded in patients. Eur Heart J Cardiovasc Imaging. 2015;16(10):1137-47.
- Argiro A, Bui Q, Hong KN, Ammirati E, Olivotto I, Adler E. Applications of gene therapy in cardiomyopathies. JACC Heart Fail. 2024;12(2):248-60.
- Micheletti R, Plaisance I, Abraham BJ, Sarre A, Ting CC, Alexanian M, et al. The long noncoding RNA Wisper controls cardiac fibrosis and remodeling. Sci Transl Med. 2017;9(395).
- Wu Z, Yang H, Colosi P. Effect of genome size on AAV vector packaging. Mol Ther. 2010;18(1):80-6.
- Juliano RL. The delivery of therapeutic oligonucleotides. Nucleic Acids Res. 2016;44(14):6518-48.
إعادة الطباعة والأذونات
الوسوم
تم نشر هذه المقالة
الفيديو قريباً