يوفر هذا البروتوكول طريقة قابلة للتكرار لإنتاج خلايا جذعية مستحثة متعددة القدرات بشرية (iPSCs) ذات عدد صبغيات غير طبيعي (aneuploid) وخالية من التكامل الجيني من خلايا السائل السلوي الأولية باستخدام عملية التثقيب الكهربائي للبلازميدات فوق الصبغية (episomal plasmid electroporation). ويعمل البروتوكول على تحسين ظروف التوصيل والزراعة لتثبيت التشوهات الصبغية، مما يوفر منصة عملية لإنشاء نماذج خاصة بأمراض معينة لاستخدامها في الأبحاث اللاحقة والتطبيقات السريرية.
مقالة منهجية
توليد خلايا جذعية بشرية مستحثة متعددة القدرات ذات عدد صبغيات غير طبيعي من خلايا السائل السلوي الأولية عبر التثقيب الكهربائي للبلازميد الإيبيسومي
في هذه المقالة
ملخص
الملخص
يوفر توليد الخلايا الجذعية المستحثة متعددة القدرات (iPSCs) الخاصة بالمريض من خلايا السائل السلوي (AFCs) التي تحمل اختلالات في الصيغة الصبغية (aneuploidies) محددة منصة قوية لنمذجة الاضطرابات الوراثية. ومع ذلك، لا يزال إنشاء مسار إعادة برمجة موثوق وقابل للتكرار لخلايا AFCs ذات الصيغة الصبغية غير الطبيعية يمثل تحدياً تقنياً بسبب عدم الاستقرار الجينومي الجوهري والقدرة التكاثرية المتغيرة لهذه الخلايا. نقدم هنا طريقة شاملة وغير دمجية لتوليد خلايا iPSCs بشرية ذات صيغة صبغية غير طبيعية من خلايا AFCs أولية باستخدام التثقيب الكهربائي للبلازميدات فوق الصبغية (episomal plasmid electroporation). يفصل هذا البروتوكول سير العمل الكامل، بما في ذلك إذابة الخلايا وتوسيعها باستراتيجية تكييف تدريجي للوسط الغذائي، وتحسين عملية توصيل البلازميدات عن طريق نظام التثقيب الكهربائي، والزراعة المتسلسلة بعد التثقيب الكهربائي مع تغييرات في الأوساط الغذائية الموجهة نحو التحول من الميزنشيمي إلى الظهاري (MET)، والالتقاط الميكانيكي للمستعمرات بناءً على معايير مورفولوجية محددة. كما نصف كذلك إجراءات التحقق، بما في ذلك صبغ المناعة الفلورية لعلامات تعدد القدرات الأساسية، وتحليل النمط النووي عن طريق نطاقات G (G-banding) لتأكيد الحفاظ على الصيغة الصبغية غير الطبيعية، والتحقق من خلو الخلايا من الناقل فوق الصبغي باستخدام تقنية PCR. ينتج عن هذا البروتوكول الخالي من الخلايا المغذية وغير الدمجي خطوط iPSC ذات صيغة صبغية غير طبيعية مناسبة لنمذجة الأمراض، وفحص الأدوية، ودراسات بيولوجيا الكروموسومات.
المقدمة
أحدث ظهور تقنية الخلايا الجذعية المستحثة متعددة القدرات تحولاً جذرياً في الطب التجديدي، ونمذجة الأمراض، واكتشاف الأدوية، وذلك من خلال تمكين توليد خلايا متعددة القدرات خاصة بالمريض دون المخاوف الأخلاقية المرتبطة بالخلايا الجذعية الجنينية البشرية (hESCs). نشأ الأساس المفاهيمي لإعادة البرمجة الخلوية من إثبات جوردون لنقل نواة الخلية الجسدية1، تلى ذلك تأسيس الخلايا الجذعية الجنينية2,3,4، وفي النهاية تطوير تعدد القدرات المستحث5 عن طريق التعبير خارجي المنشأ لـ OCT4 و SOX2 و KLF4 و c-MYC. ومنذ ذلك الحين، أصبحت تقنية iPSC منصة لا غنى عنها للبحث في التطور البشري، والاضطرابات الوراثية، والطب الدقيق. استخدمت طرق إعادة البرمجة المبكرة ناقلات فيروسية قهقرية أو ناقلات لينتيفيروسية، ولكن المخاطر المرتبطة بدمجها حدت من تطبيقاتها السريرية. وبناءً على ذلك، أصبح تطوير طرق إعادة برمجة خالية من الدمج أولوية للترجمة السريرية. وتشمل هذه الطرق استخدام فيروس سينداي6، والـ mRNA الاصطناعي7، والناقلات الإيبيسومية القائمة على آلية oriP/EBNA1 (المستضد النووي 1 لفيروس إبشتاين-بار)8، وإعادة البرمجة الكيميائية9,10,11,12 باستخدام مركبات الجزيئات الصغيرة فقط.
تعد اختلال الصيغة الصبغية (Aneuploidy) السبب الرئيسي للإجهاض والعيوب الخلقية عند البشر. ويتطلب فهم الآليات الخلوية والجزيئية الكامنة وراء التشوهات التنموية المرتبطة باختلال الصيغة الصبغية وجود نماذج خلوية مناسبة تحاكي بدقة الخلفية الجينية لهذه الحالات. تمثل خلايا السائل السلوي (AFCs) مادة بدائية جذابة وفعالة لتوليد الخلايا الجذعية المستحثة وافرة القدرة (iPSC) الخاصة بالمريض13,14,15، لا سيما في سياق الاضطرابات الجينية التي يتم تشخيصها قبل الولادة16,17. ويوفر السائل السلوي المتبقي الذي يتم الحصول عليه أثناء عملية بزل السائل السلوي الروتينية إمكانية الوصول إلى الخلايا المشتقة من الجنين دون الحاجة إلى خزعة نسيجية تداخلية إضافية بعد الولادة. وبالمقارنة مع الخلايا الجسدية البالغة، تظهر خلايا السائل السلوي (AFCs) عموماً قدرة تكاثرية أعلى، وتيلوميرات أطول، وعبئاً أقل من الطفرات البيئية التراكمية، ولدونة تنموية أكبر، وكل ذلك يسهل عملية إعادة البرمجة الخلوية18,19. والأهم من ذلك، أن خلايا السائل السلوي تحافظ بدقة على التركيب الصبغي للجنين النامي، مما يجعلها مصدراً مثالياً لإنشاء نماذج iPSC خاصة بالأمراض من الاختلالات الصبغية، بما في ذلك التثلث الصبغي 2120، والتثلث الصبغي 1821، ومتلازمة تيرنر، ومتلازمة كلاينفلتر22.
يوفر هذا البروتوكول دليلاً شاملاً لإنتاج خلايا جذعية مستحثة متعددة القدرات (iPSCs) خالية من الاندماج من خلايا السائل السلوي ذات الصيغ الصبغية غير الطبيعية (aneuploid) باستخدام ناقلات خارج صبغية (episomal vectors). وتتضمن الطريقة إجراءات مفصلة لعزل الخلايا، وإعادة البرمجة، واختيار المستعمرات، والتوصيف. وبالمقارنة مع طرق إعادة البرمجة الأخرى الخالية من الاندماج، يوفر نظام البلازميد خارج الصبغي توازناً عملياً بين السلامة الجينومية والبساطة التقنية وفعالية التكلفة، مما يجعله مناسباً بشكل خاص للاستخدام المختبري الروتيني وتطبيقات البنوك الحيوية واسعة النطاق. هذا البروتوكول قابل للتطبيق على كل من خلايا السائل السلوي (AFCs) المحفوظة بالتجميد من البنوك الحيوية القائمة وعينات السائل السلوي المتبقية الطازجة التي يتم الحصول عليها أثناء التشخيص الروتيني قبل الولادة. وعلى الرغم من أن كفاءات إعادة البرمجة خارج الصبغية المبلغ عنها لخلايا السائل السلوي منخفضة نسبياً، وقد يحدث إنقاذ صبغوي تلقائي أثناء إعادة البرمجة أو الزراعة المطولة، لا سيما في بعض حالات اختلال الصيغة الصبغية، فإن سير العمل هذا قابل للتطبيق بسهولة في إنشاء بنوك حيوية لخلايا iPSC خاصة بأمراض معينة، ودراسات بيولوجيا الصبغيات والتطور البشري المبكر، والتمايز اللاحق إلى أنواع خلايا متخصصة في سلالات محددة. ويعد هذا النهج مناسباً بشكل خاص لإنتاج خطوط iPSC خالية من الاندماج وذات صلة سريرية من عينات ما قبل الولادة لنمذجة الأمراض والدراسات الميكانيكية للاختلالات الصبغية.
البروتوكول
أُجريت جميع الإجراءات التي تضمنت عينات من السائل السلوي البشري وفقًا لإعلان هلسنكي، وحصلت على موافقة مجلس المراجعة المؤسسية (IRB)/لجنة أخلاقيات البحوث البشرية في مستشفى جامعة بكين الثالث (بروتوكول رقم M2023406). تم الحصول على العينات ذات اختلال الصيغة الصبغية من البنك الحيوي لمركز الطب التناسلي في مستشفى جامعة بكين الثالث، وهو مستودع سريري معتمد من الدولة ومتخصص في الموارد التنموية والتناسلية البشرية. تتكون هذه العينات من السائل السلوي المتبقي الذي تم جمعه أصلاً أثناء عملية بزل السائل السلوي الروتينية للتشخيص السريري قبل الولادة، والتي كان من المفترض التخلص منها لولا ذلك. تم الحصول على موافقة كتابية مستنيرة من جميع المتبرعين قبل الجمع، مع تفويض صريح بتخزين العينات المتبقية في البنك الحيوي واستخدامها لاحقاً في الأبحاث. تم إخفاء هوية جميع العينات بدقة لحماية خصوصية المرضى. تم اختيار العينات ذات النمط النووي المؤكد لاختلال الصيغة الصبغية والتي تم تحديدها من خلال تحليل النطاقات G السريري، بما في ذلك Trisomy 21 (متلازمة داون، N = 2)، وTrisomy 18 (متلازمة إدواردز، N = 1)، وMonosomy X (متلازمة تيرنر، N = 1)، ومتلازمة كلاينفلتر (N = 2)، وذلك لتحفيز تكوين iPSCs. تلخص الجدول 1 معلومات مفصلة عن الخطوط الخلوية ذات اختلال الصيغة الصبغية المستخدمة في إعادة البرمجة.
1. إذابة واستنبات أولي لخلايا السائل السلوي المحفوظة في البنك الحيوي
ملاحظة: يوضح هذا القسم الإجراء الموحد لاسترجاع واستعادة خلايا AFCs ذات الصيغة الصبغية غير الطبيعية (aneuploid) من البنك الحيوي. يتم تكثير الخلايا المستنبتة للحصول على مجموعات كافية لعملية إعادة البرمجة فوق الصبغية (episomal reprogramming) اللاحقة.
- إجراء الإذابة الموحد
- موازنة الوسط الغذائي: يتم تدفئة وسط AmnioType-1 الكامل إلى 37 °C قبل الاستخدام.
- استعادة العينة: استخرج أنبوب حفظ بالتجميد (cryovial) يحتوي على ما يقرب من 300,000 من الخلايا الدهنية المكونة للدم (AFCs) المحفوظة بالتجميد في وسط تجميد الخلايا من وحدة التخزين بالنيتروجين السائل. انقل الأنبوب فوراً إلى المختبر فوق ثلج جاف لمنع الذوبان المبكر.
- الإذابة السريعة: اغمر النصف السفلي من أنبوب الحفظ بالتجميد في 37 °C حمام مائي مع التقليب برفق. أوقف عملية الإذابة عندما تبقى بلورة ثلجية صغيرة ومرئية فقط.
ملاحظة: تجنب الإذابة الكاملة؛ وذلك لمنع تعرض الخلايا للآثار السامة لـ DMSO الدافئ. - التخفيف: في غطاء تدفق صفائحي، يُنقل معلق الخلايا قطرة تلو الأخرى إلى أنبوب مخروطي سعة 15 مل يحتوي على 4 مل من وسط AmnioType-1 المُدفأ مسبقاً.
- الطرد المركزي: يتم طرد المعلق مركزياً عند 300 × ج لمدة 5 دقائق في درجة حرارة الغرفة.
- الاستزراع: يتم سحب السائل الطافي وإعادة تعليق كتلة الخلايا برفق في 2 مل من وسط AmnioType-1 الطازج. تُنقل الخلايا إلى طبق ذي 6 آبار أو قارورة T25 مطلية مسبقاً بـ 0.1% جيلاتين بكثافة تتراوح بين 30,000 إلى 50,000 خلية/سم²².
- التحضين الأولي: توضع الخلايا في حضانة رطبة عند 37 °C و5% CO22افحص الدوارق باستخدام مجهر تباين الطور المقلوب في اليوم الثالث بعد الاستزراع للتأكد من الالتصاق الأولي للخلايا.
- توسيع ونقل الوسط الغذائي للخلايا المكونة للحويصلات الأولية (AFCs)
- تحضير وسط استزراع الخلايا الليفية (FC): لتحضير 100 مل من وسط استزراع الخلايا الليفية المُعد مختبرياً، اخلط 82 مل من وسط DMEM عالي الجلوكوز مع 15 مل من مصل جنين البقر (FBS). أضف 1 مل من 100× GlutaMAX، 1 مل من 100× الأحماض الأمينية غير الأساسية (NEAA)، و1 مل من البنسلين-ستربتومايسين (P/S). قم بترشيح الوسط عبر 0.22 µm نظام ترشيح بالتفريغ في بيئة معقمة.
- أثناء عملية التوسع، يتم تغيير وسط خلايا السائل السلوي (AFC) تدريجياً كل 3 أيام من الوسط السريري المتخصص (AmnioType-1) إلى نظام قياسي لاستزراع الخلايا الليفية (وسط FC، مُحضّر داخلياً)، وذلك لضمان الاستقرار الأيضي قبل عملية التثقيب الكهربائي.
- أجرِ انتقالاً تدريجياً للوسط الزراعي:
- اليوم الثالث (75% AmnioType-1: 25% FC): اسحب وسط AmnioType-1 الموجود. أضف وسطاً مختلطاً يتكون من 75% من AmnioType-1 و25% من وسط FC.
- اليوم السادس (50% AmnioType-1: 50% FC): يتم سحب الوسط واستبداله بنسبة 1:1 من وسط AmnioType-1 ووسط FC.
- اليوم التاسع (25% AmnioType-1 : 75% FC): يتم سحب الوسط المستزرع واستبداله بخليط يتكون من 25% من AmnioType-1 و75% من وسط FC.
- اليوم 12 (100% FC): يتم سحب السائل واستبداله بوسط 100% FC.
ملاحظة: يقلل هذا التكيف التدريجي من الصدمة الخلوية ويمنع انفصال المستنسخات غير الصيغية (aneuploid clones) الحساسة.
- أجرِ انتقالاً تدريجياً للوسط الزراعي:
- راقب مورفولوجيا المستعمرات يومياً. يحتوي السائل السلوي على مجتمع غير متجانس من الخلايا. حدد النوعين الأساسيين باستخدام مجهر تباين الطور: النوع F (شبيه بالأرومات الليفية، مغزلي الشكل) والنوع E (شبيه بالظهارية، مستدير). وتعد المجموعة الفرعية الميزنكيمية الشبيهة بالأرومات الليفية هي الأمثل لإعادة البرمجة.
ملاحظة: راقب الخلايا عن كثب لرصد أي علامات على الشيخوخة الخلوية.
- تمرير الخلايا الدهنية المكونة للدم الأولية (AFCs)
- بمجرد وصول الخلايا إلى درجة تلاحم تتراوح بين 80% و90% (عادةً في اليوم 10-14)، يتم سحب الوسط من القارورة وغسل الخلايا مرة واحدة برفق باستخدام 2 مل من محلول دلبكو الملحي المنظم بالفوسفات (DPBS) الخالي من الكالسيوم (Ca).²⁺/ملغ²⁺.
- أضف 1 مل من محلول Trypsin-EDTA بتركيز 0.25% لبئر واحد من طبق يحتوي على 6 آبار لتغطية الطبقة الخلوية الأحادية.
- حضّن في 37 °C لمدة 4-5 دقائق حتى تنفصل الخلايا تماماً.
- قم بمعادلة كاشف التفكيك بإضافة 3 مل من وسط FC. ثم انقل المعلق إلى أنبوب مخروطي سعة 15 مل.
- قم بالطرد المركزي عند 300 × ج لمدة 5 دقائق في درجة حرارة الغرفة.
- اشفط الطافي وأعد تعليق كتلة الخلايا في 1 مل من وسط FC الطازج. قم بعد الخلايا الحية باستخدام مقياس كرات الدم (hemocytometer) أو عداد خلايا آلي مع استخدام صبغة التريبان الأزرق لاستبعاد الخلايا الميتة.
- قم بتوزيع الخلايا في دورق T25 جديد بكثافة تتراوح بين 30,000 و50,000 خلية/سم²² في وسط غذائي كامل (عادةً بنسبة 1:2 أو 1:3).
- قم بتوسيع الخلايا حتى الممر 3-5 قبل استخدامها في إعادة البرمجة. ولا تستخدم الخلايا التي تتجاوز الممر 6.
ملاحظة: تعد جودة الخلايا وقت التثقيب الكهربائي العامل الأكثر أهمية على الإطلاق في تحديد نجاح عملية إعادة البرمجة. استخدم فقط خلايا AFC من النوع F السليمة والتي تنمو في طور النمو اللوغاريتمي، على ألا تظهر عليها أي علامات للشيخوخة أو تشوهات مورفولوجية.
2. التثقيب الكهربائي للبلازميدات خارج الكروموسومية في الخلايا الليفية الجنينية (AFCs) باستخدام نظام التثقيب الكهربائي للخلايا
- طلاء أوعية الزرع بمصفوفة الغشاء القاعدي
- يتم إذابة مصفوفة الغشاء القاعدي (Matrigel) طوال الليل في درجة حرارة 4 °C على الثلج.
- يُبرد محلول DPBS المعقم أو وسط DMEM/F-12 على الثلج. تُبرد رؤوس الماصات والأنابيب مسبقاً على الثلج لمدة 30 دقيقة.
- قم بتخفيف مصفوفة الغشاء القاعدي بنسبة 1:200 في وسط DMEM/F-12 مبرد بالثلج باستخدام رؤوس ماصات وأنابيب مبردة (على سبيل المثال، 30 µL المصفوفة + 6 مل من وسط DMEM/F-12 لصفيحة ذات 6 آبار).
- امزج المزيج جيداً وببطء عن طريق سحب السائل وطرده بالماصة من 5 إلى 6 مرات، مع تجنب تكوين فقاعات هوائية.
- أضف محلول الطلاء المخفف إلى أوعية المزرعة بمعدل 1 مل لكل بئر في طبق ذي 6 آبار.
- يُحضن الوعاء المطلي عند 37 °C لمدة ساعة واحدة على الأقل، أو في درجة حرارة الغرفة لمدة ساعتين.
- قم بسحب محلول الطلاء مباشرة قبل زراعة الخلايا. أضف 2 مل من وسط FC الخالي من المضادات الحيوية بالإضافة إلى 10 μM Y-27632 (مثبط ROCK) وإعادة الطبق إلى الـ 37 °C الحاضنة. لا تسمح بجفاف السطح المغطى.
ملاحظة: يمكن تخزين الأطباق المطلية في 4 °C تُغلق بإحكام باستخدام Parafilm لمدة تصل إلى 7 أيام. تُترك لتصل إلى درجة حرارة الغرفة قبل الاستخدام.
- إذابة وتحضير بلازميدات إعادة البرمجة الإبيسومية
- اختيار البلازميد: استخدم البلازميدات الخارجية التالية لإعادة البرمجة: pCXLE-hOCT3/4-shp53، وpCXLE-hSK، وpCXLE-hUL، وpCXLE-EBNA1.
ملاحظة: (اختياري) لتحسين ظروف التثقيب الكهربائي، يمكن إجراء التثقيب الكهربائي لـ pCE-GFP بالتوازي تحت إعدادات متطابقة. ويوفر تعبير GFP خلال أول 48-72 ساعة مؤشراً ملائماً لكفاءة عفن الخلية، بينما يمكن استخدام الفقدان التدريجي لإشارة GFP أثناء عمليات الممرات اللاحقة لمراقبة التخفيف العابر للبلازميد. - ضبط الجودة (QC): تحقق من تركيز الحمض النووي (DNA) ونقاوته باستخدام مقياس الطيف الضوئي. تأكد من أن نسبة A260/280 تتراوح بين 1.8 و1.9. تأكد من أن تركيز كل بلازميد أكبر من 1 µg/µL ومعقمة.
ملاحظة: من الضروري التأكد من تحضير جميع البلازميدات باستخدام طرق خالية من الذيفان الداخلي (endotoxin-free)، حيث يمكن أن تؤدي البقايا من الذيفانات الداخلية إلى سمية خلوية عالية وانخفاض ملحوظ في كفاءة إعادة البرمجة. تُخزن البلازميدات في حصص صغيرة (aliquots) عند درجة حرارة -20 °C لتجنب تكرار دورات التجميد والإذابة. - لـ 100 µL تفاعل، تحضير 5 µg من خليط البلازميد (بنسبة وزنية متساوية من pCXLE-hOCT3/4-shp53 وpCXLE-hSK، (pCXLE-hUL، وpCXLE-EBNA1).
- اختيار البلازميد: استخدم البلازميدات الخارجية التالية لإعادة البرمجة: pCXLE-hOCT3/4-shp53، وpCXLE-hSK، وpCXLE-hUL، وpCXLE-EBNA1.
- ضبط معلمات التثقيب الكهربائي.
- قم بتشغيل جهاز التثقيب الكهربائي. اضبط معاملات النبضة وفقاً للإعدادات المثالية للخلايا الأولية الملتصقة: جهد النبضة: 1,200 فولت؛ عرض النبضة: 20 ميلي ثانية؛ عدد النبضات: 2.
- املأ محطة الماصة بـ 2 مل من Buffer E، مع التأكد من غمر القطب الكهربائي بالكامل.
ملاحظة: إذا أسفرت التجارب الأولية عن حيوية خلوية تقل عن 50%، ينبغي النظر في اختبار مجموعات معايير بديلة: 950 فولت / 20 ميلي ثانية / نبضتان (أكثر رفقاً). تضحي هذه البدائل ببعض الكفاءة في سبيل تحسين معدلات البقاء.
- تحضير الخلايا المكونة للدم (AFCs) لعملية التثقيب الكهربائي
- في اليوم 0، تحقق من أن الخلايا تُظهر مورفولوجيا مغزلية الشكل وسليمة تحت المجهر، مع عدم وجود علامات على فرط النمو، أو الشيخوخة، أو التلوث. تأكد من وصول الخلايا إلى درجة تلاقي بنسبة 90% وأنها في طور النمو اللوغاريتمي النشط.
- قبيل البدء بإجراء التثقيب الكهربائي مباشرةً، قم بشفط طبقة Matrigel الواقية واستبدلها بـ 2 مل من الوسط الخالي من المضادات الحيوية والمسخن مسبقاً. وسط FC بلس 10 μM Y-27632 (مثبط ROCK). قم بتسخين وسط FC الخالي من المضادات الحيوية مسبقاً إلى 37 °C في حاضنة لمدة 20 دقيقة على الأقل قبل حصاد الخلايا لنظام التثقيب الكهربائي.
ملاحظة: لا تضف البنسلين-ستريبتومايسين (P/S) أو أي مضادات حيوية أخرى إلى هذه الدفعة المحددة من الوسط الغذائي. فبعد عملية التثقيب الكهربائي، يظل غشاء الخلية نفاذاً وعرضة للتأثر لفترة وجيزة، وقد يؤدي وجود المضادات الحيوية إلى زيادة الموت الخلوي المبرمج. - اشفط الوسط الزرعي للخلايا الدهنية المجمعة (AFCs) تمهيداً لعملية التثقيب الكهربائي، واغسل الطبقة أحادية الخلية مرة واحدة باستخدام محلول DPBS الخالي من الكالسيوم (Ca).²⁺/ملغ²⁺.
- أضف 2 مل (لقارورة T25) من إنزيم TrypLE Select واتركه في الحاضنة عند 37 °C لمدة 4-5 دقائق.
- يتم التعادل بإضافة 6 مل من وسط FC الكامل، ثم يُنقل المزيج إلى أنبوب مخروطي سعة 15 مل. قم بعدّ الخلايا باستخدام عداد خلايا آلي.
- طرد مركزي عند 300 × ج لمدة 5 دقائق في درجة حرارة الغرفة.
- قم بإزالة الطافي تماماً باستخدام 200 μL طرف الماصة، مع الحرص على عدم تعكير راسب الخلايا الصغير.
- أعد تعليق كتلة الخلايا في Buffer R بكثافة نهائية تبلغ 1.0 × 10⁷ إلى 1.4 × 10⁷ خلية/مل.
ملاحظة: يتم سحب السائل الطافي بأكبر قدر ممكن لضمان جفاف الكتلة الخلوية؛ حيث يمكن أن يؤدي وجود بقايا من وسط الزرع إلى تخفيف محلول إعادة التعليق، مما قد يقلل من كفاءة التثقيب الكهربائي. استخدم المحلول المنظم R (للخلايا الملتصقة) بالنسبة للخلايا المكونة للألياف (AFCs). تحقق من اختيار المحلول المنظم وفقاً لتوصيات الشركة المصنعة.
- قم بإجراء التثقيب الكهربائي.
- تجزئة العينة 110 μL من معلق الخلايا (الذي يحتوي على 1.0-1.4 × 10⁶ (الخلايا) في أنبوب طرد مركزي دقيق معقم سعة 1.5 مل.
ملاحظة: أضف كمية إضافية من 10 μL من المحلول المنظم R حتى الحجم النهائي لضمان وجود معلق خلوي كافٍ، مما يساعد في تجنب إدخال فقاعات الهواء أثناء عملية السحب. - أضف 5 μg مزيج البلازميد إلى الـ 110 μL حصة من الخلايا. اخلط عن طريق السحب والضخ اللطيف باستخدام الماصة لـ 3 مرات.
- قم بتوصيل [أداة] معقمة 100 μL ثبّت رأس التثقيب الكهربائي في الماصة، مع التأكد من استقراره في مكانه بإحكام.
- تحميل 100 μL من معلق الخلايا/الحمض النووي (DNA)، مع التأكد من عدم وجود فقاعات هواء مرئية.
ملاحظة: تتسبب الفقاعات الهوائية في حدوث قوس كهربائي أثناء النبضة الكهربائية، مما يؤدي إلى قتل الخلايا وإتلاف الطرف. إذا كانت الفقاعات مرئية، قم بطرد الخليط وإعادته إلى الأنبوب، ثم كرر عملية السحب ببطء. - أدخل الماصة المُحمَّلة رأسيًا في أنبوب المنظم (Buffer tube) في المحطة حتى تستقر في مكانها وتسمع صوت طقة. تحقق من صحة جميع المعلمات على شاشة اللمس، ثم اضغط على زر البدء (Start) لتنفيذ تسلسل النبضات.
- انتظر حتى تظهر البيانات على الشاشة "مكتمل" (عادةً خلال 1-2 ثانية). أخرج الماصة فوراً من المحطة، ثم انقل معلق الخلايا التي خضعت للتثقيب الكهربائي مباشرة إلى 2-3 آبار طبق مُغلف ذي 6 آبار تحتوي على وسط FC خالي من المضادات الحيوية ومُدفأ مسبقاً + 10 μM Y-27632.
- تخلص من الطرف المستخدم بأمان. كرر الخطوات لآبار إضافية أو مكررات حسب الحاجة. ضع الطبق ذو الـ 6 آبار في 37 °C، 5% CO2₂ في حاضنة رطبة طوال الليل.
- تجزئة العينة 110 μL من معلق الخلايا (الذي يحتوي على 1.0-1.4 × 10⁶ (الخلايا) في أنبوب طرد مركزي دقيق معقم سعة 1.5 مل.
3. استزراع إعادة البرمجة بعد التثقيب الكهربائي
ملاحظة: يصف هذا القسم التغييرات المتتالية في الأوساط الغذائية وتحقيق إعادة برمجة كاملة للخلايا الليفية المكونة للأنسجة الدهنية (AFCs) إلى خلايا جذعية مستحثة متعددة القدرات (iPSCs). يمتد الجدول الزمني لحوالي 25 يوماً بدءاً من التثقيب الكهربائي وصولاً إلى اختيار المستعمرات.
- بعد حوالي 16–18 ساعة من التثقيب الكهربائي، اشفط الوسط بعناية دون إزاحة أي من الخلايا الملتصقة الباقية. أضف بلطف 2 mL من وسط FC المُدفأ مسبقاً (الذي يحتوي على P/S) إلى كل بئر للسماح للخلايا بالاستقرار خلال أول 24 ساعة. أعد الطبق إلى الحاضنة.
- من اليوم 2 إلى اليوم 6، استبدل نصف الوسط كل يومين: اشفط بعناية 1 mL من الوسط المستهلك وأضف 1 mL من وسط TeSR-E8 (E8) الطازج.
ملاحظة: يحافظ التغيير الجزئي للوسط على العوامل ذات الإفراز الذاتي (autocrine factors) المفرزة التي تدعم أحداث إعادة البرمجة المبكرة. اشفط ببطء من حافة البئر لتقليل اضطراب الخلايا الانتقالية ضعيفة الالتصاق. - في اليوم 7، قم بإجراء استبدال كامل للوسط باستخدام 2 mL من E8 كل يومين.
- راقب التغيرات المورفولوجية تحت المجهر يومياً. يُتوقع ظهور تجمعات تشبه رصيف الشارع (cobblestone-like) مُعاد برمجتها جزئياً في حدود اليوم 10–14.
ملاحظة: (اختياري) عزز المزارع بـ 25–100 μM من بوتيرات الصوديوم بين اليوم 9 و15 إذا كان تكوين المستعمرات ضعيفاً23. - استبدل وسط E8 يومياً ابتداءً من اليوم 15 فصاعداً.
- ابتداءً من اليوم 18 تقريباً، افحص الآبار يومياً للبحث عن ظهور مستعمرات iPSC حقيقية. يتوفر الجدول الزمني الكامل لسير عمل إعادة البرمجة من التثقيب الكهربائي في اليوم 0 وحتى التقاط المستعمرات في الجدول 2.
4. الالتقاط الميكانيكي لمستعمرات الخلايا الجذعية المحفزة وافرار خطوط الخلايا الجذعية المحفزة المؤسسة
ملاحظة: ميز مستعمرات iPSC الحقيقية عن الخلايا المعاد برمجهـا أو غير المعاد برمجهـا بناءً على المعايير المورفولوجية المذكورة أدناه. حدد المستعمرات "المثالية" بناءً على السمات المورفولوجية التالية: (1) تحديد الحدود: ابحث عن حافة حادة وملساء ودائرية تفصل المستعمرة بوضوح عن خلايا السائل السلوي المحيطة؛ (2) الكثافة الخلوية: تأكد من أن الخلايا داخل المستعمرة صغيرة ومترابطة بإحكام، وتمتلك نسبة عالية من النواة إلى السيتوبلازم مع وجود نويات بارزة؛ (3) الانكسارية: تظهر المستعمرات عالية الجودة ساطعة وعالية الانكسارية تحت مجهر تباين الطور؛ (4) التسطح: يجب أن تنمو المستعمرة كطبقة مسطحة ثنائية الأبعاد بدلاً من أن تكون "كتلة" ثلاثية الأبعاد. غالبًا ما تظهر المستعمرات المعاد برمجهـا جزئيًا في وقت أبكر من مستعمرات iPSC الحقيقية، وتميل إلى أن تكون أكبر وأكثر سمكاً وثلاثية الأبعاد. ستتمايز هذه المستعمرات تلقائيًا عند التقاطها ونقلها. لا تقم بالتقاط المستعمرات التي تظهر بها "فجوات"، أو حواف مشرشرة، أو علامات تمايز مركزي.
- الالتقاط الميكانيكي ونقل مستعمرات iPSC
- قم بتحضير طبق 24-well مغطى بـ Matrigel مع إضافة 0.5 mL لكل بئر من وسط E8 المدعم بـ 10 μM من Y-27632. يُحفظ عند 37 °C حتى وقت الاستخدام.
- ضع طبق الزرع تحت مجهر ستيريو داخل كابينة سلامة بيولوجية من الفئة الثانية (Class II). قم بتعقيم عدسة مجهر الستيريو والمنصة باستخدام إيثانول 70% قبل تقريب الطبق من مجال الرؤية.
- حدد المستعمرات التي تظهر مورفولوجيا صحيحة (مسطحة، مدمجة، وذات حواف واضحة).
- باستخدام رأس ماصة معقم سعة 10 μL ممسوك بزاوية ضحلة (حوالي 30° من المستوى الأفقي)، قم بخدش محيط المستعمرة المختارة برفق لتحديد حدودها. قم بتقطيع المستعمرة إلى حوالي 3 شظايا عن طريق إجراء شقوق متوازية عبر قطرها. استخدم رأس الماصة نفسه لكشط ورفع شظايا المستعمرة برفق من الركيزة، وانقل الشظايا إلى بئر واحد من طبق 24-well المُحضّر.
- كرر الخطوات لكل مستعمرة، مع وضع الشظايا في آبار منفصلة.
- ضع طبق 24-well في الحاضنة. اترك الطبق دون تحريك لمدة 24 h للسماح بالتصاق الشظايا.
- بدءاً من اليوم الثاني بعد الالتقاط، استبدل الوسط يومياً بوسط E8 بدون Y-27632.
- عندما تتمدد المستعمرات الملتقطة لتصل إلى درجة تلاقي (confluence) تتراوح بين 70–80% (عادةً خلال 3–6 أيام)، قم بإجراء عملية الممر (passage) باستخدام Accutase.
- تمرير وتوسيع خطوط iPSC المستقرة
- قم بشفط الوسط من البئر الذي يحتوي على iPSC. أضف Accutase لتغطية الطبقة الأحادية. يتم التحضين في درجة حرارة الغرفة لمدة 2–6 min. راقب حواف المستعمرة تحت المجهر؛ حيث يجب أن تبدأ الخلايا في الانفصال، وتظهر فجوات بين الخلايا.
- قم بشفط محلول Accutase تماماً. أضف 1 mL من وسط E8 + 10 μM Y-27632. قم بنقل الوسط برفق بالماصة عبر سطح المستعمرة من 5–8 مرات باستخدام ماصة P1000 لتفكيك المستعمرات إلى تكتلات صغيرة مكونة من 2–8 خلايا.
ملاحظة: تجنب التفكيك المفرط لخلايا iPSCs، لأن ذلك يقلل من فرص البقاء بشكل كبير. الهدف هو الحصول على تكتلات صغيرة متجانسة، وليس معلقاً من الخلايا المفردة. - انقل التكتلات مع 1 mL من وسط E8 + 10 μM Y-27632 بالتساوي إلى طبق 12-well مغطى حديثاً بـ matrigel. ضع الطبق في الحاضنة.
- غير الوسط يومياً باستخدام وسط E8 (بدون Y-27632 بعد اليوم الأول).
- استمر في عملية التمرير كل 3–4 أيام بنسبة تقسيم من 1:2 إلى 1:5، اعتماداً على درجة التلاقي.
- قم بزراعة خطوط iPSC لمدة 10 تمريرات (passages) كحد أدنى قبل التطبيقات اللاحقة لضمان التخلص المستقر من الإبيسوم (episomal clearance).
5. توصيف خطوط الخلايا الجذعية المستحثة متعددة القدرات ذات الصيغة الصبغية غير المتوازنة (aneuploid iPSC lines)
ملاحظة: قم بإجراء اختبارات التحقق التالية على خطوط iPSC المستقرة (الممر 10 أو ما بعده) لتأكيد تعدد القدرات، وسلامة النمط النووي، وخلو الخلايا من الناقل الإبيسومي.
- تأكيد تعبير مؤشرات تعدد القدرات.
- تحقق من تعبير مؤشرات تعدد القدرات الأساسية باستخدام صبغ المناعة الفلورية، أو قياس التدفق الخلوي، أو كليهما. وتتلخص ملفات المؤشرات المتوقعة في جدول 3.
ملاحظة: على الرغم من أن صبغ التألق المناعي يوفر تأكيداً أولياً لتعدد القدرات، إلا أنه يُوصى بإجراء تفاعل البوليميراز المتسلسل الكمي في الوقت الحقيقي (RT-qPCR) وتسلسل الحمض النووي الريبي (RNA-seq) لإجراء تقييم أوسع للتعبير الجيني المرتبط بتعدد القدرات، بما في ذلك LIN28A وDPPA4 وKLF4.
- تحقق من تعبير مؤشرات تعدد القدرات الأساسية باستخدام صبغ المناعة الفلورية، أو قياس التدفق الخلوي، أو كليهما. وتتلخص ملفات المؤشرات المتوقعة في جدول 3.
- تحليل النمط النووي بواسطة التلوين بالنطاقات G
تنبيه هام: يمكن أن تؤدي عملية إعادة البرمجة إلى إنقاذ التثلث الصبغي (trisomy rescue) في مجموعة فرعية من المستنسخات. لذا، يجب فحص مستنسخات متعددة (5-10 لكل سلالة أبوية) لتحديد المشتقات التي حافظت على اختلال الصيغة الصبغية (aneuploid) وتلك التي تم إنقاذها لتصبح سوية الصيغة الصبغية (euploid).- يُجمع الخلايا الجذعية المستحثة متعددة القدرات (iPSCs) عند الممر 10-15 وبنسبة تلاقي تتراوح بين 70% و80%.
- أضف 0.1 μg/mL كولسيميد (colcemid) إلى وسط المزرعة. تُحضن في 37 °C لمدة تتراوح بين 2 و4 ساعات لإيقاف الخلايا في الطور الاستوائي.
ملاحظة: يُعد الكولسيميد (Colcemid) سماً ميتوزياً (منعشلاً). يجب التعامل معه باستخدام القفازات داخل كابينة السلامة البيولوجية. تخلص من النفايات التي تحتوي على الكولسيميد كمواد خطرة. - قم بفصل الخلايا للحصول على معلق من الخلايا المفردة باستخدام Accutase أو ما يعادله. ثم قم بالطرد المركزي عند 300 × جرام لمدة 5 دقائق.
- أعد تعليق الراسب في 5 مل من محلول منخفض التوتر (0.075 مولار من كلوريد البوتاسيوم) تم تسخينه مسبقاً. قم بالتحضين عند 37 °C لمدة 15-20 دقيقة.
- أضف 1 مل من المثبت المُحضّر حديثاً (ميثانول: حمض الأسيتيك، بنسبة حجمية 3: 1) إلى الأنبوب مع الخلط برفق. ثم قم بالطرد المركزي عند 300 × ج لمدة 10 دقائق.
- قم بشفط السائل الطافي. أضف 5 مل من مادة مثبتة جديدة. اخلط بلطف واحضن لمدة 10 دقائق. قم بالطرد المركزي مرة أخرى.
- كرر خطوة التثبيت (الخطوة 6) مرة أخرى ليصبح إجمالي عدد مرات التثبيت 3 مرات.
- بعد عملية الطرد المركزي النهائية، أعد تعليق الراسب في 0.5-1 مل من مُثبّت حديث لتحقيق كثافة خلوية مناسبة.
- ضع قطرتين إلى ثلاث قطرات من معلق الخلايا على شرائح زجاجية نظيفة ومبللة من ارتفاع 30 سم تقريبًا، ثم اتركها لتجف في الهواء.
- تُخبز الشرائح عند 80 °C لمدة ساعتين أو 65 °C تترك طوال الليل لتعتيق الكروموسومات.
- إجراء التلوين بنطاقات جي (G-banding): تُعالج الشرائح بمحلول تربسين بتركيز 0.025% لمدة تتراوح بين 30 إلى 60 ثانية، ثم تُشطف، وتُصبغ بمحلول جيمزا بتركيز 5% لمدة تتراوح بين دقيقة واحدة إلى 5 دقائق.
- قم بتحليل ما لا يقل عن 20 طوراً استوائياً (metaphases) موزعة جيداً لكل مستنسخ تحت مجهر غمر زيتي بمجال مضيء (عدسة 100× الهدف).
- وثّق النمط النووي باستخدام تسميات ISCN (على سبيل المثال: 47,XX,+21 لمتلازمة تثلث الصبغي 21 لدى الإناث؛ 45,X لمتلازمة تيرنر).
ملاحظة: يكشف التنميط النووي بنطاقات جي (G-banded karyotyping) عن التشوهات الكروموسومية الكبرى، ولكن دقته محدودة. لذا، يُوصى بإجراء فحوصات تكميلية، مثل تحليل تباين عدد النسخ (CNV)، أو تسلسل الإكسوم الكامل (WES)، أو تسلسل الجينوم الكامل (WGS)، لتحديد التغيرات الجينية دون المجهرية وتأكيد السلامة الجينومية للخلايا الجذعية المستحثة متعددة القدرات (iPSC).
- التحقق من خلو العينات من الناقل الإيبيسومي باستخدام تفاعل البوليميراز المتسلسل (PCR).
ملاحظة: تؤكد هذه الخطوة فقدان جميع البلازميدات خارج الصبغية من خط الخلايا الجذعية المحفزة متعددة القدرات (iPSC) عن طريق تضخيم التسلسلات الخاصة بالناقل باستخدام تفاعل البوليميراز المتسلسل (PCR).- استخلاص الحمض النووي الريبوزي منقوص الأكسجين الجينومي (genomic DNA) من الخلايا الجذعية المستحثة متعددة القدرات (iPSCs) (الممر ≥ 10) ومن خلايا AFCs الضابطة غير المنقولة جينياً، باستخدام طقم استخلاص قياسي يعتمد على الأعمدة.
- قم بإعداد 25 μL تفاعل PCR. أجرِ تفاعل PCR باستخدام أزواج البادئات Orip/GAPDH تحت ظروف الدورات (94 °C لمدة دقيقتين؛ تليها 35 دورة من 94 °C لمدة 30 ثانية، 55 °C لمدة 30 ثانية، و 72 °C لمدة 30 ثانية؛ والامتداد النهائي عند 72 °C (لمدة 5 دقائق). يجب تضمين ضابط موجب (قالب بلازميدي) وضابط سالب (حمض نووي جينومي من خلايا غير منقولة جينيًا) في كل عملية تفاعل بوليميراز متسلسل (PCR).
- يتم فصل نواتج تفاعل البوليميراز المتسلسل (PCR) باستخدام هلام أغاروز بتركيز 2% مع استخدام سلم الحمض النووي (DNA ladder) المناسب.
- تفسير النتائج: لا تُظهر خطوط الخلايا الجذعية المستحثة متعددة القدرات (iPSC) التي خلت من الإبيسومات أي حزم تضخيم عند 444 زوجاً قاعدياً (bp). يجب أن يُظهر الضابط الموجب حزماً بالحجم المتوقع، بينما يجب ألا يُظهر الضابط السالب أي حزم.
- الكشف عن الميكوبلازما بواسطة تفاعل البوليميراز المتسلسل (PCR)
- اجمع من 0.5 إلى 1 مل من طافي المزرعة بعد فترة حضانة لا تقل عن 24 ساعة من مزارع الخلايا الجذعية المستحثة متعددة القدرات (iPSC) قبل استبدال الوسط، ثم قم بإجراء الطرد المركزي بسرعة 12,000. × ج لمدة 5 دقائق لإزالة الحطام الخلوي.
- استخدم الرائق المصفى كقالب لتفاعل البوليميراز المتسلسل (PCR) باستخدام طقم الكشف عن الميكوبلازما (PCR Mycoplasma Detection Kit)، وذلك باتباع تعليمات الشركة المصنعة.
- افصل نواتج تفاعل البوليميراز المتسلسل (PCR) باستخدام الرحلان الكهربائي لهلام الأغاروز بتركيز 2%. ولا تنتقل إلى التجارب اللاحقة إلا بعد التأكد من خلو مستنبتات الخلايا الجذعية المستحثة متعددة القدرات (iPSC) من الميكوبلازما.
ملاحظة: إذا لم يتم الحصول على خلايا AFCs الأبوية من بنك حيوي معتمد مع توثيق التعقيم واختبار الميكوبلازما، فإن إجراء فحص روتيني للميكوبلازما قبل إعادة البرمجة يوصى به بشدة كخطوة أولية لضبط الجودة.
- اختبار إمكانية التمايز إلى ثلاثة سلالات (اختياري)
- تأكيد في المختبر قدرة التمايز باستخدام إما التمايز الموجه لثلاث سلالات أو تكوين الأجسام الجنينية (EB)، يليه تحليل للمؤشرات النوعية لطبقات الإنتاش. وبدلاً من ذلك، يتم إجراء في الجسم الحي تكوين الورم المسخي في الفئران ناقصة المناعة للتحقق من تعدد القدرات وفق المعيار الذهبي.
ملاحظة: للاطلاع على بروتوكولات مقايسة الورم المسخي أو التمايز الموجه التفصيلية، يرجى الرجوع إلى إجراءات التشغيل القياسية المنشورة.24يُوصى بإجراء هذه المقاييس، ولكن يمكن الاستغناء عنها إذا كانت... في المختبر يتم توفير بيانات تحليل المؤشرات والتمايز الوظيفي.
- تأكيد في المختبر قدرة التمايز باستخدام إما التمايز الموجه لثلاث سلالات أو تكوين الأجسام الجنينية (EB)، يليه تحليل للمؤشرات النوعية لطبقات الإنتاش. وبدلاً من ذلك، يتم إجراء في الجسم الحي تكوين الورم المسخي في الفئران ناقصة المناعة للتحقق من تعدد القدرات وفق المعيار الذهبي.
6. اشتقاق والتحقق من المستنسخات أحادية الخلية
ملاحظة: لضمان أن كل خط من الخلايا الجذعية المحفزة متعددة القدرات (iPSC) ينشأ من خلية واحدة، يُوصى باتباع عملية تحقق نسيلية مكونة من مرحلتين. فبعد الالتقاط الميكانيكي والتوسيع، يُوصى بإجراء استزراع ثانٍ لنسيلة خلية واحدة بعد تأكيد النمط النووي. ويُعد التحقق من أن كل خط iPSC ينشأ من خلية واحدة متطلباً أساسياً لتوليد خلايا iPSC؛ إذ يضمن ذلك إزالة الفسيفسائية الجسدية الأبوية ويؤكد أن بصمة اختلال الصيغة الصبغية التشخيصية موحدة عبر المجتمع الخلوي بأكمله.
- استزراع الخلايا المفردة
- قم بتفكيك وإعادة تعليق مستعمرات iPSC المؤكدة النمط النووي في معلق من الخلايا المفردة باستخدام Accutase لمدة 2–6 min عند 37 °C.
- استخدم وسط E8 المكمل بـ 10 µM Y-27632 لزيادة فرص بقاء الخلايا المفردة المعزولة. قم بترسيب الخلايا المفردة باستخدام إحدى الطرق التالية:
- التخفيف المحدود: خفف المعلق إلى تركيز يتراوح بين 0.5–1 خلية لكل 100 µL. استزرع 100 µL في كل بئر من طبق 96-well مغطى بـ Matrigel.
- فرز الخلايا المنشط بالفلورة (FACS): قم بفرز الخلايا الحية المفردة مباشرة في آبار طبق 96-well المغطى بـ Matrigel.
- التحقق من أحادية النسيلة والتوسيع
- الفحص الأولي: بعد 24–48 h من الاستزراع، استخدم مجهر تباين الطور عالي الدقة لفحص كل بئر. حدد فقط الآبار التي تحتوي على حدث التصاق واحد ومحدد بوضوح. استبعد الآبار التي تحتوي على تجمعات متعددة أو لا تحتوي على خلايا.
- نمو المستعمرة: حافظ على الخلايا المفردة المحددة في وسط E8 بدون مثبط ROCK بعد أول 24 h.
- التوسيع المتسلسل: بمجرد أن تصل المستعمرة المشتقة من خلية مفردة إلى درجة تلاقي 70%، قم بتوسيع الخلايا بالتتابع من طبق 96-well إلى تنسيقات 24-well، ثم 12-well، وأخيراً 6-well.
ملاحظة: بالنسبة لأبحاث العلاج الخلوي، غالباً ما تكون الأدلة الفوتوغرافية لمرحلة الخلية المفردة (اليوم 0 أو اليوم 1) مطلوبة كجزء من شهادة التحليل لإثبات حالة النقاء السلالي لخطوط iPSC.
تم تلخيص الأسباب المحتملة لفشل إعادة البرمجة، وتكوين المستعمرات دون المستوى الأمثل، والتحديات أثناء إنشاء مستنسخات iPSC مع الحلول العملية في Table 4.
النتائج
التطور المورفولوجي أثناء إعادة البرمجة
أظهرت خلايا السائل السلوي الأولية مورفولوجيات غير متجانسة، شملت خلايا من النوع E وخلايا من النوع F (الشكل 1A). يجب تكثير خلايا النوع F واستخدامها في عملية إعادة البرمجة. عقب عملية التثقيب الكهربائي لخلايا AFCs باستخدام بلازميدات Epi5 الإبيسومية، يُلاحظ تتابع مميز من التغيرات المورفولوجية. في اليوم 0، تظهر خلايا AFCs مورفولوجيا نموذجية مغزلية الشكل تشبه الخلايا الليفية. وبحلول اليوم 3-5، تظهر أولى الأدلة المورفولوجية على إعادة البرمجة: حيث تبرز تجمعات صغيرة من خلايا تشبه الخلايا الظهارية ضمن جمهرة الخلايا الميزنكيمية، مما يشير إلى بدء عملية التحول الظهاري الميزنكيمي (MET). تكون هذه الخلايا الانتقالية أصغر حجماً وأكثر تماسكاً من الخلايا الميزنكيمية المحيطة بها. وبين اليوم 7-10، تظهر التجمعات الخلوية زيادة في التماسك، مما يعكس التحول إلى مورفولوجيا ظهارية مميزة. وتبدأ مستعمرات iPSC المعاد برمجتها بالكامل في الظهور بين اليوم 14-16. وبحلول اليوم 21-25، تكون مستعمرات iPSC الناضجة جاهزة للاختيار (الشكل 1B). تم إجراء التثقيب الكهربائي لبلازميد pCE-GFP بالتوازي مع بلازميدات إعادة البرمجة لتقييم كفاءة إيصال الحمض النووي DNA (الشكل 1C). ويمكن استخدام تعبير GFP كمؤشر بصري لنجاح التثقيب الكهربائي واستمرارية البلازميد خلال مراحل الزرع المبكرة.
التمييز بين مستعمرات الخلايا الجذعية المستحثة متعددة القدرات (iPSC) المعاد برمجةً بالكامل والبرمجة الجزئية
تتمثل المهارة الحاسمة في هذا البروتوكول في القدرة على التمييز بين مستعمرات الخلايا الجذعية المستحثة متعددة القدرات (iPSC) المعاد برممجتها بالكامل والمستعمرات المعاد برمجمتها جزئياً، حيث يؤدي اختيار الأخيرة إلى فشل إنشاء خطوط iPSC مستقرة. يلخص الجدول 5 الفروق المورفولوجية والجزيئية الرئيسية بين هذين النوعين من المستعمرات.
يوضح الشكل 2 مقارنة جنباً إلى جنب. غالباً ما تشكل الخلايا المعاد برمجة جزئياً تجمعات مفككة تفتقر إلى حدود واضحة. قد تظهر هذه التجمعات درجة معينة من الانضغاط، ولكنها عادةً ما تحتفظ بالسمات الميزنشيمية أو تظهر حواف "ضبابية" غير منتظمة، مما يشير إلى إعادة ضبط فوق جينية غير مكتملة (الشكل 2، اليسار). خلال عملية إعادة البرمجة الأولية، قد تحتوي المستعمرات ذات المورفولوجيا النموذجية الشبيهة بالـ iPSC على مناطق من التمايز التلقائي (الشكل 2، الوسط). يمكن اختيار المناطق غير المتمايزة المحددة مورفولوجياً يدوياً ونقلها لمزيد من التوسع. يجب أن تظهر خطوط iPSC التي تم تأسيسها بنجاح المورفولوجيا متعددة القدرات المدمجة الكلاسيكية، والتي تتميز بنسبة عالية من النواة إلى السيتوبلازم، ونويات بارزة، ووصلات خلوية-خلوية محكمة للغاية (الشكل 2، اليمين).
عادةً ما لوحظ ظهور عشرات إلى مئات المستعمرات بعد إعادة البرمجة عن طريق التثقيب الكهربائي باستخدام 1–2 × 10⁶ من خلايا AFCs. ومن كل خط من خلايا AFC، تم التقاط 24 مستعمرة مفردة يدويًا، مما أدى إلى الحصول على 1-9 سلالات iPSC قابلة للتوسع (الجدول 1).
التحقق من صحة مؤشرات تعدد القدرات
يجب أن تعبر خطوط iPSC المستقرة عن المجموعة الكاملة من مؤشرات تعدد القدرات. يوضح الشكل 3 نتائج ممثلة للتألق المناعي وFACS لخط iPSC غير مضاعف الصيغة الصبغية مصاب بمتلازمة كلاينفلتر (47,XXY) عند الممر 15. تُظهر المؤشرات النووية OCT4 وNANOG وSOX2 تعبيراً موحداً عبر المستعمرة، بينما يظهر مؤشر سطح الخلية TRA-1-60 صبغاً غشائياً حلقياً مميزاً (الشكل 3A). وعلاوة على ذلك، قام تحليل FACS بقياس مستويات تعبير عالية لكل من SSEA-4 وTRA-1-81 (الشكل 3B). تتوافق أنماط التعبير هذه مع المعايير المعتمدة للخلايا الجذعية متعددة القدرات الحقيقية، مما يؤكد أن اختلال الصيغة الصبغية لا يعيق اكتساب تعدد القدرات على مستوى المؤشرات.
تأكيد النمط النووي للخلايا الجذعية المستحثة متعددة القدرات (iPSCs) ذات الصيغة الصبغية غير المتساوية (aneuploid)
يُعد تحليل النمط النووي باستخدام التلوين بنطاقات G (G-banding) أمراً ضرورياً لكل مستنسخ من الخلايا الجذعية المستحثة متعددة القدرات (iPSC) المشتقة من خلايا السائل السلوي ذات العدد الكروموسومي غير الطبيعي (aneuploid). يوضح الشكل 4 نتائج نموذجية للنمط النووي.
تعتبر نتيجة النمط النووي إيجابية عند تحديد مستنسخات iPSC ذات النمط النووي اختلال الصيغة الصبغية المتوقع، والمؤكد في 20 انتشاراً طور استوائي على الأقل. أما النتيجة السلبية فهي العثور على مستنسخات سويغة الصيغة الصبغية فقط (46,XX أو 46,XY) من مصدر مختل الصيغة الصبغية، وهو ما يشير إلى إنقاذ ثلاثي الصبغيات الكامل، وبالرغم من أن ذلك يؤكد نجاح البروتوكول في توليد iPSCs، إلا أنه يستلزم تكرار الاشتقاق المستنسخ من خلية واحدة أو إعادة البرمجة للحصول على خطوط تحافظ على اختلال الصيغة الصبغية.
التحقق من خلو الخلايا من الناقل الإبيسومي
تخفف الناقلات الإبيسومية (Episomal vectors) تدريجياً أثناء عملية التمرير وتصبح غير قابلة للكشف بعد الزراعة المطولة في معظم خطوط الخلايا الجذعية المحفزة وافرة القدرة (iPSC) المستقرة8,25,26,27. ويعد التخلص من الناقلات الخارجية سمة مميزة لنهج إعادة البرمجة غير التكاملية. وتتمثل النتيجة الإيجابية (تأكيد التخلص من الناقل الإبيسومي) في غياب حزم تضخيم oriP (544 bp) عند التمرير العاشر أو ما بعده. أما النتيجة السلبية (التخلص غير المكتمل) فتظهر من خلال حزم مستمرة عند التمرير العاشر، والتي عادة ما تزول بحلول التمرير 15–20 مع استمرار عملية التمرير. وقد استُخدم تضخيم GAPDH كضابط داخلي لتأكيد سلامة الحمض النووي الجينومي ونجاح تضخيم PCR (الشكل 5A). وقد تشير الحالات النادرة لبقاء الناقلات الإبيسومية بعد التمرير العشرين إلى حدوث عمليات تكامل جينومي، مما يستوجب استبعاد تلك المستنسخات. ولضمان السلامة البيولوجية والنزاهة التجريبية لخطوط iPSC متباينة الصيغة الصبغية (aneuploid) الناتجة، يوصى بشدة بإجراء فحص قائم على PCR للكشف عن تلوث الميكوبلازما. يجب جمع وتحليل المواد الطافية من المزارع الخلوية لجميع الخطوط أحادية النسيلة المحفوظة عبر PCR باستخدام بادئات خاصة بالميكوبلازما. ويجب استبعاد أي سلالات أحادية النسيلة تظهر نتيجة إيجابية (مثل Clone #7 و #9) على الفور (الشكل 5B).
In vitro إمكانية التمايز ثلاثي السلالات
يعد تأكيد القدرة على التمايز إلى السلالات الثلاث معياراً مطلوباً للمصادقة على خطوط الخلايا الجذعية المستحثة وافرة القدرة (iPSC). الشكل 6 يُظهر نتائج تمثيلية من في المختبر تمايز الأجسام الجنينية لخط من الخلايا الجذعية المستحثة متعددة القدرات (iPSC) ذات تثلث الصبغي 18. يؤكد تعبير PAX6 (الأديم الظاهر)، وT-Brachyury وTBX6 (الأديم المتوسط)، وGATA6 وSOX17 (الأديم الباطن) قدرة الخلايا الجذعية المستحثة متعددة القدرات ذات اختلال الصيغة الصبغية على التمايز إلى طبقات الجنين الثلاث (الشكل 6).
اشتقاق والتحقق من السلالات أحادية الخلية
لإنشاء نماذج خلايا جذعية مستحثة متعددة القدرات (iPSC) ذات اختلال في الصيغة الصبغية (aneuploid) عالية الدقة، تم تنفيذ سير عمل من جولتين من الاشتقاق والتحقق من الخلية الواحدة لتقليل التغاير الخلوي واستبعاد احتمالية وجود خيمرية (chimerism). بعد التوسع الأولي، تم تفكيك المستعمرات ذات النمط النووي الطبيعي وإعادة استزراعها بكثافة الخلية الواحدة. وأكد الفحص المجهري بعد 24–48 h وجود أحداث التصاق مشتقة من خلية واحدة، والتي تم توسيعها لاحقاً لإنشاء خطوط أحادية النسيلة تم التحقق من صحتها (الشكل 7A).
تتمثل النتيجة الإيجابية في التوسع الناجح لمستعمرة واحدة من خلية واحدة في طبق ذو 96 بئراً، ويتم تأكيد ذلك من خلال المراقبة المجهرية اليومية التي تظهر وجود مستعمرة واحدة فقط لكل بئر (الشكل 7B). بعد التوسع، يجب أن يتطابق إعادة تأكيد النمط النووي ومؤشرات تعدد القدرات مع النسيلة الأصلية. أما النتيجة السلبية فهي ملاحظة وجود مستعمرات متعددة في البئر الواحد أو فشل الخلايا المفردة في البقاء على قيد الحياة والتوسع.
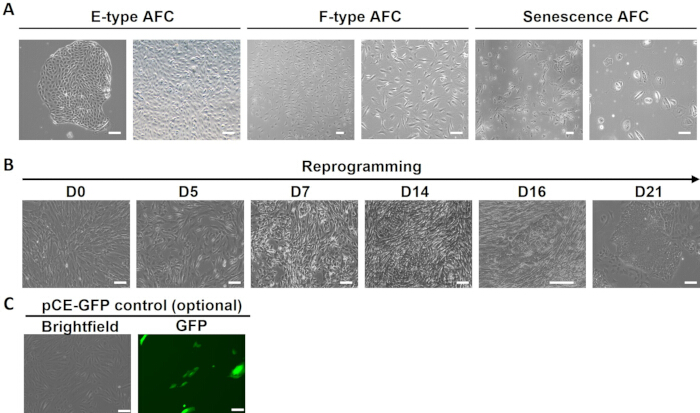
الشكل 1: التطور المورفولوجي لإعادة برمجة خلايا السائل السلوي باستخدام بلازميدات Epi5 episomal. صور تمثيلية توضح مورفولوجيا الأنواع المختلفة من خلايا AFC الأولية وإجراء إعادة البرمجة في نقاط زمنية رئيسية. (A) صور تباين الطور توضح المورفولوجيات الأولية الثلاث للمادة البادئة: الشبيهة بالظهارية (E-type)، والشبيهة بالأرومة الليفية (F-type)، وخلايا AFC الهرمة. (B) صور تمثيلية للمسار الزمني لعملية إعادة البرمجة من اليوم 0 إلى اليوم 21، توضح الانتقال من خلايا AFC الأولية إلى ظهور مستعمرات تشبه الخلايا الجذعية المستحثة متعددة القدرات (iPSC). اليوم 0: الخلايا الجذعية الميزنكيمية المشتقة من السائل السلوي (AF-MSCs) قبل التثقيب الكهربائي، وتظهر مورفولوجيا ميزنكيمية مغزلية نموذجية. اليوم 3–5: مرحلة التحول الظهاري الميزنكيمي (MET) المبكرة؛ تظهر خلايا شبيهة بالظهارية في تجمعات وسط الخلايا الميزنكيمية المتبقية. اليوم 7–10: ظهور خلايا إعادة البرمجة الأولية. اليوم 14–16: مستعمرات إعادة البرمجة الأولية (مستعمرات MET) بمورفولوجيا شبيهة بحجر الرصف ولكن بحدود غير محددة. اليوم 21–25: ظهور مستعمرات iPSC المعاد برمجتها بالكامل، وتتميز بخلايا مسطحة ومكتظة بإحكام، وحدود متميزة، ونسبة عالية من النواة إلى السيتوبلازم، ونويات بارزة. (C) صور فلورية تمثيلية توضح تعبير GFP بعد التثقيب الكهربائي لخلايا AFC باستخدام pCE-GFP. يمثل شريط المقياس 100 µm. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
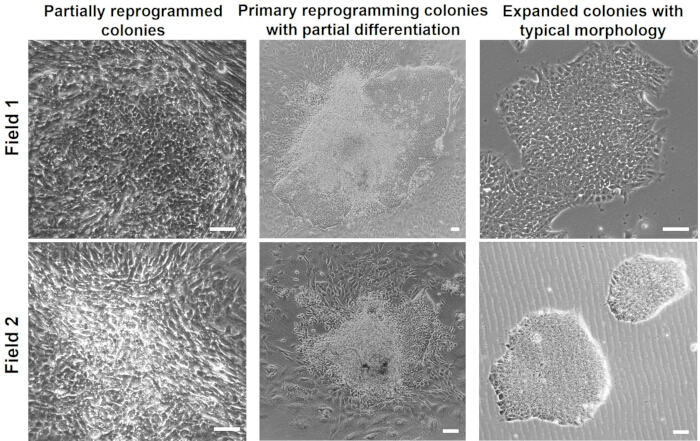
الشكل 2: مقارنة بين المستعمرات المعاد برمجتها كلياً والمستعمرات المعاد برمجتها جزئياً. اليسار: مستعمرات معاد برمجتها جزئياً تظهر تجمعات رخوة وحدوداً غير منتظمة. المنتصف: مستعمرات إعادة البرمجة الأولية مع مناطق نموذجية تشبه iPSC مصحوبة بمناطق من التمايز التلقائي. اليمين: مستعمرات متوسعة بمورفولوجيا نموذجية لـ iPSC. أشرطة المقياس، 100 µm. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
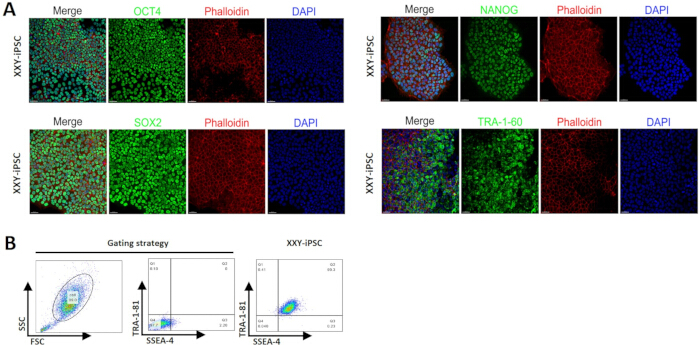
الشكل 3: تحليل الفلورة المناعية لعلامات تعدد القدرات في خلايا iPSCs ذات الصيغة الصبغية غير الطبيعية. (أ) صبغ الفلورة المناعية لخلايا XXY-iPSCs لعلامات تعدد القدرات الأساسية، بما في ذلك OCT4 وSOX2 وNANOG وTRA-1-60 (باللون الأخضر). تم تصور هيكل الخلية باستخدام Phalloidin (باللون الأحمر) والنوى باستخدام DAPI (باللون الأزرق). يمثل شريط المقياس 50 µm. (ب) تحليل قياس التدفق الخلوي (FACS) الذي يوضح استراتيجية تحديد البوابات والتعبير الكمي عن SSEA-4 وTRA-1-81 في خط خلايا XXY-iPSC. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
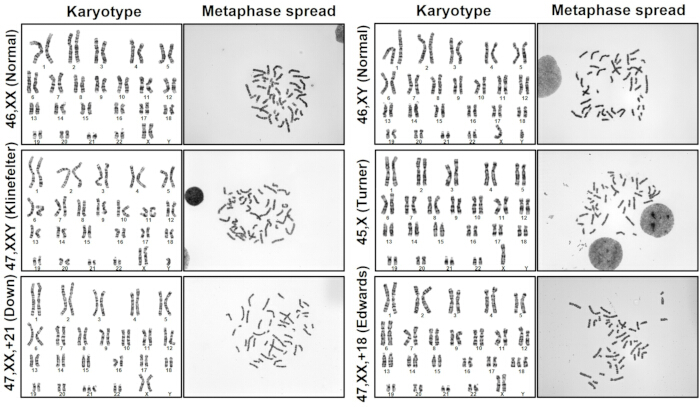
الشكل 4: تحليل النمط النووي بتلوين G لخطوط iPSC ذات عدد صبغيات غير طبيعي. تحليل النمط النووي بتلوين G وانتشارات الطور الاستوائي المقابلة لها، مما يؤكد الحفاظ المستقر على التشوهات الصبغية في الخطوط التي تم إنتاجها، بما في ذلك 46,XX (أنثى طبيعية)، و46,XY (ذكر طبيعي)، و47,XXY (متلازمة كلاينفلتر)، و45,X (متلازمة تيرنر)، و47,XX,+21 (متلازمة داون)، و47,XX,+18 (متلازمة إدواردز). يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
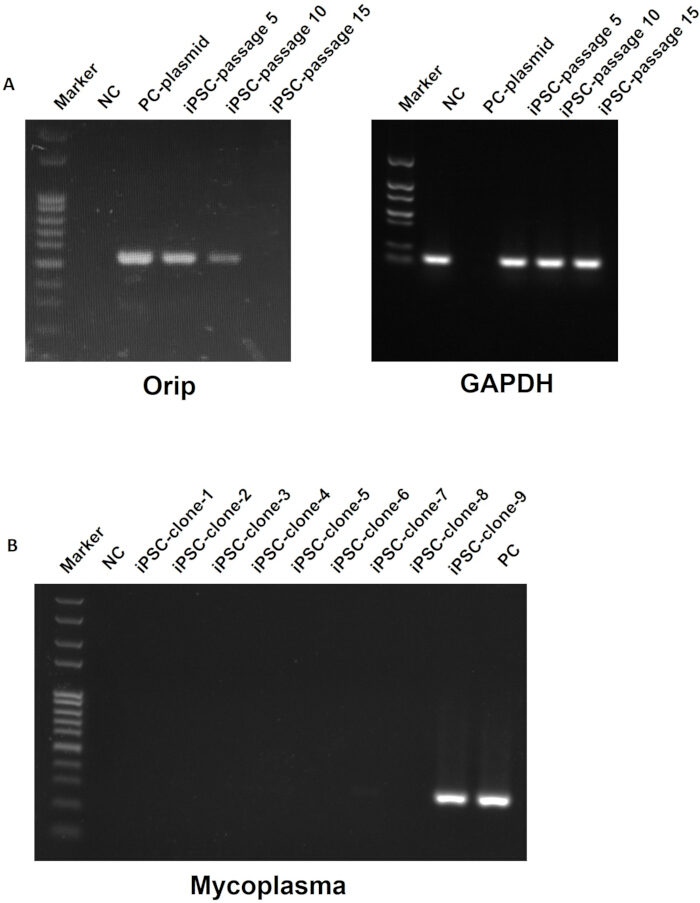
الشكل 5: الكشف القائم على PCR عن التخلص من الناقل الإبيسومي واختبار الميكوبلازما في خطوط iPSC ذات الصيغة الصبغية غير الطبيعية. الرحلان الكهربائي لهلام الأجاروز (2%) لنواتج PCR التي تم تضخيمها باستخدام مجموعة بادئات oriP/GAPDH أو الميكوبلازما. (A) التخلص الكامل من الناقل في مستنسخ iPSC عند ممرات مختلفة. (B) الكشف القائم على PCR عن تلوث الميكوبلازما في 9 مستنسخات مستقلة. يظهر المستنسخ رقم 7 (باهت) ورقم 9 (قوي) تلوثاً بالميكوبلازما ويجب التخلص منهما. PC، ضابط موجب؛ NC، ضابط سالب. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
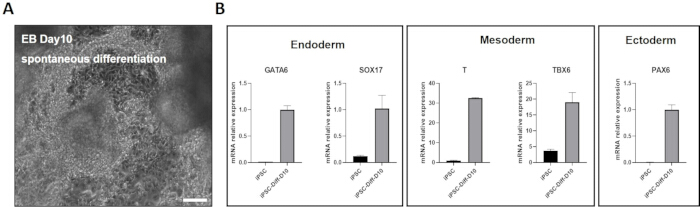
الشكل 6: تمايز الخلايا الجذعية المحفزة متعددة القدرات (iPSCs) غير متساوية الصيغة الصبغية إلى ثلاثة سلالات In vitro. (A) صورة مجهرية مباينة الطور توضح مورفولوجيا الأجسام المضغية (EB) في اليوم 10 أثناء عملية التمايز التلقائي بعد الالتصاق بسطح مطلي بالجيلاتين. يمثل شريط القياس 100 µm. (B) تحليل RT-qPCR لتقدير كمية الخروج من حالة تعدد القدرات والالتزام اللاحق بالسلالة. تظهر النتائج زيادة ملحوظة في التعبير النسبي لـ mRNA للمؤشرات المميزة لطبقات الجنين الثلاث في اليوم 10 مقارنة بخلايا iPSCs غير المتمايزة: الأديم الباطن (GATA6, SOX17)، والأديم المتوسط (T, TBX6)، والأديم الظاهر (PAX6). البيانات معروضة كمتوسط ± SD. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
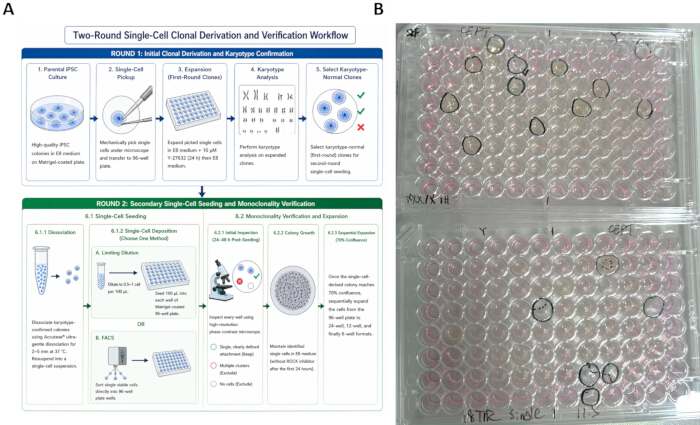
الشكل 7: سير عمل اشتقاق النسائل أحادية الخلية لخطوط iPSC غير المتساوية الصيغة الصبغية. (A) مخطط لسير العمل يوضح عملية التحقق من النسائل في الجولة 1 (الاشتقاق الأولي وتأكيد النمط النووي) والجولة 2 (زراعة ثانوية للخلايا المفردة عبر التخفيف المحدود أو تقنية FACS لضمان أحادية النسيلة). المرحلة 1: الالتقاط الميكانيكي لمستعمرات iPSC الفردية، وتكثيرها في أطباق ذات 6 آبار، والتحقق من النمط النووي. المرحلة 2: بالنسبة للنسائل غير المتساوية الصيغة الصبغية التي تم تأكيد نمطها النووي، يتم إجراء زراعة للخلايا المفردة عن طريق التخفيف المحدود أو تقنية FACS في أطباق ذات 96 بئراً لضمان الأصل النسيلي من خلية واحدة. يتم تكثير الآبار التي شهدت نمواً لمستعمرة واحدة فقط. (B) صورة نموذجية لأطباق ذات 96 بئراً خلال مرحلة التكثير النسيلي، حيث تم تحديد المستعمرات المشتقة من خلية واحدة بنجاح ووضع دوائر حولها للتكثير المتسلسل. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
| الخلفية الجينية | النمط النووي | عدد خطوط الخلايا المكونة للمستعمرات (AFC) التي تم اختبارها | عدد المستعمرات المنفردة التي تم التقاطها بعد إعادة البرمجة | عدد مستعمرات الخلايا الجذعية المستحثة متعددة القدرات (iPSC) التي تم إنشاؤها بنجاح |
| تثلث الصبغي 21 | 47,XX,+21 | 2 | 48 | 9 |
| تثلث الصبغي 18 | 47,XX,+18 | 1 | 24 | 8 |
| متلازمة كلاينفلتر | 47,XXY | 2 | 48 | 6 |
| أحادية الصبغية X | 45,X | 1 | 24 | 1 |
| أنثى سليمة | 46,XX | 1 | 24 | 2 |
| ذكر سليم | 46,XY | 2 | 48 | 6 |
| تم اختيار مستعمرات مفردة يدويًا بناءً على مورفولوجيا المستعمرة بعد عملية إعادة البرمجة، ثم جرى تكثيرها لإجراء المزيد من التوصيف. ويشير عدد مستنسخات الخلايا الجذعية المستحثة متعددة القدرات (iPSC) التي تم تأسيسها بنجاح إلى المستعمرات التي أمكن تكثيرها والحفاظ عليها بعد عملية الاختيار. | ||||
الجدول 1: تفاصيل خطوط خلايا AFC المستخدمة في إعادة برمجة الخلايا الجسدية.
| يوم | تكوين الوسط | الملاحظة الرئيسية |
| 0 | وسط FC بدون مضاد حيوي + Y27632 | التثقيب الكهربائي |
| 1 | وسط FC | تبدأ الخلايا الناجية في التعافي |
| 2 – 6 | تغيير جزئي من وسط FC إلى وسط E8 (نصف تغيير) | تبدأ عملية الانتقال الظهاري المتوسط (MET)؛ تصبح الخلايا متراصة؛ وتظهر خلايا أصغر وأكثر استدارة في تجمعات |
| 7 – 8 | E8 (تغيير كامل كل يومين) | تكوّن المستعمرات المبكر |
| ٩ - ١٤ (اختياري) | E8 (+ 25 μM NaB) | تجمعات تشبه رصيف الحجارة ذات حدود غير واضحة؛ بأحجام متفاوتة |
| 15-18 | E8 (يومياً) | تظهر مستعمرات الخلايا الجذعية المستحثة متعددة القدرات (iPSC) الحقيقية (اليوم 18-25): مستعمرات مسطحة متراصة بإحكام ذات حدود حادة، ونسبة عالية من النواة إلى السيتوبلازم |
| 19 – 25 | E8 (يومياً) | تتجاوز المستعمرات 400 μm في القطر؛ مورفولوجيا مسطحة وموحدة؛ جاهزة للاختيار |
الجدول 2: ملخص للجدول الزمني الكامل لإعادة البرمجة من اليوم 0 إلى مرحلة التقاط المستعمرات.
| المؤشر | التوضع الخلوي | طريقة الكشف |
| OCT4 | نووي | التألق المناعي / قياس التدفق الخلوي |
| NANOG | نووي | التألق المناعي / قياس التدفق الخلوي |
| SOX2 | نووي | التألق المناعي / قياس التدفق الخلوي |
| SSEA-4 | سطح الخلية | التألق المناعي / قياس التدفق الخلوي |
| TRA-1-60 | سطح الخلية | قياس التدفق الخلوي / الصبغ الحي |
| TRA-1-81 | سطح الخلية | قياس التدفق الخلوي / الصبغ الحي |
الجدول 3: ملفات تعبير علامات تعدد القدرات المتوقعة لمستنسخات الخلايا الجذعية المستحثة وافرة القدرة (iPSC) المستقرة.
| المشكلة | السبب المحتمل | المحلول |
| انخفاض حيوية الخلايا (< ٤٠٪) بعد التثقيب الكهربائي | ١. معلمات النبضة قاسية للغاية بالنسبة لهذا الخط الخلوي | 1. اختبار معاملات أكثر رفقاً |
| 2. كانت الخلايا في حالة تلاقي مفرط (> 90%) | ٢. التأكد من وصول درجة التلاقي (confluence) إلى ٧٥-٩٠٪ في اليوم ٠ | |
| 3. أدت الفقاعات الهوائية إلى حدوث قوس كهربائي | ٣. اسحب السائل ببطء؛ وافحص طرف الماصة للتأكد من عدم وجود فقاعات قبل البدء بالنبض. | |
| ٤. محلول إعادة التعليق متحلل أو غير صحيح | ٤. استخدم محلول Buffer R طازجاً من الطقم. | |
| 5. رداءة جودة الخلايا قبل التثقيب الكهربائي | 5. استخدم فقط الخلايا من الممرات P3–P5 ذات المورفولوجيا السليمة. | |
| لم تُلاحظ أي مستعمرات من الخلايا الجذعية المحفزة وافرة القدرة (iPSC) بحلول اليوم 25 | 1. كان الوسط غير نشط | 1. استخدم وسط E8 مُحضراً حديثاً؛ وأضف NaB بتركيز 25-100 μM من اليوم التاسع إلى اليوم الرابع عشر |
| ٢. تحلل الحمض النووي البلازميدي (Plasmid DNA) أو إذابته بطريقة غير صحيحة | ٢. التحقق من سلامة البلازميد باستخدام هلام الأجاروز | |
| 3. فرط نمو الخلايا المتمايزة الملوثة | 3. قم بإزالة المناطق المتمايزة يدويًا قبل انتشارها؛ ثم قم بتمرير الخلايا لتقليل كثافتها. | |
| ٤. فشل طلاء المصفوفة أو تدهوره | ٤. تحضير طلاء طازج؛ ويُحفظ في الثلج | |
| تتمايز مستعمرات الخلايا الجذعية المستحثة متعددة القدرات (iPSC) تلقائياً بعد عملية الالتقاط | 1. تم اختيار المستعمرات في وقت مبكر جداً (قبل اليوم 18) | 1. الانتظار حتى ظهور المستعمرات > 400 μm بمورفولوجيا مسطحة ناضجة |
| 2. طلاء المصفوفة غير كافٍ أو متحلل | ٢. تأكد من أن الطلاء حديث؛ ولا تتركه ليجف قبل الاستخدام. | |
| 3. ممررة كخلايا مفردة بدون مثبط ROCK | 3. استخدم دائماً Y-27632 خلال أول 24 ساعة بعد عملية النقل (passaging) | |
| يُظهر النمط النووي فقدان تعدد الصيغ الصبغية المتوقع (إنقاذ التثليث الصبغي) | 1. الحذف التلقائي للكروموسومات المتأصل في عملية إعادة البرمجة | 1. فحص عدة مستعمرات (≥ 5-10) لكل خط؛ وتعمل المستعمرات التي تم إنقاذها كضوابط متماثلة جينياً ذات عدد كروموسومات طبيعي. |
| 2. الخلايا المبتدئة في الممرات المتأخرة تكون أكثر عرضة للإنقاذ | ٢. استخدم الخلايا من الممرات P3–P5 ذات المورفولوجيا السليمة فقط. | |
| يكشف تفاعل البوليميراز المتسلسل (PCR) عن التسلسلات خارج الصبغية في الممرات المتأخرة (+P10) | 1. عدم كفاية عدد مرات التمرير (Passaging) منذ عملية إعادة البرمجة | 1. الاستمرار في عملية التمرير حتى الوصول إلى الأجيال P15-P20؛ ثم إعادة الاختبار باستخدام تفاعل البوليميراز المتسلسل (PCR) |
| 2. بلازميدات الحفاظ المستمر على تعبير EBNA-1 | ٢. عادةً ما يتم حل المشكلة عن طريق تمديد فترة الزرع؛ مع المراقبة كل ٥ ممرات خلوية. | |
| 3. إيجابية كاذبة ناتجة عن التلوث المتبقي بالبلازميد في التحضير | 3. تضمين ضوابط سلبية مناسبة؛ واستخدام طريقة تنقية الحمض النووي القائمة على الأعمدة | |
| حدوث قوس كهربائي/شرارة أثناء نبضة التثقيب الكهربائي | 1. فقاعات هواء محتبسة في الطرف | 1. اسحب الخليط ببطء؛ وانقر على الأنبوب لتحرير الفقاعات قبل التحميل. |
| ٢. تركيز ملحي مرتفع في عينة الحمض النووي (DNA) | 2. استخدم تحضير بلازميد خالٍ من السموم الداخلية | |
| 3. انسداد فتحة الطرف ببقايا خلوية | 3. ترشيح معلق الخلايا عبر 40 μm مصفاة الخلايا | |
| ٤. تلف طرف الماصة أو إعادة استخدامه بما يتجاوز الحد المسموح به | ٤. استخدم كل طرف ماصة مرتين كحد أقصى؛ وافحصه للتأكد من عدم وجود تلف |
الجدول 4: دليل استكشاف الأخطاء وإصلاحها للمشكلات الشائعة أثناء إعادة برمجة AFC وتأسيس مستعمرات iPSC.
| ميزة | مستعمرات مُعاد برمجة جزئياً | مستعمرات الخلايا الجذعية المستحثة متعددة القدرات المعاد برمجةً بالكامل |
| وقت الظهور | يظهر مبكراً (اليوم 7-10) | متغير، يظهر عادةً في وقت لاحق (اليوم 14-18) |
| حدود المستعمرة | حواف غير منتظمة | حواف حادة ومحددة بدقة |
| مورفولوجيا الخلية | خلايا أكبر حجماً، غير متجانسة | صغيرة، ومنتظمة، وذات نسبة عالية من النواة إلى السيتوبلازم |
| تعبئة الخلايا | تعبئة مفككة | متراصة بإحكام، تشبه رصيف الحصى |
| النوويات | غير ملحوظ | نويات بارزة |
| مؤشرات تعدد القدرات | سلبية أو ضعيفة/بؤرية | قوي، متجانس |
| استقرار المستعمرة | تتنكس أو تتمايز عند التمرير | مستقر، قابل للتوسع |
الجدول 5: السمات المميزة للخلايا المعاد برمجتها بالكامل مقابلمستعمرات مبرمجة جزئياً.
المناقشة
يصف هذا البروتوكول طريقة غير اندماجية وخالية من الخلايا المغذية لتوليد خلايا جذعية مستحثة متعددة القدرات (iPSCs) بشرية ذات عدد كروموسومات غير طبيعي (aneuploid) من خلايا السائل السلوي باستخدام بلازميدات فوق كروموسومية يتم إيصالها عبر التثقيب الكهربائي. تحدد عدة خطوات حاسمة نجاح عملية إعادة البرمجة؛ أولاً، تعد جودة مجموعة خلايا السائل السلوي (AFC) الأولية أمراً بالغ الأهمية. ففي مختبرات الوراثيات الخلوية السريرية، يتم عادةً تكثير خلايا السائل السلوي في أوساط تهدف إلى تسريع تكاثر الخلايا لتحليل النمط النووي قبل الولادة بدلاً من الزراعة طويلة الأمد، ولا يزال تأثير ذلك على كفاءة توليد الخلايا الجذعية المستحثة متعددة القدرات اللاحقة غير مفهوم بشكل كامل. لذا، يجب مراعاة تكوين وسط الزراعة أثناء تحضير العينة، وينبغي إثراء مجموعات خلايا السائل السلوي ذات الممرات المنخفضة والقدرة العالية على التكاثر بعد الإذابة لضمان الجودة المثلى للخلايا قبل التثقيب الكهربائي. ثانياً، يجب تحسين ظروف التثقيب الكهربائي لزيادة إيصال الحمض النووي (DNA) إلى أقصى حد مع الحفاظ على حيوية الخلايا. في هذا البروتوكول، أدى التثقيب الكهربائي عند 1200 V و 20 ms ونبضتين إلى إنتاج كفاءة ترانسفكشن مرضية وتكوين مستعمرات قابل للتكرار بشكل مستمر. قد يتطلب الأمر أحياناً تحسيناً طفيفاً لعينات متبرعين محددين. وغالباً ما يرتبط موت الخلايا المفرط خلال أول 24–48 h بعد التثقيب الكهربائي برداءة جودة الخلايا الأولية، أو عدم الإزالة الكاملة لبقايا وسط الزراعة قبل إعادة التعليق في محلول التثقيب الكهربائي، أو طول فترة المناولة أثناء التثقيب الكهربائي. ثالثاً، يعد توقيت التقاط المستعمرات أمراً حاسماً: فالمستعمرات التي تظهر قبل اليوم 14 تكون عادةً معاد برمجتها جزئياً، بينما تظهر مستعمرات iPSC الحقيقية بين اليومين 15 و 25 وتظهر المورفولوجيا المسطحة والمدمجة المميزة ذات الحواف المحددة بوضوح. وعادة ما يكون التمايز التلقائي الذي يلي ظهور المستعمرات ناتجاً عن التقاط المستعمرات المبكر، أو التأخر في استبدال الوسط، أو كثافة المستعمرات المفرطة، ويساعد التقاط المستعمرات في الوقت المناسب على الحفاظ على جودتها. بالإضافة إلى ذلك، يمكن إدراج بوتيرات الصوديوم كتحسين اختياري بين اليومين 9 و 15 لسلالات خلايا السائل السلوي التي تظهر أداءً ضعيفاً نسبياً في إعادة البرمجة23. وأخيراً، يعد الاستنساخ أحادي الخلية عبر التخفيف المحدود أو فرز الخلايا المنشط فلورياً (FACS) في أطباق ذات 96 بئراً ضرورياً بعد التحقق الأولي من النمط النووي لضمان الأصل النسيلي.
يعتمد دور p53 في إعادة البرمجة على المنهجية المتبعة. ففي إعادة البرمجة الإبيسومية القائمة على OSKM، يؤدي التثبيط المؤقت لـ p53 إلى تعزيز بقاء الخلايا خلال استجابة الإجهاد الأولية وتسهيل عملية MET27، بينما يعمل p53 كصمام أمان جينومي في إعادة البرمجة الكيميائية28. ونظراً لكفاءة إعادة البرمجة بواسطة OSKM القائمة على التثقيب الكهربائي في التعامل مع العينات السريرية النادرة، فإن هذا النهج يظل ذا قيمة. ولتقليل المخاطر الجينومية المحتملة، يجب أن تخضع خطوط iPSC المستقرة لعملية تحليل نمط نووي روتينية، وعند الاقتضاء، تحليل CNV و WES/WGS قبل التطبيقات اللاحقة.
يتمثل أحد القيود الهامة بشكل خاص في توليد الخلايا الجذعية المحفزة وافرة الصيغة الصبغية (aneuploid iPSC) في ظاهرة إنقاذ التثليث الصبغي (trisomy rescue) أثناء عملية إعادة البرمجة. وقد أثبت أكوتسو وآخرون 29 أن تردد الإنقاذ يختلف بشكل كبير باختلاف نوع الكروموسوم. ويعني هذا التباين أنه بالنسبة لبعض حالات اختلال الصيغة الصبغية، يجب فحص عدد كبير من المستنسخات عن طريق النمط النووي (karyotyping) لتحديد تلك التي حافظت على الشذوذ الصبغي الأصلي. وعلى العكس من ذلك، يمكن استغلال هذه الظاهرة نفسها لتوليد خطوط تحكم متماثلة جينياً وسوية الصيغة الصبغية (isogenic euploid) من تجربة إعادة البرمجة ذاتها، مما يوفر تحكماً داخلياً قوياً لدراسة الأنماط الظاهرية الخاصة باختلال الصيغة الصبغية.
يوفر البروتوكول الموضح هنا منصة قوية وقابلة للتكرار لإنشاء خطوط خلايا جذعية مستحثة متعددة القدرات (iPSC) غير صيغية صبغية خاصة بالمريض من عينات تشخيصية ما قبل الولادة المتبقية. ويمكن تطبيق هذه الخطوط الخلوية في دراسات بيولوجيا الكروموسومات، وآليات النمو، ونمذجة الأمراض، وعلم الجينوم الوظيفي، وتحرير الجينوم، وفحص الأدوية عالي الإنتاجية بعد التمايز الموجه إلى أنواع خلايا ذات صلة بالمرض. وفي مجال الطب التجديدي، تلبي الخلايا الجذعية المستحثة متعددة القدرات الخالية من الجينات المنقولة متطلبات السلامة للترجمة السريرية المستقبلية المحتملة. ويسهل هذا البروتوكول، من خلال توفير سير عمل معياري وقابل للتكرار، اعتماد تقنية iPSC غير صيغية الصبغيات على نطاق أوسع عبر هذه التطبيقات المتنوعة.
الإفصاحات
يصرح المؤلفون بعدم وجود أي تضارب في المصالح المالية. تم إنشاء الرسم التوضيحي التخطيطي في الشكل 7A باستخدام أدوات مدعومة بالذكاء الاصطناعي، ثم تمت مراجعته وتعديله من قبل المؤلفين.
شكر وتقدير
تم دعم هذا العمل من خلال البرنامج الوطني الرئيسي للبحث والتطوير في الصين (منحة رقم 2022YFA0913300) والمشروع السريري الرئيسي لمستشفى جامعة بكين الثالث (منحة رقم BYSY2022054) الممنوحة لـ Jianying Guo.
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| 0.25% Trypsin-EDTA | Thermo Fisher (Gibco) | 25200056 | تفكيك الخلايا من أجل تمرير AFC |
| 100bp Plus II DNA Ladder | TransGen Biotech | BM321-01 | سلم DNA |
| مجمّد -80 C | Thermo Fisher | FDE60086fv | تخزين عينات وDNA البلازميد لفترات طويلة |
| محلول Accutase لفصل الخلايا | StemCell Technologies | 07920 | تفكيك لطيف لـ iPSC إلى تكتلات صغيرة |
| حمض الأسيتيك (جليدي) | Sigma-Aldrich | 338826 | مكون مثبت للتنميط النووي (MeOH:AcOH 3:1) |
| أجاروز | Sigma-Aldrich | A9539 | الرحلان الكهربائي للهلام لنواتج PCR (2%) |
| وسط AmnioType-1 | VivaCell BIOSCIENCES | C3620-0100 | وسط زراعة AFC أولي |
| عداد خلايا آلي / مقياس دم | Countstar | TC20 | عد الخلايا الحية باستبعاد صبغة التريبان الزرقاء |
| مجهر المجال المضيء (100x oil) | Zeiss | Axiovert5 | تحليل انتشار الطور الاستوائي للتنميط النووي |
| جهاز طرد مركزي (دوار ذو سلال متأرجحة) | Eppendorf | 5810R | ترسيب الخلايا عند 300 x g |
| كابينة سلامة بيولوجية من الفئة الثانية | ESCO | AC2-4S8-CN | مساحة عمل معقمة لجميع عمليات زراعة الخلايا |
| حضانة CO2 (مرطبة) | There scientific | 3131 | الحفاظ على بيئة 37 C و5% CO2 |
| كولسيميد (10 ug/mL) | Capricorn scientific | COL-H | إيقاف الطور الاستوائي للتنميط النووي (0.1 ug/mL، لمدة 2-4 h) |
| وسط CryoStor CS10 لتجميد الخلايا | STEMCELL Technologies | 07959 | وسط تجميد الخلايا |
| DAPI | Merck Millipor | 10236276001 | صبغ النواة |
| DMEM (جلوكوز مرتفع) | Thermo Fisher (Gibco) | 11965092 | قاعدة لوسط زراعة الأرومات الليفية (FC) |
| DMEM/F-12 | Thermo Fisher (Gibco) | 11330032 | محلول تخفيف Matrigel (1:200) |
| DPBS بدون Ca2+/Mg2+ | Thermo Fisher (Gibco) | 14190250 | محلول غسيل |
| بلازميد إبيسومي (pCE-GFP) | Addgene | #41858 | ناقل إعادة برمجة غير متكامل (تحكم GFP) |
| بلازميد إبيسومي (pCXLE-hOCT3/4-shp53-F) | Addgene | #27077 | ناقل إعادة برمجة غير متكامل (OCT4 + shp53) |
| بلازميد إبيسومي (pCXLE-hSK) | Addgene | #27078 | ناقل إعادة برمجة غير متكامل (SOX2 + KLF4) |
| بلازميد إبيسومي (pCXLE-hUL) | Addgene | #27080 | ناقل إعادة برمجة غير متكامل (L-MYC + LIN28) |
| مصل جنين البقر | HyClone | SH30071.03 | مكمل مصل لتوسيع AFC (وسط FC، بنسبة 15%) |
| مجهر فلوري | Leica | Sp8 | صبغ حي لـ TRA-1-60/81 وتصوير بالفلورة المناعية |
| نظام الرحلان الكهربائي للهلام | Bio-Rad | 164-5056 | تحليل هلام الأجاروز لنواتج PCR |
| جيلاتين (0.1%) | Sigma-Aldrich | G1393 | طلاء وعاء الزراعة لالتصاق AFC |
| طقم استخراج DNA الجينومي | TIANGEN | 4992199 | عزل DNA بجودة PCR من iPSCs |
| محلول صبغة جيمزا | Sigma-Aldrich | GS500 | صبغ G-banding للكروموسومات (5%) |
| GlutaMAX (100x) | Thermo Fisher (Gibco) | 35050061 | مكمل لوسط FC |
| مجهر تباين طور مقلوب | Zeiss | Axiovert5 | المراقبة اليومية للمزرعة ومورفولوجيا المستعمرات |
| خزان تخزين النيتروجين السائل | Thermo Scientific | CY50985 | الحفظ بالتبريد للخلايا |
| مصفوفة الغشاء القاعدي Matrigel | Corning | 354230 | طلاء وعاء الزراعة لالتصاق iPSC |
| ميثانول (لامائي) | Sigma-Aldrich | 34860 | مكون مثبت للتنميط النووي (MeOH:AcOH 3:1) |
| جسم مضاد NANOG (أرنب) | Abcam | ab109250 | الفلورة المناعية؛ علامة تعدد القدرات النووية |
| طقم Neon NxT للتثقيب الكهربائي (100 uL) | Thermo Fisher (Invitrogen) | N10025 | التثقيب الكهربائي؛ يحتوي على المحاليل المنظمة R وT وE ورؤوس 100 uL |
| نظام Neon NxT للتثقيب الكهربائي | Thermo Fisher (Invitrogen) | NEON18S | إيصال البلازميدات الإبيسومية عبر التثقيب الكهربائي |
| أحماض أمينية غير أساسية (NEAA, 100x) | Thermo Fisher (Gibco) | 11140050 | مكمل لوسط FC |
| جسم مضاد OCT4 (أرنب) | Abclonal | A7920 | الفلورة المناعية؛ علامة تعدد القدرات النووية |
| مزيج PCR رئيسي (عالي الدقة) | TIANGEN | 4992920 | التحقق من التخلص من الإبيسوم عبر PCR |
| pCXWB-EBNA1 | Addgene | #37624 | تعبير إبيسومي غير متكاثر لـ EBNA1 |
| جسم مضاد PE anti-human TRA-1-81 | BioLegend | 330708 | صبغ تعدد القدرات |
| بنسلين-ستربتومايسين (100x) | Thermo Fisher (Gibco) | 15140122 | مكمل مضاد حيوي (لا يُستخدم بعد التثقيب الكهربائي) |
| كاشف Phalloidin-iFluor 647 | Abcam | ab176759 | توسيم F-actin (خيوط الأكتين) |
| كلوريد البوتاسيوم (KCl) | Sigma-Aldrich | P5405 | محلول منخفض التوتر للتنميط النووي (0.075 M) |
| نظام PCR في الوقت الحقيقي | Thermo Fisher Scientific | QuantStudio3 | qPCR للتحقق من الجينات العلامة |
| بوتيرات الصوديوم (NaB) | Sigma-Aldrich | B5887 | مثبط HDAC؛ 25-100 uM لتعزيز إعادة البرمجة |
| جسم مضاد SOX2 (فأر) | R&D Systems | MAB2018 | الفلورة المناعية؛ علامة تعدد القدرات النووية |
| جسم مضاد SSEA-4 | BioLegend | 330408 | الفلورة المناعية؛ علامة تعدد القدرات على سطح الخلية |
| مجهر ستيريو | Nikon | SMZ745 | التقاط المستعمرات ميكانيكياً تحت التكبير |
| TeSR-E8 | STEMCELL Technologies | 05990 | وسط صيانة iPSC خالي من الخلايا المغذية |
| جسم مضاد TRA-1-60 | Merck Millipor | MAB4360 | صبغ تعدد القدرات |
| Trans DNA Marker II | TransGen Biotech | BM411-01 | سلم DNA |
| طقم TransDetect PCR للكشف عن المايكوبلازما | TransGen Biotech | FM311-01 | اختبار المايكوبلازما |
| إنزيم TrypLE Select (1x) | Thermo Fisher (Gibco) | 12563011 | تفكيك لطيف للخلايا لـ AFCs الملتصقة |
| تريبسين (0.025%) | Sigma-Aldrich | T4799 | المعالجة المسبقة لـ G-banding للشرائح (30-60 s) |
| دورة حرارية VeritiPro ذات 96 بئراً | Thermo Fisher Scientific | A48141 | PCR للتحقق من التخلص من الإبيسوم |
| حمام مائي (37 °C) | Shanghai Zhixin Experimental Instrument Technology Co., Ltd. | ZX-S22 | إذابة الأوساط والكواشف |
| Y-27632 Dihydrochloride (مثبط ROCK) | Tocris | 1254 | يعزز بقاء iPSC بعد التفكيك (10 uM) |
المراجع
- Gurdon JB. The developmental capacity of nuclei taken from intestinal epithelium cells of feeding tadpoles. Development. 1962;10(4):622-640.
- Evans MJ, Kaufman MH. Establishment in culture of pluripotential cells from mouse embryos. Nature. 1981;292(5819):154-156.
- Martin GR. Isolation of a pluripotent cell line from early mouse embryos cultured in medium conditioned by teratocarcinoma stem cells. Proc Natl Acad Sci U S A. 1981;78(12):7634-7638.
- Thomson JA, Itskovitz-Eldor J, Shapiro SS, Waknitz MA, Swiergiel J, et al. Embryonic stem cell lines derived from human blastocysts. Science. 1998;282(5391):1145-1147.
- Takahashi K, Tanabe K, Ohnuki M, Narita M, Ichisaka T, et al. Induction of pluripotent stem cells from adult human fibroblasts by defined factors. Cell. 2007;131(5):861-872.
- Fusaki N, Ban H, Nishiyama A, Saeki K, Hasegawa M. Efficient induction of transgene-free human pluripotent stem cells using a vector based on Sendai virus, an RNA virus that does not integrate into the host genome. Proc Jpn Acad Ser B Phys Biol Sci. 2009;85(8):348-362.
- Warren L, Manos PD, Ahfeldt T, Loh YH, Li H, et al. Highly efficient reprogramming to pluripotency and directed differentiation of human cells with synthetic modified mRNA. Cell Stem Cell. 2010;7(5):618-630.
- Yu J, Hu K, Smuga-Otto K, Tian S, Stewart R, et al. Human induced pluripotent stem cells free of vector and transgene sequences. Science. 2009;324(5928):797-801.
- Hou P, Li Y, Zhang X, Liu C, Guan J, et al. Pluripotent stem cells induced from mouse somatic cells by small-molecule compounds. Science. 2013;341(6146):651-654.
- Guan J, Wang G, Wang J, Zhang Z, Fu Y, et al. Chemical reprogramming of human somatic cells to pluripotent stem cells. Nature. 2022;605(7909):325-331.
- Liuyang S, Wang G, Wang Y, He H, Lyu Y, et al. Highly efficient and rapid generation of human pluripotent stem cells by chemical reprogramming. Cell Stem Cell. 2023;30(4):450-459.e9.
- Wang Y, Peng F, Yang Z, Cheng L, Cao J, et al. A rapid chemical reprogramming system to generate human pluripotent stem cells. Nat Chem Biol. 2025;21(7):1030-1038.
- Li C, Zhou J, Shi G, Ma Y, Yang Y, et al. Pluripotency can be rapidly and efficiently induced in human amniotic fluid-derived cells. Hum Mol Genet. 2009;18(22):4340-4349.
- Slamecka J, Salimova L, McClellan S, van Kelle M, Kehl D, et al. Non-integrating episomal plasmid-based reprogramming of human amniotic fluid stem cells into induced pluripotent stem cells in chemically defined conditions. Cell Cycle. 2016;15(2):234-249.
- Li Q, Fan Y, Sun X, Yu Y. Generation of induced pluripotent stem cells from human amniotic fluid cells by reprogramming with two factors in feeder-free conditions. J Reprod Dev. 2013;59(1):72-77.
- Crosland BA, Hedges MA, Ryan KS, D'mello RJ, Mccarty OJT, Amniotic fluid: its role in fetal development and beyond. J Perinatol. 2025 Aug;45(8):1163-1170. doi: 10.1038/s41372-025-02313-1. Epub 2025 May 8. PMID: 40341778; PMCID: PMC12354197.
- Liu L, et al. Amniotic fluid stem cells in birth defects: integrated roles in disease modeling, prenatal diagnosis, and therapy. Stem Cell Rev Rep. 2026. doi:10.1007/s12015-026-11161-1.
- Antonucci I, Provenzano M, Rodrigues M, Pantalone A, Salini V, et al. Amniotic fluid stem cells: a novel source for modeling of human genetic diseases. Int J Mol Sci. 2016;17(4):607.
- Guillot PV. Induced pluripotent stem (iPS) cells from human fetal stem cells. Best Pract Res Clin Obstet Gynaecol. 2016;31:112-120. doi:10.1016/j.bpobgyn.2015.08.007.
- Lu HE, Yang YC, Chen SM, Su HL, Huang PC, et al. Modeling neurogenesis impairment in Down syndrome with induced pluripotent stem cells from trisomy 21 amniotic fluid cells. Exp Cell Res. 2013;319(4):498-505.
- Lee CC, et al. Establishment of a human trisomy 18 induced pluripotent stem cell line from amniotic fluid cells. Stem Cell Res. 2018;29:115-119.
- D'Aurora M, et al. Modeling Klinefelter syndrome using induced pluripotent stem cells reveals impaired germ cell differentiation. Front Cell Dev Biol. 2020;8:567454.
- Mali P, Chou BK, Yen J, Ye Z, Zou J, et al. Butyrate greatly enhances derivation of human induced pluripotent stem cells by promoting epigenetic remodeling and the expression of pluripotency-associated genes. Stem Cells. 2010;28(4):713-720.
- Guo J, Lee Q, Qiu H, Wei Y, Zhu X, et al. Patient-derived neural organoids reveal developmental impairments associated with a novel GJB1 mutation in X-linked Charcot-Marie-Tooth disease. Neurobiol Dis. 2026;220:107299.
- Nanbo A, Sugden A, Sugden B. The coupling of synthesis and partitioning of EBV's plasmid replicon is revealed in live cells. EMBO J. 2007;26(19):4252-4262.
- Chou BK, Mali P, Huang X, Ye Z, Dowey SN, et al. Efficient human iPS cell derivation by a non-integrating plasmid from blood cells with unique epigenetic and gene expression signatures. Cell Res. 2011;21(3):518-529.
- Okita K, Matsumura Y, Sato Y, Okada A, Morizane A, et al. A more efficient method to generate integration-free human iPS cells. Nat Methods. 2011;8(5):409-412.
- Cheng L, Wang Y, Yang Z, Cao J, Peng F, et al. p53 safeguards chemical reprogramming of human somatic cells toward pluripotency. Cell. 2026. doi:10.1016/j.cell.2026.03.038.
- Akutsu SN, Miyamoto T, Oba D, Tomioka K, Ochiai H, et al. iPSC reprogramming-mediated aneuploidy correction in autosomal trisomy syndromes. PLoS One. 2022;17(3):e0264965.
إعادة الطباعة والأذونات
الوسوم
تم نشر هذه المقالة
الفيديو قريباً