يصف هذا البروتوكول طرقاً لإنتاج أسماك الزيبرا المعدلة وراثياً بمركبات جينية، وتصوير الخلايا المناعية المرتبطة بالأورام في يرقات وأسماك الزيبرا البالغة، وتقدير كمية تكرار الخلايا المناعية ضمن البيئة الدقيقة للورم.
مقالة منهجية
تصوير وتقدير الخلايا المناعية في البيئة الدقيقة للورم باستخدام نموذج سمك الزيبرا لسرطان الخلايا العصبية
* These authors contributed equally
في هذه المقالة
ملخص
الملخص
يُعد استقطاب الخلايا المناعية إلى البيئة المجهرية للورم (TME) مكوناً هاماً في التنظيم المناعي وتطور الورم. ومن شأن دراسة العلاقات المكانية والزمانية بين الخلايا المناعية والخلايا الورمية داخل الجسم الحي أن توفر رؤى حول التفاعلات داخل البيئة المجهرية للورم. ومع ذلك، لا يزال تصور هذه التفاعلات وقياسها كمياً في الكائنات الحية السليمة يشكل تحدياً عند استخدام مناهج التصوير والتحليل النسيجي التقليدية. وتوفر أسماك الزيبرا نموذجاً قيماً لأبحاث السرطان نظراً لقابليتها للتعديل الجيني، وتطورها السريع، وشفافيتها الضوئية خلال مراحل النمو المبكرة، مما يتيح تصور الخلايا الموصومة بالفلوريسنت. داخل الجسم الحينقدم هنا بروتوكولاً لتوليد وتحديد وتصوير وتكميم الخلايا المناعية والورمية التي تم وسمها بشكل متباين بعلامات فلورية في نموذج لمرض الورم الأرومي العصبي باستخدام سمك الزيبرا. يتضمن البروتوكول تربية وفحص سمك الزيبرا المعدل وراثياً والمركب، والتصوير الحي لليرقات، وتحضير وتصوير الأسماك البالغة الحاملة للأورام، وتكميم الخلايا المناعية المحيطة بمناطق الورم وبداخلها. وباستخدام سلالات مراسلة معدلة وراثياً، CD4+ الخلايا المناعية و MYCNيمكن تصوير وتحليل خلايا الورم الأرومي العصبي الناتجة عن [المحفز] في مراحل تطورية مختلفة. ويتيح سير العمل هذا تقييم تموضع الخلايا المناعية بالنسبة للأورام في كل من الأسماك اليرقية والبالغة، ويمكن استخدامه لمقارنة وفرة الخلايا المناعية عبر مراحل المرض. يوفر هذا البروتوكول منهجية قابلة للتكرار لتصوير وقياس الخلايا المناعية كمياً ضمن البيئة المجهرية للورم (TME). في الجسم الحي باستخدام سمك الزيبرا، وقد يسهل دراسات التفاعلات بين الجهاز المناعي والأورام في نماذج سرطانية أخرى.
المقدمة
تعتبر البيئة الدقيقة للورم (TME) نظاماً بيئياً يتكون من خلايا ورمية، ومناعية، وليفية، وأوعية دموية1. وتلعب البيئة الدقيقة للورم دوراً أساسياً في تطور السرطان، والاستجابة العلاجية، والمناعة المضادة للأورام. وضمن هذه البيئة، تعمل الخلايا المناعية كمنظمات رئيسية لمصير الورم، حيث تساهم إما في الاستجابات المضادة للأورام أو تحفز كبت المناعة2. لذا فإن فهم آليات استقطاب الخلايا المناعية وتوزيعها ووظيفتها داخل البيئة الدقيقة للورم يعد أمراً بالغ الأهمية لتوضيح الآليات التي تتبعها الأورام للإفلات من المراقبة المناعية. ومع ذلك، فإن النهج التقليدية لدراسة البيئة الدقيقة للورم، مثل علم الأنسجة النهائي، وقياس التدفق الخلوي، وتسلسل الخلية الواحدة، لا تقدم سوى لقطات ثابتة وغالباً ما تتطلب تفكيك بنية الأنسجة، مما يؤدي إلى فقدان المعلومات المكانية والتفاعلات بين الخلايا3,4,5,6,7. علاوة على ذلك، فإن هذه الطرق محدودة في قدرتها على تصور وقياس الخلايا المناعية داخل البيئة الدقيقة للورم، لا سيما خلال المراحل المبكرة من تطور الورم.
تُعد أسماك الزيبرا (Danio rerio) نموذجاً قوياً لأبحاث السرطان نظراً لانخفاض تكلفتها، وسرعة نموها، وشفافيتها النسبية، ودرجة الحفظ الجيني العالية لديها8,9. وتوفر هذه المزايا نظاماً تجريبياً قابلاً للتكرار والتوسع، مما يسمح باستخدام أحجام عينات كبيرة وإجراء فحص مجهري فعال خلال إطار زمني قصير10. والأهم من ذلك، تشترك أسماك الزيبرا في حفظ مناعي كبير مع البشر، بما في ذلك المكونات الرئيسية لكل من الجهازين المناعيين الفطري والتكيفي، مما يجعل النتائج ذات صلة بالأمراض البشرية1. وتعتبر هذه الخصائص مفيدة بشكل خاص لدراسة سرطانات الأطفال مثل الورم الأرومي العصبي8. وبناءً على ذلك، تم تطوير العديد من سلالات أسماك الزيبرا ذات المراسل المناعي ونماذج للسرطان1. لذا، تعمل أسماك الزيبرا كنموذج قيم في الجسم الحي (in vivo) لدراسة التفاعلات بين الورم والخلايا المناعية، مما يقدم رؤية حول كيفية تأثير التنظيم المناعي في تشكيل تطور الورم، لا سيما خلال المراحل المبكرة.
اعتمدت الدراسات السابقة التي بحثت في البيئة الدقيقة للورم (TME) في أسماك الزيبرفيش بشكل كبير على نماذج الطعوم الورمية الغريبة مقترنة بالتصوير النهائي لتقييم تموضع الخلايا المناعية داخل الأورام12,13,14,15,16,17. وبينما توفر هذه الطرق رؤى مفيدة، إلا أنها تظل محدودة بسبب اعتمادها على التصوير ثنائي الأبعاد، والذي لا يمكنه استيعاب التنظيم ثلاثي الأبعاد لـ TME والعلاقات المكانية بين الخلايا الورمية والمناعية أثناء التطور بشكل كامل14. بالإضافة إلى ذلك، تتضمن نماذج الطعوم الورمية الغريبة زرعاً اصطناعياً لخلايا ورمية بشرية، وقد لا تحاكي بدقة بدء تكوين الورم الطبيعي18. كما أن هذه النماذج عادة ما تكون قصيرة المدى ولا يمكنها رصد تطور الورم أو التغيرات في العلاقة المكانية بين الخلايا الورمية والمناعية أثناء التطور بشكل كامل14,19. علاوة على ذلك، يوفر هذا النهج تمثيلاً محدوداً للتنظيم المكاني، والسياق التنموي، والأهمية الفسيولوجية لسلوك الخلايا المناعية داخل TME. ومؤخراً، قمنا نحن وآخرون بتطبيق أسماك زيبرفيش معدلة جينياً بشكل مركب، حيث يتم وسم الخلايا الورمية والمناعية بشكل متمايز بعلامات فلورية، لتصور الخلايا المناعية المرتبطة بالأورام20,21. وتسمح هذه الأسماك المعدلة جينياً بشكل مركب بدراسة TME طوال فترة تطور الحيوان والورم، مما يسهل الاستقصاءات حول التفاعلات بين الجهاز المناعي والورم in vivo.
نقدم هنا طريقة تستخدم المجهر البؤري (confocal microscopy) لدراسة الخلايا المناعية داخل البيئة المجهرية للورم (TME) في نموذج لسرطان الخلايا العصبية لدى سمك الزيبرا. في هذا النهج، استخدمنا سلالات تقريرية من سمك الزيبرا تعمل على وسم الخلايا المناعية، وسلالة من سمك الزيبرا معدلة وراثياً تفرز بشكل مفرط الجين الورمي البشري MYCN تحت محفز dopamine-β-hydroxylase (dβh)، مما أدى إلى تطور سرطان خلايا عصبية يشبه المرض البشري20. في هذا النموذج من سمك الزيبرا المعدل وراثياً والمركب، يتم وسم الخلايا الورمية والخلايا المناعية بشكل تفاضلي باستخدام EGFP وmCherry على التوالي. يكون محفز dβh نشطاً في خلايا السلالة الودية الكظرية، وقد استُخدم في نماذج متعددة لسرطان الخلايا العصبية في سمك الزيبرا2,23,24,25. بالإضافة إلى ذلك، استخدمنا محفز Cd4 الذي يحفز فلورة mCherry لتصوير خلايا CD4+15. تم تطبيق التصوير البؤري مع اكتساب مجموعة من المقاطع العرضية (Z-stack) لتصوير البيئة المجهرية للورم في ثلاثة أبعاد في مراحل مختلفة من تطور الورم، مما سمح بتقييم العلاقات المكانية بين الخلايا الورمية والمناعية داخل الأنسجة السليمة. تتيح هذه الطريقة تحليل تنظيم الخلايا المناعية بالنسبة للخلايا الورمية خلال المراحل المختلفة من تطور الورم.
البروتوكول
تمت الموافقة على جميع الإجراءات الحيوانية من قبل لجنة الرعاية والاستخدام المؤسسي للحيوان (IACUC) في جامعة بوسطن شوبانيان. &؛ كلية أفيديزيان للطب بموجب البروتوكول PROTO202101. يتلخص سير العمل العام لإنتاج أسماك الزيبرا المعدلة وراثياً والمركبة، وتصوير اليرقات، وتحضير أنسجة البالغين، وتحليل الصور في الشكل 1.
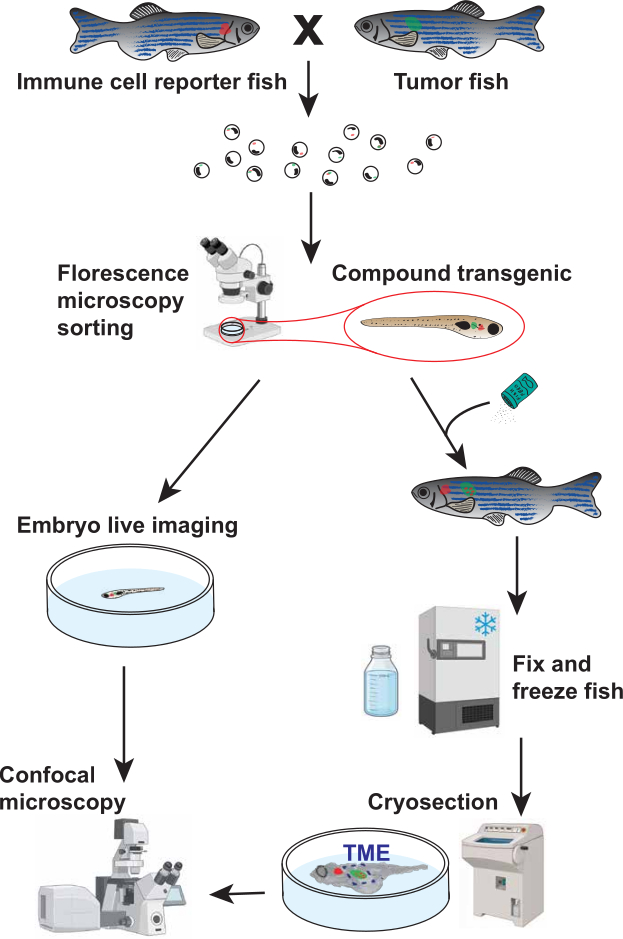
الشكل 1سير العمل لتصور وتقدير الخلايا المناعية كمياً ضمن البيئة المجهرية للورم (TME) في سمكة الزيبرا. مخطط عام لسير العمل التجريبي. تم تزويج أسماك الزيبرا ذات المراسل المناعي (Immune-reporter) مع أسماك زيبرا عرضة للإصابة بالأورام لإنتاج نسل متحول جينيًا بشكل مركب يعبر عن علامات فلورية في كل من الخلايا المناعية (باللون الأحمر) والخلايا الورمية (باللون الأخضر). فُحصت الأجنة باستخدام المجهر الفلوري لتحديد الأسماك المتحولة جينيًا بشكل مركب. خضعت الأسماك المختارة إما للتصوير المجهري البؤري الحي خلال التطور اليرقي (<21 يوماً بعد الإخصاب [dpf]) أو معالجتها عن طريق التثبيت، والتقطيع بالتجميد، والتصوير المجهري البؤري للأسماك التي يتجاوز عمرها 21 يوماً بعد الإخصاب. يتيح سير العمل هذا تصور وقياس الخلايا المناعية المرتبطة بالبيئة المجهرية للورم عبر مراحل نمو متعددة. تم إنشاء جزء من الرسم التوضيحي باستخدام BioRender. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
1. توليد سلالات أسماك الزيبرا المعدلة وراثياً المركبة من خلال التربية
- اختر أسماكاً بالغة من سلالة المراسل المناعي وأسماكاً ورمية لا يقل عمرها عن 3 أشهر للتزاوج الطبيعي.
ملاحظة: للحصول على نتائج تمثيلية، تم تزاوج أسماك Tg(cd4-1:mCherry) متغايرة الزيجوت مع أسماك Tg(dβh:MYCN; dβh:EGFP) متغايرة الزيجوت لتمييز الخلايا المناعية والخلايا الورمية بشكل تفاضلي15,23. - في المساء الذي يسبق التزاوج، املأ حوض تزاوج مكوناً من حجرتين بمياه الأسماك حتى ثلثي سعته.
- ضع قطعة إدخال علوية ذات شبكة في حجرة التزاوج. استخدم الفواصل لفصل ذكر واحد عن أنثى واحدة أو اثنتين.
- اترك الفواصل في مكانها طوال الليل. أضف نبات اصطناعية أو مواد إثراء أخرى لمحاكاة ظروف التزاوج الطبيعية.
ملاحظة: تزيد نسبة 1:2 (ذكر إلى أنثى) من احتمالية نجاح عملية وضع البيض عند تزاوج الذكور الورمية مع أسماك المراسل المناعي. لا تزاوج ذكرين مع أنثى واحدة، حيث قد يحدث تنافس بين الذكور. - في صباح اليوم التالي، قم بإزالة الفواصل بعد تشغيل أضواء المنشأة.
- أمل الحجرة العلوية ذات الشبكة قليلاً باستخدام الفاصل كإسفين لإنشاء منطقة مياه ضحلة. اترك الأسماك تضع البيض لمدة ساعة واحدة على الأقل.
- اجمع البيض من قاع حجرة التزاوج عن طريق سكب المياه عبر شبكة ذات مسام دقيقة.
- انقل البيض إلى طبق بتري معقم يحتوي على مياه الأسماك بكثافة لا تزيد عن بيضة واحدة لكل 50 mm2 (حوالي 20 بيضة لكل طبق قطر 100 mm).
- أزل البيض الميت وغير المخصب.
ملاحظة: يكون البيض المخصب السليم شفافاً ومستديراً. أزل البيض العكر، أو الأبيض، أو غير المخصب، أو المشوه. - تحقق مجدداً من الأسماك لتجنب خلط الجنسين أو التلوث الخلطي بين أحواض الأسماك المعدلة جينياً.
- أعد الذكور والإناث إلى أحواضهم الخاصة.
- ضع الأجنة في حضانة عند درجة حرارة 28.5°C طوال الليل. لا تتجاوز كثافة الأجنة المحددة في الخطوة 1.8.
- قم بمعالجة الأجنة بالمبيض في صباح اليوم التالي لإزالة الملوثات.
- حضّر محلول مبيض عامل يتكون من 10 µL مبيض في 20 mL من مياه النظام. حضّر محلول تعادل يتكون من 0.5 g ثيوسلفات الصوديوم في 150–20 mL من مياه النظام.
- فرز وانقل الأجنة القابلة للحياة إلى قطعة إدخال ذات آبار شبكية. اغمر قطعة الإدخال في محلول المبيض لمدة 5 min.
- انقل قطعة الإدخال مباشرة إلى محلول ثيوسلفات الصوديوم. حضنها لمدة 2 min لتعادل المبيض المتبقي.
- اشطف الأجنة في حمام نهائي من مياه النظام العذبة. استخدم زجاجة رش لنقل الأجنة بلطف إلى أطباق بتري نظيفة تحتوي على مياه نظام عذبة.
- أعد الأجنة إلى الحضانة بعد المعالجة بالمبيض.
- انقل اليرقات في اليوم 5–7 بعد الإخصاب (dpf) أو لاحقاً إلى حوض أكبر يحتوي على مياه روتيفرا بتركيز 5 ppt للتربية.
- حضّر مياه روتيفرا بتركيز 5 ppt عن طريق خلط جزء واحد من محلول الروتيفرا المركز (15 ppt) مع جزأين من مياه نظام أسماك الزيبرفيش.
- تحقق من أن الملوحة النهائية هي 5 ppt باستخدام مقياس الموصلية قبل نقل اليرقات.
ملاحظة: يسهل فرز يرقات EGFP+ MYCN في اليوم 3–5 dpf تحديد الأسماك المعرضة للأورام قبل التربية. إن فرز أجنة MYCN في هذه المرحلة يتجنب التعرف السلبي الخاطئ لأن تعبير EGFP في خلايا العرف العصبي قد ينخفض لاحقاً في التطور بسبب الموت الخلوي المبرمج الناجم عن MYCN.
2. فحص أسماك الزيبرا بحثاً عن العلامات الفلورية
- قم بتحضير محلول مخزون من التريكائين (tricaine) بتركيز 0.4% (w/v) باستخدام مياه النظام.
- انقل الأسماك إلى أطباق بتري نظيفة تحتوي على كمية من مياه النظام تكفي فقط لتغطية القاع.
- أضف محلول التريكائين المخزون للوصول إلى تركيز نهائي يبلغ حوالي 0.05% (50 mg/L) للأسماك التي يقل عمرها عن 14 dpf، أو 0.012% (120 mg/L) للأسماك التي يزيد عمرها عن 14 dpf. تأكد من تحقق التخدير الكافي من خلال ملاحظة غياب الحركة الإرادية أو قلتها.
- قم بإزالة المياه الزائدة من الطبق بمجرد تخدير الأسماك وعدم قدرتها على السباحة، مع الحفاظ على ظهور حركة غطاء الخياشيم أو حركة القلب.
- افحص الأسماك للكشف عن الفلورة. حدد الفلورة الخضراء أو الحمراء في المنطقة المتوقعة (على سبيل المثال، منطقة الغدة بين الكلوية في أسماك MYCN).
- افصل الأسماك إلى مجموعات باستخدام أداة فرز ذات شعيرات صلبة.
ملاحظة: يجب فرز الأسماك المعرضة للأورام في أقرب وقت ممكن، لأن الموت الخلوي المبرمج الناتج عن MYCN خلال مراحل النمو المتأخرة قد يؤدي إلى تحديد نتائج سلبية خاطئة. قم بفرز الأسماك ذات المراسل المناعي مباشرة قبل التصوير في المرحلة اليرقية أو بين عمر شهرين و4 أشهر للدراسات على الأسماك البالغة. هذا النهج يقلل من الإجهاد المرتبط بالتناول ويزيد من معدلات البقاء. - انقل الأسماك الإيجابية والسلبية إلى أحواض منفصلة تحتوي على مياه النظام لمواصلة التربية.
ملاحظة: تصف الخطوة 3 كيفية تناول وتصوير اليرقات التي يقل عمرها عن 21 dpf. بينما تصف الخطوات 4-6 عملية التثبيت وتحضير الأنسجة والتصوير وتحليل الصور للأسماك الأكبر سناً.
3. التثبيت الحي والـتصوير لليرقات
- ضع اليرقات التي تم فرزها في طبق بتري بقطر 10 mm يحتوي على ماء أسماك مضاف إليه التريكاين (راجع الخطوة 2.3 لمعرفة التركيزات المناسبة للعمر).
- انقل اليرقات المهدأة إلى طبق تصوير ذي قاعدة زجاجية.
- استخدم كمية كافية فقط من المحلول لتغطية اليرقة والحفاظ على التهدئة.
- حضّر أغاروز منخفض الانصهار بتركيز 1%–1.5% في ماء الأسماك. سخن محلول الأغاروز حتى يذوب تماماً.
- اترك الأغاروز ليبرد لمدة 1–2 min. حافظ على درجة حرارة الأغاروز عند 30°C باستخدام كتلة تسخين لمنع التصلب قبل التثبيت.
- ضع كل يرقة في وضع جانبي في طبق التصوير.
- أضف حوالي 30–20 µL من الأغاروز فوق اليرقة لتثبيتها. استخدم أحجاماً أكبر لليرقات الأكبر وأحجاماً أصغر لليرقات الأصغر.
- بمجرد تصلب الأغاروز، أضف حوالي 10 µL من محلول التريكاين بتركيز 0.05% فوق الأغاروز.
- صور اليرقات باستخدام مجهر كونفوكالي.
- استخدم مجهراً كونفوكالياً قياسياً بماسح ليزري مع ماسح رنيني. استخدم عدسة شيئية 40× بفتحة عددية أكبر من 1.10.
- اضبط الثقب (pinhole) على 1.0 وحدة آيري (AU) لجميع قنوات التصوير.
- استخدم ليزر 48 nm لإثارة EGFP وليزر 594 nm لإثارة mCherry. حافظ على خرج الليزر أقل من 25 mW لتقليل التبييض الضوئي والتسمم الضوئي. اضبط كسب الكاشف وقوة الليزر باستخدام جدول بحث (LUT) لمؤشر النطاق لتجنب تشبع البكسل والاقتصاص الأسود. لا تتجاوز كسب الكاشف 80 V لأن الجهود الأعلى تسبب ضوضاء مفرطة.
- استخدم حجم فوكسل 0.42 × 0.42 × 6.0 µm (x, y, z) بدقة 1024 × 1024 بكسل وفاصل خطوة Z قدره 6.0 µm. التقط المقاطع البصرية باستمرار عبر كامل الحجم المطلوب، والذي يمتد عادةً من 90–120 µm في إجمالي عمق التصوير. استخدم كواشف ضوئية عالية الحساسية تعمل في وضع التقاط 16-bit.
- التقط الصور باستخدام مسح خطي أحادي الاتجاه بتردد مسح رنيني 3.3 kHz (زمن بقاء البكسل حوالي 1.58 µs). استخدم متوسطاً بمقدار 2× أو 4× لتقليل عيوب الحركة مع الحد من التعرض لليزر.
ملاحظة: قم بتحسين التعرض للتريكاين للحفاظ على بقاء اليرقات أثناء التصوير. بعد التصوير، أضف ماء الأسماك حتى يمتلئ طبق التصوير إلى النصف تقريباً.
- أضف ماء أسماك طازجاً إلى طبق التصوير فوراً بعد الانتهاء من التصوير.
- أزل اليرقة برفق من الأغاروز باستخدام عصا ذات شعيرات صلبة وانقل اليرقة إلى طبق يحتوي على ماء أسماك نظيف للتعافي.
- أعد السمكة إلى حوضها الأصلي بمجرد استئناف سلوك السباحة الطبيعي.
ملاحظة: بالنسبة للأسماك التي يتجاوز عمرها 21 dpf، يجب إزالة الجلد الذي يغطي الورم عن طريق التقطيع بالتجميد (cryosectioning) لتمكين التصوير الكونفوكالي عالي الدقة.
4. تثبيت الأسماك والتقطيع بالتجميد
- يتم القتل الرحيم للأسماك وفقاً لإرشادات رعاية الحيوان المؤسسية المعتمدة.
- يُجرى شق بطني يمتد من الفتحة الشرجية إلى الحزام الصدري للكشف عن التجويف البطني وتسهيل تغل المثبت في الأنسجة الداخلية.
- تُنقل الأسماك باستخدام الملاقط إلى أنبوب سعة 1.5 mL يحتوي على 4% paraformaldehyde (PFA) في phosphate-buffered saline (PBS) أو حجم من المثبت يزيد بمقدار 10 أضعاف على الأقل عن حجم النسيج.
ملاحظة: يجب تجنب لمس المنطقة التي تحتوي على الورم للحفاظ على سلامة النسيج. - توضع العينات على هزاز مائل (nutating rocker) مضبوط على تحريك مستمر خفيف (30 rpm) وتُحضن طوال الليل لمدة 12 h على الأقل عند 4°C.
تنبيه: مادة PFA مادة خطرة وسامة وقد تكون مسرطنة. يجب ارتداء معدات الوقاية الشخصية المناسبة، بما في ذلك القفازات وواقي العينين. تُنفذ جميع الإجراءات التي تتضمن PFA داخل خزانة استخلاص الأدخنة (fume hood) مع تجنب استنشاق الأبخرة. - يُزال الـ PFA وتُغسل العينات أربع مرات على الأقل باستخدام 1.5 mL من 1× PBS. يُقلب الأنبوب بلطف مرتين إلى ثلاث مرات أثناء كل غسلة.
- تُنقل الأسماك إلى محلول sucrose بتركيز 30% محضر في PBS.
- تُحضن الأسماك في غرفة باردة طوال الليل حتى تغوص العينة إلى قاع الأنبوب القائم (حوالي 12 h)، مما يشير إلى التغل الكافي للـ sucrose.
- يُزال محلول الـ sucrose الزائد عن طريق تجفيف السمكة بلطف باستخدام منديل مختبري.
- تُنقل الأسماك إلى أنابيب تخزين.
- تُخزن العينات عند −80°C حتى وقت التصوير.
ملاحظة: يجب معالجة العينات في غضون 3 أشهر لتقليل تحلل البروتين الفلوري وفقدان الإشارة. - تُنقل الأسماك المثبتة إلى غرفة المقطاع المجمد (cryostat) على الثلج الجاف.
- توضع السمكة بشكل مسطح في قالب بلاستيكي بحيث يكون أحد الجانبين السهميين (sagittal side) مواجهاً للأسفل.
- يُضاف مركب Optimal Cutting Temperature (OCT) حتى تغطى السمكة بالكامل.
- يُجمد القالب عند −20°C أو في المقطاع المجمد حتى يتحول الـ OCT إلى اللون الأبيض.
ملاحظة: يجب وضع السمكة بوضعية مسطحة قدر الإمكان قبل التجميد لتسهيل الحصول على مقاطع متسقة. - يتم إجراء تقطيع مجمد لسمكة الزيبرا في المستوى السهمي لإزالة الجلد من أجل التصوير اللاحق للعينة الكاملة.
- يتم تبريد حامل المقطاع المجمد (cryostat chuck).
- يُوضع OCT بدرجة حرارة الغرفة على الحامل.
- تُضغط كتلة الـ OCT التي تحتوي على السمكة بقوة فوق طبقة الـ OCT.
- يُجمد الحامل والكتلة حتى يتحول الـ OCT المضاف حديثاً إلى اللون الأبيض.
- يُثبت الحامل في المقطاع المجمد.
- تُقطع الكتلة مجمدًا بسمك 14 µm حتى تصل الشفرة إلى العينة.
ملاحظة: قد يحدث إزاحة للعينة أثناء التجميد، مما يجعل السمكة في وضعية أعلى في الكتلة مما كان متوقعاً. ويُستدل على الدخول في العينة بظهور نسيج شبه شفاف يحل محل خلفية الـ OCT المعتمة. - يُخفض سمك المقطع إلى 7 µm.
- يستمر التقطيع لقطع إضافية واحدة.
ملاحظة: يزيل هذا الإجراء الجلد مع الحفاظ على ملف سهمي موحد عبر العينة. - يتم التأكد من نقطة النهاية عن طريق تحديد الجلد في المقاطع التي تم جمعها.
ملاحظة: يعد ظهور الجلد في المقاطع مؤشراً أكثر موثوقية من شكل العين. يُنفذ هذا الإجراء فقط عندما يحجب الجلد تصوير البيئة الدقيقة للورم.
- يُدفأ الحامل بلطف باستخدام اليدين.
- تُزال كتلة الـ OCT من الحامل باستخدام الملاقط، مع تجنب إزعاج السطح المقطوع من العينة.
- يُزال الـ OCT الزائد المحيط بالسمكة بينما يظل الـ OCT مجمداً.
- تُزال السمكة من كتلة الـ OCT باستخدام الملاقط بمجرد أن يلين الـ OCT وتصبح قوامه لزجاً.
5. تثبيت وتصوير الأسماك بعد إزالة الجلد
- ضع السمكة في طبق ذي قاعدة زجاجية بحيث يكون الجانب السهمي المقطوع مواجهاً للسطح الزجاجي.
ملاحظة: حافظ على اتجاه السمكة أثناء التعامل معها، حيث قد يصبح تحديد الجانب المقطوع صعباً بعد إزالة السمكة من كتلة OCT. - قم بتحضير Agarose منخفض الانصهار بتركيز 1%–1.5%.
- ضع حوالي 30–50 µL من الـ agarose على الجانبين الظهري والبطني للسمكة لتثبيت العينة.
ملاحظة: تجنب وضع الـ agarose أسفل السمكة لأن ذلك قد يقلل من جودة الصورة. استخدم فقط الحد الأدنى من كمية الـ agarose المطلوبة للتثبيت. - احتفظ بالعينة على الثلج أثناء النقل. وقم بتصوير العينة في غضون ساعتين من عملية التثبيت.
- انقل العينة إلى مرفق المجهر البؤري (confocal microscopy).
- قم بتصوير العينة باستخدام المجهر البؤري.
- استخدم مجهراً بؤرياً قياسياً ماسحاً بالليزر مزوداً بماسح رنيني (resonant scanner). ويمكن استخدام مجهر ثنائي الفوتون في حال أدى الفلورة الذاتية (autofluorescence) إلى الحد من جودة الصورة. استخدم عدسة شيئية مصححة بقوة 20× وبفتحة عددية لا تقل عن 0.80.
- اضبط الثقب (pinhole) على 1.0 وحدة Airy (AU) لجميع قنوات التصوير.
- استخدم ليزر بطول موجي 48 nm لإثارة EGFP وليزر بطول موجي 594 nm لإثارة mCherry. حافظ على مخرجات الليزر أقل من 25 mW. اضبط كسب الكاشف (detector gain) وقوة الليزر باستخدام جدول بحث (LUT) لمؤشر النطاق لتجنب تشبع البكسل والقص الأسود (black clipping). لا تتجاوز كسب كاشف قدره 800 V لأن الجهود الأعلى تؤدي إلى ضوضاء مفرطة.
- قم بتكوين معلمات الحصول على الصور كما يلي:
- استخدم حجم voxel قدره 0.42 × 0.42 × 6.0 µm (x, y, z) بدقة 1024 × 1024 بكسل وفاصل Z-step قدره 6.0 µm.
- احصل على حزم الصور الطيفية (spectral image stacks) عبر كامل الحجم المستهدف، والتي تغطي عادةً نطاق التقاط Z-stack إجمالي يتراوح بين 90–120 µm (15–20 مقطعاً بصرياً).
- ابدأ عملية التقاط الصور في الحيز السائل الموجود مباشرة فوق سطح النسيج وتابع عبر كامل عمق التصوير المستهدف لضمان التغطية الكاملة للعينة.
- التقط الصور باستخدام كاشفات ضوئية عالية الحساسية تعمل بنمط التقاط 16-bit.
- التقط الصور باستخدام المسح الخطي أحادي الاتجاه بتردد مسح رنيني قدره 3.3 kHz (وقت بقاء بكسل يبلغ حوالي 1.58 µs) مع متوسط خطوط قدره 8×.
6. تحليل الصور والقياس الكمي
- تصوير الصور باستخدام برنامج Fiji (الإصدار 1.54p).
- افتح صور المكدس المحوري (z-stack) المأخوذة بالمجهر البؤري (confocal).
- ادمج الألوان لرؤية تراكب القنوات عن طريق تحديد Image > اللون > دمج القنوات.
- قم بإنشاء مسقط للنطاق الزيدي (z-range) الكامل الذي يحتوي على منطقة التصوير عن طريق اختيار Image > المكدسات > إسقاط المحور Z. أدخل نطاق الشرائح المطلوب، بالإضافة إلى نوع إسقاط الكثافة القصوى. سيؤدي ذلك إلى عرض الإسقاط ثنائي الأبعاد للصورة.
ملاحظة: بالنسبة ليرقات الأسماك، من الممكن تصوير البيئة الدقيقة للورم (TME) بالكامل باستخدام المجهر البؤري؛ لذا نوصي باستخدام طريقة التطبيع والتقدير الكمي الحجمي لتحليل البيئة الدقيقة للورم. أما بالنسبة للأسماك الأكبر سناً، فمن المستحيل تصوير البيئة الدقيقة للورم بالكامل باستخدام المجهر البؤري، ولذلك نوصي بتطبيق طريقة التطبيع والتقدير الكمي القائمة على المساحة. وبناءً على تحليلنا وتقديرنا الكمي ليرقات الأسماك، يمكن لكلتا الطريقتين تقديم نتائج بيولوجية موثوقة.
- التطبيع الحجمي والتقدير الكمي للبيئة الدقيقة للورم في يرقات الأسماك.
- تقدير حجم الورم كمياً باستخدام برنامج MATLAB R202b (يتم تحميل الحزمة من موقع Matlab الإلكتروني) وحزمة Bio-Formats (يتم تحميلها من موقع openmicroscopy الإلكتروني).
- يقوم المستخدم بتشغيل نص برمجي ينفذ المهام التالية:
- اطلب من المستخدم اختيار ملف بصيغة .CZI من جهاز الكمبيوتر الخاص به.
- اقرأ الصورة واستخرج البيانات من القناة التي تحتوي على منطقة الورم.
- حدد المنطقة التي تمثل الورم في كل شريحة من خلال عتبة الفلورة (سواء عبر إدخال المستخدم أو التعلم الآلي)، مع الحفاظ على نفس العتبة لجميع الصور التي يتم تحليلها لضمان الاتساق.
- حدد منطقة الورم واعرض الصورة مع تحديد منطقة الورم في تجميعة (collage) لجميع المقاطع لتمكين المستخدم من التحقق منها.
- احسب مساحة منطقة الورم لكل شريحة بالبكسل، ثم حولها إلى المليمتر (mm)2 باستخدام مقياس الصورة وإعدادات التصوير.
- اضرب مساحة منطقة الورم في العمق (المخزن في البيانات الوصفية للملف) للحصول على حجم كل شريحة.
- اجمع القيم المحسوبة لكل شريحة للحصول على الحجم الإجمالي للورم المصور والمنطقة المحيطة به بوحدات الفوكسل (voxels) أو المليمتر المكعب (mm³).3.
- قم بتعديل قياسي كلا قياسَي الحجم من خلال الضرب في 104 لحجم الورم و106 للمنطقة المحيطة، وسيؤدي ذلك إلى إنشاء نسبة أكثر معقولية بين عدد الخلايا والحجم أثناء عملية التسوية.
- تقدير عدد الخلايا كمياً.
- افتح صور المكدس المحوري z (z-stack) المأخوذة بالمجهر البؤري.
- ادمج الألوان لرؤية تراكب القنوات عن طريق اختيار Image > اللون > دمج القنوات.
- قم بإنشاء عرض ثلاثي الأبعاد للنطاق الكامل لمحور z الذي يحتوي على منطقة التصوير عن طريق تحديد Image > المكدسات > مشروع ثلاثي الأبعاد (3D Project). اختر "تحديد النقطة الأكثر سطوعاً" (Select Brightest Point) كطريقة للإسقاط، واضبط الإعدادات الأخرى على القيم المطلوبة.
- نظرًا لقلة عدد الخلايا، قم بعدّ الخلايا وتبويبها يدويًا، مع الفصل بين الخلايا الموجودة داخل حدود الورم وتلك الموجودة خارجه.
ملاحظة: تُحسب الخلايا الموجودة على حدود منطقة الورم على أنها خارجها.
- التطبيع.
- بالنسبة للخلايا المتسللة داخل منطقة الورم، اقسم عدد الخلايا على حجم الورم المُقاس. أما بالنسبة للخلايا الموجودة خارج منطقة الورم، فاقسم عدد الخلايا خارج حجم الورم على الحجم المُقاس للصورة الكاملة مطروحاً منه حجم الورم.
- قم بإنشاء جدول يتضمن العناوين التالية: "تحديد هوية السمكة"، "حجم الورم"، "عدد الخلايا داخل منطقة الورم"، "عدد الخلايا خارج منطقة الورم"، "الخلايا الموحدة داخل الورم"، "الخلايا الموحدة خارج الورم".
- التطبيع والتقدير الكمي للبيئة المجهرية للورم بناءً على المساحة.
- حدد المنطقة الورمية محل الاهتمام (ROI) باستخدام أداة التحديد المستطيلة (Rectangle) أو أداة التحديد الحر (Freehand) لرسم حدود الورم.
- أضف المنطقة ذات الأهمية (ROI) إلى مدير المناطق ذات الأهمية (ROI Manager) بالضغط على ت أو عن طريق اختيار تحليل > الأدوات > مدير مناطق الاهتمام (ROI Manager) > أضف.
- قياس مساحة منطقة الاهتمام (ROI) باستخدام تحليل > قياس.
- تأكد من أن المنطقة يتم اختياره بموجب ضبط القياسات قبل تسجيل القياسات.
- احفظ المنطقة المحددة للاهتمام (ROI) في مدير المناطق المحددة للاهتمام (ROI Manager).
- تطبيق منطقة الاهتمام (ROI) نفسها على جميع الصور باستخدام مدير منطقة الاهتمام (ROI Manager) > المزيد > قياس متعدد.
- لا تقم بتغيير حجم المنطقة ذات الاهتمام (ROI) بين الصور.
- قم بعدّ الخلايا يدويًا داخل المنطقة المحددة (ROI). وفي حال كان عدد الخلايا كبيرًا، استخدم ملحق Cell Counter لعدّ الخلايا عن طريق تحديد الإضافات البرمجية > تحليل > عداد الخلايا.
- حدد كل خلية تم عدّها بالنقر بزر الفأرة الأيسر عندما يقع مركزها ضمن المنطقة المحددة للاهتمام (ROI).
- قم بالتمرير عبر المكدس المحوري (z-stack) للتحقق من هوية الخلية.
- تجنب عد الخلية نفسها أكثر من مرة عبر مستويات صورية متعددة.
- قم بعدّ الخلايا المرتشحة بشكل منفصل إذا كانت تلامس حدود الورم أو تقع ضمنها.
- سجِّل الخلايا المتسللة كفئة متميزة حتى عندما يقع المركز الهندسي للخلية خارج المنطقة ذات الاهتمام (ROI).
- تحويل مساحة منطقة الاهتمام (ROI) من بكسل إلى مليمتر2.
- احصل على عرض البكسل، وارتفاع البكسل، وفاصل الخطوة في المحور Z من صورة > الخصائص.
- حساب أعداد الخلايا المُطبعة.
- اقسم عدد الخلايا الخام لكل سمكة على قيمة مساحة المنطقة المحددة (ROI) المقابلة لها.
- سجل القيمة الناتجة كعدد الخلايا المُطبع.
- لإجراء قياسات الكثافة المطلقة، احسب المساحة الفيزيائية باستخدام قيم معايرة الصور التي تم الحصول عليها من صورة > الخصائص.
- اقسم عدد الخلايا الخام على المساحة المحسوبة (مم²)2).
- سجل النتيجة ككثافة خلوية مُعبرًا عنها بعدد الخلايا/مم³2.
النتائج
يظهر سير العمل التجريبي العام في الشكل 1. تم تهجين أسماك الزيبرا البالغة من سلالة Tg(cd4-1:mCherry) مع أسماك الزيبرا من سلالة Tg(dβh:MYCN;dβh:EGFP) لإنتاج نسل محول جينيًا مركب، تكون فيه الخلايا CD4+ والخلايا التي تعبر عن dβh مميزة بشكل مختلف بفلوريسنت mCherry وEGFP على التوالي. تم فحص الأجنة للتحقق من وجود العلامات الفلورية المناسبة، ثم جرى تحليلها إما عن طريق التصوير المجهري البؤري الحي أثناء التطور اليرقي، أو التصوير المجهري البؤري بعد التثبيت والتقطيع بالتجميد في الأسماك الأكبر سنًا (الشكل 1).
لتقييم ارتباط خلايا CD4+ بالآفات قبل السرطانية للورم الأرومي العصبي خلال التطور اليرقي، تم تصوير الأسماك المعدلة وراثياً المركبة في اليومين 7 و 14 بعد الإخصاب (dpf). وقد تم اختيار هذه النقاط الزمنية بناءً على مراحل تطور الخلايا اللمفاوية في سمك الزيبرا26,27. تظهر الصور المجهرية البؤرية التمثيلية في الشكل 2A. في اليوم 7 dpf، لوحظت خلايا CD4+ بشكل غير متكرر داخل أو حول المنطقة التي تعبر عن dβh في كل من الأسماك الضابطة والأسماك التي تعبر عن MYCN (الشكل 2A؛ مقاطع الفيديو التكميلية 1 و 2). أما في اليوم 14 dpf، فقد أظهرت الأسماك التي تعبر عن MYCN زيادة في أعداد خلايا CD4+ المرتبطة بالورم قبل السرطاني المشتق من العرف العصبي، مقارنة بمنطقة السلف الودي الكظري المشتقة من العرف العصبي في الأسماك الضابطة (الشكل 2A؛ مقاطع الفيديو التكميلية 3 و 4).
لأخذ الاختلافات في حجم الورم وقدرة المجهر البؤري (confocal microscopy) على التقاط الورم بأكمله في الأسماك اليرقية في الاعتبار، قارنا بين طرق التطبيع القائمة على الحجم والمساحة. ومن المهم الإشارة إلى أن طرق التطبيع القائمة على الحجم والمساحة أعطت نتائج متقاربة في الأسماك اليرقية، مما يدعم استخدام التطبيع القائم على المساحة للأورام في الأسماك البالغة عندما لا يمكن التقاط حجم الورم بالكامل بواسطة المجهر البؤري. وقد أظهر القياس الكمي عدم وجود فرق معنوي في عدد خلايا CD4+ المحيطة بين المجموعات في كلا النقطتين الزمنيتين (الشكل 2B، الأسفل؛ n = 4 و 6 عند 7 dpf و n = 4 و 5 عند 14 dpf لمجموعتي التحكم و MYCN، على التوالي). وفي المقابل، أظهرت الأسماك التي تعبر عن MYCN ارتشاحاً أكبر بشكل معنوي لخلايا CD4+ داخل المنطقة التي تم تحليلها عند 14 dpf مقارنة بأسماك التحكم (الشكل 2B، الأعلى؛ P < 0.05؛ n = 4 و 5 لمجموعتي التحكم و MYCN، على التوالي). تُعرض البيانات كأعداد خلايا مطبعة نسبةً إلى حجم الورم (cells/mm3) ويُعبر عنها بـ mean ± SEM.
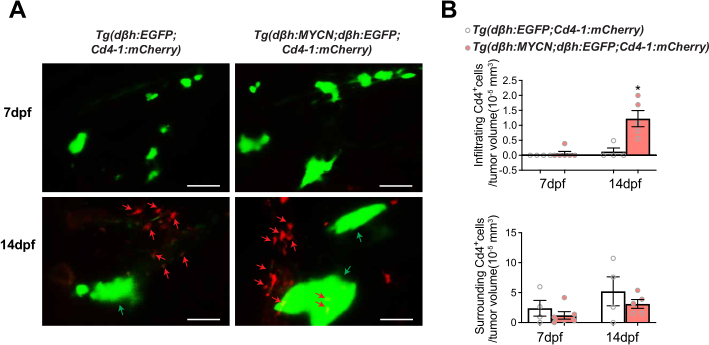
الشكل 2. زيادة ارتباط خلايا CD4+ بآفات الورم الأرومي العصبي المعبرة عن MYCN بعد 14 يومًا من الإخصاب. (A) صور مجهرية بؤرية ممثلة لأسماك التحكم Tg(dβh:EGFP;Cd4-1:mCherry) وأسماك Tg(dβh:MYCN;dβh:EGFP;Cd4-1:mCherry) في اليومين 7 و 14 بعد الإخصاب (dpf). تحدد الخلايا الموجبة لـ EGFP (باللون الأخضر) الخلايا المشتقة من العرف العصبي/الورم الأرومي العصبي المعبرة عن dβh، بينما يتم وسم خلايا CD4+ بـ mCherry (باللون الأحمر). تشير الأسهم إلى خلايا CD4+ ممثلة مرتبطة بمنطقة العرف العصبي/الورم. أشرطة المقياس = 50 µm. (B) تقدير كمي لخلايا CD4+ المحيطة (في الأسفل) والمتسللة (في الأعلى) إلى منطقة العرف العصبي/الورم في أسماك التحكم والأسماك المعبرة عن MYCN في اليومين 7 و 14 بعد الإخصاب. تم تطبيع تعداد الخلايا بالنسبة لحجم الورم (cells/mm3). البيانات معروضة كـ mean ± SEM. أُجريت المقارنات الإحصائية باستخدام اختبارات t غير المزدوجة ذات الذيلين. P < 0.05. n = 4 و 6 في اليوم 7 بعد الإخصاب، و n = 4 و 5 في اليوم 14 بعد الإخصاب لمجموعتي التحكم و MYCN، على التوالي. بيانات ممثلة من ثلاث تجارب مستقلة. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
لفحص ارتباط خلايا CD4+ بالأورام القائمة، تم تربية الأسماك المعدلة جينيًا المركبة والمنقاة حتى مرحلة البلوغ، ثم تحليلها بعد التثبيت، والتقطيع بالتجميد، والتصوير البؤري (الشكل 1). تظهر الصور التمثيلية للورم الأرومي العصبي الموضعي والنقائلي من أسماك تبلغ من العمر 4 أشهر في الشكل 3A. صُنفت الأورام على أنها نقائلية عند اكتشاف خلايا ورمية إيجابية لـ EGFP خارج العقد السمبثاوية الطرفية. وقد طبقنا طريقة كمية قائمة على المساحة لأن المجهر البؤري لا يمكنه التقاط حجم الورم بالكامل. وكشف تحليلنا عن زيادة ملحوظة في أعداد خلايا CD4+ المحيطة بالأورام النقائلية أو المتسللة إليها مقارنة بالأورام الموضعية (الشكل 3B؛ P < 0.05؛ n = 4 لكل مجموعة). تُعرض البيانات كأعداد خلايا معيارية لكل مساحة ورم (cells/mm2) ويتم التعبير عنها كمتوسط ± SEM.
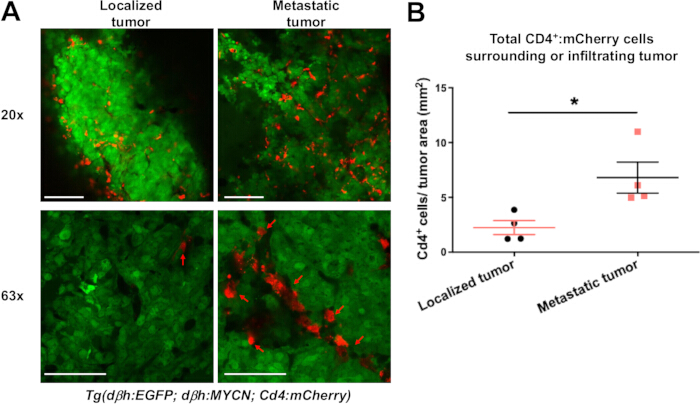
الشكل 3. يظهر الورم الأرومي العصبي النقيلي زيادة في ارتشاح خلايا CD4+ ضمن البيئة الدقيقة للورم. (A) صور مجهرية بؤرية ممثلة لورم أرومي عصبي موضعي ونقيلي نشأ في أسماك الزيبرا الشقيقة Tg(dβh:MYCN;dβh:EGFP;Cd4-1:mCherry) بعمر 4 أشهر. تم وسم الخلايا الورمية بـ EGFP (الأخضر)، ووسم خلايا CD4+ بـ mCherry (الأحمر). تشير الأسهم إلى خلايا CD4+ ممثلة مرتبطة بأنسجة الورم. تظهر الصور التي تم الحصول عليها باستخدام عدسات شيئية 20× و 63× كمجالات رؤية مستقلة. أشرطة المقياس = 10 µm (20×) و 50 µm (63×). (B) تقدير كمي لإجمالي خلايا CD4+ المحيطة بالأورام الموضعية والنقيلية أو المرتشحة فيها. تم تطبيع تعداد الخلايا نسبةً إلى حجم الورم كما هو موضح في البروتوكول. البيانات معروضة كمتوسط ± SEM. أجريت المقارنات الإحصائية باستخدام اختبارات t غير المزدوجة ذات الذيلين. P < 0.05. n = 4 لكل مجموعة. بيانات ممثلة من ثلاث تجارب مستقلة. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
تثبت هذه النتائج إمكانية استخدام هذا البروتوكول لتصوير وقياس كمية خلايا CD4+ المرتبطة بآفات الورم الأرومي العصبي في مراحل متعددة من تطور الورم في سمك الزيبرا.
الفيديو التكميلي 1. مجموعة صور بؤرية مكدسة (z-stack) نموذجية لسمكة زيبرا ضابطة بعد 7 أيام من الإخصاب. تصوير بؤري ثلاثي الأبعاد لسمكة زيبرا ضابطة من سلالة Tg(dβh:EGFP;Cd4-1:mCherry) بعد 7 أيام من الإخصاب (dpf). تظهر الخلايا المشتقة من العرف العصبي والموجبة لـ EGFP باللون الأخضر، وتظهر خلايا CD4+ باللون الأحمر. يلاحظ وجود عدد قليل من خلايا CD4+ داخل أو حول المنطقة التي تعبر عن dβh في هذه المرحلة التنموية. يرجى النقر هنا لتنزيل هذا الملف.
الفيديو التكميلي 2. مكدس محور Z تمثيلي بالتصوير البؤري لسمكة زيبرا تعبر عن MYCN في اليوم السابع بعد الإخصاب. تصوير بؤري ثلاثي الأبعاد لسمكة زيبرا من سلالة Tg(dβh:MYCN;dβh:EGFP;Cd4-1:mCherry) في اليوم السابع بعد الإخصاب (dpf). تظهر خلايا النيوروبلاستوما قبل الخبيثة التي تعبر عن MYCN والموجبة لـ EGFP باللون الأخضر، بينما تظهر خلايا CD4+ باللون الأحمر. وعلى غرار أسماك التحكم، لوحظ وجود عدد قليل من خلايا CD4+ داخل منطقة الورم أو المحيطة بها في هذه المرحلة التنموية المبكرة. يرجى النقر هنا لتنزيل هذا الملف.
الفيديو التكميلي 3. مكدس z ممثل للتصوير البؤري لسمكة زيبرا ضابطة بعد 14 يوماً من الإخصاب. تصوير بؤري ثلاثي الأبعاد لسمكة زيبرا ضابطة من سلالة Tg(dβh:EGFP;Cd4-1:mCherry) بعد 14 يوماً من الإخصاب (dpf). تظهر الخلايا المشتقة من العرف العصبي والموجبة لـ EGFP باللون الأخضر، وتظهر خلايا CD4+ باللون الأحمر. تتوزع خلايا CD4+ بشكل متفرّق وتظهر ارتباطاً محدوداً بالمنطقة التي تعبر عن dβh. يرجى النقر هنا لتنزيل هذا الملف.
الفيديو التكميلي 4. مكدس z ممثل بالتصوير البؤري لسمكة زيبرا تعبر عن MYCN في اليوم 14 بعد الإخصاب. تصوير بؤري ثلاثي الأبعاد لسمكة زيبرا من نوع Tg(dβh:MYCN;dβh:EGFP;Cd4-1:mCherry) في اليوم 14 بعد الإخصاب (dpf). تظهر خلايا الورم الأرومي العصبي قبل الخبيثة التي تعبر عن MYCN والموجبة لـ EGFP باللون الأخضر، بينما تظهر خلايا CD4+ باللون الأحمر. يُلاحظ زيادة في تراكم وتسلل خلايا CD4+ بالتزامن مع منطقة الورم المتضخمة مقارنة بأسماك التحكم المتطابقة في العمر، وهو ما يتوافق مع القياس الكمي الموضح في الشكل 2B. يرجى النقر هنا لتنزيل هذا الملف.
المناقشة
يستخدم البروتوكول الموصوف هنا أسماك الزيبرا كنموذج in vivo لتصوير وقياس الخلايا المناعية داخل البيئة الدقيقة للورم (TME). هناك عدة عوامل حاسمة للتنفيذ الناجح لهذا النهج؛ أولاً، يعد الاختيار والتحقق المناسبان لسلالات أسماك الزيبرا المعدلة وراثياً المركبة أمراً ضرورياً، حيث يجب فحص اليرقات للتأكد من أنماط التعبير الفلوري المتوقعة، وتأكيد ذلك عن طريق التنميط الجيني إذا لزم الأمر. كما يجب التحقق من تعبير المراسل المناعي والجين المسرطن قبل بدء التجربة لضمان التخصيص الدقيق للمجموعات التجريبية ومجموعات الضبط. ثانياً، يعد التحديد الدقيق للمنطقة المستهدفة أمراً بالغ الأهمية أثناء التصوير المجهري البؤري (confocal imaging)، حيث يمكن استخدام التصوير بالمجال المضيء (Bright-field imaging) لتحديد المعالم التشريحية وتسهيل تحديد موقع النسيج المستهدف؛ فعلى سبيل المثال، عند تصوير الأورام في المنطقة الأمامية من الجسم، يمكن استخدام العين كعلامة مساعدة في تحديد الموقع. ثالثاً، يعد الوضع الصحيح للسمكة ضرورياً لضمان التعرض الكافي لمنطقة التصوير، إذ قد يؤدي عدم المحاذاة الصحيحة إلى تقليل جودة الصورة أو حجب النسيج المستهدف. وأخيراً، يلزم التثبيت والتثبيت المناسبان لتقليل عيوب الحركة (motion artifacts) أثناء التصوير الحي، كما يجب تحسين تركيز التريكين (Tricaine) ومدة التصوير للحفاظ على حيوية اليرقات مع الحفاظ على جودة الصورة.
يمكن تقليل السمية الضوئية عن طريق خفض شدة الليزر ووقت التعرض أثناء التصوير الحي. وبالنسبة للعينات البالغة، يجب الحفاظ على الأنسجة مبردة على الثلج أثناء المناولة والتحضير للتصوير، لأن تكرار عملية الإذابة قد يغير من سلامة النسيج. وتكتسب المناولة الدقيقة للعينات أهمية خاصة بعد عملية القطع بالتجميد وإزالتها من قالب OCT.
يتطلب تفسير نتائج التصوير مراعاة خصوصية المراسل. حيث تقوم العديد من سلالات المراسل المناعي بتمييز مجموعات متعددة من الخلايا المناعية. على سبيل المثال، تم تسجيل تعبير CD4 في مجموعات خلوية تتجاوز الخلايا التائية التقليدية، بما في ذلك البلاعم28. بالإضافة إلى ذلك، وبالإضافة إلى البلاعم، يتم اكتشاف تعبير mpeg أيضاً في الخلايا البائية29. كما يمكن لـ Lysc تمييز كل من الخلايا المتعادلة والبلاعم30. وبناءً على ذلك، قد لا يكون تعبير المراسل الفلوري وحده كافياً لتحديد هوية الخلية بشكل نهائي. وقد تكمل مناهج التحقق الإضافية، مثل RNAscope، أو قياس التدفق الخلوي، أو تفاعل البوليميراز المتسلسل الكمي بنسخ عكسي، أو تسلسل الحمض النووي الريبوزي أحادي الخلية، الملاحظات القائمة على التصوير وتوفر توصيفاً جزيئياً إضافياً لمجموعات الخلايا المُميزة.
تضمن هذه الطريقة عدة قيود؛ حيث يعتمد هذا النهج على تعبير المراسل الفلوري، وبالتالي لا يمكنه تأكيد هوية الخلايا المناعية أو حالتها الوظيفية بشكل مستقل. بالإضافة إلى ذلك، يعتمد تحليل الصور في سير العمل الحالي للأسماك البالغة على مجموعات بيانات بؤرية مسقطة ذات طبقات محدودة، وقد لا يستوعب بشكل كامل العلاقات الخلوية المعقدة ثلاثية الأبعاد داخل TME. وأخيراً، تتطلب هذه الطريقة أيضاً إنتاج وصيانة سلالات من أسماك الزيبرا المعدلة وراثياً بشكل مركب، مما قد يحد من إمكانية الوصول إليها في بعض المختبرات.
على الرغم من هذه القيود، يوفر هذا البروتوكول نهجاً عملياً لتصور الخلايا المناعية المرتبطة بآفات الورم الأرومي العصبي في سمك الزيبرا. وبالمقارنة مع علم الأنسجة التقليدي الذي يتم عند نقطة النهاية، تحافظ هذه الطريقة على بنية الأنسجة وتسمح بتصوير الخلايا المسمى بالفلورسنت داخل الأنسجة السليمة20,21. يمكن تطبيق سير العمل هذا عبر مراحل نمو متعددة، كما يمكن تكييفه مع خطوط مراسل فلورسنت إضافية. وإلى جانب الورم الأرومي العصبي، قامت دراسات متعددة بتصوير البيئة الدقيقة للورم (TME) لدراسة التفاعل بين الورم الميلانيني والخلايا المناعية، بما في ذلك خلايا CD4+، والبلاعم، وخلايا CD8+15,21,31,32. ومعاً، تجعل هذه الميزات من هذا البروتوكول منصة مفيدة لدراسة تموضع الخلايا المناعية داخل البيئة الدقيقة للورم (TME) في سمك الزيبرا.
الإفصاحات
يعلن المؤلفون عن عدم وجود تضارب في المصالح.
شكر وتقدير
نقر بالدعم المقدم من المعاهد الوطنية للصحة (NIH; 1UL1TR01430, CA215059, and NS140967)، وجمعية السرطان الأمريكية (RSG-17-204-01-TBG)، والمؤسسة الوطنية للعلوم (191253)، ومؤسسة Alex’s Lemonade Stand لـ H.F.؛ ومن زمالة Warren Alpert Distinguished Scholars لـ X.Q. كما تلقى Y.W. دعمًا من برنامج فرص أبحاث طلاب الجامعات (UROP) في جامعة بوسطن وبرنامج زمالة St. Baldrick’s الصيفية. وتلقى M.V. دعمًا من برنامج زمالة St. Baldrick’s الصيفية. تقع مسؤولية محتوى هذا المقال على عاتق المؤلفين وحدهم، ولا يمثل بالضرورة الآراء الرسمية للمعاهد الوطنية للصحة (NIH).
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| طرف تحميل الجل 20 µL | MilliporeSigma | 102-060 | يستخدم للتعامل مع اليرقات |
| نباتات اصطناعية | The Hidden Reef | 62874200 | إثراء اختياري للتكاثر |
| مبيض | Fisher Scientific | 5037150 | يستخدم لتطهير الأجنة |
| ملحق عد الخلايا | National Institutes of Health (NIH) | N/A | ملحق Fiji يستخدم لتحديد كمية الخلايا |
| كمبيوتر وشاشة | HP | 2TB68A8#ABA | يستخدم لالتقاط الصور وتحليلها |
| مجهر بؤري (Confocal Microscope) | Zeiss | LSM 710 | يستخدم لتصوير اليرقات والبالغين |
| قالب تجميد بلاستيكي | Epredia | 2-050-160 | يستخدم للتضمين بمركب OCT |
| جهاز القطع بالتجميد (Cryostat) | Thermo Fisher Scientific | 95-64-0EC70 | يستخدم للتقطيع بالتجميد |
| ثلج جاف | Fisher Scientific | N/A | يستخدم لنقل العينات |
| برنامج Fiji | National Institutes of Health (NIH) | Version 1.54p | برنامج لتحليل الصور |
| شبكة ذات مسام دقيقة | Carolina Biological | 651345 | تستخدم لجمع الأجنة |
| حضّانة أسماك | VWR | 35960-056 | يتم الحفاظ عليها عند 28.5°C |
| ملقط (Forceps) | Fisher Scientific | 10-316B | يستخدم للتعامل مع العينات |
| طبق ذو قاعدة زجاجية | IBIDI | 81218-20 | يستخدم للتصوير |
| أجاروز منخفض الانصهار | Prolab Supply | 9012-36-6 | يستخدم لتثبيت اليرقات والبالغين |
| حوض تزاوج (حوض رئيسي، فاصل، قسم مشبك) | Carolina Biological | 161937 | يستخدم لتكاثر أسماك الزيبرا |
| هزاز مائل (Nutating Rocker) | Midsci | R2D-30 | يستخدم للتثبيت أثناء الحضانة الليلية |
| مركب OCT | Tissue-Tek | 4583 | وسط تضمين للتقطيع بالتجميد |
| بارافورمالدهيد (PFA) | Sigma Aldrich | 158127-50G | مثبّت |
| طبق بتري بلاستيكي | MilliporeSigma | BR4520 | يستخدم للتعامل مع الأجنة واليرقات |
| محلول ملحي منظم بالفوسفات (PBS) | Gibco | 14080-05 | يستخدم في إجراءات الغسيل والتثبيت |
| ماصة نقل بلاستيكية | Fisher Scientific | 50-98-10 | تستخدم لنقل الأجنة واليرقات |
| شفرة حلاقة | Fisher Scientific | 12-640 | تستخدم أثناء تحضير العينات |
| مقياس الموصلية | YSI | EC30ACC-04 | يستخدم للتحقق من ملوحة مياه الروتيفير |
| روتيفير (Rotifers) | The Hidden Reef | 116151603 | تستخدم لتربية اليرقات |
| ثيوسلفات الصوديوم | Thermo Fisher Scientific | AAA1762936 | يستخدم لمعادلة المبيض |
| سكروز | Fisher Scientific | S2590A | كاشف للحماية من التجميد |
| تريكين ميثان سلفونات | Western Chemical | NC0872873 | مخدر؛ يُباع بواسطة Fisher Scientific |
| ملقط (Tweezers) | Fisher Scientific | 12-0-12 | يستخدم للتعامل مع العينات |
| مجهر فلوري رأسي | Leica | M165 | يستخدم للفحص الفلوري |
المراجع
- Anderson NM, Simon MC. The tumor microenvironment. Curr Biol. 2020;30(16):R921-R925.
- Kumagai S, Momoi Y, Nishikawa H. Immunogenomic cancer evolution: A framework to understand cancer immunosuppression. Sci Immunol. 2025;10(105):eabo5570.
- Keren L, et al. A structured tumor-immune microenvironment in triple negative breast cancer revealed by multiplexed ion beam imaging. Cell. 2018;174(6):1373-1387.e19.
- Gerner MY, et al. Histo-cytometry: A method for highly multiplex quantitative tissue imaging analysis applied to dendritic cell subset microanatomy in lymph nodes. Immunity. 2012;37(2):364-376.
- Pittet MJ, Weissleder R. Intravital imaging. Cell. 2011;147(5):983-991.
- Wienke J, et al. The immune landscape of neuroblastoma: Challenges and opportunities for novel therapeutic strategies in pediatric oncology. Eur J Cancer. 2021;144:123-150.
- Spitzer MH, Nolan GP. Mass cytometry: Single cells, many features. Cell. 2016;165(4):780-791.
- Roy D, et al. Zebrafish—A suitable model for rapid translation of effective therapies for pediatric cancers. Cancers (Basel). 2024;16(7):1361.
- White RM, et al. Transparent adult zebrafish as a tool for in vivo transplantation analysis. Cell Stem Cell. 2008;2(2):183-189.
- MacRae CA, Peterson RT. Zebrafish as tools for drug discovery. Nat Rev Drug Discov. 2015;14(10):721-731.
- Miao KZ, et al. Tipping the scales with zebrafish to understand adaptive tumor immunity. Front Cell Dev Biol. 2021;9:660969.
- Povoa V, et al. Innate immune evasion revealed in a colorectal zebrafish xenograft model. Nat Commun. 2021;12(1):1156.
- Wang J, et al. Novel mechanism of macrophage-mediated metastasis revealed in a zebrafish model of tumor development. Cancer Res. 2015;75(2):306-315.
- Loveless R, Shay C, Teng Y. Unveiling tumor microenvironment interactions using zebrafish models. Front Mol Biosci. 2020;7:611847.
- Dee CT, et al. CD4-transgenic zebrafish reveal tissue-resident Th2- and regulatory T cell-like populations and diverse mononuclear phagocytes. J Immunol. 2016;197(9):3520-3530.
- Murali Shankar N, et al. Preclinical assessment of CAR-NK cell-mediated killing efficacy and pharmacokinetics in a rapid zebrafish xenograft model of metastatic breast cancer. Front Immunol. 2023;14:1254821.
- Tan KE, et al. LMO1 expression in neuroblastoma cells reprograms tumor-associated macrophages to promote metastasis. iScience. 2026;29(3):115144.
- Fior R, et al. Single-cell functional and chemosensitive profiling of combinatorial colorectal therapy in zebrafish xenografts. Proc Natl Acad Sci U S A. 2017;114(39):E8234-E8243.
- Fazio M, et al. Zebrafish patient avatars in cancer biology and precision cancer therapy. Nat Rev Cancer. 2020;20(5):263-273.
- Qin X, et al. CKLF instigates a “cold” microenvironment to promote MYCN-mediated tumor aggressiveness. Sci Adv. 2024;10(11):eadh9547.
- Ludin A, et al. CRATER tumor niches facilitate CD8+ T cell engagement and correspond with immunotherapy success. Cell. 2025;188(24):6720-6736.e26.
- Zhu S, et al. LMO1 synergizes with MYCN to promote neuroblastoma initiation and metastasis. Cancer Cell. 2017;32(3):310-323.e5.
- Tao T, et al. The pre-rRNA processing factor DEF is rate limiting for the pathogenesis of MYCN-driven neuroblastoma. Oncogene. 2017;36(27):3852-3867.
- Zimmerman MW, et al. MYC drives a subset of high-risk pediatric neuroblastomas and is activated through mechanisms including enhancer hijacking and focal enhancer amplification. Cancer Discov. 2018;8(3):320-335.
- Dankert EN, Look AT, Zhu S. Unraveling neuroblastoma pathogenesis with the zebrafish. Cell Cycle. 2018;17(4):395-396.
- Langenau DM, et al. In vivo tracking of T cell development, ablation, and engraftment in transgenic zebrafish. Proc Natl Acad Sci U S A. 2004;101(19):7369-7374.
- Lam SH, et al. Development and maturation of the immune system in zebrafish, Danio rerio: A gene expression profiling, in situ hybridization and immunological study. Dev Comp Immunol. 2004;28(1):9-28.
- Zhen A, et al. CD4 ligation on human blood monocytes triggers macrophage differentiation and enhances HIV infection. J Virol. 2014;88(17):9934-9946.
- Ferrero G, et al. The macrophage-expressed gene (mpeg)1 identifies a subpopulation of B cells in the adult zebrafish. J Leukoc Biol. 2020;107(3):431-443.
- Hall C, et al. The zebrafish lysozyme C promoter drives myeloid-specific expression in transgenic fish. BMC Dev Biol. 2007;7:42.
- Lorenzini F, et al. Melanoma innervation, noradrenaline and cancer progression in zebrafish xenograft model. Cell Death Discov. 2025;11(1):260.
- Ramakrishnan G, et al. Real-time imaging reveals a role for macrophage protrusive motility in melanoma invasion. J Cell Biol. 2025;224(2):e202403096.
إعادة الطباعة والأذونات
تم نشر هذه المقالة
الفيديو قريباً