نصف هنا نهجاً لإنتاج أجنة معدلة وراثياً باستخدام تحرير الجينات بواسطة CRISPR-Cas9 ونقل نوى الخلايا الجسدية لإنشاء نماذج أغنام للأمراض البشرية. ويعد هذا النهج مثالياً لتحرير الجينات بدقة في الخلايا المانحة وإنتاج أجنة مستنسخة خالية من التزيق الوراثي.
يتطلب اشتراك JoVE لعرض هذا المحتوى. تسجيل الدخول أو ابدأ نسخة تجريبية مجانية
مقالة منهجية
إنتاج أجنة معدلة وراثياً باستخدام تحرير الجينات ونقل نوى الخلايا الجسدية لإنتاج نماذج أغنام للأمراض البشرية
في هذه المقالة
ملخص
الملخص
تُعد نماذج الحيوانات الكبيرة أدوات قيمة لاستقصاء الأمراض البشرية. فغالباً ما تحاكي الأغنام والخنازير والماعز التشريح والوظائف الفسيولوجية للأعضاء البشرية وتعقيد الأمراض البشرية بشكل أفضل، مما يعز صلتها السريرية مقارنة بالقوارض. تتيح تقنية CRISPR-Cas9 ونقل نوى الخلايا الجسدية (SCNT) توليد نماذج حيوانية كبيرة بدقة وتعددية وتجانس جيني أكبر. وتتمثل الفائدة الرئيسية لهذا النهج، مقارنة بالحقن المجهري للزيجوت، في القدرة على التأكد in vitro من وجود التعديل الجيني المطلوب والطفرات المحتملة خارج الهدف في الخلايا المعدلة جينياً قبل إنتاج الحيوان. علاوة على ذلك، يقضي نقل نوى الخلايا الجسدية (SCNT) على احتمالية حدوث الفسيفساء الجينية، والتي تنتج تكراراً عن الحقن المجهري للزيجوت. نصف هنا عملية توليد خلايا أغنام معدلة جينياً من خلال الربط الطرفي غير المتماثل (NHEJ) والإصلاح الموجه بالتماثل (HDR)، يليه إنتاج أجنة مستنسخة تحمل الطفرات المطلوبة. يتم إدخال التعديلات الجينية عن طريق ترنسفكشن الخلايا الجسدية المستزرعة، وعادة ما تكون أرومات ليفية جنينية، بنظام CRISPR-Cas9. ويتم تقييم كفاءة الطفرة في الخلايا المجمعة عن طريق تفاعل البوليميراز المتسلسل (PCR) وتسلسل سانجر للجينات المعدلة، وتحليلها باستخدام برنامج Tracking of Indels by DEcomposition (TIDE)/Tracking of Insertions, Deletions, and Recombination events (TIDER). يتم إجراء التخفيف المحدود للخلايا المجمعة للحصول على مستعمرات مشتقة من خلية واحدة، والتي يتم فحصها بواسطة PCR وتسلسل DNA للجينات المعدلة. بعد ذلك، يتم تكثير الخلايا المانحة التي تحمل التعديل (أو التعديلات) المطلوبة واستخدامها لتوليد الأجنة عن طريق SCNT. بعد التخفيف المحدود وفحص الخلايا، احتوت 2/14 (19.3%) من المستعمرات المعدلة عبر NHEJ على طفرات تعطيل جيني (KO)، واحتوت 4/56 (7.1%) من المستعمرات المعدلة بواسطة HDR على طفرة F508del. تم تخليق ما مجموعه 370 جنيناً معدلاً جينياً من أربع مستعمرات. تُستخدم هذه الطرق بنجاح للتعديل الجيني الدقيق في الأرومات الليفية الجنينية وتوليد أجنة مهندسة وراثياً لإنتاج نماذج أغنام للأمراض البشرية.
المقدمة
تُعد النماذج الحيوانية أدوات أساسية لفهم الآليات البيولوجية للأمراض البشرية وتطوير علاجات جديدة. ولا تستطيع النماذج المخبرية In vitro، مثل زراعة الخلايا أو العضوانيات، إعادة إنتاج تعقيد الأنواع الفرعية للخلايا والتفاعلات بين الخلايا التي تحدث in vivo داخل الأعضاء1,2. وبناءً على ذلك، توفر الحيوانات نماذج للكائن الحي بأكمله تتيح تفاصيل أكبر عن التفاعلات على المستوى الخلوي والجهازي، وتطور المرض، وسلامة العلاجات. وتُعتبر القوارض كائنات نموذجية عملية نظراً لتكلفتها المنخفضة، وسرعة دورة تكاثرها، وتوصيفها الجيني الشامل. ومع ذلك، فإن نماذج القوارض للأمراض البشرية محدودة بسبب الاختلافات الفسيولوجية والتشريحية عن البشر، فضلاً عن سرعة عملية التمثيل الغذائي لديها وقصر أعمارها3,4. ويتضح ذلك من خلال النسبة العالية من العلاجات التي تم اختبارها في نماذج حيوانية ثم فشلت في التجارب السريرية، والتي استخدمت الغالبية العظمى منها القوارض5,6,7,8. وقد استُخدمت الأغنام والخنازير والماعز والكلاب والرئيسيات غير البشرية لإنتاج نماذج لمجموعة واسعة من الأمراض البشرية، مما قد يساعد في زيادة معدل الترجمة السريرية للعلاجات والأدوية الجديدة3,9,10,1,12. كما توفر هذه الأنواع العديد من المزايا مقارنة بنماذج القوارض بسبب زيادة تشابهها مع البشر. ومن ثم، توفر نماذج الحيوانات الكبيرة للأمراض البشرية أدق النماذج المتاحة وتلعب دوراً حاسماً في ترجمة الدراسات الحيوانية إلى تطبيقات سريرية.
تُعد التكرارات العنقودية المتناوبة منتظمة التباعد القصيرة المتقابلة (CRISPR)-Cas9 طريقة متعددة الاستخدامات وقابلة للبرمجة للتعديل الوراثي للخلايا الحيوانية وإدخال طفرات دقيقة مسببة للأمراض. يعتمد تحرير الجينات بواسطة CRISPR-Cas9 على حمض نووي ريبوزي موجه (gRNA) مكمل للموقع المستهدف، مما يسمح للبروتين 9 المرتبط بـ CRISPR (Cas9) بإحداث كسر مزدوج السلسلة (DSB) بطريقة محددة13. وتتم عملية الإصلاح الخلوي لكسور DSBs بشكل أساسي من خلال آليتين: الربط النهائي غير المتماثل (NHEJ) والإصلاح الموجه بالتماثل (HDR). يقوم مسار NHEJ بإصلاح كسر DSB عن طريق ربط نهايات DNA، وهي آلية عرضة للخطأ قد تؤدي إلى تكوين عمليات إدخال أو حذف عشوائية (indels) في موقع الكسر14. وقد تؤدي هذه الطفرات إلى تعطيل (KO) الجين عن طريق إحداث طفرة إزاحة الإطار أو كودون وقف مبكر، مما يؤدي إلى تعطيل وظيفة الجين. أما عملية HDR، التي تحدث بشكل أساسي خلال مرحلتي S و G2 من الدورة الخلوية، فهي العملية التي تقوم فيها الخلية بإصلاح كسر DSB باستخدام أليل متماثل كقالب للإصلاح15,16. ومن الممكن دمج عمليات إدخال أو حذف أو استبدال محددة، والمعروفة باسم الإدخال الجيني (KI)، عن طريق إدخال قليلة ديوكسي نوكليوتيد أحادية السلسلة (ssODN) اصطناعية أو قالب DNA آخر يحتوي على التعديل المطلوب، والذي يمكن للخلية استخدامه لإصلاح الكسر. كما يمكن استخدام CRISPR-Cas9 للتعديل المتعدد لإدخال طفرات متعددة في وقت واحد لنمذجة الأمراض متعددة الجينات3. ومقارنة بتقنيات تحرير الجينات السابقة مثل نوكليازات إصبع الزنك (ZFNs) أو نوكليازات تأثيرات شبيهة بمنشط النسخ (TALENs)، فإن CRISPR-Cas9 أبسط بكثير وأكثر كفاءة من حيث الموارد للاستخدام في خلايا الحيوانات الكبيرة17. ويمكن استهداف مواقع مختلفة بسهولة عن طريق تصميم gRNA جديد، مما ساعد في تسريع إدخال نماذج حيوانية كبيرة جديدة باستخدام CRISPR-Cas93,13. ومع ذلك، لا تزال هناك عدة قيود، بما في ذلك كفاءة تحرير CRISPR-Cas9، التي يمكن أن تختلف بشكل كبير اعتمادًا على النوع، والبيئة الخلوية، وطبيعة التعديل18,19. وعلى وجه الخصوص، تكون معدلات HDR أقل من معدلات NHEJ وتعتمد بشكل كبير على نوع الخلية، والمواقع الجينومية، ومرحلة الدورة الخلوية20,21. علاوة على ذلك، لا يزال إدخال تعديلات غير مقصودة في مواقع خارج الهدف، أو حتى في مواقع مستهدفة، يمثل مشكلة2. ورغم ذلك، أصبح CRISPR-Cas9 المنصة الأساسية لتحرير الجينات لإنتاج نماذج حيوانية كبيرة مهندسة وراثياً.
تسهل عملية نقل نواة الخلية الجسدية (SCNT) إنشاء أجنة معدلة وراثياً بدقة وتجانس عاليين. تتضمن هذه العملية، التي أُجريت بنجاح لأول مرة في الثدييات عام 1997، نقل نواة خلية إلى بويضة منزوعة النواة23. وتتمتع تقنية SCNT بمزايا عديدة مقارنة بالتقنيات الأخرى، مثل الحقن المجهري للزيجوت، حيث يتم حقن المادة الوراثية أو أنظمة تحرير DNA مباشرة في الزيجوت أو الجنين المبكر24,25,26. وينطوي الحقن المجهري للزيجوت على مخاطر متأصلة من التباين الوراثي، أو الفسيفساء الوراثية (mosaicism)، بين خلايا الجنين، وهو ما قد يحدث إذا تم تضاعف DNA أو انقسام الخلايا قبل التعديل الوراثي27,28,29. وتنخفض قيمة هذه الأجنة الفسيفسائية في النماذج الحيوانية بسبب صعوبة التنميط الجيني والتوصيف الظاهري29. أما في تقنية SCNT، فينفصل تحرير الجينات عن إنتاج الجنين؛ إذ يُشتق كل جنين مستنسخ من خلية واحدة، مما يلغي خطر الفسيفساء الوراثية ويضمن أن يكون الجنين متجانساً وراثياً30,31,32. بالإضافة إلى ذلك، يتم تحرير الخلايا المانحة وفحصها بدقة in vitro للتأكد من النسيلية ووجود التعديل المطلوب قبل البدء بإجراء SCNT، مما يوفر الوقت والموارد25,26. ويكتسب هذا الأمر أهمية خاصة عند إدخال طفرات إدخال محددة (KIs). كما يسمح فحص الخلايا بتحديد الطفرات المحتملة في المواقع غير المستهدفة، مما يقلل من خطر الاضطراب الوراثي في مواقع أخرى. وتعالج هذه المزايا العديد من المخاوف المرتبطة بنظام CRISPR-Cas9. وبناءً على ذلك، توفر تقنية SCNT تحكماً أكبر في الوراثة الجينية للأجنة الناتجة مقارنة بالحقن المجهري للزيجوت، لا سيما في التعديلات الأكثر تعقيداً مثل التعديلات المتعددة، والإدخالات الكبيرة، والأليلات المأنسنة3. ورغم ذلك، تظل تقنية SCNT محدودة بسبب انخفاض كفاءة الاستنساخ، والمتطلبات التقنية، وإعادة البرمجة فوق الجينية غير الطبيعية، والتي قد تؤدي الأخيرة إلى اضطرابات جزيئية وظاهرية في المستنسخات، مما قد يحجب آثار التعديل الوراثي في الحيوانات المؤسسة. ومع ذلك، فإن هذه التغيرات فوق الجينية لا تنتقل إلى الذرية32,3. وبالرغم من هذه القيود، فإن الجمع بين SCNT وCRISPR-Cas9 يتيح هندسة دقيقة للجينوم مع تحكم صارم في وراثة الأجنة، مما يدعم الإنتاج الموثوق لنماذج أمراض الحيوانات الكبيرة دون فسيفساء وراثية. نصف هنا نهجاً مفصلاً للتعديل الوراثي للخلايا الليفية الجنينية للأغنام (SFF) باستخدام إما NHEJ أو HDR، يليه إجراء SCNT لإنتاج أجنة مستنسخة، وذلك بهدف نهائي هو توليد نماذج أغنام للأمراض البشرية. ويعد هذا النهج قابلاً للتطبيق إلى حد كبير على أنواع أخرى من الماشية، على الرغم من أن تحرير الجينات قد يتطلب تحسيناً في أنواع الخلايا المختلفة، حيث يعمل هذا البروتوكول كنقطة بداية مفيدة.
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
البروتوكول
تمت الموافقة على جميع الإجراءات الحيوانية من قبل لجنة الرعاية والاستخدام المؤسسي للحيوان (IACUC: #1508 و #1089) في جامعة ولاية يوتا، وأُجريت وفقاً لإرشادات المعاهد الوطنية للصحة (NIH). وفي هذه الدراسة، استُخدمت أغنام رومني المحلية (Ovis ariesاستُخدمت لعزل الخلايا الليفية الجنينية للأغنام (الملف التكميلي 134). انظر الشكل 1 للحصول على نظرة عامة على البروتوكول.
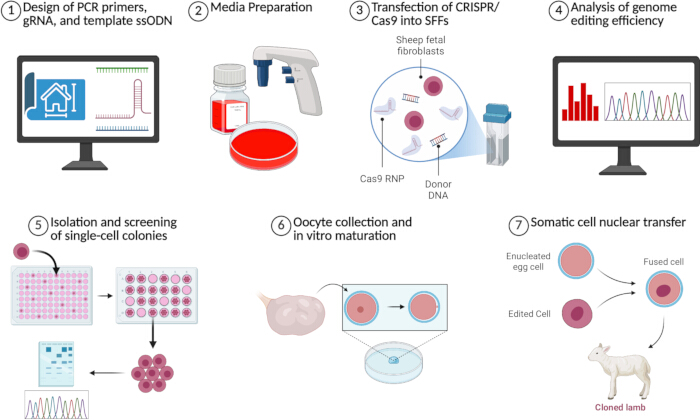
الشكل 1نظرة عامة على طرق CRISPR-Cas9 ونقل نواة الخلية الجسدية (SCNT) المستخدمة لتوليد أجنة معدلة وراثياً. يظهر هنا ملخص لكل خطوة من الخطوات الرئيسية السبعة للبروتوكول. تم التصميم بواسطة BioRender. Perisse, I. (2026). يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
1. تصميم بادئات PCR، والحمض النووي الريبوزي الموجه (gRNA)، والقالب ssODN
- افتح المنطقة الجينومية المراد تحريرها في برنامج Benchling عبر الرابط (https://www.benchling.com/academic).
- صمم بادئات تفاعل البوليميراز المتسلسل (PCR) لتضخيم وتسلسل المنطقة الجينومية المستهدفة.
- حدد المنطقة المستهدفة المراد تضخيمها، بالإضافة إلى 20 زوج قاعدي في الاتجاهين العلوي والسفلي للمنطقة المستهدفة؛ وذلك لضمان وجود مسافة كافية للحصول على قراءات دقيقة للمخططات الكروماتوغرافية (trace calls) وتحليل دقيق لكفاءة الطفرة باستخدام برنامج TIDE.
- انقر على شريط التنقل الموجود على الجانب الأيمن البادئات > تصميم البادئات > معالج.
- تحت المنطقة، انقر استخدام الاختيارتحت القطعة المضخمة (Amplicon)، ضبط الحجم وبناءً على ذلك، قم بتعديل أي معلمات أخرى حسب الرغبة.
- انقر توليد البادئاتاختر زوجاً واحداً أو أكثر من البادئات ذات درجات الجزاء المنخفضة لطلبها.
ملاحظة: بناءً على التعديل الذي سيتم إجراؤه، يُوصى بتصميم بادئات ترتبط فقط بالحمض النووي المعدل بشكل صحيح، وذلك للسماح بفحص أسرع للمستعمرات الإيجابية.
- تصميم الحمض النووي الريبي الموجه (gRNA) لتحرير الحمض النووي (DNA) باستخدام تقنية CRISPR-Cas9.
- في Benchling، قم بتحديد المنطقة المستهدفة المراد تحريرها، ثم اضغط في شريط التنقل الموجود على الجانب الأيمن على تكرارات باليندرومية قصيرة منتظمة متباعدة (CRISPR) > تصميم وتحليل الأدلة الإرشادية.
- انقر على الجينوم اختر جينوم الكائن النموذجي من القائمة المنسدلة أو قم باستيراده، ثم اضبط أي معاملات أخرى حسب الرغبة.
- انقر إنهاء > +.
- تحت منطقة الجينوم، انقر لم يتم تعيين منطقة واختر أو أدخل منطقة الجينوم التي تحتوي على الموقع المستهدف. انقر على تحديد منطقة الجينوم.
- اختر دليلاً واحداً أو أكثر من الأدلة التي تتميز بدرجات عالية لكل من الاستهداف المحدد (on-target) والاستهداف غير المحدد (off-target) لطلبها.
- إذا كنت ستجري تعديلات لإدخال جينات (KI)، فقم بتصميم قالب من الحمض النووي أحادي الخيط قصير القالب (ssODN).
- في شريط التنقل الموجود على الجانب الأيمن، انقر فوق كريسبر (CRISPR) > تصميم قالب الإصلاح الموجه بالتماثل (ssODN)).
- انقر على الجينوم القائمة المنسدلة واختيار أو استيراد جينوم الكائن النموذجي. انقر إنشاء.
- انقر فوق الـ خريطة التسلسل علامة التبويب، وحدد القواعد المراد تحريرها، ثم أنشئ النسخة المعدلة من تسلسل DNA عن طريق كتابة التعديلات المطلوبة باستخدام لوحة المفاتيح. ارجع إلى الـ تصميم نموذج المجهر الإلكتروني النافذ عالي الدقة (HR TEM) انتقل إلى علامة التبويب وانقر التالي.
- اضبط الـ منطقة القالب لتضمين 50 زوجاً قاعدياً على الأقل من أذرع التماثل على كل جانب من موقع التعديل، ثم انقر على التالي.
- أدخل تسلسل الـ gRNA الذي تم اختياره في الخطوة 1.3.5 في الـ دليل صندوق لإدخال طفرات صامتة لتعطيل تسلسل الـ Protospacer Adjacent Motif (PAM). انقر التالي.
- انقر انسخ القالب وطلب قالب الـ ssODN الذي تم إنتاجه.
ملاحظة: تظهر تتابعات بادئات تفاعل البوليميراز المتسلسل (PCR)، والحمض النووي الريبي الموجه (gRNAs) لنظام CRISPR-Cas9، والـ ssODNs القالبية التي صُممت باستخدام Benchling لإنشاء نموذج لمرض التليف الكيسي في الأغنام يحمل إما طفرة تعطيل (KO) أو طفرة F508del في الجدول 1.
2. تحضير الأوساط الزرعية
- يتم تحضير وسط زراعة الخلايا عن طريق تدعيم وسط Dulbecco’s modified Eagle’s medium (DMEM) عالي الغلوكوز بنسبة 15% من مصل جنين البقر (FBS) و1% من البنسلين-ستريبتومايسين (Pen/Strep) (v/v). يتم تدفئة الوسط مسبقاً في حمام مائي عند 37 °C قبل الاستخدام.
- يتم تحضير وسط التجميد عن طريق تدعيم DMEM بنسبة 45% من FBS و10% من ثنائي ميثيل سلفوكسيد (DMSO).
- يتم تحضير وسط جمع البويضات عن طريق تدعيم وسط M19 بنسبة 1% من Pen/Strep، و0.3% من ألبومين المصل البقري (BSA) الجزء V، و1% من FBS، و0.06% من ملح هيبارين الصوديوم.
- يتم طلب أوساط الإنضاج في المختبر (IVM) والزراعة في المختبر (IVC)، وهي أوساط خالية من المصل متوفرة تجارياً ومصاغة لإنضاج البويضات البقرية وزراعة الأجنة على التوالي.
ملاحظة: يتم تحضير أطباق ما بعد الاندماج وأطباق IVC بوضع سبع قطرات سعة 40 µL من وسط IVC وتغطيتها بزيت معدني مختبر للأجنة. - يتم تحضير وسط تجويع الخلايا عن طريق تدعيم DMEM عالي الغلوكوز بنسبة 0.5% من FBS و1% من Pen/Strep (v/v). يتم تدفئة الوسط مسبقاً في حمام مائي عند 37 °C قبل الاستخدام.
- يتم تحضير وسط السائل قناة فالوب الاصطناعي المدعم بـ HEPES (HSOF) كما تم وصفه سابقاً35.
- يتم تحضير وسط استخراج النواة عن طريق تدعيم 50 µL من وسط HSOF بـ 4.5 mM من السكروز و10 µg/mL من Cytochalasin B (CB).
- يتم تحضير أوساط الحقن عن طريق تدعيم 50 µL من وسط HSOF بـ 10 µg/mL من Cytochalasin B (CB).
ملاحظة: يتم تحضير أوساط استخراج النواة والحقن طازجة في يوم إجراء عملية SCNT. يتم وضع قطرة واحدة (200 µL) من كل وسط في أطباق سعة 100 mm وتغطيتها بزيت معدني مختبر للأجنة. - يتم تحضير وسط الاندماج كما تم وصفه سابقاً35. يتم إخراج 5–10 mL من وسط الاندماج من درجة حرارة 4 °C والحفاظ عليها في درجة حرارة الغرفة حتى الاستخدام.
- يتم تحضير وسط CB عن طريق تدعيم وسط IVC بـ 10 µg/mL من CB.
ملاحظة: يتم تحضير طبق CB بوضع سبع قطرات سعة 40 µL من وسط CB وتغطيتها بزيت معدني مختبر للأجنة. - يتم تحضير وسط الإيونوميسين عن طريق تدعيم وسط HSOF بـ 5 µM من ملح إيونوميسين الكالسيوم.
- يتم تحضير وسط التنشيط عن طريق تدعيم وسط IVC بـ 2 mM من 6-Dimethylaminopurine (DMAP) و10 µg/mL من Cycloheximide (CHX).
ملاحظة: يتم تحضير طبق التنشيط بوضع سبع قطرات سعة 40 µL من وسط التنشيط وتغطيتها بزيت معدني مختبر للأجنة.
3. ترنسفكشن CRISPR-Cas9 في خلايا SFFs
- (الظروف) تُنفذ جميع إجراءات زراعة الخلايا داخل كابينة السلامة البيولوجية أو غطاء التدفق الصفائحي. تُزرع خلايا SFFs في قارورة T-25 باستخدام وسط زراعة الخلايا عند 37 °C في بيئة تحتوي على 5% CO2 و5% O2 و90% N2 حتى تصل درجة التلاقي إلى 70%–80% تقريباً قبل عملية التعداء.
- يُزال كل الوسط من القارورة وتُغسل الخلايا مرة واحدة باستخدام 5 mL من محلول Dulbecco’s phosphate-buffered saline (DPBS). تُحضن الخلايا مع 1 mL من إنزيم تفكيك شبيه بالتربسين لمدة 5–10 دقائق حتى تتفكك الخلايا.
- يُخف إنزيم التفكيك الشبيه بالتربسين باستخدام حجم مساوٍ من وسط زراعة الخلايا، ثم تُطرد الخلايا مركزياً عند 200 × g لمدة 5 دقائق.
- (التوقيت) يُحضر معقد البروتين النووي الريبوزي (RNP) المكون من gRNA: Cas9 عن طريق تحضين 2.5 µL من gRNA بتركيز 100 µM مع 2.5 µL من بروتين Cas9 بتركيز 5 µg/µL لمدة 10 دقائق في درجة حرارة الغرفة.
ملاحظة: قد تتطلب نسب Cas9 RNP: gRNA تحسيناً اعتماداً على نوع الخلايا، والجين المستهدف، وعدد الأهداف. - يُحضر محلول التثقيب النووي (nucleofection) بدمج 82 µL من محلول التثقيب النووي مع 18 µL من المحلول المكمل.
- يُدمج محلول التثقيب النووي معقد RNP، وفي حال استخدام ssODN، يُضاف 2 µL من ssODN بتركيز 20 µM، ثم يُخلط المزيج بلطف عن طريق الماصة.
- بعد الطرد المركزي، يُزال السائل الطافي بعناية وتوضع الأنبوبة مقلوبة على منديل خالٍ من الوبر لإزالة الوسط المتبقي.
ملاحظة: قد يؤثر وسط الزراعة المتبقي على كفاءة التعداء وحيوية الخلايا. تأكد من إزالة السوائل الزائدة تماماً قبل إعادة تعليق كتلة الخلايا في محلول التثقيب النووي. - (خطوة حرجة) تُعاد تعليق الخلايا الليفية في محلول التثقيب النووي، ثم يُنقل المزيج إلى cuvette تثقيب نووي سعة 10 µL مع تجنب تكون الفقاعات. تُنقر cuvette التثقيب النووي بلطف على سطح صلب لضمان وصول المزيج إلى قاع الـ cuvette.
ملاحظة: قد تتداخل الفقاعات داخل cuvette التثقيب النووي مع عملية التثقيب الكهربائي. - (الإعداد ذو الصلة) تُجرى عملية التثقيب الكهربائي للخلايا باستخدام البرنامج EH-10، أو وفقاً لتوصيات الشركة المصنعة. تُترك الخلايا للتعافي لمدة 10 دقائق في درجة حرارة الغرفة.
- تُنقل الخلايا المثقبة كهربائياً باستخدام ماصة نقل إلى 5 mL من وسط زراعة خلايا متوازن مسبقاً ومكمل بمحفز HDR بتركيز نهائي يتراوح بين 1–2 µM، وهو تركيز قد يتطلب تحسيناً في أنواع الخلايا الأخرى.
- (الظروف) تُزرع الخلايا في وسط زراعة الخلايا عند 37 °C في بيئة تحتوي على 5% CO2 و5% O2 و90% N2 لمدة 48 ساعة قبل عزل الحمض النووي الريبوزي منقوص الأكسجين الجينومي (genomic DNA).
- يُزال الوسط من الخلايا، وتُغسل مرة واحدة بمحلول DPBS، ثم يُضاف 1 mL من إنزيم التفكيك الشبيه بالتربسين.
- بعد انفصال الخلايا، يُضاف 1 mL من وسط زراعة الخلايا لتخفيف إنزيم التفكيك الشبيه بالتربسين.
- يُخصص حوالي ثلثي معلق الخلايا للحفظ بالتجميد والثلث المتبقي لاستخلاص الـ genomic DNA في أنابيب سعة 1.5 mL مصنفة. تُطرد جميع الأنابيب مركزياً عند 20 × g لمدة 5 دقائق.
- تُعاد تعليق كتلة الخلايا المخصصة للحفظ بالتجميد في 50 µL من وسط التجميد. تُنقل الخلايا المعاد تعليقها إلى أنابيب تجميد (cryovials) وتوضع في حاوية تجميد ذات معدل محكوم عند -80 °C، مع تقليل الوقت الذي تقضيه الخلايا في وسط التجميد قبل نقلها إلى -80 °C.
- تُعاد تعليق كتلة الخلايا المخصصة لاستخلاص الـ DNA في 20 µL من محلول DPBS. يُستخلص الـ genomic DNA باستخدام طقم تنقية الـ genomic DNA وفقاً لتعليمات الشركة المصنعة.
4. تحليل كفاءة تحرير الجينوم
- قم بتضخيم المواضع المستهدفة من الحمض النووي المستخلص باستخدام بوليميراز الحمض النووي عالي الدقة وبادئات تفاعل البوليميراز المتسلسل التي صُممت مسبقاً.
- تأكيد تضخيم تفاعل البوليميراز المتسلسل (PCR) بواسطة الرحلان الكهربائي لهلام الأغاروز في هلام أغاروز بتركيز 1% مع سلم حمض نووي (DNA ladder) بحجم 1 كيلوباز.
- قم بتنقية نواتج تفاعل البوليميراز المتسلسل (PCR) باستخدام طقم تنقية الـ PCR، ثم أرسلها لإجراء تسلسل سانجر (Sanger sequencing).
- إذا تم إجراء تعطيل جيني (KO)، فاستخدم برنامج TIDE (https://apps.datacurators.nl/tide) لتقييم كفاءة التحرير.36استخدم مخططات كروماتوغرافية عالية الجودة مع حد أدنى من إشارة الخلفية لضمان دقة تحليل كفاءة التحرير.
- افتح برنامج TIDE وقم بتسمية العينة في الـ رسم بياني للعنوان صندوق. تحت تسلسل الدليل، أدخل تسلسل الـ gRNA المستخدم.
- تحت كروماتوغرام عينة الضبط، انقر تصفح وقم برفع المخطط الكروماتوغرافي لعينة الضبط غير المعدلة.
- تحت كروماتوغرام عينة الاختبار، انقر تصفح وقم بتحميل المخطط الكروماتوغرافي لعينة الاختبار المُعدّلة.
- انتقل إلى التحلل انقر على علامة التبويب لعرض طيف عمليات الإدخال والحذف (indel spectrum) وكفاءة الطفرة. تحقق من قيمة R2 القيمة الموجودة في الزاوية العلوية اليمنى من طيف عمليات الإدراج والحذف (indel spectrum).
- إذا كانت قيمة R2 القيمة أقل من 0.9، تحقق من الـ إعدادات متقدمة الصندوق أدناه المعلمات وقم بضبط منزلقات نافذة المحاذاة (alignment window)، ونافذة التحلل (decomposition window)، وحجم الإنديل (indel size) حتى تصبح قيمة R2 القيمة أكبر من 0.9 وقد تم تحقيق المحاذاة الصحيحة.
- إذا تم إجراء إدخال جيني (KI)، فاستخدم برنامج TIDER (https://apps.datacurators.nl/tider) لتقييم كفاءة التحرير.37.
- افتح برنامج TIDER. قم بتسمية العينة في الـ مخطط العنوان صندوق. تحت تسلسل الدليل، أدخل تسلسل الـ gRNA المستخدم.
- تحت كروماتوغرام عينة الضبط، انقر تصفح وقم بتحميل المخطط الكروماتوغرافي لعينة الضبط غير المعدلة.
- تحت الكروماتوجرام المرجعي، انقر تصفح وقم بتحميل مخطط كروماتوغرافي لعينة مرجعية تحمل التعديل المطلوب.
ملاحظة: في حال عدم وجود مثل هذا التسلسل، يمكن توليده عن طريق التضخيم باستخدام تفاعل البوليميراز المتسلسل (PCR) باستخدام بادئات إضافية مصممة لإدخال الطفرة في تسلسل الحمض النووي (DNA).38. - تحت كروماتوغرام عينة الاختبار، انقر تصفح وتحميل المخطط الكروماتوغرافي لعينة الاختبار المعدلة.
- انتقل إلى التحلل علامة تبويب لعرض طيف الإدراج والحذف (indel spectrum)، وكفاءة الطفرة، وكفاءة الإصلاح الموجه بالتماثل (HDR efficiency). تحقق من R2 القيمة الموجودة في الزاوية العلوية اليمنى من طيف عمليات الإدراج والحذف (indel spectrum).
- إذا كانت قيمة R2 القيمة أقل من 0.9، تحقق من الـ إعدادات متقدمة صندوق أسفل المعايير وقم بضبط أشرطة التمرير الخاصة بنافذة المحاذاة، ونافذة التفكيك، والمسافة upstream من موقع الكسر، وحجم indel حتى تصبح قيمة R2 القيمة أكبر من 0.9 وتم تحقيق المحاذاة الصحيحة.
ملاحظة: (هام) قد يتطلب الأمر إجراء تسلسل جديد إذا كانت جودة تسلسل الملف ضعيفة.
5. عزل وفحص مستعمرات الخلية الواحدة
- (الشروط) يتم إذابة وتنمية الخلايا الليفية الجلدية (SFFs) المنقولة في قارورة T-25 طوال الليل عند 37 °C مع 5% CO2 و5% O2 و90% N2، أو حتى تصل الخلايا إلى مرحلة تلاقي تبلغ 80% تقريباً.
- يتم إزالة الوسط، وغسل الخلايا مرة واحدة باستخدام 5 mL من DPBS، ثم تفكيك الخلايا باستخدام 1 mL من إنزيم تفكيك شبيه بالتريبسين.
- يُضاف وسط زراعة الخلايا لتخفيف إنزيم التفكيك الشبيه بالتريبسين، ويُنقل معلق الخلايا إلى أنبوب مخروطي سعة 15 mL. تُطرد الخلايا مركزياً عند 20 × g لمدة 5 min.
- يتم التخلص من السائل الطافي وإعادة تعليق كتلة الخلايا في 1 mL من وسط زراعة الخلايا. تُمزج المكونات برفق ولكن بدقة للحصول على معلق متجانس من الخلايا المفردة.
- (خطوة حرجة) يتم تحضير تخفيف بنسبة 1:10 من معلق الخلايا، ثم تُعد الخلايا باستخدام مقياس كرات الدم (hemocytometer) مع صبغة Trypan blue.
- يُحسب حجم معلق الخلايا المخف المطلوب لزراعة خلية واحدة تقريباً في كل بئر.
ملاحظة: بالنسبة لخمس أطباق ذات 96 بئراً، يتم تحضير 50 خلية تقريباً. - يتم تحضير 10 mL من وسط زراعة الخلايا لكل طبق ذو 96 بئراً في أنبوب مخروطي سعة 50 mL.
- يُضاف الحجم المحسوب من معلق الخلايا المخف بنسبة 1:10 إلى وسط الزراعة ويُمزج جيداً عن طريق السحب والضخ الرقيق بالماصة والقلب.
- يُصب معلق الخلايا المخف في خزان كواشف معقم.
- يتم توزيع 10 µL من معلق الخلايا في كل بئر من أطباق الـ 96 بئراً.
- (الشروط) تُحضن الأطباق عند 37 °C في 5% CO2 و5% O2 و90% N2 لمدة 5 days.
- يتم فحص كل بئر تحت المجهر وتحديد الآبار التي تحتوي على مستعمرة واحدة. تُستبعد الآبار التي تحتوي على أكثر من مستعمرة واحدة.
ملاحظة: تكون المستعمرات المشتقة من خلية واحدة عادةً مستديرة، ومتماسكة، ومتجانسة من الناحية المورفولوجية. - تُعاد الأطباق إلى الحاضنة وتُزرع لمدة يومين إضافيين تحت نفس الشروط.
- بعد مرور 7 days إجمالاً من الزراعة في أطباق الـ 96 بئراً، يُزال الوسط من الآبار التي تحتوي على مستعمرة واحدة نامية. يُغسل كل بئر مختار مرة واحدة باستخدام DPBS.
- يُضاف 100 µL من إنزيم التفكيك الشبيه بالتريبسين إلى كل بئر مختار ويُحضن حتى تنفصل الخلايا. يُضاف 10 µL من وسط زراعة الخلايا إلى كل بئر لتخفيف إنزيم التفكيك الشبيه بالتريبسين.
- يُنقل الحجم الكامل من كل بئر إلى بئر واحد في طبق ذو 24 بئراً.
- يُغسل طبق الـ 96 بئراً الأصلي بوسط زراعة خلايا إضافي ويُنقل سائل الغسيل إلى البئر المقابل في طبق الـ 24 بئراً لتحقيق أقصى قدر من استعادة الخلايا. يُرفع الحجم النهائي في كل بئر من أطباق الـ 24 بئراً إلى 50 µL باستخدام وسط زراعة الخلايا.
- (الشروط) تُحضن أطباق الـ 24 بئراً عند 37 °C في 5% CO2 و5% O2 و90% N2 لمدة 3 days.
- تُفحص الآبار تحت المجهر ويتم اختيار المستعمرات القريبة من مرحلة التلاقي.
- يُزال الوسط من الآبار المختارة للتجميع، وتُغسل مرة واحدة باستخدام DPBS، ويُضاف 500 µL من إنزيم التفكيك الشبيه بالتريبسين.
- بعد انفصال الخلايا، يُضاف 1 mL من وسط زراعة الخلايا لتخفيف إنزيم التفكيك الشبيه بالتريبسين.
- يتم تجميد الخلايا وعزل DNA الجينومي وفقاً للخطوات 3.14-3.16.
- يتم تضخيم المواقع المستهدفة بواسطة PCR وتأكيد النمط الجيني عن طريق تسلسل سانجر (Sanger sequencing).
- يتم تحديد مستعمرات النوع البري (wild-type)، والضرب القاضي (KO)، والإدخال المستهدف (KI) بناءً على نتائج التسلسل. يُستخدم تحليل TIDE/TIDER كما هو موضح في الخطوات 4.4 و4.5 لتقدير معدلات إصلاح DNA الموجه بالتماثل (HDR) وأطياف الإدراج والحذف (indel) للتحقق من التحرير الصحيح وتحديد المستعمرات غير المشتقة من خلية واحدة.
ملاحظة: يمكن أيضاً إجراء تحليل التأثيرات خارج الهدف في هذه الخطوة (الملف التكميلي 1). - يتم توسيع المستعمرات ذات النمط الجيني المطلوب والمورفولوجيا الخلوية الطبيعية فقط من أجل تجارب نقل نواة الخلية الجسدية (SCNT) اللاحقة.
6. جمع البويضات الضأنية والإنضاج in vitro
- جمع مبايض الأغنام من مسلخ محلي ونقلها إلى المختبر في محلول ملحي بنسبة 0.9% عند درجة حرارة 25 °C خلال 4 h من وقت الجمع.
- إنضاج البويضات in vitro.
- تحرير معقدات الخلايا الركامية والبويضية (COCs) من المبايض باستخدام شفرة مشرط عن طريق تقطيع سطح المبيض أثناء غمره في وسط جمع البويضات.
- (التوقيت) اختيار معقدات COCs التي تحتوي على 1–3 طبقات على الأقل من الخلايا الركامية المتراصة وسيتوبلازم متجانس لعملية IVM. غسل معقدات COCs في وسط جمع بويضات جديد وزراعتها في وسط IVM متوازن مسبقاً، بمعدل يصل إلى 40 من معقدات COCs لكل بئر يحتوي على 50 µL من وسط IVM في طبق مكون من 4 آبار، ثم تحضينها عند درجة حرارة 38.5 °C مع 5% CO2 لمدة 21–2 h.
- التحقق من إنضاج البويضات.
- نقل العدد المطلوب من معقدات COCs باستخدام ماصة 20 µL إلى أنبوب طرد مركزي دقيق سعة 1.5 mL، مع إضافة نفس الحجم (1:1) من hyaluronidase بتركيز 0.6 mg/mL إلى الأنبوب.
- سحب ودفع المحلول المخلوط بالماصة صعوداً وهبوطاً حتى تتم إزالة جميع الخلايا الركامية. نقل البويضات إلى قطرة HSOF سعة 1 mL وغسل البويضات عبر ثلاث قطرات إضافية من HSOF.
- باستخدام ماصة فموية أو ماصة 10 µL مع طرفها، يتم دحرجة واختيار البويضات التي تظهر جسماً قطبياً تحت المجهر المجسم (stereomicroscope). تتراوح معدلات طرد الجسم القطبي المقبولة بين 50%–80%.
7. نقل نواة الخلية الجسدية
- تحضير الخلايا المانحة قبل عملية نقل نواة الخلية الجسدية (SCNT).
- إذابة الخلايا المحفوظة بالتجميد قبل 3-5 أيام من عملية SCNT في حمام مائي عند 37 °C لمدة 1-2 دقيقة حتى يختفي الجليد من الأنبوب.
- سحب معلق الخلايا وإضافة حجم مساوٍ من وسط زراعة الخلايا في أنبوب طرد مركزي سعة 15 mL، ثم الطرد المركزي عند 406 x g لمدة 5 دقائق.
- إزالة السائل الطافي وإعادة تعليق كتلة الخلايا في 50 µL من وسط زراعة الخلايا.
- (الظروف) استزراع الخلايا بتراكيز مختلفة في طبق ذو 4 آبار بحجم نهائي قدره 50 µL لكل بئر، والتحضين عند 37 °C مع 5% CO2 و5% O2 و90% N2.
- استبدال وسط زراعة الخلايا كل 48 ساعة. بعد وصول الخلايا إلى مرحلة التلاقي الكامل (full confluency)، يتم الاستبدال بوسط تجويع الخلايا قبل 24-48 ساعة من عملية SCNT.
ملاحظة: قد يؤدي تجويع الخلايا لأكثر من 48 ساعة إلى زيادة نسبة الموت الخلوي المبرمج (apoptosis)39,40.
- تحضير الخلايا المانحة (في يوم عملية SCNT).
- إزالة وسط التجويع من البئر والغسل مرة واحدة باستخدام 50 µL من DPBS (-).
- إضافة 250 µL من إنزيم تفكيك شبيه بالتريبسين (trypsin-like dissociation enzyme) والتحضين عند 37 °C لمدة 5 دقائق، أو حتى تنفصل الخلايا عن الطبق.
- إضافة 50 µL من وسط زراعة الخلايا لتخفيف إنزيم التفكيك الشبيه بالتريبسين.
- نقل الخلايا إلى أنبوب طرد مركزي سعة 15 mL والطرد المركزي عند 406 x g لمدة 5 دقائق.
- إزالة السائل الطافي وإعادة تعليق الخلايا في 60–80 µL من وسط HSOF والحفظ عند 4 °C حتى الاستخدام.
- إزالة النواة من البويضات.
- تحضير ماصات التثبيت عن طريق سحب شعيرات زجاجية رقيقة الجدران باستخدام ساحبة الماصات الدقيقة (micropipette puller) وتشكيلها باستخدام الميكروفورج (microforge) للوصول إلى قطر داخلي قدره 30 µm وقطر خارجي قدره 100 µm.
ملاحظة: يمكن أيضاً شراء كلتا الماصتين من موردين تجاريين. - تحضير ماصات الحقن عن طريق سحب شعيرات زجاجية رقيقة الجدران بماسحة دقيقة، وشطف الطرف بزاوية 45° باستخدام مطحنة دقيقة (microgrinder)، وتشكيلها بالميكروفورج للوصول إلى قطر داخلي يتراوح بين 20-25 µm. يمكن العثور على معايير ساحبة الماصات الدقيقة والميكروفورج والمطحنة الدقيقة في تقرير سابق41.
- نقل البويضات في مرحلة الطور الاستوائي الثاني (MII) التي أظهرت جسماً قطبياً إلى قطرة من وسط إزالة النواة. تثبيت البويضة باستخدام ماصة التثبيت بحيث يكون الجسم القطبي في وضع الساعة 4-5.
ملاحظة: يمكن الرجوع إلى التقرير السابق41 لمعرفة إجراءات التشغيل القياسية للتلاعب الدقيق (micromanipulation). - (خطوة حرجة) استخدام ماصة حقن مشطوفة ذات طرف حاد لاختراق المنطقة الشفافة (zona pellucida) وسحب الجسم القطبي و10%-20% من السيتوبلازم الموجود تحت الجسم القطبي.
- دفع السيتوبلازم المُزال إلى القطرة وتحرير البويضة من ماصة التثبيت.
- تكرار الخطوات 7.3.2-7.3.4 لجميع البويضات حتى يتم إزالة النواة من الجميع. إعادة البويضات منزوعة النواة إلى وسط IVM والتحضين عند 38.5 °C و5% CO2 لمدة 30 دقيقة.
- تحضير ماصات التثبيت عن طريق سحب شعيرات زجاجية رقيقة الجدران باستخدام ساحبة الماصات الدقيقة (micropipette puller) وتشكيلها باستخدام الميكروفورج (microforge) للوصول إلى قطر داخلي قدره 30 µm وقطر خارجي قدره 100 µm.
- حقن الخلايا المانحة في البويضات منزوعة النواة.
- إضافة معلق الخلايا المُحضّر إلى قاع قطرة وسط الحقن ونقل البويضات منزوعة النواة إلى القطرة نفسها.
- اختيار 1-10 خلايا مستديرة وسليمة وسحبها داخل ماصة الحقن.
- استخدام ماصة التثبيت لتثبيت البويضة واستخدام ماصة الحقن للاختراق عبر المنطقة الشفافة ووضع خلية واحدة بين المنطقة الشفافة وسيتوبلازم البويضة (ooplasm).
- تكرار الخطوات 7.4.2-7.4.3 لجميع البويضات منزوعة النواة ونقلها إلى 2-3 mL من وسط HSOF في طبق سعة 35 mm قبل عملية دمج الخلايا.
- دمج البويضات منزوعة النواة والخلايا المانحة.
- توصيل كابلات مولد نبضات الدمج الكهربائي بأسلاك غرفة الشريحة الدقيقة (0.5 mm) ووضع الغرفة على منصة المجهر.
- إضافة 60 µL من وسط الدمج إلى الغرفة.
- (إعداد حرج/ذو صلة) محاذاة 4-6 أزواج من (السيتوبلازم-الخلية) بين سلكي الغرفة بحيث تكون الخلية المانحة في وضع الساعة 6 أو 12. تطبيق نبضتي دمج كهربائي تيار مستمر (DC) بقوة 2.0 kV/cm لمدة 40 µs.
- إزالة أزواج (السيتوبلازم-الخلية) من غرفة الدمج والحفاظ عليها في طبق جديد سعة 35 mm يحتوي على 2-3 mL من وسط HSOF.
- (الظروف) تكرار الخطوات 7.5.3-7.5.4 حتى تخضع جميع البويضات المحقونة لعملية الدمج. غسل الأزواج المدمجة في طبق ما بعد الدمج والتحضين عند 38.5 °C مع 5% CO2 و5% O2 و90% N2 لمدة 30 دقيقة. استبدال وسط الدمج في الغرفة كل 15-20 دقيقة.
- تنشيط واستزراع الأجنة.
- (الظروف) بعد 30 دقيقة من الدمج، يتم تحضين جميع الأجنة المدمجة أولاً في وسط CB عند 38.5 °C مع 5% CO2 و5% O2 و90% N2 لمدة 45 دقيقة.
- بعد ذلك، يتم تنشيط الأزواج المدمجة في 5 µM من الإيونومايسين (ionomycin) المخف في HSOF لمدة 5 دقائق، يليه التحضين في وسط التنشيط لمدة 4 ساعات.
ملاحظة: يتم تحضير وسط الإيونومايسين حديثاً قبل الاستخدام. يُوصى بالتنشيط بعد 24-26 ساعة من النضج لتحسين التطور حتى تمام الحمل. - (الظروف) بعد التنشيط، تُغسل الأجنة المُعاد بناؤها وتُستزرع في وسط IVC، بحد أقصى 40 جنيناً لكل قطرة سعة 40 µL عند 38.5 °C مع 5% CO2 و5% O2 و90% N2 طوال الليل أو حتى نقل الأجنة.
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
النتائج
تتلخص الخطوات الرئيسية للبروتوكول في الشكل 1استخدمنا تقنية CRISPR-Cas9 ونقل نواة الخلية الجسدية (SCNT) لتطوير نموذج أغنام لمرض التليف الكيسي (CF) يحتوي إما على طفرة حذف/إدراج (indel) لتعطيل الجين (KO) ناتجة عن الانضمام النهائي غير المتماثل (NHEJ)، أو طفرة F508del ناتجة عن الإصلاح الموجه بالتماثل (HDR). وقد نُشرت أجزاء من هذه النتائج سابقاً.42,43لقد صممنا حمضاً نووياً ريبوزياً موجهاً (gRNAs) وبادئات لتفاعل البوليميراز المتسلسل (PCR pr...
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
المناقشة
في هذا الإجراء، يعد تصميم بادئات (primers) وRNA موجه (gRNAs) وDNA قصير أحادي السلسلة (ssODNs) فعالة أمراً بالغ الأهمية لنجاح تحرير الجينات. إذ يمكن أن يؤدي الارتباط الضعيف لهذه الجزيئات إلى إعاقة تحرير الجينات وتحديد المستعمرات المرغوبة، مما يمنع التقدم إلى عملية نقل نواة الخلية الجسدية (SCNT). ويُوصى بشراء متغيرات متعددة من كل تسلسل لاختبارها وتحسينها قبل البدء في عزل مستعمرات الخلية الواحدة. وعادةً ما يؤدي ترنسفكشن بلازميدات Cas9 لإحداث تعطيل جيني (KO) في الخلايا الليفية إلى كفاءة تحرير دون المستوى الأمثل، لذا يُوصى با...
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
الإفصاحات
استخدم المؤلفون Grammarly (Grammarly Inc.) و ChatGPT (OpenAI) لتحسين اللغة وسهولة القراءة في المخطوطة وفقاً للاستخدامات المقبولة من قبل الناشرين العلميين. لم تُستخدم هذه الأدوات لإنشاء نصوص أصلية، أو مفاهيم بحثية، أو بيانات، أو صور، أو أشكال توضيحية في هذا المقترح. وبعد استخدام هذه الأدوات، قام المؤلفون بمراجعة وتحرير المحتوى حسب الحاجة ويتحملون المسؤولية الكاملة عن هذا المحتوى.
شكر وتقدير
تم دعم هذا العمل جزئيًا من قبل محطة تجارب يوتا الزراعية (UTAO1328) ومؤسسة التليف الكيسي (منحة POLEJA23PO).
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| سلم DNA بحجم 1 kb | Thermo Fisher Scientific | SM0313 | علامة تحديد حجم DNA |
| أنبوب طرد مركزي سعة 15 mL | Thermo Fisher Scientific | 12-565-269 | |
| أنبوب طرد مركزي دقيق سعة 1.5 mL | Thermo Fisher Scientific | 05-408-129 | |
| وحدة 4D-Nucleofector Core Unit | Lonza | AAF-103B | |
| وحدة 4D-Nucleofector X Unit | Lonza | AAF-103X | |
| طبق بـ 4 فجوات | Nunc | 144 | |
| أنبوب طرد مركزي سعة 50 mL | Thermo Fisher Scientific | 12-565-270 | |
| 6-DMAP | Sigma-Aldrich | D2629 | |
| طبق بـ 24 فجوة | Corning | 3524 | توسيع الخلايا |
| طبق بـ 96 فجوة | Corning | 3596 | عزل مستعمرات الخلية الواحدة |
| أجاروز | Thermo Fisher Scientific | BP160-100 | الترحيل الكهربائي لهلام الأجاروز |
| كأس زجاجي (250 mL) | Kimble | 140-250 | |
| برنامج Benchling | Benchling | https://www.benchling.com/academic | محاذاة وتحليل التسلسل |
| وسط IVC | IVF Bioscience | 7105 | |
| وسط IVM | IVF Bioscience | 7101 | |
| BSA | Gold Bio | A-421-250 | |
| BTX ECM | BTX | ECM-20 | معدة (متوقفة عن الإنتاج) |
| غرفة شرائح دقيقة BTX microslide | BTX | 450103 | |
| بروتين Cas9 | Integrated DNA Technologies | Custom | تحرير الجينوم باستخدام CRISPR-Cas9 |
| غلوكونات الكلورهيكسيدين (2%) | Aspen Vet | 1584915 | |
| CHX | Sigma-Aldrich | C7698 | |
| برنامج CRISPOR | CRISPOR | https://crispor.gi.ucsc.edu/ | برنامج التنبؤ بالأهداف غير المقصودة |
| أنبوب تجميد Cryovial | Thermo Fisher Scientific | 12-565-163N | |
| سيتوكالاسين ب (Cytochalasin B) | Sigma-Aldrich | C6762 | |
| ثنائي ميثيل سلفوكسيد | Fisher Scientific | BP231-10 | كاشف للحفظ بالتجميد |
| وسط DMEM عالي الجلوكوز | Cytiva | SH3022 | وسط زراعة الخلايا الليفية |
| طقم تنقية DNA | Thermo Fisher Scientific | K0781 | تنقية DNA الجينومي من الدم الكامل |
| DPBS بدون Ca/Mg | Cytiva | SH30256 | يستخدم لغسل الخلايا والأنسجة |
| إيثانول | Pharco | 11020CSGL | |
| مصل جنين البقري | Cytiva | SH30396 | مكمل لزراعة الخلايا |
| ملقط | Skylar | 6-612 | |
| طقم تنقية DNA الجينومي | Qiagen | 69504 | استخلاص DNA الجينومي |
| محلول جنتاميسين | Gibco | 15750-060 | يستخدم في وسط الشطف |
| RNA دليل (Guide RNA) | Integrated DNA Technologies | Custom | RNA دليل لـ CRISPR |
| معز HDR | Integrated DNA Technologies | 107921 | يعز الإصلاح الموجه بالتجانس |
| مقياس كريات الدم (Hemocytometer) | Hausser Scientific | 02-671-10 | عد الخلايا |
| ملاقط مرقئة (Hemostats) | Roboz Surgical | RS-784 | |
| ملح صوديوم الهيبارين | Sigma-Aldrich | H3149 | |
| بوليميراز DNA ذات بداية ساخنة (Hot-Start) | Promega | M5123 | تضخيم PCR |
| هيالورونيداز | Sigma-Aldrich | H3506 | |
| أيونوميسين | Sigma-Aldrich | I0634 | |
| وسط M19 | Cytiva | SH30253.01 | |
| شاشة شبكية (40 مش) | Sigma-Aldrich | S-0770 | حجم الفتحة 380 μm |
| جهاز Microforge | Narishige | MF-9 | |
| مطحنة دقيقة (Microgrinder) | Narishige | EG-4 | |
| ساحب الماصات الدقيقة | Sutter Instrument Co | P-87 | |
| زيت معدني | Kitazato/Dibimed | 96014 | |
| ماصة فموية | Thermo Fisher Scientific | 13-678-20D | ماصات باستور مخصصة للاستخدام مرة واحدة |
| حاوية تجميد Mr. Frosty | Thermo Fisher Scientific | 15-350-50 | حاوية تجميد ذات معدل محكوم |
| Nucleocuvette | Lonza | V4XP-3032 | كوفيت للتثقيب الكهربائي |
| طقم P3 Primary Cell 4D-Nucleofector X Kit L | Lonza | V4XP-3024 | يتضمن محلول nucleofection، ومحلول مكمل، وnucleocuvettes، وماصات نقل |
| طقم تنقية PCR | Qiagen | 2806 | تنقية نواتج PCR |
| بنسلين-ستربتومايسين | Gibco | 15070-063 | مكمل مضاد حيوي |
| طبق بتري (10 mm) | Nunc | 172958 | |
| طبق بتري (35 mm) | Nunc | 150460 | |
| خزان كواشف | CELLTREAT | 3054-103 | |
| مشرط | MedBlades | MB 2-2 | |
| مقص | Roboz Surgical | RS-6802 | |
| قالب مانح من أوليجوديوكسينوكليوتيد أحادي السلسلة | Integrated DNA Technologies | Custom | قالب مانح لـ HDR |
| كلوريد الصوديوم | Thermo Fisher Scientific | BP358-212 | للمحلول الملحي |
| سكروز | Sigma-Aldrich | S188 | |
| صينية جراحية | Approved Vendor | 74262 | |
| صبغة SYBR Safe لـ DNA | Thermo Fisher Scientific | S33102 | صبغة هلام DNA |
| دوارق T-25 | Thermo Fisher Scientific | 156367 | دورق لزراعة الخلايا |
| دورق T-75 | Corning | 430641U | دورق لزراعة الخلايا |
| أنبوب شعري زجاجي رقيق الجدار | World Precision Instruments | TW100-6 | |
| برنامج TIDE/TIDER | TIDE/TIDER | https://tide.nki.nl/ | برنامج تحليل تحرير الجينوم |
| أزرق تريبان | Cytiva | SV3084 | |
| TrypLE Express | Gibco | 12605-010 | إنزيم تفكيك شبيه بالتريبسين |
المراجع
- Chang MCJ, Grieder FB. The continued importance of animals in biomedical research. Lab Anim (NY). 2024;53(11):295-297.
- Bhaduri A, et al. Cell stress in cortical organoids impairs molecular subtype specification. Nature. 2020;578(7793):142-148.
- Lin Y, et al. Application of CRISPR/Cas9 system in establishing large animal models. Front Cell Dev Biol. 2022;10:919155.
- Seok J, et al. Genomic responses in mouse models poorly mimic human inflammatory diseases. Proc Natl Acad Sci U S A. 2013;110(9):3507-3512.
- Ineichen BV, et al. Analysis of animal-to-human translation shows that only 5% of animal-tested therapeutic interventions obtain regulatory approval for human applications. PLoS Biol. 2024;22(6):e3002667.
- Schuh JCL. Trials, tribulations, and trends in tumor modeling in mice. Toxicol Pathol. 2004;32(1):53-66.
- Mak IW, Evaniew N, Ghert M. Lost in translation: animal models and clinical trials in cancer treatment. Am J Transl Res. 2014;6(2):114-118.
- Domínguez-Oliva A, et al. The importance of animal models in biomedical research: current insights and applications. Animals (Basel). 2023;13(7):1223.
- Li XJ, Lai L. A booming field of large animal model research. Zool Res. 2024;45(2):311-313.
- Pinnapureddy AR, et al. Large animal models of rare genetic disorders: sheep as phenotypically relevant models of human genetic disease. Orphanet J Rare Dis. 2015;10(1):107.
- Polejaeva IA, Rutigliano HM, Wells KD. Livestock in biomedical research: history, current status and future prospective. Reprod Fertil Dev. 2015;28(2):112-124.
- Kelly OM, et al. Towards clinical translation of nanomedicines: formulation scale-up and model systems. Adv Drug Deliv Rev. 2026;234:115862.
- Jinek M, et al. A programmable dual-RNA-guided DNA endonuclease in adaptive bacterial immunity. Science. 2012;337(6096):816-821.
- Pfeiffer P, Vielmetter W. Joining of nonhomologous DNA double strand breaks in vitro. Nucleic Acids Res. 1988;16(3):907-924.
- Thomas KR, Capecchi MR. Site-directed mutagenesis by gene targeting in mouse embryo-derived stem cells. Cell. 1987;51:503-512.
- Takata M, et al. Homologous recombination and non-homologous end-joining pathways of DNA double-strand break repair have overlapping roles in the maintenance of chromosomal integrity in vertebrate cells. EMBO J. 1998;17(18):5497-5508.
- Jiang S, Shen QW. Principles of gene editing techniques and applications in animal husbandry. 3 Biotech. 2019;9(1):28.
- Javaid N, Choi S. CRISPR/Cas system and factors affecting its precision and efficiency. Front Cell Dev Biol. 2021;9:761709.
- Wang J, et al. Application of gene editing technology in livestock: progress, challenges, and future perspectives. Agriculture (Basel). 2025;15(20):2155.
- Saleh-Gohari N, Helleday T. Conservative homologous recombination preferentially repairs DNA double-strand breaks in the S phase of the cell cycle in human cells. Nucleic Acids Res. 2004;32(12):3683-3688.
- Miyaoka Y, et al. Systematic quantification of HDR and NHEJ reveals effects of locus, nuclease, and cell type on genome-editing. Sci Rep. 2016;6:23549.
- Wen W, Zhang XB. CRISPR-Cas9 gene editing induced complex on-target outcomes in human cells. Exp Hematol. 2022;110:13-19.
- Schnieke AE, et al. Human factor IX transgenic sheep produced by transfer of nuclei from transfected fetal fibroblasts. Science. 1997;278(5346):2130-2133.
- Tang L, González R, Dobrinski I. Germline modification of domestic animals. Anim Reprod. 2015;12(1):93-104.
- Perisse IV, et al. Improvements in gene editing technology boost its applications in livestock. Front Genet. 2021;11:614688.
- Kwon DH, Gim GM, Yum SY, Jang G. Current status and future of gene engineering in livestock. BMB Rep. 2024;57(1):50-59.
- Mehravar M, Shirazi A, Nazari M, Banan M. Mosaicism in CRISPR/Cas9-mediated genome editing. Dev Biol. 2019;445(2):156-162.
- Niu Y, et al. Generation of gene-modified cynomolgus monkey via Cas9/RNA-mediated gene targeting in one-cell embryos. Cell. 2014;156(4):836-843.
- Yen ST, et al. Somatic mosaicism and allele complexity induced by CRISPR/Cas9 RNA injections in mouse zygotes. Dev Biol. 2014;393(1):3-9.
- Ni W, et al. Efficient gene knockout in goats using CRISPR/Cas9 system. PLoS One. 2014;9(9):e106718.
- Polejaeva IA. 25th anniversary of cloning by somatic cell nuclear transfer: generation of genetically engineered livestock using somatic cell nuclear transfer. Reproduction. 2021;162(1):F11-F22.
- Hodges CA, Stice SL. Generation of bovine transgenics using somatic cell nuclear transfer. Reprod Biol Endocrinol. 2003;1:81.
- Galli C. Current techniques of gene editing in pigs for xenotransplantation. Transpl Int. 2025;38:13807.
- Concordet JP, Haeussler M. CRISPOR: intuitive guide selection for CRISPR/Cas9 genome editing experiments and screens. Nucleic Acids Res. 2018;46(W1):W242-W245.
- Liu Y, et al. A retrospective analysis of sheep generated by somatic cell nuclear transfer. Theriogenology. 2024;227:102-111.
- Brinkman EK, Chen T, Amendola M, van Steensel B. Easy quantitative assessment of genome editing by sequence trace decomposition. Nucleic Acids Res. 2014;42(22):e168.
- Brinkman EK, et al. Easy quantification of template-directed CRISPR/Cas9 editing. Nucleic Acids Res. 2018;46(10):e58.
- Brinkman EK, Van Steensel B. Rapid quantitative evaluation of CRISPR genome editing by TIDE and TIDER. Methods Mol Biol. 2019;1961:29-44.
- Dalman A, et al. Synchronizing cell cycle of goat fibroblasts by serum starvation causes apoptosis. Reprod Domest Anim. 2010;45(5):e46-e53.
- Sadeghian-Nodoushan F, et al. Mimosine as well as serum starvation can be used for cell cycle synchronization of sheep granulosa cells. Chin J Biol. 2014;2014(1):851736.
- Page RL, Malcuit CM. Micromanipulation techniques for cloning. In: Principles of Cloning. Elsevier; 2014. p. 39-51.
- Viotti Perisse I, et al. Sheep models of F508del and G542X cystic fibrosis mutations show cellular responses to human therapeutics. FASEB Bioadv. 2021;3(10):841-854.
- Fan Z, et al. A sheep model of cystic fibrosis generated by CRISPR/Cas9 disruption of the CFTR gene. JCI Insight. 2018;3(19).
- Berthault C, et al. Highly efficient ex vivo correction of COL7A1 through ribonucleoprotein-based CRISPR/Cas9 and homology-directed repair to treat recessive dystrophic epidermolysis bullosa. J Invest Dermatol. 2024;144(6):1322-1333.e13.
- Martufi M, et al. Single-step, high-efficiency CRISPR-Cas9 genome editing in primary human disease-derived fibroblasts. CRISPR J. 2019;2(1):31-40.
- Bloomer H, Khirallah J, Li Y, Xu Q. CRISPR/Cas9 ribonucleoprotein-mediated genome and epigenome editing in mammalian cells. Adv Drug Deliv Rev. 2022;181:114087.
- Blocher R, et al. Effect of laparoscopic ovum pick-up on ovine in vitro oocyte maturation and somatic cell nuclear transfer embryo development. Anim Reprod Sci. 2026;292:108251.
- Campbell KH, Loi P, Otaegui PJ, Wilmut I. Cell cycle co-ordination in embryo cloning by nuclear transfer. Rev Reprod. 1996;1(1):40-46.
- Chen Y, Niu Y, Ji W. Genome editing in nonhuman primates: approach to generating human disease models. J Intern Med. 2016;280(3):246-251.
- Liu D, Cao D, Han R. Recent advances in therapeutic gene-editing technologies. Mol Ther. 2025;33(6):2619-2644.
- Campbell K, Alberio R. Reprogramming the genome: role of the cell cycle. Biosci Proc. 2019.
- Chia G, et al. Genomic instability during reprogramming by nuclear transfer is DNA replication dependent. Nat Cell Biol. 2017;19(4):282-291.
- Wang X, et al. Epigenetic reprogramming during somatic cell nuclear transfer: recent progress and future directions. Front Genet. 2020;11:205.
- Loi P, Iuso D, Czernik M, Ogura A. A new, dynamic era for somatic cell nuclear transfer? Trends Biotechnol. 2016;34(10):791-797.
- Zhao J, et al. Histone deacetylase inhibitors improve in vitro and in vivo developmental competence of somatic cell nuclear transfer porcine embryos. Cell Reprogram. 2010;12(1):75-83.
- Huang J, et al. BIX-01294 increases pig cloning efficiency by improving epigenetic reprogramming of somatic cell nuclei. Reproduction. 2016;151(1):39-49.
- Han C, et al. Overexpression of TET3 in donor cells enhances goat somatic cell nuclear transfer efficiency. FEBS J. 2018;285(14):2708-2723.
- Wang S, et al. Application of gene editing technology in resistance breeding of livestock. Life (Basel). 2022;12(7):1070.
- Houdebine LM. Production of pharmaceutical proteins by transgenic animals. Comp Immunol Microbiol Infect Dis. 2009;32(2):107-121.
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
إعادة الطباعة والأذونات
تم نشر هذه المقالة
الفيديو قريباً